Phasianus versicolor spp (Vieillot, 1825)LC — Preocupación menor
Es el ave nacional de Japón desde 1947. Junto con el faisán cobrizo, ha inspirado numerosas leyendas, mitos, poemas y pinturas del arte japonés. El Fagiano Okayama, club de fútbol con sede en Okayama, tiene una mascota basada en el faisán verde.
🇪🇸 Faisán común o vulgar🇬🇧 Green pheasant🇫🇷 Faisan versicolore🇩🇪 Buntfasan🇮🇹 Fagiano versicolore🇵🇹 Faisão-verde
El faisán verde (Phasianus versicolor) es una especie de la familia Phasianidae y del género Phasianus, propia de Japón y catalogada por la UICN como de preocupación menor. Su relación con el faisán común es estrecha, hasta el punto de que ambos se cruzan con facilidad.
El faisán verde es el faisán de caza de las islas japonesas: un ave de tamaño mediano y cola larga, de cuerpo verde oscuro en el macho y de plumaje pardo arenoso muy moteado en la hembra y en los jóvenes (BOW, 2022; Madge y McGowan, 2002). Es endémico de Japón, donde vive en Honshu, Shikoku y Kyushu y en islas menores como Sado, Yakushima, Tanegashima y las islas Izu; falta en Hokkaido (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). Frecuenta los bordes de bosque, los matorrales, los pastizales y los paisajes modificados por el ser humano (campos de cultivo, plantaciones de té, parques), casi siempre a menos de 1.000 m de altitud (BirdLife, 2025; BOW, 2022; Madge y McGowan, 2002). Los japoneses lo llaman kiji, y es el ave nacional del país desde 1947 (BOW, 2022; Wikipedia (ja, キジ)).
Su posición taxonómica ha sido discutida durante más de un siglo. Beebe (1922) lo aceptó como «buena especie», Delacour y Madge y McGowan lo trataron como especie distinta, Johnsgard lo consideró una «alospecie» muy cercana si no una simple subespecie del faisán común, y la lista de la Sociedad Ornitológica de Japón y la de Clements lo tratan como subespecie de Phasianus colchicus; BirdLife y Birds of the World lo reconocen como especie (Beebe, 1922 (vol. III); BirdLife, 2025; BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (ja, キジ)). Los estudios genéticos que cita BOW apoyan la separación: ambas especies divergieron hace unos 1,19 millones de años, probablemente por aislamiento cuando el archipiélago japonés se separó del continente (BOW, 2022).
El macho mide entre 75 y 89 cm de longitud total y la hembra, entre 53 y 62 cm (Hernández García, 2014; Madge y McGowan, 2002). Pesan unos 900–1.400 g y 692–970 g, respectivamente, según BOW (BOW, 2022). Se reconocen tres subespecies, cuyos machos se oscurecen de norte a sur: versicolor (suroeste de Honshu y Kyushu), tanensis (centro-este de Honshu, islas Izu y Tanegashima y Yakushima) y robustipes (norte de Honshu e isla de Sado); una cuarta forma, tohkaidi, figura en la lista japonesa y en las fotografías de la web, pero la mayoría de los autores la incluyen en robustipes(BOW, 2022; Delacour, 1977; Madge y McGowan, 2002; Pfarr; Wikipedia (ja, キジ)).
La temporada de cría va de marzo a junio. La hembra pone en el suelo de 6 a 15 huevos olivas y los incuba sola durante 23–25 días; los pollos son precoces y se independizan a los 70–80 días, y las aves crían ya al año de edad (BOW, 2022; Hernández García, 2014; Johnsgard, 1986). Se alimenta sobre todo de semillas, granos y frutos, además de helechos, invertebrados y brotes, y en un estudio de 15 estómagos el 99,6 % era materia vegetal (BOW, 2022).
Es una de las aves de caza más populares de Japón. Se abaten unos 500.000 ejemplares al año (la caza de las hembras está prohibida) y, para sostener la población, se liberan aves criadas en cautividad: unos 100.000 al año en los años ochenta según Johnsgard, Madge y BOW, y unos 150.000 según esta ficha (la versión anterior de la web decía, por error, más de 1.500.000) (BOW, 2022; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). La UICN lo clasifica como de preocupación menor desde la primera evaluación en que se le reconoció como especie (2014); en 2025, BirdLife infiere una tendencia creciente a partir de los atlas de nidificación de 1997–2002 y 2016–2021, mientras que BOW cree que la población global declina por la pérdida de hábitat (BirdLife, 2025; BOW, 2022). En cautividad cuesta mucho encontrar ejemplares puros, porque ha sido cruzado de forma constante con el faisán común (Delacour, 1977; Gerrits, 1974; Hernández García, 2014).
Orden Galliformes · familia Phasianidae · subfamilia Phasianinae · género Phasianus Linnaeus, 1758, con otra especie, el faisán común (P. colchicus), que es su especie hermana (BOW, 2022; del Campo, 2006; Delacour, 1977)
Subespecies
Tres en la mayoría de las obras: P. v. versicolor Vieillot, 1825, P. v. tanensis Kuroda, 1919 y P. v. robustipes Kuroda, 1919; la lista japonesa añade P. v. tohkaidi Momiyama, 1922 (BOW, 2022; Pfarr; Wikipedia (ja, キジ))
Bordes de bosque, bosques abiertos, matorrales, pastizales y campos de cultivo, parques y plantaciones de té, de las llanuras a unos 1.000 m (1.100 m según Madge) (BirdLife, 2025; BOW, 2022; Madge y McGowan, 2002)
En el reparto de programas del segundo volumen del libro del autor figura como «no recomendado» (no precisa un plan de conservación ex situ) (Hernández García, 2014)
02
Sistemática y nomenclatura
Un faisán «de muchos colores», una especie que algunos autores tratan como subespecie del común y tres subespecies aceptadas.
El faisán verde pertenece al género Phasianus, que solo tiene otra especie, el faisán común; Vieillot lo describió en 1825 a partir de un ejemplar del museo de París, y su rango de especie ha oscilado entre el pleno reconocimiento y la subordinación al común (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Los «verdaderos faisanes» del género Phasianus son, para Delacour, los de distribución más amplia de todas las faisánidas, desde el sureste de Europa hasta Japón y Formosa, y forman una gran superespecie; las especies de su género se parecen por completo en proporciones, forma y costumbres, y los faisanes verdes de Japón solo difieren de los del continente en el diseño del color (Delacour, 1977). Beebe observaba lo mismo: en la voz, los modos de vida, el cortejo, los huevos y el desarrollo del plumaje hay muy poca diferencia entre el faisán del Cáucaso y el verde, cuyo grito se mezcla con el rumor del Pacífico en la costa japonesa, a unos 8.850 km de distancia (Beebe, 1922 (vol. III)).
Posición taxonómica
Rango
Taxón
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Subfamilia
Phasianinae
Género
Phasianus Linnaeus, 1758
Especie
Phasianus versicolor Vieillot, 1825
Subespecies
P. v. versicolor Vieillot, 1825 · P. v. tanensis Kuroda, 1919 · P. v. robustipes Kuroda, 1919 (la lista de la Sociedad Ornitológica de Japón añade P. v. tohkaidi Momiyama, 1922)
El nombre del género, Phasianus, viene del griego phasianos, «faisán»: Jobling explica que las aves «fasianas» se encontraron por primera vez a orillas del río Fasis, en la Cólquida, que es la actual Georgia, y que en ornitología se usa a menudo phasis como sustituto de phasianus(Jobling, 2010; Johnsgard, 1986). El epíteto específico del faisán común, colchicus, procede de ese mismo país, la Cólquida, a orillas del mar Negro (Jobling, 2010).
El epíteto versicolor es latino y significa «de varios colores» (de vertere, «cambiar», y color); Beebe y Johnsgard lo traducen igual, «multicolor» (Beebe, 1922 (vol. III); Jobling, 2010; Johnsgard, 1986). Jobling advierte de que el mismo adjetivo se ha usado para otras especies sin relación alguna (un loro, un pato, un barbudo y una «corneja variable» de Latham), de modo que el nombre solo se entiende por su autor y su género (Jobling, 2010). Elliot describe el pecho verde del macho adulto como «cambiante» según la luz, y el contraste con el faisán común, de colores cobrizos, es lo que más llama la atención de la especie (Delacour, 1977; Elliot, 1872).
Las subespecies reconocidas llevan nombres de otro origen. Robustipes es latín: robustus, «fuerte», y pes, «pie» (es decir, «de patas robustas») (Jobling, 2010). Tanensis remite a la localidad tipo, la isla de Tanegashima, pero Jobling no incluye una entrada con esa grafía (BOW, 2022; Delacour, 1977; Jobling, 2010). Tohkaidi (grafía de Momiyama; no figura en Jobling) coincide con el nombre japonés de esa forma en la lista de la Sociedad Ornitológica de Japón, トウカイキジ (tokai-kiji), y las fuentes consultadas no explican su etimología (Delacour, 1977; Jobling, 2010; Wikipedia (ja, キジ)). De los sinónimos, kigis es, según Jobling, el nombre japonés kiji del faisán verde (Jobling, 2010). El nombre de la mutación melánica del faisán común, tenebrosus, es el latín «oscuro, sombrío» (Delacour, 1977; Jobling, 2010).
Los autores de los nombres
El autor de la especie, Louis Pierre Vieillot (1748–1831), fue un naturalista y coleccionista francés (Jobling, 2010). Las dos subespecies de 1919 son obra de Nagamichi, marqués de Kuroda (1889–1978), ornitólogo japonés cuyo estudio de 1981 sobre el faisán verde en Japón es la fuente principal de Johnsgard sobre su biología (Jobling, 2010; Johnsgard, 1986). El príncipe Nobusuke Taka-Tsukasa (1888–1959), ornitólogo, coleccionista y escritor, describió en 1943 la forma kigis y publicó la obra The Birds of Nippon (1933) y los Studies on the Galli of Nippon (1943–1944), citados por Delacour (Delacour, 1977; Jobling, 2010). El marqués Masauji Hachisuka (1903–1953) bautizó en 1927 la mutación melánica del faisán común, tenebrosus(Delacour, 1977; Jobling, 2010). Philipp Franz von Siebold (1796–1866), médico alemán al servicio de Holanda y recolector en Japón de 1823 a 1829, es quien envió a Europa los ejemplares con que Temminck ilustró la especie, y Coenraad Jacob Temminck (1778–1858) es el ornitólogo holandés que los publicó en sus Planches Coloriées(Gould (Univ. de Kansas); Jobling, 2010).
El nombre japonés: kiji
En Japón la especie se llama kiji (キジ, caracteres 雉). Según la Wikipedia japonesa, una teoría hace derivar la palabra de la lectura de 瑰雉, «ave hermosa», pero es solo una teoría; el nombre antiguo era kigisu (雉子, きぎす), que el Wamyō ruijushō (primera mitad del siglo X) escribe 木々須 (Wikipedia (ja, キジ)). El carácter 雉 es fonosemántico (矢, sonido; 隹, «ave de cola corta»), y la idea popular de que significa «vuela como una flecha» carece de respaldo (Wikipedia (ja, キジ)). Los naturalistas occidentales anotaron el nombre con grafías distintas, según lo que oían: Heine, de la expedición de Perry, escribió Ki-shi (1854); Beebe, Ki-zhi y Kiji, y en otro pasaje Kaiji, que explica por el grito roto del macho, tan parecido al del faisán común (Beebe, 1922 (vol. III); Elliot, 1872). En japonés, el faisán común se llama kōrai-kiji (コウライキジ, «faisán de Corea»), y la lista de la Sociedad Ornitológica de Japón da a las subespecies del verde los nombres kyushu-kiji (versicolor), kiji (robustipes), shima-kiji (tanensis) y tokai-kiji (tohkaidi) (Wikipedia (ja, キジ); Wikipedia (ja, コウライキジ)).
¿Especie propia o subespecie del faisán común?
La relación entre el faisán verde y el común es la cuestión taxonómica central. Las posiciones de los autores se resumen en la tabla siguiente y se discuten después.
En su clave de los machos de Phasianus, separa versicolor, de partes inferiores totalmente verdes y metálicas, de las formas continentales (Beebe, 1922 (vol. III))
Beebe (1922)
Reúne todas las formas continentales en P. colchicus, pero considera que P. versicolor supera sin duda la prueba de buena especie, por su patrón y por su escasa variación individual (Beebe, 1922 (vol. III))
Especie distinta, por el color: partes inferiores totalmente verdes en el macho y manto mayormente negro en la hembra; forma con el común una superespecie (Delacour, 1977)
Johnsgard (1986)
Alospecie muy cercana, si no simplemente subespecie (cita a Goodwin, 1982); la lista de la AOU de 1983 los trata como subespecies (Johnsgard, 1986)
Oficialmente dos especies; duda de que el verde merezca ese rango, aunque reconoce que es claramente distinto y que hasta las hembras son más oscuras (Robertson, 1997)
Lo trata como subespecie de P. colchicus (versicolor, robustipes, tanensis) (Fuller y Garson, 2000)
Chintaguay (2005–2006)
Especie propia «según las clasificaciones sistemáticas más modernas», aunque otros lo consideran subespecie o variedad (del Campo, 2006)
BirdLife (2025)
Especie, Phasianus versicolor; antes de 2014 la UICN no lo reconocía y lo incluía en P. colchicus siguiendo a Sibley y Monroe (1990, 1993) (BirdLife, 2025)
Birds of the World (2022)
Especie, hermana de P. colchicus; lo suele agrupar bajo esa especie, sobre todo la tradición norteamericana (BOW, 2022)
Sociedad Ornitológica de Japón (2012) y Clements (2015)
Subespecie del faisán común (Phasianus colchicus versicolor), y la forma japonesa del común es kōrai-kiji(Wikipedia (ja, キジ))
Lista IOC y BirdLife (según la Wikipedia japonesa)
Las discrepancias reflejan un caso de límite entre especie y subespecie, no errores de nadie. No se ha podido consultar directamente la lista del IOC (la página consultada no devolvió filas) (BirdLife, 2025; Wikipedia (ja, キジ)).
Los argumentos a favor de la separación son de tres tipos. El primero, morfológico: los machos de todas las formas del continente y de Formosa tienen el manto, los lados del pecho y los flancos de color rojo cobrizo o amarillo, más o menos barrados de negro metálico, de púrpura o de verde oscuro, mientras que los de Japón son enteramente verdes en el manto y en las partes inferiores; la hembra del verde es, además, más oscura y más moteada (Beebe, 1922 (vol. III); Delacour, 1977; Gerrits, 1974). El segundo, genético: BOW recoge que siete loci nucleares y dos mitocondriales apoyan dos especies, que divergieron hace unos 1,19 millones de años, probablemente por especiación vicariante cuando el archipiélago japonés quedó aislado del continente en el Pleistoceno medio, y que las pruebas fósiles sitúan la divergencia en el Pleistoceno temprano (BOW, 2022). El tercero, reproductivo: se ha soltado el faisán común repetidamente en Honshu y esas introducciones han fracasado de forma sistemática; los híbridos y los comunes puros han desaparecido en repetidas ocasiones, lo que sugiere un aislamiento reproductivo, y en Hawái, donde se soltaron las dos especies, el verde y sus híbridos parecen haber desaparecido en gran parte mientras el común sigue prosperando (BOW, 2022; Madge y McGowan, 2002).
Los argumentos a favor de la subordinación al común son, sobre todo, la falta de barreras en cautividad (los híbridos son fértiles) y la escasa diferencia en todo lo que no es color (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986). Johnsgard escribía que el verde es el pariente más cercano del común, que ambos no deben considerarse más que alospecies y que existe la duda de si no deberían tratarse como una sola especie, y recordaba que, donde coinciden por introducción, tienden a hibridar y el verde suele salir perdiendo (Johnsgard, 1986). Beebe hacía notar que, en el cortejo, los huevos, la voz y el desarrollo del plumaje, el verde es prácticamente igual a las formas continentales, pero que su falta de variación individual y su patrón lo distinguen de ellas (Beebe, 1922 (vol. III)). Para el especialista que lea el conjunto, el nombre no cambia lo esencial: se trata de dos poblaciones muy próximas, aisladas por el mar y diferenciadas en el color, con un mestizaje posible pero seleccionado en contra (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Parientes del género
Los dos Phasianus son especies hermanas (BOW, 2022). Johnsgard considera que el género más cercano es Syrmaticus: el faisán de Reeves recuerda mucho el patrón de plumaje de Phasianus, y algunos autores (Yamashina, 1976) han incluido el cobrizo en el mismo género que el común; Johnsgard no ve ninguna ventaja en fundir ambos géneros, porque Syrmaticus ya es grande y los cruces entre Phasianus y Syrmaticus tienen una fertilidad reducida (Johnsgard, 1986). BOW, que se apoya en una filogenia molecular reciente, matiza que Phasianus parece más cercano a un clado que contiene Catreus, Crossoptilon y Lophura, aunque se pensaba que sus parientes más próximos eran los faisanes de cola larga, sobre todo S. reevesii y S. soemmerringii(BOW, 2022). Delacour, por su parte, recordaba que el verde y el común son una de las parejas de superespecies de los faisanes, como lo son los dos pavos reales, y colocaba el género Chrysolophus entre Phasianus y Polyplectron(Delacour, 1977).
Elliot, que escribía en 1872, había notado ya otra afinidad: entre los faisanes de Asia, el de Japón (P. versicolor) tiene como aliado más cercano, curiosamente, al P. elegans del sur de China, con el que comparte más rasgos de color que con cualquier otro del género, aunque reconocía que quizá era exagerado llamarlo su aliado preferente; y comentó que elegans presenta los caracteres que cabría esperar en la descendencia de un cruce entre verde y común, aunque su área, muy lejos de ambas especies, excluye que sea un híbrido (Elliot, 1872). Elliot veía además en Honshu y Kyushu dos grandes islas de Japón con dos faisanes que no existen en ninguna otra parte, de los cuales uno es el verde (Elliot, 1872).
Sinonimia histórica
Los nombres con que se conoció al faisán verde en el siglo XIX recogen su historia de descubrimiento. Beebe (1922) reúne la sinonimia con las referencias de los autores que lo trataron: Phasianus versicolor Vieillot (Galerie des Oiseaux, II, 1825, p. 23, lám. 205); Gray (1829, en la edición de Griffith del Règne animal de Cuvier); Temminck (Planches Coloriées, V, 1830, láminas 486 y 493); Lesson (1831); Schinz (1833 y 1853); Jardine (1834); Gray (1845); Cassin (1856, en la expedición de Perry, lám. I, Shimoda); Gould (Birds of Asia, VII, 1857, lám. 40); Sclater y Wolf (1861) y Sclater (1863); Gray (1867); Elliot (1872); Swinhoe (1875, Hakodate); Blakiston y Pryer (1878, Honshu); Seebohm (1888 y 1890, «islas japonesas excepto Yezo»); Grant (1893 y 1897); Dresser (1903); Buturlin (1904 y 1908); Tegetmeier (1904); Parlett (1906, «variedad blanca»); Mitchell (1911, sobre la viabilidad); y Finn (1911) (Beebe, 1922 (vol. III)).
Además de ese nombre se publicó Phasianus diardi Temminck (1830, texto de Ph. versicolor), sinónimo, y la combinación Phasianus colchicus versicolor de Rothschild (1904) y de Millais (1909) (Beebe, 1922 (vol. III); Elliot, 1872). Cuando Vieillot lo describió, la localidad tipo que dio, «Java», era un error: se ha entendido como un error por Japón y Delacour (que cita a Beebe) la restringe a Nagasaki, en Kyushu; precisa, además, que el ejemplar tipo del museo de París pertenece a la subespecie de corona verde y probablemente procedía de allí (BOW, 2022; Delacour, 1977).
Sinónimos infraespecíficos y su ubicación
Los autores de la primera mitad del siglo XX describieron varias formas locales que las revisiones posteriores han ido incluyendo en las tres subespecies aceptadas. La tabla reúne cada nombre, su autor, su localidad tipo según Delacour y el taxón en que lo incluyen las fuentes.
Nombre
Autor y publicación
Localidad tipo
Incluido en
kiusiuensis
Kuroda, Dobutsugaku Zasshi, 31, 1919, pp. 300 y 309
Madge y BOW imprimen maedius; Delacour, maedaius. BOW imprime «rubustipes» en vez de robustipes y no cita todos los autores y páginas (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Nombres vernáculos
Lengua
Nombre
Fuente
Español
Faisán verde; faisán versicolor; faisán verde del Japón; las subespecies, «faisán verde o versicolor» del Sur, del Pacífico y del Norte
Green pheasant; Japanese pheasant; Japanese green pheasant (Beebe: «Green Japanese Pheasant»); las subespecies: southern, Pacific y northern green pheasant
Los nombres locales y las variantes ortográficas (Ki-shi, Ki-zhi, Kaiji) son transcripciones de oído de naturalistas occidentales (Beebe, 1922 (vol. III); Elliot, 1872).
03
Historia
De los poemas del Kojiki a las jaulas de Knowsley y a las sueltas de caza de hoy.
El faisán verde es una de las aves más antiguas de la cultura japonesa, pero su historia científica es breve: Europa lo conoció a través de los ejemplares que Siebold envió a Holanda, Vieillot le dio nombre en 1825 y los primeros ejemplares vivos llegaron a Holanda hacia 1840 (Beebe, 1922 (vol. III); Delacour, 1977; Gould (Univ. de Kansas)).
Un poema del primer volumen del Kojiki menciona al faisán, y el Man’yōshū contiene seis poemas sobre él (Wikipedia (ja, キジ)). El Okagami (finales del siglo XI) cuenta que Fujiwara no Kanemichi (siglo X) tomaba carne cruda de faisán como aperitivo nocturno (Wikipedia (ja, キジ)).
El Tsurezuregusa (principios del siglo XIV, sección 118) nombra al faisán como el ave comestible de mayor prestigio (Wikipedia (ja, キジ)).
La Histoire naturelle générale des Pigeons et des Gallinacés de Temminck no menciona el ave (Gould (Univ. de Kansas)).
Philipp Franz von Siebold, médico al servicio de Holanda, recolecta en Japón; los ejemplares que envía a Holanda sirven a Temminck para ilustrar a ambos sexos en las Planches Coloriées(Gould (Univ. de Kansas); Jobling, 2010).
Vieillot describe Phasianus versicolor en la Galerie des Oiseaux du Cabinet d’Histoire Naturelle du Jardin du Roi (vol. 2, p. 23, lám. 205), a partir de un ejemplar del museo del Jardín de Plantas de París, probablemente enviado por Siebold o por Temminck; la localidad tipo que da es «Java», que es un error por Japón (BOW, 2022; Delacour, 1977; Gould (Univ. de Kansas)).
Llegan a Holanda (Ámsterdam, según Delacour y Gould; Amberes, según Beebe) los primeros faisanes verdes vivos; el conde de Derby compra un macho y una hembra para su colección de Knowsley, en Cheshire (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Gould (Univ. de Kansas)).
El macho de Knowsley, único superviviente, se cruza con hembras del faisán común y se obtiene, por retrocruzamiento, un linaje casi puro; tras la dispersión de la colección, el príncipe Demidoff envía la mayoría de la progenie a Italia, y John Henry Gurney suelta aves en Norfolk. Hacia 1860, la especie estaba bien establecida en Europa (Beebe, 1922 (vol. III); Delacour, 1977; Gould (Univ. de Kansas)).
Heine, el artista de la expedición del comodoro Perry, ve por primera vez el faisán en la provincia de Izu y dibuja macho y hembra; Cassin publica su relato en 1856 (Beebe, 1922 (vol. III); Elliot, 1872; Gould (Univ. de Kansas)).
Según BOW, las aves se introducen en las principales islas de Hawái (BOW, 2022).
Elliot dedica al «Japanese Pheasant» una lámina de su monografía y recuerda que es una de las tres especies de Phasianus que se cruzan con facilidad en los cotos de Inglaterra y del continente (Elliot, 1872).
Según Delacour se naturaliza en Oregón en 1880; según BOW, en 1882 fracasa el intento de la Colorado State Sportsmen’s Association y en 1885, el del juez Denny en Protection Island (Washington) (BOW, 2022; Delacour, 1977).
Rothschild lo trata como subespecie, Phasianus colchicus versicolor; Buturlin, en su clave de Phasianus (Ibis, 1904), lo separa (Beebe, 1922 (vol. III)).
Se introduce en Honshu, Shikoku y Kyushu la subespecie karpowi del faisán común, procedente de Corea, con lo que se inician los problemas de hibridación (BOW, 2022).
Beebe publica el volumen III de su monografía, con el capítulo sobre el «Green Japanese Pheasant»; Momiyama describe tohkaidi, maedaius, nankaidi y affinis(Beebe, 1922 (vol. III); Delacour, 1977).
Varios envíos de faisanes verdes de Japón llegan a Clères, la colección de Delacour; Delacour supone que el stock más antiguo de Europa era de la forma del sur y que después se importó sobre todo la del norte (Delacour, 1977).
El príncipe Taka-Tsukasa publica The Birds of Nippon (1933) y los Studies on the Galli of Nippon (1943–1944) y describe una forma más, kigis(Delacour, 1977; Jobling, 2010).
La Sociedad Ornitológica de Japón (22 de marzo) lo designa ave nacional, en una decisión no gubernamental ni establecida por ley (Wikipedia (en); Wikipedia (ja, キジ)).
Wisconsin experimenta con faisanes verdes japoneses, con la esperanza de que aniden más tarde que los de collar; no se documentan bien los resultados (Robertson, 1997).
Mayor liberación en Norteamérica: 47.741 aves en Virginia, Tennessee, Luisiana, Washington, Idaho, Kentucky, Nueva York y Maryland (BOW, 2022).
Kuroda publica su estudio sobre el faisán verde en Japón (World Pheasant Association Journal, 6) y Goodwin discute su rango de especie (Johnsgard, 1986).
Se liberan en Japón más de 100.000 aves criadas en cautividad al año, y se abaten unas 500.000 (BOW, 2022; Madge y McGowan, 2002).
La lista de la Sociedad Ornitológica de Japón (2012) lo trata como subespecie del común y reconoce cuatro subespecies; BirdLife lo evalúa por primera vez como especie en 2014 (BirdLife, 2025; Wikipedia (ja, キジ)).
BOW publica la ficha moderna de la especie (2022) y BirdLife actualiza su evaluación en 2025 (BirdLife, 2025; BOW, 2022).
Los primeros observadores: Heine en Shimoda
Los primeros datos de campo de un naturalista occidental proceden de Heine, que participó como dibujante en la expedición del comodoro Perry (1852–1854) (Elliot, 1872; Gould (Univ. de Kansas)). Elliot reproduce, a partir de Cassin, su relato, que Beebe repite casi palabra por palabra (Beebe, 1922 (vol. III); Elliot, 1872). Tras la firma del tratado, la escuadra norteamericana fue a Shimoda, en el extremo sur de la provincia de Izu (Idza en el relato), una larga lengua de tierra montañosa que se extiende hacia el sur desde Honshu, con montañas de entre 1.220 y 1.520 m, los valles muy cultivados y las cumbres de roca desnuda o cubiertas de hierba y arbustos con muchas bayas (Beebe, 1922 (vol. III); Elliot, 1872). Una mañana, al amanecer, Heine desembarcó a cazar aves y, junto a un manantial, a menos de 10 yardas (9 m), levantó con gran ruido a un faisán grande; siguiendo su rumbo llegó a una pequeña meseta de hierba corta y, arrastrándose entre las rocas, se acercó hasta unas 15 yardas (14 m) de un macho adulto y tres hembras que comían bayas en un claro arenoso (Beebe, 1922 (vol. III); Elliot, 1872).
El macho lanzaba su grito de guerra, al que respondía un rival desde otra colina; cuando salía el sol, todos se estiraban y se revolcaban en la arena para sacudirse el rocío. Heine confesó que la escena era tan hermosa que no tuvo corazón para disparar, hasta que un buscador de raíces japonés hizo huir a las aves, y entonces abatió al macho y a una hembra con los dos cañones de su escopeta (Beebe, 1922 (vol. III); Elliot, 1872). El japonés, que dedujo por señas que el extranjero había disparado dos veces seguidas con una sola arma (repitiendo la palabra que Heine tomó por «dos»), le dio el nombre del ave, que Heine anotó como Ki-shi(Beebe, 1922 (vol. III); Elliot, 1872). En una segunda excursión con los tenientes Bent y Nicholson vieron muchos faisanes, pero solo se cazó uno y las aves se mostraron muy recelosas; en las colinas había japoneses con mosquetes de mecha que disparaban sin ver caza, y Heine supuso que lo hacían para ahuyentar a los faisanes y ponerlos a salvo de los extranjeros, pues las leyes de caza de Japón eran tan severas que su cumplimiento se había incluido como artículo especial del tratado con Estados Unidos (Beebe, 1922 (vol. III); Elliot, 1872).
Joseph Wilson, cirujano de la misma expedición, añadió que a mediados de abril de 1854 un japonés llevó al muelle de Shimoda un pollo de faisán obtenido haciendo incubar a una gallina un huevo de faisán salvaje que había recogido en las colinas; y que en junio, cuando el trigo estaba ya maduro y parcialmente cosechado, las aves podían llenar el buche en los trigales y pasar el día escondidas en las colinas, lo que explicaría la dificultad de verlas (Elliot, 1872). Heine y Wilson hablaban de dos faisanes de Japón (el verde y el cobrizo), que, según ellos, viven en los mismos lugares y parecen similares en costumbres, y que son abundantes en las partes meridional y central de Honshu: se oía su canto incluso cerca de Yokohama (Elliot, 1872).
Cómo llegó a Europa
Las fuentes cuentan la llegada a Europa con pequeñas diferencias. Gould recuerda que Temminck no mencionó el ave en su Histoire naturelle des Pigeons et des Gallinacés (1813), pero que sus Planches Coloriées ilustraron a ambos sexos con ejemplares que Siebold envió de Japón a Holanda; que Vieillot dio el primer nombre a partir de un ejemplar del museo del Jardín de Plantas, probablemente enviado por Siebold o por Temminck, y que, en 1857, el único lugar confirmado donde vivía era Japón (Gould (Univ. de Kansas)). El profesor Brandt, de San Petersburgo, comentó que Pallas conocía un faisán parecido cerca de China, pero no se halló registro escrito, y un residente en China creía que el ave también existía allí, aunque podía haber visto un faisán de collar blanco y otro sin collar (Gould (Univ. de Kansas)).
Sobre las primeras aves vivas, Delacour cuenta que se importaron a Ámsterdam en 1840 y que una pareja fue a manos de lord Derby, en Knowsley; la hembra murió pronto, el macho se cruzó con una hembra de cuello negro y las hijas se retrocruzaron con el padre hasta obtener aves de aspecto puro; más adelante llegaron otras desde Japón y hacia 1860 la especie estaba bien establecida en Europa (Delacour, 1977). Beebe, que escribía casi igual, habla de Amberes en lugar de Ámsterdam y precisa que de allí salieron aves a Italia y a Norwich (Beebe, 1922 (vol. III)). Elliot, por su parte, dice que unos treinta años antes de su monografía (1872) se llevaron ejemplares a Holanda y que de la pareja del conde procede, cree, la inmensa mayoría de los faisanes de esta clase que había entonces en las islas británicas (Elliot, 1872).
Gould da el relato más largo: hacia 1840 llegaron aves vivas a Ámsterdam desde Japón; el conde de Derby compró a gran precio un macho y una hembra; la hembra murió antes de llegar a Knowsley y no llegaron más aves a Inglaterra, de modo que todos los faisanes verdes de Gran Bretaña descendían de ese macho y de una hembra de la especie común. La primera cruza dio medios híbridos; retrocruzando con el viejo macho se obtuvieron tres cuartos, y se siguió hasta lograr un stock casi puro. Tras la dispersión de la colección del conde, el príncipe Demidoff compró la mayor parte de la progenie y la envió a Italia, un señor Thompson (superintendente de la casa de fieras de Knowsley) conservó una pareja, y John Henry Gurney, de Norwich, y otros adquirieron el stock menos puro; Gurney soltó aves en Easton y los huevos puestos en su pajarera se incubaron en los cotos, dando origen a las «variedades de Norfolk» (Gould (Univ. de Kansas)). Las aves de Thompson criaron con gran prolificidad y se repartieron (Gould (Univ. de Kansas)). Gould añadía que el faisán común, el de collar y el verde se cruzan con facilidad y su progenie puede criar, y que añadir sangre fresca al stock semidoméstico aumentó el tamaño y el sabor y produjo colores variados (Gould (Univ. de Kansas)).
En la mente de los criadores victorianos, esa mezcla era un problema. Elliot lamentaba ya en 1872 que, de tanto cruzar colchicus, torquatus y versicolor, fuese dificilísimo encontrar un ejemplar libre de mezcla, algo que no mejora el ave y da una raza de bastardos sin interés; aconsejaba mantener pura la sangre y recordaba que los híbridos, en estado salvaje, acaban revirtiendo a uno de los tipos puros (Elliot, 1872). Delacour escribe que la costumbre de cruzar el verde con el común para obtener un buen faisán de caza estropeó gran parte del stock cautivo, aunque en su época seguía habiendo verdes puros en América y en Europa (Delacour, 1977). Beebe cuenta también que, en Tring (Inglaterra), lord Rothschild soltó faisanes de caza con cantidades variables de sangre de colchicus, torquatus e incluso versicolor, y que más tarde, con sangre de pallasi, surgieron faisanes indistinguibles de la forma silvestre satscheuensis(Beebe, 1922 (vol. III)).
Del Japón a Clères: la época de Delacour
Delacour cuenta que entre 1926 y 1938 llegaron varios envíos de Japón a Clères, su colección de Normandía, y que probablemente el stock más antiguo de Europa pertenecía a la forma meridional, versicolor, mientras que después se importó sobre todo la septentrional, robustipes; en los cotos y las pajareras nunca se había distinguido entre las subespecies (Delacour, 1977). Añade que el verde había sido muy buscado para los cotos de Europa, por su vuelo muy rápido y por lo recelosa que es la especie (Delacour, 1977).
Hawái, Norteamérica y otras introducciones
BOW sitúa la llegada del faisán verde a las principales islas de Hawái hacia 1865, y precisa que quedaron poblaciones establecidas, sobre todo en la isla de Hawái; Beebe, en cambio, citaba solo que se introdujo en Oahu y «parecía prosperar», y Johnsgard, que se introdujo localmente en las islas de Hawái, Kauai y Lanai y quizá en Maui (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986). Delacour da como naturalizado en Oregón hacia 1880 y más tarde en Hawái (Delacour, 1977). El resto de las introducciones, con las fechas de las sueltas en Norteamérica, Europa y otras islas, se trata en el capítulo de subespecies y variación (BOW, 2022).
El estudio del faisán verde en el siglo XX
Hasta entrado el siglo XX, los autores se ocuparon sobre todo de describir y de cruzar. Beebe, que viajó a Japón para observar el faisán en su medio, dedica al verde un capítulo muy vivo, con láminas del hábitat junto al monte Fuji y una lámina de un faisán japonés de Hokusai (Beebe, 1922 (vol. III)). Después de él, Kuroda (1919) y Momiyama (1922) describieron subespecies a partir de series de pieles, y Hachisuka demostró en 1927 que la forma oscura que se veía en Inglaterra y Francia, tenebrosus, era una mutación y no un híbrido con el verde (BOW, 2022; Delacour, 1977). Los estudios sobre el terreno se vuelven más precisos con Bohl (1964), la fuente de Johnsgard para los movimientos diarios, el calendario de puesta y las puestas de reposición, y con Kuroda (1981), que cartografió los territorios de los machos en un lugar protegido junto al Palacio Imperial de Tokio (Johnsgard, 1986).
En los últimos decenios el interés se ha desplazado a la conservación y a la genética: BOW cita estudios con siete loci nucleares y dos mitocondriales que fechan hace unos 1,19 millones de años la separación de las dos especies de Phasianus; BirdLife usa los atlas de nidificación de 1997–2002 y 2016–2021 para inferir la tendencia de la población (BirdLife, 2025; BOW, 2022). En el terreno de la cría, el Plan de Acción de los faisanes de la UICN y la WPA (2000) menciona al faisán verde solo para señalar un caso que requiere investigación: el de las razas de faisán de collar nativas de Japón (versicolor, robustipes y tanensis), cruzadas con la raza coreana para criar más aves destinadas a las sueltas cinegéticas (Fuller y Garson, 2000).
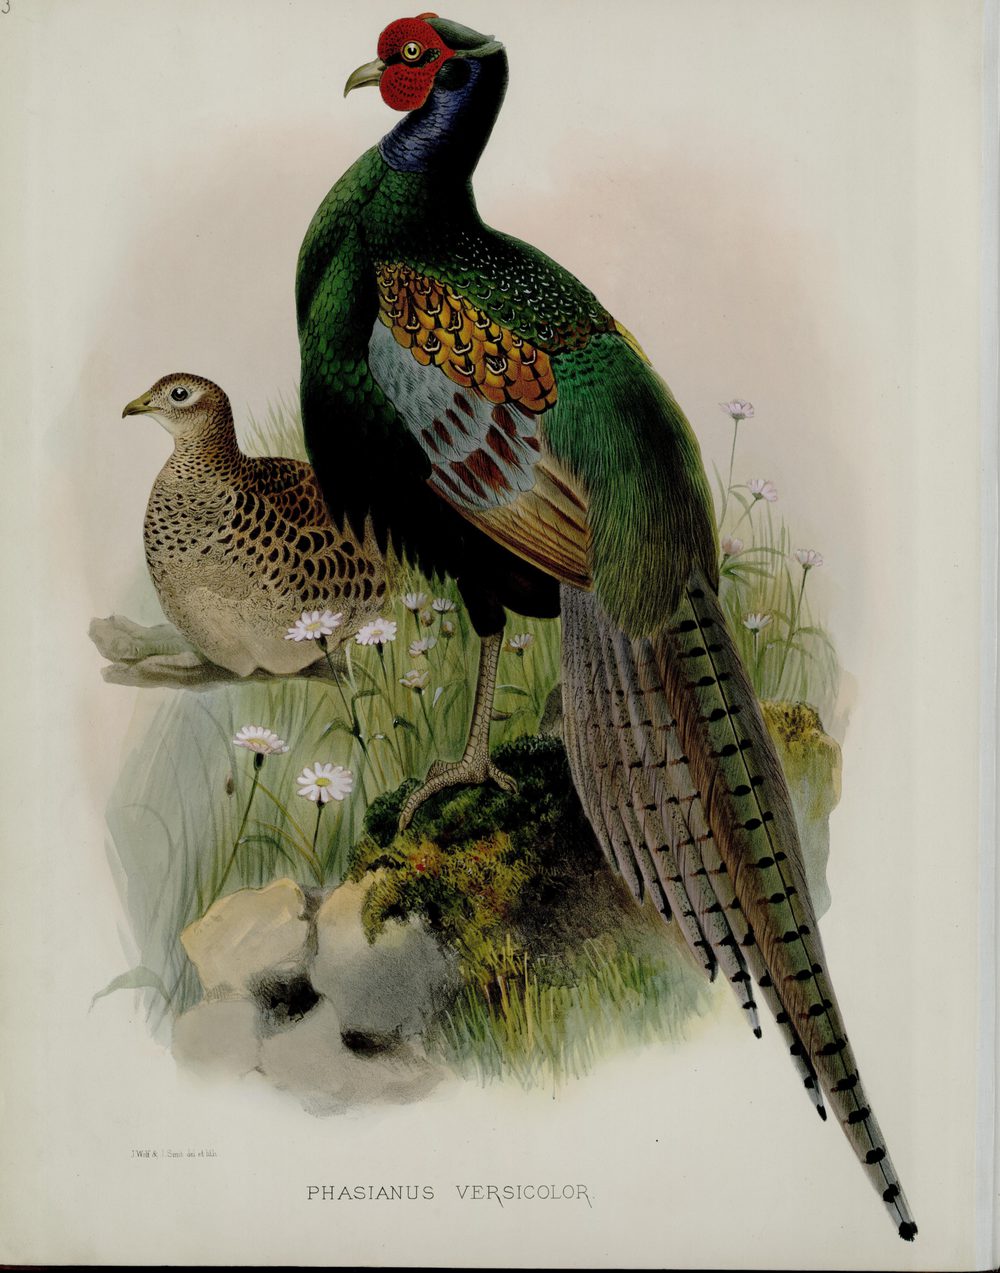
Daniel Giraud Elliot dedicó a esta especie una lámina litográfica, coloreada a mano y rotulada «Phasianus versicolor», en su Monograph of the Phasianidae (1872) (Elliot, 1872 (láminas)). Véase Daniel Giraud Elliot.
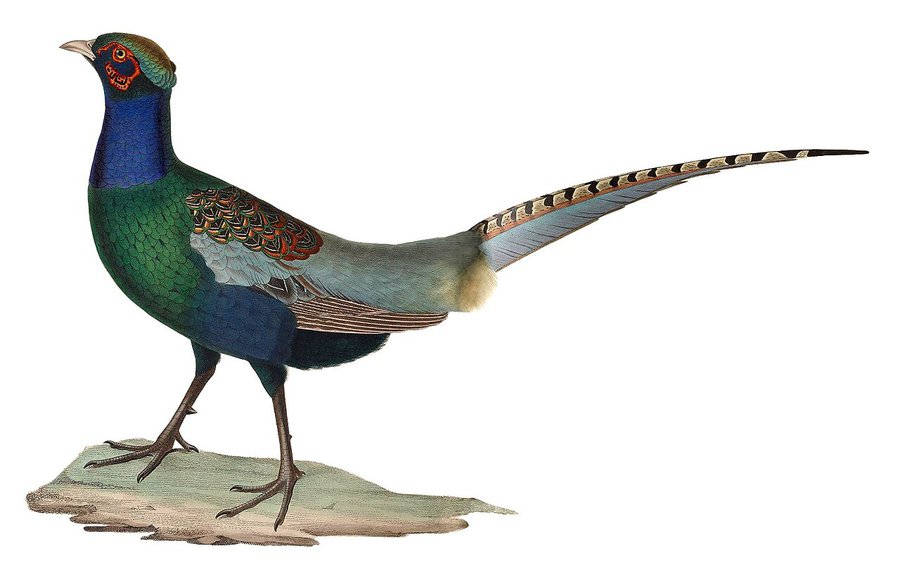
El faisán verde fue figurado en el Nouveau recueil de planches coloriées d’oiseaux de Temminck y Laugier (1830), con dibujos de Nicolas Huet y Jean-Gabriel Prêtre, a partir de los ejemplares que envió Siebold. Véase Coenraad Jacob Temminck.
«Phasianus versicolor», macho; lámina del Nouveau recueil de planches coloriées d’oiseaux de Temminck y Laugier (1830), con dibujos de Huet y Prêtre, a partir de los ejemplares enviados por Siebold. Wikimedia Commons, <a href="https://commons.wikimedia.org/wiki/File:Phasianus_versicolor_male_1838.jpg" target="_blank" rel="noopener">Phasianus versicolor male 1838.jpg</a>; dominio público.
04
Morfología y plumajes
Un macho verde oscuro de cabeza violácea y barbas rojas; una hembra parda arenosa, más oscura y moteada que la del faisán común.
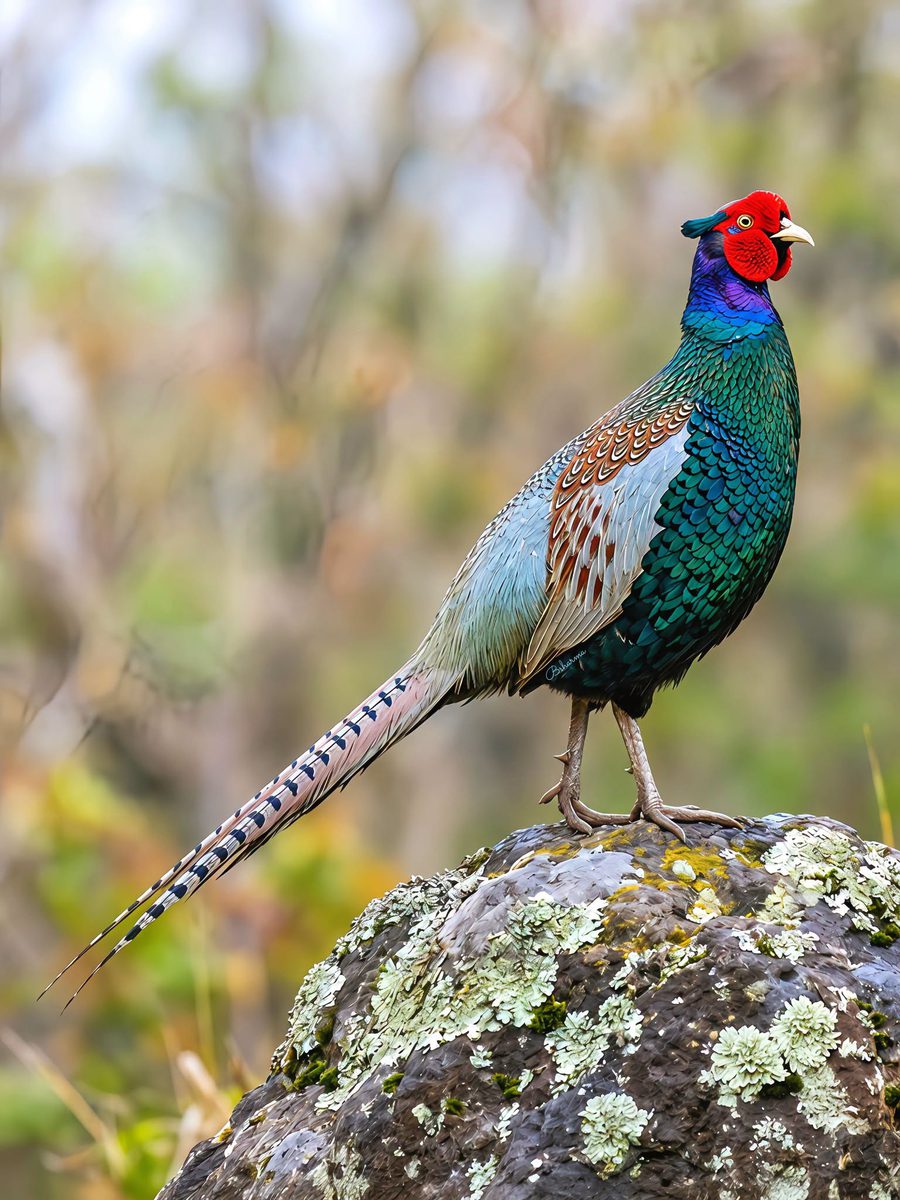
El faisán verde se reconoce a primera vista: el macho es de un verde oscuro iridiscente que de lejos parece negro, con la cabeza violácea y azulada, las barbas rojas y una cola larga barrada; la hembra se parece a la del faisán común, pero es más oscura y está más moteada (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
♂ El macho tiene la corona verde, la garganta azul y el cuello púrpura violeta. El manto es de color verde, con pequeñas rayas en la parte inferior; la espalda y la rabadilla son verdes, matizadas de verde oliva o gris claro, y las rectrices son de color oliva oscuro, con negro y rosado en los bordes. Las coberteras son gris claro con un tinte azul verdoso y, en su mayoría, están marcadas con castaño; las plumas de vuelo son como las de los faisanes comunes. Las patas son fuertes y grisáceas, con espolón, y el ojo es de color claro.
♀ La hembra es básicamente marrón. La parte oscura de las plumas del manto es negra y se vuelve marrón más pálido hacia los bordes. Las patas son fuertes para tratarse de una hembra.
La descripción del macho de la ficha original sigue de cerca la de Delacour y concuerda con el resto de la literatura; los apartados siguientes la contrastan con las descripciones detalladas de Beebe, Delacour, Madge y Birds of the World (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Estructura: alas, cola y espolón
Las alas son moderadamente redondeadas, con diez primarias, trece o catorce secundarias (tres de ellas terciarias) y la primaria más larga entre la sexta y la octava; la décima es entre un 30 % y un 40 % más corta que la más larga (BOW, 2022). Johnsgard, para el género, precisa que la décima primaria es mucho más larga que la primera e igual de larga que la tercera, que el tarso es más largo que el dedo medio con la uña y que el macho lleva espolón (Johnsgard, 1986). La cola, atenuada, tiene entre 16 y 18 rectrices: las hembras suelen tener 16 o 17 y los machos, con más frecuencia, 18; las centrales son de longitud variable (BOW, 2022). Madge cuenta 18 rectrices, graduadas, con el par central más largo y acabado en punta, y desintegradas en los lados cerca de la base; la cola es algo más corta que la del faisán común (Madge y McGowan, 2002). Johnsgard añade que, en la exhibición, las 18 rectrices se abren solo un poco, y que la muda de la cola es «faisánida», es decir, centrípeta (Johnsgard, 1986).
El macho lleva a cada lado de la parte posterior de la cabeza un pequeño penacho eréctil, formado por plumas verdosas ligeramente alargadas en los lados del occipucio, en forma de cuernos o de orejas, pero sin verdadera cresta (BOW, 2022; Madge y McGowan, 2002). Las plumas de la rabadilla y de las supracaudales son sueltas y desintegradas, con flecos en forma de pelo (Beebe, 1922 (vol. III); BOW, 2022; Madge y McGowan, 2002). Es un rasgo del género Phasianus; Beebe señala que en el verde, a diferencia de todas las demás formas del género, no hay manchas laterales de color óxido en la rabadilla, cuyos lados tiran a pizarra azulada o gris glauco (Beebe, 1922 (vol. III)). El espolón del macho es corto y grueso; los machos adultos, y algunas hembras, lo llevan en la parte posterior de la pata, con una longitud máxima de unos 11 mm en el macho más viejo registrado, según BOW (que recoge la ficha original de esta web) (Beebe, 1922 (vol. III); BOW, 2022; Madge y McGowan, 2002). Madge dice que la hembra carece de él, y BOW, que las hembras en muda formativa no tienen espolones (BOW, 2022; Madge y McGowan, 2002).
El macho adulto según cada autor
Las descripciones del macho concuerdan en lo esencial, aunque cada autor insiste en rasgos distintos. La tabla recoge, por zonas del cuerpo, lo que dicen Delacour, Madge, Beebe y BOW; Elliot y Ogilvie-Grant, citado por Johnsgard, aparecen después.
Zona
Delacour (1977)
Madge y McGowan (2002)
Beebe (1922)
BOW (2022)
Cabeza
Corona verde; garganta azul
Cabeza, garganta y cuello superior negruzcos con brillo púrpura y reflejo verde en la corona; pequeños penachos eréctiles a los lados de la nuca
Frente, barbilla y garganta verde hierba; centro de corona y nuca verde bronce; a cada lado una zona blanquecina evanescente, luego verde hierba y azul purpúreo junto al área facial desnuda
Cabeza violácea, con plumas verdosas alargadas a los lados del occipucio en forma de cuernos u orejas; barbas rojas extensas alrededor del ojo, la frente, las aurículas y la región malar
Cuello
Púrpura violeta
Verde oscuro con reflejos púrpura y azules
Todo el cuello inferior y lateral, y una banda estrecha de la nuca, azul purpúreo
Verde intenso, que vira a azulado
Manto
Verde, con pequeñas vermiculaciones ante en la parte baja
Verde oscuro, con marcas subterminales ante
Verde oscuro (teñido de púrpura salvo en los plenamente adultos); el manto bajo, con dos líneas ante aisladas cerca de la punta
Verde intenso, que se vuelve azulado, y después gris azulado o teñido de verdoso, sin marcas, en el dorso bajo
Rabadilla y supracaudales
Verdes, con mucho tinte oliva o gris azulado
Verde teñido de gris; supracaudales verde grisáceo
Flecos desintegrados de verde metálico a pizarra verdosa; lados de la rabadilla pizarra azulada o gris glauco
Flecos en forma de pelo, gris azulados o verdosos
Escapulares
Barradas de negro y ante pálido, con orla castaña y punta verde
Negras con rayas ante y marcas subterminales, ribeteadas de negro y con flecos castaños
Forman una mancha de color bien definida: castaño vivo ribeteado de verde; en las terciarias, el castaño se parte en la punta y se reduce por un ante verdoso
Rojo cobrizo con puntas violetas brillantes y marcas en U ante pálido y negro; las más largas, con flecos azulados a aguamarina
Coberteras y plumas de vuelo
Coberteras gris claro con tinte azul verdoso, en su mayoría marcadas de castaño; vuelo como en otros faisanes
Coberteras gris azuladas, con bordes y marcas castaños y ante en las mayores; plumas de vuelo pardo oscuro barradas y moteadas de ante
Coberteras pizarra azulada; primarias con triángulos blanquecinos; muchas coberteras mayores internas con un ancho margen castaño oscuro
Coberteras menores azuladas a aguamarina; medianas y mayores grisáceas
Partes inferiores
Verde oscuro, con un ligero tinte azul o púrpura; plumas con muescas profundas como las del manto
Cuello, pecho y partes inferiores verde oscuro con reflejos púrpura y azules
Verde metálico profundo; muslos y subcaudales negro mate
Pecho y partes inferiores verde intenso
Cola
Rectrices oliva oscuro, con anchas barras negras y flecos rosados
Pardo oliva oscuro, con barras oscuras nítidas y un tinte rosado en los lados de la base
Gris verdoso, con amplio flequillo púrpura en las centrales y una serie de marcas negras alargadas que tocan el raquis; el envés, negro con flequillo castaño
Larga (casi el doble que el ala); la central gris azulada a lavanda, con barras negras estrechas y bien espaciadas y flecos lavanda a violáceos
Elliot (1872) resumía así al macho: cabeza verde arriba, con las plumas auriculares verdes brillantes; garganta y cuello azules con reflejos verdosos; todas las partes inferiores verdes, con reflejos púrpura en el cuello y el pecho; plumas del dorso y escapulares con el centro negro y dos líneas ante equidistantes y los bordes castaños; hombros gris azulado; rabadilla y supracaudales gris azulado; abdomen central y muslos pardo oscuro; cola verde grisácea con las rectrices centrales barradas de negro, regulares en la base y alternas hacia la punta, y bordes purpúreos; y las partes desnudas de la cara de color carmesí, salpicadas de diminutas plumas negras, que destacan sobre el fondo azul del cuello (Elliot, 1872). Ogilvie-Grant (1893), según Johnsgard, destacó el rasgo que lo separa de todas las demás formas de Phasianus: el pecho, el vientre y los flancos de un verde oscuro uniforme, la parte alta de la cabeza verde bronce como en el común, y las supracaudales de un pizarra verdoso uniforme, sin las plumas de color óxido a cada lado que lleva el común (Johnsgard, 1986).
La descripción de Birds of the World que recoge la ficha original de esta web añade algunos detalles del macho: un cuerpo verde esmeralda oscuro iridiscente, una capucha de color púrpura azulado brillante, la corona olivácea, penachos verde azulados a los lados de la frente y extensas barbas rojas en la cara, formadas por dos partes unidas por una estrecha banda de piel desnuda; la cola, cónica y de puntas acuminadas, tiene barras negruzcas sobre el centro gris, y el espolón es cónico y está algo por debajo de la mitad del tarso (BOW, 2022).
La hembra según cada autor
La hembra se parece mucho más a sus congéneres del continente que el macho: es de un pardo arenoso más oscuro y de dibujo más marcado (Beebe, 1922 (vol. III); Madge y McGowan, 2002). BOW la describe con la frente y la corona negras con barras y bordes anchos de beige a rufo pardo, la nuca rosa pardo, las plumas con marcas subterminales negras en forma de U, la cola de pardo a pardo rufo con barras ante pálido y oscuro, ampliamente bordeadas de negro cerca de los raquis, una media luna blanquecina bajo el ojo y una ceja gris pálida difusa (BOW, 2022). Madge la distingue de la hembra del faisán común porque está mucho más manchada de negro: las plumas de las partes superiores son negras, con trazos pardo ante y bordes subterminales, y apenas rematadas de verde; los lados de la cabeza, del cuello y del pecho llevan manchas oscuras; las auriculares tienen una barra oscura bajo la media luna pálida del ojo (muy débil en la mayoría de las formas del común), y los flancos presentan un escamado negruzco más fuerte (Madge y McGowan, 2002).
Ogilvie-Grant (1893), según Johnsgard, señala que la hembra se parece mucho a la del común, pero que las plumas del manto son casi enteramente negras en el centro, a veces con un fino trazo rufo en el raquis, que las puntas verdes de las plumas suelen estar bien marcadas y que las barras negras del pecho, el vientre y los flancos son mucho más fuertes (Johnsgard, 1986). Delacour insiste en lo mismo (la parte oscura de las plumas del manto es negra y llega hasta el estrecho borde pardo pálido, con brillo verde cerca de la punta, y las partes inferiores están más vermiculadas y manchadas que en cualquier otra forma de los verdaderos faisanes), y Elliot decía que la mayoría de la gente apenas percibiría la diferencia entre esta hembra y la del común (Delacour, 1977; Elliot, 1872). Beebe da una descripción muy minuciosa: cabeza de ante arenoso pálido con las plumas de la corona teñidas de rufo y un raquis negro; margen ancho de gris rosado en la nuca y en el manto superior, con puntas azuladas en la nuca; una ancha banda negra concéntrica, cuya parte distal visible está teñida de verde metálico; dorso y coberteras con márgenes anchos de ante arenoso; cola de rojo oscuro o con frecuencia pardo rosado, moteada de oscuro y con barras negras como las del macho, pero bordeadas de ante pálido en la parte posterior; zona facial poco emplumada y blanca pura bajo el ojo; barbilla y garganta de ante arenoso claro; cuello inferior gris rosado, y el resto de las partes inferiores de ante arenoso con todas las plumas fuertemente barradas de negro; subcaudales castañas con puntas blancas (Beebe, 1922 (vol. III)).
Pequeño y de dibujo fuerte, por lo demás parecido al del faisán común; BOW no tiene descripciones específicas del verde. En los Phasianus, los pollos son pequeños, de ante pálido con marcas pardo oscuras, con líneas negruzcas sobre el ojo y tras las auriculares, el centro de la corona pardo oscuro y tres anchas rayas pardo negruzcas en las partes superiores
Parecido a la hembra, más apagado y con más manchas en la corona y el manto; de color arcilla, con manchas y barras; rectrices cortas, débiles y oscuras con barras de arcilla. Se presenta sobre todo de junio a septiembre
En los Phasianus, según Delacour, los machos adquieren el plumaje adulto en el primer año, a los cinco meses (Delacour, 1977).
BOW cuenta que los sexos jóvenes se separan por la extensión y el color de la piel orbital (rosada en la hembra, roja en el macho) y por la presencia de un pequeño colgajo de tejido papilar de hasta 1,5 mm de ancho en la mejilla de los machos, que las hembras no tienen (BOW, 2022). Johnsgard, para el faisán común, recoge que muchos pollos de un día pueden sexarse por un repliegue de piel rudimentario, sin plumas, oculto en gran parte por el plumón, en la región bajo el ojo y la loral; y que el macho recién nacido puede tener un anillo ocular ante algo mayor y menos manchas auriculares pardas (Johnsgard, 1986). Ningún autor consultado recoge una comprobación de ese carácter en el faisán verde (BOW, 2022; Johnsgard, 1986).
Mudas
BOW describe una estrategia basal compleja, con mudas prebasales completas y una muda preformativa incompleta, sin mudas prealternas (BOW, 2022). La muda preformativa sería probablemente como la del común: primarias y terciarias internas hacia las tres o cuatro semanas, manto, escapulares y flancos hacia las siete, muda abundante en cabeza, cuerpo y coberteras de 12 a 20 semanas, con primarias y secundarias completadas a las 16 y plumas completamente desarrolladas a las 21 semanas (BOW, 2022). La muda prebasal definitiva empezaría en junio por las primarias más internas, la cabeza y el cuello, el resto del cuerpo en pocas semanas, y se completaría en unos tres meses, con las primarias externas y las centrales de la cola en septiembre o principios de octubre; la hembra empieza tras la eclosión, normalmente más tarde que el macho (BOW, 2022). Beebe, por su parte, observó que la muda se da en otoño y que las aves cazadas en septiembre y octubre muestran con frecuencia las plumas muy gastadas (Beebe, 1922 (vol. III)). La muda de la cola es, como en todos los Phasianus, centrípeta (Johnsgard, 1986).
Cómo se distingue de otras aves parecidas
El macho es inconfundible dentro de su área nativa; fuera de ella, puede confundirse con el faisán común, algo más voluminoso y de cola más larga y estrecha, sobre todo por la frecuente hibridación (BOW, 2022; Madge y McGowan, 2002). En Japón, solo las poblaciones más oscuras del faisán cobrizo (Syrmaticus soemmerringii) se aproximan a la saturación de color del macho verde, pero el cobrizo suele parecer de rabadilla blanca y carece de los pequeños penachos auriculares del verde; si estos son visibles, la diferencia de color es evidente (Madge y McGowan, 2002). Johnsgard añade que la separación de los machos del cobrizo se consigue con facilidad por la ausencia de pardo cobrizo en la cabeza y el cuerpo del verde (Johnsgard, 1986).
Las hembras son más parecidas. La hembra del cobrizo, además de ser mucho más esquiva (ave del bosque), tiene la cola más corta y casi sin barras, con las puntas blanquecinas de los lados rufos, el vientre más blanco y el plumaje corporal menos manchado que la del verde, que tiene la cola más larga, puntiaguda y claramente barrada (Madge y McGowan, 2002). Johnsgard apunta que la separación en el campo entre hembras del común y del verde probablemente no es posible; y que el canto del macho, según se dice, es más corto y distinguible del del común (Johnsgard, 1986; Madge y McGowan, 2002). Madge añade que se parece a una hembra de faisán común muy moteada, algo más oscura y de cola más corta (Madge y McGowan, 2002). En la mano, la hembra del verde se distingue de la del común por las manchas negras mucho más fuertes en las partes superiores y por el escamado de los flancos, como se ha visto (Johnsgard, 1986; Madge y McGowan, 2002).
Fuera de Japón hay que descartar además la mutación melánica del faisán común, tenebrosus. Según Madge, el macho melánico tiene el cuerpo verde negruzco y la cola oscura, pero carece del gris azulado de las coberteras y de la rabadilla del verde, y tiene las partes inferiores más negras; la hembra es de un castaño rico moteado de negro, mucho más oscura y rojiza que la del verde (Madge y McGowan, 2002). Johnsgard compara los machos para su identificación en la mano: los melánicos suelen ser más oscuros, con la cola más larga (más de 350 mm), casi totalmente negro hollín con iridiscencia verdosa o azulada en cabeza, cuello, pecho y manto, barras negras gruesas en la cola y alas olivas negruzcas (Johnsgard, 1986). Delacour, finalmente, describe cómo es el híbrido verde × común, que no se parece a tenebrosus: el manto verde brillante con barras rojas y ante, los escapulares rojo granate, las coberteras gris claro como en el verde (no oliva ni verdes), el pecho verde azulado brillante con una ancha barra roja subterminal en las plumas de los lados, y la espalda baja y la rabadilla en su mayor parte grises; la hembra híbrida y los jóvenes se parecen a los padres (Delacour, 1977).
Un tipo gris silvestre
Beebe señala que a veces se llevan a los mercados japoneses, con otras aves silvestres abatidas, ejemplares de un tono decididamente grisáceo, que difieren radical y regularmente de los normales y parecen una mutación silvestre; él mismo cazó uno, recién mudado, que carecía por completo de brillo metálico en la cabeza, el manto y las partes inferiores (plumas gris negruzco, con un matiz vinoso en la zona púrpura y un tenue tono verdoso en las partes inferiores), con los escapulares como único toque de color brillante, solo algo apagado (Beebe, 1922 (vol. III)). Los japoneses a quienes consultó conocían la forma y le tenían un nombre especial (Beebe, 1922 (vol. III)). Delacour también cree que existe una fase gris anómala entre las aves silvestres (Delacour, 1977).
Tamaño y porte
Beebe consideraba al verde la más hermosa de las especies verdaderas de Phasianus, y a la vez la de menor tamaño (Beebe, 1922 (vol. III)). Delacour lo describe como de talla pequeña (ala de 215 a 243 mm en el macho) (Delacour, 1977). Para la identificación en el campo, Johnsgard da una longitud de 18 a 31 pulgadas (de 46 a 79 cm) (Johnsgard, 1986). La descripción de BOW que recoge la ficha original habla de un ave de caza de tamaño medio, de cuerpo profundo, andar pavoneante y cola larga y graduada (BOW, 2022). Las medidas se tratan con detalle en el capítulo siguiente.
Los datos de la guía original, contrastados con Delacour, Madge, Johnsgard, Beebe y Birds of the World.
El macho mide entre 75 y 89 cm de longitud total, con alas de 22 a 24 cm, cola de 27 a 42 cm, tarso de 60 a 70 mm y un peso de entre 900 y 1,2 kg.
La hembra es menor: mide entre 53 y 62 cm, con alas de 21 a 22 cm, cola de 20 a 27 cm, tarso de 55 a 64 mm y un peso de entre 800 y 900 g.
Macho ♂Hembra ♀
Longitud
♂75–89 cm
♀53–62 cm
Alas
♂22–24 cm
♀21–22 cm
Cola
♂27–42 cm
♀20–27 cm
Tarso
♂60–70 mm
♀55–64 mm
Peso
♂900–1,2 kg
♀800–900 g
Tamaño frente al resto de la colecciónlongitud total del macho · 51 especies
Faisán verde · 89 cm
050100150200 cm
Las cifras de la tabla proceden, en lo esencial, de la bibliografía clásica. Madge y McGowan dan las longitudes totales de 75–89 cm para el macho y de 53–62 cm para la hembra; Delacour, las alas, las colas y los tarsos de la especie (Delacour, 1977; Madge y McGowan, 2002). El peso de la tabla (900–1,2 kg el macho, 800–900 g la hembra) es algo más estrecho que el de Birds of the World, como señala la propia ficha original en su recuadro de BOW (BOW, 2022; Hernández García, 2014). En todas las fuentes, el macho pesa más que la hembra (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986; Madge y McGowan, 2002).
Longitud y peso según distintas fuentes
Fuente
Longitud ♂
Longitud ♀
Peso ♂
Peso ♀
Tabla original (Hernández García, 2013, 2014)
75–89 cm
53–62 cm
900–1,2 kg
800–900 g
Birds of the World (2022)
unos 81,5 cm
unos 58 cm
900–1.400 g
692–970 g
Madge y McGowan (2002)
75–89 cm
53–62 cm
c. 900–1.100 g (versicolor)
c. 800–900 g (versicolor)
Johnsgard (1986), a partir de Bohl (1964)
en el campo, 18–31 pulgadas (46–79 cm), sin distinguir el sexo
—
unos 900–1.100 g
unos 800–900 g
Beebe (1922)
un macho de 770 mm
una hembra de 650 mm
3–4 libras (unos 1,4–1,8 kg)
—
Chintaguay (2005–2006)
de forma y tamaño similares a los del faisán común, sin cifras
Johnsgard, que cita a Delacour (1977), da para el macho un ala de 196–220 mm y una cola de 270–425 mm, y para la hembra un ala de 195–220 mm y una cola de 207–275 mm: la cifra de ala del macho no coincide con la del texto de Delacour disponible (215–243 mm), mientras que las demás sí (Delacour, 1977; Johnsgard, 1986).
Johnsgard señala que, según Delacour, las aves del norte son algo menores que las del sur, aunque esa tendencia no es nítida y Kuroda (1981) afirma que la raza del norte es en realidad algo mayor (Johnsgard, 1986).
1,5–1,8 pulgadas de largo y 1,2–1,4 de ancho (media 1,6 × 1,3); es decir, de unos 38–46 por 30–36 mm
Beebe da las medidas en pulgadas (el texto disponible, con OCR defectuoso, escribe «mm»); el color varía del de la piedra pálida a un pardo bastante oscuro (Beebe, 1922 (vol. III))
Beebe (1918, 1926)
30 × 38 mm (ancho por largo): una pulgada y media de largo
Cita el huevo del faisán verde japonés como el menor de todos los faisanes, frente al del pavo real verde, de 54 × 86 mm (Beebe, 1918; Beebe, 1926)
El peso fresco del huevo, 27,8 g, es una estimación de Johnsgard (Johnsgard, 1986).
Beebe subraya, en su capítulo sobre el faisán verde, que sus huevos son los más pequeños de todo el grupo de los verdaderos faisanes, y en la introducción de su monografía los cita como el extremo inferior de la escala de tamaño de los huevos de faisán (Beebe, 1918; Beebe, 1922 (vol. III)).
Crecimiento de los pollos
Las fuentes del faisán verde dan pocas cifras de crecimiento. BOW anota que ambos sexos pesan entre 300 y 450 g (n = 20) después de un mes de edad y que presumiblemente alcanzan el peso de adulto a las 20 semanas (BOW, 2022). Para el faisán común, Johnsgard recoge que los pollos pesan al nacer 22–24 g, 135 g a los 30 días y unos 400 g a los dos meses, y que a los tres meses las hembras pesan unos 750 g y los machos 850–950 g; a las 20 semanas, las hembras (que han dejado de ganar peso) pesan unos 800 g y los machos, que aún crecen, unos 1.100 g (Johnsgard, 1986). Esos valores son del faisán común; el verde es algo menor, y no se han localizado series específicas (Delacour, 1977; Johnsgard, 1986).
06
Distribución y hábitat
Las tres grandes islas del archipiélago japonés, de la costa a las colinas, siempre cerca de los cultivos.
Mapa de distribución. Pulsa para ampliar.
El faisán verde es endémico de Japón, a excepción de la isla de Hokkaido. Al igual que el faisán común, ha sido introducido en varias partes del mundo, sobre todo en Europa y América, e incluso en las islas de Hawai (como ave de caza).
Es una especie común en toda su área de distribución. Frecuenta los campos de cultivo y se considera a menudo cerca de los asentamientos humanos, a una altitud de unos 1100 m.
BirdLife calcula la extensión de presencia de la especie en 742.000 km², sin migración, y la declara endémica reproductora de Japón (con una población introducida y residente en Estados Unidos) (BirdLife, 2025). Birds of the World precisa los límites: todo Honshu, Shikoku y Kyushu, y las islas menores de Sado, Yakushima, Tanegashima y las islas Izu (entre ellas Miyake-jima y Hachijo-jima) (BOW, 2022). Madge añade las islas Goto, cerca de Kyushu, y las islas de Izu de Oshima y Niijima (Madge y McGowan, 2002). Beebe, que no incluye a Hokkaido (Yezo), tampoco lo da en las Kuriles meridionales, ni en Tsushima ni en las Riukiu del sur (Beebe, 1922 (vol. III)).
Área de distribución, isla por isla
Isla o región
Presencia
Fuente
Honshu
Toda la isla; la subespecie varía de sur a norte: versicolor en el suroeste, tanensis en las penínsulas de Izu y de Miura, robustipes en el resto y el norte
La ausencia en Hokkaido es, según Beebe, una confirmación más de que los profundos estrechos de Tsugaru han separado durante muchísimo tiempo el resto de Japón de toda conexión con el continente asiático; añade que los monos comparten con los faisanes la distribución meridional, mientras que los urogallos solo viven en Hokkaido y más al norte (Beebe, 1922 (vol. III)). Johnsgard cree que los antepasados del faisán verde llegaron a Japón vía Corea, cuando ambas masas de tierra seguían unidas (Kuroda, 1981); Green-Armytage añade que la punta de Corea estuvo en algún momento unida a Japón, y que cuando se separó la isla del continente el faisán evolucionó hasta ser una especie distinta (Green-Armytage, 2002; Johnsgard, 1986). En la isla de Hokkaido, donde no había faisanes nativos, se ha soltado el faisán común, y según la Wikipedia japonesa también en Tsushima y en las Riukiu, además de haberse establecido en Honshu, Shikoku, parte de Kyushu y las islas Osumi; Madge y BOW, en cambio, consideran que fuera de Hokkaido y de Tsushima las introducciones han tenido poco éxito, al parecer por la baja fertilidad de la descendencia híbrida con el verde (BOW, 2022; Madge y McGowan, 2002; Wikipedia (ja, キジ)).
El hábitat
El faisán verde es un ave de tierras bajas: raras veces alcanza gran altura en las montañas, y en el interior de Honshu, donde se concentran las cordilleras, solo se encuentra en las mesetas y los valles bajos, o en las colinas y las partes inferiores de las montañas (Beebe, 1922 (vol. III); Delacour, 1977). Frecuenta los bordes de bosque, los bosques abiertos, los matorrales y los pastizales, y los hábitats modificados por el hombre, como parques, plantaciones de té, tierras de labranza y henares, siempre que tengan setos o cubierta suficientes; en el sur del área también vive en bosques de hoja ancha (BOW, 2022). Madge añade las laderas con matorral, las zonas de bosque ralo junto a cultivos, y los jardines y parques apartados y los matorrales de ribera (Madge y McGowan, 2002).
El príncipe Taka-Tsukasa, citado por Delacour, describe un ave que gusta del terreno abierto y soleado y vive siempre más cerca de las viviendas que el cobrizo; se la encuentra incluso en el centro de las grandes ciudades, si no se la perturba por completo, lo que, unido a la densa población de Japón, hace depender la existencia del ave de la voluntad de los habitantes (Delacour, 1977). Por la mañana y por la tarde sale a los arrozales o a las fincas, sobre todo a las de cebada, batata y alforfón, o a las plantaciones de té y a los prados abiertos, en busca de alimento, y el resto del tiempo descansa al abrigo del sotobosque espeso en bosques poco densos; con tiempo nublado frecuenta esos lugares incluso de día (Delacour, 1977). Cuando hay nieve profunda se acerca a los almiares cercanos a las casas, o incluso a los patios traseros, y picotea con las gallinas domésticas (Delacour, 1977; Green-Armytage, 2002; Madge y McGowan, 2002).
Beebe, que lo estudió en el terreno, escribe que la búsqueda de cualquier faisán japonés debe empezar, y suele acabar, a la vista de las viviendas o de los campos cultivados, y que el verde, más aún que el cobrizo, prefiere las cercanías de los campos, hasta el punto de que, cuando los campesinos sufren los estragos de los faisanes en sus huertas, casi siempre es esta especie la culpable (Beebe, 1922 (vol. III)). Los mejores lugares para observarlo fueron las zonas de instrucción militar, reservas imperiales casi siempre libres de campesinos y cultivos, donde las aves, acostumbradas al estruendo de los simulacros de batalla, se dejaban acercar; con permiso de la Oficina Imperial de Caza, Beebe observó faisanes en los cotos de Narashinohara (prefectura de Chiba), de Renkojimura (Tokio) y de Iwase (prefectura de Fukushima) (Beebe, 1922 (vol. III)). Johnsgard cita a Kuroda (1981) para una bandada en un área limitada junto al Palacio Imperial de Tokio (Johnsgard, 1986).
sube hasta unos 3.500 pies (unos 1.070 m); las poblaciones del norte, del nivel del mar a unos 3.500 pies; los nidos se han hallado hasta unos 3.000 pies (unos 900 m) (Johnsgard, 1986)
Delacour (1977)
anida desde el nivel del mar hasta 3.500 pies (unos 1.070 m) en el monte Fuji (Delacour, 1977)
Johnsgard cuenta que las poblaciones septentrionales se extienden del nivel del mar a unas 3.500 pies, en bosques ralos o matorrales junto a cultivos, praderas cerca de los ríos y de las tierras de labor, zonas bajas de colinas cerca de la costa y montañas de islas con matorral y arbolado; la población meridional de Kyushu vive en hábitats similares, pero con vegetación generalmente más exuberante y una mayor proporción de árboles de hoja ancha (Johnsgard, 1986). En las islas Hawái, las poblaciones introducidas viven a una altitud centrada entre 4.000 y 7.500 pies (unos 1.220 y 2.290 m), con las mayores densidades donde hay grupos dispersos de árboles koa entre praderas de vegetación herbácea variada (Johnsgard, 1986). BOW añade que en Hawái prefiere elevaciones más altas y hábitats más húmedos que el faisán común (BOW, 2022).
El faisán cobrizo y el verde: dos pisos, una zona común
Sus principales amenazas son los córvidos (sobre todo en los nidos), las serpientes y también los gatos y los perros vagabundos. Durante un tiempo se pensó que podía existir rivalidad con el faisán cobrizo por los recursos naturales, pero se ha demostrado que no es así, ya que ambas especies ocupan espacios diferentes (el cobrizo vive a mayor altura).
Las fuentes concuerdan con la separación por pisos: según Beebe, a medida que se asciende hacia el interior los cobrizos se hacen más abundantes, y tras una zona estrecha donde viven las dos especies los verdes desaparecen; en invierno, cuando las tormentas fuerzan a los cobrizos a bajar, esa zona común se ensancha, y los cobrizos penetran en el territorio de los faisanes de las tierras bajas (Beebe, 1922 (vol. III)). Johnsgard cita a Yamashina (1976) para decir que los contactos ecológicos entre ambas especies son limitados y se producen sobre todo con tiempo frío, cuando el cobrizo se ve obligado a bajar (Johnsgard, 1986). Madge añade que el verde prefiere el bosque secundario y el terreno abierto que el cobrizo evita (Madge y McGowan, 2002).
Densidad y tamaño de las poblaciones
No hay estimas detalladas de densidad. Johnsgard cita el mapa que Kuroda (1981) hizo de la distribución local de una bandada en un área muy limitada cerca del Palacio Imperial, y su mapa sugiere una densidad de hasta varias aves por hectárea en condiciones muy favorables (Johnsgard, 1986). En esa misma zona protegida, Kuroda cartografió una cifra considerable de territorios «sugeridos», con 36 territorios de macho en unas 16 ha, de modo que el territorio medio fue de menos de media hectárea; Johnsgard advierte de que esto refleja una densidad muy alta (Johnsgard, 1986). El número total de aves maduras no se ha cuantificado, según BirdLife; las capturas y las sueltas se tratan en el capítulo de estado de conservación (BirdLife, 2025).
Movimientos
El faisán verde es sedentario. Según Beebe, los campesinos japoneses le dijeron que las aves son muy sedentarias y locales en sus movimientos, aunque esto depende de la latitud; en lugares abrigados puede aumentar el número en tiempo muy duro, y las aves se redistribuyen cuando amainan los temporales (Beebe, 1922 (vol. III)). En el norte de Honshu, en la región de Sendai, donde hay altas llanuras y montañas, todos los kiji bajan a las tierras bajas y a la costa en la estación fría; antes lo hacían en grandes cantidades, varias decenas a la vez, siempre en enero, y este desplazamiento estacional es solo ligero en el centro y desconocido en el sur (Beebe, 1922 (vol. III)). BOW y Johnsgard coinciden: los únicos movimientos significativos se dan en las zonas de grandes nevadas del norte de Honshu, y los diarios consisten en pequeños desplazamientos verticales, de las laderas donde duermen a los cultivos, con regreso a las laderas para descansar y bañarse en el polvo, y un segundo desplazamiento a última hora de la tarde (BOW, 2022; Johnsgard, 1986).
Sueltas, hibridación y pureza
En Japón se crían en grandes cantidades y se sueltan unos 150.000 individuos todos los años. Se han observado algunas hibridaciones esporádicas con el faisán cobrizo en la naturaleza (los híbridos son estériles). En cautividad se ha cruzado de forma constante con el faisán común, por lo que es muy difícil encontrar ejemplares puros.
Las cifras de las sueltas y de las capturas, y la discusión de la hibridación con el cobrizo y con el común, figuran en los capítulos de cautividad, conservación y subespecies (BOW, 2022; del Campo, 2006; Delacour, 1977; Johnsgard, 1986).
Poblaciones introducidas
Fuera de Japón, el faisán verde se ha soltado con fines cinegéticos, a menudo junto con distintas subespecies del faisán común (BOW, 2022). Las introducciones más conocidas son las de Hawái (1865), Norteamérica y Europa; sus fechas, sus resultados y la hibridación con el común se detallan en el capítulo de subespecies y variación (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986).
Un ave de borde de cultivo: recelosa, madrugadora, de grito áspero y con un aleteo que se oye de lejos.
El faisán verde es un ave terrestre que pasa el día entre el matorral y el cultivo: sale a comer por la mañana y por la tarde, descansa y se baña en el polvo en las laderas durante las horas centrales y duerme en el suelo, en arbustos o en árboles; su costumbre de gritar y batir las alas, tan semejante a la del faisán común, es lo que más delata su presencia (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986).
Casi todo lo que se sabe de su comportamiento procede de unas pocas fuentes: las observaciones de Beebe a principios del siglo XX, el estudio de Bohl (1964) y el trabajo de Kuroda (1981) citados por Johnsgard, y la síntesis de BOW, que advierte de que su locomoción y sus hábitos son prácticamente idénticos a los del faisán común y de que faltan datos sobre el automantenimiento, la conducta agonística, la dispersión y la fidelidad al sitio (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986).
El día del faisán verde
Johnsgard, a partir de Bohl (1964), describe que la actividad de alimentación se da dos veces al día, en las horas de la mañana y de la tarde, cerca de los campos agrícolas, las plantaciones de té y los pastizales abiertos, con frecuencia en pequeños grupos; las horas centrales las pasa en las laderas, preferentemente en zonas arenosas, donde también se baña en el polvo; y los dormideros suelen estar en zonas de hierba en la cima de las colinas, o en matorral y a veces también en árboles, si faltan (Johnsgard, 1986). Madge lo confirma: activo sobre todo a primera hora de la mañana y a última de la tarde, cuando desciende a terreno más abierto para comer en los claros del bosque, en los cultivos, las plantaciones y los parques, busca cobertura en el centro del día, descansando en cimas herbosas o en laderas con matorral, y prefiere las zonas arenosas para el baño de polvo; duerme en el suelo, en arbustos y en árboles (Madge y McGowan, 2002). BOW apunta que se desplaza ladera abajo para forrajear a primera hora de la mañana (BOW, 2022).
Beebe, que observó el comportamiento sobre el terreno, describe unos baños de polvo muy característicos: depresiones en forma de cuenco que usan muchas aves sucesivamente, hasta que se hacen anchas y profundas y están llenas de polvo tan fino que, cuando un ave se echa y lo lanza sobre su plumaje, sube en nubes; una vez creyó acercarse a una fuente termal que emitía vapor y era el polvo que las aves acababan de levantar (Beebe, 1922 (vol. III)). En el territorio del faisán cobrizo, en cambio, esos baños de polvo no se ven (Beebe, 1922 (vol. III)). Beebe también explica que las aves viven en parejas o en pequeños grupos en invierno, se emparejan en primavera (el macho, con una a tres hembras) y vuelven a unirse en pequeñas bandadas familiares en otoño; en la estación fría, varias bandadas pueden dormir juntas (Beebe, 1922 (vol. III)).
Dormideros
En sus paseos por el país del faisán verde, Beebe encontró dos veces zonas pisadas que eran claramente dormideros de invierno de una bandada: abundaba el plumón y alguna pluma de contorno, y la redondez de la «cama», con el rastro en el centro, indicaba que las aves dormían con la cabeza hacia fuera, como el colín de Virginia; cómo se las arreglaban para guardar las largas colas cuando dormían tan juntas es algo difícil de imaginar (Beebe, 1922 (vol. III)). Donde los árboles son demasiado pequeños, tres machos dormían en pleno invierno sobre un bambú inclinado: volaban hasta el punto más alto del arco y, a medida que el tallo se curvaba bajo el peso del segundo y del tercero, subían por los nudos hasta alcanzar un equilibrio perfecto (Beebe, 1922 (vol. III)). Johnsgard y BOW recogen que duermen en el suelo, en el matorral y a veces en árboles (BOW, 2022; Johnsgard, 1986; Madge y McGowan, 2002).
Vuelo y locomoción
El faisán verde es esencialmente terrestre; cuando se alarma se adentra en la espesura volando o corriendo, a menudo con la cola levantada (BOW, 2022). Vuela recto, con potentes batidos de alas, y es probablemente capaz de mantener el vuelo algunos kilómetros; BOW piensa también que sabe nadar a través de masas de agua cuando es necesario (BOW, 2022). Beebe cuenta que despega con facilidad y cubre una buena distancia de un vuelo, pero que, aun donde hay árboles, suele posarse en el suelo, a diferencia del cobrizo, que más a menudo se encarama y otea para localizar el peligro (Beebe, 1922 (vol. III)). Como prueba de la fuerza de su vuelo, cita a F. J. Norman, que abatió decenas de aves en las laderas meridionales de Niijima, una pequeña isla al norte de Etajima, con milla y media de mar entre ambas (unos 2,4 km): todos los faisanes abatidos eran machos, en bandadas de cinco o seis, y nunca encontró una hembra en la isla, lo que sugiere que habían volado desde Etajima (Beebe, 1922 (vol. III)). Green-Armytage recoge que el verde puede mantener el vuelo más tiempo que muchas otras especies de faisán, y que se sabe de aves que han cruzado una milla y media de mar abierto hasta una isla (Green-Armytage, 2002). Delacour añade que son muy rápidos en el vuelo y extremadamente recelosos (Delacour, 1977).
Sociabilidad y reunión en invierno
Según Johnsgard, las bandadas grandes son típicas solo del invierno, cuando las dificultades para alimentarse acercan a las aves; el resto del año solo se ven pequeños grupos, y en primavera la agrupación habitual es un macho con una o más hembras; después de la nidificación el macho puede reunirse con sus hembras y sus crías o agruparse con otros machos en otoño e invierno (Johnsgard, 1986). Kuroda (1981) señaló que en invierno los machos pueden permanecer solos, formar grupos de hasta cuatro o verse como parejas aparentes; las hembras, también en invierno, forman a menudo grupos de hasta seis, y las crías parecen permanecer con ellas solo hasta septiembre (Johnsgard, 1986). BOW añade que pueden ser gregarios fuera de la estación reproductora, sobre todo las hembras; Madge, que son frecuentes las bandadas de un solo sexo en invierno y que las aves se reúnen en mayor número en los puntos de alimento más ricos (BOW, 2022; Madge y McGowan, 2002).
Territorio y peleas
Los machos son territoriales durante la cría. Según Kuroda, el canto de los machos en la zona de Tokio se oye desde mediados de marzo hasta abril y mayo, y se apaga hacia la primera semana de junio; en un lugar protegido junto al Palacio Imperial cartografió 36 territorios de macho en unas 16 ha, una densidad probablemente muy alta (Johnsgard, 1986). Beebe no vio peleas entre machos, pero los cazadores japoneses le dijeron que pueden ser tan feroces que uno de los combatientes sucumbe (Beebe, 1922 (vol. III)). La ficha original dice que, en la época de cría, el macho se vuelve muy territorial y «de vez en cuando reivindica su territorio lanzando gritos y batiendo las alas» (Hernández García, 2014). La ficha de esta web añade, atribuyéndolo a la sección de conducta de BOW (que no se ha podido cotejar de nuevo en esta revisión), que entre machos rivales son frecuentes los enfrentamientos con vuelos pecho contra pecho y golpes con los espolones. Johnsgard reproduce de Kuroda (1981) las posturas del macho, que incluyen la amenaza lateral mutua, el engrosamiento facial y la postura de canto (Johnsgard, 1986).
La voz
La voz es muy parecida a la del faisán común (BOW, 2022; Madge y McGowan, 2002). El macho emite en la época de cría una llamada territorial de gran alcance, algo más aguda y áspera que la del común, que se repite sobre todo al amanecer y al atardecer y va seguida de un fuerte aleteo; BOW la transcribe como ko-kyok(BOW, 2022). Beebe la oía como una llamada doble: el profesor Ijima, de la Universidad de Tokio, la percibía como Chok-kehn o Chok-chok-choken (y, de lejos, como Ken-ken), mientras que a Beebe le sonaba a «George Joyce» o Geor-ker-joici; la encontraba muy parecida a la del faisán común, pero algo más aguda y chillona, quizá más metálica, y seguida casi al instante por un segundo de aleteo (Beebe, 1922 (vol. III)). Johnsgard, que recoge el sonograma de Kuroda (1981), confirma que es una llamada de dos notas, algo más corta que la del común, con diferencias menores de estructura acústica (Johnsgard, 1986). Madge precisa que el canto del macho, según se informa, es claramente más corto que el del común (al menos para un oído con experiencia) y se confunde con el del cobrizo (Madge y McGowan, 2002).
Voz
Descripción
Fuente
Llamada de canto del macho (territorial)
Llamada doble, áspera y fuerte, más aguda que la del faisán común, seguida de un fuerte batir de alas; se oye a gran distancia, sobre todo al amanecer y al atardecer. Las variaciones locales se distinguen a menudo por la presencia de un eco y por la estructura armónica
Muy parecida a la territorial, pero se oye casi siempre con el batir de alas, cuando el ave sale de una cobertura cercana y vuela a un lugar seguro; el cacareo típico de los Phasianus continentales rara vez se emite y solo ante el miedo
Batir rápido de alas tras el canto; en la exhibición, las rectrices vibrantes producen un sonido de aleteo grave; el aleteo se oye bien al iniciar el vuelo
En otoño, los jóvenes ensayan el canto; según BOW, aves de siete semanas pueden intentarlo, y a los cuatro meses sería idéntico al de un adulto (datos del faisán común)
BOW toma de estudios del faisán común las duraciones de las llamadas rápidas y lentas (354–397 ms y 504–523 ms) (BOW, 2022).
Beebe describe la secuencia anual: el grito, que es a la vez una llamada a la pareja y un desafío, se emite en la primavera temprana sobre todo al amanecer y al anochecer; en pleno apogeo de la cría casi no hay hora del día en que no se oiga; luego decae, hasta limitarse otra vez a la aurora y el crepúsculo, antes de apagarse del todo, aunque incluso en pleno verano se oye algún grito ocasional; en otoño suenan los intentos juveniles (Beebe, 1922 (vol. III)). A mediados de febrero, cuando recorría los campos de Honshu, los machos estaban en pleno cortejo y cada colina sin cultivar parecía tener al menos un ave que cantaba y respondía durante todo el día, sobre todo hacia las diez de la mañana y de nuevo hacia las cuatro de la tarde (Beebe, 1922 (vol. III)). El grito puede emitirse en el suelo, desde una roca o desde la rama de un árbol; una vez vio a un ave saltar al vuelo y gritar, de forma entrecortada, mientras volaba; y otra, desde la copa de un pino de cuatro pies de alto, perdió el equilibrio con el esfuerzo del grito y cayó al suelo (Beebe, 1922 (vol. III)).
El tamborileo de alas y la caza con reclamo
Beebe observó que el aleteo, que en el cobrizo se oye solo de vez en cuando, es tan habitual en el faisán verde que su imitación es uno de los métodos más empleados para atraer a las aves a tiro: se sujetan a una caña de bambú corta dos alas de un macho, medio abiertas y secas, y se hacen girar rápido, con un movimiento de taladro, en el aire o rozando los brazos del operador; el ruido es lo bastante realista para atraer a cualquier macho que lo oiga (Beebe, 1922 (vol. III)). Según Ijima, muchos cazadores se limitan a imitar el reclamo de la hembra, al que los machos responden siempre con el aleteo y no con el canto, acercándose al lugar y zumbando a medida que llegan (Beebe, 1922 (vol. III)).
Defensa frente a los depredadores
Las amenazas de nidos, pollos y adultos se tratan en el capítulo de amenazas; aquí solo importa el comportamiento. BOW anota que, ante un depredador, el ave huye volando o corriendo a cubierto, y se supone que evita ser detectada agachándose; que los pollos del verde tienden a ser menos vocales que los del común en presencia de un depredador, y que los adultos permanecen inmóviles durante un periodo prolongado, más que el común en situaciones similares (BOW, 2022). Para el faisán común, BOW cita que el macho puede atacar a las rapaces y que la hembra puede alejar al depredador de las crías desafiándolo o con una exhibición de ala rota; no se ha documentado en el verde (BOW, 2022).
Los terremotos y el grito de los faisanes
Beebe recogió que en un país de frecuentes terremotos parecía un hecho perfectamente demostrado que, un tiempo antes de una sacudida, todos los faisanes de una zona gritan con fuerza y de un modo tan distinto del habitual grito aislado que los nativos lo reconocen como un aviso; Beebe lo atribuía a que los temblores previos, demasiado leves para los sentidos humanos, son percibidos por las aves, igual que el trueno o los disparos excitan a otros faisanes a vocalizar sin cesar (Beebe, 1922 (vol. III)). Green-Armytage anota que se supone que el faisán verde puede detectar los terremotos antes que los instrumentos (Green-Armytage, 2002). Wikipedia añade que muchos japoneses creen que los faisanes verdes se asustan con los terremotos y gritan (según un estudio de 1971), y la Wikipedia japonesa recoge que el Chiribukuro (finales del siglo XIII) y el Hoki Fudoki ya decían que los faisanes y los gallos gritan durante los terremotos, y que se les atribuye detectar los temblores iniciales varios segundos antes que las personas (Wikipedia (en); Wikipedia (ja, キジ)). Las fuentes de que se dispone son relatos y creencias; no se ha localizado una comprobación científica en las obras consultadas (Beebe, 1922 (vol. III); Green-Armytage, 2002; Wikipedia (en); Wikipedia (ja, キジ)).
Relación con las personas
El faisán verde vive pegado al hombre y depende de su tolerancia: Beebe escribía que la existencia del ave depende prácticamente de la voluntad de los nativos, como la de los faisanes de los cotos ingleses, con la diferencia de que el japonés es indígena; los campesinos hacían bastantes capturas con trampas y furtivismo, pero con cautela, porque la ley protectora era muy estricta, incluso en 1852 (Beebe, 1922 (vol. III)). En invierno, con nieve profunda, las aves se acercan a las granjas y comen con las gallinas (Delacour, 1977; Green-Armytage, 2002; Madge y McGowan, 2002). Beebe supo de varios casos de aves silvestres que acudían con regularidad a comer con las gallinas y anidaban cerca, y observó a tres hembras escarbando en un rincón de un arrozal embarrado durante media hora, con las patas y el plumaje inferior cubiertos de arcilla, desenterrando un festín de larvas (Beebe, 1922 (vol. III)). Los daños en cultivos se deben, según él, casi siempre a esta especie (Beebe, 1922 (vol. III)).
08
Alimentación
Semillas, granos y frutos; helechos y brotes; y, en menor medida, insectos, caracoles y otros invertebrados.
En su hábitat natural, estos faisanes se alimentan de granos, bayas, frutos, pequeños invertebrados, pequeños crustáceos y caracoles. En cautividad basta un buen pienso para faisanes para mantenerlos en perfectas condiciones, ya que no son faisanes muy exigentes.
La ecología alimentaria del faisán verde se presume muy similar a la del común: materia vegetal (semillas, granos, frutos, brotes verdes, raíces, hojas), gusanos y presas artrópodas (BOW, 2022). Johnsgard apunta que su dieta se parece mucho a la del común, con una proporción posiblemente algo mayor de semillas silvestres, frutos, bayas y frutos secos, y proporciones menores de granos cultivados (Johnsgard, 1986). Es, en la práctica, un omnívoro oportunista, muy vegetariano, que se aprovecha de los cultivos pero sin depender de ellos, y que explica su buena adaptación a los campos próximos a las poblaciones humanas (BOW, 2022; Johnsgard, 1986; Wikipedia (en)).
Lo que comen en libertad
Alimento
Datos
Fuente
Estudio de contenidos estomacales
En el estómago de 15 individuos recogidos en Japón, el 99,6 % era materia vegetal (37 especies) y el 0,4 % materia animal (5 especies)
Larvas, grillos y pequeños escarabajos (Beebe); artrópodos terrestres y gusanos (BOW); numerosos insectos, muchos de ellos dañinos para los cultivos, además de milpiés, crustáceos y caracoles (Johnsgard)
BOW no ha registrado almacenamiento de alimentos (BOW, 2022).
Beebe, que lo estudió en el campo, escribe que la comida varía con la localidad, pero que normalmente consiste en granos (arroz, cebada y trigo) y bayas; en menor medida hay brotes de hierbas y de bambú, trozos de batata y verduras en el buche, y, en un porcentaje aún menor, insectos como larvas, grillos y pequeños escarabajos (Beebe, 1922 (vol. III)). En las colinas de Shimoda, Heine vio a un macho con tres hembras que desayunaban las bayas, abundantes en aquellos prados de altura (Beebe, 1922 (vol. III); Elliot, 1872). Delacour, citando a Taka-Tsukasa, describe cómo salen por la mañana y por la tarde a los arrozales o a las fincas, sobre todo las de cebada, batata y alforfón, o a las plantaciones de té y a los prados abiertos (Delacour, 1977).
Cómo y cuándo comen
Busca alimento sobre todo a primera hora de la mañana y a última de la tarde, solo, en pareja, en bandadas o en grupos familiares, escarbando en el suelo o en la nieve con el pico y con las patas (BOW, 2022). Puede arrancar fruta colgante saltando (BOW, 2022). Johnsgard cuenta que el forrajeo se hace cerca de campos agrícolas, plantaciones de té y pastizales abiertos, a menudo en pequeños grupos (Johnsgard, 1986). En invierno ha sido registrado comiendo helechos (BOW, 2022).
Agua y metabolismo
BOW indica que bebe de masas de agua, y que posiblemente obtiene agua del rocío, de la vegetación suculenta y de las presas animales, lo que en años secos puede ser importante para la supervivencia de los pichones (BOW, 2022). La temperatura corporal se regula frente al frío aumentando la tasa metabólica por medio del consumo de alimento y reduciendo el gasto energético con el descanso (BOW, 2022). Beebe vio a los faisanes bajar a beber a las orillas de los lagos que rodean el monte Fuji (Beebe, 1922 (vol. III)).
Cultivos y estragos
Beebe señala que, cuando los agricultores sufren los estragos de los faisanes en sus huertas, casi siempre la culpable es esta especie (Beebe, 1922 (vol. III)). BOW matiza que, en el área nativa, los cultivos agrícolas probablemente se aprovechan menos que fuera de ella (BOW, 2022). BOW recoge además que las poblaciones asilvestradas fuera de Japón se consideran plaga agrícola en algunos países, como Italia (BOW, 2022).
En cautividad
Gerrits cuenta que los faisanes verdes se las arreglan bien en las pajareras, aunque suelen ser salvajes y por eso más difíciles de criar que los otros faisanes de caza (Gerrits, 1974); la ficha original dice, por su parte, que basta un buen pienso comercial para mantenerlos en perfectas condiciones, y que a los pollos se les puede dar un buen pienso comercial para pollos de faisán con un 27 % de proteínas (Hernández García, 2014). El criadero Chintaguay recomienda, para los faisanes en general, niveles de proteína cercanos al 28 % en los primeros meses de vida, que se alcanzan complementando el pienso concentrado con huevo duro, verdeo (sobre todo alfalfa fresca), mezclas de semillas y fruta (del Campo, 2006). Recomendación editorial: dado que en libertad el faisán verde come mucho vegetal y fruta y los pollos, mucho alimento animal, conviene ofrecer en cautividad verde fresco y semillas variadas a los adultos, y una fuente rica en proteína animal a los pollos durante las primeras semanas (BOW, 2022; del Campo, 2006; Johnsgard, 1986).
09
Cortejo y exhibición
Un cortejo que, según todas las fuentes, no se distingue del de un faisán común: canto, aleteo y una exhibición de lado.
El cortejo del faisán verde apenas se ha descrito de forma específica: Beebe lo observó en aves cautivas y concluyó que no difiere en nada del del faisán común; Johnsgard, que reproduce las posturas dibujadas por Kuroda (1981), y BOW coinciden (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986).
Beebe escribió que el cortejo, tal como lo había observado en aves cautivas, no difiere en nada del del faisán común (Beebe, 1922 (vol. III)). Johnsgard apunta que las exhibiciones posturales del faisán verde son aparentemente muy parecidas a las del común: una postura de canto seguida inmediatamente de un aleteo, y una postura lateral de amenaza o de cortejo que parece idéntica a la del común (con la figura de Kuroda, de 1981, que muestra una amenaza lateral mutua entre machos, el engrosamiento facial y la postura de canto) (Johnsgard, 1986). BOW dice que el cortejo y las exhibiciones copulatorias presumiblemente no difieren de las del común y que no recoge una descripción específica de la parada nupcial de la especie (BOW, 2022). Lo que sigue se apoya, por tanto, en lo conocido del faisán común, con las salvedades indicadas.
Canto y aleteo
La primera señal del cortejo es el canto, que anuncia el territorio y a la vez convoca a las hembras, y el aleteo que lo sigue (Beebe, 1922 (vol. III); BOW, 2022). En el faisán común, según Johnsgard, el macho elige un lugar prominente, se estira, se detiene y, a veces tras un aleteo inaudible, emite su grito, y casi de inmediato produce un aleteo breve y vigoroso; en el pico de la temporada puede repetirlo cada 10 a 15 minutos, sobre todo a primera hora de la mañana y a última de la tarde (Johnsgard, 1986). La cola puede estar ligeramente levantada o apoyada en el suelo, y durante esta y otras exhibiciones se ingurgitan las carúnculas faciales y se levantan los penachos auriculares (Johnsgard, 1986). En el faisán verde, el macho emite ese grito desde el suelo, desde una roca o desde una rama, y Beebe llegó a ver a un ave saltar al vuelo y gritar en el aire (Beebe, 1922 (vol. III)).
La exhibición de lado ante la hembra
La ficha original describe el comportamiento del macho en el campo: en esta época, el macho se vuelve muy territorial, lo que se refleja en sus carúnculas, muy rojas y grandes (Hernández García, 2014). La ficha de esta web añade, atribuyéndolo a la sección de conducta de BOW (que no se ha cotejado de nuevo en esta revisión), que la parada nupcial es muy similar a la de otros faisanes del género Phasianus: el macho se aproxima a la hembra describiendo un semicírculo, con la cabeza baja, el ala más próxima caída y la carúncula roja completamente erguida, mientras eriza el plumaje del cuello para lucir su iridiscencia.
Esa descripción coincide con la que hace Johnsgard del faisán común: ante la hembra, el macho adopta una postura de exhibición lateral y da vueltas en semicírculo a su alrededor, con la cabeza recogida, el ala más próxima caída, la cola inclinada hacia ella, las plumas del cuerpo esponjadas y la carúncula ingurgitada; suele acompañarla un siseo, y las plumas de la cola pueden vibrar y producir un sonido de aleteo (Johnsgard, 1986). Delacour añade, para el género, que la exhibición del macho consiste, además del grito y el aleteo repetidos, en una típica postura de lado, con las carúnculas faciales extendidas y el cuello, el dorso, la rabadilla y la cola mostrados lo mejor posible, a veces con la cabeza baja (Delacour, 1977). BOW recuerda que, en el verde, las rectrices vibrantes crean un sonido de aleteo grave durante la exhibición (BOW, 2022).
Tidbitting y cópula
En el faisán común, Johnsgard describe además el tidbitting: el macho se agacha con la cola plegada y alta y emite notas bajas, a razón de unas tres por segundo, mientras picotea el suelo; la cópula suele ir precedida por la exhibición lateral o por el tidbitting, al menos al principio de la temporada, y más adelante el macho puede simplemente perseguir a la hembra e intentar montarla a la fuerza; tras la cópula puede reanudar su exhibición lateral, sin otra exhibición postcopulatoria específica (Johnsgard, 1986). Ninguna de las fuentes consultadas confirma el tidbitting en el verde; se supone por el parentesco con el común (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986).
Cortejo y poligamia
El sistema de apareamiento es flexible. Beebe pensaba que los machos son esencialmente polígamos, aunque las exigencias del amor y de la guerra pueden asignar a un macho una sola hembra (Beebe, 1922 (vol. III)). BOW da la especie como polígama y a la vez socialmente monógama, probablemente por proporciones de sexos variables entre poblaciones; Madge dice lo mismo, y añade que se han registrado harenes de cinco hembras (BOW, 2022; Madge y McGowan, 2002). Kuroda (1981) halló en una población pequeña cerca de Tokio más monogamia que poligamia (Johnsgard, 1986). La ficha original describe, para la época de cría, que entre enero y marzo suelen verse algunos grupos de machos en busca de hembras y que los apareamientos ocurren cuando se las encuentra, a principios de la estación (abril–mayo) (Hernández García, 2014).
10
Reproducción en la naturaleza
Un nido en el suelo entre marzo y junio, de 6 a 15 huevos olivas y una hembra que cría sola.
En la naturaleza se observa habitualmente a estos faisanes en solitario. Entre enero y marzo suelen verse algunos grupos de machos en busca de hembras. Una vez encontradas, algo que suele suceder a principios de la estación de cría (abril-mayo), se producen los apareamientos. En esta época el macho se vuelve muy territorial, lo que se refleja en sus carúnculas, muy rojas y grandes, y de vez en cuando reivindica su territorio lanzando gritos y batiendo las alas.
Tras las cópulas, la hembra pone entre 6 y 12 huevos (de 36-42 × 30-33 mm), cuyo color varía del gris al gris oliva. Habitualmente los deposita en el suelo y los incuba durante 24 a 25 días.
Los faisanes verdes son adultos al primer año de vida.
Los polluelos son muy fuertes, aunque más débiles que los de Phasianus colchicus, y resultan delicados sobre todo en la primera semana de vida, durante la cual hay que evitar las corrientes de aire. Pueden alimentarse con un buen pienso comercial para pollos de faisán (27 % de proteínas).
La biología de la reproducción del faisán verde se conoce a través de pocas fuentes: el relato de Beebe (1922), el estudio de Bohl (1964) y de Kuroda (1981) que cita Johnsgard, los datos de Delacour y de Madge, y la síntesis de BOW, que advierte de que, por el parentesco, la información del faisán común es probablemente aplicable (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Calendario de cría
EFMAMJJASOND
Canto del macho (Tokio)de mediados de marzo a la primera semana de junio (Kuroda)
Temporada de cría (BOW)marzo–junio, quizá hasta agosto en Norteamérica
Apareamiento (Beebe)marzo–mayo
Puesta, sur de Kyushu (Madge)hacia mediados de marzo; en Honshu, abril–mayo
Puesta máxima, Japón central (Johnsgard)abril y mayo
Puestas de reposición (Bohl)de finales de junio a agosto
Grupos de machos (ficha original)enero–marzo, en busca de hembras
Familias a la vista (Kuroda)máximo en junio; hacia septiembre casi han desaparecido
Muda del adulto (BOW)de junio a principios de octubre
El calendario reúne datos de fuentes y zonas distintas; el inicio de la puesta varía con la latitud, desde enero en Kyushu hasta finales de abril en el norte de Honshu, según Bohl (1964).
Johnsgard, a partir de Bohl (1964), anota variaciones locales muy marcadas en el inicio de la puesta: algunas aves empiezan ya en enero en Kyushu y otras hasta la segunda mitad de abril en el norte de Honshu; Madge precisa que la puesta se inicia hacia mediados de marzo en el sur de Kyushu y, por lo general, en abril–mayo en Honshu (Johnsgard, 1986; Madge y McGowan, 2002). Beebe señala que las aves empiezan a aparearse en marzo y que la cría se extiende por abril y mayo (Beebe, 1922 (vol. III)). BOW da la temporada de cría de marzo a junio, ampliable hasta agosto en Norteamérica, y el libro del autor, en su tabla de calendarios, indica «principio de marzo» para el hemisferio norte y «principio de septiembre» para el sur (BOW, 2022; Hernández García, 2014). En el calendario japonés tradicional, los primeros gritos del faisán marcan la microestación kiji hajimete naku («los faisanes empiezan a llamar»), del 16 al 19 de enero (72 Microseasons).
Sistema de apareamiento
BOW describe una especie tanto polígama como socialmente monógama, probablemente por proporciones de sexos variables entre poblaciones (BOW, 2022). Beebe creía que los machos son esencialmente polígamos, con una a tres hembras en primavera; Madge cita harenes de cinco hembras (Beebe, 1922 (vol. III); Madge y McGowan, 2002). Kuroda (1981), en una población pequeña cerca de Tokio, halló más monogamia que poligamia (Johnsgard, 1986). El macho no interviene en la incubación ni en la defensa del nido, según Johnsgard, y Beebe no sabe de machos que alimenten o cobijen a los pollos; BOW confirma que el cuidado parental corresponde solo a la hembra y que no se ha documentado cría cooperativa (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986).
El nido
El nido está en el suelo, normalmente en lugares cercanos a la vegetación, como arbustos bajos, hierbas o la base de los árboles (BOW, 2022; Johnsgard, 1986). Beebe lo describe sin forro especial, salvo las hojas secas y los restos que había en la depresión cuando la hembra la ocupó por primera vez; BOW recoge, para el faisán común, que a veces se usan pilas de heno o nidos viejos de otras aves o de ardillas (Beebe, 1922 (vol. III); BOW, 2022). BOW lo describe como una depresión poco profunda, natural o excavada por la hembra y forrada con plumas del pecho o con materia vegetal (hierba, hojas, tallos de malas hierbas, ramitas, hojas de maíz) (BOW, 2022). Los nidos se han localizado desde el nivel del mar hasta unos 3.000 pies (unos 900 m) (Johnsgard, 1986). Para protegerse de las alimañas, según Taka-Tsukasa, el verde suele anidar en campos cultivados, cerca de granjas y a lo largo de caminos, desde el nivel del mar hasta 3.500 pies (unos 1.070 m) en el monte Fuji; Beebe cuenta que las aves esconden los huevos bajo un pino de follaje denso, junto a un árbol caído o a una roca (Beebe, 1922 (vol. III); Delacour, 1977).
Johnsgard cuenta que las puestas habituales son de 6 a 12 huevos, con un extremo de 15 registrado (Johnsgard, 1986); Beebe, que cita al profesor Ijima, añade que en las nidadas de quince los últimos huevos suelen ser menores e infértiles (Beebe, 1922 (vol. III)). La puesta de reposición, si se pierde el primer nido, puede verse desde finales de junio hasta agosto, según Bohl (1964), con menos huevos: de cuatro a ocho, según Beebe (Beebe, 1922 (vol. III); Johnsgard, 1986). Beebe también explicó que se cría una sola nidada por temporada y que los informes de segundas e incluso terceras nidadas se deben a puestas posteriores tras la destrucción de la primera (Beebe, 1922 (vol. III)); BOW, en cambio, admite que quizá la especie cría ocasionalmente dos veces (BOW, 2022).
Incubación y eclosión
La hembra incuba sola, sin defensa aparente del nido por parte del macho, durante 23 a 25 días (BOW, 2022; Johnsgard, 1986). Al eclosionar, el pichón abre el huevo desde dentro por el extremo grande y romo, y permanece quieto unas horas antes de caminar, cuando el plumón está seco (BOW, 2022). Los polluelos son pequeños, de dibujo muy marcado, pero por lo demás parecidos a los del faisán común (Delacour, 1977); en el manual de cría de Delacour, los polluelos del verde figuran entre los notoriamente salvajes desde que salen del huevo (Delacour, 1978).
Los pollos y las familias
Los pollos son precoces: se alimentan por sí mismos tras seguir a la gallina y vuelan distancias cortas después de la primera semana de edad; la mayor parte de su dieta durante las primeras semanas son presas animales; se independizan a los 70–80 días, y el inmaduro alcanza la madurez y es capaz de criar hacia el año de edad, cuando tiene ya el plumaje adulto (BOW, 2022). Kuroda (1981) registró en su estudio camadas de entre uno y ocho pollos, con una moda de solo dos y una media estimada de 3,3 (en unos 34 avistamientos, una muestra pequeña); junio fue el mes con más avistamientos de hembras con crías, y hacia septiembre esos grupos familiares casi habían desaparecido, lo que Johnsgard considera sorprendente y necesitado de confirmación (Johnsgard, 1986). Beebe cuenta que rara vez se ven diez pollos con una hembra, y que cuatro o cinco son lo más común entre los que sobreviven a los peligros de la primera infancia: halcones, milanos, cuervos, urracas, comadrejas y serpientes, y sobre todo los gatos domésticos semisilvestres (Beebe, 1922 (vol. III)).
Parasitismo de cría
BOW considera probable que la hembra ponga con regularidad huevos en nidos de otras hembras de su especie; en Norteamérica, donde la hibridación con el faisán común es frecuente, se han reportado puestas en nidos de colín de Virginia, pavo, grevol engolado, gallo oscuro, gallo de las praderas grande, urogallo, gallo lira, perdiz pardilla, rascón elegante, rascón de Virginia, chocha americana y patos de tierras altas (Anas), con crías mixtas con algunas de las especies huésped (BOW, 2022).
Demografía, supervivencia y parásitos
BOW da una esperanza de vida de unos 5 años, y es probable que las aves silvestres sufran mortalidad al alcanzar los 3 años de edad, como en el común; el macho adulto tiene una tasa de supervivencia menor que la hembra (BOW, 2022). La longitud de generación, según BirdLife, es de 4,1 años (BirdLife, 2025). La exposición a temperaturas excepcionalmente bajas puede ser una causa importante de mortalidad (datos de aves introducidas) (BOW, 2022).
Platelminto Mesocestoides (quistes en pulmones y ventrículo, Oita); nematodos Heterakis gallinarum y H. pavonis; trematodo cecal Postharmostomum gallinum (Kyushu)
Las pieles, secas o recién cazadas, están relativamente libres; las aves vivas parecen sufrirlos
Beebe, que lo asocia a la afición de la especie al baño de polvo (Beebe, 1922 (vol. III))
Nota: en Beebe, de 27 aves del zoo de Londres con registros, la vida media fue de 20 meses y una vivió más de siete años (Beebe, 1922 (vol. III)).
11
Cría en cautividad
Un faisán de caza fácil de mantener pero salvaje, con el problema añadido de la pureza de las líneas.
El faisán verde se cría en cautividad desde hace más de siglo y medio, primero para las pajareras y los cotos de Europa y hoy, sobre todo, para las sueltas cinegéticas de Japón; los autores clásicos lo describen como un ave de pajarera muy hermosa pero salvaje, más difícil de criar que el faisán común, y todos advierten del mismo problema: el cruce con otros Phasianus ha hecho cada vez más raros los ejemplares puros (Beebe, 1922 (vol. III); Delacour, 1977; Gerrits, 1974; Hernández García, 2014).
Un ave de pajarera y de coto
Delacour la considera un ave de pajarera muy vistosa, que se cría bien en cautividad, pero es habitualmente salvaje y, por ello, más difícil de criar que los faisanes de collar; añade que se la ha buscado mucho para los cotos de Europa, porque vuela rápido y es extremadamente recelosa (Delacour, 1977). Gerrits recoge casi lo mismo: se las arreglan bien en las pajareras, pero suelen ser salvajes y por eso más difíciles de criar que los demás faisanes de caza; quedaban ejemplares puros en Europa, aunque muchos habían perdido la pureza por cruzarse con otros Phasianus(Gerrits, 1974). Howman escribe que los Phasianus se conocen más como aves de caza que de pajarera, que son casi tan hermosos como cualquier especie de faisán y que, por intervención del hombre, muchas subespecies puras ya no lo son (Howman, 1979; Howman, 1993; Howman, 1996). En el manual de Delacour sobre la cría, el verde figura entre las formas más peculiares y bellas de los verdaderos faisanes, y se advierte que los pollos de los versicolor son notoriamente salvajes al nacer (Delacour, 1978).
Beebe, a principios del siglo XX, tenía una opinión algo distinta: los ejemplares de pura sangre no fueron un gran éxito en Inglaterra, porque no crían tan prolíficamente ni son tan robustos como el faisán común, sobre todo en Escocia y en el norte de Inglaterra; en cambio, el cruce parece aumentar el tamaño y la robustez, y se cría con bastante libertad y no es difícil de criar (Beebe, 1922 (vol. III)). Elliot, mucho antes, lamentaba que la facilidad con que se cruzan colchicus, torquatus y versicolor había hecho dificilísimo hallar un ejemplar libre de mezcla (Elliot, 1872). Beebe atribuye el mal resultado de las aves de pura sangre sobre todo a los climas fríos de Escocia y del norte de Inglaterra (Beebe, 1922 (vol. III)).
Instalaciones y carácter
Ni Delacour ni Gerrits dan instrucciones de alojamiento específicas para el verde; para los verdaderos faisanes en general, el manual de Delacour recuerda que se puede tener varias hembras con un solo macho (Delacour, 1978). Las pautas del criadero Chintaguay, que son generales para los faisanes de jaula y no específicas del verde, indican que el faisán, ave predominantemente terrestre, necesita jaulones alargados, de al menos 5 m de fondo y de 1,5 a 2 m de ancho; de 1 a 2 m² por adulto y, en parejas o tríos, de 3 a 6 m² como mínimo (por ejemplo, 1,5 por 4 m); y una altura de al menos 2 m, la que permite caminar erguido; para la cría con fines cinegéticos, los núcleos reproductores suelen tener un macho y de 4 a 8 hembras, en jaulones de 2 por 8 m, y como los faisanes son muy territoriales, se suelen tener jaulones aparte de machos (del Campo, 2006). Recomendación editorial: para un faisán verde de línea pura, conviene evitar el contacto visual con otros Phasianus y no alojar machos de las dos especies en recintos contiguos, para no inducir cruces accidentales a través de la malla.
Madurez, puesta y calendario
Los faisanes verdes son adultos al primer año de vida: pueden criar en el primer año, como los del faisán común (BOW, 2022; Hernández García, 2014; Johnsgard, 1986). La tabla de datos reproductivos en cautividad de Johnsgard, a partir de Delacour y de Howman (1979), da para el faisán verde una madurez sexual de un año, una puesta de 8–12 huevos y una incubación de 24–25 días, y cuenta 298 aves en cautividad en el censo de la WPA de 1982 (frente a 528 del cobrizo y a 2.097 del de Reeves) (Johnsgard, 1986). El libro del autor da 6–15 huevos, 24–25 días de incubación y una sola puesta, con el comienzo de la temporada a principios de marzo en el hemisferio norte y a principios de septiembre en el sur (Hernández García, 2014). La tabla de postura de Chintaguay no incluye una fila para esta especie, pero da para el faisán común una madurez de un año, de 40 a 80 huevos por temporada y una incubación de 23–24 días (del Campo, 2006).
Para casi todos los faisanes, el criadero Chintaguay aplica una pauta muy ajustada, que sirve como guía; para el faisán verde, la duración de la incubación es de 24–25 días según la ficha original y 23–25 según BOW; los parámetros restantes son los que el criadero aplica al conjunto de faisanes, medidos siempre a la altura media del huevo (BOW, 2022; del Campo, 2006; Hernández García, 2014). Recomendación editorial: dado que los huevos del faisán verde son los más pequeños del grupo, conviene vigilar con especial cuidado la pérdida de peso y las condiciones de humedad (Beebe, 1922 (vol. III); del Campo, 2006).
Fase
Valor recomendado
Conservación de los huevos antes de incubar
13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo
Cuándo empezar a incubar
Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo
Precalentamiento
6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación
Temperatura
37,5 °C durante toda la incubación, hasta que el pollo se seca
Humedad relativa
55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo
Volteo
3 o 4 veces al día, hasta tres días antes de la eclosión
Últimos tres días
Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora
Duración para el faisán verde
24–25 días (23–25 según BOW)
Después de nacer
24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días)
Los pollos del faisán verde son muy fuertes, aunque más débiles que los del faisán común, y delicados sobre todo en la primera semana de vida, durante la cual hay que evitar las corrientes de aire (Hernández García, 2014). Delacour, en su manual de cría, señala que muchas especies de faisán son muy salvajes al nacer y que hay que cerrar la caja de eclosión y, si hace demasiado calor, quitar la tapa y cubrirla con malla metálica de media pulgada bien ajustada, para que los pollos no se escapen; los Versicolors y los Elliot son notorios por ello, mientras que los pollos del cheer, del orejudo, de los tragopanes y del argus son tan mansos y fáciles de manejar como pollitos (Delacour, 1978). El mismo autor recomienda dejar las cáscaras vacías en el nido, porque ayudan a compensar el peso de la hembra y a proteger a los pollos (Delacour, 1978). Delacour apunta que los pollos del verde y del monal sucumben a veces al gusano de la tráquea (Syngamus) (Delacour, 1977).
Semana
Días
Temperatura
Dónde
1
1–2
36 °C
Nacedora
1
2–7
32 °C
Criadora
2
8–14
30 °C
Criadora
3
15–21
28 °C
Criadora
4
22–28
26 °C
Criadora
5
29–35
24 °C
Jaula de recría (calor solo de noche durante la primera semana)
6–8
36–56
sin aporte
Jaula de recría
Pauta general de calor suplementario del criadero Chintaguay para faisanes; lo decisivo es observar a las aves: si se amontonan bajo la fuente de calor tienen frío, y si jadean y se alejan, calor (del Campo, 2006).
La alimentación de los pollos es la de los faisanes en general: un buen pienso para pollos de faisán con un 27 % de proteínas, según la ficha original, y, según Chintaguay, niveles de proteína cercanos al 28 % en los primeros meses, complementando el pienso con huevo duro, verdeo, semillas y fruta (del Campo, 2006; Hernández García, 2014). Recomendación editorial: los pollos del faisán verde son muy asustadizos; conviene criarlos con mucha cobertura en la criadora y manipularlos lo menos posible (Delacour, 1978; Hernández García, 2014).
Pureza: por qué es difícil encontrar faisanes verdes puros
La ficha original lo dice sin rodeos: en cautividad, el faisán verde se ha cruzado de forma constante con el faisán común, por lo que es muy difícil encontrar ejemplares puros (Hernández García, 2014). Es el hilo conductor de su historia en cautividad, desde el macho de Knowsley, retrocruzado con hembras comunes, hasta la costumbre, descrita por Delacour, de cruzarlo con el común para obtener un buen faisán de caza (Delacour, 1977; Gould (Univ. de Kansas)). El plan de acción de los faisanes de la UICN y la WPA (2000) menciona como caso que requiere investigación el de las formas del común y del verde nativas de Japón, cruzadas con la raza coreana del común para criar más aves en cautividad destinadas a la suelta cinegética (Fuller y Garson, 2000). En el libro del autor, el faisán verde figura entre las especies para las que no se recomienda un programa de conservación ex situ, porque sus ejemplares son insuficientes o inexistentes, o bien muy abundantes (el criterio que da el libro para esa categoría) (Hernández García, 2014).
Recomendación editorial: quien quiera mantener faisanes verdes de línea pura (y, con más razón, una subespecie determinada) debe partir de aves de origen documentado, no cruzarlas con otros Phasianus ni entre subespecies, y llevar registro de los linajes; la anilla es de 12 mm según Corder y Green-Armytage (Corder; Green-Armytage, 2002; Hernández García, 2014).
Longevidad en cautividad
Beebe recoge que, de 27 aves del zoo de Londres con registros, la vida media fue de unos 20 meses, y una de ellas vivió más de siete años (Beebe, 1922 (vol. III)). BOW da una esperanza de vida de unos 5 años para las aves silvestres (BOW, 2022).
Cría y suelta con fines cinegéticos en Japón
En Japón se crían faisanes verdes en gran número para la caza: la ficha de esta web, que sigue a Chintaguay, da unos 150.000 individuos todos los años (la versión anterior decía, por error, más de 1.500.000); BOW, Johnsgard y Madge hablan de más de 100.000 aves criadas en cautividad liberadas cada año en la década de 1980, y Wikipedia (ja) cuenta unas 100.000 en 2004, aproximadamente la mitad en zonas de protección y vedadas y la otra mitad en zonas cazables, con las aves liberadas marcadas con anillas en las patas (BOW, 2022; del Campo, 2006; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (ja, キジ)). Se sueltan antes de las temporadas de caza y en ocasiones como la Semana de las Aves; el 25 de octubre de 2008, el emperador y la emperatriz soltaron faisanes y faisanes cobrizos en la villa imperial de Nasu (Wikipedia (ja, キジ)). Green-Armytage observa que existen programas de cría y suelta para la caza deportiva, aunque no a la escala de los del faisán común en otros países (Green-Armytage, 2002).
12
Estado de conservación
Preocupación menor: una especie común y muy cazada, sostenida por sueltas, cuya tendencia las fuentes valoran de forma opuesta.
LC
Preocupación menor
Población estable y extendida. Región: Japón.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La UICN clasifica al faisán verde como de preocupación menor en su última evaluación, de 2025, y en las de 2014 y 2016; antes de 2014 no se le reconocía como especie y figuraba dentro del faisán común (BirdLife, 2025).
742.000km²
extensión de presencia según BirdLife (2025)
4,1años
longitud de generación según BirdLife
0–1.000m
rango altitudinal según BirdLife
Estado de conservación · UICN
LC
NT
VU
EN
CR
EW
EX
Menor riesgoMayor riesgo
LCPreocupación menor
Cómo ha ido cambiando la valoración
BirdLife recoge que la especie fue evaluada como de preocupación menor en 2025, 2016 y 2014, y que en las evaluaciones de 1988, 1994, 2000, 2004, 2008 y 2012 figuraba como «no reconocida», porque estaba incluida en Phasianus colchicus(BirdLife, 2025). La nota taxonómica explica que P. colchicus y P. versicolor (del Hoyo y Collar, 2014) estaban antes unidas bajo P. colchicus, siguiendo a Sibley y Monroe (1990, 1993) (BirdLife, 2025). Birds of the World la lista también como de preocupación menor, con la salvedad de que la población global parece estar en declive por la pérdida de hábitat (BOW, 2022). La ficha original y el recuadro de la web sitúan a la especie en esa categoría (BOW, 2022; Hernández García, 2014).
Año
Fuente
Valoración y datos
1922
Beebe
Sin categoría; observa una gran merma de aves en la última década (por el precio que pagaban los sombrereros) y la exterminación total en algunas zonas extensas; la aduana vigilaba estrictamente la exportación de plumas y pieles (Beebe, 1922 (vol. III)).
1986
Johnsgard
Ave de caza principal de Japón, probablemente la más popular; capturas anuales de más de medio millón de aves y 100.000 criadas en cautividad liberadas cada año (Johnsgard, 1986).
1988–2012
UICN (BirdLife)
«No reconocida»: incluida en P. colchicus(BirdLife, 2025).
2000
Fuller y Garson
Trata el verde como subespecie del común; señala el riesgo de las sueltas cruzadas con la raza coreana (Fuller y Garson, 2000).
2002
Madge y McGowan
Extendida y no escasa en todo su área; se abaten unos 500.000 al año (la caza de las hembras está prohibida) y se liberan unos 100.000 al año (en los años ochenta); la conversión del hábitat a cultivos puede afectar a la población (Madge y McGowan, 2002).
Preocupación menor; población global quizá en declive por pérdida de hábitat; no hay amenazas significativas en toda el área nativa (BOW, 2022).
2025
UICN (BirdLife)
Preocupación menor; tendencia creciente inferida a partir de los atlas (BirdLife, 2025).
La web fija el estado en LC; no se ha localizado ninguna evaluación anterior a 2014 con la especie como tal (BirdLife, 2025; Hernández García, 2014).
Los datos de BirdLife (2025)
La justificación de BirdLife es que la especie tiene una gran área de distribución, de modo que no se aproxima a los umbrales de Vulnerable por tamaño de área (extensión de presencia inferior a 20.000 km² con declive); el tamaño de la población no se ha cuantificado, pero no se cree que se acerque a los umbrales de Vulnerable (menos de 10.000 individuos maduros con declive continuo); y la tendencia se considera creciente, de modo que no se acerca al umbral por tendencia (declive de más del 30 % en diez años o tres generaciones) (BirdLife, 2025). La extensión de presencia (residente y reproductora) es de 742.000 km²; la especie es no migrante y endémica reproductora de Japón, sin áreas IBA/KBA identificadas; el área de ocupación es desconocida, sin declive continuo del área de ocupación y con declive continuo de la extensión desconocido (BirdLife, 2025). Los países son Japón (presente, nativa, residente) y Estados Unidos (presente, introducida, residente) (BirdLife, 2025). La longitud de generación es de 4,1 años, la dependencia forestal es baja y el hábitat adecuado incluye la tierra de cultivo artificial, el bosque templado y el matorral templado (BirdLife, 2025).
Tendencia: ¿crece o decrece?
Las fuentes no coinciden en la tendencia. BirdLife (2025) la infiere creciente porque los datos de los atlas muestran un número creciente de cuadrículas ocupadas entre 1997–2002 y 2016–2021 (Bird Breeding Distribution Survey Committee, 2021, informe del censo nacional de distribución de las aves reproductoras 2016–2021, de la Asociación Japonesa de Investigación de Aves, la Sociedad de Aves Silvestres de Japón, la Sociedad para la Conservación de la Naturaleza de Japón, la Asociación Japonesa de Anillamiento, el Instituto Yamashina de Ornitología y el Centro de Biodiversidad del Ministerio del Medio Ambiente) (BirdLife, 2025). BOW, en cambio, dice que la población global parece estar en declive por la pérdida de hábitats adecuados en favor de la agricultura, que incluye la transición de pequeñas explotaciones diversificadas a grandes explotaciones con menos cultivos, la pérdida de setos y de humedales, y el sobrepastoreo (BOW, 2022). La Wikipedia inglesa habla de población decreciente, y la ficha original de la web recoge esa afirmación (Hernández García, 2014; Wikipedia (en)). Madge señala que hay indicios de que el conjunto de la población pueda estar afectado por la conversión de hábitat en tierra agrícola (Madge y McGowan, 2002).
Población y capturas
No hay un censo nacional de aves adultas. BOW apunta que, pese al presunto declive de la población por pérdida de hábitat, se calcula que se abaten unas 500.000 aves al año, y que se libera un número considerable para mantener la población; a principios de la década de 1980 se liberaban más de 100.000 ejemplares criados en cautividad cada año (BOW, 2022). Johnsgard y Madge coinciden en esas cifras (Johnsgard, 1986; Madge y McGowan, 2002). En Japón, el faisán verde es una de las 29 especies de caza designadas oficialmente para las que se puede obtener licencia, está prohibido abatir hembras y se considera especie cinegética en la mayoría de los países donde se ha liberado (BOW, 2022). Wikipedia (ja) añade que está regulado por la Ley de Protección de las Aves y los Mamíferos, y que en 2004 se liberaron unos 100.000 ejemplares en el país, la mitad en zonas de protección y vedadas y la otra mitad en zonas cazables (Wikipedia (ja, キジ)).
Uso y comercio
BirdLife anota que la especie se ha usado en el comercio con alta prevalencia, ya que se halló en tres de los siete conjuntos de datos de comercio evaluados (Donald et al., 2024); los usos registrados son alimento humano, mascotas y exhibición, y caza deportiva y de colección, en una escala de subsistencia y nacional (BirdLife, 2025). BOW da dos ejemplos: se vendieron ejemplares como mascotas en el mercado de Chatuchak, en Tailandia, los días 28 y 29 de marzo de 2015, y hubo comercio en línea en Vietnam en junio de 2016 (BOW, 2022). La ficha de BirdLife consigna que no existen controles internacionales de comercio, que sí hay legislación internacional que incluye a la especie y que no se hace conservación ex situ (BirdLife, 2025).
Medidas de conservación
Según BirdLife, no hay un plan de recuperación, pero sí un esquema sistemático de seguimiento (la ficha de BirdLife lo justifica con censos sistemáticos de aves reproductoras «en al menos algunos países europeos», una frase que no corresponde al área de la especie), hay sitios de conservación identificados en toda el área y no se realiza un control de especies invasoras (BirdLife, 2025). BOW considera que no existen amenazas significativas en toda el área nativa y que, como se ha dicho, se gestiona como especie cinegética; fue declarada ave nacional de Japón en 1947 (BOW, 2022). En la Lista Roja metropolitana de Tokio (edición de 2010), el faisán figura como En Peligro IB en los distritos urbanos, Vulnerable en Kita-Tama y Casi Amenazado en Minami-Tama y Nishi-Tama (Wikipedia (ja, キジ)).
El estado de cada subespecie
Ninguna de las fuentes consultadas da una valoración de conservación independiente para versicolor, tanensis o robustipes. Hay, sin embargo, una preocupación que afecta a su identidad: la Wikipedia japonesa recoge que las aves liberadas se han cruzado ampliamente entre subespecies, difuminando las diferencias; algunos híbridos parecen faisanes comunes sin collar, o viceversa, y la identificación es difícil incluso en machos; y hay temor de que las subespecies desaparezcan (Wikipedia (ja, キジ)). Madge anota la situación opuesta, que las introducciones del común fuera de Hokkaido y de Tsushima han tenido poco éxito, al parecer por la baja fertilidad de los híbridos (Madge y McGowan, 2002). Johnsgard cita a Kuroda (1981) para afirmar que donde se ha soltado el común hay efectos genéticos nocivos sobre la población nativa, y que por eso el común no puede soltarse legalmente salvo en Hokkaido y otras zonas remotas no ocupadas por el verde (Johnsgard, 1986).
13
Amenazas y protección
Pérdida de hábitat agrícola, depredadores de nidos, caza y la mezcla genética con el faisán común soltado.
Las amenazas del faisán verde son sobre todo indirectas: la transformación de la agricultura japonesa, la presión de caza compensada con sueltas, los depredadores de nidos y crías y, en el plano genético, el cruce con los faisanes comunes soltados con fines cinegéticos (BOW, 2022; Hernández García, 2014; Johnsgard, 1986).
La ficha original resume que sus principales amenazas son los córvidos (sobre todo en los nidos), las serpientes y también los gatos y los perros vagabundos (Hernández García, 2014). Birds of the World considera que no existen amenazas significativas en toda el área nativa; añade, sin embargo, una lista de presiones que se describen a continuación (BOW, 2022).
Amenaza
Qué dicen las fuentes
Fuente
Pérdida y cambio de hábitat
Conversión continua a tierras agrícolas; paso de pequeñas explotaciones diversificadas con parches sin cultivar a grandes explotaciones con menos cultivos; pérdida de setos y humedales; el sobrepastoreo, una amenaza para el éxito de la nidificación y para la supervivencia invernal
Córvidos (sobre todo en los nidos), serpientes, gatos y perros vagabundos; halcones, milanos, cuervos, urracas, comadrejas y serpientes; el gato doméstico semisilvestre, el peor enemigo según Beebe
Unos 500.000 abatidos cada año; está prohibido abatir hembras; larga historia como ave de caza y fuente de alimento; antes, plumas para la industria sombrerera
La introducción, hacia 1920, de la subespecie karpowi (Corea) en Honshu, Shikoku y Kyushu provocó cruces; en el conjunto, la forma pura y los híbridos han desaparecido en su mayor parte
BOW explica que la pérdida de hábitat sigue por conversión a tierras agrícolas, y que las prácticas agrícolas modernas, con la transición de pequeñas explotaciones de cultivos diversificados y ganado, con parches sin usar, a grandes explotaciones con menos cultivos y la pérdida de setos y humedales, reducen la cobertura que necesita el faisán; el sobrepastoreo del ganado es una amenaza para el éxito de la nidificación y para la supervivencia en invierno (BOW, 2022). Beebe describía el mismo paisaje un siglo antes como un mosaico de minúsculos campos de arroz, cebada y hortalizas, en el que la tierra labrable lo ocupaba todo, hasta el punto de que no había pasto para el ganado; fuera de los campos, las colinas conservaban el bosque y la hierba, y allí vivían los faisanes (Beebe, 1922 (vol. III)).
Depredadores y perros y gatos asilvestrados
Johnsgard cuenta que entre los depredadores aviares del faisán verde en Japón hay varias rapaces, y que las cornejas, los cuervos y las urracas pueden ser depredadores de nidos, igual que quizá las comadrejas y las serpientes; no obstante, los gatos y los perros asilvestrados son probablemente su enemigo principal en Japón (Bohl, 1964; Beebe, 1918–1922) (Johnsgard, 1986). Beebe, que enumeraba halcones, milanos, cuervos, urracas, comadrejas y serpientes entre los enemigos de los huevos y de los pollos recién nacidos, consideraba que el mayor era, sin duda, el gato doméstico semisilvestre, abundante en algunos lugares (Beebe, 1922 (vol. III)). BOW añade, para el faisán común, una larga lista: zorro rojo, perro doméstico y mustélidos que depredan nido, crías y adultos; águila real, azor, Buteo y halcón peregrino, que depredan adultos y crías; rata noruega, ardillas, córvidos y serpientes colúbridas, depredadores potenciales de los nidos; y, en las áreas de introducción, zarigüeya, mofeta, mapache, búho americano y tortuga mordedora (BOW, 2022). La depredación de los adultos por rapaces es especialmente alta en invierno (BOW, 2022).
Las poblaciones introducidas: mangosta y gato asilvestrado
En las poblaciones establecidas en las islas de Hawái y de Maui, la pequeña mangosta india (Urva auropunctata) y, posiblemente, los gatos asilvestrados son los principales depredadores de nidos, con el 35,9 % de los nidos depredados (n = 167), sobre todo en las tierras bajas abiertas con vegetación escasa (BOW, 2022). BOW cree que la depredación de nidos es probablemente un factor limitante importante, y que la eliminación de depredadores aumenta marcadamente la eclosión (BOW, 2022).
Caza y furtivismo
La caza es la presión más visible, y la mejor documentada. Beebe explica que, en su época, los faisanes solo podían cazarse legalmente del 1 de noviembre al último día de febrero, pero que en zonas apartadas se mataban todos los meses del año y las hembras con frecuencia en el nido; que ningún particular podía tener cotos (solo el Emperador), de modo que, al abrirse la temporada, los cazadores con licencia invadían el país y disparaban donde querían (Beebe, 1922 (vol. III)). En la última década antes de su viaje, el elevado precio que pagaban los sombrereros hizo rentable el riesgo del furtivismo, con el resultado de que en algunas zonas extensas las aves fueron exterminadas por completo, aunque entonces ya se perseguían menos y la aduana vigilaba mucho la exportación de plumas y pieles (Beebe, 1922 (vol. III)). Hoy se abaten unos 500.000 al año y la caza de hembras está prohibida (BOW, 2022; Madge y McGowan, 2002). El faisán verde es una de las 29 especies de aves de caza designadas oficialmente en Japón y se necesita licencia (BOW, 2022; Wikipedia (en)).
La amenaza genética: el faisán común soltado
El riesgo de que el faisán común, soltado para la caza, diluya al verde es la amenaza más discutida. BOW señala que la introducción de la subespecie karpowi del faisán común desde Corea a Honshu, Shikoku y Kyushu hacia 1920 provocó hibridaciones entre ambas especies, aunque los comunes puros y los híbridos han desaparecido en su mayor parte o por completo (BOW, 2022). Fuller y Garson (2000) mencionan el caso, ya citado, de las formas del verde y del común nativas de Japón, cruzadas con la raza coreana para criar más aves destinadas a la suelta cinegética (Maru, 1980; Brazil, 1991) (Fuller y Garson, 2000). Johnsgard, citando a Kuroda (1981), afirma que donde se ha soltado el común hubo efectos genéticos nocivos sobre la población nativa, y que por eso ya no puede soltarse legalmente allí, salvo en Hokkaido y otras zonas remotas no ocupadas por el verde (Johnsgard, 1986). En la Wikipedia japonesa, las aves liberadas se han cruzado ampliamente entre subespecies, difuminando las diferencias, y hay temor de que desaparezcan las subespecies (Wikipedia (ja, キジ)). Los detalles de los cruces y de su fertilidad se tratan en el capítulo de subespecies y variación (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Otras amenazas citadas por BOW
BOW incluye además los plaguicidas (los productos químicos agrícolas afectan a la supervivencia y a la reproducción de los faisanes Phasianus, y la mayoría de los hidrocarburos clorados están prohibidos en Estados Unidos), las colisiones (en Norteamérica, los automóviles están entre las principales causas de mortalidad y las segadoras de heno son responsables de una proporción elevada de las muertes de gallinas en la temporada reproductora) y un dato de Japón: los helechos con altas concentraciones de radiactividad se ven favorecidos como alimento invernal (BOW, 2022). Esas dos primeras amenazas se refieren, sobre todo, al faisán común y a las poblaciones introducidas; BOW no cuantifica su efecto en el área nativa (BOW, 2022).
Protección legal y gestión
El faisán verde es ave de caza regulada por la ley de protección de aves y mamíferos de Japón; el ave puede cazarse con licencia y está prohibido abatir hembras (BOW, 2022; Wikipedia (ja, キジ)). Es el ave nacional desde 1947 (BOW, 2022; Wikipedia (ja, キジ)). BirdLife consigna que no hay un plan de recuperación, que no se realiza control de especies invasoras ni conservación ex situ, y que existe legislación internacional que incluye a la especie (BirdLife, 2025). Recomendación editorial: el mayor beneficio para el faisán verde silvestre sería vigilar la procedencia de las aves que se sueltan, para evitar nuevos cruces, y mantener los setos y las lindes de las explotaciones agrícolas, que dan cobertura a los nidos (BOW, 2022; Johnsgard, 1986).
14
Subespecies, variación, híbridos y mutaciones
Tres subespecies aceptadas y una cuarta discutida, un gradiente de color de norte a sur, el cruce con el faisán común y una mutación oscura que no es suya.
Birds of the World reconoce tres subespecies de faisán verde (versicolor, tanensis y robustipes). El autor recoge además otras formas descritas, como tohkaidi, y una mutación de cría, que se detallan a continuación junto con su área de distribución y sus rasgos distintivos.
Este capítulo es la parte más extensa de la guía: reúne, subespecie por subespecie, lo que dicen Delacour, Madge y McGowan, Johnsgard, Beebe, Birds of the World, la Sociedad Ornitológica de Japón (a través de la Wikipedia japonesa) y la tabla de Pfarr; incluye después las claves de identificación, la sinonimia y las tablas por autor, y termina con los híbridos con el faisán común y con otras especies, las mutaciones y las poblaciones introducidas (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Pfarr; Wikipedia (ja, キジ)).
Un gradiente de color de norte a sur
Hay muchas variaciones entre las diferentes formas de estos faisanes. Las formas septentrionales son más claras, mientras que las del sur son más oscuras (Hernández García, 2014). Todas las fuentes recogen el mismo patrón: Delacour dice que las aves de la parte norte del área son más claras y verdes, mientras que las del sur son más oscuras y azuladas, con mucha intergradación e inestabilidad de color y de tamaño, y que parece que pueden reconocerse tres subespecies (Delacour, 1977). Johnsgard la califica de variación limitada, probablemente algo clinal, aunque con mucha variación local, y recuerda que las aves del norte se dice que son algo menores que las del sur, aunque no es una tendencia clara y Kuroda (1981) afirmó que la forma del norte tiene en realidad un tamaño medio algo mayor (Johnsgard, 1986). BOW resume que la coloración general se oscurece de norte a sur en ambos sexos y que los machos de las tres subespecies difieren ligeramente en el tono del color y en el grado de audacia del escamado (BOW, 2022). Beebe, en cambio, consideraba la especie sorprendentemente poco variable, y decía que podía añadir una docena de nombres nuevos a los treinta y tantos propuestos para los Phasianus si se dejara llevar por las diferencias individuales (Beebe, 1922 (vol. III)).
Las hembras de las tres subespecies se parecen mucho más entre sí que los machos: la de versicolor es la más oscura, y la de robustipes, la más clara (BOW, 2022; Wikipedia (en)). Delacour insiste en que los tres tipos se separan con dificultad y se mezclan en las zonas de contacto: robustipes intergrada con versicolor en el suroeste y con tanensis al norte de las penínsulas de Izu y de Miura (Delacour, 1977). Madge, por su parte, representa en su lámina a tanensis como algo intermedio entre las otras dos y señala que robustipes tiene la corona y la rabadilla más pálidas y grises que las de la nominal y tanensis(Madge y McGowan, 2002).
Delacour dibuja la distribución de las tres subespecies en el mapa 16 de su obra (A, versicolor; B, tanensis; C, robustipes), y Johnsgard, en el mapa 17, las del Sur, del Pacífico y del Norte (Delacour, 1977; Johnsgard, 1986).
Las subespecies en un cuadro
Subespecie (nombre en español de la web; en japonés)
Autor y localidad tipo
Distribución
Machos
versicolor (faisán verde del Sur; kyushu-kiji)
Vieillot, 1825; «Java» (error por Japón), restringida a Nagasaki (Kyushu)
Suroeste de Honshu y Kyushu (con las islas Goto); Madge, en el texto, sureste de Honshu
El más grande y oscuro: rabadilla verde oscuro, partes inferiores verde azuladas; ala de 225–243 mm
tanensis (faisán verde del Pacífico; shima-kiji)
Kuroda, 1919; isla de Tanegashima
Centro-este de Honshu (penínsulas de Izu y de Miura), islas Izu, Tanegashima y Yakushima
Más violáceo y azulado por debajo; dorso y rabadilla más grises y azulados
robustipes (faisán verde del Norte; kiji)
Kuroda, 1919; isla de Sado
Norte de Honshu (la mayor parte de la isla, según Delacour y Madge) e isla de Sado; Shikoku, según Delacour
Menor y más claro: corona verde bronce grisáceo, manto bronceado, rabadilla gris azulada, partes inferiores más verdes; ala de 215–225 mm
tohkaidi (faisán verde de Shikoku, según la web; tokai-kiji)
Momiyama, 1922; provincia de «Ize», Honshu (Delacour)
Centro de Honshu y Shikoku, según la lista japonesa; Shikoku, según la web
Incluida en robustipes según Delacour, Madge y BOW; subespecie reconocida en la lista de la Sociedad Ornitológica de Japón
Vieillot, Galerie des Oiseaux du Cabinet d’Histoire Naturelle du Jardin du Roi, 2, 1825, p. 23, lám. 205 (BOW, 2022; Delacour, 1977).
Etimología
Versicolor: latín, «de varios colores» (vertere, cambiar; color, color); es el nombre de la especie (Jobling, 2010).
Localidad tipo
Vieillot dio «Java», un error por Japón; Delacour, que cita a Beebe, la restringe a Nagasaki, en Kyushu, y dice que el ejemplar tipo del museo de París pertenece a la subespecie de corona verde: la descripción y la figura de Vieillot indican una corona verde cobriza oscura y no mencionan ceja, y por eso el nombre versicolor se aplica a la forma meridional, como señaló Taka-Tsukasa (Delacour, 1977).
BOW: suroeste de Honshu y Kyushu, con las islas Goto; Johnsgard: suroeste de Honshu y Kyushu; Delacour: la isla de Kyushu y el extremo sureste de Honshu (provincia de «Yagamuchi», sic); Madge: sureste de Honshu y Kyushu en el texto, y suroeste de Honshu y Kyushu en la leyenda de su lámina; la ficha original: sureste de Honshu y Kyushu (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (ja, キジ)).
Rasgos del macho
La subespecie más grande y oscura: corona verde oscuro, color general oscuro, espalda baja y rabadilla sobre todo verdes (rabadilla verde oscuro según BOW) y partes inferiores verde azuladas (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Rasgos de la hembra
Oscura, con mucho verde metálico en el manto; es la más oscura de las tres subespecies (Delacour, 1977; Wikipedia (en)).
Frente a las vecinas
Más grande y más oscura que robustipes, con la corona verde en vez de verde bronce grisáceo y la rabadilla verde y no gris azulada; frente a tanensis, con el dorso y la rabadilla más verdes y las partes inferiores menos violáceas (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Tamaño
Macho: ala de 225–243 mm, cola de 270–425 mm, tarso de 64–78 mm, peso de unos 900–1.100 g; hembra: ala de 200–220 mm (200–213 mm según Delacour), cola de 207–275 mm, tarso de 55–64 mm, peso de unos 800–900 g (Delacour, 1977; Madge y McGowan, 2002).
Variación
Intergrada con robustipes en el suroeste de su área (Delacour, 1977).
Hábitat
En Kyushu, la población meridional vive en hábitats parecidos a los del norte, pero con vegetación generalmente más exuberante y con una mayor proporción de árboles de hoja ancha (Johnsgard, 1986).
Estado
Sin evaluación propia; la especie es de preocupación menor (BirdLife, 2025).
Es la forma sobre la que se redactó la descripción de 1825 y la que Beebe describe en su capítulo; Kuroda describió en 1919 kiusiuensis para las aves de Satsuma, hoy incluido aquí (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Cautividad
Delacour supone que el stock más antiguo de Europa pertenecía a esta forma, y la lámina de Gerrits y la de su propio manual ilustran con ella al faisán verde (Delacour, 1977; Delacour, 1978; Gerrits, 1974).
Fue la primera forma descrita y es, por tanto, la que lleva el nombre de la especie. Beebe la vio por última vez en su tierra natal en Kagoshima, en la antigua provincia de Satsuma (localidad tipo de kiusiuensis): un magnífico macho se recortaba en la cima de una suave elevación, con las aguas azules de la bahía, los pinos y la cumbre del Sakurajima al fondo, mientras unos antiguos samuráis enseñaban a tirar con arco a un grupo de jóvenes, hasta que una flecha perdida pasó junto al faisán y lo hizo ocultarse entre la maleza (Beebe, 1922 (vol. III); Delacour, 1977). La fotografía grande muestra un macho cautivo en un recinto, que la ficha original de la web usaba para esta tarjeta; la segunda, de una hembra en el campo, está colocada aquí por su nombre de archivo («versicolorh»). La subespecie de las dos aves no está confirmada, y sus pies llevan el nombre científico atribuido (Hernández García, 2014).
El nombre alude a la localidad tipo, la isla de Tanegashima; Jobling no recoge una entrada para este epíteto (BOW, 2022; Delacour, 1977; Jobling, 2010).
BOW: centro-este de Honshu (penínsulas de Izu y de Miura), las cercanas islas Izu, Tanegashima y Yakushima; Johnsgard y Madge, lo mismo, con las Siete Islas de Izu; Delacour: las partes más cálidas y húmedas de Honshu (Izu y Miura), las Siete Islas de Izu y las islas de Tanegashima y Oshima, al sur de Kyushu; la ficha original: península de Izu y de Miura, islas Tanegashima y Yakushima; la Wikipedia japonesa añade Kii (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (ja, キジ)).
Rasgos del macho
Más violáceo y azulado por debajo que la nominal; dorso y rabadilla más grises (y azulados) (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). El libro del autor, siguiendo a Johnsgard, usa en la clave la cola gris azulada (Hernández García, 2014). Wikipedia añade que los machos son más claros que los de la nominal, con más púrpura y azul (Wikipedia (en)).
Rasgos de la hembra
No se ha descrito específicamente; las de las tres subespecies son mucho más parecidas entre sí que los machos (BOW, 2022; Wikipedia (en)).
Frente a las vecinas
Muy parecida a la nominal, pero con más púrpura por debajo y con el dorso y la rabadilla más grises y azulados; entre versicolor y robustipes en el conjunto (Madge) (Delacour, 1977; Madge y McGowan, 2002).
Tamaño
Sin medidas propias: Johnsgard la sitúa, con la nominal, en el grupo de los machos más grandes, de ala de 225–245 mm (Johnsgard, 1986).
Variación
Hay intergradación con robustipes al norte de las penínsulas de Izu y de Miura (Delacour, 1977).
Hábitat
Zonas más cálidas y húmedas de la costa del Pacífico (Delacour, 1977).
Kuroda la describió en 1919 a partir de aves de Tanegashima, y Momiyama añadió en 1922 el nombre affinis para las de Oshima, en las Siete Islas de Izu (BOW, 2022; Delacour, 1977). Las observaciones de la expedición de Perry en la península de Izu (1854) corresponden a su área (Delacour, 1977; Elliot, 1872).
Cautividad
Gerrits la cita como una de las tres subespecies puras, «Pacific Green», sin dar más detalles (Gerrits, 1974).
Los faisanes que Heine vio en 1854 en la península de Izu, y que describió la expedición de Perry, vivían en la zona que hoy se asigna a esta subespecie (Beebe, 1922 (vol. III); Delacour, 1977; Elliot, 1872). Las dos primeras fotografías son de machos, con la espalda y la rabadilla de un gris pálido, y la tercera es de una hembra; no llevan autor ni procedencia, y la subespecie es la atribuida por la ficha original de la web (Hernández García, 2014).
BOW: norte de Honshu e isla de Sado; Delacour: la mayor parte de Honshu (intergrada con versicolor en el suroeste y con tanensis al norte de Izu y de Miura) y Shikoku; Johnsgard: Sado y Honshu, salvo las zonas de versicolor y de tanensis, y quizá Shikoku; Madge: Sado y la mayor parte de Honshu; la ficha original: «al noroeste, isla de Sado» (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Rasgos del macho
Más claro que versicolor: corona verde bronce grisáceo, con frecuencia con cejas grises o blancas mal definidas; manto más bronceado; espalda y rabadilla gris azulado, con un tinte oliva en la parte baja y en el centro; partes inferiores algo más verdes y menos azuladas (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Rasgos de la hembra
Más clara, con menos reflejos verdes en el manto; es obviamente más pálida que la de la nominal (BOW, 2022; Delacour, 1977).
Macho: ala de 215–225 mm, frente a 225–243 mm de la nominal; según Delacour, las aves más septentrionales tienden a ser algo mayores, aunque hay diferencias individuales en toda el área (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Variación
Incluye varias formas locales descritas por Momiyama y por Taka-Tsukasa, hoy sinónimos; intergrada con versicolor en el suroeste y con tanensis al norte de Izu y de Miura (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Hábitat
Del nivel del mar a unos 3.500 pies, en bosque ralo o matorral cerca de campos, praderas junto a ríos y tierras de cultivo, colinas bajas junto a la costa y montañas de islas con matorral y árboles; en el norte de Honshu, las aves bajan a las tierras bajas y a la costa en invierno (Beebe, 1922 (vol. III); Johnsgard, 1986).
Kuroda la describió en 1919 a partir de aves de la isla de Sado; Momiyama (1922) y Taka-Tsukasa (1943) propusieron para sus poblaciones locales los nombres tohkaidi, maedaius, nankaidi y kigis, que Delacour, Madge y BOW consideran sinónimos (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Cautividad
Según Delacour, ha sido la subespecie más importada en los últimos ochenta años, y la que llegó a Clères en los envíos de 1926–1938; en las pajareras no se distinguía entre subespecies (Delacour, 1977).
Introducción
La ficha original dice que esta subespecie ha sido introducida en Hawái; BOW y Johnsgard no precisan qué forma se soltó, y Delacour piensa que, en Europa, predominó la septentrional entre las aves importadas después de la primera época (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986).
La ficha original de la web describe esta subespecie con las frases: «El macho es más claro, con la parte inferior más verde, el manto bronceado y la espalda gris azulada, con un tinte oliva en la parte inferior y en el centro. La hembra es más clara.» Ese texto resume la descripción de Delacour, y la distribución de la ficha («al noroeste, isla de Sado») es correcta para Sado, que es además la localidad tipo; otros autores (BOW, Delacour) añaden que la subespecie se extiende por la mayor parte de Honshu (BOW, 2022; Delacour, 1977; Hernández García, 2014). Las cuatro fotografías no llevan autor ni procedencia en la web; la última es una hembra. En la lista de fotografías del segundo volumen del libro del autor, una imagen de un macho de esta subespecie se acredita a Scot Vowers, pero no se indica cuál de los archivos es, de modo que los pies conservan «Autor desconocido» (Hernández García, 2014).
Momiyama, Dobutsugaku Zasshi, 34, 1922, p. 734 (Delacour, 1977); Avibase la cita igual (Avibase).
Etimología
Jobling no recoge este epíteto. En la lista japonesa se llama tokai-kiji (トウカイキジ), y el epíteto parece transcribir ese nombre; las fuentes consultadas no explican su origen (Jobling, 2010; Wikipedia (ja, キジ)).
Localidad tipo
Provincia de «Ize» (grafía de Delacour), en Honshu (Delacour, 1977); Avibase da «Province of Ise, Hondo, Japan», es decir, la provincia de Ise, en Honshu (Avibase).
La ficha original: Shikoku. La Wikipedia japonesa (lista de la Sociedad Ornitológica de Japón, 2012): centro de Honshu y Shikoku, con la advertencia de que las áreas de las subespecies no están claras y requieren más estudio. Delacour: la localidad tipo está en Honshu, y nankaidi Momiyama, 1922 (provincia de Tosa, Shikoku) se incluye también en robustipes(Delacour, 1977; Hernández García, 2014; Wikipedia (ja, キジ)).
Situación taxonómica
Avibase la trata como subespecie de Phasianus versicolor(Avibase). La ficha original dice que la mayoría de los autores la consideran una variedad de color de versicolor y que fue «separada en 2003», aunque no es reconocida por algunos autores. Delacour (1977), Madge y McGowan (2002) y BOW (2022) la incluyen en robustipes; la tabla de Pfarr solo da tres subespecies, sin tohkaidi; la lista de la Sociedad Ornitológica de Japón (2012) la reconoce como cuarta subespecie (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr; Wikipedia (ja, キジ)).
Rasgos
No hay descripciones específicas en las fuentes consultadas; los de robustipes (la forma en que la incluyen Delacour, Madge y BOW) son los machos más claros, con la corona verde bronce grisácea y el dorso gris azulado (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Historia
Momiyama la describió en 1922, junto con maedaius, nankaidi y affinis; Delacour (1977) la incluye en la sinonimia de robustipes; la ficha original dice que fue separada en 2003; la lista de la Sociedad Ornitológica de Japón (2012) la reconoce (Delacour, 1977; Hernández García, 2014; Wikipedia (ja, キジ)).
Cautividad
La web conserva tres fotografías con este nombre; en las fuentes consultadas no hay datos de cría ni de manejo específicos de esta forma (Hernández García, 2014).
Esta es la forma que más debate suscita, y el desacuerdo es un asunto de límites taxonómicos, no de errores: la ficha original la presenta como una subespecie «separada en 2003, aunque no reconocida por algunos autores»; la Sociedad Ornitológica de Japón la reconoce; los demás autores la incluyen en robustipes (Delacour, Madge, BOW) o la consideran una variedad de color de la nominal (la propia web), y la tabla de Pfarr solo recoge tres subespecies, sin tohkaidi(BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr; Wikipedia (ja, キジ)). Las tres fotografías, que la web conserva con el nombre tohkaidi, no llevan autor ni procedencia y su identificación es atribuida; por eso en los pies solo figura el nombre científico atribuido (Hernández García, 2014).
Otros nombres descritos y hoy incluidos en una subespecie
Los siguientes nombres fueron propuestos por Kuroda, Momiyama y Taka-Tsukasa; ninguno es reconocido hoy como subespecie por BOW, y de ellos solo tohkaidi lo es en la lista japonesa. No tienen fotografía propia (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002; Wikipedia (ja, キジ)).
kiusiuensis (sinónimo de versicolor)
Phasianus versicolor kiusiuensisKuroda, 1919
Publicación
Dobutsugaku Zasshi, 31, 1919, pp. 300 y 309 (Delacour, 1977).
Delacour restringe la localidad tipo de versicolor a Nagasaki; el nombre de Kuroda describiría, según esas obras, la misma forma meridional (Delacour, 1977).
Clave dicotómica · Clave de las especies y subespecies de Phasianus (según Johnsgard, 1986)
Plumaje principalmente pardo apagado (hembras)
Plumas del manto manchadas de negro; partes inferiores claramente moteadasPhasianus versicolor (hembra)
Plumas del manto manchadas de pardo; partes inferiores no moteadasPhasianus colchicus (hembra)
Plumaje principalmente iridiscente (machos)
Partes inferiores totalmente verdosas: faisán verde
Menor (ala de 215–225 mm) y en general más claroP. v. robustipes (faisán verde del Norte)
Mayor (ala de 225–245 mm) y en general más oscuro
Espalda y rabadilla sobre todo verdosasP. v. versicolor (faisán verde del Sur)
Espalda y rabadilla más grises y azuladasP. v. tanensis (faisán verde del Pacífico)
Partes inferiores siempre con algo de rojo cobrizoPhasianus colchicus (faisán común)
Clave dicotómica · Clave de las subespecies de Phasianus versicolor (según el libro del autor, a partir de Johnsgard)
A diferencia del Phasianus colchicus, el verde es completamente verdoso e iridiscente
Pequeño (alas de 21–22 cm) y de aspecto general claroP. v. robustipes
Grande (alas de 22–24 cm) y de aspecto general oscuro
Oscuro, con la cola principalmente verdosaP. v. versicolor
Oscuro, con la cola gris azuladaP. v. tanensis
Clave dicotómica · Clave de Phasianus (según Delacour, 1977)
Plumaje dominantemente metálico (machos)
Partes inferiores enteramente verdesP. versicolor (macho)
Partes inferiores siempre con algo de rojo cobrizoP. colchicus (macho)
Plumaje dominantemente pardo apagado (hembras)
Plumas del manto mayormente negrasP. versicolor (hembra)
Plumas del manto mayormente pardasP. colchicus (hembra)
La clave de Buturlin (Ibis, 1904), que cita Beebe para los machos, divide a los Phasianus en dos grupos: las formas de partes inferiores no totalmente verdes y metálicas (el común y las formas continentales) y la de partes inferiores totalmente verdes y metálicas, Phasianus versicolor(Beebe, 1922 (vol. III)). Para distinguir al macho del verde del macho melánico del común, Johnsgard recuerda, para la identificación en la mano, que los melánicos son en general más oscuros y de cola más larga (más de 350 mm) (Johnsgard, 1986).
Taxonomía según cada autor
La tabla recoge cómo ha tratado cada fuente al faisán verde y a sus formas. Las diferencias no son errores de nadie: reflejan el material disponible en cada época, el criterio de cada autor para separar especies y subespecies y, en el caso de tohkaidi, un asunto aún abierto.
Describe tohkaidi, maedaius, nankaidi y affinis(Delacour, 1977)
Beebe (1922)
Una sola forma, sin subespecies: «muy poca variación»; el nombre linneano colchicus para todas las formas continentales (Beebe, 1922 (vol. III))
Taka-Tsukasa (1943)
Describe kigis; considera que el nombre versicolor corresponde a la forma meridional de corona verde (Delacour, 1977)
Gerrits (1974)
Tres «razas» (subespecies): del Sur (versicolor), del Pacífico (tanensis) y del Norte (robustipes), con numerosas variaciones locales o formas geográficas; solo menciona las tres principales (Gerrits, 1974)
Delacour (1977)
Tres subespecies: versicolor (con kiusiuensis), tanensis (con affinis) y robustipes (con tohkaidi, maedaius, nankaidi y kigis) (Delacour, 1977)
Tres subespecies: versicolor, tanensis y robustipes (al verde lo llama Phasianus (colchicus) versicolor) (Johnsgard, 1986)
Fuller y Garson (2000)
Tres formas como subespecies de P. colchicus: versicolor, robustipes y tanensis(Fuller y Garson, 2000)
Madge y McGowan (2002)
Tres subespecies, con kiusiuensis en la nominal, affinis en tanensis y tohkaidi, maedius, nankaidi y kigis en robustipes(Madge y McGowan, 2002)
Chintaguay (2005–2006)
Tres subespecies: versicolor, tanensis y robustipes(del Campo, 2006)
Hernández García (2013, 2014)
Tres subespecies en las listas de los dos volúmenes del libro; la ficha de la web añade tohkaidi (Momiyama, 1922), «separada en 2003», y la mutación tenebrosus(Hernández García, 2013; Hernández García, 2014)
Pfarr (año por confirmar)
Tres subespecies de P. versicolor: robustipes (Kuroda, 1919), tanensis (Kuroda, 1919) y versicolor (Vieillot, 1825) (Pfarr)
Sociedad Ornitológica de Japón (2012)
Cuatro subespecies (versicolor, robustipes, tanensis y tohkaidi) dentro de P. colchicus; advierte de que las áreas de las subespecies no están claras y requieren más estudio (Wikipedia (ja, キジ))
Wikipedia (en, 2026)
Tres subespecies: versicolor, «tamensis» (sic) y robustipes, sin autoridades (Wikipedia (en))
Birds of the World (2022)
Tres subespecies; las propuestas kigis, maedius y nankaidi se incluyen en robustipes, kiusiuensis en la nominal y affinis en tanensis; no menciona tohkaidi en el texto consultado (BOW, 2022)
BirdLife (2025)
Reconoce la especie y no detalla subespecies en la ficha consultada (BirdLife, 2025)
No se ha podido consultar directamente la lista del IOC. La lista de Clements (2015), según la Wikipedia japonesa, trata el verde como subespecie del común (Wikipedia (ja, キジ)).
Autor y año de cada subespecie según las fuentes
Taxón
Pfarr
Delacour (1977)
Madge y McGowan (2002)
BOW (2022)
Sociedad Ornitológica de Japón (2012)
Ficha original
versicolor
Vieillot, 1825
Vieillot, 1825 (Gal. Ois., 2, p. 23)
Vieillot, 1825
Vieillot, 1825 (Galerie des Oiseaux, 2: 23)
Vieillot, 1825
Vieillot, 1825
tanensis
Kuroda, 1919
Kuroda, 1919 (Dobuts. Zasshi, 31, p. 310)
Kuroda, 1919
Kuroda, 1919 (31: 310)
Kuroda, 1919
Kuroda, 1919
robustipes
Kuroda, 1919
Kuroda, 1919 (31, p. 309)
Kuroda, 1919
Kuroda, 1919 (31: 309; impreso «rubustipes»)
Kuroda, 1919
Kuroda, 1919
tohkaidi
no figura
Momiyama, 1922 (34, p. 734), en la sinonimia de robustipes
El faisán verde se cruza con facilidad con otros Phasianus y con varios faisanes de otros géneros; el grado de fertilidad de los híbridos varía según el cruce. La tabla de hibridación del criadero Chintaguay, adaptada de Johnsgard (1999), y los textos de Delacour y de BOW permiten resumirlo (BOW, 2022; del Campo, 2006; Delacour, 1977; Johnsgard, 1999).
Cruce
Fertilidad de los híbridos
Fuente
Faisán verde × faisán común (Phasianus colchicus)
Híbridos de ambos sexos fértiles; descendencia fértil entre sí (Beebe)
Faisán verde × faisán de Reeves (Syrmaticus reevesii)
Machos fértiles o a veces fértiles (tabla); BOW cita, en cautividad, tasas de fertilidad de hasta el 30 % (19 de 63 huevos) y de eclosión de hasta el 68 % (13 huevos)
Hibridación reportada en cautividad (tabla); Delacour dice que se cruzan ocasionalmente en estado salvaje y que los híbridos son infértiles; BOW recoge afirmaciones de hibridación en libertad; Beebe oyó lo mismo de los japoneses, sin pruebas
Faisán verde × faisán dorado y × faisán de Lady Amherst
Machos fértiles o a veces fértiles (tabla); Delacour: los cruces de Chrysolophus con Phasianus son fáciles, pero solo parcialmente fértiles, con hembras estériles y a menudo masculinas
Johnsgard (1999) adaptado por Chintaguay; los datos de BOW son de cautividad. Delacour indica además que los cruces de Syrmaticus con Phasianus son fáciles, pero solo parcialmente fértiles, con hembras casi siempre estériles (BOW, 2022; del Campo, 2006; Delacour, 1977).
El cruce con el faisán común y el «ringneck × versicolor»
Es el híbrido de mayor importancia, por su historia y por sus efectos. Beebe observó que el verde se cruza con facilidad con cualquier Phasianus y que la descendencia es fértil entre sí, y que la hibridación parece aumentar el tamaño y la robustez de las aves (Beebe, 1922 (vol. III)). Delacour cuenta que todas las formas de los verdaderos faisanes se reemplazan unas a otras geográficamente y se cruzan libremente cuando se juntan, con híbridos completamente fértiles (Delacour, 1977). Elliot, en 1872, lamentaba que, entre los faisanes de Inglaterra, el cruce entre el común, el de collar y el verde se había generalizado de tal modo que era dificilísimo hallar un ejemplar de pura sangre de cualquiera de las tres especies (Elliot, 1872). Gould, por su parte, describe el origen de la mezcla en Europa: el macho de Knowsley, cruzado con una hembra común, dio medios híbridos; el retrocruzamiento con el macho viejo produjo tres cuartos y, finalmente, una población casi pura; y la introducción de sangre nueva aumentó el tamaño y el sabor y produjo colores variados (Gould (Univ. de Kansas)).
En su descripción de la mutación melánica, Delacour describe también cómo es el híbrido entre el verde y el común, que no se parece a tenebrosus ni a ninguno de los dos padres: el manto es de un verde brillante con barras rojas y ante; los escapulares, en su mayoría rojo granate, contrastan con el manto; las coberteras de las alas son gris claro, como en el verde, y no oliva ni verdes; el pecho es verde azulado brillante, con una ancha barra roja subterminal en las plumas de los lados; y la espalda baja y la rabadilla, en su mayor parte grises; la hembra híbrida y los jóvenes se parecen a los padres (Delacour, 1977). En esta guía se llama «ringneck × versicolor» al cruce del verde con las formas de collar del común, ya que Ring-necked Pheasant («faisán de collar») es el nombre inglés que Birds of the World da a Phasianus colchicus(BOW, 2022; Delacour, 1977). BOW anota un registro de eBird del híbrido Phasianus colchicus × versicolor con 11 fotografías (BOW, 2022).
En la naturaleza, el cruce funciona de manera muy distinta según el lugar. En Japón, BOW dice que las introducciones repetidas del común en Honshu han fracasado de forma sistemática: los híbridos y los comunes puros han desaparecido varias veces, lo que se tiene por una prueba de aislamiento reproductivo; Madge señala que las introducciones del común en Japón fuera de Hokkaido y de Tsushima han tenido poco éxito, aparentemente por la baja fertilidad de los híbridos con el verde (BOW, 2022; Madge y McGowan, 2002). Johnsgard, citando a Kuroda (1981) y a Schwartz y Schwartz (1951), dice que, donde ambos coinciden por introducción, tienden a hibridar y el verde suele salir perdiendo (Johnsgard, 1986). La Wikipedia japonesa, en cambio, cuenta que el faisán común se ha establecido en Honshu, Shikoku, parte de Kyushu y las islas Osumi, que las aves liberadas se han cruzado ampliamente entre subespecies y que algunos híbridos parecen faisanes comunes sin collar o viceversa (Wikipedia (ja, キジ)). En Hawái, tras un periodo de cierta hibridación, el verde y sus híbridos parecen haber desaparecido en gran parte, mientras el común sigue prosperando (BOW, 2022). BOW concluye que uno u otro taxón parece tener una ventaja de aptitud sobre el otro y sobre sus híbridos, lo que apoya el mantenimiento de dos especies separadas (BOW, 2022).
El cruce con el faisán de Reeves y con otros faisanes
Delacour recuerda que el faisán de Reeves se cruza fácilmente con otras especies de faisán, en particular con los cobrizos, los cheer, los verdaderos faisanes y los plateados, y que solo los machos híbridos son fértiles; añade que los cruces de Syrmaticus con Lophura, Catreus, Chrysolophus y Phasianus se consiguen todos con facilidad, pero son solo parcialmente fértiles, con las hembras por regla general estériles, aunque hay noticias de hembras híbridas fértiles S. reevesii × P. colchicus(Delacour, 1977). La tabla de Johnsgard (1999) adaptada por Chintaguay anota para el faisán verde × el de Reeves híbridos machos fértiles o a veces fértiles (del Campo, 2006; Johnsgard, 1999). BOW cita, en cautividad, el cruce de machos de faisán verde con el de Reeves, con tasas de fertilidad de hasta el 30 % (19 de 63 huevos) y de eclosión de hasta el 68 % (13 huevos) (BOW, 2022). Johnsgard, en su obra de 1986, sostiene que hay problemas de fertilidad reducida en los cruces entre Phasianus y Syrmaticus, y ese es uno de los motivos por los que no ve ventaja en unir ambos géneros (Johnsgard, 1986).
Con el faisán cobrizo, el relato es más escueto. Delacour afirma que el cobrizo cruza ocasionalmente con el verde en estado salvaje y que los híbridos son infértiles; Beebe oyó repetidamente de los japoneses que los silvestres cruzan de vez en cuando con el Yamadori (el cobrizo) y, aún más raramente, con gallinas domésticas, pero no obtuvo pruebas definitivas; BOW recoge afirmaciones de hibridación en libertad con Syrmaticus soemmerringii; la tabla de Chintaguay la da como reportada en cautividad; la ficha original dice que se han observado algunas hibridaciones esporádicas con el faisán cobrizo en la naturaleza, con híbridos estériles; y la Wikipedia inglesa cita híbridos conocidos con el cobrizo y con el común (Beebe, 1922 (vol. III); BOW, 2022; del Campo, 2006; Delacour, 1977; Hernández García, 2014; Wikipedia (en)). Beebe cita además híbridos con los llamados lineated pheasants, y BOW, en cautividad, con el faisán kalij y con el gallo bankiva doméstico (Beebe, 1922 (vol. III); BOW, 2022).
La mutación melánica «tenebrosus»: una mutación del faisán común, no del verde
La ficha original menciona, en la tarjeta de tohkaidi, una mutación de cría, «Phasianus versicolor tenebrosus» (faisán tenebroso), que tiene su origen en Inglaterra (1880) y que, después de 1920, se crió de forma selectiva y se envió al resto de Europa y América (Hernández García, 2014). Las fuentes tratan la forma como una mutación del faisán común, no del verde: Delacour la llama Phasianus colchicus mut. tenebrosus (faisán obscur) y atribuye el nombre a Hachisuka (Bulletin of the British Ornithologists’ Club, 47, 1927, p. 51) (Delacour, 1977). Delacour, Madge, Green-Armytage y Robertson coinciden en que se trata de una mutación y no de un híbrido (Delacour, 1977; Green-Armytage, 2002; Madge y McGowan, 2002; Robertson, 1997).
Según el relato de Hachisuka que reproduce Delacour, en un día de invierno de 1925 el marqués vio en las tiendas de aves de corral de Cambridge una gallina de faisán de color parecido al del urogallo y la compró; resultó una hembra adulta. Se la enseñó a lord Rothschild, que le dijo que conocía bien ese tipo de faisán, que se hallaba en Norfolk desde 1880 aproximadamente, y le mostró un macho, al que Hachisuka dio el nombre de tenebrosus y que hizo reproducir en color en L’Oiseau (1927) y en la revista Tori, en Japón; fue la primera vez que una forma mutante se describía como es debido, pues hasta entonces se habían descrito por error como especies o subespecies (Delacour, 1977). Para demostrar que era una mutación auténtica, Hachisuka inició cruzas experimentales en Japón, y la forma se mantuvo pura durante varias generaciones; a la vez se hizo común y popular en Inglaterra y en Francia, por su gran tamaño y su vitalidad; poco a poco sus rasgos se acentuaron y apareció una fase más oscura (Delacour, L’Oiseau, 1931) (Delacour, 1977). El profesor Lönnberg informó de que había aparecido también en Suecia, probablemente importada de Inglaterra, y se halló por casualidad una hembra de tipo tenebrosus en Japón entre aves silvestres de versicolor, lo que sugiere que todas las formas de Phasianus pueden producirla (Delacour, 1977).
La confusión con un híbrido tenía una razón: algunas personas, por el color oscuro, creyeron que era un cruce de común con verde, que recordaban vagamente como un ave más oscura que el faisán común, aunque el verde se había introducido en Francia e Inglaterra y pronto desapareció en cuanto a colores (Delacour, 1977). D. Seth-Smith resumió la cuestión en Ibis (1932, pp. 438–441) (Delacour, 1977). Delacour rebate la hipótesis: el híbrido de verde y común es completamente distinto, con el manto verde brillante con barras rojas y ante, escapulares rojo granate, coberteras gris claro, pecho verde azulado brillante y rabadilla gris, y la hembra y los pollitos híbridos se parecen a los padres, sin parecerse en nada a los de tenebrosus(Delacour, 1977). Robertson añade que los machos del verde tienen algunas características del melánico, pero que los pollos y hembras del verde son muy parecidos a los del común, mientras que los del melánico son pardo chocolate; que el cruce común × verde da hembras y pollos de aspecto normal, y que los cruces de melánicos con cualquiera de los dos dan mitad normales y mitad melánicos, lo que indica que es una mutación (Robertson, 1997). La Wikipedia inglesa, en cambio, recoge que se ha dicho que el cruce entre verde y común es el origen de una variante melánica en poblaciones inglesas, afirmación que Delacour y Robertson rechazan (Delacour, 1977; Robertson, 1997; Wikipedia (en)).
Fase o sexo
Descripción de tenebrosus
Fuente
Macho, fase final
Completamente verde metálico por encima, excepto alas y abdomen, de un oliva negruzco apagado; cola pardo oliva con barras negras y flecos bronceados que suelen estar reducidos; pecho y lados del cuerpo azul purpúreo, con los raquis claros y ante; cuello también azulado
Con barras en V de color ante y rojo en los lados del cuerpo, alas de un verde oliva y pardo más claro, y partes superiores verde bronce con marcas ante y negruzcas; a menudo queda algo de rojo púrpura en el manto, y los lados y la rabadilla son rojizos
Enteramente negro hollín, con reflejos verdes y púrpura en la cabeza, el cuello, el pecho y el manto, y algunos raquis claros; en la fase menos avanzada, castaño oscuro o negruzco con barras y bordes pardo pálido del dibujo normal del común
Cuando se cruza con la forma original no produce aves intermedias, sino que reproduce a uno u otro progenitor; entre sí cría absolutamente puro; la mutación es más apta que la forma original y puede llegar a sustituirla si no se interfiere
Madge y Green-Armytage describen a los machos como de un verde negruzco brillante, que a primera vista parecen negros, y a las hembras (Madge) como de un castaño rico moteado de negro (Green-Armytage, 2002; Madge y McGowan, 2002).
Delacour considera que, desde 1933, la fase muy oscura de la mutación se ha establecido de forma general en Europa y América, donde hoy son comunes los machos de un verde y un azul profundos y las hembras negras; la mutación ha llegado al final de su curso y se ha estabilizado, y estos faisanes oscuros son muy hermosos por sus brillos intensos, grandes, rústicos y prolíficos (Delacour, 1977). Delacour, en su manual de cría, añade que las mutantes melánicas surgieron en poblaciones asilvestradas de Europa hace cien años; que al principio los machos eran más oscuros que los de cuello negro, con mucho azul y verde en el pecho, y la hembra pardo caoba; y que poco a poco los machos son verde oscuro brillante y las hembras verde negruzco (Delacour, 1978). Green-Armytage anota que ocasionalmente hay melánicos con algunas plumas blancas en el cuello, que algunos criadores han intentado crear mutaciones nuevas y que, al cruzarlo con el común, la descendencia es de uno u otro tipo y no de un tono intermedio (Green-Armytage, 2002).
Otras variantes de color
Beebe señala, como se ha visto, un tipo gris silvestre, que parece una mutación y que los cazadores japoneses conocían y nombraban aparte (Beebe, 1922 (vol. III)). En la sinonimia de Beebe figura además una referencia de Parlett (The Field, 1906) a una «variedad blanca» del faisán verde, sin más detalle (Beebe, 1922 (vol. III)). En las fuentes consultadas no se han hallado otras variedades de cría del verde puro; la «mutación de cría» de la ficha original es tenebrosus(del Campo, 2006; Hernández García, 2014).
Poblaciones introducidas
BOW indica que el faisán verde se ha liberado periódicamente, junto con muchas subespecies del faisán común, para complementar la caza en Hawái, Michigan, el resto de Estados Unidos, Canadá, el Reino Unido, Francia, Italia y toda Europa; que se ha introducido también en Tahití y en Guam (con estado incierto), y que se cree que las poblaciones de las islas japonesas más pequeñas al este de Okinawa (Kitadaito, Minamidaito e Iwo Jima) proceden de aves liberadas (BOW, 2022). La tabla resume lo que dicen las fuentes.
Lugar
Datos
Fuente
Hawái
Introducido en las principales islas hacia 1865, con poblaciones establecidas, más numerosas en la isla de Hawái, sobre todo en las laderas de barlovento del Mauna Kea y del Mauna Loa; menores en Kauai y Lanai y posiblemente en Maui. Johnsgard (Schwartz y Schwartz, 1951): entre 4.000 y 7.500 pies (unos 1.220–2.290 m), con las mayores densidades donde hay koas dispersos. BOW: prefiere cotas más altas y hábitats más húmedos que el común. Beebe: introducido en Oahu. Madge: isla principal de Hawái
El número de aves fenotípicamente puras y de híbridos cayó drásticamente entre los años setenta y los noventa, y es posible que el verde puro haya sido extirpado de Hawái, mientras que el común sigue muy extendido y común. Wikipedia habla de poblaciones estables (BOW, 2022; Wikipedia (en))
La pequeña mangosta india y, posiblemente, los gatos asilvestrados depredan el 35,9 % de los nidos (n = 167) en las poblaciones establecidas de las islas de Hawái y de Maui
Intento infructuoso de la Colorado State Sportsmen’s Association hacia 1882; el juez Owen Nickerson Denny, en Protection Island (Puget Sound, Washington), fracasó en 1885; la mayor liberación fue la de 1960–1975, con 47.741 aves en Virginia, Tennessee, Luisiana, Washington, Idaho, Kentucky, Nueva York y Maryland, y luego Delaware; hacia 1963 se establecieron pequeñas poblaciones en Virginia y Tennessee. Delacour: naturalizado en Oregón hacia 1880. Madge: Delaware y Virginia, y probablemente otros
En los años cincuenta, Wisconsin ensayó el faisán verde japonés con la esperanza de que anidara más tarde que el de collar (para evitar morir en las siegas del heno) y ampliase el área del faisán hacia zonas con más cobertura leñosa; por entonces Ohio probó un híbrido de cinco especies, el «quintex pheasant»; ninguno de los dos intentos está bien documentado
Primer relato en la colección del conde de Derby en Knowsley (Cheshire), hacia 1840; aves de aspecto verde, de probable ascendencia híbrida, en el noreste de Norfolk en 1999 o 2000, con un máximo de 81 en octubre de 2005 (Colby-Banningham); origen indeterminado, sin pruebas de cría; se sospecha que algunos son melánicos mal identificados de faisán común
Según Wikipedia, las poblaciones de Europa occidental probablemente se han cruzado con faisanes comunes y no quedan verdes puros; Delacour dice que había verdes puros en Europa y América
Las introducciones fuera de Japón son de poco interés para la conservación de la subespecie, pero explican por qué es tan difícil hallar ejemplares puros en cautividad (BOW, 2022; Hernández García, 2014).
15
Cultura y curiosidades
El ave nacional de Japón: del Kojiki a Momotaro, del billete de 10.000 yenes a los terremotos y a la cocina.
El faisán verde es el ave nacional de Japón desde 1947 y, junto con el faisán cobrizo, ha inspirado numerosas leyendas, mitos, poemas y pinturas del arte japonés (BOW, 2022; Hernández García, 2014; Wikipedia (ja, キジ)).
Pocas aves tienen en Japón tanta presencia cultural como el kiji. Es ave nacional, ave de varias prefecturas y ciudades, compañero de Momotaro, tema de poemas y refranes desde las primeras antologías, presa de la caza imperial y el ave comestible de más rango, aparece en un billete, en sellos y en el emblema de un cuerpo del ejército, y se le atribuye la facultad de presentir los terremotos (72 Microseasons; BirdTheme; Wikipedia (en); Wikipedia (ja, キジ)). Este capítulo recoge lo que las fuentes consultadas dicen sobre ello; buena parte procede de la Wikipedia japonesa y se ha resumido y traducido con una herramienta de lectura, por lo que se indica cuando conviene contrastarlo.
El ave nacional
El faisán verde fue declarado ave nacional de Japón en 1947 (BOW, 2022; Wikipedia (en)). Según la Wikipedia japonesa, la designación se hizo el 22 de marzo de 1947, en la reunión ordinaria de la Sociedad Ornitológica de Japón (日本鳥学会); como no es un organismo gubernamental, la designación es informal y no está establecida por ley (Wikipedia (ja, キジ)). Los motivos que se citan son la devoción maternal de la hembra con sus polluelos, el vuelo potente del macho, ser endémico de Japón y residente todo el año, vivir cerca del ser humano, tener un plumaje hermoso, ser buena ave de caza y aparecer en el Kojiki, en los textos de la era del Nihon Shoki y en el cuento de Momotaro (Wikipedia (ja, キジ)). La Wikipedia inglesa subraya uno de esos motivos: el modo en que la hembra camina junto a sus polluelos se interpreta tradicionalmente como un símbolo de armonía familiar (Wikipedia (en)).
Símbolo
Qué es
Fuente
Ave nacional
Designado el 22 de marzo de 1947 por la Sociedad Ornitológica de Japón (designación informal)
Siete sellos de Japón con Phasianus versicolor según BirdTheme: cinco de 1950 (serie de correo aéreo), uno de 2007 (serie «Aves de Chugoku») y uno de 2017 (hoja de 10 sellos de pinturas japonesas); un catálogo de Stampworld lista cinco sellos de 1950–1959 con valores de 16 a 144 yenes
BirdTheme; búsqueda en el catálogo Stampworld (BirdTheme)
No se ha hallado ningún sello de 1947 con el faisán en las fuentes consultadas (BirdTheme).
Literatura, mitología y refranes
La Wikipedia japonesa cuenta que una canción del primer volumen del Kojiki menciona al faisán (雉) y que el Man’yōshū contiene seis poemas sobre él (Wikipedia (ja, キジ)). Un verso de Bashō de 1688, 父母の しきりに恋し 雉子の声, une la voz del faisán con el recuerdo de los padres (Wikipedia (ja, キジ)). En un cuento muy conocido, el de Momotaro, el faisán es uno de los tres animales compañeros del héroe, junto con el mono y el perro, y hace de vigía avanzado en la isla de los demonios (oni), lo que probablemente explica su lugar en el emblema de la Jefatura de Inteligencia de Defensa (72 Microseasons; Wikipedia (ja, キジ)).
Los significados se dan resumidos y traducidos a partir de la Wikipedia japonesa; conviene contrastarlos con un hablante (Wikipedia (ja, キジ)).
Según la Wikipedia japonesa, el Shijō-ryū Hōchōsho, un tratado de la escuela de cocina Shijō, dice que hablar de aves es hablar de faisán (Wikipedia (ja, キジ)). El Okagami cuenta que Fujiwara no Kanemichi tomaba carne cruda de faisán como aperitivo nocturno con su copa, y el Tsurezuregusa lo nombra como el ave comestible de mayor prestigio (72 Microseasons; Wikipedia (ja, キジ)). El nombre de la era Hakuchi (白雉) procede de un faisán blanco puro que se regaló al emperador Kotoku (72 Microseasons).
El primer grito del año: kiji hajimete naku
En el calendario tradicional de las 72 microestaciones, la 69.ª, kiji hajimete naku («los faisanes empiezan a llamar»), cae del 16 al 19 de enero; designa al faisán verde, y el carácter 雊 es el del grito del faisán (72 Microseasons). Los machos emiten una llamada aguda y resonante antes de la cría y las hembras responden; la literatura lo ha usado como metáfora del amor romántico y familiar, y es un regalo habitual en las bodas y las celebraciones de uniones armoniosas (72 Microseasons).
Los terremotos y otras creencias
Es creencia extendida que el faisán anuncia los terremotos con su grito. La Wikipedia japonesa recuerda que el Chiribukuro (finales del siglo XIII) y el Hoki Fudoki dicen que faisanes y gallos gritan durante los terremotos; y 72 Microseasons añade que reacciona varios segundos antes que los sistemas de alerta (72 Microseasons; Wikipedia (ja, キジ)). Beebe recogió la misma costumbre a principios del siglo XX, y la Wikipedia inglesa cita un estudio de 1971 según el cual muchos japoneses creen que los faisanes se asustan con los terremotos y gritan (Beebe, 1922 (vol. III); Wikipedia (en)). Las fuentes de que se dispone son creencias y relatos, no comprobaciones científicas (Beebe, 1922 (vol. III); Wikipedia (ja, キジ)).
Hay otras creencias populares: ver un faisán en sueños es de buena suerte en Wakayama y en Hiroshima, y de mala suerte en Aomori; en Yamagata se usaba el faisán ennegrecido para el mal genio, y en Aichi las plumas quemadas para el dolor de oído; comer faisán con una herida impediría que cicatrizase, y comer huevos de faisán haría ineficaz la medicina (Fukuoka) (Wikipedia (ja, キジ)).
El faisán en la cocina
La carne de faisán se ha comido en Japón desde antiguo y se consideraba el ave comestible de mayor rango (Wikipedia (ja, キジ)). Entre los platos que cita la Wikipedia japonesa figuran el kiji-nabe (cazuela de faisán), el sukiyaki, el kamameshi, los fideos soba con faisán y el arroz con faisán; el kijiyaki toma el nombre del sabor del faisán, aunque puede prepararse con pescado o pollo, y una teoría atribuye el nombre de los fideos kishimen a kijimen, fideos con carne de faisán (Wikipedia (ja, キジ)). BOW señala que tiene una larga historia como ave de caza y fuente de alimento desde la antigüedad en Japón (BOW, 2022).
Caza, palacio y arte
El faisán verde es una de las aves de caza del país; la caza está regulada por la Ley de Protección de Aves y Mamíferos y se sueltan aves antes de las temporadas de caza y en ocasiones como la Semana de las Aves (Wikipedia (ja, キジ)). En tiempos de Beebe, los cotos imperiales eran los lugares donde mejor se observaba a las aves, y solo el Emperador podía mantener cotos (Beebe, 1922 (vol. III)). El 25 de octubre de 2008, el Emperador y la Emperatriz soltaron faisanes y faisanes cobrizos en la villa imperial de Nasu (Wikipedia (ja, キジ)). En el arte, Beebe reprodujo una lámina de un faisán japonés de Hokusai (1760–1849), a quien Beebe llama el mayor de los pintores japoneses, que vivió con sencillez, trabajó con diligencia y pintó puentes, cascadas, el monte Fuji, retratos y objetos de la historia natural (Beebe, 1922 (vol. III)). Los artistas occidentales los conocieron por los dibujos de Heine, de la expedición de Perry, y por las láminas de Temminck, Gould y Elliot (Beebe, 1922 (vol. III); Elliot, 1872; Gould (Univ. de Kansas)).
Curiosidades
Dos curiosidades que recogen las fuentes: una, que la «cresta» del macho no existe, pues lo que parecen orejas o cuernos son plumas verdosas alargadas a los lados del occipucio (BOW, 2022); otra, que el faisán puede mantener el vuelo más tiempo que muchos otros y se sabe de aves que han cruzado una milla y media de mar abierto (Beebe, 1922 (vol. III); Green-Armytage, 2002). Y una escena que Beebe guardó como recuerdo final del faisán en su tierra: un macho recortado sobre la bahía de Kagoshima, con el Sakurajima al fondo, y una flecha perdida de unos samuráis ancianos que lo hizo esconderse (Beebe, 1922 (vol. III)).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
72 Microseasons. Japan’s 72 microseasons, 69 («Kiji hajimete naku»). 72microseasons.substack.com (consultada el 30 de octubre de 2026).
Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1922). A Monograph of the Pheasants, vol. III. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
BirdLife International (2025). Phasianus versicolor. The IUCN Red List of Threatened Species 2025: e.T22732650A280936637. doi:10.2305/IUCN.UK.2025-2.RLTS.T22732650A280936637.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
BirdLife International (2025). Species factsheet: Green Pheasant Phasianus versicolor. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2025). datazone.birdlife.org. Descargada el 30 de octubre de 2026.
BirdTheme. Bird stamps of Japan (sellos de Japón con Phasianus versicolor). birdtheme.org (consultada el 30 de octubre de 2026).
Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
Colección Gould, Biblioteca de la Universidad de Kansas. Texto OCR de la lámina de Phasianus versicolor (Birds of Asia, vol. VII, 1857, lám. 40, según Beebe). digital.lib.ku.edu (leído el 30 de octubre de 2026 mediante una herramienta de lectura que resume el texto; el extracto no nombra al autor).
Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan).
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, 2 vols. Nueva York: edición del autor (ejemplar digitalizado de la Biblioteca Estatal y Universitaria de Gotinga; láminas de dominio público).
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas).
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Lepage, D. Avibase: Phasianus versicolor tohkaidi (Green Pheasant (tohkaidi)), identificador Avibase 50A7B27683E1C9A7. Avibase, la base de datos de aves del mundo (Bird Studies Canada y Birds Canada). avibase.bsc-eoc.org. Consultada el 16 de noviembre de 2026.
Limparungpatthanakij, W. L. y Pyle, P. (2022). Green Pheasant (Phasianus versicolor), versión 1.0 (publicada el 25 de octubre de 2022). En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe2 · doi:10.2173/bow.rinphe2.01 (leída el 30 de octubre de 2026, en la versión en español).
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
Pfarr, J. True Pheasants: A Noble Quarry. Tabla de clasificación (columnas «Species», «Credited» y «Year») aportada como fotografía de una página del libro; el año de edición y la editorial están pendientes de confirmar.
Robertson, P. A. (1997). Pheasants. Voyageur Press (cabecera de página de la obra: «A Natural History of the Pheasant»).
Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
Wikipedia (en inglés). Green pheasant. en.wikipedia.org/wiki/Green_pheasant (consultada el 30 de octubre de 2026 mediante una herramienta de lectura que resume la página; las cifras se han contrastado con otras fuentes).
Wikipedia (en japonés). キジ (Phasianus versicolor). ja.wikipedia.org/wiki/キジ (consultada el 30 de octubre de 2026 mediante una herramienta de lectura que resume la página; traducción y resumen propios).
Wikipedia (en japonés). コウライキジ (faisán común en Japón). ja.wikipedia.org/wiki/コウライキジ (consultada el 3 de noviembre de 2026 mediante una herramienta de lectura que resume la página; solo se usan las fechas de introducción y la mención de la fertilidad de los híbridos).
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán verde — Phasianus versicolor spp. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/verde.php.