Phasianus colchicus spp (Linneo, 1758)LC — Preocupación menor
Algunos autores lo consideran una superespecie. El nombre Phasianus procede del latín Phasis, el río del antiguo país de Colchis (Cólquida), en Asia Menor, la actual Georgia, y ha servido de base para sus nombres más importantes. Es, sin duda, el rey de todos los faisanes y el más conocido en todo el mundo.
🇪🇸 Faisán común o vulgar🇬🇧 Ring-necked pheasant🇫🇷 Faisan de colchide🇩🇪 Fasan🇮🇹 Fagiano comune🇵🇹 Faisão comum
El faisán común, también llamado faisán vulgar (Phasianus colchicus), es un ave de la familia Phasianidae y del género Phasianus, originaria de Asia y catalogada por la UICN como de preocupación menor. Su gran diversidad se manifiesta en numerosas subespecies, que se tratan en la página correspondiente.
Esta especie es muy diversa, por lo que es preciso consultar las diferentes subespecies para conocer los rasgos propios de cada forma.
Es el faisán más extendido, el más estudiado y el más criado del mundo. Su área nativa, extensa pero fragmentada, va de los Balcanes sudorientales y la costa turca del mar Negro, por el Cáucaso y el sur del mar Caspio, hasta la vertiente norte del Himalaya, y desde allí, por el Asia central, a China, Corea, Taiwán y las fronteras del norte de Vietnam (BOW, 2022; Delacour, 1977; Johnsgard, 1986). Fuera de ella lo han llevado los cazadores: las introducciones se han intentado en casi 50 países de seis continentes, las primeras en Europa hace unos 1.500 años, y hoy vive de forma estable o semiestable en gran parte de Europa, en Norteamérica, en Nueva Zelanda, en Hawái, en Chile y en varias islas (BirdLife, 2025; BOW, 2022). BirdLife estima que la población nativa debe de estar entre 50 y 100 millones de aves y la no nativa entre 25 y 50 millones (BirdLife, 2025).
El macho es inconfundible en casi toda su área: cabeza verde azulada con dos pequeños penachos laterales, piel facial roja desnuda, cuerpo cobrizo, anaranjado o amarillo dorado según la subespecie, a veces con un collar blanco, y una cola larga, estrecha y barrada. La hembra, mucho más discreta, es parda y moteada. En esta ficha se resume todo lo que se sabe de la especie en conjunto; las diferencias entre las 30 subespecies reconocidas, agrupadas en cinco grupos tradicionales, se tratan una por una en el capítulo de subespecies (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Es sedentario, polígino y terrestre. Duerme en el suelo o en arbustos y árboles según las circunstancias, se alimenta sobre todo de semillas, grano, brotes, frutos e invertebrados, y su canto, un «ko-kok» áspero seguido de un vigoroso batir de alas, se oye a más de un kilómetro en las mañanas de primavera (Beebe, 1922 (vol. III); BOW, 2022; Johnsgard, 1986). La hembra elige el lugar del nido, incuba sola unos 23 días y cría sola; las nidadas suelen ser de 7 a 15 huevos, y los pollos, nidífugos, pesan unos 18,5 g al nacer (BOW, 2022; Johnsgard, 1986). Es, además, una de las aves más prolíficas en cautividad, de modo que es la base de la industria cinegética de Europa y Norteamérica (del Campo, 2006; Delacour, 1977; Fuller y Garson, 2000).
La UICN la clasifica como de Preocupación Menor (evaluación de 2025; antes, en 2016 y 2014; en las evaluaciones anteriores a 2012 no figuraba porque se trataba junto con el faisán verde) (BirdLife, 2025). Es el único faisán sobre cuya población nativa, sin embargo, se dispone de pocos datos: algunas subespecies, como la de Talisch (talischensis), tienen poblaciones silvestres críticamente pequeñas, y muchas de las subespecies asiáticas están amenazadas de desaparecer por hibridación con aves introducidas (BirdLife, 2025; BOW, 2022).
ES faisán común, faisán vulgar, faisán de collar · EN common pheasant, ring-necked pheasant · FR faisan de Colchide · DE Edelfasan, Jagdfasan · IT fagiano comune (del Campo, 2006; Hernández García, 2014; Johnsgard, 1986)
Zonas agrícolas con cobertura densa y agua, bordes de río con carrizales, matorrales y bosques abiertos, desde el nivel del mar hasta más de 3.000 m (BOW, 2022; Johnsgard, 1986)
Distribución
Nativa: del sureste de Europa y el Cáucaso a Asia central, China, Corea y Taiwán. Introducida en Europa, Norteamérica, Nueva Zelanda, Hawái, Chile y otras islas (BirdLife, 2025; BOW, 2022)
Puesta
7–15 huevos en libertad (hasta 23 y más); 40–80 por temporada en cautividad si se retiran los huevos; incubación de 23 días como media (22–28 según las fuentes) (BOW, 2022; del Campo, 2006; Hernández García, 2014)
Categoría «no recomendado» en el capítulo de conservación del segundo volumen del libro del autor: no precisa programa de conservación en cautividad (Hernández García, 2014)
02
Sistemática y nomenclatura
Una especie con 62 nombres, 30 subespecies, un río griego en el nombre y un debate abierto sobre si es una o varias.
El faisán común es la especie tipo del género Phasianus, descrita por Linneo en 1758 y reconocida desde entonces con 30 subespecies, aunque su clasificación ha oscilado entre una sola superespecie, dos especies (con o sin el faisán verde) y más de treinta formas con rango propio (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Los faisanes verdaderos pertenecen al género Phasianus, que, tal como se clasifica hoy, consta de dos especies, el faisán común y el faisán verde de Japón (BOW, 2022; Madge y McGowan, 2002). Delacour dio como pariente más cercano del grupo los faisanes de cola larga (Syrmaticus) y uno más lejano, los faisanes de gorguera (Chrysolophus); Johnsgard repite el parentesco con Syrmaticus, sobre todo con el faisán venerado y con el cobrizo, y observa que algunos autores, como Yamashina, han considerado al faisán cobrizo congenérico del común, aunque él prefiere mantener los dos géneros porque la fertilidad de los híbridos entre Phasianus y Syrmaticus es reducida (Delacour, 1977; Johnsgard, 1986). Según BOW, una filogenia molecular reciente sitúa a Phasianus como más cercano a un clado que reúne a Catreus, Crossoptilon y Lophura(BOW, 2022).
Posición taxonómica
Rango
Taxón
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Subfamilia
Phasianinae
Género
Phasianus Linnaeus, 1758 (especie tipo, por tautonimia: P. colchicus)
30 reconocidas por BOW (lista de Clements), Madge y McGowan y la mayoría de los tratamientos actuales; véase el capítulo de subespecies
Delacour (1977) fija el género con P. colchicus como especie tipo por tautonimia; BOW coloca Phasianus en la subfamilia Phasianinae (BOW, 2022; Delacour, 1977).
Una especie, una superespecie o dos especies
El rango del faisán común ha cambiado según las épocas y los autores. Beebe (1922) reunió todas las formas continentales como subespecies de P. colchicus, incluso la de Formosa por su variabilidad, y dejó aparte solo a P. versicolor, el faisán de Japón, a su juicio buena especie por la radical diferencia de patrón y color y por su notable falta de variación individual (Beebe, 1922 (vol. III)). Delacour mantuvo durante mucho tiempo dos especies, colchicus (grupos occidentales, de rabadilla rojiza) y torquatus (grupo oriental, de rabadilla gris), y aceptó por fin una sola con evidente desgana, siguiendo a Hartert y a otros, porque la subespecie del Tarim (tarimensis) es un puente evidente entre ambos (Delacour, 1977). Johnsgard (1986) sigue a Delacour y a Vaurie y recuerda que la edición de 1983 de la lista de aves de Norteamérica de la Unión de Ornitólogos Americanos trataba al verde como subespecie del común, mientras que Vaurie (1965) lo había considerado especie plena; los dos serían, a su juicio, poco más que «alospecies» (Johnsgard, 1986). Robertson, que ha trabajado sobre todo el faisán de Europa y de China, es escéptico con la lista: duda de que haya más de cinco o seis subespecies reales y atribuye parte del exceso al afán de los expedicionarios por nombrar formas nuevas en honor de sus patrocinadores (Robertson, 1997).
Opina que probablemente solo hay cinco o seis subespecies reales (Robertson, 1997)
Sibley y Monroe (1990, 1993)
P. versicolor incluido en P. colchicus
Según BirdLife, esta fusión es la causa de que el común no figure en las evaluaciones anteriores a 2012 (BirdLife, 2025)
BOW (2022)
Dos especies, con datos genéticos que apoyan la separación (divergencia hace unos 1,19 millones de años); 30 subespecies en cinco grupos y ocho linajes
Señala que el común «oriental» podría ser una especie aparte (P. torquatus), pero que las similitudes de plumaje no coinciden con la filogenia (BOW, 2022)
Libro del autor (2014)
Dos especies; «35 subespecies» catalogadas hacia 1870
Algunos autores, como Beebe (1922), cuentan unas «treinta y cinco formas» descritas; las reconocidas hoy y las listas del libro y de la web suman 30 (Beebe, 1922 (vol. III); Hernández García, 2014)
Se recogen los tratamientos tal como los dan las fuentes; las tablas por autor de las 30 subespecies están en el capítulo de subespecies.
Origen del nombre
El género, Phasianus, es la forma latina de «faisán», del griego phasianos, «ave faisiana»; Jobling recuerda que los faisanes se encontraron primero, según la tradición, a orillas del río Fasis, en la Cólquida, adonde llegaron los argonautas (Jobling, 2010). El epíteto colchicus es latino y significa «de la Cólquida» (en griego, Kolkhis), el país de la costa oriental del mar Negro que hoy es Georgia y de donde se dice que se descubrieron los faisanes (Jobling, 2010). Jobling remonta el nombre a las obras de Aldrovandi (1599) y de Ray (1678) y a Albin (1738), que llamaron «Phasianus» al ave (Jobling, 2010). BOW añade que Colchis era un antiguo reino de la costa oriental del mar Negro, hoy parte de Georgia (BOW, 2022).
La ficha original y el libro del autor lo explican con las mismas palabras: Phasianus viene del latín Phasis, el río del antiguo país de Colchis, en Asia Menor, la actual Georgia, y ha servido de base para sus nombres más importantes (Hernández García, 2014). Robertson ofrece la leyenda que acompaña al nombre: se atribuye a Jasón y los argonautas, que habrían ido al valle del Fasis, en la Cólquida, en busca del vellocino de oro, y a su regreso a Grecia habrían llevado los primeros faisanes a Europa, hacia el 1300 a. C. (Robertson, 1997). El criadero Chintaguay repite la tradición en la forma de que los argonautas llevaron algunos ejemplares de la variedad llamada «colquidus» a la antigua Grecia (del Campo, 2006).
El epíteto de la forma de China, torquatus, es el latín «con collar» (de torques, «collar» o «gargantilla»), y la propia web ha llamado «faisán de collar» a la especie entera por este rasgo, aunque en muchas subespecies falta (del Campo, 2006; Jobling, 2010). Jobling anota también que Gmelin (1789), autor de torquatus, fue el profesor Johann Friedrich Gmelin (1748–1804), zoólogo y compilador alemán (Jobling, 2010). En el nombre «faisán de Mongolia», muy usado en la bibliografía de caza, mongolicus alude a Mongolia, que hasta principios del siglo XX incluía Manchuria occidental y parte del norte de China; sin embargo, esta subespecie no llega a vivir en la Mongolia actual (Delacour, 1977; Jobling, 2010; Johnsgard, 1986).
Término
Origen y significado
Fuente
Phasianus
Latín phasianus, «faisán»; del griego phasianos; el ave «del río Fasis», en la Cólquida
Nombre estadounidense; Robertson recuerda que no tiene sentido fuera de Norteamérica porque muchas subespecies no llevan collar blanco, y por eso él usa «common pheasant»
Los significados proceden de Jobling (2010) salvo indicación.
Autor, año y localidad tipo
Linneo describió el faisán en la 10.ª edición del Systema Naturae (1758, p. 158), con una localidad tipo («África, Asia») que Delacour interpreta como el río Rion, el antiguo Fasis (BOW, 2022; Delacour, 1977). El nombre Phasianus colchicus se aplicó así desde el principio a las aves de la Cólquida, que son la subespecie nominal; por eso todos los autores recuerdan que «colchicus colchicus» solo indica la adopción del nombre prioritario de Linneo y no dice nada sobre la ascendencia o los caracteres «típicos» de la especie (Beebe, 1922 (vol. III)). Beebe va más lejos: la forma de hagenbecki, en el norte de Mongolia, «puede representar el centro original de evolución del género», y elegans, en Birmania, quizá la coloración ancestral; advierte que un nombre puede inducir un hábito de pensamiento falso, como el «ocaso» del sol, que nombra algo que no sucede (Beebe, 1922 (vol. III)). La genética moderna le ha dado en parte la razón: BOW sitúa el origen de la especie en el borde oriental de la meseta Qinghai-Tibet y hace de elegans el taxón hermano de todos los demás (BOW, 2022).
Nombres vernáculos
Lengua o pueblo
Nombre
Fuente
Español
Faisán común, faisán vulgar, faisán de collar; «collarejo» y «faisán mongol» en Chile
Common pheasant, ring-necked pheasant, black-necked pheasant (las formas sin collar), Mongolian pheasant (la forma kirguís), true pheasant, game pheasant
En Europa se ha llamado durante mucho tiempo faisán común o simplemente faisán (BOW, 2022).
03
Historia
Del Fasis de los argonautas a los cotos de medio mundo: tres mil años de un ave que siguió al hombre.
La historia del faisán común es, en buena parte, la de sus traslados: griegos y romanos lo llevaron a Europa, los viajeros y comerciantes lo trajeron de China en los siglos siguientes, y desde 1842 hasta hoy se ha soltado en casi todos los continentes; su historia científica, en cambio, es mucho más reciente y se escribió sobre pieles y huevos traídos de Asia central y China (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Robertson, 1997).
Según la leyenda que recoge Robertson, Jasón y los argonautas llevaron los primeros faisanes de la Cólquida a Grecia a su regreso del vellocino de oro; el criadero Chintaguay la repite casi igual (del Campo, 2006; Robertson, 1997). Es una tradición: las fuentes no aportan restos que la confirmen.
Los griegos consideraban al faisán un ave de lujo; según el criadero Chintaguay, el rey Ptolomeo I Sóter de Egipto era un gran aficionado a su carne (del Campo, 2006).
Los romanos lo criaron en pajareras y dejaron recetas y mosaicos; Robertson señala que algunos mosaicos romanos muestran faisanes con ancho collar blanco, rasgo que no existe en las aves de Georgia (las de cuello negro), y propone que los romanos obtuvieron también aves de China por la Ruta de la Seda o que copiaron los dibujos de sedas chinas (Robertson, 1997). Chintaguay añade que la obra culinaria De re coquinaria, atribuida a Apicio, ofrece varias recetas para prepararlo y que los romanos lo cebaban con bolitas de harina de trigo en aceite de oliva (del Campo, 2006).
BOW fecha en el año 500 d. C. la primera introducción conocida en Europa (fuera del área nativa), con faisanes del sur del Cáucaso (colchicus); Ashrafzadeh y colaboradores, siguiendo a Boev, dan 500–800 d. C. (Ashrafzadeh et al., 2021; BOW, 2022). Delacour precisa que los faisanes de cuello negro los introdujeron muy pronto griegos y romanos y que estaban bien establecidos en Francia e Inglaterra antes del siglo X (Delacour, 1977).
Robertson sitúa a los normandos como probable vía de llegada de más aves a Gran Bretaña tras la invasión de 1066; el primer testimonio seguro, dice, es el misal de Sherborne, un manuscrito ilustrado con un faisán en el margen que se data hacia 1400. A finales del siglo XV criaba ya en libertad, y sus nidos se protegían por decreto real; en el siglo XVII hay registros en Escocia e Irlanda, y algo después en Gales (Robertson, 1997).
Según Delacour, el faisán de collar chino fue introducido en la isla de Santa Elena por un desertor portugués, Fernandez Lopez, en circunstancias peculiares; la población prosperó y persiste hoy (Delacour, 1977). BOW y BirdLife registran aún aves de Santa Elena (BirdLife, 2025; BOW, 2022).
Llegan a Europa el faisán de Mongolia (mongolicus) y el de collar chino (torquatus); el segundo se aclimata en Inglaterra, sobre todo en las tierras del duque de Northumberland (Ashrafzadeh et al., 2021; Delacour, 1977). Entre 1730 y 1733 se hace la primera suelta en Norteamérica, en Nueva York, que no prospera (BOW, 2022).
Primera suelta en Nueva Zelanda en 1842 y en las islas Hawái en 1866, a instancias del rey Kamehameha V (BOW, 2022).
Primera suelta con éxito en Norteamérica, en 1882, en el valle Willamette de Oregón (otras fuentes dicen 1881); en pocos años se suceden las sueltas en Washington (1883), Colorado (1885), Nueva Jersey (1887), Georgia (1888), California (1889), Utah (1890) y Pensilvania (1892–1895) (BOW, 2022; Wikipedia). Beebe cuenta que en noviembre y diciembre se enviaban a Europa entre 48.000 y 60.000 faisanes congelados solo desde Hankow (Beebe, 1922 (vol. III)).
En 1900 Hagenbeck lleva a Inglaterra, para lord Rothschild, el primer y único envío conocido de faisán de Mongolia vivo, que cría en Tring al año siguiente; en 1902 el coronel Sunderland importa varios faisanes Príncipe de Gales y los cría en Hampshire en 1903 (Delacour, 1977).
El faisán de Formosa (formosanus) llega a Europa y se multiplica con rapidez (Delacour, 1977).
En Chile, Carlos Haverbeck introduce en 1914 80 faisanes de caza alemanes (torquatus) en su fundo Allipén, en Cautín (del Campo, 2006). En 1930, BOW fecha la primera suelta del faisán coreano (karpowi) en Hokkaido (BOW, 2022).
Hachisuka reconoce en Cambridge y describe en 1927 el mutante melánico (tenebrosus), que lord Rothschild conocía en Norfolk desde hacia 1880; desde 1933 se ha estabilizado en Europa y América (Delacour, 1977).
La zoóloga E. V. Kozlowa estudia durante cuatro meses una población de la subespecie bianchii en el bajo Vadsh, en Tayikistán; sus observaciones, publicadas en Ibis (1947), son hasta hoy la referencia sobre el comportamiento de un faisán silvestre (Delacour, 1977; Johnsgard, 1986).
Cheng Tso-hsin publica sus datos de China (1963) y Vaurie su revisión de las subespecies (1965), en la que se apoya Johnsgard (Johnsgard, 1986).
La World Pheasant Association celebra su conferencia en Pekín y visita la reserva de Pangquangou, en Shanxi, donde Robertson ve por primera vez faisanes nativos y pone en marcha un estudio anglo-chino del faisán (Robertson, 1997).
El plan de acción de la UICN y la WPA (2000) clasifica la especie de preocupación menor; BOW (2022) revisa la especie; BirdLife la evalúa de nuevo en 2025 (BirdLife, 2025; BOW, 2022; Fuller y Garson, 2000). En 2021 un estudio genético de las poblaciones introducidas de Hungría y Serbia confirma que descienden de dos linajes, el del grupo colchicus y el del grupo mongolicus(Ashrafzadeh et al., 2021).
Del Fasis a la mesa romana
El faisán es uno de los pocos animales silvestres que acompañaron a los pueblos antiguos como ave de mesa y, probablemente, de pajarera. Robertson recuerda que los pueblos del Mediterráneo lo conocieron primero en su forma georgiana, la de cuello negro y sin collar, y que, aun así, algunos mosaicos romanos lo muestran con grandes anillos blancos, un misterio que no se ha resuelto: pudieron llegar aves del este por la Ruta de la Seda o copiarse bordados de seda chinos, en los que se representan a menudo faisanes (Robertson, 1997). En los pavimentos romano-británicos del siglo IV hay faisanes inconfundibles, pero Robertson cree que pudieron copiarse de modelos del continente y que en la Alta Edad Media el ave no era común en Gran Bretaña (Robertson, 1997).
El criadero Chintaguay añade algunos pasajes de la antigüedad que no aparecen en los libros ornitológicos: Ptolomeo I Sóter y la obra culinaria atribuida a Apicio, y una cronología según la cual hacia el año 500 se introdujo en Europa una variedad de faisán común «sin anillo» en el cuello, y a partir del siglo XI los romanos lo habrían difundido por Italia, Francia e Inglaterra (del Campo, 2006). Esa última cronología no concuerda con el resto de las fuentes, que sitúan la presencia romana del faisán y su establecimiento en Francia e Inglaterra antes del siglo X (del Campo, 2006; Delacour, 1977; Robertson, 1997).
Europa y las islas británicas
La presencia del faisán en el campo británico es antigua pero fue durante siglos limitada. Robertson cuenta que las referencias a «gallos del bosque» servidos en banquetes medievales pueden ser urogallos negros, que es imposible saberlo, y que la expansión de la especie por Europa llevó casi 2.000 años, con registros escasos, mientras que en Norteamérica se completó en poco más de un siglo (Robertson, 1997). En los siglos XVIII y XIX, a las aves de cuello negro de la primera introducción se sumaron los faisanes de Mongolia y los de collar chino y, más tarde, los de Formosa y los del melanismo, hasta formar la mezcla actual de las aves de coto (Ashrafzadeh et al., 2021; Delacour, 1977; Gerrits, 1974).
Los criadores y los cazadores han reforzado ese stock durante siglos: BOW da para el Reino Unido una población de 1,8–1,9 millones de hembras reproductoras en el año 2000 y unos 35 millones de aves liberadas cada año, de las que unos 15 millones son abatidas, de modo que la población que cría de verdad en libertad es pequeña en comparación con el total liberado cada otoño (BOW, 2022). BirdLife, con datos de 2021, estima más de 40 millones de faisanes liberados cada año en el Reino Unido y 2,3 millones de hembras reproductoras (BirdLife, 2025). El plan de acción de los faisanes cifra en 22 millones las aves cobradas cada año en Europa y en 9,5 millones las de Norteamérica, con una industria cinegética de importancia económica para los propietarios y el empleo local (Fuller y Garson, 2000).
Norteamérica
Robertson contrasta la lentitud europea con la rapidez americana: desde un pequeño comienzo en el valle Willamette, en Oregón, en la década de 1880, la especie vive hoy en más de 35 estados de EE. UU., nueve provincias canadienses y una pequeña parte de México (Robertson, 1997). Las fuentes no coinciden en las fechas de las primeras sueltas.
Fuente
Primera introducción
Primera con éxito
Observaciones
BOW (2022)
Nueva York, 1730–1733 (sin éxito)
Valle Willamette (Oregón), 1882
Otras sueltas tempranas: Nueva York 1877 y 1886–1891, Washington 1883, Colorado 1885, Nueva Jersey 1887, Georgia 1888, California 1889, Montana hacia 1895, Illinois en la década de 1890, Massachusetts 1897–1898, Pensilvania 1892–1895, Utah 1890, Medio Oeste hacia 1900 (BOW, 2022)
Wikipedia (según la ficha de la web y los redactores)
Desde 1773
Valle Willamette (Oregón), 1881
Sin más detalle en el resumen disponible (Wikipedia)
Robertson (1997)
—
Valle Willamette (Oregón), década de 1880
Más de 35 estados, nueve provincias canadienses y una parte de México (Robertson, 1997)
Criadero Chintaguay
Finales del siglo XVII, una «raza» de China con anillo blanco
—
Posteriores introducciones de la misma en Europa habrían creado una población mixta (del Campo, 2006)
Green-Armytage (2002)
—
—
En el oeste de EE. UU. las aves venían directamente de China; en los estados del este, a menudo de Europa (Green-Armytage, 2002)
Delacour (1977)
—
—
El faisán de collar chino se hizo común en América en el siglo XIX, sobre todo en Oregón, y sigue siendo la forma predominante en Estados Unidos (Delacour, 1977)
Cuando las fuentes difieren se muestran todas. La fecha de 1882 de BOW es la que se usa en el resto de esta ficha.
Nueva Zelanda, Hawái, Australia, Chile y Japón
Nueva Zelanda recibió las primeras sueltas entre 1842 y 1877, y hoy la población se estima en unas 250.000 aves, con unos 50.000 machos abatidos cada año (BirdLife, 2025; BOW, 2022). En Hawái, tras la suelta de 1866 de Kamehameha V, siguieron muchas más, en su mayoría de mongolicus y torquatus y algunas de colchicus; Johnsgard cifra la población hawaiana de 1946–1947 en unas 70.000 aves y señala que se caza mucho (BOW, 2022; Johnsgard, 1986). En Australia, la especie se estableció en la isla King (Tasmania) y en la isla Rottnest; también persiste en Santa Elena (BOW, 2022). En Chile, según el criadero Chintaguay, el primer importador fue C. J. Lambert, que entre 1886 y 1887 trajo de Inglaterra P. c. colchicus a su hacienda La Compañía, al norte de La Serena, donde la especie aumentó al principio pero acabó por desaparecer, probablemente por la caza indiscriminada (del Campo, 2006); en 1914 Carlos Haverbeck llevó 80 aves de Alemania a Allipén (Cautín) y regaló parejas a Augusto Grob, que las soltó en la isla Pichi Colcuma, en el lago Ranco, en Valdivia (del Campo, 2006). BOW, por su parte, dice que las introducciones cerca de la costa (provincia de Elqui) y cerca de La Unión (Valdivia) fracasaron aparentemente y que una introducción en la década de 1990 en la provincia de Coyhaique, en la región de Aysén, ha tenido éxito y se ha extendido al sur (BOW, 2022); el criadero Chintaguay apunta igualmente que en algunas zonas de la región de Aysén se habrían desarrollado faisanes comunes en estado natural tras una introducción con fines productivos (del Campo, 2006). En Japón, finalmente, el faisán común no ha prosperado donde vive el verde: las repetidas introducciones en Honshu fracasaron, y solo vive de forma estable el coreano (karpowi) en Hokkaido, introducido en 1930 (BOW, 2022; Johnsgard, 1986).
La historia científica
La nomenclatura científica del faisán refleja su historia de exploración. Linneo describió P. colchicus en 1758 sobre aves de la Cólquida; Brandt (1844) nombró mongolicus y Gmelin (1789) torquatus sobre aves chinas (BOW, 2022; Delacour, 1977). La mayor parte de las subespecies se describió entre 1870 y 1927: Elliot nombró shawii, formosanus y elegans en 1870, la primera y la última a partir de aves traídas por Shaw y por Stone; Swinhoe describió decollatus en 1870; Severtzov, persicus y chrysomelas en 1875; Przhevalski, vlangalii y strauchi en 1876; Lorenz, septentrionalis y talischensis en 1888; Rothschild, hagenbecki y pallasi en 1901 y 1903; y Buturlin, un grupo de ellas en 1904 y 1908 (BOW, 2022; Delacour, 1977; Elliot, 1872). Elliot (1872) pensaba que shawii, que Shaw había confundido en Yarkand con el faisán común, se parecía a la forma de la que derivaban todas las demás y que, mediante elegans y decollatus, se llegaba a versicolor y a torquatus, y mediante insignis a mongolicus y a colchicus(Elliot, 1872). En 1917 Hartert, con series largas de museo, y en 1922 Beebe, con su experiencia de caza en el Yangtsé, redujeron a subespecies la mayoría de las «especies» anteriores (Beebe, 1922 (vol. III); Delacour, 1977). Delacour describió takatsukasae en 1927; Vaurie (1965) y el propio Delacour (1977) establecieron los cinco grupos que se siguen aún (Delacour, 1977; Johnsgard, 1986).
Un siglo de estudios y de gestión
Pocos animales silvestres se han estudiado tanto. Robertson cuenta más de 600 trabajos científicos en su colección personal y más de mil científicos que han trabajado alguna vez con el faisán, sin contar las revistas de caza; y BOW llega a más de 800 publicaciones sobre el comportamiento, la alimentación, la distribución, la ecología y la gestión de la población norteamericana solo (BOW, 2022; Robertson, 1997). En cambio, en Asia, donde vive la mayoría, los datos son escasos: Johnsgard escribía en 1986 que ni la población ni la caza de China se conocían (BOW, 2022; Johnsgard, 1986). Hay, sin embargo, algunos trabajos de campo clásicos en el área nativa, como los de Kozlowa en el alto Amu Daria (1943), Cheng en China (1963), Dementiev y Gladkov en la antigua URSS (1967), Bohl en Corea (1964) y, más recientemente, el de Wang Nan y colaboradores en Xiaoshennongjia (2004) (BirdLife, 2025; Johnsgard, 1986).
Daniel Giraud Elliot dedicó varias láminas a las formas del faisán común en su monografía de 1872, entre ellas las de las subespecies shawii y elegans, que él mismo había descrito en 1870 (Elliot, 1872 (vol. II)). Se reproducen aquí las de seis formas, tal como las vio Elliot (véase Daniel Giraud Elliot).
Un macho verde, cobrizo y de cola larga con la cara roja; una hembra del color del suelo seco; y treinta maneras de combinarlos.
El faisán común es un faisán de tamaño medio, de cuerpo profundo, cola larga, graduada y barrada, penachos auriculares eréctiles en el macho y un marcado dimorfismo sexual; en el macho dominan los reflejos metálicos de la cabeza y el cobre, el anaranjado o el amarillo del cuerpo, y en la hembra el pardo moteado del camuflaje (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Pese a la enorme variación cromática entre subespecies, todas comparten un marcado dimorfismo sexual: el macho es notablemente mayor (hasta 70-90 cm de longitud total y en torno a 1,4 kg) y luce cabeza con brillo verde-azulado iridiscente y piel facial roja desnuda, mientras que la hembra, más discreta, mide entre 50-65 cm y pesa alrededor de 1 kg, con un plumaje pardo moteado que le sirve de camuflaje durante la incubación. (Wikipedia)
Según Birds of the World, la variación geográfica del aspecto es extensa y se resume en 30 subespecies, agrupadas en cinco grupos según el plumaje del macho o en ocho linajes según los datos genéticos (con algunas discrepancias entre ambos esquemas). Todos los ejemplares tienen la cola atenuada y larga, con 16-18 rectrices: las hembras suelen tener 16 o 17 y los machos, más a menudo, 18. (BOW, 2022)
En el macho adulto, la piel desnuda alrededor del ojo es bermellón (más brillante en la exhibición), el pico es amarillo cuerno pálido o verde amarillento, el iris va del marrón amarillento al rojo pardo o al amarillo anaranjado y las patas son gris cuerno teñido de marrón; en la hembra la piel facial es rosa pálido, el pico cuerno pardo, el iris pardo amarillento o avellana pálido y las patas gris pardo. Los machos viejos, y alguna hembra, desarrollan espolones: en los machos son menores de 10 mm durante el primer año y superan los 10 mm en los mayores (más de 13 mm sugiere tres años o más). Las crías tienen el plumón de leonado pálido a beige amarillento, con listas pardo oscuro en la espalda y el costado. (BOW, 2022)
El macho
Lo que sigue describe el macho de la subespecie nominal (colchicus), que es la que describen con detalle Delacour, Johnsgard (a partir de Cramp y Simmons) y Madge y McGowan; las demás subespecies se alejan de este patrón en el collar, el color de la rabadilla, el de las cobertoras de las alas, el ancho de los bordes negros y la tonalidad general, y se describen una por una en el capítulo de subespecies (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Según el libro del autor, el macho tiene el cuerpo cobrizo, el cuello púrpura verdoso iridiscente con reflejos metálicos azul oscuro, plumas rojo violáceas, cobrizas y doradas con estrías violeta oscuro al comienzo del cuello, en el pecho y en el vientre, alas de color tabaco rojizo, dorso castaño, dos penachos de plumas ovaladas en lo alto de la cabeza, a menudo un collar blanco y una mancha de piel roja alrededor de los ojos; las plumas de la cola, de fondo verde oliva, llevan estrías transversales y las dos centrales están muy desarrolladas (Hernández García, 2014).
Delacour da una descripción más precisa del macho nominal. La corona es de verde metálico oscuro; la garganta, azul verdosa; el cuello, azul metálico, verdoso por detrás y púrpura violáceo por delante y a los lados. El manto es rojo cobrizo con brillo purpúreo, y cada pluma tiene la base negruzca, una mancha terminal en cuña negro purpúreo y estrechos bordes negros; las plumas de la parte alta de la espalda y los escapularios son mayores y más redondas, con una ancha barra anteada en U sobre la base negra. La parte baja del dorso, la rabadilla y las cobertoras supracaudales son rojo purpúreo más o menos brillantes de verde; las rectrices, pardo claro con estrechas barras negras irregulares en el centro y anchos flecos desintegrados rojo purpúreo; las cobertoras de las alas, pardo canela, las mayores con bordes cobrizos; el pecho y los flancos, rojo cobrizo purpúreo con las plumas de base y centro negros y la punta cuadrada con un borde negro purpúreo; el abdomen, negro apagado rodeado de púrpura; y los muslos y las infracaudales, pardos con negro (Delacour, 1977). Johnsgard, siguiendo a Cramp y Simmons, describe en el mismo macho los lados de la cabeza y el cuello con brillo purpúreo, el manto con las puntas de las plumas bordeadas de negro y un punto negro ancho en el extremo central, la rabadilla densa, de flecos pilosos cobre-rojos con brillo verde o violeta, el pecho, el cuerpo y los flancos de un cobre anaranjado profundo con fuerte brillo púrpura rosado y las puntas de las plumas con un margen azul purpúreo, el vientre y la cloaca negros con brillo azul verdoso y las infracaudales rufo castaño (Johnsgard, 1986).
BOW resume los rasgos de campo del macho adulto de cualquier subespecie: corona olivácea, a menudo bordeada por cejas blancas, y plumas a los lados del occipucio, justo sobre la región auricular, que se alargan en penachos en forma de cuernos u orejas, pero sin cresta verdadera; cabeza y cuello violáceos iridiscentes; región orbital roja; collar blanco, interrumpido o ausente en algunas subespecies; pecho granate, tendiente al naranja en los flancos; manto amarillo dorado; rabadilla gris con un tinte oliváceo o azul y brillo verde; cola pálida con anchas barras negras; coberteras alares gris pálido; grandes marcas subterminales redondas pálidas en los escapularios; plumas del pecho estrechas, con una hendidura profunda y un ribete oscuro estrecho; flancos amarillentos que contrastan con un pecho y un vientre oscuros; y un espolón cónico algo por debajo de la mitad del tarso (BOW, 2022). Madge y McGowan añaden que la cola tiene 18 plumas, graduada, con el par central más largo y afinado y los lados desintegrados hacia la base, y que las plumas de la rabadilla del macho son sueltas y desintegradas (Madge y McGowan, 2002).
La hembra
La hembra adulta es de color pardo moteado, con un lavado castaño en el cuello; el patrón sombreado de las plumas es el del macho, pero se extiende a la corona y a la rabadilla; la cola es puntiaguda y barrada, de 24–27 cm, casi tan larga como el ala o mucho más, con el par central de rectrices no llamativamente más largo que el siguiente (BOW, 2022). En el libro del autor, la hembra presenta «unos tonos ocres, moteados de negro, siendo la cola mucho más corta» (Hernández García, 2014). Delacour describe a la hembra nominal con la corona barrada de negro y pardo, la garganta pardo claro, las plumas del cuello negruzcas con borde castaño y punta gris ante con brillo rosa purpúreo, las partes superiores moteadas (plumas con el centro pardo negruzco y bordes castaños y gris ante), la cola parda vermiculada de negro con barras y manchas castañas, ante y negras en el centro, y el pecho y el vientre pardo claro finamente vermiculados de negro (Delacour, 1977). Johnsgard, con Cramp y Simmons, añade la frente y la corona negras con anchas barras y bordes ante, un ancho trazo sobre el ojo, la nuca y los lados de la barbilla y la garganta rosa ante con tenues puntos oscuros, las plumas del manto castañas con marcas subterminales negras en U y anchos flecos rosa nacarado, los flancos con marcas negras en V y flecos pálidos, y el pecho, el vientre y la cloaca ante pálido débilmente moteados de pardo (Johnsgard, 1986). Madge y McGowan lo resumen así: el plumaje de la hembra es uniforme, arenoso apagado, indistintamente moteado de pardo oscuro en el cuello y a los lados del pecho, con la garganta, los lados de la cabeza, el centro del pecho y el vientre casi sin marcas, los flancos con fuertes marcas en V pardo negruzcas y la corona intensamente moteada de negro (Madge y McGowan, 2002). La hembra carece de espolón, aunque BOW recuerda que las hembras mayores desarrollan a veces espolones pequeños, de menos de 5 mm (BOW, 2022; Madge y McGowan, 2002).
Delacour subraya que en todas las subespecies las hembras, los jóvenes y los polluelos se parecen mucho entre sí; las hembras varían, con todo, en el grado de saturación del color y de marcas, y tienden a ser más oscuras y más marcadas en las subespecies del este (grupo torquatus) (Delacour, 1977; Johnsgard, 1986). Johnsgard concluye que la identificación de una hembra a nivel de subespecie en el campo es prácticamente imposible, y el criadero Chintaguay hace una distinción de uso práctico en cautividad: las hembras de las aves sin collar de tipo «caucásico» son notablemente más claras («color del té con leche») que las de collar, y las de los melánicos, más oscuras (del Campo, 2006; Johnsgard, 1986).
Plumajes por edad
Edad
Descripción
Fuente
Polluelo
Plumón de leonado pálido a beige amarillento, con rayas pardo oscuro en la espalda y el costado; frente y lados de la corona beige canela, manchas negras en la oreja y en las alas; aspecto general de pollito de gallina doméstica. Delacour describe líneas negruzcas sobre el ojo y tras la oreja (continuas en el macho, rotas en la hembra, como regla), el centro de la corona pardo oscuro y una raya negruzca en la nuca. La ficha original los llama «grises, con rayas negras»
Parecido a la hembra definitiva pero de aspecto bronceado, con motas y barras parduscas arriba y las partes inferiores principalmente ante pálido; rectrices cortas, débiles y oscuras con barras ante a canela; los sexos se distinguen por la piel orbital, rosada en la hembra y roja en el macho, y por un diminuto pliegue papiloso (hasta 1,5 mm) en la mejilla del macho
Empieza hacia los 10 días y se completa a las 4–5 semanas; primeras plumas del manto, los escapularios y los flancos a las 7 semanas; en el macho joven, plumaje parcial de adulto a las 7–8 semanas (6–8 semanas según Madge)
A los 40 días aparecen plumas aisladas en el pecho, los costados, la nuca y los escapularios, con anchos márgenes castaño óxido y astil negro; a los 52 días predominan aún las plumas juveniles
El plumaje intermedio está completo, con predominio de plumas rojizas en el pecho y pequeños parches de plumas adultas verde brillante; en las semanas siguientes se sustituye por el plumaje adulto
Casi indistinguible de la hembra definitiva; en ocasiones conserva las dos primarias externas juveniles (más amarillentas y desgastadas); carece de espolones
Los plumajes intermedios descritos por Kozlowa en el bajo Vadsh (P. c. bianchii) valen, según Delacour, para todos los faisanes verdaderos, tanto en las subespecies nativas como en las aves de sangre mezclada introducidas en Europa y América (Delacour, 1977).
Partes blandas: piel facial, pico, iris y patas
Parte
Macho adulto
Hembra adulta
Fuente
Piel facial
Roja o bermellón (más brillante en la exhibición), con barbillas y carúncula de textura lisa con plumitas negras dispersas; una media luna azul metálico bajo el ojo
Anillo rosa pálido desnudo alrededor del ojo; en las crías de macho, rosada hasta el plumaje formativo
Pico rosa cuerno, con el culmen negro hacia la base; iris pardo oscuro, que cambia a canela pálido desde las seis semanas; patas rosa pálido, luego marrón pálido y gris durante el primer año
En la exhibición la carúncula facial se congestiona y se hincha y los penachos auriculares se erigen, lo que aumenta aún más la impresión de tamaño (BOW, 2022; Johnsgard, 1986).
La cola, las alas y otros detalles estructurales
La cola del faisán común es larga (en el macho de 41 a 51 cm, casi el doble que el ala), plana o ligeramente comprimida, muy graduada, con 18 rectrices que se afinan hasta puntas acuminadas o subacuminadas y siempre con marcas transversales (BOW, 2022). Johnsgard describe una cola muy alargada, muy graduada y fuertemente barrada, con rectrices de bordes flecados que solo se abren ligeramente en la exhibición; una muda de la cola de tipo centrípeto («faisaniano»); alas redondeadas; y un tarso más largo que el dedo medio con la uña, con espolón en el macho (Johnsgard, 1986). Delacour precisa que la primera primaria es casi igual a la octava y mucho más larga que la décima, y que las supracaudales son cortas (Delacour, 1977). BOW añade que la primaria más larga está entre la sexta y la octava, que la décima es un 30–40 % más corta que la más larga, que hay 13–14 secundarias (con tres terciarias) y que las rectrices son 16–18, con 16 o 17 en las hembras y 18 más a menudo en los machos (BOW, 2022).
Muda
BOW describe una estrategia básica compleja, con mudas prebásicas completas y una muda preformativa incompleta, y sin mudas prealternas (BOW, 2022). La muda prejuvenil se produce de junio a agosto en las poblaciones del hemisferio norte; la preformativa, de junio a octubre, empieza con las primarias internas y las terciarias a las 3–4 semanas, completa la sustitución de primarias y secundarias a las 16 semanas y hace crecer del todo las plumas nuevas a las 21 semanas; la cola juvenil se pierde a las 7–9 semanas (BOW, 2022). La muda definitiva del adulto es completa, de junio a octubre: empieza hacia junio con las primarias más internas y con plumas dispersas de la cabeza y el cuello, es abundante en julio y a principios de agosto, dura unos tres meses y termina con las primarias externas y las plumas centrales de la cola, en septiembre o principios de octubre; la hembra empieza más tarde que el macho, tras la eclosión de las crías (BOW, 2022). Kozlowa (en Delacour) añade, para los jóvenes, que las remeras son las primeras en aparecer y las primeras en mudarse (a los 35–40 días), que las remeras juveniles son estrechas, puntiagudas y con el cañón desproporcionadamente largo (un tercio de la pluma en las primarias) y que las rectrices juveniles se mudan hacia los dos meses y medio (Delacour, 1977).
Cómo distinguir sexo y edad
En el polluelo recién nacido, el sexo puede reconocerse a veces porque los machos tienen un anillo ocular ante algo mayor y manchas pardas en la oreja menos visibles; además, desde el primer día, un alto porcentaje de machos se identifica por un rudimento de carúncula (un pliegue de piel sin plumas y casi sin pigmento), oculto en parte por el plumón pero visible bajo la región del ojo y delante de él (Woeler y Gates, 1970, citados por Johnsgard) (Johnsgard, 1986). A partir de los 60 días, el primer signo del dimorfismo en el plumaje son las plumas oscuras del pecho de los machos, que nunca aparecen en las hembras, según el criadero Chintaguay (del Campo, 2006). En las aves adultas, el espolón, el color de la piel facial y el tamaño de los penachos permiten distinguir los sexos; BOW recuerda que la edad puede estimarse además por la longitud del espolón, el análisis de la cloaca y la bolsa de Fabricio y, en el ave en la mano, por la presencia de las primarias externas juveniles retenidas (BOW, 2022).
Hembras que parecen machos y otras rarezas
Robertson describe un fenómeno sorprendentemente frecuente: las «mulas», o gínandromorfos: hembras que desarrollan, tras un daño en los ovarios, parte del plumaje del macho. Pueden confundirse con un macho a primera vista, porque tienen la cabeza azul, el cuerpo bronceado y, a veces, el anillo del cuello, pero carecen de carúnculas, penachos y espolones, y su cola es corta y lisa, como la de cualquier hembra; en Gran Bretaña representan aproximadamente una hembra de cada 500 (Robertson, 1997). Robertson vio una de ellas expuesta como macho en un museo polaco; no nacen así, pues dos veces se marcó a gallinas un año y se recuperaron al siguiente con otro plumaje; y las disecciones que ha podido hacer han hallado tuberculosis aviar en los ovarios; también se conocen casos con perdigones alojados en el ovario, y los experimentos estadounidenses indican que lo que desencadena el cambio es la deficiencia hormonal (Robertson, 1997). Robertson sospecha que estas «mulas» explican parte de las noticias de machos que incuban nidos o acompañan a pollos, aunque no todas: hay una fotografía de un macho con carúnculas incubando en la finca de Elvedon, en Norfolk, y los trabajos de Pensilvania de la década de 1950 hallaron machos sobre nidos en cautividad, ninguno de los cuales sacó pollos (Robertson, 1997). Las hembras con espolones son relativamente comunes, sobre todo en las viejas, y en California se han descrito «machos con plumaje de hembra», con forma y tamaño de macho, penachos y espolones pero sin carúnculas, que resultaron tener órganos sexuales parcialmente desarrollados de ambos sexos (Robertson, 1997).
Cómo se distingue de otros faisanes
Especie con la que se confunde
Rasgo que permite separarla
Fuente
Faisán verde (P. versicolor), macho
Partes inferiores y dorso verde brillante, sin rojo cobrizo; cola más corta (hasta 425 mm); cobertoras alares y rabadilla gris azulado
Partes superiores marcadas de forma más uniforme y contrastada, pecho y costados con un dibujo más intenso (aspecto más escamoso), cola más corta y ancha; el manto con el centro negro de las plumas hasta el borde pardo claro. En el campo, para Johnsgard, es prácticamente imposible separar a las hembras
El melánico es algo mayor, con cola de más de 350 mm (en la identificación de campo, más de 12 pulgadas) y rabadilla oscura, alas gris oscuro y partes inferiores negruzcas; el verde tiene el antebrazo y la rabadilla gris azulados y las partes inferiores más verdes. La hembra del melánico es castaño oscuro con marcas ante y negras
En gran parte castañas o beige con las alas y las partes inferiores fuertemente barradas; en las de gorguera el barrado es más distinto que en la del común, sobre todo en alas y cola
En la mayor parte de su área el faisán común es el único faisánido que se encuentra en campo abierto, porque evita los bosques densos y las montañas altas que habitan los demás (Madge y McGowan, 2002).
La variación geográfica, en resumen
La variación geográfica del faisán común, al menos en los machos, es de las mayores de cualquier faisán: va de gradual (clinal) a abrupta, y esto último es típico de las poblaciones aisladas (Johnsgard, 1986). En conjunto, los machos aumentan en saturación de color, pierden el collar blanco y disminuyen de tamaño de norte a sur; las hembras son esencialmente iguales en todas partes, aunque tienden a ser más oscuras y más marcadas en las subespecies más orientales (Johnsgard, 1986). Los machos de las subespecies occidentales tienen en general un plumaje más oscuro, las coberteras alares parduzcas y una rabadilla pardo rojiza o pardo negruzca; los de las orientales, un plumaje más claro, coberteras blanquecinas, un anillo blanco en el cuello y la rabadilla de azulada a gris oscuro (BOW, 2022). Delacour describe esa transición con una imagen de conjunto: en el oeste de la zona de distribución las aves son de un rojo cobrizo bastante uniforme, con ribetes negros metálicos; en el este, el manto y los flancos son siempre más claros y más amarillos que el pecho, con el que contrastan, la rabadilla es gris y las coberteras de las alas son gris lavanda (Delacour, 1977). Beebe, cazando en el Yangtsé, recogió en dos arrozales y en una sola mañana tres formas reconocibles, o «subespecies», y dos más sin describir, con el collar ancho, estrecho o casi ausente en machos de una misma bandada (Beebe, 1922 (vol. III)).
05
Medidas y peso
Un faisán de unos 80 cm y poco más de un kilo, con una variación enorme según la subespecie, la estación y el lugar.
Según la tabla de medidas del libro del autor, el macho mide de 75 a 89 cm de longitud total, con alas de 25 a 26 cm, cola de 49 a 59 cm, tarso de 60 a 70 mm y un peso de unos 1,2 kg; la hembra mide de 53 a 62 cm, con alas de 21 a 22 cm, cola de 29 a 31 cm, tarso de 60 a 70 mm y unos 900 g (Hernández García, 2014).
* Medidas expresadas de forma relativa, ya que ningún animal es exactamente igual en tamaño.
Las barras comparativas de la ficha anterior de la web (peso, alas, cola, tarso y longitud de cada sexo) no conservaban los valores; esta ficha recoge los del libro del autor, que son los mismos que dan Madge y McGowan para la longitud, y los contrasta con las demás fuentes (Hernández García, 2014; Madge y McGowan, 2002). Todas las fuentes coinciden en que el macho pesa más que la hembra (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
1.263 gpeso medio anual del macho en Dakota del Sur (n = 13.124)
917 gpeso medio anual de la hembra en Dakota del Sur (n = 2.071)
1.304 gmáximo de peso medio del macho, a finales de marzo
1.049 gmáximo de peso medio de la hembra, a principios de mayo
Medidas según Birds of the World
La página no incluye tabla de medidas; Birds of the World recoge, a partir de Delacour, Cramp y Simmons y Johnsgard, estos valores para el grupo nominal: longitud alar de 235 a 258 mm en el macho y de 210 a 220 mm en la hembra; cola de 425 a 536 mm en el macho y de 290 a 310 mm en la hembra; tarso de 65 a 74 mm en el macho; y pico de 25 a 29 mm hasta las plumas de las narinas. (BOW, 2022; Delacour, 1977; Johnsgard, 1986)
En cuanto al peso, en Dakota del Sur la masa media anual fue de 1.263 g en los machos (n = 13.124) y de 917 g en las hembras (n = 2.071); en Ohio, de enero a junio de 1961, de 1.271 y 993 g, respectivamente. Los machos alcanzan su peso máximo (unos 1.304 g) a finales de marzo y las hembras (unos 1.049 g) a principios de mayo, y ambos sexos registran los valores mínimos en enero. Los machos de 3 meses pesan 850-950 g y las hembras unos 750 g; a las 20 semanas los machos llegan a unos 1.100 g y las hembras a 800 g. (BOW, 2022)
BOW añade que en Ohio la desviación estándar fue de 140 g en 89 machos y de 143 g en 195 hembras, y que la masa media de ambos sexos disminuye durante la temporada reproductiva hasta mínimos en enero (BOW, 2022).
Los datos de peso del área nativa son escasos y proceden de muestras pequeñas (Johnsgard, 1986).
Medidas del ala del macho por subespecie
Johnsgard y Delacour resumen una regla general: las poblaciones del norte son de mayor tamaño que las del sur. Madge y McGowan lo ilustran con dos extremos, el ala del macho de hagenbecki, de Mongolia occidental, que mide 260–265 mm, frente a la de rothschildi, de Yunnan, de 210–230 mm (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Subespecie
Ala del macho (mm)
Cola del macho (mm)
Fuente
colchicus
238–258
425–536
Delacour
septentrionalis
247–255
—
Delacour
talischensis
237–240
—
Delacour
persicus
233–248
—
Delacour
principalis
234–245
390–510
Delacour; Johnsgard
zarudnyi
227–244
—
Johnsgard
chrysomelas
235–250
—
Johnsgard
bianchii
240–260
—
Johnsgard
shawii
233–250
370–515
Johnsgard
turcestanicus
250–270 (Delacour); 240–263 (Johnsgard)
—
Delacour; Johnsgard
mongolicus
235–250 (Delacour); 248–267 (Johnsgard)
510–580 (Johnsgard)
Delacour; Johnsgard
tarimensis
236–247
—
Delacour
satscheuensis
237–251
—
Delacour
vlangalii
245–250
—
Delacour
strauchi
240–250 (Delacour); 225–238 (Johnsgard)
378–595 (Johnsgard)
Delacour; Johnsgard
suehschanensis
220–230 (Delacour); 217–232 (Johnsgard)
375–460 (Johnsgard)
Delacour; Johnsgard
elegans
220–230 (Delacour); 205–230 (Johnsgard)
410–465 (Johnsgard)
Delacour; Johnsgard
rothschildi
210–230
—
Delacour
decollatus
227–235 (Delacour); 230–242 (Johnsgard)
490–576 (Johnsgard)
Delacour; Johnsgard
kiangsuensis
240–255 (Delacour); 220–235 (Johnsgard)
438–675 (Johnsgard)
Delacour; Johnsgard
torquatus
240–255 (Delacour); 240–254 (Johnsgard)
435–530 (Delacour)
Delacour; Johnsgard
takatsukasae
225–245
—
Delacour
formosanus
220–245
—
Delacour
karpowi
240–260 (Delacour); 217–235 (Johnsgard)
424–570 (Johnsgard)
Delacour; Johnsgard
pallasi
248–270 (Delacour); 235–245 (Johnsgard)
435–485 (Johnsgard)
Delacour; Johnsgard
hagenbecki
260–265
—
Delacour; Madge
Las medidas de Delacour y de Johnsgard proceden de ejemplares y series de museo distintos, por lo que a veces no coinciden; se muestran ambas (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). El cuadro de Johnsgard procede de un OCR con erratas, de modo que solo se reproducen los valores legibles.
Huevos
Fuente
Tamaño (mm)
Peso
Comentario
BOW (2022), Europa
media de 45 × 36 (rango 41–49 × 33–38; n = 200)
media de 33 g (31–35)
Forma subelíptica a oval; en cautividad, huevos de las hembras de un año de 43,4 × 34,0 mm y 27,3 g de media (BOW, 2022)
BOW (2022), otros estudios
41,9 × 33,5; 42,0–46,2 × 33,7–37,0 (n = 25)
25,5–29,5 g
Grosor de la cáscara de 0,23 a 0,305 mm en cautividad (BOW, 2022)
Kozlowa (1947), alto Amu Daria
42–46,2 × 33,7–37,0 (25 huevos)
25,5–29,5 g (un veinticinco avo del peso del ave)
Gris oliva pálido; nido a unos 18 cm de diámetro (Delacour, 1977)
Delacour (1977), género
39–49 × 34–36
—
Sin manchas, pardo oliva uniforme, a veces verdosos o azulados (Delacour, 1977)
Beebe (1922), género
41–47 × 33–36
—
Los más pequeños de todos los faisanes; de pera a oval ancho; oliva pardo, blanco verdoso, piedra pálido, crema pardusco o azul verdoso (Beebe, 1922 (vol. III))
Primeros vuelos cortos entre los 7 y los 12 días (BOW; Johnsgard)
10 días
76 g
—
Empieza la muda juvenil
15 días
126 g
—
21 días
197 g
—
30 días
322 g
unos 135 g (media)
La diferencia refleja la dieta de las aves cautivas
45 días
487 g
—
2 meses
—
unos 400 g
3 meses
—
♂ 850–950 g; ♀ unos 750 g
20 semanas
—
♂ unos 1.100 g; ♀ unos 800 g
El crecimiento de la hembra termina hacia esta edad; el del macho sigue
Los pesos de la serie en cautividad proceden de los pies de foto de Luis Ávila en la ficha original (Hernández García, 2014); los de libertad, de BOW (que cita a Glutz y a Baxter y Wolfe) y de Johnsgard (BOW, 2022; Johnsgard, 1986). Dietas con menos de un 18–24 % de proteína bruta pueden frenar el crecimiento en las 3–4 primeras semanas (BOW, 2022).
06
Distribución y hábitat
De los bosquetes del Cáucaso a los arrozales del Yangtsé: un área nativa enorme y fragmentada, y otra casi mundial, hecha por el hombre.
El faisán común se distribuye por todo Oriente, desde China, Corea, Formosa (Taiwán), el mar Negro, Japón, Irak, Turquía, Irán, Afganistán y Pakistán hasta Mongolia y Birmania, entre otros territorios.
Ha sido introducido en muchas zonas de Europa y de América.
Mapa de distribución. Pulsa para ampliar.
Su área nativa se extiende desde el mar Caspio hacia el este a través de Asia central hasta China, Corea y Japón, y hacia el sur hasta Indochina y Afganistán. Como especie cinegética de gran valor, ha sido introducida y establecida con éxito fuera de su rango natural en gran parte de Europa, Norteamérica (desde el sur de Canadá hasta prácticamente toda la franja templada de EE.UU.), Nueva Zelanda, Australia y Hawái. (Wikipedia)
Según Birds of the World, el área de distribución nativa va de Bulgaria y Grecia, hacia el este por la costa turca del mar Negro y la costa sur del mar Caspio, hasta la vertiente septentrional del Himalaya; al norte llega a China y Corea, al sur hasta la frontera de Vietnam, e incluye Taiwán. La especie surgió hace unos 1,19 millones de años en el borde oriental de la meseta Qinghai-Tíbet, en el suroeste o centro de China. En Japón la especie autóctona es el faisán verde; el faisán común se introdujo allí (la subespecie karpowi, procedente de Corea, hacia 1920). (BOW, 2022)
Las introducciones, ligadas a su valor cinegético, se han intentado en casi 50 países de seis continentes: en Europa desde el año 500 d. C., en Nueva Zelanda desde 1842, en Hawái desde 1866 y en Norteamérica con éxito desde 1882. También vive en Chile y en las islas Flinders y King. Se estima una población mundial de 160-220 millones de individuos, con 8,3-10,7 millones en Europa. (BOW, 2022)
El área nativa es, según Delacour, la mayor de cualquier género de faisán: de las estribaciones meridionales del Cáucaso, junto al mar Negro, quizá hasta Bulgaria y Tracia, y por toda Asia hasta Corea, Manchuria, China, Formosa y Japón, entre unos 40 y 145 grados de longitud este y entre 20 y 48 grados de latitud norte (Delacour, 1977). Beebe cifra el ancho de esa franja en casi cinco mil millas, de los mares de Azov y Negro a la costa del mar del Japón; en Manchuria, la especie llega por lo menos a los 48° N, y tres o cuatro formas cruzan hacia el sur el trópico de Cáncer (Beebe, 1922 (vol. III)). Es una especie sedentaria, con movimientos irruptivos en el norte (Johnsgard) y una larga historia de fragmentación: BOW atribuye la discontinuidad actual de Asia central y occidental a un retorno abrupto de la estepa y el desierto tras el último máximo glaciar, hace entre 4.000 y 6.000 años (BOW, 2022; Johnsgard, 1986). BOW enumera la distribución nativa en dieciocho regiones; se resumen en la tabla siguiente junto con las subespecies que las ocupan (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Región (BOW)
Países y rasgos
Subespecies
1. Sureste de Europa y Turquía
Este de Grecia, sur y este de Bulgaria, llanura costera de Turquía desde cerca de Estambul hasta la frontera con Georgia (nativa probable)
colchicus
2. Cáucaso septentrional (Ciscaucasia)
Del norte de Daguestán al delta del Volga, Rusia
septentrionalis
3. Transcaucasia
Este de Georgia, Azerbaiyán y este de Armenia; noroeste de Irán
colchicus
4. Tierras bajas del Caspio de Irán y Transcaspia
Sureste de Transcaucasia y llanura caspia de Irán hasta Mazandarán (talischensis); suroeste de Turkmenistán y noreste de Irán (persicus)
talischensis, persicus
5. Turkmenistán y norte de Afganistán
Suroeste y sureste de Turkmenistán, extremo noreste de Irán y noroeste de Afganistán
principalis
6. Amu Daria central y superior
Frontera Turkmenistán–Uzbekistán entre Kerki y Darganata; alto Amu Daria en el sur de Uzbekistán, suroeste de Tayikistán y norte de Afganistán
zarudnyi, bianchii
7. Amu Daria inferior y mar de Aral
Delta del Amu Daria, oeste de Uzbekistán y norte de Turkmenistán
chrysomelas
8. Syr Daria
Del mar de Aral al este por el sur de Kazajstán hasta el valle de Fergana (frontera de Uzbekistán, Tayikistán y Kirguistán)
turcestanicus
9. Bujara y Zeravshan
Valle de Zeravshan y Kashkadarya, cerca de Samarcanda (Uzbekistán)
zerafschanicus
10. Issyk-Kul, Balkhash, Zaysan y Dzungaria
De Kirguistán al noroeste de Xinjiang y Urumchi, pasando por los lagos Balkhash y Zaysan (Kazajstán)
mongolicus
11. Cuenca del Tarim (Xinjiang)
Oeste (Yarkand, Kashgar, Khotan) y este y sur de la cuenca, hasta Lop Nur
shawii, tarimensis
12–17. Oasis aislados de China y Mongolia
Valle del Kobdo (Mongolia occidental); extremo noroccidental de Gansu; cuenca occidental del Qaidam (Qinghai); bajo Ruo Shui (Mongolia Interior); pies de monte occidentales del Helan Shan; oasis de Sohokhoto
Del sur de China y los confines del este de Myanmar, Tailandia, Laos y Vietnam al centro de Qinghai y al noreste hasta el extremo nororiental de China y las zonas adyacentes de Mongolia y Rusia, con la península de Corea y Taiwán
Grupo de rabadilla gris (torquatus, pallasi, karpowi, kiangsuensis, strauchi, suehschanensis, elegans, decollatus, rothschildi, takatsukasae, formosanus)
La asignación de subespecies a regiones se ha hecho con las localidades de Delacour, Johnsgard y BOW; el detalle de cada una está en el capítulo de subespecies (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Johnsgard resume el área con otras palabras: del delta del Volga, el Cáucaso septentrional y Transcaucasia al este por el norte de Irán hasta el Turquestán afgano, y desde Transcaspia y el Turquestán ruso al este por el Turquestán chino y Mongolia hasta el valle del Amur y Ussuriland (con distribución local en la mayor parte de estas zonas), al sur por Manchuria, Corea y China, incluida Taiwán, hasta Birmania septentrional y Tonkín; y Madge y McGowan añaden que es localmente raro en el extremo noroeste, centro sur y sureste de Mongolia y en Ussuriland, y que falta en las zonas más altas de la meseta tibetana (Johnsgard, 1986; Madge y McGowan, 2002). En China es el galliforme más común: está en casi todo el país, salvo en Hainan y la mayor parte del altiplano tibetano (Madge y McGowan, 2002).
Países y territorios
Presencia (BirdLife, 2025)
Países y territorios
Nativo (residente)
Afganistán, Armenia, Azerbaiyán, China (continental), Georgia, Irán, Kazajistán, Kirguistán, Laos, Mongolia, Myanmar, Corea del Norte, Corea del Sur, Rusia (también Rusia asiática), Taiwán, Tayikistán, Turkmenistán, Uzbekistán, Vietnam
Introducido, Europa
Albania, Andorra, Austria, Bielorrusia, Bélgica, Bosnia y Herzegovina, Bulgaria, Croacia, Chequia, Dinamarca, Finlandia, Francia, Alemania, Grecia, Hungría, Irlanda, Italia, Letonia, Liechtenstein, Lituania, Luxemburgo, Moldavia, Montenegro, Países Bajos, Macedonia del Norte, Noruega, Polonia, Portugal, Rumanía, Rusia europea, Serbia, Eslovaquia, Eslovenia, España, Suecia, Suiza, Turquía, Ucrania, Reino Unido
Introducido, América
Bahamas, Canadá, Cuba, EE. UU.; presencia incierta en México y en Puerto Rico
Introducido, resto del mundo
Australia, Marruecos, Nueva Zelanda, Santa Elena
BirdLife marca a Turquía, Bulgaria y Grecia como introducido, mientras que BOW y Madge y McGowan aceptan como probablemente nativas las aves de ese extremo sureste de Europa (BirdLife, 2025; BOW, 2022; Madge y McGowan, 2002). Las poblaciones de Japón y Australia se consideran demasiado pequeñas para añadir mucho al total (BirdLife, 2025).
Altitud
Fuente
Altitud
Observación
BirdLife (2025)
0–700 m
Rango de altitud registrado; en su área natural la altitud varía considerablemente (BirdLife, 2025)
BOW (2022)
Hasta 3.353 m en Hawái; 3.500 m en el noroeste de Sichuan
Praderas con bambú de 2.400 a 2.900 m en Xiaoshennongjia (Hubei) (BOW, 2022)
Johnsgard (1986)
Hasta unos 13.000 pies (Vaurie 1965); 1.500–2.600 m, rara vez 3.400 m (Dementiev y Gladkov) en la antigua URSS; rara vez por encima de 700 m en el Paleártico occidental (Cramp y Simmons); en Hawái del nivel del mar a 11.000 pies
Las subespecies del desierto se limitan a áreas con agua dulce (Johnsgard, 1986)
Delacour (1977)
Hasta 3.000 pies (grupo de cuello negro); hasta 2.000 pies (alas blancas); hasta 4.000 pies (grupo kirguís); entre 2.000 y 4.000 pies (Tarim); entre 3.000 y 5.000 pies (shawii); hasta 7.000, 9.000 o 10.000 pies en subespecies chinas del oeste
Las subespecies orientales ocupan alturas bajas en el este y el norte, y más altas en el oeste (Delacour, 1977)
Madge y McGowan (2002)
Montañas y estribaciones cercanas a cobertura
Evita los bosques densos, las montañas más altas y las zonas muy secas (Madge y McGowan, 2002)
Las altitudes de Delacour y de Johnsgard vienen en pies (3.000 pies son unos 900 m; 10.000 pies, unos 3.000 m) (Delacour, 1977; Johnsgard, 1986).
Hábitat en el área nativa
Se asocia sobre todo a zonas agrícolas con setos, zanjas herbosas y bosquetes cercanos, aunque también ocupa áreas arbustivas y boscosas; lo esencial es disponer de cobertura densa y agua. Se da hasta los 3.353 m en Hawái y se ha registrado a 3.500 m en el noroeste de Sichuan; en Xiaoshennongjia (China) ocupa praderas con matorral de bambú entre 2.400 y 2.900 m, y en Beisishan, bosques abiertos de coníferas. Las distintas subespecies parecen tener preferencias de hábitat variables. (BOW, 2022)
Está catalogado como de preocupación menor, pero algunas subespecies, como talischensis, tienen poblaciones salvajes críticamente pequeñas y en declive. En Norteamérica, la agricultura moderna (menos setos y bordes de campo, drenaje de humedales, pesticidas, siegas tempranas) ha degradado su hábitat; la gestión actual se centra en ofrecer cobertura de nidificación e invernal y en reducir la pérdida de nidos. (BOW, 2022)
Más allá de esa idea general, el hábitat varía mucho. En China, Cheng (1963) distinguió tres ambientes: los bordes cubiertos de vegetación de los ríos, las zonas de colinas cerca de grandes campos cultivados con pequeños bosquetes de bambú y matorral de pinos, y las tierras llanas de cultivo de arroz, trigo o colza; Beebe había descrito para el bajo y medio Yangtsé los mismos tres tipos, con carrizales de hasta 16 pies de altura, colinas ondulantes de uno o dos centenares de pies con roble bajo, castaño y pino, y arrozales (Beebe, 1922 (vol. III); Johnsgard, 1986). En la antigua URSS el biotopo principal son los matorrales y espadañales de los valles fluviales, los terrenos cultivados y, en parte, los valles de montaña cubiertos de matorral, sobre todo entre 1.500 y 2.600 m y rara vez a 3.400 m; en el Paleártico occidental, las tierras bajas y los grandes valles hasta las colinas y las tierras secas altas, sin nieves profundas ni fríos severos, y en las montañas queda limitado a valles estrechos arbolados, rara vez por encima de 700 m (Johnsgard, 1986). Las subespecies de los desiertos pueden vivir en zonas muy áridas de suelos alcalinos, pero solo junto a ríos o a otras aguas dulces (Johnsgard, 1986).
Lugar
Hábitat registrado
Fuente
Alto Amu Daria (Tayikistán)
Matorral ribereño de olivo silvestre (Eleagnus angustifolia) con álamos (Populus pruinosa) y la gran gramínea Erianthus ravennae; bosques claros de álamos con claros herbosos; tamariscos y Lycium ruthenicum sobre suelos salinos; evita las junglas impenetrables y los carrizales densos; en primavera, unas 20 parejas por km²
En invierno (noviembre–enero), bosque abierto de coníferas por debajo de 1.200 m, con cubierta de copas menor del 30 %, más del 50 % de arbustos y agua a menos de 300 m
Fondos de valle, donde los campesinos han despejado el matorral para pequeños campos, con espino amarillo (sea buckthorn); Robertson levantó 16 aves en unos 60 acres de campos y matorral
Robertson insiste en que la idea de que el faisán es «naturalmente» un ave de pantano es un mito, y que en China ocupa los mismos hábitats que en Occidente (Robertson, 1997).
Hábitat en las áreas introducidas
En Norteamérica, el faisán vive en praderas de baja altitud, zonas agrícolas y matorrales, con zonas boscosas adyacentes y agua cerca; sus densidades máximas están en el «cinturón del maíz» y en suelos ricos en calcio, y no prospera donde hay nevadas fuertes ni inviernos extremadamente fríos ni veranos de calor intenso (BOW, 2022; Johnsgard, 1986). En el oeste y suroeste, queda cada vez más limitado a zonas de regadío (Johnsgard, 1986). En Hawái vive desde el nivel del mar hasta más de 3.000 m, en lugares con precipitaciones anuales de entre 25 y 762 cm y en todo tipo de suelo, topografía y clima (BOW, 2022; Johnsgard, 1986).
Región
Presencia y situación
Fuente
Europa
«Establecido» desde el sur de Noruega, Suecia y Finlandia hasta España, Italia, el norte de Grecia y Bulgaria, y al este hasta Ucrania, Moldavia, Bielorrusia y la Rusia europea; la población silvestre se refuerza cada año con aves criadas, y se duda de que sea autosuficiente en el Reino Unido
1,8–1,9 millones de hembras reproductoras en 2000; 35 millones de aves liberadas cada año, de las que unos 15 millones se abaten; en 1989, 1,5–1,6 millones de adultos de al menos seis subespecies
Del sur de la Columbia Británica (incluida la isla de Vancouver), el centro de Alberta, el sur de Saskatchewan, el suroeste de Manitoba, el centro de Minnesota y de Wisconsin, el centro de la península baja de Michigan, el sur de Ontario, el suroeste de Quebec, el sur de Nuevo Brunswick, la isla del Príncipe Eduardo y Nueva Escocia, hacia el sur, al menos localmente, hasta el sur de California, el valle del Colorado, el noroeste de Sonora, Nevada, Utah, Nuevo México, Texas (norte y costa sureste), Oklahoma, Kansas, Misuri, Illinois, Indiana, Ohio, Pensilvania, Maryland, Virginia y los Outer Banks
Común en Kauai, Oahu, Molokai, Lanai, Maui y Hawái (y posiblemente Niihau), sobre todo en laderas boscosas a barlovento y en zonas urbanas; poblaciones de 70.000 aves en 1946–1947
Johnsgard añade que ha habido otras introducciones fracasadas o con posterior extinción local en muchas partes, y que su lista de 1986 incluía el sur de Noruega y Suecia, España, Francia, Córcega, Italia, Alemania, Hungría, Yugoslavia, Grecia y Bulgaria (Johnsgard, 1986).
Las densidades de las áreas introducidas se conocen mejor que las del área nativa; solo hay tres estimaciones fiables en esta última (BOW, 2022; Johnsgard, 1986).
07
Comportamiento y voz
Un ave que prefiere correr a volar, madruga, canta para marcar su harén y desaparece en una mata de hierba.
El faisán común es un ave terrestre y de hábitos regulares: se alimenta al amanecer y al atardecer, descansa a cubierto las horas centrales, duerme en el suelo o en perchas bajas según el lugar, vive en grupos laxos y, en primavera, el macho defiende un harén con su canto y sus exhibiciones (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Cómo se mueve: andar, carrera y vuelo
Pasa la mayor parte del tiempo en el suelo, y por eso tiene patas fuertes. Camina con un andar pavoneante y digno, con paradas frecuentes para mirar y escuchar, pero puede correr lejos y deprisa; si se alarma, a menudo prefiere correr a cubierto antes que huir volando. La distancia entre huellas suele ser de 10–13 cm, aunque no es raro un paso de 18–20 cm; al correr ladea la cola unos 45° y mientras se alimenta la lleva en general horizontal (BOW, 2022). Beebe cita casos que dan idea de su resistencia: una gallina herida nadando a través de un arroyo con un movimiento de cabeza como el de una polla de agua, y un viejo macho que se escapó corriendo a cubierto a unos 700 yardas de un perro de muestra (Beebe, 1922 (vol. III)).
Sus alas cortas y redondeadas, con un batido rápido y potente, permiten un despegue casi vertical: puede alcanzar los 61 km/h y suele volar menos de 180 m en línea relativamente recta; hay un registro excepcional de un faisán que cruzó 6,5 km de agua, pero el vuelo sostenido sin viento se limita probablemente a menos de 1,6 km (BOW, 2022). Beebe señala que el vuelo es más débil que en muchos faisanes y más lento que el del gran faisán venerado, y que un macho puede subir casi en vertical unos 30 pies y salir luego a gran velocidad (Beebe, 1922 (vol. III)). El criadero Chintaguay lo describe así: un vuelo casi vertical de 8 a 10 m, con aleteo intenso y ruidoso (acompañado, en los machos, de un «grito»), seguido de un desplazamiento de unos centenares de metros alternando aleteo y planeo (del Campo, 2006). Es una de las razones de su valor cinegético (del Campo, 2006). Se posa en árboles y arbustos saltando o volando desde el suelo, y alcanza las perchas más altas mediante series escalonadas de aleteos (BOW, 2022).
Un día en la vida
Como los faisanes tropicales, el faisán común tiene una marcada periodicidad diurna. El canto de los machos puede empezar antes del amanecer; las aves dejan entonces el dormidero para alimentarse, actividad que ocupa dos o tres horas; después van al agua, sobre todo en regiones secas; pasan las horas más cálidas descansando en zonas sombreadas, donde se acicalan, toman baños de polvo y duermen; vuelven a alimentarse al atardecer, a menudo visitando fuentes de gravilla, y siguen hasta casi el anochecer, cuando se dirigen al dormidero (BOW, 2022; Johnsgard, 1986). En invierno, en Finlandia, solo están activos entre 25 y 90 minutos cada 24 horas, y pueden permanecer inactivos durante días con frío extremo (BOW, 2022).
Dormideros
El dormidero varía con las circunstancias y no con la edad o la estación: a veces es un árbol, pero mucho más a menudo un matorral denso, un carrizal u otra cobertura espesa (Delacour, 1977; Johnsgard, 1986). Beebe observó que en el Yangtsé las aves duermen en el suelo aunque haya árboles adecuados, y que solo donde abundan los depredadores terrestres se refugian en lo que encuentran, como la copa de los robles bajos recortados para leña, y se acomodan en grupos de varias gallinas sobre un lecho de musgo bajo pinos delgados (Beebe, 1922 (vol. III)). Kozlowa, en el Amu Daria, vio que los adultos duermen siempre en el suelo en primavera, verano y otoño, mientras que los jóvenes medio crecidos duermen en las ramas (Delacour, 1977). Cuando duerme, adopta una postura inclinada hacia delante, con la cola colgando; la separación entre aves suele ser de 0,1 a 1,5 m, y con mal tiempo hasta 15 machos pueden acurrucarse en una misma rama (BOW, 2022).
Cuidado del plumaje y baños de polvo
Los comportamientos de mantenimiento no están bien descritos en el faisán común; BOW sugiere tomar como modelo al gallo bankiva de Birmania, con sus movimientos de estiramiento y aleteo, el picoteo y peinado del plumaje, el frotamiento y rascado de la cabeza y la limpieza del pico (BOW, 2022). El baño de polvo es común y puede ser una parte necesaria de la rutina diaria; elimina células epidérmicas muertas, grasa, suciedad, plumas viejas y vainas de plumas en desarrollo, y puede ayudar a controlar los ectoparásitos (BOW, 2022). En el Yangtsé, Beebe vio que en las rocas toman el sol en días fríos de principios de primavera o de otoño y que su ocupación favorita en las horas calurosas es el baño de polvo, el acicalado y el sueño a la sombra (Beebe, 1922 (vol. III)).
Sociabilidad y jerarquías
Los machos adultos son solitarios durante la cría y forman a menudo, en la época no reproductora, pequeños grupos de hasta diez aves, a veces con varias hembras; las hembras son más gregarias y pueden formar grupos de hasta 30 en invierno, con bandadas mixtas de hasta 50 (BOW, 2022). Collias y Taber (1951), en Norteamérica, vieron que en invierno las aves forman bandadas temporales, de miembros cambiantes, que se desplazan y se alimentan como una unidad más o menos coherente; los machos y las hembras comen a veces juntos y a veces en grupos de un solo sexo; los dormideros invernales reúnen de dos a más de veinticuatro aves, más numerosos con frío intenso; y esas agrupaciones se transforman gradualmente en harenes de gallinas, cada uno dominado por un macho, a medida que avanza la estación (Johnsgard, 1986). El paso de los grupos de machos a la dispersión y a los territorios se asocia al crecimiento de los testículos, al inicio de la exhibición ante las hembras y a la aparición de la intimidación entre las hembras (Johnsgard, 1986). Tanto los machos como las hembras tienen jerarquías de dominancia relacionadas con la edad y, quizá, con el peso; todos los machos dominan a todas las hembras, y los machos que empiezan a cantar y a exhibirse antes dominan a los que lo hacen después (Johnsgard, 1986).
Territorio, harén y sistema de apareamiento
El sistema de apareamiento es la poliginia de defensa del harén: las hembras forman grupos que se sienten atraídos por determinados territorios o machos, y los machos defienden y vigilan esos harenes (BOW, 2022). Los harenes de la reproducción suelen ser pequeños (dos hembras o menos), aunque se han descrito hasta 18; en Jiangsu (China) se forman, a mediados de febrero, con 3 a 5 hembras; Beebe da para el Yangtsé de cuatro a ocho hembras por macho en plena madurez, y también casos de parejas donde las hembras habían sido diezmadas por la caza (Beebe, 1922 (vol. III); BOW, 2022). Los miembros del harén suelen proceder del mismo grupo invernal; como se incorporan hembras nuevas durante el verano, un solo macho puede inseminar a todas las receptivas (BOW, 2022). Una proporción de un macho por cada diez hembras es probablemente suficiente para mantener la fertilidad en las poblaciones salvajes, y en bandadas cautivas se ha observado una proporción de 1:50 sin que descendiera la fertilidad (BOW, 2022).
Aunque se dice que los machos son «territoriales», Johnsgard encuentra pocas pruebas de territorios bien definidos, y eso explica los tamaños tan distintos que se han citado para las áreas de canto, de 3 o 4 acres a 25 o 75 acres (Edminster 1954); Kozlowa, en el Amu Daria, prefería hablar de «rutas de crucero» de 400–500 m, que el macho recorre una y otra vez para alimentarse y buscar hembras, sin expulsar nunca a otro macho (Delacour, 1977; Johnsgard, 1986). BOW sintetiza que los límites son plásticos, se solapan y varían con la densidad de machos, la estructura del hábitat y la comida, y que los territorios de cría medidos en otros estudios van de 3 a 32 ha; el éxito de apareamiento depende probablemente más de la calidad del macho que de la del territorio (BOW, 2022). Los machos establecen sus áreas a principios de primavera (finales de marzo o principios de abril en Wisconsin); los adultos suelen volver a ocupar las del año anterior y los de un año ocupan las vacantes; la agresión decae a mediados de junio y las áreas se abandonan poco después de que la última hembra empiece a anidar (BOW, 2022). Las hembras no son territoriales, pero muestran una jerarquía de dominancia en los harenes (BOW, 2022).
Agresión, amenaza y combate
La mayoría de los encuentros agresivos entre machos se dan en la temporada de cría, en especial al establecer el territorio, y se desarrollan en una serie escalonada de exhibiciones de amenaza que puede acabar en lucha física si un ave no huye (BOW, 2022). Johnsgard describe la secuencia: cuando dos machos que se exhiben se encuentran, pueden colocarse frente a frente o caminar en paralelo con la cabeza alta, las barbillas hinchadas y el plumaje de la nuca erizado, mientras emiten una nota ronca «krrrah»; pueden hacer también una exhibición lateral de intimidación, con el ala más cercana bajada, la cola inclinada y abierta en parte y la cabeza alta; o enfrentarse con la cabeza baja, la rabadilla elevada y la cola estirada hacia atrás, picoteando a veces la hierba y con ronroneos de amenaza; el combate incluye picotazos y patadas de ambos (Johnsgard, 1986). El perdedor se retira con las plumas pegadas al cuerpo y las barbillas retraídas (Johnsgard, 1986). En las peleas físicas, los machos revolotean pecho contra pecho, se muerden las barbillas o se lanzan saltos altos alternos usando pico, garras y espolones; las muertes son raras, y el vencedor persigue al perdedor corriendo con la cabeza baja (BOW, 2022). Beebe cuenta que, donde abundan, las peleas empiezan a finales de diciembre en años de clima abierto y duran hasta junio; el ganador canta una o dos veces y se va sin esperar un segundo oponente, y en un caso dos machos pelearon tanto y tan seguido que expulsaron a la hembra del nido y destrozaron los huevos (Beebe, 1922 (vol. III)). Las hembras se intimidan entre sí sobre todo en la formación de los harenes: abren la cola, bajan las alas y se abalanzan; el contacto físico es raro (BOW, 2022).
La voz del faisán
En libertad, el macho anuncia su territorio con un característico canto ronco de dos sílabas ("ko-kok"), lanzado con el cuello estirado hacia arriba, que suele ir seguido de un breve pero vigoroso aleteo. Este reclamo se repite a lo largo de todo el día durante la primavera, siendo especialmente frecuente al amanecer y al atardecer. (Wikipedia)
El reclamo territorial del macho es un «ko-or ok» o «koork-kok» muy fuerte y áspero, con la última sílaba muy cortada, que se oye desde campos lejanos al amanecer y al atardecer en primavera y que suele ir seguido de un breve y vigoroso batir de alas. Los jóvenes lo intentan hacia las siete semanas, pero no alcanzan la calidad tonal del adulto hasta los cuatro meses. Los machos emiten entre 6 y 11 vocalizaciones diferentes; las hembras tienen voces más sutiles, como la llamada de maullido al final de la incubación. Entre los sonidos no vocales figuran el batir de alas y un zumbido bajo de las rectrices durante la exhibición lateral tras la cópula. Al levantar el vuelo, ambos sexos producen además un sonido de alas. (BOW, 2022)
Beebe subraya que el canto es idéntico en todos los continentes: el canto roto del gallo faisán suena igual entre los bambúes de Yunnan, los robles de las tierras altas inglesas o los arces de los campos norteamericanos (Beebe, 1922 (vol. III)). La duración del canto es de unos 0,5 s, se oye a hasta 1,5 km en condiciones favorables, y la variación entre individuos puede permitir a las hembras reconocer a machos concretos, de modo que la hembra emparejada solo responde al canto de su propio macho (Kozlowa) (BOW, 2022; Delacour, 1977). La intensidad es máxima entre 45 y 15 minutos antes del amanecer, la mayoría de los recuentos se realizan de 40 minutos antes a 50 minutos después del orto, y los recuentos primaverales de machos que cantan se utilizan en muchos países como índice de la población (BOW, 2022).
Emisor
Llamada
Descripción y contexto
Fuente
Macho
Canto territorial
«Ko-or OK» o «koork-kok», con la última sílaba staccato; unos 0,5 s; seguido de batir de alas; territorial y quizá atrayente
«Gogok gogok…» o «kuttuk kuttuk…», más grave y atragantada; cuando se inquieta, se excita o oye un ruido súbito; a veces en coro al amanecer y al atardecer
BOW cuenta 16–24 llamadas distintas en la especie, en su mayoría distintas en cada sexo; en su versión en español se traduce el término inglés «crowing» (canto) por «Corvidae» (BOW, 2022). La variación geográfica de las voces no está documentada (BOW, 2022).
Otras fuentes completan el cuadro. Delacour describe, para las aves del Amu Daria, el canto de celo «ko-kokro» seguido de un vigoroso batir de alas «prrr», con la cola ligeramente erguida y abierta como abanico y las patas inmóviles; el macho lo emite cada cuatro o cinco minutos al comienzo de la temporada y cada diez o quince más tarde; con el calor del verano canta de 6 a 9 de la mañana y al atardecer (Delacour, 1977). Además da un arrullo de notas bajas, «coo-coo-coo-co-co-crow», con un ligero aullido final, durante buena parte del día, y una nota suave «kutj-kutj-kutj» con la que invita a la hembra a acercarse a comer (Delacour, 1977). La hembra tiene un «kia-kia» ronco y emite a veces cloqueos de varios tipos (Delacour, 1977). Beebe, en el Yangtsé, recoge que los machos jóvenes empiezan a cantar, débilmente, hacia septiembre y alcanzan su meta vocal en octubre; que de finales de febrero a junio los machos cantan al amanecer, con una segunda temporada vocal de agosto a octubre; y que, ante gavilanes o cernícalos, la gallina da una alarma parecida a la de una gallina bantam (Beebe, 1922 (vol. III)). Según Beebe, el batir de alas, aunque menos desarrollado que en los faisanes plateados, se emplea no solo en el canto y el cortejo, sino para expresar emociones como la sospecha o la curiosidad (Beebe, 1922 (vol. III)).
Sentidos y astucia
Beebe pondera la agudeza de sentidos de los faisanes del Yangtsé: al comer levantan la cabeza cada uno o dos segundos; el crujir de una ramita pone en alerta a la bandada, y el menor ruido de un pie sobre la grava hace que todas se agazapen; el oído les permite evitar la dirección de un sonido sospechoso por bajo que sea, y la vista, que un macho en pleno vuelo esquive el destello de un cañón; los cazadores que se vistieron de blanco para cazarlos sobre la nieve eran detectados a cien yardas (Beebe, 1922 (vol. III)). Aprenden pronto, como los cuervos de los maizales, a distinguir a los campesinos inofensivos de los hombres con escopeta, y comen a la vista de un grupo de culis trabajando pero salen disparados ante un hombre armado (Beebe, 1922 (vol. III)). Cuando se les levanta de repente, la gallina sale con estruendo de alas y un cacareo de alarma que los pollos comprenden perfectamente; los pollos se dispersan, y después, a largo plazo, se arrastran hacia el cloqueo de su madre (Beebe, 1922 (vol. III)).
Movimientos, dispersión y fidelidad al lugar
El faisán común es mayoritariamente sedentario. BOW describe, en una porción montañosa de su área nativa, una migración facultativa e irruptiva ante condiciones invernales duras; Johnsgard cita los movimientos masivos de machos adultos desde China a la cuenca rusa del Amur durante inviernos rigurosos (Barancheev, 1965), mientras que en Suecia, Noruega, Dinamarca y Gran Bretaña los desplazamientos de más de unos pocos kilómetros en toda la vida de un ave son infrecuentes y casi ninguna se mueve más de 10 km (BOW, 2022; Johnsgard, 1986). Las aves de Mongolia son aparentemente residentes, pese a inviernos de hasta −40 °C (BOW, 2022).
Aspecto
Dato
Fuente
Dispersión desde las zonas de cría
Normalmente 5 km o menos; se han observado más de una vez hasta 24 km; mayores en hembras y en aves de un año; sobre todo en otoño e invierno
Suelen volver a las zonas de nidificación anteriores; en Iowa una gallina se desplazó más de 6 km hasta 100 m de su nido anterior; en el centro de Misuri, el 95 % de los nidos estaban a 1,6 km o menos del lugar de suelta de febrero
Texas, 8,6 ha en invierno y 13,6 ha en otoño; Dakota del Sur, 36 ha las hembras; sur de Wisconsin, 146 ha (mayo–septiembre); media de 0,05–0,1 km² según Ashrafzadeh y colaboradores
Los desplazamientos de más de 5 km implican a pocas aves, pero son importantes para el flujo génico, la extensión del área y la recolonización (BOW, 2022).
El ciclo anual, en resumen
Con los datos de BOW, de Johnsgard y de Kozlowa se puede resumir el año del faisán de zonas templadas: en otoño e invierno vive en bandadas laxas, con machos y hembras a menudo separados, cerca de cobertura invernal y de campos con grano; con el frío extremo reduce su actividad a 25–90 minutos diarios; a finales del invierno los machos empiezan a cantar y a exhibirse y las hembras se agrupan en harenes (de mediados de febrero en Jiangsu, de marzo a abril en Norteamérica); la hembra elige un nido entre la hierba y, desde principios de abril hasta mayo, pone un huevo cada 1,3–1,4 días hasta completar la nidada de 7–15; incuba 23 días sola; los pollos empiezan a nacer en mayo (con un máximo hacia mediados de junio en Wisconsin) y siguen a su madre 70–80 días; hacia mediados de junio decae la agresión de los machos, que abandonan sus áreas, y empieza la muda (completa, de junio a octubre); y en otoño los jóvenes, que ya tienen casi el plumaje adulto, se dispersan, los machos jóvenes se pelean y los adultos se reúnen en las zonas de invernada (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Depredadores y defensa
Los nidos son asaltados por una gran variedad de especies, como zorros rojos, perros y gatos domésticos, coyotes, tejones, visones, comadrejas, mofetas, mapaches, jabalíes, zarigüeyas, ardillas, ratas, cuervos, urracas, la chara azul, el zanate común y serpientes; y los adultos y jóvenes, por zorros, perros, coyotes, tejones, martas, comadrejas, mofetas, mapaches, gatos, ratas, búhos, águilas reales, busardos, abejeros, gavilanes, azores, halcones peregrinos y aguiluchos, y por serpientes y tortugas mordedoras (BOW, 2022). Wagner, Besadny y Kabat (1965) reseñaron 12 mamíferos, 9 aves y 2 reptiles como depredadores de adultos y jóvenes, y 14 mamíferos, 3 aves y 2 serpientes como depredadores de nidos en Norteamérica; Cheng (1963) calificó a la civeta como el enemigo más grave en China, junto a lobos, zorros, águilas y búhos (Johnsgard, 1986). Beebe confirma el papel de las civetas en el Yangtsé, junto a zorros, perros mapache y comadrejas, y añade a los cernícalos entre los enemigos de los pollos, a las águilas y los búhos entre los de los adultos, y a las ratas negras y los cuervos como ladrones de huevos (Beebe, 1922 (vol. III)). Ante un depredador, el faisán suele retirarse a cubierto y esconderse, aunque también puede volar, agazaparse o correr; las gallinas a veces hacen una exhibición de ala rota con pollos o encaran a pequeñas rapaces hasta que la nidada se pone a cubierto (BOW, 2022). Beebe recoge varios relatos de gallinas que se enfrentaron a pequeños gavilanes y cubrieron la retirada de sus pollos (Beebe, 1922 (vol. III)).
Relaciones con otras especies
El faisán puede afectar negativamente a la perdiz pardilla y al gallo de las praderas grande en Norteamérica mediante el parasitismo de nidos, la competencia por el hábitat, la transmisión de enfermedades y el comportamiento agresivo; está bien documentado el acoso de los machos a los gallos de las praderas en sus arenas de cortejo, e incluso su muerte; y las interacciones con el gallo de las praderas pueden ser la mayor amenaza para la supervivencia de este último en Illinois (BOW, 2022). El faisán pone sus huevos en nidos de perdiz pardilla, gallo de las praderas, colín de Virginia, rascones, patos de superficie, pavo salvaje, grévol, urogallo, gallo lira y, en su área nativa, del faisán orejudo pardo; la incidencia del parasitismo interespecífico va de menos del 1 % a más del 25 % (BOW, 2022). En el interior de la especie, el parasitismo de nido es relativamente frecuente: Hill y Robertson estimaron que el 7 % de los nidos están parasitados en alguna medida, sobre todo en alta densidad (BOW, 2022). En su área de origen, Beebe vio faisanes comer cerca de los perros de las granjas chinas, sin signos de hostilidad, y señala que las urracas, con sus graznidos de alarma, delatan al cazador y a los depredadores y ponen sobre aviso a los faisanes (Beebe, 1922 (vol. III)).
08
Alimentación
Grano de los campos, semillas, bayas, brotes e invertebrados: un oportunista que se adapta a lo que ofrece cada estación.
En estado salvaje, el faisán común es omnívoro y su alimentación es muy variada en función de la época del año.
Entre los alimentos que consume en libertad se incluyen semillas, grano, bayas, brotes tiernos de cultivos, flores y sus yemas, así como frutos; a esto añade una parte animal formada por caracoles, insectos y, ocasionalmente, pequeños vertebrados como lagartijas y ranas. (Wikipedia)
El faisán común es oportunista y adaptable. En otoño e invierno consume sobre todo semillas (especialmente granos cultivados), hierbas, hojas, raíces, frutos silvestres, nueces e insectos; el grano que queda en los campos constituye la mayor parte de la dieta invernal en muchas localidades, y el maíz es importante en muchas zonas. En primavera y verano aumenta el consumo de materia animal y de follaje, en especial en las hembras, que durante la formación de los huevos toman más caracoles, insectos, cáscaras de huevo y arenilla con calcio. Entre los frutos silvestres figuran uvas silvestres, saúco, espino, manzano y zarzamora. (BOW, 2022)
Rara vez se alimenta a más de 0,4 km de una cobertura invernal adecuada. El agua abierta probablemente no es imprescindible: obtiene humedad del rocío, de los insectos y de la vegetación suculenta. Los pollitos se alimentan por sí solos, sobre todo de invertebrados, y necesitan dietas con un 18-24 % de proteína bruta para crecer bien. (BOW, 2022)
Dónde y cómo busca la comida
Toma el alimento sobre todo en el suelo, rascando o escarbando con el pico, y puede alcanzar raíces o semillas a 8 cm de profundidad; también busca frutos, hojas y brotes en arbustos y árboles, y puede recoger frutos colgantes saltando (BOW, 2022). El forrajeo se concentra en dos periodos: por la mañana temprano (una o dos horas tras la salida del sol) y al atardecer (desde unas tres horas antes de la puesta); en las horas centrales, a cubierto, apenas come (BOW, 2022). En campo abierto suele buscar en pequeños grupos, a veces familiares; en invierno se registran concentraciones mayores en las zonas de alimentación favoritas y bandadas de un solo sexo, y con frío intenso visita las granjas y come con las gallinas domésticas (BOW, 2022). En primavera y verano busca en campos con grano de rastrojo, grano recién sembrado o brotes suculentos, y también en praderas, henares, zonas de maleza y bordes de bosque; recoge incluso grano del estiércol en los pastos (BOW, 2022). Los insectos los obtiene en diversos sitios, pero sobre todo en zonas de maleza (BOW, 2022).
Lo que come, por categorías
Categoría
Alimentos citados
Fuente
Cultivos
Maíz (importante en muchas localidades), trigo (semillas y brotes verdes), soja, cebada, avena, sorgo, arroz, lino, mijo, centeno, trigo sarraceno, guisantes, alfalfa; en China, además, mijo alto (kaoliang), colza, judías y semillas de algodón
Uva silvestre, cornejo, Solanum dulcamara, saúco, espino, manzano, zarzamora, zumaque venenoso; bellotas y avellanas en algunas localidades; castañas y bellotas en China y Manchuria
Tubérculos y estolones (Muhlenbergia, chufa), raíces y brotes de gramíneas; la vegetación herbácea verde forma la mayor parte de la dieta invernal en algunas zonas (valle de Willamette, Oregón)
El rango de alimentos cambia con la región; en Asia central (Kozlowa) los pollos comen sobre todo ortópteros, hormigas y pulgones (Delacour, 1977).
Lo que cambia con la edad
Los pollos son sobre todo insectívoros. Ferrel, Twining y Herkenbaum (1949) midieron, en pollos de Estados Unidos, la proporción de alimento animal en la dieta: 82,9 % en 20 pollos de hasta tres semanas, 47,2 % en 23 de cuatro a seis semanas, 55,1 % en 21 de siete a nueve, 12,5 % en 31 de diez a doce y solo 1,8 % en 34 de trece a dieciséis semanas (Johnsgard, 1986). BOW añade que los alimentos animales suponen el 74–100 % de la dieta de las cuatro primeras semanas; que en Ontario la materia animal baja al 8,5 % a las 10–12 semanas; que los pollos escogen los insectos más grandes que pueden tragar y rara vez ingieren los de menos de 3 mm; y que su diversidad (cigarritas, chinches, larvas de mosca de sierra, orugas) es importante para un crecimiento sano: una dieta basada solo en pulgones puede retrasar el plumaje por falta de aminoácidos (BOW, 2022).
Edad
Materia animal en la dieta
Fuente
Hasta 3 semanas
82,9 % (n = 20); 74–100 % en las 1–4 primeras semanas
Los datos son de aves de granja o del Medio Oeste de EE. UU.; las aves nativas de Asia no se han estudiado con este detalle (BOW, 2022; Johnsgard, 1986).
El año de un faisán del Yangtsé
Beebe resumió el contenido de los buches examinados en el bajo Yangtsé mes a mes; es el calendario de dieta más detallado que existe para el área nativa (Beebe, 1922 (vol. III)).
Mes
Dieta dominante en el Yangtsé (Beebe, 1922)
Enero
Insectos hibernantes y larvas, sobre todo hacia el sur, con algo de semilla
Febrero
Insectos y verdes tiernos de primavera, con muy poca semilla
Marzo
Larvas y alimento verde
Abril
Verdes, insectos y grano temprano
Mayo
Adultos: insectos y grandes cantidades de semillas y grano; pollos: pequeños insectos y gravilla
Junio
Adultos: grano seco y verdes; pollos: insectos y verdes
Julio
Grano y alimento verde; a finales de mes empiezan las incursiones en los arrozales
Agosto
Arroz y verdes; a finales de mes empiezan a comer en los campos de judías
Septiembre
Sobre todo semillas de algodón con verdes y arroz; engordan a finales de mes
Octubre
Judías, bellotas, castañas, semillas de otoño, trigo sarraceno
Noviembre
Bellotas, semillas de algodón, espigueo de arroz y semillas e insectos de los carrizales
Diciembre
Larvas e insectos, bellotas y judías, con muy poca semilla de algodón
Al norte del Yangtsé, donde se cultiva el kaoliang o mijo alto, acuden en gran número a las eras y, al ponerse el sol, recogen el grano suelto; son muy aficionados tanto al mijo alto como al enano (Beebe, 1922 (vol. III)).
Otros datos regionales completan el cuadro. En el Ussuri, según Przewalski (citado por Beebe), las aves comen todo tipo de grano y hasta patatas jóvenes enteras, y en los robledales los buches de los faisanes cazados estaban llenos de bellotas, con las que engordaban mucho en otoño (Beebe, 1922 (vol. III)). En el Zaidam, vlangalii se alimenta en otoño e invierno sobre todo de bayas, que come posado en las ramas, y es muy salvaje y recelosa en esa época (Beebe, 1922 (vol. III)). En el Zeravshan, la subespecie zerafschanicus cría y anida en los cañaverales y toma la comida de los campos y huertos vecinos (Beebe, 1922 (vol. III)). En el bajo Amu Daria, los pollos comen sobre todo ortópteros, hormigas y pulgones, y de vez en cuando arañas; el agua les parece indispensable y beben con regularidad entre las diez y las once de la mañana (Delacour, 1977).
Energía, grasa y agua
La masa de la hembra aumenta de forma gradual en otoño y principios de invierno, rápidamente en febrero y marzo y alcanza el máximo en abril; en un estudio de aves en cautividad, el aumento de peso entre febrero y abril se acompañó de un 39 % más de ingesta (BOW, 2022). El contenido de grasa de la dieta es mayor en otoño (6,21 %) y en invierno (4,80 %) que en primavera (3,99 %) y verano (3,89 %); el maíz y el sorgo aportan entre 3,43 y 3,86 kcal/g de energía metabolizable, mientras que la soja cruda contiene proteínas que inhiben las enzimas digestivas y reducen la digestibilidad (BOW, 2022). La ingesta media de aves en cautividad en Ontario entre diciembre y mayo fue de 250–260 kcal por ave y día, y en Michigan se estimó en 68 kcal/d en verano y 190 kcal/d en invierno (BOW, 2022). Con el frío extremo pueden entrar en balance energético negativo y quedar quietos y aletargados durante días; pueden perder entre el 46 y el 53 % de su masa corporal antes de morir (BOW, 2022). Las hembras necesitan unos 385 mg/kg/día de fósforo (el 0,77 % de la dieta) para una producción satisfactoria de huevos, y la disponibilidad de calcio y fósforo puede influir en la distribución de la especie en el centro de Estados Unidos (BOW, 2022). Como el faisán no suele beber agua abierta si no la tiene a mano, las densidades mayores se dan donde hay agua accesible (BOW, 2022).
09
Cortejo y exhibición
Sin una danza compleja, pero con una exhibición lateral inconfundible: cola ladeada, ala caída, cara congestionada y, a veces, un bocado ofrecido a la hembra.
No presentan una parada nupcial compleja: el macho realiza pequeños bailes alrededor de la hembra.
Delacour lo resume así: durante la época de cría los machos son ruidosos y emiten un canto ronco, «korrk-koky», precedido y seguido de un fuerte batir de alas; además del canto y el batir, la exhibición del macho consiste en una postura típica de lado, con las barbillas de la cara abiertas, mostrando lo mejor posible el cuello, el dorso, la rabadilla y la cola, con la cabeza baja a ratos (Delacour, 1977). Beebe habla de un cortejo «lateral y persistente», de un carácter fuerte de los machos que a veces sustituyen el despliegue prolongado por tácticas rudas (Beebe, 1922 (vol. III)).
Las exhibiciones del macho
Exhibición
Descripción
Cuándo y ante quién
Fuente
Canto y aleteo
El macho elige un lugar prominente, se yergue, hace una pausa (a veces con un aleteo inaudible), lanza su canto y casi enseguida un breve y vigoroso batir de alas; la cola se mantiene algo levantada o apoyada contra el suelo; la carúncula facial se congestiona y se erigen los penachos auriculares
Cada 10–15 minutos en el máximo de la temporada; sobre todo al amanecer y al final de la tarde
El macho territorial camina directamente hacia las hembras con la cabeza alta y los penachos auriculares erectos; suele preceder a la exhibición lateral
Se acerca a la hembra y pasa despacio por delante de ella en semicírculos, con la cola y el ala más cercana (bajada) extendidas hacia ella, la cabeza baja, las barbillas y los penachos erguidos, las plumas del cuerpo esponjadas y la carúncula congestionada; a menudo con un silbido; puede hacerse corriendo hacia la hembra y pasando junto a ella
Sobre todo con hembras solitarias; con las demás a la entrada de la temporada
El macho, con la cabeza baja, quieta y algo ladeada, llama a la hembra con notas bajas, a un ritmo de unas tres por segundo, mientras se agacha y mantiene la cola plegada en alto, para invitarla a recoger un bocado; Beebe lo describe como el recoger y soltar el alimento con un arrullo suave, y Kozlowa como un «kutj-kutj-kutj»
Con hembras que ya forman pareja; suele coincidir con el máximo de la cópula y con frecuencia la inicia la hembra
Tras la cópula el macho gira despacio en torno a la hembra, con el ala próxima extendida y caída, la otra levantada, la cola abierta e inclinada hacia ella, el cuello curvo, las plumas del cuello erizadas y el pico tocando el suelo; emite un silbido fuerte con las mandíbulas cerradas y un golpeteo bajo al vibrar las rectrices, «como una vela grande al viento»
Después de la cópula; no hay otra exhibición poscopulatoria específica
Johnsgard ilustra con dibujos de Glutz (1973) las posturas del macho: normal, con la carúncula congestionada, canto, aleteo y exhibición lateral (Johnsgard, 1986).
Cómo responde la hembra
Al principio de la temporada la hembra puede huir y el macho la sigue, de modo que se suceden exhibiciones y carreras que cubren hasta 150 m (BOW, 2022). En marzo y abril, la hembra que no huye puede adoptar posturas que estimulan al macho cercano: una «media sentadilla» muy breve, como si las patas se hubieran doblado un momento, un «salto de coqueteo» con las alas algo abiertas y los dos pies despegados del suelo, y un estiramiento de alas, con alas abiertas y levantadas, el cuello alzado y adelantado y un equilibrio breve de puntillas (BOW, 2022). La hembra solicita la cópula a veces agachándose ante el macho, con el reclamo precopulatorio (BOW, 2022). Con una hembra de otro harén o más tarde en la temporada, el macho puede forzar a la hembra que se resiste; los machos no territoriales parecen conseguir la cópula solo por coerción (BOW, 2022). Johnsgard anota que, a veces, tras la cópula, la hembra se sacude y se aparta, y el macho no hace después otras exhibiciones específicas (Johnsgard, 1986).
Del cortejo a la formación del harén
El cortejo se produce habitualmente dentro del territorio del macho (BOW, 2022). Kozlowa, en el alto Amu Daria, vio que el macho camina despacio por el bosque comiendo; que en marzo vive solo, mientras que las hembras forman pequeños grupos de tres o cuatro; que los emparejamientos empiezan hacia el 5 o el 10 de abril; que cada macho se empareja con una o dos hembras y se queda con ellas hasta el inicio de la incubación; y que las parejas se rompen casi todas a finales de abril, momento en que el macho vuelve a su andar solitario si no encuentra otra hembra, no se acerca nunca a la hembra que incuba ni presta atención a la nidada (Delacour, 1977). Cuando el macho está dispuesto a copular, la piel blanda de la cara y las pequeñas glándulas ovales tras los penachos auriculares se hinchan y los penachos se ven más largos (Delacour, 1977). Más adelante en la temporada, o con muchas hembras, el sistema es la poliginia de defensa del harén, con vigilancia de las hembras durante una o dos horas al día en hábitats abiertos (BOW, 2022).
La correlación entre el momento de nidificación y el de formación del harén es muy alta (r = 0,89, seis años), lo que sugiere que la fecha de puesta depende de factores previos, como la temperatura (BOW, 2022).
10
Reproducción en la naturaleza
Poliginia, un nido sin forro en el suelo, nidadas de unos doce huevos, 23 días de incubación a cargo de la hembra y pollos que echan a correr horas después de nacer.
Las hembras son increíblemente buenas ponedoras, lo que ha llevado a criar esta especie de forma industrial con fines cinegéticos, ya que pueden poner hasta 70 huevos en una temporada, que se incuban durante 24 a 25 días.
En libertad, en cambio, la puesta es mucho menor: en su área nativa, Madge y McGowan dan 8–14 huevos por puesta (de 1 a 28 registrados), Delacour, 8–15 y BOW, 7–15 (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). El resto de este capítulo trata de la reproducción del faisán silvestre; la de las aves de granja y pajarera, en la que sí pueden alcanzarse las cifras de la ficha original, se trata en el capítulo de cría en cautividad (del Campo, 2006; Hernández García, 2014).
En cuanto a la puesta natural, la hembra silvestre suele poner entre 8 y 15 huevos por nidada, muy por debajo de las cifras alcanzadas en granjas cinegéticas mediante retirada sistemática de huevos. (Wikipedia)
Según Birds of the World, el faisán común cría desde principios o mediados de marzo hasta agosto en Norteamérica. Su sistema de apareamiento es la poliginia por defensa de harén: el macho, territorial, controla el acceso a un grupo de hembras (en China los harenes de 3-5 hembras se forman a mediados de febrero). La hembra elige el lugar, hace un nido sin forro o escasamente forrado (cuenco de unos 18 cm de diámetro y 7 cm de profundidad) y lo incuba sola. (BOW, 2022)
La nidada es normalmente de 7 a 15 huevos (de 2 a más de 23), con una media de 12,6 en los primeros nidos de Iowa y de 9,9 en las puestas de reposición. Los huevos miden de media 45 × 36 mm y pesan unos 33 g (31-35 g) en Europa. La incubación se cita como de 23-28 o 22-27 días, con unos 23 de promedio. Las cifras de la ficha del autor (hasta 70 huevos por temporada y 24 a 25 días de incubación) se refieren a la cría industrial. (BOW, 2022)
Los pollitos son nidífugos: pesan unos 18,5 g al nacer y la eclosión dura unas 12 h. Los alimentos de origen animal suponen el 74-100 % de su dieta las primeras 1-4 semanas, y permanecen con la hembra 70-80 días. Maduran sexualmente al año. (BOW, 2022)
Calendario de cría
La fenología es muy variable, tanto en el área nativa como en las introducidas, y depende de la edad de la hembra, de las temperaturas locales, de las prácticas agrícolas y de diferencias fisiológicas individuales (BOW, 2022). Johnsgard resume que en la mayor parte de su área en Norteamérica, el Paleártico occidental y Asia cría de principios o mediados de marzo a principios de junio, y que, debido a las repetidas puestas de reposición, la puesta y la eclosión pueden extenderse varios meses (Johnsgard, 1986).
EFMAMJJASOND
Jiangsu (China): formación de harenesa mediados de febrero, harenes de 3–5 hembras
Azerbaiyán: puestaabril y mayo
Turkmenistán: puestaabril
Amurland (Rusia oriental): puestamayo–junio
Europa occidental: puestasobre todo de principios de abril a principios de junio
Honshu (Japón central)abril–mayo (en el sur de Kyushu, desde mediados de marzo)
Alto Amu Daria (Tayikistán, 1943)canto máximo hacia el 15 de marzo; la mayoría de los nidos se hallaron en los últimos diez días de abril; primeros pollos el 8–10 de mayo
Yangtsé (Beebe)canto de finales de febrero a junio; eclosiones de abril a junio; un nido con huevos el 17 de febrero de 1910; pollos casi sin volar a finales de noviembre y el 24 de diciembre en Anhui
Norteamérica (general)de principios o mediados de marzo hasta agosto; pico de inicio de puesta a principios de mayo y de eclosión a mediados de junio (Wisconsin)
Dakota del Sur: incubacióndesde finales de abril, máximo a finales de mayo, hasta agosto; el 98 % de la cría de junio a septiembre
Nueva York: última puestahasta el 1 de agosto
Mes 1 = enero. Datos del hemisferio norte; en el hemisferio sur, según el criadero Chintaguay, la época de puesta va de mediados de septiembre a principios de diciembre.
La hembra selecciona el lugar del nido, normalmente a menos de 1 km del área de invernada y hacia los límites del área de prenidificación y del territorio de los machos asociados; los machos pueden reajustar sus límites para incluir los nidos de sus hembras si no son zonas reclamadas por otro macho (BOW, 2022; Johnsgard, 1986). Los nidos están casi siempre en el suelo, entre vegetación alta de hierbas, maleza o arbustos, en depresiones de 1–8 cm de profundidad; raramente en sitios elevados, como pilas de paja o viejos nidos de árboles de otras aves o ardillas (BOW, 2022; Johnsgard, 1986). En su área nativa, Kozlowa los halló en una mata de hierba, a veces bajo un arbusto o bajo un montón de ramas sueltas, y no siempre bien ocultos; algunos se ven de lejos (Delacour, 1977). El cuenco medio mide 18 cm de diámetro y 7 cm de profundidad, y el nido, unos 30 cm; los materiales son tallos y hojas de Erianthus u otra gramínea basta, con un forro de fragmentos de hierba más fina y plumón de la hembra (BOW, 2022; Delacour, 1977). Beebe describió que los nidos del Yangtsé están sobre lechos de agujas de pino y, como segunda opción, en una densa mata de hierba, y que nunca llevan material: las agujas o los tallos se aprietan por el peso del ave (Beebe, 1922 (vol. III)). BOW añade que la hembra no puede transportar material y que solo recoge lo que alcanza, lanzándolo hacia su cuerpo; que los primeros nidos suelen estar en zonas de hierba residual del año anterior y que no reutiliza nidos (BOW, 2022).
Rasgo del nido
Dato
Fuente
Lugar
Suelo, entre vegetación alta; a veces pilas de paja o nidos viejos de árboles
En Gran Bretaña prefiere el bosque y el matorral al comienzo de la cría y pasa a los campos de cereal más avanzada la temporada; en Norteamérica, la alfalfa y los bordes de caminos cubiertos de hierba (BOW, 2022).
Los huevos y el tamaño de la puesta
El huevo es subelíptico a oval, de color pardo oliváceo uniforme, a veces más oliváceo, pardo o gris azulado, con la superficie lisa y brillante; los tres primeros y los tres últimos huevos de las hembras de un año pueden tener la cáscara más clara que los intermedios (BOW, 2022). Pone un huevo cada 1,3–1,4 días; las hembras pasan 1–2 horas en el nido cuando ponen los dos primeros huevos y cada vez más a medida que la nidada crece; es frecuente que los primeros huevos caigan al azar y que haga varios intentos falsos de poner (BOW, 2022).
En el área nativa, de las nidadas de más de 18 huevos se piensa que son de dos hembras (BOW, 2022).
Puesta de reposición y segundas nidadas
Son reneadoras persistentes. Una hembra puede iniciar hasta cinco nidos en una temporada; BOW cita que, tras perder un nido, 4 hembras radiomarcadas de 74 (5,4 %) en Wisconsin y 3 de 12 (25 %) en Nueva York volvieron a anidar; Johnsgard recoge que el 57 % de 132 hembras molestadas o que abandonaron su primer nido hizo un segundo, y que el 7,5 % de las perturbadas en el segundo hizo un tercero; en otro estudio, el 69 % (32 de 47) de las hembras sin éxito renidificó una vez, el 41 % una segunda y una de 11 una tercera (BOW, 2022; Johnsgard, 1986). En conjunto, las gallinas hicieron 1,8 nidos de media, y se estima que el 75 % consiguió sacar una nidada (Johnsgard, 1986). La distancia media entre nidos sucesivos en Wisconsin fue de 396 m (rango 63–2.264; n = 46) y el 79 % cambió de tipo de cobertura (BOW, 2022). No hay pruebas, ni en Europa ni en Norteamérica, de que una hembra que ha criado con éxito una primera nidada intente una segunda; en Nueva Zelanda, donde el clima templado permite una de las temporadas más largas, se han citado casos de dos nidadas criadas hasta el volantón (BOW, 2022). Beebe, sin embargo, escribe que en Asia oriental las dos nidadas al año no son raras (Beebe, 1922 (vol. III)).
Incubación
La incuba solo la hembra, a partir del último huevo; Tegetmeier citó un caso de incubación por un macho; en condiciones naturales dura de 23 a 28 días (22–27 según otras fuentes), con un promedio de 23–23,5 días, y los periodos más largos se asocian con más molestias a la hembra (BOW, 2022; Johnsgard, 1986). Un estudio de Ohio contó entre 26 y 112 salidas de la hembra del nido en los 23–24 días de incubación, mientras que otros dos hallaron que la hembra sale solo una vez al día si no se la molesta; las pausas se concentran entre las 7:00 y las 9:30 y entre las 16:00 y las 18:00, y duran de media 55,1 minutos (rango 36–78); suele alimentarse a más de 50 m del nido (BOW, 2022). La fertilidad de los huevos en el campo es del 89–95 % en el Medio Oeste, y del 61,5 % en los huevos caídos; la incubabilidad baja del 75 % a 17 °C al 42 % a 31 °C, y los huevos no incubados toleran temperaturas de hasta –12 °C durante un total de 5,5 horas en periodos cortos (BOW, 2022). Kozlowa observó que, al comienzo de la incubación, la hembra se levanta fácil y en silencio, corre de diez a quince pasos y toma el vuelo, pero que nunca finge estar herida; a medida que se acerca la eclosión, se vuelve muy clueca y no revela su nido; si se la levanta dos o tres veces en dos días, lo abandona (Delacour, 1977).
La eclosión
El proceso dura unas 12 horas y es relativamente sincrónico, con una diferencia de 8–12 horas entre el pollo más viejo y el más joven; la hembra emite su llamada de maullido al final de la incubación; el pollo practica un agujero de unos 2 mm en el extremo grande y, unas horas después, una hendidura circular que casi rodea la cáscara; al salir, aparta con las patas el extremo romo y descansa hasta que el plumón se seca, 1–2 horas, antes de caminar; los nacidos por la mañana suelen dejar el nido por la tarde (BOW, 2022; Delacour, 1977). El diente de huevo cae al segundo día y al tercero se ven las vainas de las plumas del ala (BOW, 2022; Delacour, 1977).
Los pollos
Son precociales y nidífugos: nacen cubiertos de plumón, con los ojos abiertos y las patas bien desarrolladas, capaces de abandonar el nido y seguir a la hembra, y se alimentan prácticamente solos; pesan unos 18,5 g (22–24 g según Johnsgard), miden unos 7,6 cm de altura a la semana y a los 7–12 días ya hacen sus primeros vuelos cortos (BOW, 2022; Johnsgard, 1986). A las 3 semanas el ámbito de hogar se limita a 2–11 ha alrededor del nido; la distancia media entre dormideros nocturnos en Gran Bretaña, para pollos de hasta tres semanas, fue de 75 m (BOW, 2022). Su temperatura corporal regulada sube de 32 a 42 °C durante las dos primeras semanas, y a los 15 días la termorregulación no está del todo desarrollada; por eso es importante que la hembra los empolle con frío, lluvia y de noche, y la exposición repetida de pollos de menos de 7 días a temperaturas moderadas de 20–25 °C puede retrasar la resistencia al frío y aumentar la mortalidad (BOW, 2022). La hembra los lleva a zonas de alimentación adecuadas, donde se alimentan por sí mismos; en las 1–4 primeras semanas, el 74–100 % de la dieta es animal (BOW, 2022). Hacia los 70–80 días, la nidada se independiza, y los jóvenes pasan al área de invernada a fines del otoño o principios del invierno (BOW, 2022). En la ficha original los pollos se describen como «grises, con rayas negras por el cuerpo» (Hernández García, 2014).
62,3 % en bloques de hábitat no perturbados frente a 44,8 % en hábitats pequeños, lineales o perturbados (Iowa); 23 % en zonas de control y 53 % tras eliminar depredadores (Idaho); 18,6 % y 28,9 % (Minnesota; n = 843 nidos); 20–25 % en campos de heno de Illinois y 60 % en pequeños cereales
De 52 nidos de hembras silvestres eclosionó el 49 %, y de 30 de hembras criadas a mano solo el 22 %; en 450 nidos, supervivencia del nido de la puesta del 28 %, de la incubación del 37 % y global del 10 %
Estimación general: 10 huevos × 0,25 de éxito de eclosión × 0,65 de supervivencia de los pollos = 1,6 pollos que llegan a las 6 semanas por hembra y año
En Illinois, hasta las 5–6 semanas, del 78 % en los años 1950 al 54 % a finales de los 70; en el norte de Iowa, la mortalidad aumenta un 2,3 % por cada día de eclosión tras la fecha mediana (15 de junio) y baja un 10 % por cada gramo de masa al nacer por encima de la media
La reproducción del faisán silvestre fuera de su área nativa es la mejor conocida; en la nativa casi no se dispone de cifras (BOW, 2022; Johnsgard, 1986).
Reproducción y manejo de la población
La alta variabilidad del éxito de cría explica en gran parte que las poblaciones fluctúen de forma drástica con el clima y con los cambios del paisaje agrícola. BOW concluye que los principales reguladores de la población son el éxito reproductivo, la depredación y la supervivencia invernal; que la productividad anual (relación entre la densidad otoñal y la población primaveral) está inversamente correlacionada con la densidad de reproductores en Wisconsin y Utah; y que la supervivencia invernal no depende de la densidad en Wisconsin ni en el norte de Iowa (BOW, 2022). Los efectos concretos sobre la población, desde las segadoras de heno a la depredación de nidos, se tratan en el capítulo de amenazas (BOW, 2022).
11
Cría en cautividad
La especie ornamental más fácil de criar y la base de una industria cinegética mundial; nerviosa, picadora y comedora de huevos, pero rústica y fértil desde el primer año.
La incubación natural por parte de la hembra resulta compleja, ya que se trata de faisanes muy nerviosos.
Eso no impide que el faisán común sea, con el dorado, la especie más fácil de reproducir en cautividad: es rústico, madura a los pocos meses, pone muchos huevos si se le retiran y su crianza está bien resuelta tanto en pequeñas pajareras como a escala industrial (del Campo, 2006; Delacour, 1977; Gerrits, 1974). Delacour escribe que los faisanes verdaderos son muy fáciles de mantener y de criar, que hoy se crían en gran escala para repoblación y para mercado, sobre todo en Estados Unidos, y que las técnicas varían según los lugares pero han llegado a un alto grado de eficacia (Delacour, 1977). El criadero Chintaguay añade que la mayoría de los criadores empieza con el faisán común o de collar (Phasianus colchicus torquatus) por la facilidad con que se encuentra, la rapidez con que se reproduce, su resistencia a distintas condiciones ambientales, su bajo costo y la versatilidad de sus destinos: carne, huevos, caza y ornamento (del Campo, 2006).
Una especie para empezar, con matices
Para el criadero Chintaguay, los faisanes comunes son los más baratos porque tardan una sola temporada en ser fértiles (con un manejo correcto, el faisán de collar es fértil a los 9 meses, mientras que la mayoría de las especies ornamentales lo son al segundo año de vida) y cada hembra pone entre 30 y 60 huevos según las condiciones; recomienda empezar con 2 docenas de huevos, en dos tandas por si falla alguna incubación, o con 1 o 2 machos (el segundo, para renovar la sangre a mitad de temporada) y de 3 a 5 hembras de buena sangre, no emparentadas (del Campo, 2006). Gerrits no los considera ideales para la pajarera ornamental, porque son tímidos y, al levantar el vuelo de golpe cuando alguien se acerca, se encuentran en las pajareras aves con la cabeza dañada; si se mantienen solo como adorno, recomienda domesticarlos o cortarles un ala (Gerrits, 1974). Delacour da el mismo consejo: criarlos a mano, domesticarlos y cortarles un ala (pinzado) para evitar accidentes por sobresaltos (Delacour, 1977). Howman los considera aves de caza más que de pajarera, de modo que no los describe, y señala solo que son casi tan bellas como cualquier faisán ornamental y que, por la intervención del hombre, muchas subespecies puras ya no lo son; su ejemplo es el faisán de Formosa, cruzado con los de collar chino soltados en la isla (Howman, 1979; Howman, 1993; Howman, 1996).
Parámetro
Valor
Fuente
Madurez sexual
Un año (ambos sexos); fértil a los 9 meses con manejo y alimentación adecuados
40–80 si se retiran para incubarlos con madres sustitutas o incubadora (tabla de postura); 30–60 (guía de inicio); 8–12 en libre naturaleza; 30–40 de media en grandes corrales de producción
23–24 días (Chintaguay); 24–25 días (Gerrits, para los faisanes de collar, de Mongolia, de cuello negro, de Formosa y el melánico); 22–25 días y 8–14 huevos (cuadro del libro del autor)
Los datos de manejo de hace medio siglo son experiencias históricas, no pauta actual; los parámetros de incubación son los de criaderos modernos (del Campo, 2006; Delacour, 1977; Gerrits, 1974).
Alojamiento y manejo de los reproductores
Delacour aconseja, para la producción masiva, mantener varios machos con muchas más hembras en grandes recintos, pero señala que los mejores resultados se obtienen con un macho y varias hembras aislados en un corral pequeño (Delacour, 1977). Gerrits y el criadero Chintaguay, con un macho y varias hembras (el criadero cifra en un harén de tres o cuatro hembras la proporción habitual) (del Campo, 2006; Gerrits, 1974). Delacour señala, además, que como aves de pajarera son nerviosos y bruscos, que tienden a lanzarse contra la malla y a dañarse la cabeza, y que conviene el pinzado (Delacour, 1977). En los grandes corrales de producción, Delacour (1978) describe un sistema de pocos animales por corral y otro con corrales grandes, con comederos y bebederos comerciales repartidos, cobertizos de tallos de maíz para sombra y abrigo y bebederos cubiertos para evitar contaminación; las gallinas ponen unos pocos huevos en abril, no se espera una producción alta hasta mediados de mayo, y suelen promediar 30–40 huevos (Delacour, 1978). Para los pollos, recomienda corrales de abrigo de 12 × 12 × 6 pies (con las casetas pequeñas) o de 12 × 24 × 6 pies (con la casa grande), con tablas al menos a dos pies del suelo contra lluvias y corrientes, y malla de una pulgada (Delacour, 1978). El criadero Chintaguay recuerda que el espacio mínimo aconsejable es de 2 m² por adulto, y que los nidos de los faisanes de collar, que ponen en el suelo y se acostumbran con dificultad a un nido elevado, deben estar a baja altura o a ras de suelo, a diferencia de los de otras especies, que se colocan a un metro; por eso conviene tener más de un nido, a distintas alturas (del Campo, 2006).
Ovofagia y picaje
La ovofagia, el vicio de picar y comerse los huevos, se da principalmente en dos especies, el faisán común o de collar y el plateado, y coincide con que ambos suelen poner sus huevos en el suelo; Chintaguay anota que solo los dorados y los venerados, entre las especies comunes, rara vez muestran esa tendencia, y recomienda recoger los huevos con frecuencia, dar nidos adecuados, una ración con proteína y calcio y espacio suficiente (del Campo, 2006). El picaje y el canibalismo son especialmente frecuentes en los faisanes comunes y en los venerados; pueden aparecer a cualquier edad, aunque más en las mudas, sobre todo en el primer mes de vida y entre los 3 y los 4 meses; sus causas son la falta de espacio, el exceso de calor, la comida insuficiente en calidad (sobre todo escasa en proteína) o en cantidad, el exceso de luz, la presencia de pollos más pequeños o débiles y la mezcla de especies: cuando los faisanes comunes comparten lote con especies de Lophura, las carúnculas rojas bajo los ojos de estas llaman la atención de los comunes y estos les picotean la cara (del Campo, 2006). Se previenen con luz roja o azul en las criadoras (calma y disimula la sangre), con comida en varios puntos y con lotes homogéneos de edad y tamaño (del Campo, 2006). Gerrits añade que el picoteo puede llegar a matar a los pollos y que se debe a falta de espacio, de proteínas o de fibra (Gerrits, 1974).
Incubación natural, con gallina y artificial
Delacour (1978), en su manual para criar faisanes en general, trata las gallinas como incubadoras: las mejores nodrizas son las gallinas bantam, que no aplastan las cáscaras finas; los huevos deben ponerse antes de los diez días, lo más frescos posible, almacenados con la punta hacia abajo a 50–60 grados Fahrenheit (10–15,6 °C); los huevos de los faisanes de caza se rocían a diario con agua tibia desde el día 21 hasta que empiezan a picar, justo antes de devolver la gallina al nido, y se rocían más veces con tiempo muy seco; y hay que espolvorear a las gallinas contra piojos, pulgas y garrapatas para que no pierdan los pollos (Delacour, 1978). La gallina faisán incuba por sí sola, pero la incubación natural es compleja, por el nerviosismo, y por eso la práctica habitual es la incubación artificial y la crianza con criadora, o con gallinas sedosas o cochinchinas enanas como nodrizas en una jaula de malla de 1 cm como máximo, porque los pollos de faisán se escapan de una malla de gallinero normal (del Campo, 2006). Gerrits recoge una tabla de tiempos de eclosión del American Game Bird Park de Salt Lake City: 24–25 días para el faisán de cuello negro, el de Mongolia, el anillado de Formosa y el mutante melánico, frente a 23–24 para el dorado y el de Lady Amherst y 27–28 para los tragopanes (Gerrits, 1974).
Fase
Valor recomendado
Fuente
Conservación de los huevos antes de incubar
13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo; incubar antes de 10 días (mejor 7)
Los parámetros de incubación son los de criaderos actuales y valen, con la duración propia de cada especie, para casi todos los faisanes (del Campo, 2006).
Crianza de los pollos
El criadero Chintaguay divide la crianza en tres etapas: cría (hasta el mes de vida, la más crítica, en criadora con calor, con una mortalidad esperable del 5 al 10 %), recría (de los 30 a los 70 días, en jaulas bajas a la intemperie con un refugio con calor) y terminación (a partir de los dos meses, con el espacio de un adulto) (del Campo, 2006). Delacour (1978) ilustra el crecimiento de los pollos de Mongolia en una serie de fotos a los dos días, ocho días, cinco semanas, siete semanas y un año (Delacour, 1978); Gerrits advierte de que, en una criadora de lámpara, la temperatura en el suelo bajo ella no debe pasar de 40 °C (105 °F) (Gerrits, 1974). El libro del autor muestra una serie de pollos de la ficha original con su peso a cada edad: recién nacido, 22 g; 1 día, 21 g; 3 días, 27 g; 5 días, 37 g; 7 días, 48 g; 10 días, 76 g; 15 días, 126 g; 21 días, 197 g; 30 días, 322 g; y 45 días, 487 g (Hernández García, 2014).
Semana
Días
Temperatura
Dónde
1
1–2
36 °C
Nacedora
1
2–7
32 °C
Criadora
2
8–14
30 °C
Criadora
3
15–21
28 °C
Criadora
4
22–28
26 °C
Criadora
5
29–35
24 °C
Jaula de recría (calor solo de noche durante la primera semana)
6–8
36–56
sin aporte
Jaula de recría
Pauta de calor suplementario del criadero Chintaguay; lo decisivo es observar a las aves: si se amontonan bajo la fuente de calor, tienen frío; si jadean y se alejan, calor (del Campo, 2006).
35–40aves por m² en la criadora
3–4aves por m² en la recría (30–70 días)
1–2m² por ave desde los dos meses
2bombillas rojas por criadora, por seguridad
Otros detalles prácticos: el agua se cambia dos veces al día y debe estar en un bebedero donde los pollos no se mojen (basta un plato con canicas); su plumaje no es impermeable y no regulan la temperatura hasta aproximadamente el mes y medio; la luz roja los calma y disimula la sangre; los pollos de distinto tamaño no deben criarse juntos; y la comida se reparte por el suelo y en varios puntos durante la primera semana (del Campo, 2006). Gerrits advierte de que los dedos torcidos, que aparecen entre los pocos días y las seis semanas, se deben a carencias de minerales en la dieta de pollos y padres, a hacinamiento y a veces a una temperatura demasiado alta en la incubadora, y no a la consanguinidad, como se creía (Gerrits, 1974). Los pollos pueden llevarse con la gallina nodriza a una corraleta que se traslada cada día a un lugar nuevo de césped (Gerrits, 1974).
Alimentación en cautividad
El libro del autor indica que estos faisanes pueden alimentarse con un buen pienso para faisanes acompañado de frutas (manzana, peras), hojas, insectos y frutos secos (Hernández García, 2014). El criadero Chintaguay, en su guía de alimentación, recuerda que los alimentos deben aportar proteínas, energía, minerales y vitaminas, y que la proteína es fundamental para el desarrollo del cuerpo y para engordar (del Campo, 2006). Para los pollos, BOW fija el 18–24 % de proteína bruta como umbral por debajo del cual el crecimiento se frena durante las tres o cuatro primeras semanas (BOW, 2022). Delacour (1978) da, para los faisanes de caza en invierno, una mezcla ordinaria de dos partes de maíz desgranado por una de trigo, a veces con algo de trigo sarraceno, con un 2 % de grava de gallinero; estaciones de alimentación junto a buena cobertura, de mazorcas de maíz, tolvas con cobertizo o postes con mazorcas clavadas; y recomienda el maíz en pie como parcela de alimentación más fiable (Delacour, 1978).
Faisán de carne y de caza: «Jumbo» y variedades de producción
El criadero Chintaguay explica que «Jumbo» no es una subespecie, sino una variedad de producción de P. c. torquatus creada al terminar la Segunda Guerra Mundial por I. J. Perkins y su esposa en Oconomowoc (Wisconsin), seleccionando cada año a los ejemplares más grandes durante varias generaciones hasta obtener aves de más de 7 libras (más de 3,17 kg), base de muchas granjas comerciales de carne; según el criadero, son morfológicamente iguales al faisán de collar común, crecen más rápido (listos para faenar a los 6–7 meses), pesan 300–500 g más y tienen una carne más tierna, el equivalente a un pollo «broiler» (del Campo, 2006). Existe, además, una variedad blanca, no albina, desarrollada para criaderos intensivos (del Campo, 2006). El criadero también recuerda que la carne del faisán es suave, de sabor fino, magra y de bajo colesterol, más oscura y firme que la del pollo, y que para que el ave tenga éxito culinario debe ser joven, algo que se comprueba por las patas grises, el esternón y el pico flexibles y las puntas de las plumas largas del ala, que son puntiagudas en los jóvenes y se redondean con la edad; la carne, como la del pato y la perdiz, contiene purinas y no conviene a personas con gota (del Campo, 2006). Los huevos de faisán de collar son también apreciados en cocina, por su bajo colesterol y un sabor parecido al del huevo de codorniz, aunque mayores (del Campo, 2006).
Cría para sueltas y gestión cinegética
La industria de repoblación se basa en la cría masiva del faisán. BOW cita para el Reino Unido unos 35 millones de aves liberadas cada año, de las que unos 15 millones se abaten; BirdLife, más de 40 millones; y el plan de acción de los faisanes, 22 millones de aves cobradas en Europa y 9,5 millones en Norteamérica (BirdLife, 2025; BOW, 2022; Fuller y Garson, 2000). Hill y Robertson (1986) compararon los faisanes criados a mano con los silvestres (Ashrafzadeh et al., 2021); BOW añade que de 52 nidos de hembras silvestres eclosionó el 49 % de los huevos, y de 30 nidos de hembras criadas a mano solo el 22 %, en gran parte por abandono (BOW, 2022). Ashrafzadeh y colaboradores advierten de que las aves liberadas, en su mayoría de origen no local y criadas en granja, pueden tener baja diversidad genética, alelos maladaptativos y menor aptitud, que suelen ser eliminadas pronto por cazadores y depredadores y que su mayor impacto puede ser la transmisión de enfermedades y parásitos (Ashrafzadeh et al., 2021). Delacour (1978) recomienda, para soltar aves en cotos, transportarlas en cajas bien ventiladas y acolchadas por arriba, sin manipularlas, instalar una tolva con alimento, y no abrir la compuerta hasta que se hayan calmado (Delacour, 1978).
Ficha técnica de incubación y fallos de eclosión
El apéndice práctico del segundo volumen del libro del autor reúne el número de huevos, los días de incubación, la época de puesta en cada hemisferio y la edad de madurez sexual de los faisanes tratados; para el faisán común figuran 8–14 huevos, 22–25 días de incubación, puesta a principios de marzo en el hemisferio norte y a principios de septiembre en el sur, y madurez a 1 año; para el faisán verde, 6–15 huevos, 24–25 días y las mismas épocas (Hernández García, 2014). La tabla de postura del criadero Chintaguay coincide en la época y da 40–80 huevos, 23–24 días de incubación y madurez a 1 año para el faisán común (del Campo, 2006). El apéndice incluye además una lista general de causas de los fallos de eclosión (Hernández García, 2014):
Lo que se observa
Causas probables según el libro
Muchos huevos claros
Huevos guardados demasiado tiempo o en malas condiciones; mala temperatura, sobre todo sobrecalentamiento en los primeros días
Muchos embriones muertos
Temperatura demasiado alta o baja al comienzo; volteo incorrecto; aireación defectuosa
Huevos picados con el pollo muerto dentro
Humedad insuficiente en la incubadora o la nacedora; desinfección incorrecta; aireación defectuosa; temperatura demasiado baja
Nacimientos tardíos
Temperatura muy baja en la incubadora; almacenamiento muy prolongado de los huevos
Pollos con patas y dedos torcidos
Temperatura elevada en la nacedora; humedad muy baja en la incubadora; volteo incorrecto
Pollos pequeños, débiles o blandos
Huevos pequeños, humedad muy baja, temperatura muy alta o muy baja, aireación insuficiente
El apéndice sanitario del libro, redactado con el veterinario Antonio García Montané, trata las enfermedades comunes de los faisanes de pajarera sin distinguir especies, salvo la capilariosis, descrita en el faisán común; dominan las parasitarias, a las que se suma el síndrome de enteritis transmisible (Hernández García, 2014). Delacour (1978) añade para los faisanes de cuello anillado la singamosis (gusano de la horquilla) como problema serio en Connecticut, la coccidiosis por Eimeria phasiani (que afecta solo a faisanes) y por E. dispera (también codornices), y la encefalomielitis equina, con una vacuna preventiva en verano (Delacour, 1978). BOW enumera la enfermedad de Newcastle, los arbovirus, la viruela, la salmonelosis, el cólera aviar, la tuberculosis, la enteritis ulcerosa, el botulismo, la aspergilosis y la candidiasis entre las que afectan a faisanes de granja cinegética, y señala que la enteritis ulcerosa, el Newcastle, la coccidiosis y el botulismo plantean graves problemas a las granjas que crían para soltar (BOW, 2022).
Enfermedad
Rasgos
Prevención y tratamiento según el libro
Coccidiosis
La más frecuente, a cualquier edad y grave en el pollo; diarrea amarillo verdosa, luego parda y a veces sanguinolenta; se contagia por heces sobre la comida o el agua; los ooquistes resisten de 15 a 20 meses en el suelo
Suelo seco y limpio, rotar los parques, lotes homogéneos y sin sobredensidad; sulfamidas en dos o tres periodos, con vitaminas
Tricomoniasis
Protozoo asociado a la coccidiosis; diarrea amarilla y espumosa; mortalidad que puede llegar al 40 % del lote
Desparasitación preventiva; dimetridazol o ronidazol
Capilariosis
Descrita en el faisán común; verano y otoño, animales de más de 6 semanas; lotes flacos y diarrea amarilla
Higiene del terreno; mebendazol en el alimento; levamisol en el agua
Singamosis (pico abierto)
Gusanos que obstruyen la tráquea del pollo; sobrepoblación y suelos húmedos
Nitroxinil con mebendazol; sulfato de hierro, cal viva y reposición de la tierra
Síndrome de enteritis transmisible
Ligado a la cría intensiva; diarreas pardas y malolientes
Higiene, rotación de parques, vitaminas y oligoelementos; antibióticos elegidos en laboratorio
Salmonelosis y pasteurelosis
Muy resistentes en el medio; pueden acabar del 20 al 80 % de los afectados; el cólera aviar sobreagudo mata a la mitad en 4–5 horas
Antibióticos selectivos; desratizar, higiene rigurosa de los huevos
Resumen del apéndice «Enfermedades aviarias comunes del faisán» (Hernández García, 2014).
12
Estado de conservación
Una de las aves de caza más abundantes del mundo, con poblaciones nativas poco conocidas y algunas subespecies al borde de la desaparición.
El faisán común está catalogado como de Preocupación Menor (LC) por la UICN: la especie tiene un área de presencia de unos 20,9 millones de km², una población que BirdLife sitúa en decenas de millones de aves y no se acerca a los umbrales de amenaza; pero esa buena salud global oculta la situación mucho peor de algunas subespecies (BirdLife, 2025; BOW, 2022).
LC
Preocupación menor
Población estable y extendida. Región: Asia central y oriental.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La evaluación de la UICN
La última evaluación de la UICN, realizada por BirdLife International, es de 2025 y mantiene la categoría de Preocupación Menor (BirdLife, 2025). La justificación es que la especie tiene un área extremadamente grande, por lo que no se acerca a los umbrales de Vulnerable del criterio de tamaño del área (menos de 20.000 km² de extensión con declive o fluctuación y pocas localidades o fragmentación grave); que la población no se ha cuantificado, pero no se cree que se acerque a los umbrales de población (menos de 10.000 individuos maduros con declive continuo); y que la tendencia es desconocida, pero no se cree que descienda con la rapidez suficiente para acercarse a los umbrales del criterio de tendencia (más de un 30 % en diez años o tres generaciones) (BirdLife, 2025). La longitud generacional es de 4,4 años (BirdLife, 2025).
Año de la evaluación
Categoría UICN
Observaciones
2025
Preocupación Menor (LC)
Evaluación vigente; Galliformes Specialist Group de la CSE de la UICN como grupo de especialistas
2016
Preocupación Menor (LC)
2014
Preocupación Menor (LC)
Primera evaluación de la especie ya separada del faisán verde
2012, 2008, 2004, 2000, 1994, 1988
«No reconocida»
La especie se consideraba conespecífica del faisán verde (Sibley y Monroe, 1990 y 1993) y no se evaluaba por separado
2000 (plan de acción de los faisanes)
Riesgo bajo, preocupación menor (lc)
Fuller y Garson: «cobertura nativa muy amplia y ampliamente introducida» (Fuller y Garson, 2000)
A escala regional, BirdLife incluye dos evaluaciones: «Europa» (2021), en Preocupación Menor, y «UE27 + Reino Unido» (2021), en «En Peligro» con el criterio D, tal como figura en su ficha; la ficha no explica el motivo de la diferencia, aunque recuerda que la población silvestre de Europa se estima en solo 4.800–8.200 parejas, frente a 3.160.000–4.280.000 parejas de aves no nativas (BirdLife, 2025). Son categorías regionales, que no modifican la global.
Probablemente más de 50 millones, con cosechas anuales de casi 20 millones en Norteamérica y más de 7 millones de aves criadas liberadas cada año en Gran Bretaña
1,5–1,6 millones de adultos en 1989 (al menos seis subespecies); 1,8–1,9 millones en 2000; 2,3 millones de hembras reproductoras; 35 millones de aves liberadas al año (BOW) o más de 40 millones (BirdLife)
9.927.200 gallinas en la primavera de 1986 (19.763.800 en 1971); más de 10 millones según otras fuentes; 17 millones de aves (Partners in Flight, 2021, según BirdLife)
Las estimaciones no son comparables: unas cuentan aves, otras adultos, parejas, hembras o territorios, y mezclan aves silvestres y soltadas (BirdLife, 2025; BOW, 2022). En Norteamérica la mayoría de los recuentos son índices (llamadas de primavera, recuentos en carretera) de los que no se obtienen cifras absolutas (BOW, 2022).
Tendencias
Debido a la escasez de datos de Asia, donde vive la mayoría de los faisanes comunes del mundo, es imposible evaluar la tendencia global (BOW, 2022). En Europa, la población se considera en aumento (BOW, BirdLife) (BirdLife, 2025; BOW, 2022); en Nueva Zelanda es estable; en Taiwán, en descenso, sobre todo en el noroeste, en parte por la pérdida de hábitat de tierras bajas con el desarrollo (BOW, 2022). En Norteamérica la población alcanzó probablemente su máximo entre los años treinta y cincuenta; entre 1966 y 1998 hubo un descenso modesto pero constante (−1,1 % anual; una pérdida total del 30 % en 30 años) y de 1971 a 1986 una caída estimada del 50 % de las gallinas (del 33 % en el Medio Oeste y del 67 % en el resto), seguida de un aumento del 1,4 % anual entre 2001 y 2011 (BOW, 2022). Las poblaciones fluctúan con el clima, pero las tendencias a largo plazo dependen sobre todo de los cambios en el hábitat: en Dakota del Sur hubo una relación directa entre la población estatal y la cobertura permanente de los programas de bancos de suelo, y en Iowa, entre 1940 y 1973, una caída de la cobertura potencial de nidificación del 59 % al 14 % acompañó una caída del 90 % de la población otoñal (BOW, 2022).
Subespecies: donde la preocupación es real
BOW advierte de que hace falta poner más atención en la conservación a nivel de subespecie (BOW, 2022). Las siguientes son las citas disponibles, con la advertencia de que muchas subespecies asiáticas no se han evaluado en décadas (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Subespecie
Situación según las fuentes
Fuente
talischensis (Azerbaiyán, noroeste de Irán)
Al borde de la extinción por caza incontrolada (unas 40.000 aves capturadas al año por cazadores en los años cuarenta y cincuenta) y pérdida de hábitat; 200–300 individuos, quizá algo bajo, porque en 2015 se detectaron 122 machos en Gilan (Irán)
Muy rara en Kazajistán, con pocos registros recientes y extinciones locales; hay un programa de reintroducción en marcha. Beebe recuerda que se exterminó entre Stavropol y Georgievsk a finales del siglo XIX
En descenso por hibridación con aves introducidas de otras subespecies; en Grecia queda una población autóctona de 150 aves en el delta del Nestos; persisten aves puras en Daguestán y a lo largo del Aras; se cree que desaparecieron de Bulgaria por mestizaje
La web señala, además, de vlangalii (Zaidam) que hay muy pocos testimonios y que algunos autores chinos sugieren que pudo extinguirse (Hernández García, 2014). Las demás subespecies se tratan una por una en el capítulo de subespecies.
Más de 7 millones de aves criadas liberadas cada año (1986); 15–20 millones en 1989; 35 millones (BOW) o más de 40 millones (BirdLife) a principios del siglo XXI, de las que unos 15 millones se abaten
La mayor parte de lo que se caza fuera de Asia son aves criadas y soltadas; lo que se sabe de la caza en el área nativa es poco (BOW, 2022; Johnsgard, 1986).
Protección legal y seguimiento
En Europa, el faisán común está incluido en los anexos II y III de la Directiva de Aves de la UE (que lo permite como especie cazable), y no se conocen medidas de conservación específicas para él; BirdLife propone investigar y seguir la situación de la subespecie talischensis para informar futuras medidas (BirdLife, 2025). Hay esquemas de seguimiento sistemático en al menos algunos países europeos, por medio de censos de aves reproductoras, y se han identificado sitios de conservación en todo su rango; no existen plan de recuperación, plan de gestión de la caza ni programa de conservación ex situ (BirdLife, 2025). En cautividad, el libro del autor lo incluye en la categoría «no recomendado» de los planes de conservación ex situ, porque los ejemplares son abundantes y no precisan acción (Hernández García, 2014). El plan de acción de los faisanes de la UICN y la WPA lo cuenta entre las 26 especies de riesgo bajo, «muy amplio rango nativo y ampliamente introducido» (Fuller y Garson, 2000).
13
Amenazas y protección
Menos setos y más monocultivo, siegas tempranas, atropellos, caza, hibridación y una mortalidad invernal que puede arrasar poblaciones enteras.
Las amenazas del faisán común dependen de dónde viva: en las áreas introducidas lo que decide la población es el paisaje agrícola (cobertura de nidos, segadoras, pesticidas, depredadores); en su área nativa, que es poco conocida, la pérdida de hábitat, la caza y, para las subespecies pequeñas, la hibridación con aves introducidas (BirdLife, 2025; BOW, 2022).
Pérdida y degradación del hábitat
Las poblaciones más elevadas de faisanes se encuentran en regiones con numerosas granjas pequeñas, cultivos y ganadería diversificados y muchas manchas de hábitat ocioso; eso era común en la posguerra de los años cincuenta y sesenta. BOW enumera los cambios que han degradado ese hábitat: (1) la transición de pequeñas granjas diversificadas a grandes granjas con campos mayores y menos cultivos; (2) la pérdida de hábitat en los bordes de los campos; (3) la pérdida de humedales por drenaje y conversión a tierras de labor; (4) el uso creciente de pesticidas; (5) la transición a prácticas agrícolas «limpias» (quema, fumigación de malas hierbas, siega de los bordes de carreteras); (6) el adelanto de las fechas de siega del heno; y (7) el aumento del ganado, con sobrepastoreo y mayor uso de fertilizantes y herbicidas (BOW, 2022). Todo ello ha supuesto pérdida de hábitat de nidificación, menor éxito de los nidos, menor supervivencia de las crías y más mortalidad invernal (BOW, 2022). En Illinois, la supervivencia de los pollos hasta las 5–6 semanas cayó del 78 % en los años cincuenta al 54 % a finales de los setenta, y siguió baja en los ochenta y noventa pese a la conversión de millones de hectáreas de cultivos en hilera en tierras del Programa de Reservas de Conservación (BOW, 2022). En Alemania, la población disminuye desde los años setenta y más deprisa desde el invierno de 2007–2008; el estudio de pollos de hasta 11 semanas halló mala nutrición e inflamaciones por patógenos facultativos, de modo que la peor nutrición quizá debilite las defensas (BOW, 2022).
En Asia, Delacour constataba que en los últimos treinta años la especie había sido destruida o muy reducida en muchas partes de China donde antes era abundante, sobre todo cerca de las grandes ciudades, y temía que las condiciones adversas fueran a más; BOW indica que en Taiwán la población disminuye, en parte por la pérdida de hábitat de las tierras bajas con el desarrollo (BOW, 2022; Delacour, 1977). Beebe, en cambio, observó que la deforestación y el cultivo de arrozales favorecen a los faisanes del Yangtsé, aunque la compensación es el mayor número de cazadores (Beebe, 1922 (vol. III)).
Caza
En las áreas introducidas se caza solo a los machos, lo que probablemente constituye una proporción significativa de la mortalidad anual de estos, aunque son pocos los estudios que demuestren que la caza limite las poblaciones. Petrides estimó que los cazadores cobraban el 70 % de los machos en una zona de Michigan; en Utah, en un área de 3.764 ha, la población osciló entre 3.399 y 5.545 aves en ocho años y la captura de gallos fue de 1.151 (82 % de los machos) a 2.192 (76 %); en Dakota del Sur, los cazadores abatieron 7 millones de aves en 1945 y 460.000 en 1966 (BOW, 2022). La caza se rige por una ley de rendimientos decrecientes (cuando las poblaciones son bajas, la mayoría de los cazadores obtiene muy poco) y, como los faisanes son poliginios, casi todas las gallinas tienen acceso a machos aunque la proporción de sexos esté sesgada (BOW, 2022). En Iowa y Minnesota, durante 14 años, no hubo diferencias de tendencia pese a las temporadas más largas de Iowa (BOW, 2022). En el noroeste de Texas, en cambio, una temporada más larga se asoció a menor supervivencia, aunque los faisanes se concentraban en solo el 2–7 % del territorio en diciembre (BOW, 2022).
En el área nativa, la caza puede ser decisiva para las poblaciones pequeñas: las unas 40.000 aves capturadas al año por cazadores en Azerbaiyán en los años cuarenta y cincuenta pusieron a talischensis al borde de la extinción, y BirdLife destaca que en algunas zonas la especie declina por la caza excesiva y la pérdida de hábitat (BirdLife, 2025; BOW, 2022). Beebe describe los métodos que se usaban en China a principios del siglo XX: el lazo de crin de caballo sujeto a un trozo de bambú doblado, redes de gran extensión por las que se conduce a las aves, y hembras vivas atadas a una estaca como señuelo para atraer a los machos, que son abatidos al acercarse; los faisanes se vendían en los puertos de tratado y en noviembre y diciembre se enviaban a Europa de 48.000 a 60.000 faisanes congelados solo desde Hankow; y los extranjeros mataban muchas más hembras que machos porque no distinguían los sexos al levantarse (Beebe, 1922 (vol. III)). Según Beebe, existían leyes chinas para proteger la caza, algunas de la época de Kublai Khan, con penas muy severas, que casi nunca se cumplían: los cazadores imperiales solo podían matar un número fijo de aves por distrito y estaba prohibido matar hembras (Beebe, 1922 (vol. III)). En Mongolia, los inviernos de hasta −40 °C pueden causar mortalidades masivas (BOW, 2022).
Hibridación y pérdida de la pureza genética
En la parte occidental del área nativa, P. c. colchicus ha disminuido por la hibridación con faisanes introducidos de otras subespecies, y se cree que las aves nativas de Bulgaria desaparecieron por mestizaje (Ashrafzadeh et al., 2021; BOW, 2022). En Taiwán, formosanus puede no existir ya en estado puro por la hibridación con otras subespecies (BOW, 2022). Delacour cuenta cómo el faisán Príncipe de Gales, soltado en Hampshire en 1903 para repoblar los cotos de su importador, «se desvaneció» pronto por hibridación con los de cuello negro y otros, y cómo una cepa pura mantenida en pajareras duró hasta 1914 y había desaparecido por completo a finales de la Primera Guerra Mundial (Delacour, 1977). El anillado de Formosa, importado en 1907, se cruzó en libertad con otras formas y difiere demasiado poco de torquatus para mantener su pureza en los cotos (Delacour, 1977). Y Howman señala que el faisán de Formosa se ha cruzado con los de collar chino soltados en la isla (Howman, 1979; Howman, 1993; Howman, 1996). Según Wikipedia, muchas subespecies están en peligro de desaparecer por hibridación con aves introducidas (Wikipedia). Para el conjunto de las poblaciones de caza de Europa, el estudio de Ashrafzadeh y colaboradores halla que las sueltas de aves criadas en cautividad no han creado linajes distintos de los dos conocidos (grupos colchicus y mongolicus), pero que el efecto genético de las sueltas puede alcanzar un área mucho mayor que la que cabría predecir con el ámbito de hogar de las aves, y recomienda tenerlo en cuenta al gestionar las poblaciones (Ashrafzadeh et al., 2021).
Siegas, atropellos y otras pérdidas ligadas al paisaje
La mortalidad causada por las segadoras de heno es muy alta en la mayoría de las poblaciones: las gallinas se sienten atraídas por los campos de hierba y alfalfa para anidar, y el corte suele producirse antes de la eclosión (BOW, 2022). En Ohio, la mortalidad de gallinas por las segadoras puede igualar a la de gallos durante la temporada de caza; en un área de 80.000 ha, casi un tercio de las gallinas que anidaban en campos de heno murió por las máquinas; en Minnesota se notificaron más de 5.000 gallinas muertas en una temporada en dos condados; y en Illinois, de 1.104 nidos, la siega redujo el éxito en un 22 %, las hembras fueron golpeadas en el 65 % de los nidos en campos de heno y solo una de cada siete golpeadas sobrevivió al verano (BOW, 2022). Los atropellos son otra fuente importante: en Ohio se calculó que los automóviles mataban 2 faisanes por km² de campo; en Nebraska, 7.195 en un tramo de 732 km de la interestatal 80 durante 7 años, con el máximo en abril y mayo; y en el Reino Unido, entre el 5 y el 13 % de los faisanes mueren atropellados (BOW, 2022).
Plaguicidas y contaminantes
El impacto de los productos químicos agrícolas se ha estudiado mucho, sobre todo en la época de los hidrocarburos clorados como el DDT y la dieldrina, que se han dejado de usar en Estados Unidos en su mayoría; los estudios de laboratorio demuestran su efecto negativo sobre la supervivencia y la reproducción, y en tejidos de faisanes silvestres se han hallado niveles problemáticos, pero es difícil interpretar su efecto en las poblaciones porque otros reguladores (depredación, clima, hábitat) cambiaron a la vez (BOW, 2022). Warner y colaboradores analizaron 27 años de supervivencia de pollos en Illinois y vieron un descenso del 28 % en el tamaño medio de las nidadas, que no correlacionaba con los hidroclorados sino con los cambios de uso de la tierra (BOW, 2022). Se necesita más información sobre la ingestión de plásticos y de plomo (BOW, 2022).
Depredación, enfermedades y clima
Los depredadores son el principal limitante en muchos lugares: en Nebraska e Iowa el 43–88 % de las pérdidas de nidos se atribuyó a depredación; en Minnesota, el éxito de nidificación subió del 18,6 % al 28,9 % cuando se eliminaron los depredadores; en Colorado, la mortalidad de primavera a primavera de las hembras fue del 48 %; y en el Reino Unido, de 486 faisanes criados, el 37,5 % fue abatido por cazadores y el 36 % depredado o carroñeado, sobre todo por el zorro rojo, con las rapaces implicadas en menos del 1 % de las muertes (BOW, 2022). En su área nativa, Cheng calificó a la civeta como el enemigo más grave (Johnsgard, 1986). Las enfermedades son raras en libertad pero problemáticas en las granjas; en pollos alemanes se hallaron metapneumovirus aviar, virus de la bronquitis infecciosa y Mycoplasma; en China se detectó el virus del Nilo Occidental, cuyo efecto se desconoce (BOW, 2022). El clima puede ser devastador: en Illinois, las poblaciones cayeron entre un 44 % y un 82 % durante los inviernos de 1976–1977 y 1977–1978, y en la pradera de Palouse las lluvias frías de finales de junio y principios de julio provocan abandonos de nidos y mortalidad de pollos (BOW, 2022).
Competencia con el faisán verde y con especies nativas
En Japón, el faisán común no ha prosperado donde vive el verde: las repetidas introducciones en Honshu dieron lugar primero a hibridación sustancial y después hicieron desaparecer en gran medida tanto a los comunes puros como a los híbridos; en Hawái ocurrió a la inversa: tras una época de hibridación, el verde, al menos en forma pura, parece haber desaparecido y el común prospera (BOW, 2022). Kuroda y los Schwartz indican que, donde se sueltan los dos, el verde suele salir perdiendo (Johnsgard, 1986). Por su parte, el faisán introducido puede dañar a especies nativas: parasita nidos de la perdiz pardilla y del gallo de las praderas, compite con ellos, puede transmitirles enfermedades y acosa a los machos de estos en sus arenas de cortejo (BOW, 2022).
BOW recoge que la mayor parte de la gestión moderna consiste en proporcionar cobertura de nidificación, reducir las pérdidas de nidos y dar cobertura invernal adecuada; que en Iowa los pastos sembrados con gramíneas autóctonas de estación cálida produjeron 3,1 nidos con éxito por 10 ha mientras que los prados de heno de propiedad privada no produjeron ninguno; que los bloques grandes de cobertura (15 ha o más) tienen menos depredación de nidos y no se siegan; y que se anima a los agricultores a retrasar la siega del heno hasta finales de julio, cuando la mayoría de los nidos han eclosionado, aunque suelen mostrarse reacios (BOW, 2022). Los programas de reservas de conservación, que pagan por plantar cobertura herbácea durante 10 años, benefician al faisán; la restauración de humedales ofrece cobertura invernal densa, y la repoblación suplementaria y el control de depredadores son controvertidos, caros y de efecto limitado (BOW, 2022). BOW concluye que la eficacia de las medidas está poco documentada, que la gestión intensiva influye en la demografía a escala local pero no en las poblaciones a gran escala, y que lograrlo exigirá entender las relaciones entre políticas agrarias, programas de conservación, paisaje y dinámica de población (BOW, 2022). En Europa, BirdLife enumera entre las acciones estudiadas el control de depredadores, la creación de franjas de vegetación y el cultivo de mezclas de semillas para aves, la siembra de bordes sin pulverizar y el manejo de setos (BirdLife, 2025).
14
Subespecies y variación
Treinta subespecies en cinco grupos, mutaciones de cautividad, híbridos fértiles y poblaciones introducidas hechas de mezclas.
Se reconocen 30 subespecies de faisán común, que tradicionalmente se reúnen en cinco grupos según el plumaje del macho y la biogeografía. A continuación se presentan junto con su área de distribución y sus rasgos distintivos.
Esta ficha trata cada una de las 30 subespecies (y la dudosa bergii) con su propia tarjeta, con su autor y año, su etimología, su localidad tipo, su distribución y hábitat, sus rasgos (en el macho y en la hembra) y sus fotos; este apartado reúne lo que es común a todas: los grupos, la comparación entre autores, las claves de identificación, la sinonimia, las variedades y mutaciones de cautividad, los híbridos y las poblaciones introducidas (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Los cinco grupos tradicionales y los ocho linajes genéticos
Birds of the World reconoce 30 subespecies, siguiendo la lista de Clements y a Madge y McGowan (aunque puede que no todas sigan existiendo), y las reúne en cinco grupos fenotípicos, de oeste a este: el grupo colchicus (de cuello negro), con cuatro subespecies del extremo occidental del área; el grupo chrysomelas (de alas blancas), con seis, desde Uzbekistán y el norte de Afganistán hasta el oeste de China; el grupo mongolicus (Kirguizistán), con dos, principalmente en Kazajistán y el oeste de China; el grupo tarimensis (de rabadilla verde), con una sola, en el oeste de China; y el grupo torquatus (de rabadilla gris), con 17 subespecies en la mitad oriental de Asia, cuyos machos tienen un collar blanco que va de ausente a ancho y completo. (BOW, 2022)
Los análisis genéticos, en cambio, distinguen ocho linajes que «no cuentan con un apoyo sólido», por lo que ambos esquemas muestran contradicciones. (BOW, 2022)
El esquema de cinco grupos es obra de Delacour y de Vaurie: el primero, el de los faisanes de cuello negro (grupo colchicus), son los más occidentales, con los machos más purpúreos, las cobertoras alares pardas o ante y sin collar blanco; el segundo, el de los de alas blancas (principalis–chrysomelas), sustituye al anterior hacia el este, con machos más rojizos y las cobertoras blancas; el tercero, el kirguís (mongolicus), que vive en el Turquestán y no en Mongolia, tiene también alas blancas pero un tono más cobrizo con fuerte brillo verde bronceado y un collar blanco, ancho y casi siempre interrumpido; el del Tarim, con una o dos subespecies según los autores, es de transición, sin collar y con la rabadilla oliva; y el último, el de rabadilla gris (torquatus), reúne las demás formas, todas con la rabadilla gris claro teñida de azul, verde o ante, las cobertoras alares grises, el manto y los flancos más claros y amarillos que los escapularios y el pecho, y la cola ante olivácea muy barrada de negro y con flecos rosa purpúreo (Delacour, 1977; Johnsgard, 1986).
Los grupos son los de Delacour y Vaurie, con la salvedad de shawii, que Madge y McGowan y Vaurie sitúan con tarimensis; el subgrupo «decollatus» es el de los faisanes sin collar del centro y el oeste de China (Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
edzinensis y sohokhotensis, que probablemente pertenecen aquí
5. tarimensis
solo tarimensis
—
6. mongolicus
solo mongolicus
turcestanicus, tradicionalmente en este grupo
7. principalis–chrysomelas
bianchii, principalis, shawii
chrysomelas, zerafschanicus y zarudnyi, tradicionalmente aquí
8. colchicus
colchicus, persicus, talischensis
septentrionalis, tradicionalmente aquí
Los ocho linajes se separaron durante el Pleistoceno tardío hace unos 0,7 millones de años; BOW señala que no cuentan con un apoyo sólido (BOW, 2022). Según el resumen de Wikipedia, los ocho linajes se agrupan en dos clados: el occidental (rabadilla rojiza: colchicus, chrysomelas/principalis, mongolicus y tarimensis) y el oriental (rabadilla gris) (Wikipedia).
La biogeografía que sugieren los análisis es la que resume BOW: el faisán común se originó en el borde oriental de la meseta Qinghai-Tíbet o en las montañas adyacentes del suroeste o del centro de China hace aproximadamente 1,19 millones de años; elegans, del centro-sur de China y el norte de Myanmar, es el taxón hermano de todos los demás, con la posible excepción de rothschildi; y desde allí la especie se extendió en tres direcciones: hacia el sureste (grupo elegans), hacia el este (grupos torquatus, strauchi–vlangalii y formosanus) y hacia el oeste (grupos de Asia central), siguiendo quizá los ríos que cruzaban antaño lo que hoy es el desierto del Karakorum hasta el mar Caspio (BOW, 2022). La divergencia temprana de varias subespecies en la región sino-himalaya puede deberse a tres acontecimientos: la elevación de la meseta Qinghai-Tíbet (con el paso de un clima húmedo a otro más árido), las montañas Qinling y Liupan y el aislamiento de la cuenca de Sichuan (BOW, 2022). Delacour había intuido que el gran grupo de rabadilla gris representa la población original de la especie, que después se extendió hacia el norte y el oeste y quedó reducida, tras los cambios climáticos de las glaciaciones, a distritos aislados donde evolucionaron subespecies bien marcadas (Delacour, 1977).
Las listas de subespecies han ido cambiando. Beebe, en 1922, enumeró 23 subespecies de colchicus y una de versicolor, con la advertencia de que había al menos 35 formas descritas y de que podría añadir una docena de nombres a los treinta y pico propuestos (Beebe, 1922 (vol. III)). Delacour (1977) acepta 30, más bergii como dudosa; el HBW (1994) cuenta 31 porque admite bergii como válida (del Hoyo et al., 1994); Johnsgard (1986) sigue a Delacour y a Vaurie con los mismos 30; Madge y McGowan (2002), BOW (2022), Fuller y Garson (2000) y la mayoría de las obras recientes mantienen esos 30, aunque con pequeñas diferencias de ortografía y de autor (BOW, 2022; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002). Robertson, finalmente, sospecha que no hay más de cinco o seis subespecies reales (Robertson, 1997). El libro del autor y la ficha original de la web enumeran 30 (en el libro, con algunos nombres repetidos por error en el último grupo) (Hernández García, 2014).
Tabla comparativa por autor: nombre, autor y año de cada subespecie
La tabla recoge, por subespecie, cómo da cada fuente el autor y el año de la descripción original; cuando difieren se muestran todas las versiones, sin darlas por erratas (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr). Las diferencias más visibles son: principalis (Sclater, 1885 en Pfarr, Delacour, Madge y BOW; 1904 en la web y en el libro del autor), mongolicus (Brandt, 1844 en las obras científicas; 1884 en la web), torquatus (Gmelin, 1789 en Delacour, Madge, BOW y Pfarr; «Linnaeus, 1789» en la web), chrysomelas (Severtzov, 1875; 1904 en Pfarr), elegans (Elliot, 1870; «1970» en la web y en el libro), rothschildi (La Touche, 1921 o 1922), alaschanicus (1907 o 1908) y tarimensis (Pleske, 1888; 1889 en Pfarr) (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr).
Subespecie
Pfarr
Delacour (1977)
Madge y McGowan (2002)
BOW (2022)
Web y libro del autor
colchicus
Linne, 1758
Linné, 1758
Linnaeus, 1758
Linneo, 1758
Linnaeus, 1758
septentrionalis
Lorenz, 1888
Lorenz, 1888
Lorenz, 1888
Lorenz, 1888
Lorenz, 1888 («septrentrionalis»)
talischensis
Lorenz, 1888
Lorenz, 1888
Lorenz, 1888
Lorenz, 1888
Lorenz, 1888
persicus
Severzov, 1875
Severtzov, 1875
Severtzov, 1875
Severtzov, 1875
Severtzov, 1875
principalis
P. L. Sclater, 1885
P. L. Sclater, 1885
P. L. Sclater, 1885
Sclater, 1885
P. L. Sclater, 1904
zarudnyi
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
bianchii
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
chrysomelas
Severzov, 1904
Severtzov, 1875
Severtzov, 1875
Severtzov, 1875
Severtzov, 1875
zerafschanicus
«Farnovski», 1893
Tarnovski, 1893
Tarnovski, 1893
Tarnovski, 1893
Tarnovski, 1893
shawii
shawi, Elliot, 1870
shawi, Elliot, 1870
shawii, Elliot, 1870
shawii, Elliot, 1870
shawii, Elliot, 1870
turcestanicus
Lorenz, 1896
Lorenz, 1896
Lorenz, 1896
Lorenz, 1896
Lorenz, 1896
mongolicus
J. F. Brandt, 1844
Brandt, 1844
J. F. Brandt, 1844
Brandt, 1844
J. F. Brandt, 1884
tarimensis
Pleske, 1889
Pleske, 1888
Pleske, 1888
Pleske, 1888
Pleske, 1888
torquatus
Gmelin, 1789
Gmelin, 1789
Gmelin, 1789
Gmelin, 1789
Linnaeus, 1789
satscheuensis
Pleske, 1892
Pleske, 1892
Pleske, 1892
Pleske, 1892
Pleske, 1892
formosanus
Elliot, 1870
Elliot, 1870
Elliot, 1870
Elliot, 1870
Elliot, 1870
hagenbecki
Rothschild, 1901
Rothschild, 1901
Rothschild, 1901
Rothschild, 1901
Rotthschild, 1901
pallasi
Rothschild, 1903
Rothschild, 1903
Rothschild, 1903
Rothschild, 1903
Rotthschild, 1903
karpowi
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
kiangsuensis
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
edzinensis
Sushkin, 1926
Sushkin, 1926
Sushkin, 1926
Sushkin, 1926
Sushkin, 1926
takatsukasae
Delacour, 1927
Delacour, 1927
Delacour, 1927
Delacour, 1927
Delacour, 1927
decollatus
Swinhoe, 1870
Swinhoe, 1870
Swinhoe, 1870
Swinhoe, 1870
Swinhoe, 1870
vlangalii
Przevalski, 1876
Przevalski, 1876
Przhevalski, 1876 («vlangalli»)
Przevalski, 1876
Przhvalski, 1876
sohokhotensis
Buturlin, 1908 («sohokotensis»)
Buturlin, 1908 («sohokotensis»)
Buturlin, 1908
Buturlin, 1908
Buturlin, 1908
strauchi
Przevalski, 1876
Przevalski, 1876
Przhevalski, 1876
Przevalski, 1876
Przhvalski, 1876
suehschanensis
Bianchi, 1906
Bianchi, 1906
Bianchi, 1906
Bianchi, 1906
Bianchi, 1906
alaschanicus
Alpheraky y Bianchi, 1908
Alpheraky y Bianchi, 1908
Alphéraky y Bianchi, 1908
Alphéraky y Bianchi, 1907
Alphéraky y Bianchi, 1908
elegans
Elliot, 1870
Elliot, 1870
Elliot, 1870
Elliot, 1870
Elliot, 1970
rothschildi
La Touche, 1922
La Touche, 1922
La Touche, 1921
La Touche, 1922
La Touche, 1921
Ortografías y fechas tal como las dan las fuentes. En Pfarr, algunas lecturas de la fotografía de la tabla son dudosas (rótulo «Credited»). Los años de Delacour y de Johnsgard proceden del texto original de cada ficha de subespecie; Johnsgard, en su lista, no da años (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Pfarr).
En qué grupo se pone cada subespecie
Las obras difieren, sobre todo, en dos casos: shawii, que Delacour incluye entre las de alas blancas pero que Vaurie, Madge y McGowan y Johnsgard (que sigue a Vaurie en este punto) agrupan con tarimensis por estar separada de las de alas blancas por el macizo del Tian Shan; y bergii, de las islas del Aral, que Delacour consideraba de validez dudosa, que Madge y McGowan incluyen en la sinonimia de turcestanicus y que el HBW (1994) cuenta como subespecie válida (del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). En el esquema de BOW, shawii está en el grupo chrysomelas (alas blancas), junto con principalis, zarudnyi, chrysomelas, bianchii y zerafschanicus, y el grupo del Tarim se reduce a tarimensis(BOW, 2022). La web y el libro del autor siguen también el esquema de seis y una (Hernández García, 2014). Dentro del grupo de rabadilla gris, la web y el libro distinguen dos subgrupos, «Torquatus» (nueve subespecies, de torquatus a takatsukasae) y «Decollatus» (ocho, sin collar o con collar estrecho) (Hernández García, 2014).
Subespecie
Delacour (1977)
Johnsgard (1986)
Madge y McGowan (2002)
BOW (2022)
Web y libro del autor
shawii
Alas blancas
Alas blancas (Vaurie: Tarim)
Tarim
Alas blancas (chrysomelas)
Alas blancas
tarimensis
Tarim
Tarim
Tarim
Tarim
Tarim
bergii
Kirguís, dudosa
Incluida en turcestanicus
Sinónimo de turcestanicus
—
No considerada subespecie distinta; tarjeta aparte como dudosa (el HBW la cuenta como válida)
Los nombres españoles son los de la web y del libro del autor (con ortografías como «Zohokhoto» y «Koueitcheou» que se conservan); los ingleses, los del apéndice del plan de acción de los faisanes de la UICN (Fuller y Garson, 2000; Hernández García, 2013; Hernández García, 2014).
Claves de identificación
Johnsgard (1986) reconoce que la clave es «subjetiva» por naturaleza, porque muchas de estas formas representan subespecies dudosas; aun así, es la herramienta que usan el libro del autor y la web, y se reproduce primero tal como figura en ellos (Hernández García, 2014; Johnsgard, 1986). La clave se lee de arriba abajo: cada línea sangrada es una alternativa de la línea anterior, y las hojas terminan en el nombre de la subespecie.
Clave dicotómica · Claves de identificación de las subespecies (según Johnsgard), machos
Parte inferior con algo de color rojo cobrizo:
Parte baja de la espalda, cadera, parte superior de la cola de color rojo o granate, a veces negro verdoso con las barras de la cola generalmente estrechas.
Sin un anillo de cuello blanco o con algunas trazas.
Coberteras varían de color arena a marrón rojizo. En general más púrpura.
Laterales y manto púrpura anaranjado, coberteras marrón oscuro.
Centro del pecho y laterales del vientre verde oscuro.
Color general más cobrizo: (colchicus).Phasianus colchicus colchicus
Color general más naranja, dorado: (septentrionalis).Phasianus colchicus septentrionalis
Centro del pecho de color rojo, púrpura y bronce: (talischensis).Phasianus colchicus talischensis
Laterales y manto de color naranja dorado, coberteras de marrón arenoso a ocre: (persicus).Phasianus colchicus persicus
Coberteras casi blancas. En general más rojizo.
Centro del pecho y lados inferiores de color verde oscuro.
Flancos terminados en negro (fino), Barrado de la cola ancho y de color negro: (Shawii).Phasianus colchicus shawii
Flancos terminados en negro (grueso). El barrado de la cola estrecho y de color negro.
Pecho más claro: (chrysomelas).Phasianus colchicus chrysomelas
Pecho más oscuro: (bianchii)Phasianus colchicus bianchii
Laterales del pecho y vientre de color rojo cobrizo.
plumas del pecho con bordes (estrechos) negros. Parte central del vientre de color marrón oscuro: (persicus)Phasianus colchicus persicus
sólo los lados del pecho bordeados de negro. Parte central del vientre castaño claro.
Collar blanco incompleto y muy estrecho.
Flancos con manchas de color verde oscuro: (Zarudnyi)Phasianus colchicus zarudnyi
Flancos con manchas de color púrpura brillante: (zerafschanicus)Phasianus colchicus zerafschanicus
Collar ausente o presente sólo como manchas blancas: (principalis).Phasianus colchicus principalis
Con un amplio anillo blanco en el cuello.
Pecho verde brillante; el anillo blanco del cuello más estrecho: (mongolicus).Phasianus colchicus mongolicus
Pecho púrpura brillante; el anillo blanco del cuello amplio: (turcestanicus).Phasianus colchicus turcestanicus
Color general de la parte inferior de la espalda, cadera, cola y parte superior de las coberteras de color pizarra, verdoso o verde oliva.
Parte baja de la espalda y cadera principalmente verde oliva; cola menos barrada, no tiene anillo blanco en el cuello. (tarimensis).Phasianus colchicus tarimensis
Parte inferior de la espalda y cadera de grisácea a verde azulado, la cola mucho más barrada, por lo general tienen anillo blanco en el cuello.
No tiene anillo en el cuello o el anillo un tercio incompleto.
El verde oscuro del cuello se extiende hasta el centro del pecho.
Flancos dorado brillante, manto de color marrón arenoso a rojo brillante: (vlangalii).Phasianus colchicus vlangalii
Flancos marrón cobrizo.
Manto castaño brillante, laterales más púrpura: (elegans).Phasianus colchicus elegans
Manto y laterales más dorados: (rothschildi).Phasianus colchicus rothschildi
El verde oscuro del cuello bordeado por rojo amarillento o por rojo cobrizo del pecho.
Plumas del pecho en general bordeadas en negro.
Anillo blanco del cuello estrecho, a veces tiene cejas blancas.
La clave es la que traduce el libro del autor a partir de Johnsgard, y conserva su ortografía; en ella persicus aparece dos veces porque Johnsgard la sitúa tanto con las formas de cobertoras color arena como con las de plumas del pecho de borde negro estrecho, y su descripción en el inglés original dice «(of previous group)» (Hernández García, 2014; Johnsgard, 1986). Johnsgard observa además que muchas de estas formas son dudosas, y que cualquier clave está sujeta a una considerable subjetividad (Johnsgard, 1986).
Clave dicotómica · Clave de las especies y de los grupos de subespecies del género Phasianus (machos; según Delacour y Johnsgard)
Plumaje dominantemente metálico, con las partes inferiores totalmente verdes (hembras: plumas del manto mayormente negras):Phasianus versicolor (faisán verde)
Partes inferiores siempre con algo de rojo cobrizo (hembras: plumas del manto mayormente pardas): faisán común
Parte baja de la espalda y rabadilla mayormente pardo rojiza
Cobertoras alares mayormente pardas o antegrupo colchicus (cuello negro)
Cobertoras alares mayormente blancas
Partes superiores amarillentas o rojo anaranjadogrupo principalis–chrysomelas (alas blancas)
Partes superiores rojo cobrizo con brillo verdegrupo mongolicus (kirguís)
Parte baja de la espalda y rabadilla mayormente verdes
Rabadilla de gris a verde azuladogrupo torquatus (rabadilla gris)
La segunda clave es la de Delacour para los grupos de subespecies de los machos, completada con la clave del género de Johnsgard (que separa también las hembras: manto con manchas negras y partes inferiores muy moteadas en el verde, y manto con manchas pardas y partes inferiores sin moteado marcado en el común); estas claves son útiles solo en aves de origen silvestre conocido, porque las aves de coto y las de cautividad suelen ser mezclas (Delacour, 1977; Johnsgard, 1986).
Sinonimia
Las muchas descripciones de formas que luego no se han considerado válidas dan una sinonimia amplia. La tabla reúne los nombres que Madge y McGowan, Delacour, Beebe y Jobling incluyen en la sinonimia de las subespecies, para que se pueda reconocer un nombre antiguo al leer la literatura (Beebe, 1922 (vol. III); Delacour, 1977; Jobling, 2010; Madge y McGowan, 2002).
Subespecie válida
Nombres incluidos en su sinonimia (autor, año si se conoce)
Fuente
colchicus
lorenzi Buturlin, 1904 (Transcaucasia central y oriental); europaeus Hachisuka, 1937 (sureste de Bulgaria); «talischensis» de Grant (en parte)
La sinonimia completa, con las referencias bibliográficas, se encuentra en Beebe (1922), que reúne, para cada subespecie, todos los nombres con sus citas, y en Peters, Check-List of Birds of the World, II, pp. 121–127, que Delacour cita (Beebe, 1922 (vol. III); Delacour, 1977). Los nombres de la tabla no deben usarse hoy para ninguna forma reconocida.
Grupo del Cáucaso: los faisanes de cuello negro o de Cólquida
La ficha original abre este grupo con una definición que se conserva: son los «faisanes de Cólquida», caracterizados por la falta completa de collar, la grupa violeta y una coloración del plumaje en general bastante oscura y uniforme; a los representantes de este grupo se les llama indistintamente «colchicus» (Hernández García, 2014). Birds of the World (BOW) los reúne como grupo colchicus (de cuello negro), con cuatro subespecies, colchicus, septentrionalis, talischensis y persicus, que ocupan el extremo occidental del área de distribución nativa de la especie; sus machos son de color violáceo, con las coberteras de las alas de un marrón claro o beige y sin rastro de collar blanco (BOW, 2022). Delacour precisa que las cuatro subespecies difieren muy poco entre sí, que son las más purpúreas de todos los faisanes verdaderos y que las hembras, los jóvenes y los polluelos son todos iguales (Delacour, 1977); Gerrits las enumera igual, como «las cuatro subespecies de cuello negro» (Gerrits, 1974).
Este grupo ocupa el borde occidental del área de la especie, desde la costa turca y búlgara del mar Negro, por Transcaucasia y el Cáucaso septentrional, hasta las tierras bajas del sur del mar Caspio y el norte de Irán; Delacour los encuentra desde el nivel del mar hasta unos 3.000 pies (en torno a 900 m), en llanuras, valles y laderas bajas con abundantes hierbas altas, arbustos y árboles, claros naturales y también cañaverales; se alimentan sobre todo de hierba, brotes y bayas y suelen dormir en los árboles (Delacour, 1977). Johnsgard, por su parte, los describe con coberteras alares «rojizas o pardo arenoso» y, en conjunto, más purpúreos que ningún otro grupo del faisán común (Johnsgard, 1986). Madge y McGowan señalan que dentro del grupo hay variación de plumaje suficiente para dudar de la validez de muchas subespecies y que las poblaciones introducidas pueden no ser asignables a una sola de ellas (Madge y McGowan, 2002).
Subespecie
Autor, año y localidad tipo
Ala del macho (mm)
Distribución resumida
Rasgo que la distingue
colchicus (sur del Cáucaso)
Linneo, 1758; «África, Asia», restringida al río Rion
238–258 (Delacour); 250–266 (Madge)
Transcaucasia (cuencas del Rion, Chorokh, Kura y Aras), este de Georgia, Azerbaiyán, Armenia, noroeste de Irán; sureste de Europa
Suroeste de Turkmenistán y norte de Irán (valles del Atrek y el Gurgen)
Coberteras alares ante o blanquecinas; fondo naranja dorado; enlace con el grupo de alas blancas (BOW, 2022; Delacour, 1977)
Medidas de Delacour (1977) y de Madge y McGowan (2002); las demás columnas, de Beebe (1922), Delacour, BOW y Johnsgard.
El faisán del Cáucaso en el campo: Radde y Beebe
La mejor descripción de las poblaciones caucásicas en estado natural, hecha cuando aún eran abundantes, es la de Radde, autor de Ornis Caucasica (1884), que Beebe resume en su monografía de 1922. Beebe empieza por señalar que el faisán caucásico se había separado en tres formas más o menos distintas, septentrionalis, colchicus y talischensis, que ocupan la región entre el mar Negro y el Caspio, por el norte hasta Astracán, en Rusia, y por el sur hasta el norte de Persia; añade que uno o varios de estos faisanes fueron los componentes originales del llamado faisán común o inglés, y que cuando en uno de los híbridos un exceso de sangre de colchicus ha reducido o suprimido el collar blanco de torquatus, y el ave se parece a la forma caucásica, suele llamársela faisán de cuello negro (Beebe, 1922 (vol. III)). Una de las fotografías de su monografía, tomada en el bajo valle del Safed Rud, en el norte de Persia, entre el Caspio y el mar Negro, está rotulada como el «hogar original del faisán inglés» y señala que de esa región trajeron los romanos las primeras aves a Gran Bretaña, una afirmación de Beebe que no se apoya en las demás fuentes consultadas (Beebe, 1922 (vol. III)).
Según Radde, en todo el Cáucaso los faisanes rara vez se encuentran por encima de unos 2.500 pies de altitud, con excepciones sobre todo en la época de cría, ya que es regla que dejen las estepas en primavera y asciendan a las montañas durante la estación cálida; el límite occidental, en las llanuras de Suram, está a una altitud media de 2.200 pies, y por encima del barranco de Borshon, en Azkur y Akhaltsikhe, no se han visto nunca; los alrededores de Nujá y de Shemajá y las llanuras entre el Alazán y el Kura marcan otros límites altitudinales (Beebe, 1922 (vol. III)). En las tierras bajas de Lenkorán, su distribución depende más de la presencia de bosque caducifolio denso, en el que no penetran jamás, que del cambio de altitud; lo mismo ocurre en el distrito del Rion, el verdadero hogar de la especie y de donde toma el nombre, donde vive en claros naturales con sotobosque de zarzaparrilla y clemátide y evita los bosques continuos (Beebe, 1922 (vol. III)). En los tramos bajos del Terek, el Sulak y el Kuban, y en la franja litoral del Caspio, el faisán es un habitante de los cañaverales, y en condiciones similares perdura en la mitad baja de la provincia de Astracán (Beebe, 1922 (vol. III)).
Radde detalla la situación local en el momento en que escribió. En las llanuras de Suram, antes bastante común junto a los arroyos de aguas rápidas, había sido completamente exterminado; lo mismo, en los distritos del Rion y del Kvirila por encima de Kutaisi; en la región de Sharopan se abatían a palos, y ya había desaparecido (Beebe, 1922 (vol. III)). Seguía protegido en la finca del príncipe Muchrausky, en el valle del Aragvi; los faisanes del bazar de Tiflis procedían sobre todo de Kajetia y de Elizavetpol; a lo largo del Kura vivían donde hubiera vegetación de jungla y huertos tártaros cerca del agua, con preferencia por los islotes del río; al subir de Aksu a Shemajá se encontraban asociados a la perdiz roja; en el valle del Araxes aparecen al este del paso de las montañas de Karabaj (Beebe, 1922 (vol. III)). En la vertiente occidental del Caspio su distribución es esporádica y limitada a los bordes de estepas estériles, entre las cañas junto a arroyos de corriente lenta; abundan en las tierras bajas de Talish y hacia el norte hasta Kumbashinsk y el límite meridional de Mugán, pero faltan en el litoral árido, caluroso y sin agua del Caspio, en los alrededores de Bakú y en la península de Apsherón; en Lenkorán los cazadores casi los habían exterminado y se pagaban hasta por un rublo, mientras que en las cercanías de Kuba y Derbent eran abundantes y en las tierras bajas del Sulak y el Terek, comunes (Beebe, 1922 (vol. III)). En la isla de Sari, al sur del golfo de Kizil-Agach, se introdujeron hace muchos años por obra de un comandante ruso y prosperaron; luego se los casi extinguió a tiros, se los protegió y volvieron a abundar (Beebe, 1922 (vol. III)).
En la vertiente norte del gran Cáucaso, en torno a los ríos Terek y Kuban, son comunes en muchos puntos; la línea que va del Kuma al mar marca su límite septentrional: aparecen primero en la aldea de Obilnoe, cerca de Georgievsk, y se hacen comunes en Soldato-Alexandrovsk y hacia la orilla del Caspio (Beebe, 1922 (vol. III)). Pallas, que los conocía con el nombre ruso de «Madsharski Petuch» (el gallo de Madshar), los citaba de esa localidad, a orillas del Kuma, hoy un pequeño poblado; en tiempos de la emperatriz Catalina se enviaba a la corte vino de esa región, tan parecido al de Borgoña que el lugar se llamó Burgony-Madshari (Beebe, 1922 (vol. III)). Hacia el oeste son esporádicamente comunes en la cuenca baja del Kuban y a lo largo de la orilla oriental del mar Negro; en los cotos del gran duque Miguel Nikoláievich estuvieron protegidos varios años, hasta que su exceso de población dañó los cultivos de grano; más al sur, por la costa, escasean y parecen faltar por completo entre Adler y el distrito de Sujumi; se han citado también del delta del Kuban y de Temriuk (Beebe, 1922 (vol. III)).
Los enemigos naturales eran, según Radde, el gran búho cornudo del Cáucaso, que se cobra un fuerte tributo entre los faisanes dormidos en las ramas de poco follaje; el zorro negro y el chacal, que los acechan entre las hierbas y cañas; el halcón peregrino y el azor en el aire (el azor es la única rapaz usada en cetrería en Transcaucasia: persigue al faisán hasta que éste se posa y se esconde por miedo, y el cazador lo levanta luego con ayuda de un perro, y los jóvenes se dejan a menudo coger a mano); y, sobre todo, el gato de la jungla, que habita en cada trozo de bosque sin talar y cuyo alimento principal parecen ser estas aves (Beebe, 1922 (vol. III)). Las armas de fuego, la cetrería y el gato de la jungla habían reducido mucho el número de faisanes o los habían exterminado en grandes extensiones; en Tiflis, el precio de un par en el mercado había pasado de veinte kopeks a más de dos rublos, y la caza sistemática en invierno en las estepas del Terek y el Kuban llevaría, a juicio de Radde, a la especie al borde de la extinción, sobre todo con inviernos severos; por Navidad llegaban a Tiflis carros alemanes cargados de faisanes y perdices cazados por cazadores furtivos y enviados por ferrocarril al norte de Rusia (Beebe, 1922 (vol. III)).
De su biología, Radde recogía que una hembra silvestre había puesto hasta dieciocho huevos, aunque lo habitual son ocho a doce; que de todas las bayas prefieren las que los rusos llaman «oblepicha», además de moras y de Rubus fruticosus, y que el alimento principal parece ser el brote tierno y las puntas de las hierbas; que duermen en lo alto de los árboles de follaje más espeso, primero el macho y después la hembra; que son tanto monógamos como poligínicos, con predominio de lo segundo (dos o tres hembras por macho, como las perdices rojas) (Beebe, 1922 (vol. III)). En la época de la cría el macho se muestra tan atolondrado que puede ser engañado con una gallina doméstica, e incluso capturado vivo: los cazadores de Lenkorán, a principios de mayo, llevaban al borde del bosque una gallina con los párpados cosidos que, al aletear, atraía al macho más cercano a tiro de escopeta; y en primavera, cuando los aldeanos dejan los valles bajos por los pastos de montaña, los faisanes acuden a los montones de ceniza a bañarse en polvo, donde se esparce trigo como reclamo (Beebe, 1922 (vol. III)). Se trata de prácticas históricas de caza, descritas por Beebe y Radde, y no de recomendaciones de manejo.
Faisán común o del sur del Cáucaso (ficha original); en inglés, «southern Caucasian pheasant» (Delacour, Johnsgard) y «Rion Caucasian pheasant» (Beebe); BOW lo llama subespecie nominal. Es la forma que da nombre al grupo de «cuello negro» y a toda la especie (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986).
Origen del nombre
El epíteto colchicus significa «de la Cólquida» (griego Kolkhis), el país de la orilla oriental del mar Negro, la actual Georgia, donde se tiene por descubierto el faisán; Jobling lo vincula con el «Phasianus» de Aldrovandi (1599) y con el «Pheasant. Phasianus» de Ray (1678) y de Albin (1738) (Jobling, 2010). Beebe da como patria la región de la Cólquida, hoy Mingrelia, en Transcaucasia occidental (Beebe, 1922 (vol. III)). El nombre del género procede del río Fasis (Rion), el mismo de la Cólquida, como recuerda la ficha original (Hernández García, 2014; Jobling, 2010).
Historia de su conocimiento
Elliot (1872) abría su capítulo sobre el faisán común con la observación de que ninguna faisánida es más conocida desde hace más tiempo y que, sin embargo, de ninguna se sabe menos sobre su vida natural; recogía como patria la Mingrelia, la antigua Cólquida, Kizil-Agach al oeste del río Ilia, el Cáucaso, el lago de Apolonia cerca de Brusa, Albania, el golfo de Salónica y Vrachori en Etolia (Elliot, 1872). Según Powys, citado por Elliot, el faisán era común en el bosque cercano a la desembocadura del Drin, en Albania, en un radio de veinte a treinta millas en torno a Alessio, y especialmente abundante en el golfo de Salónica, junto a la boca del Vardar (Elliot, 1872). Elliot lamentaba, además, que casi todas las aves de los cotos de Inglaterra y del continente llevaran ya sangre de torquatus o de versicolor, lo que ve como una pérdida para el naturalista (Elliot, 1872). Dawkins (1869) fundamentaba la antigüedad de la especie en Gran Bretaña en un documento de 1059, la lista de comidas de los canónigos de Waltham redactada por Harold, que incluye un faisán entre las raciones, y concluía que se había naturalizado antes de la invasión normanda, quizá por obra de los romanos (Elliot, 1872). Elliot repite también la tradición de que los argonautas lo hallaron en gran número junto al Fasis, de donde procedería el nombre (Elliot, 1872).
Autor y localidad tipo
Linneo, Systema Naturae, 10.ª ed., 1758, p. 158; Linneo dio como patria «en África, Asia», y los autores posteriores restringieron la localidad tipo al río Rion (el antiguo Fasis), en la Cólquida (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). Beebe anota que el paradero actual del tipo es desconocido y cita también la 12.ª edición (1766, p. 271) (Beebe, 1922 (vol. III)); Elliot cita la 12.ª edición (1766) con otra paginación (p. 270) (Elliot, 1872). Pfarr da, para este taxón, «Linne, 1758», igual que Delacour, Madge y BOW (Pfarr, 2012).
Sinónimos y variantes
Phasianus lorenzi Buturlin, 1904 (río Kura y Alazan, Transcaucasia; para Beebe, Transcaucasia central y oriental) y Phasianus colchicus europaeus Hachisuka, 1937 (Kurschumlii, cerca de Elchovo, sur de Bulgaria); Madge y McGowan incluyen ambos en la subespecie nominal (Beebe, 1922 (vol. III); Delacour, 1977; Madge y McGowan, 2002). Delacour no acepta lorenzi: von Jordans (1942) no halló diferencias constantes entre ejemplares de Bulgaria, Turquía y Grecia y los de Transcaucasia, y los matices de los reflejos varían individualmente en todas las subespecies (Delacour, 1977). Grant (1893) había mezclado además material de esta subespecie con talischensis bajo Phasianus talischensis(Beebe, 1922 (vol. III)).
Distribución
Según la ficha original, está presente en todo el Cáucaso meridional y, más precisamente, en el este de Georgia, el norte de Azerbaiyán, las zonas meridionales de Armenia y el noroeste de Irán (Hernández García, 2014). Delacour detalla los valles del Rion (Fasis), el Chorokh, el Kura y el Aras y la costa oriental y sudoriental del mar Negro, y la considera quizá autóctona en el sureste de Bulgaria, la Tracia turca y el norte de Grecia (Tracia, al sur de Xanthi y cerca de Gumuldjina) (Delacour, 1977). Beebe añade que llega al norte hasta Sujumi, al sur de la cadena principal del Cáucaso, y que sube por las cuencas del Kura y del bajo Aras hasta casi 3.000 pies de altitud; toca el Caspio en el golfo de Kizil-Agach (Beebe, 1922 (vol. III)). Johnsgard cita Transcaucasia desde Abjasia hasta Georgia (con límite norte en Kajetia, hacia Telavi), el nordeste de Azerbaiyán entre Zakatala e Ismailli y entre Kuba y Khachmaz, el sur de Armenia y, posiblemente, el noroeste de Irán (Johnsgard, 1986). BOW amplía el área hasta Bulgaria y Grecia, a través de Turquía (BOW, 2022).
Hábitat
Valles, llanuras y bases de montaña con abundante hierba alta, arbustos y árboles, claros naturales y cañaverales, desde el nivel del mar hasta unos 3.000 pies (en torno a 900 m); duerme normalmente en los árboles y come sobre todo hierba, brotes y bayas (Delacour, 1977). Para el conjunto de la especie en Europa occidental, Cramp y Simmons (citados por Johnsgard) apuntan que rara vez pasa de 700 m y que se limita en la montaña a valles y gargantas boscosas estrechos (Johnsgard, 1986).
Rasgos del macho
Según Delacour: corona verde metálico oscuro; garganta azul verdoso; cuello azul metálico, verdoso por detrás y violeta púrpura por delante y a los lados; manto rojo cobrizo con brillo púrpura y cada pluma de base negruzca, una cuña negro purpúreo en la punta y estrechos bordes negros; plumas de la parte alta de la espalda y escapularios mayores y redondeados, con una ancha barra ante en U; parte baja de la espalda, rabadilla y supracaudales rojo purpúreo más o menos teñido de verde; coberteras alares canela; pecho y flancos rojo cobrizo purpúreo, con base y centro negros y borde negro purpúreo; abdomen negro opaco rodeado de púrpura. Iris de avellana a rojo o blanquecino, pico amarillo verdoso pálido y patas gris córneo (Delacour, 1977). La ficha original lo distingue de talischensis, con la que podrían confundirlo los aficionados menos expertos, por un plumaje con un cromatismo morado menos intenso e iridiscente y por la presencia, en la parte posterior y en la cola, de plumas de otro color (Hernández García, 2014). Para Beebe, lo propio de la forma nominal es el abdomen pardo negruzco o chocolate oscuro, el brillo azul o violeta dominante sobre las marcas negras del manto y el pecho y un tono general algo más oscuro y cobrizo (Beebe, 1922 (vol. III)).
Hembra
Corona barrada de negro y pardo; garganta lisa de pardo pálido; plumas del cuello negruzcas con bordes castaños y punta gris ante con brillo rosa purpúreo; partes superiores moteadas, con centro pardo negruzco y bordes castaños y gris ante; cola parda vermiculada de negro; centro del pecho y abdomen pardo pálido finamente vermiculado. Iris pardo, pico córneo pálido y patas pardo grisáceo (Delacour, 1977). Madge y McGowan la describen como uniformemente pardo arenoso apagado, con marcas en V pardo negruzco muy marcadas en los flancos (Madge y McGowan, 2002). Las hembras de las cuatro subespecies del grupo son iguales entre sí (Delacour, 1977).
Tamaño y peso
Macho: longitud total de unos 850 mm, ala de 238–258 mm, cola de 425–536 mm, culmen de 30 mm y tarso de 65–71 mm; hembra: 600 mm, ala de 210–220 mm y cola de 290–310 mm (Delacour, 1977). Madge y McGowan dan para el macho ala 250–266 mm, cola 490–590 mm y tarso 69–74 mm, y para la hembra ala 210–220 mm, cola 290–310 mm y tarso 62–70 mm; el peso medio sería de 1.150 g en el macho y 850 g en la hembra (Johnsgard, 1986; Madge y McGowan, 2002). Dementiev y Gladkov (1967, citados por Johnsgard) obtuvieron los mismos promedios en una muestra de enero (Johnsgard, 1986).
Medidas por fuente
Medidas modernas del ala del macho según Wikipedia: 257 mm (Ogilvie-Grant); 238–256 mm (Hartert y Delacour); 250–253 mm, media de 251 mm (Dementyev, n = 3); y 235–255 mm, media de 245 mm (Vaurie, n = 10) (Wikipedia (subespecies)).
Variación
Delacour señala que las diferencias entre las subespecies caucásicas son pequeñas y que hay cierta intergradación donde el área es continua; talischensis se funde con colchicus en el oeste de su área (Beebe, 1922 (vol. III); Delacour, 1977). Los reflejos de los plumajes varían además de un individuo a otro dentro de cada subespecie (Delacour, 1977). En el análisis genético de Ashrafzadeh y colaboradores (2021), uno de los dos linajes mitocondriales presentes en faisanes europeos (el clado F) corresponde al grupo colchicus y es el más frecuente y extendido en Hungría y Serbia, coherente con una introducción antigua (Ashrafzadeh et al., 2021).
Estado
BOW indica que las poblaciones no adulteradas por la hibridación con aves introducidas de otras subespecies persisten en el delta del Nestos (norte de Grecia) y probablemente en la región de Sinop (costa turca del mar Negro), y que hay poblaciones puras y sanas en Daguestán y a lo largo del río Aras, en Irán y Azerbaiyán (BOW, 2022). Wikipedia cita, para el delta del Nestos, una población estimada en 100–250 individuos en 2012 y la presenta como la última población de cuello negro de Europa (Wikipedia). Madge y McGowan advierten que la pureza de las aves del sureste de Europa está amenazada por las introducciones de origen mixto (Madge y McGowan, 2002); el estudio genético de Ashrafzadeh y colaboradores sugiere que la liberación de híbridos puede conducir a la extinción de las poblaciones autóctonas por «inundación genética», como aparentemente ocurrió con los faisanes autóctonos del sur del Cáucaso en Bulgaria (Ashrafzadeh et al., 2021). Delacour señalaba que los faisanes de cuello negro han sido muy perseguidos y que desaparecieron de distritos donde antes abundaban (Delacour, 1977).
Situación actual (Wikipedia)
Wikipedia añade que la subespecie ha sido «genéticamente inundada» en gran parte de su área, que la única población europea genéticamente pura es la del delta del Nestos, de unos 250 individuos y estable desde 2012, y que se reintrodujo en el casco antiguo de Tiflis (Georgia) en 2025 (Wikipedia (subespecies)). El artículo general de la misma enciclopedia da para el Nestos una estima de 100–250 individuos en 2012 (Wikipedia).
Cautividad y papel en la historia
Es la subespecie con la que empezó la historia del faisán en Europa: griegos y romanos la introdujeron muy pronto, y estaba bien establecida en Francia e Inglaterra antes del siglo X; sigue siendo la base de la población asilvestrada europea, aunque muy cruzada en el último siglo con las formas kirguís (mongolicus), de rabadilla gris (torquatus) y verde (Delacour, 1977; Gerrits, 1974). BOW fecha la introducción de colchicus en Europa ya hacia el año 500 y señala que en el siglo XVIII se sumaron mongolicus y torquatus(BOW, 2022); Ashrafzadeh y colaboradores (2021) hablan de las primeras introducciones conocidas, de faisanes del sur del Cáucaso, entre los años 500 y 800, y retoman la hipótesis de Boev de que solo mucho después, en el siglo XVIII, llegaron las otras subespecies (Ashrafzadeh et al., 2021). Delacour, en su manual de cría, recuerda que fue el primer faisán introducido en Europa occidental y que el llamado «English Ringneck», con collar blanco, es solo un híbrido entre el faisán de cuello negro y las formas mongola o china, no una subespecie pura ni estable (Delacour, 1978 (cría)). Para Delacour, los faisanes de cuello negro son grandes y quizá los mejores para la mesa, pero más mansos y de puesta menor que las formas de otros grupos (Delacour, 1977). Howman advierte de que, por la intervención del hombre, muchas subespecies puras ya no lo son (Howman, 1979; Howman, 1993).
Las dos primeras fotografías (macho y hembra) son las que ilustran esta subespecie en el libro del autor, donde constan como obra de Siro Serena (Hernández García, 2014); las demás proceden de la carpeta de la ficha y no llevan autor. La ficha original no ofrece medidas propias de la subespecie: las cifras de arriba son de Delacour y de Madge y McGowan.
Faisán del norte del Cáucaso (ficha original); en inglés, «northern Caucasian pheasant» (Delacour, Johnsgard) y «North Caucasian or Astrakhan pheasant» (Beebe, que alude así al extremo norte de su área, en Astracán) (Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014; Johnsgard, 1986).
Origen del nombre
Del latín septentrionalis, «del norte» (septemtrio, norte); Jobling recoge la forma septemtrionalis como variante ortográfica clásica (Beebe, 1922 (vol. III); Jobling, 2010). El nombre alude a la vertiente norte del Cáucaso, a diferencia de colchicus, de Transcaucasia.
Autor y localidad tipo
Th. Lorenz (Lorenz, 1888 también en Pfarr (Pfarr, 2012)), Journal für Ornithologie, 36, 1888, p. 572, descrita como Phasianus colchicus L. subespecie septentrionalis; localidad tipo, la vertiente norte del Cáucaso (Kuban, Terek) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). Lorenz había descrito antes las aves de esa región en Beiträge zur Ornithologie der Nordseite des Kaukasus (1887) (Beebe, 1922 (vol. III)). Jobling registra a un Theodor Karlovic Lorenz (1842–1909), zoólogo alemán y colector en Rusia, entre los portadores del apellido (Jobling, 2010).
Sinónimos y variantes
La grafía septrentrionalis (sin la primera e) que figura en la ficha original y en el libro del autor es una errata; la forma correcta es septentrionalis, y la ficha original usa en otro lugar septemtrionalis, que también es una variante antigua del mismo adjetivo (Hernández García, 2014; Jobling, 2010). Beebe cita, bajo Phasianus colchicus, las aves del norte del Cáucaso mencionadas por Pallas (1811) y por el propio Lorenz (1887), que antes de 1888 se incluían en la forma nominal (Beebe, 1922 (vol. III)). No se han localizado en las fuentes consultadas otros sinónimos propios.
Distribución
La ficha original la sitúa en el norte del Cáucaso, desde el norte de Daguestán hasta el delta del Volga (Rusia) (Hernández García, 2014). Delacour amplía los límites: vertiente norte del Cáucaso, en los valles del Kuban, el Terek y el Kuma, y costa occidental del Caspio desde la desembocadura del Volga hasta la península de Apsherón (Delacour, 1977). Beebe añade las cuencas del Sulak y una altitud máxima de 2.000 a 2.500 pies, así como la penetración hacia el norte por las tierras bajas de la costa caspia hasta Astracán, en el delta del Volga (Beebe, 1922 (vol. III)). Johnsgard escribe que desde Daguestán se extiende hacia el norte hasta el delta del Volga y que los límites occidentales se desconocen (Johnsgard, 1986); BOW y Madge y McGowan coinciden (BOW, 2022; Madge y McGowan, 2002).
Hábitat
Las fuentes consultadas no separan el hábitat de esta subespecie del de todo el grupo: llanuras, valles y laderas bajas con hierba alta, arbustos y cañaverales, hasta unos 2.000–2.500 pies de altitud según Beebe (Beebe, 1922 (vol. III); Delacour, 1977).
Rasgos del macho
La ficha original la describe como muy similar a colchicus, pero de color en general más claro y tendente al naranja dorado, con la irisación violeta mucho más evidente en las partes bajas y los bordes negros de la parte alta de la espalda, el pecho y las caderas con reflejos metálicos más intensos que en la forma nominal (Hernández García, 2014). Delacour la define como de un rojo cobrizo bastante vivo, que se diferencia ligeramente de colchicus por el tono más claro y menos purpúreo del naranja del manto y los flancos (Delacour, 1977). Johnsgard, en su clave, la separa de colchicus por el color general más pálido y dorado (Johnsgard, 1986). Madge y McGowan la dan más pálida, menos moteada y barrada, y con tonos más dorados que la nominal (Madge y McGowan, 2002). BOW la presenta como muy parecida a la nominal, con el manto y los flancos menos naranja violáceo y más marrón óxido (BOW, 2022).
Hembra
La ficha original dice que es «ligeramente más liviana que la forma nominal» (Hernández García, 2014); por el contexto de la descripción del macho, y porque Delacour sostiene que las hembras de las cuatro formas del grupo son iguales, parece referirse a un tono algo más claro y no al peso (Delacour, 1977).
Tamaño y peso
Ala del macho de 247–255 mm según Delacour (Delacour, 1977); Johnsgard recoge, con datos de Dementiev y Gladkov (1967), un ala de 250–276 mm y una cola de 395–406 mm (esta última, observación propia), sin pesos legibles en el texto consultado (Johnsgard, 1986).
Medidas por fuente
Wikipedia recoge para el ala del macho 242–255 mm (Hartert y Delacour, n = 8) y 250–267 mm, media de 258,5 mm (Dementyev, n = 13) (Wikipedia (subespecies)).
Variación
Delacour la considera una de las formas del grupo con diferencias pequeñas respecto a la nominal (Delacour, 1977). Hay un matiz de brillo sobre el que las fuentes no coinciden, recogido en la nota de abajo.
Estado
Beebe, a comienzos del siglo XX, cuenta que había sido completamente exterminada en la parte central del Cáucaso norte, entre Stávropol y Georgievsk, a finales del siglo XIX (Beebe, 1922 (vol. III)). No se ha localizado en las fuentes aquí revisadas una estima de población propia de la subespecie. BOW sitúa en Daguestán poblaciones puras sanas que atribuye a la forma nominal, aunque Daguestán forma parte del área de septentrionalis según las descripciones de BOW, Delacour y Johnsgard (BOW, 2022; Delacour, 1977; Johnsgard, 1986); Wikipedia, por su parte, dice que septentrionalis sobrevive pura en torno al curso bajo del río Samur (Wikipedia).
Situación actual (Wikipedia)
Según Wikipedia, la subespecie está muy fragmentada; en el oeste de Ciscaucasia los híbridos presentan a menudo collar blanco; figura en los libros rojos de Ingusetia, Chechenia, Karacháyevo-Cherkesia y Kabardino-Balkaria; y se llevan a cabo programas de cría para restaurar la población autóctona desde 1958, en Maikop y Astracán; sobrevive pura en torno al curso bajo del Samur (Wikipedia; Wikipedia (subespecies)). Describe además al macho con brillo verde oscuro, y no azul púrpura, en los bordes negros de las plumas, y con hembras también más pálidas (Wikipedia (subespecies)).
Cautividad y papel en la historia
No se documenta en las fuentes aquí revisadas su cría separada ni su papel diferenciado en las introducciones; las fuentes la incluyen en el conjunto de las formas de cuello negro cuya historia europea se ha resumido en la ficha de la subespecie nominal (Delacour, 1977; Gerrits, 1974). El manual de cría de Delacour reproduce, no obstante, una fotografía rotulada «English Blackneck Pheasant (Phasianus colchicus septentrionalis)», lo que indica que en las colecciones inglesas se asignaba a esta subespecie parte del stock de cuello negro (Delacour, 1978 (cría)).
Las cuatro fotografías no llevan autor ni procedencia en la ficha original; la identificación de la subespecie es la de los nombres de archivo («septemtrionalis», «septentrionalis»). En la propia ficha de la web, el texto que corresponde a esta subespecie se publicaba bajo la grafía «septrentrionalis».
El epíteto procede de Talisch (Talish, Talysh), el distrito ruso de Transcaucasia que habita el ave (Beebe, 1922 (vol. III)); la localidad tipo, Lenkorán, es la actual Lankarán, en el sureste de Azerbaiyán (BOW, 2022). Jobling no tiene entrada propia para este nombre en el diccionario consultado, de modo que la etimología es la toponímica que da Beebe (Beebe, 1922 (vol. III); Jobling, 2010).
Autor y localidad tipo
Th. Lorenz (Lorenz, 1888 también en Pfarr (Pfarr, 2012)), Journal für Ornithologie, 36, 1888, p. 571 según Delacour y BOW (Beebe da la p. 572); descrita originalmente como subespecie de Phasianus persicus Severtzov, es decir, Phasianus persicus talischensis; localidad tipo, Lenkorán (Lankarán, Azerbaiyán; Delacour, con la antigua ubicación en «Persia»), en la región de Talisch (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Sinónimos y variantes
Las grafías talyschensis (Zarudny, 1896 y 1911; Buxton, 1921) y Phasianus talischensis (Grant, 1893, parcialmente mezclada con material de colchicus) son variantes que Beebe recoge en su sinonimia (Beebe, 1922 (vol. III)). Rothschild (1904) y Hartert (1917) la tratan ya como Phasianus colchicus talischensis(Beebe, 1922 (vol. III)).
Distribución
Según la ficha original, se puede encontrar en el sureste del Cáucaso y en las zonas llanas de Irán que bordean el mar Caspio (Hernández García, 2014). Delacour detalla las tierras bajas de las costas suroccidental y meridional del Caspio, desde Kizil-Agach hasta la provincia de Mazandarán; se fundiría con colchicus en el oeste y quizá con persicus en el este, aunque probablemente hay una interrupción entre sus áreas (Delacour, 1977). Beebe cita el distrito ruso de Talisch y las provincias persas de Guilán y la mayor parte de Mazandarán (Beebe, 1922 (vol. III)). Johnsgard la sitúa en el sureste de Transcaucasia (Talych, al norte hasta el bajo Kura) y, al este, por los distritos caspios meridionales de Irán hasta Babol Sar y Sari, en el este de Mazandarán, donde se funde con persicus(Johnsgard, 1986). BOW resume: sureste de Transcaucasia y tierras bajas del Caspio en Irán, con números muy mermados (BOW, 2022).
Hábitat
Beebe reproduce el testimonio del naturalista Buxton sobre el norte de Persia: la forma es común tanto en las laderas septentrionales del Elburz como en el bosque extremadamente pantanoso cercano al Caspio; su acompañante Ingoldby la levantó en invierno en Bandar-i-Gaz, de entre pequeños montones de paja de arroz en arrozales encharcados, y no es rara en los densos carrizales de la zona de lagunas de Resht, donde viven con naturalidad garzas purpúreas, fochas y rascones (Beebe, 1922 (vol. III)). Es, pues, un faisán de tierras bajas húmedas, arrozales y cañaverales (Beebe, 1922 (vol. III); Delacour, 1977).
Rasgos del macho
La ficha original lo describe como la subespecie de plumaje más bien oscuro, mucho más púrpura e iridiscente que las anteriores y que colchicus en particular, con la parte inferior de la espalda y la cola de un púrpura uniforme, sin plumas ni reflejos metálicos de otro color, y con los bordes negros que dibujan la parte alta de la espalda, el pecho y las caderas más estrechos que los de la subespecie anterior (Hernández García, 2014). Para Delacour, el centro del pecho y el abdomen son rojo óxido y no negruzcos como en colchicus y septentrionalis, y los bordes negros de las plumas del pecho son más estrechos (Delacour, 1977). Beebe da el centro del pecho y los lados del abdomen en carmín purpúreo, el pecho y la parte alta del pecho con un estrecho margen purpúreo, y las plumas del pecho más puntiagudas y de bordes negros más estrechos; con todo, justifica su lugar entre las formas caucásicas por las coberteras alares de un pardo arenoso constante (Beebe, 1922 (vol. III)). BOW coincide en que las plumas del pecho son más rojo óxido que negras (BOW, 2022); Madge y McGowan la consideran poco diferenciada de la nominal (Madge y McGowan, 2002).
Hembra
La ficha original dice que es ligeramente más oscura que la de la forma nominal (Hernández García, 2014); Madge y McGowan apuntan lo mismo, que las hembras suelen ser más oscuras (Madge y McGowan, 2002).
Tamaño y peso
Ala del macho de 237–240 mm según Delacour (Delacour, 1977); no se han localizado en las fuentes consultadas medidas de la hembra ni pesos propios de la subespecie.
Medidas por fuente
Ala del macho: 237–240 mm, media de 238,5 mm (Hartert y Delacour, n = 2) y 222 ± 9 mm (Kayvanfar y colaboradores, n = 15) (Wikipedia (subespecies)).
Variación
Buxton vio en los bazares de Resht y Enzeli muchas decenas de ejemplares y observó que una pequeña proporción tenía anillos blancos casi completos en el cuello, pese a ser en lo demás típicos de esta subespecie; como las aves se vendían con la garganta cortada, no conservó pieles (Beebe, 1922 (vol. III)). Los faisanes se vendían entonces por un tolmán, unos ocho chelines, precio que bastaba, según el propio Buxton, para poner contra ellos la mano de todos los cazadores (Beebe, 1922 (vol. III)). Buxton añade que, a juzgar por los pocos ejemplares del museo de Tring y del Museo Británico y por los tres machos que tenía a mano, habría concluido que el anillo blanco de otras formas orientales se reducía aquí a una pluma de punta blanca ocasional, lo que el mercado de Resht desmentía (Beebe, 1922 (vol. III)).
Estado
Para BOW, los números son muy mermados y la forma se considera muy rara; en la sección de conservación advierte de que subespecies como talischensis tienen poblaciones silvestres críticamente pequeñas y en declive, y reclama más atención a la conservación a nivel de subespecie (BOW, 2022). Los análisis genéticos citados por BOW agrupan talischensis con colchicus y persicus en uno de los ocho linajes, aunque sin apoyo sólido (BOW, 2022). Ashrafzadeh y colaboradores (2021) la citan como ejemplo de subespecie hoy muy rara, del sureste del Cáucaso y el noroeste de Irán junto al Caspio, con una población total de solo 200–300 individuos (Ashrafzadeh et al., 2021).
Situación actual (Wikipedia)
Wikipedia cuenta, para Azerbaiyán, 105 individuos en los recuentos de primavera de 1982, entre 25 y 31 en 1993–1995 y 5–7 en 2003–2005, y una estima de no más de 50 parejas en 2023; añade que hasta los años cincuenta se encontraba también en la llanura de Lenkorán, la de Salyan y las estribaciones de Talish, que hoy se conoce sobre todo de las laderas norte del Elburz y de las tierras bajas caspias de Irán (Guilán), que la amenazan los faisanes de caza liberados y que su declive reciente en Guilán se atribuye en parte a los mapaches introducidos (Wikipedia (subespecies)). Describe al macho con el centro del pecho y los lados del vientre carmín purpúreo o rojo bronce purpúreo, el abdomen rojo zorro, ladrillo u óxido, y las coberteras alares pardo arenoso o pardo arenoso rojizo (Wikipedia (subespecies)). Es la subespecie con la situación más grave de todo el grupo.
Cautividad y papel en la historia
No se documenta en las fuentes aquí revisadas su cría en cautividad ni su papel en las introducciones; solo los relatos de Buxton recogidos por Beebe muestran su aprovechamiento como pieza de caza y de mercado en el sur del Caspio (Beebe, 1922 (vol. III)). Green-Armytage la presenta como una de las bellas formas caucásicas de la orilla suroeste del Caspio (Azerbaiyán y norte de Irán), normalmente sin anillo en el cuello, y menciona que Beebe vio en los bazares aves con algunas plumas blancas e incluso anillos parciales (Beebe, 1922 (vol. III); Green-Armytage).
Las cinco fotografías no llevan autor en la ficha original. La primera muestra un macho junto a una hembra ante una valla; la segunda y la cuarta destacan por el brillo púrpura del plumaje, que es el rasgo que la ficha original subraya para esta subespecie.
Del latín persicus, «persa», por las tierras de Persia (Irán) y la costa caspiana en las que vive (Beebe, 1922 (vol. III); Jobling, 2010). Severtzov, el autor del nombre, es Nikolái Alekséievich Severtsov (1827–1885), zoólogo y explorador ruso de Asia central, que firmaba también «Sewertzow» o «Severtzow» (Jobling, 2010).
Autor y localidad tipo
Severtzov (escrito «Severzov» en Pfarr (Pfarr, 2012)), Bulletin de la Société impériale des naturalistes de Moscou, 48 (3), 1875, p. 208 (el volumen lleva fecha de 1874 pero se publicó en 1875), como especie, Phasianus persicus; localidad tipo, la orilla sur del mar Caspio (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). Rothschild (1904) y Hartert (1917) la tratan ya como subespecie de colchicus(Beebe, 1922 (vol. III)). El artículo de Wikipedia sobre las subespecies, que sigue al IOC 15.1, da 1874 para el nombre, la fecha del volumen, que según Beebe se publicó en 1875 (Beebe, 1922 (vol. III); Wikipedia (subespecies)).
Sinónimos y variantes
Beebe recoge bajo persicus: Phasianus colchicus var. de Poelzam (1870, no de Linneo), Phasianus shawi de Elliot (1876, uso erróneo del nombre, que Elliot había creado en 1870 para el faisán de Yarkand) y Phasianus komarowi de Zarudny (1885, para aves del Chirin-chai y el Kizil-kan, afluentes del Atrek) (Beebe, 1922 (vol. III)). Dresser (1903) trataba el faisán del Zeravshan como subespecie de persicus(Beebe, 1922 (vol. III)).
Distribución
La ficha original la sitúa en la región transcaspia, en el noroeste de Turkmenistán y en el noroeste de Irán (Hernández García, 2014). Las demás fuentes la ponen más al sur y al este: suroeste de Turkmenistán y noreste o centro-norte de Irán (Beebe, 1922 (vol. III); BOW, 2022; Madge y McGowan, 2002). Delacour y Johnsgard precisan el extremo suroeste de Transcaspia, en los valles del Atrek y el Gurgán y sus afluentes, y la costa sudoriental del Caspio hasta Ashurada (Delacour, 1977; Johnsgard, 1986). Beebe añade los afluentes Chirin-chai, Kizil-kan, Sumbar, Chafidyr y Kara-su y el Atrek medio, y la franja costera desde la orilla izquierda del bajo Atrek hasta la isla de Ashur-ada y la península de Potemkin; al sur la limita el Elburz, al norte el bajo Atrek y las montañas Kopet Dag y al este no pasa de Darrehgaz y Kalat-i-Nadir, el parteaguas entre el Atrek y el Heri-rud (Beebe, 1922 (vol. III)). Probablemente no llega a contactar con talischensis en Mazandarán (Beebe, 1922 (vol. III)).
Hábitat
Beebe, apoyándose en las exploraciones de Zarudny, describe vastas llanuras cubiertas de cañas o desnudas, de aspecto de estepa, compartidas con manadas de jabalíes, hienas y avutardas, y a lo largo de los ríos una banda de vegetación densa; los frutos del enebro maduran a finales de julio y principios de agosto y alimentan a los faisanes (Beebe, 1922 (vol. III)). En las islas de los ríos, cubiertas de cañas, las aves cruzan a la orilla para comer durante el día y regresan a dormir entre las cañas, protección frente a guepardos, leopardos y hienas en un país casi sin árboles (Beebe, 1922 (vol. III)). Es una forma extremadamente local: puede ser abundante a lo largo de un río y faltar por completo en otro paralelo de condiciones idénticas (Beebe, 1922 (vol. III)).
Rasgos del macho
La ficha original admite que, a primera vista, se parece a talischensis y a septentrionalis, pero se distingue por las coberteras superiores del ala por lo general gris blanquecino; los interescapulares, la parte alta del pecho y los lados con predominio de naranja dorado, con marcas negras más grandes y más abundantes, y las supracaudales de coloración uniforme y sin reflejos verdosos (Hernández García, 2014). Delacour: lados del cuerpo, pecho y manto más claros y de naranja más dorado; coberteras alares más pálidas, ante y tendentes al blanco en la parte oriental del área; plumas del pecho más puntiagudas y ligeramente entalladas (Delacour, 1977). Beebe: coberteras menores y medianas ante blanquecino, fondo amarillo dorado mucho más fuerte, abdomen ribeteado de rojo purpúreo y borde negro del pecho muy estrecho, no mayor de medio milímetro (Beebe, 1922 (vol. III)). BOW: forma intermedia entre talischensis y principalis, con el dorso, el pecho y los flancos de color base naranja dorado y coberteras alares blanco ante (BOW, 2022). Johnsgard la separa en su clave por los lados y el manto naranja dorado y las coberteras pardo arenoso o ante; y la repite entre las formas de alas blancas por las plumas del pecho de bordes negros estrechos y el centro del vientre pardo oscuro (Johnsgard, 1986).
Hembra
Beebe indica que la hembra de principalis es mucho más pálida que las de colchicus y persicus, lo que sitúa a la hembra persa entre las más oscuras del grupo (Beebe, 1922 (vol. III)); Delacour sostiene que las hembras de las cuatro formas del grupo del Cáucaso son iguales (Delacour, 1977).
Tamaño y peso
Ala del macho de 233–248 mm (Delacour, 1977). No se han localizado en las fuentes aquí revisadas medidas de la hembra ni pesos propios de la subespecie.
Medidas por fuente
Ala del macho: 236 mm (Ogilvie-Grant); 233–248 mm (Hartert y Delacour, n = 5); 230,9 ± 11 mm (Kayvanfar y colaboradores, n = 54); y 210–248 mm, media de 232 mm (Aliakbari y colaboradores, n = 22), según Wikipedia (Wikipedia (subespecies)).
Variación
Hacia el este de su área las coberteras alares se vuelven más claras y casi blancas, lo que enlaza esta subespecie con las de alas blancas; Beebe la considera intermedia entre los faisanes caucásicos de alas oscuras y vientre pardusco y los de alas blancas y vientre rojizo, y señala que salva barreras montañosas que detienen a otras aves y muestra indicios ocasionales de cruzamiento con las vecinas (Beebe, 1922 (vol. III); Delacour, 1977). Delacour apunta que parece haber un hueco entre su área y las de las formas más orientales (Delacour, 1977).
Estado
BOW da una población comunicada de 900–1.000 aves en 1996 (BOW, 2022). No se han localizado en las demás fuentes revisadas cifras más recientes de la subespecie.
Situación actual (Wikipedia)
Wikipedia sitúa la subespecie en el suroeste de Turkmenistán (reserva natural de Sünt-Hasardag, Kara Kala) y en el centro-norte de Irán (Mazandarán, Golestán, Jorasán del Norte), y cuenta que fue exterminada por la caza en los alrededores de Ashjabad y Gökdepe hacia 1920, tras lo cual principalis expandió su área hacia el norte y ocupa hoy esas zonas; describe a la hembra como similar a la de colchicus pero a menudo algo más pálida (Wikipedia (subespecies)).
Cautividad y papel en la historia
No se documenta en las fuentes aquí revisadas su cría separada en cautividad ni su papel en las introducciones.
De las cuatro fotografías, dos son machos adultos, una es una hembra y la cuarta, la que lleva el nombre de archivo más corto, es un polluelo con restos de cáscara. En la ficha original, el texto de esta subespecie incluye además la cabecera del grupo siguiente, que se ha trasladado a la introducción del grupo de alas blancas. Ninguna de las fotografías lleva autor.
Grupo de alas blancas: faisanes del Transcaspio y de Asia central
La ficha original define así este segundo grupo, que se conserva: se caracteriza por la ausencia de collar, o en todo caso por un collar poco evidente, con la grupa y la rabadilla púrpura cobre, coberteras y plumaje blanquecino o de color arena claro, que en general es más pulido y brillante que el del grupo anterior; su área se extiende desde algunas antiguas repúblicas rusas hasta China, y a sus representantes se les llama indistintamente «principalis», «chrysomelas» o «de alas blancas» (Hernández García, 2014). La ficha original añade, en la cabecera del grupo, que son «6 subespecies»; BOW, Delacour y Johnsgard cuentan en efecto seis, pero incluyen entre ellas al faisán de Yarkand (shawii), que esta ficha describe con las formas de Asia central del Tarim, de modo que aquí se tratan las cinco restantes: principalis, zarudnyi, bianchii, chrysomelas y zerafschanicus(BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Delacour describe el grupo con precisión: son los faisanes de los valles del sur del Turquestán ruso y del norte de Afganistán, los del Amu Daria y sus afluentes y los de los ríos del oeste del Turquestán chino; se parecen mucho a los de cuello negro, pero se distinguen por las coberteras alares de un blanco puro, en su mayoría con bordes rojo castaño, por las partes superiores de un rojo más ardiente y muy parecidas en todas las subespecies, por un collar blanco que unas formas tienen y otras apenas insinúan y por los bordes metálicos oscuros de las plumas inferiores, más verdes o más púrpura, muy anchos y capaces de ocultar el rojo del centro del pecho en algunas formas; las plumas del pecho son cuadradas y ligeramente entalladas, y dos subespecies tienen la garganta púrpura granate (Delacour, 1977). Las hembras son más claras y menos marcadas por debajo que las de cuello negro (Delacour, 1977). Johnsgard resume que, en conjunto, los machos son más rojizos y menos purpúreos por encima que los del grupo de cuello negro y tienen las coberteras alares blancas o blanquecinas, con collares incompletos e irregulares en algunas subespecies (Johnsgard, 1986).
Viven en pastizales y cañaverales de valles y oasis, casi siempre a baja altitud (rara vez por encima de 2.000 pies, unos 600 m), en terreno llano y a menudo muy húmedo, y acuden con facilidad a comer a los campos de cultivo; allí donde el hombre no los ha perseguido en exceso siguen siendo abundantes, en parte porque varias de las subespecies crían en regiones poco accesibles (Delacour, 1977; Gerrits, 1974). Muchas de las áreas están aisladas por desiertos y altas montañas; algunas formas intergradan en grado todavía no bien conocido (Delacour, 1977). Delacour señala que las subespecies más orientales del grupo se habrán tocado en ocasiones cuando los cambios en los valles crearon hábitats favorables, y que la distribución de zarudnyi y chrysomelas ha cambiado en el pasado con las alteraciones de los cursos fluviales y con la intervención humana (Delacour, 1977). De todo el grupo, solo el faisán Príncipe de Gales se introdujo en Europa (Delacour, 1977).
La genética no confirma del todo las agrupaciones por el plumaje. En el estudio que recoge BOW, tres de las subespecies (principalis, bianchii y shawii) forman un mismo linaje, el grupo principalis–chrysomelas, uno de los ocho linajes propuestos, aunque estos «no cuentan con un apoyo sólido»; chrysomelas, zerafschanicus y zarudnyi no se examinaron y se mantienen en el grupo por tradición (BOW, 2022). Robertson, por su parte, duda de la validez de tantas subespecies y recuerda que las expediciones eran proclives a describir como nueva cualquier forma con una ligera diferencia de plumaje, que además podían dedicar a su patrocinador o jefe de expedición, como ocurre con el faisán Príncipe de Gales (Robertson, 1997).
Subespecie
Autor y año (Delacour, BOW, Madge)
Pfarr
Ficha original de la web
Beebe (1922)
Localidad tipo
principalis
P. L. Sclater, 1885
P. L. Sclater, 1885
P. L. Sclater, 1904
Sclater, 1885 (la combinación colchicus principalis, de Rothschild, 1904)
Bala Murghab, Afganistán
zarudnyi
Buturlin, 1904 (nombre nuevo para medius Zarudny, 1896)
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Amu Daria, de Khiva a Chardjui
bianchii
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Buturlin, 1904
Alto valle del Amu Daria
chrysomelas
Severtzov, 1875
«Severzov», 1904
Severtzov, 1875
Sewertzow, 1875
Bajo Amu Daria, Turquestán ruso
zerafschanicus
Tarnovski, 1893 (Delacour, BOW)
«Farnovski», 1893
Tarnovski, 1893
Tarnovski, 1891
Katla Gurgan, Samarcanda
Autores y años según Delacour (1977), Madge y McGowan (2002), BOW (2022), Beebe (1922), la tabla de Pfarr y la ficha original. Las diferencias se discuten en cada tarjeta.
El plumaje juvenil de un faisán de alas blancas: las observaciones de la señora Koslova
Delacour recoge, en su capítulo de los faisanes verdaderos, las observaciones de la señora Koslova sobre el desarrollo del plumaje de los machos jóvenes de una de las formas de alas blancas, que él considera aplicables a todos los faisanes verdaderos, tanto a las subespecies en su hábitat natural como a las aves de origen mezclado introducidas en Europa, América y otros países (Delacour, 1977). Según esas notas, el primer plumaje juvenil tiene las partes superiores pardas, con anchos márgenes ocráceos pálidos y listas centrales del mismo tono, plumón gris pizarra en el trazado dorsal, y las partes inferiores ocre pálido con pequeñas manchas pardo oscuras (Delacour, 1977). A los cuarenta días aparece el vestido intermedio, con plumas sueltas en el pecho, los costados, la nuca y los escapularios, muy visibles por sus anchos bordes rojizos castaños en la punta, con el borde interior negro, el astil negro y una estrecha lista central ocre pálido en cada pluma; solo los bordes rojizos asoman por debajo de las plumas superpuestas (Delacour, 1977). A los cincuenta y dos días siguen predominando las plumas del vestido juvenil, el intermedio se desarrolla en pequeños parches en el pecho y brotan aquí y allá plumas adultas; a los tres meses y medio el vestido intermedio está completo, con plumas rojizas en el pecho y los costados y solo pequeños parches de verde brillante adulto en los lados del pecho y algunas plumas rojizas en la nuca y los escapularios; en las semanas siguientes se sustituye por el vestido adulto, que queda completo a los cinco meses (Delacour, 1977). Delacour precisa que la señora Koslova no estudió a las hembras y que este segundo vestido juvenil o intermedio del macho es notable por su reducción, pues nunca afecta a todo el plumaje y es sustituido rápidamente por plumas adultas de crecimiento rápido (Delacour, 1977). Madge y McGowan, para la especie en conjunto, sitúan en 6–8 semanas la muda al plumaje inmaduro del macho y en unos 5 meses la adquisición de los rasgos plenos del macho adulto, de manera que los machos jóvenes parecen constantemente «a parches» durante los primeros meses de vida (Madge y McGowan, 2002).
El nombre se debe, según Beebe, a que los primeros ejemplares, obtenidos por miembros de la Comisión de Delimitación de Afganistán, eran propiedad de Su Alteza Real el príncipe de Gales; Sclater los exhibió en la Sociedad Zoológica de Londres y los nombró en 1885 (Beebe, 1922 (vol. III); Delacour, 1977). Robertson lo cita como ejemplo de las subespecies dedicadas al patrocinador o jefe de una expedición (Robertson, 1997). El adjetivo latino principalis (de princeps) significa «principal, del príncipe» (Jobling, 2010). Philip Lutley Sclater (1829–1913) fue un ornitólogo inglés (Jobling, 2010).
Autor y localidad tipo
P. L. Sclater, Proceedings of the Zoological Society of London, 1885, p. 322, lám. XXII, como especie, Phasianus principalis; localidad tipo, Bala Murghab, en el noroeste de Afganistán; el tipo se conserva en el Museo Británico (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). La combinación Phasianus colchicus principalis es de Rothschild (Bulletin of the British Ornithologists' Club, 14, 1904, p. 37) (Beebe, 1922 (vol. III)). La ficha original y el libro del autor dan «Sclater, 1904», que parece proceder de esta combinación y no del nombre original; la tabla de Pfarr, Beebe, Delacour, Madge y BOW coinciden en 1885, y es la fecha que figura aquí (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr, 2012).
Sinónimos y variantes
Phasianus komarowii Bogdanov, 1886 (Ashjabad), basado en aves occidentales de la subespecie recogidas por Zarudny en 1883 y descritas un año después de la de Sclater; Beebe lo considera un carácter «enteramente variable e inestable»: el brillo verdoso en lugar de purpúreo de las puntas negras de las plumas de los flancos (Beebe, 1922 (vol. III)). Otros nombres de la sinonimia de Beebe: Phasianus principalis komarowi (Buturlin, 1904, para las cuencas del Tedyen y del Heri-rud) y Phasianus principalis typicus (Buturlin, 1908) (Beebe, 1922 (vol. III)). Madge y McGowan incluyen bogdanowi y komarowii en esta subespecie, mientras que Beebe coloca bogdanowi (Buturlin, 1904) entre los sinónimos de zarudnyi(Beebe, 1922 (vol. III); Madge y McGowan, 2002).
Distribución
La ficha original la extiende de Turkmenistán al extremo norte de Irán y al norte de Afganistán (Hernández García, 2014). BOW: sureste de Turkmenistán, extremo noreste de Irán y noroeste de Afganistán (BOW, 2022). Delacour y Johnsgard precisan el sur del Turquestán ruso y el norte de Afganistán, sobre todo en el valle del Tedjen, al oeste hasta unos cincuenta millas al este de Ashjabad, al norte hasta el desierto de Karakum y al sur hasta el valle del Murghab y los oasis de Merv, Yolotan y Panjdeh (Delacour, 1977; Johnsgard, 1986). Beebe añade el noreste de Persia, el desierto de Merv, el valle del río que en Turkestán se llama Tedjen y en Afganistán Heri Rud, y los arroyos que bajan de las vertientes orientales de Darrehgaz y Kalat-i-Nadir (Dushak, Kaahka, Lutfabad); en el Heri Rud llega hasta Kafir-Kala, ha sido exterminado en Ahal-Teke y por el oeste solo alcanza Baba-Durmaz, unos 75 km al este de Ashjabad; al norte lo limitan Repetek y las arenas del Karakum, y al oeste y al sur el parteaguas entre el Caspio y las cuencas interiores (Beebe, 1922 (vol. III)).
Hábitat
Aitchison, naturalista de la Comisión de Delimitación, halló los ejemplares en las orillas del Bala-Murghab, donde la especie vive en considerable número en la jungla de tamariscos y hierbas que crece en el lecho del río; en una marcha de treinta millas por ese río se cobraron más de cuatrocientos; el faisán vadea el agua e incluso nada, y se siente en casa en esos matorrales, donde siempre hay agua de dos o tres pies de profundidad; por la mañana y por la tarde sale a comer a las zonas abiertas y secas (Beebe, 1922 (vol. III)). El Murghab es, según Curtis (citado por Beebe), un río turbio y de color de mal café, que en primavera se vuelve un torrente terrible y en otoño un cauce estancado, y el oasis de Merv, que riega, es de los más notables de Asia (Beebe, 1922 (vol. III)). Beebe cita también, para las islas de los ríos del Atrek, junto a la subespecie vecina, los densos cañaverales, a veces estepas desnudas, donde conviven con jabalíes, antílopes y avutardas; sus principales enemigos son chacales, gatos monteses y, de vez en cuando, guepardos y leopardos (Beebe, 1922 (vol. III)).
Rasgos del macho
Según la ficha original, el macho adulto tiene las coberteras del ala de un blanco casi puro; la parte alta de la espalda con una base dorada predominante y un dibujo de escamas bien desarrollado por los grandes bordes (1,5 mm), que en la zona interescapular suelen fundirse con las manchas oscuras de la punta de las plumas; el hombro, ampliamente bordeado, se distingue por el dibujo central negro mate y el blanco crema escondido bajo las otras plumas, por lo que estas partes carecen del moteado típico de las subespecies caucásicas; el rojo violeta de la parte posterior del cuello no siempre es visible, y el borde rojo púrpura de las plumas del centro del pecho, hasta la base del cuello, es casi indistinguible (Hernández García, 2014). Delacour: corona verde, garganta púrpura granate, bordes oscuros de las plumas del pecho anchos y pardo purpúreos, abdomen pardo, excepcionalmente vestigios de collar blanco y plumas del pecho ligeramente redondeadas (Delacour, 1977). Beebe: coberteras blancas como las de persicus, pero rabadilla rojo bronce y parte baja de la espalda, rabadilla y supracaudales sin el brillo púrpura laca; pecho ampliamente orlado de rojo purpúreo bronce, flancos de verde oscuro o azul purpúreo, y escapularios muy orlados de negro (Beebe, 1922 (vol. III)). BOW: cabeza oscura y brillante, verde en la corona y púrpura en la garganta; cuerpo pardo con marcas oscuras, más rojizo por encima; coberteras blancas con marcas castañas (BOW, 2022). Johnsgard la separa del resto de la sección de alas blancas por carecer de collar o tenerlo solo como manchas blancas (Johnsgard, 1986).
Hembra
Según la ficha original, la hembra es «similar» (a las de las demás subespecies), pero de plumaje más claro que el de la forma nominal (Hernández García, 2014). Beebe la describe como mucho más pálida que las hembras de colchicus y persicus, con el color de fondo del manto rufo más claro y el cuerpo de un ante arenoso muy pálido; es muy parecida a la hembra de chrysomelas(Beebe, 1922 (vol. III)). Delacour dice de la hembra de chrysomelas que es «un poco más oscura que la de principalis» (Delacour, 1977).
Tamaño y peso
Ala del macho de 234–245 mm según Delacour y de 235–253 mm según Johnsgard (con datos de Vaurie, 1965, y de Dementiev y Gladkov), con una cola de 390–510 mm (Delacour, 1977; Johnsgard, 1986). No se han localizado en las fuentes aquí revisadas pesos ni medidas legibles de las hembras.
Medidas por fuente
Ala del macho: 239 mm (Ogilvie-Grant); 234–248 mm (Hartert y Delacour, n = 17); 238–250 mm, media de 244 mm (Dementyev, n = 9); 235–253 mm, media de 242,5 mm (Vaurie, n = 10); y 245,9 ± 23 mm (Kayvanfar y colaboradores, n = 35), según Wikipedia (Wikipedia (subespecies)).
Variación
La separación de komarowii se basó solo en el matiz del brillo de los flancos, carácter que Beebe tiene por inestable; algunos ejemplares tienen vestigios de collar blanco (Beebe, 1922 (vol. III); Delacour, 1977). Según Delacour, principalis está separada de zarudnyi por los desiertos de Repetek y Karakum (Delacour, 1977).
Estado
Beebe escribía que estas aves seguirán viviendo «hasta que las exterminen las constantes incursiones del cultivo del hombre» (Beebe, 1922 (vol. III)) y que se habían extinguido ya en Ahal-Teke (Beebe, 1922 (vol. III)). No se han localizado en las fuentes consultadas (BOW, Madge y McGowan, Delacour, Johnsgard) cifras de población propias de la subespecie.
Situación actual (Wikipedia)
Según Wikipedia, la subespecie ocupa el sureste de Turkmenistán (incluido el oasis de Merv), el extremo noreste de Irán (Jorasán, de Quchan a Sarakhs) y el norte de Afganistán (valles del Murghab y del Tedjen o Heri Rud); en Afganistán probablemente se extinguió hacia 1959 por la caza excesiva y la destrucción del hábitat; hay fotografías de aves silvestres en el Parque Nacional de Tandoureh, en Irán. Añade entre los sinónimos P. non-ultimus Zarudny, 1909 (Wikipedia (subespecies)). Describe al macho como parecido a persicus, pero con las coberteras blancas, un manto dorado más vivo y un plumaje más rojizo, sin el brillo azul púrpura, y casi siempre sin collar blanco visible (Wikipedia (subespecies)).
Cautividad y papel en la historia
Es la única subespecie del grupo de alas blancas que llegó a Europa. Beebe recoge el testimonio del coronel Sunderland: sus primeros intentos con huevos fracasaron; en el otoño de 1902 viajó a Oriente, consiguió varios ejemplares, en igual número de machos y hembras, y los soltó en grandes recintos de Hampshire a finales de febrero de 1903; empezaron a poner a finales de abril y las hembras de un corral pusieron en media más de treinta huevos, casi todos fértiles, que eclosionaron muy bien; los polluelos, criados con natillas y harina de avena como recomendaba Tegetmeier, resultaron tan fáciles de criar como los del faisán corriente (Beebe, 1922 (vol. III)). Se criaron en campos de maíz y trigo sarraceno rodeados de redes de diez pies; Sunderland les seccionó la articulación del ala a los cinco días de edad, dejándoles dos plumas de vuelo, error que les permitió salvar la red volando; en octubre los trasladó a Sussex y dejó algunos en los bosques de Conholt Park, donde se abatieron un par de ellos por confusión con aves silvestres (Beebe, 1922 (vol. III)). Cada corral, de varios acres de bosque, pasto y tierra de labor, albergaba solo cinco gallinas y un gallo (sin parentesco) por acre, para que la cepa se mantuviera libre de las enfermedades de la civilización, y Sunderland notó que las aves gustaban de las flores de la mostaza silvestre (Beebe, 1922 (vol. III)). Delacour completa la historia: los criados por Sunderland en Hampshire el año siguiente para repoblar sus cotos pronto desaparecieron por hibridación con los faisanes de cuello negro y otros; una cepa pura se mantuvo en faisaneras hasta 1914, pero al final de la Primera Guerra Mundial se había perdido por completo (Delacour, 1977). Beebe, en cambio, la daba como introducida con éxito en Inglaterra, tanto en el zoo como en cotos de caza (Beebe, 1922 (vol. III)). Wikipedia lo menciona entre las subespecies presentes en el stock británico de faisanes (Wikipedia).
El epíteto honra a Nikolái Alekséievich Zarúdny (1859–1919), zoólogo y colector ruso, conservador del Museo de Tashkent entre 1885 y 1903 (Jobling, 2010). Beebe lo describe como un viajero y colector ruso que exploró el país de los turcomanos en 1883, en plena agitación política, y cuyos ejemplares y notas se enviaron al profesor Bogdánov (Beebe, 1922 (vol. III)). Zarudny fue también el primero en describir esta forma, con otro nombre, medius(Beebe, 1922 (vol. III)). El nombre del autor, Sergéi Aleksándrovich Buturlin (1872–1938), figura en Jobling como zoólogo y explorador ruso de Siberia (Jobling, 2010).
Autor y localidad tipo
Buturlin, Ibis, 1904, p. 390, como Phasianus principalis zarudnyi; es un nombre nuevo para Phasianus medius Zarudny, 1896 (Ornithologische Fauna von Transcaspien, p. 481), nombre preocupado por Phasianus medius Milne-Edwards (1870, un faisán fósil), que Buturlin sustituyó (Beebe, 1922 (vol. III); Delacour, 1977). Localidad tipo, el Amu Daria de Khiva a Chardjui (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). Pfarr y la ficha original dan igualmente «Buturlin, 1904» (Hernández García, 2014; Pfarr, 2012).
Sinónimos y variantes
Grafías: el libro del autor escribe «zarudnnyi» y el archivo de la ficha original, «zaraudni»; la forma correcta es zarudnyi(Delacour, 1977; Hernández García, 2014). Sinónimos: medius Zarudny, 1896; gordius Alphéraky y Bianchi, 1907 (publicado en 1908, Kamas, Bujara); tschardjuensis Buturlin, 1908; jabae y michailovski Zarudny, 1909; y la citación de Zarudny de 1891 como principalis («nota sobre una nueva variedad», Daragan-Ata) (Beebe, 1922 (vol. III); Delacour, 1977; Madge y McGowan, 2002). Madge y McGowan incluyen tschardjuensis, medius y gordius en zarudnyi y colocan jabae y michailowskii en bianchii, igual que Delacour; Beebe, en cambio, los lista bajo zarudnyi, aunque admite que jabae podría ser un híbrido o transición entre zarudnyi y bianchii(Beebe, 1922 (vol. III); Delacour, 1977; Madge y McGowan, 2002). Beebe coincide con Hartert en que gordius y tschardjuensis son simples variaciones individuales (Beebe, 1922 (vol. III)).
Distribución
La ficha original la sitúa en las áreas centrales de los valles aluviales del Amu Daria, desde la ciudad de Kerki, al norte, hasta Dargan Ata (Hernández García, 2014). Johnsgard y Madge y McGowan dan la misma franja, de Kerki a Darganata, en la frontera entre Turkmenistán y Uzbekistán (Johnsgard, 1986; Madge y McGowan, 2002); BOW la sitúa en los valles centrales del Amu Daria, en esa frontera oriental (BOW, 2022). Delacour la delimita en el valle medio del Amu Daria (Oxus), en el Turquestán, con probable intergradación con chrysomelas en el norte y con bianchii en el sur; la separan de principalis los desiertos de Repetek y Karakum (Delacour, 1977). Beebe apunta Petro-Alexandrovsk como límite norte, donde casi toca el área más meridional de chrysomelas, y Karnas (Kamas), no lejos de la frontera afgana, como punto más oriental, cerca de bianchii(Beebe, 1922 (vol. III)). Delacour advierte de que la distribución de esta subespecie y de la siguiente ha cambiado en el pasado con los cambios de curso de los ríos y con la intervención humana (Delacour, 1977).
Hábitat
Las fuentes consultadas no recogen datos propios de la subespecie: Beebe afirma que de sus costumbres «nada se ha registrado» y se limita a reproducir la descripción de Lord Curzon del lecho del Amu Daria, una depresión inundable de dos a tres millas de ancho que en verano, con el deshielo del Hindu Kush y del Pamir, puede cubrir hasta cinco millas, y de cauce de entre media milla y una milla en otoño e invierno, con agua turbia de color café, orillas de suelo fértil y pueblos de barro, semejante a muchos paisajes del Nilo (Beebe, 1922 (vol. III)). Para el conjunto del grupo de alas blancas valen los datos de pastizales y cañaverales de valles y oasis a baja altitud (Delacour, 1977).
Rasgos del macho
La ficha original no describe el plumaje de esta subespecie y solo advierte que dentro de ella se aprecia una considerable variedad de colores (Hernández García, 2014). Delacour: garganta verde; bordes oscuros de las plumas del pecho estrechos y apenas entallados; collar blanco variable, a menudo ausente o indicado por unas pocas plumas (Delacour, 1977). Beebe: el negro terminal de los escapularios es muy estrecho, no ancho como en principalis; el collar blanco puede ser casi completo, reducirse a vestigios laterales o faltar del todo; el púrpura del pecho es más oscuro, las puntas de los flancos verdosas y las plumas de la garganta con bordes verdosos y no púrpura (Beebe, 1922 (vol. III)). BOW: macho con garganta verde brillante, collar blanco parcial variable y estrechas marcas oscuras en el pecho, similar a principalis(BOW, 2022). Madge y McGowan: más pálida y brillante que principalis, con una cantidad variable de blanco en la nuca (Madge y McGowan, 2002). Johnsgard, en su clave, la distingue de zerafschanicus por los flancos manchados de verde negruzco (los de aquella, de púrpura azulado), con collar blanco incompleto y muy estrecho (Johnsgard, 1986).
Hembra
Las fuentes consultadas no describen la hembra de esta subespecie; la fotografía de la tarjeta muestra una hembra de plumaje claro, moteada de oscuro. En el conjunto del grupo, las hembras son más claras y menos marcadas por debajo que las de cuello negro (Delacour, 1977).
Tamaño y peso
Ala del macho de 227–244 mm según Johnsgard, con datos de Dementiev y Gladkov (1967); la cifra de la hembra no es legible en el texto consultado (Johnsgard, 1986).
Medidas por fuente
Ala del macho: 227–244 mm, media de 234 mm (Dementyev, n = 8), según Wikipedia (Wikipedia (subespecies)).
Variación
Es una subespecie variable: la ficha original destaca la variedad de colores dentro de ella, y los cuatro nombres de Beebe (gordius, tschardjuensis, jabae, michailovski) responden a variaciones individuales o a transiciones con bianchii(Beebe, 1922 (vol. III); Hernández García, 2014). Delacour supone que se funde con chrysomelas al norte y con bianchii al sur (Delacour, 1977).
Estado
No se han localizado en las fuentes consultadas datos de población ni de conservación propios de la subespecie. Según Johnsgard, solo en Tayikistán la población otoñal del faisán común en su conjunto podría rondar 1,5 millones de aves, cifra del conjunto de la especie y no de esta subespecie (Johnsgard, 1986).
Situación actual (Wikipedia)
Wikipedia precisa que el área original, el valle central del Amu Daria en la frontera oriental entre Turkmenistán y Uzbekistán, llegaba al norte hasta Turtkul y al sur hasta Kerki y Köýtendag; hoy el límite norte es el embalse de Tuyamuyun y el sur está cerca de Kelif; hay contacto secundario con zerafschanicus a lo largo del canal Amu-Bujará; en Uzbekistán se restringe a la Reserva de Tugai y Arenas de Kyzylkum (Wikipedia (subespecies)). En primavera la mayoría de las aves se concentra en el tugai de las orillas (bosque de ribera) y en otoño e invierno ocupa sobre todo islas, tierras de cultivo cercanas y márgenes del desierto; el macho tiene el collar blanco muy variable, por lo general dos bandas laterales en media luna, a veces reducido a unas pocas plumas ocultas y rara vez ausente; Dementyev lo consideraba una forma híbrida derivada de cuatro subespecies vecinas (Wikipedia (subespecies)).
Cautividad y papel en la historia
Es una de las subespecies de alas blancas que se mantienen en colecciones privadas: las fotografías de la ficha, de aves en cautividad, lo muestran, y Green-Armytage incluye una fotografía de este faisán en su libro (Green-Armytage; Hernández García, 2014). Ese autor lo sitúa en el valle del Amu Daria, entre Turkmenistán, Uzbekistán y Kazajistán, y recuerda el nombre del naturalista ruso (Green-Armytage); en el prefacio, sin embargo, lo llama «del Cáucaso», lo que no concuerda con ninguna de las demás fuentes (Green-Armytage).
Las fotografías proceden de aves cautivas. El libro del autor publica de esta subespecie una pareja y un macho, ambos de Saul Villagrana (el libro escribe «zarudnnyi»); se atribuyen a ese autor la pareja (primera fotografía) y el macho (segunda), por corresponder a la descripción «pareja» y «macho» del pie del libro y a una misma serie de fotografías de aves cautivas; es una asignación por confirmar, y las demás figuran sin autor (Hernández García, 2014). La sexta fotografía de la carpeta (un macho de perfil, «zarunyi2») se muestra al final de la tarjeta.
Dedicado a Valentín Lvóvich Bianki (Bianchi) (1857–1920), ornitólogo ruso y conservador de la Academia Imperial de Ciencias de San Petersburgo, que Jobling asocia, entre otros taxones, con esta subespecie del faisán (Beebe, 1922 (vol. III); Jobling, 2010). Bianchi había citado en 1886 faisanes del alto Oxo (valles del Kafirnagán y el Vaksh) como chrysomelas, determinación que Beebe pone en duda (Beebe, 1922 (vol. III)).
Grafías: bianchii es la forma original; Johnsgard y su tabla de medidas escriben a veces bianchi, y la ficha original, bianchii(Hernández García, 2014; Johnsgard, 1986). Sinónimos: Phasianus chrysomelas de Bianchi (1886, aves del Kafirnagán y el Vaksh, de determinación dudosa) y Phasianus jabae y Phasianus michailowski Zarudny, 1909 (el primero, del Amu Daria muy por encima de Chardjui; el segundo, de la región del Pamir) (Beebe, 1922 (vol. III); Delacour, 1977; Madge y McGowan, 2002).
Distribución
La ficha original: valle superior del Amu Daria, sur de Uzbekistán, extremo este de Turkmenistán, suroeste de Tayikistán y norte de Afganistán (Hernández García, 2014). BOW, Madge y McGowan: valle superior del Amu Darya, en el sur de Uzbekistán, el suroeste de Tayikistán y el extremo norte de Afganistán (BOW, 2022; Madge y McGowan, 2002). Delacour y Johnsgard: alto Amu Daria entre las montañas Hissar, Alai, Pamir y Hindu Kush, en la provincia de Bujará; probablemente intergradan con zarudnyi en el norte (Delacour, 1977; Johnsgard, 1986). Beebe cita a los señores Grum-Grzimailo, que encontraron la forma en 1885 en las montañas de Bujará, en los valles del Kafirnagán (Dschidda-bach) y del Vaksh (Kurgan-Tjube); por el norte, el este y el sur el área queda limitada por las cadenas de Hissar, Alai, Pamir y Hindu Kush, y no se conoce su extensión río abajo ni su relación exacta con zarudnyi(Beebe, 1922 (vol. III)).
Hábitat
No hay descripciones propias de la subespecie en las fuentes consultadas. Delacour describe para el conjunto de las formas de alas blancas los pastizales y los cañaverales de valles y oasis, a baja altitud, en terreno llano y húmedo (Delacour, 1977). Para el conjunto de la especie, Dementiev y Gladkov (citados por Johnsgard) dan las cañas y matorrales de los valles fluviales, hasta 1.500–2.600 m y raramente 3.400 m (Johnsgard, 1986).
Rasgos del macho
Delacour: se parece a chrysomelas, pero las manchas y los bordes son azul verdoso brillante y no verde, y todavía más anchos en las partes inferiores, hasta ocultar casi el rojo de las plumas del pecho; collar blanco escaso o ausente (Delacour, 1977). Beebe: como chrysomelas, con los márgenes negros de las plumas del pecho más anchos, de modo que el negro domina sobre el rojo cobrizo de la parte visible (Beebe, 1922 (vol. III)). BOW: marcas oscuras brillantes azul verdoso más anchas y marrón rojizo reducido en el pecho; collar blanco reducido o ausente (BOW, 2022). Madge y McGowan: más oscura por debajo que principalis y zarudnyi, con las marcas negruzcas confluyentes en el pecho, y partes superiores más apagadas y pardas, menos rojizas, que las del resto (Madge y McGowan, 2002). Johnsgard, en su clave, la separa de chrysomelas por el pecho más oscuro (Johnsgard, 1986).
Hembra
Las fuentes consultadas no la describen aparte; las dos fotografías de la tarjeta muestran hembras de fondo pardo claro con moteado oscuro en el dorso y los flancos. Las hembras del grupo de alas blancas son más claras y menos marcadas por debajo que las de cuello negro (Delacour, 1977).
Tamaño y peso
Ala del macho de 240–260 mm y de 219 mm en la hembra; peso de cuatro machos, de 956 a 1.300 g (media de 1.106,5 g), y de dos hembras, de 710 y 850 g (Dementiev y Gladkov, 1967, según Johnsgard) (Johnsgard, 1986).
Medidas por fuente
Ala del macho: 240–260 mm, media de 249,7 mm (Dementyev, n = 20), según Wikipedia, que la considera la de mayor tamaño del subgrupo (Wikipedia (subespecies)).
Variación
Intergrada probablemente con zarudnyi al norte (Delacour, 1977); Beebe sugiere que jabae sea una variación individual, o un híbrido o una transición entre zarudnyi y bianchii(Beebe, 1922 (vol. III)). En el análisis genético que cita BOW, bianchii forma, con principalis y shawii, uno de los ocho linajes, sin apoyo sólido (BOW, 2022).
Estado
No se han localizado en las fuentes consultadas datos de población ni de conservación propios de la subespecie. Beebe subrayaba que los límites de las cadenas montañosas aíslan su área por tres lados (Beebe, 1922 (vol. III)).
Situación actual (Wikipedia)
Wikipedia cuenta que históricamente vivía a lo largo del río Panj, de Termez a Chubek, y en el valle de Hissar, y que hoy se restringe a pequeñas poblaciones en la Reserva de Tigrovaya Balka, en islas ribereñas residuales y en varios distritos de Tayikistán; en Afganistán parecía extinguida hacia 1959; el artículo la considera «globalmente amenazada por la caza y la destrucción del hábitat» (Wikipedia (subespecies)). Añade que el macho no tiene collar blanco visible, aunque puede haber unas pocas plumas blancas ocultas, que el pecho y la parte anterior del pecho parecen casi enteramente verde azulado o verde negruzco brillante por los anchos márgenes verde negro de las plumas, y que la hembra es muy pálida y casi sin marcas oscuras; cita también michailowski como sinónimo (Wikipedia (subespecies)).
Cautividad y papel en la historia
Se mantiene en colecciones privadas de aficionados: el libro del autor publica de esta subespecie un macho (de Scott Vowers) y una hembra (de Saul Villagrana) (Hernández García, 2014). No se documenta en las fuentes aquí revisadas su papel en las introducciones de caza; Delacour recuerda que, del grupo de alas blancas, solo principalis se introdujo en Europa (Delacour, 1977).
La ficha original ilustra esta tarjeta con una sola fotografía, la del macho. Las demás proceden de la carpeta de la ficha. Los créditos del macho y de la hembra son los del libro del autor, que publica un macho de Scott Vowers y una hembra de Saul Villagrana; se han asignado a la primera y a la cuarta fotografía por coincidir con esa descripción, asignación por confirmar (Hernández García, 2014). Las demás figuran sin autor.
El epíteto chrysomelas procede del griego khrusos, «oro», y melas, «negro» (Jobling, 2010); Beebe lo explica como «oro negro o amarillo oscuro», con referencia al color del ave (Beebe, 1922 (vol. III)). Khiva es el oasis y distrito del bajo Amu Daria donde vive (Beebe, 1922 (vol. III)). Jobling anota que el nombre chrysomeloides se formó a partir de este y se aplicó a una forma de shawii(Jobling, 2010). Nikolái A. Severtsov (1827–1885), autor del nombre, fue un zoólogo y explorador ruso de Asia central (Jobling, 2010).
Autor y localidad tipo
Severtzov (Sewertzow), Bulletin de la Société impériale des naturalistes de Moscou, 48 (3), 1875 (el volumen está fechado en 1874, pero apareció en 1875), p. 207, como especie, Phasianus chrysomelas; localidad tipo, el curso bajo del Amu Daria, en el Turquestán ruso (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). La ficha original, Delacour, Madge y BOW dan 1875, y Wikipedia (IOC 15.1), 1874, la fecha del volumen (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Wikipedia (subespecies)); la tabla de Pfarr, tal como se ha transcrito, dice «Severzov, 1904», fecha que no coincide con las demás fuentes y que se anota aquí sin elegirla, a la espera de revisar la tabla original (Pfarr, 2012).
Sinónimos y variantes
Beebe recoge, de la época de la descripción: Phasianus sp. nov. de Bogdánov (1875, Khiva), Phasianus dorrandti y Phasianus oxianus de Sewertzow (1875) y Phasianus insignis de Elliot (1876, uso erróneo del nombre que Elliot ya había empleado en 1870 para otra forma); y, más tarde, Phasianus chrysomelas typicus (Buturlin, 1908) (Beebe, 1922 (vol. III)). Madge y McGowan incluyen dorandti y oxianus en la subespecie (Madge y McGowan, 2002). Hartert (1917) la combina como Phasianus colchicus chrysomelas, y Rothschild ya lo había hecho en 1904 (Beebe, 1922 (vol. III)).
Distribución
La ficha original: tramos inferiores del Amu Daria, oeste de Uzbekistán y norte de Turkmenistán (Hernández García, 2014). BOW: delta del Amu Darya, en el oeste de Uzbekistán y el norte adyacente de Turkmenistán (BOW, 2022). Delacour y Johnsgard: delta del Amu Daria, a lo largo de la orilla meridional del mar de Aral, en el oasis de Khiva, hacia el oeste hasta la meseta del Ust-Urt y hacia el sur hasta el desierto del Karakum; puede intergradar con turcestanicus en el norte y, más probablemente, con zarudnyi en el sur (Delacour, 1977; Johnsgard, 1986). Beebe añade que por el oeste la limita el Ust-Urt y por el sur el Karakum, desierto sin agua; que desde la ciudad de Khiva hacia el sureste la sustituye zarudnyi; que a lo largo de las orillas del mar de Aral, al norte, se encuentra en algún punto con turcestanicus, de collar ancho; y que por el oeste el desierto de Kyzylkum la separa de turcestanicus(Beebe, 1922 (vol. III)). Beebe cita además un registro de Pleske (1888) en Kazalinsk (Beebe, 1922 (vol. III)).
Hábitat
No hay descripciones propias de la subespecie en las fuentes consultadas. Delacour cuenta, para el grupo, pastizales y cañaverales de valles y oasis a baja altitud, y Beebe sitúa esta forma en el delta del Oxo y en el oasis de Khiva, entre el Ust-Urt y el desierto sin agua del Karakum (Beebe, 1922 (vol. III); Delacour, 1977).
Rasgos del macho
Delacour: garganta verde; collar blanco bien marcado, interrumpido por delante y a menudo también por detrás; bordes de las plumas del cuerpo muy grandes y de un verde metálico brillante, con poco rojo visible en el pecho; abdomen pardo negruzco rodeado de verde (Delacour, 1977). Beebe: pecho y parte alta de la espalda anchamente orlados de negro, de modo que en la parte visible el negro iguala el color de fondo dorado; plumas de los flancos solo emarginadas y con una mancha negra en el extremo; barras oscuras de la mitad basal de las rectrices centrales estrechas, de dos milímetros o menos (Beebe, 1922 (vol. III)). BOW: similar a principalis, pero el macho tiene brillo verde en la garganta, el collar blanco roto y brillo verde en las marcas negras más grandes del cuerpo (BOW, 2022). Madge y McGowan: más brillante que bianchii, con las marcas del pecho no confluyentes, partes superiores más oscuras con tinte cobrizo y bronce, y collar blanco distinto aunque roto e irregular (Madge y McGowan, 2002). Johnsgard: flancos anchamente rematados de negro, barras negras de la cola más estrechas que en shawii, y pecho más claro que el de bianchii(Johnsgard, 1986).
Hembra
Delacour: un poco más oscura que la de principalis(Delacour, 1977); BOW: ligeramente más oscura que la de principalis(BOW, 2022). Beebe: se parece a la hembra de shawii, pero, como en principalis, con las manchas negras del plumaje inferior más marcadas (Beebe, 1922 (vol. III)). La fotografía de la tarjeta muestra una hembra de plumaje bien moteado de negro.
Tamaño y peso
Ala del macho de 235–250 mm; Johnsgard recoge además, con datos de Dementiev y Gladkov (1967) y observaciones propias, una cola de 483 mm en el macho, y en la hembra un ala de 228 mm y una cola de 315 mm (Johnsgard, 1986). No se han localizado pesos propios de la subespecie.
Medidas por fuente
Ala del macho: 236 mm (Ogilvie-Grant); 236–247 mm (Hartert); 235–250 mm, media de 242,5 mm (Dementyev, n = 2); y 235–250 mm (Salikhbaev y Bogdanov, n = 13), según Wikipedia (Wikipedia (subespecies)).
Variación
Delacour y Johnsgard suponen intergradación con turcestanicus al norte y con zarudnyi al sur; la variación entre ejemplares afecta sobre todo a la integridad del collar (Delacour, 1977; Johnsgard, 1986). En el análisis genético que cita BOW, chrysomelas no se examinó y se mantiene en el grupo principalis–chrysomelas por tradición (BOW, 2022).
Estado
No se han localizado en las fuentes consultadas datos de población ni de conservación propios de la subespecie. La ficha original aporta únicamente la localización de su área natural (Hernández García, 2014).
Situación actual (Wikipedia)
Según Wikipedia, vive en el curso bajo y el delta del Amu Daria, con el oasis de Khiva, en el oeste de Uzbekistán y el norte de Turkmenistán, y no llega al Syr Daria; históricamente iba de Turtkul a la orilla sudoriental del mar de Aral; cerca del 90 % del bosque de tugai original ha sido quemado o arrancado y el mar de Aral se ha desertizado, por lo que su distribución actual se conoce mal; en 2011 se creó la Reserva de la Biosfera Estatal del Bajo Amu Daria, que alberga parte de las poblaciones restantes, y observaciones recientes sugieren un desplazamiento hacia el oeste, a la depresión de Sarygamysh (Wikipedia (subespecies)). Describe al macho con collar blanco por lo general estrecho y muy abierto por delante, a veces ausente, partes superiores bronce rojo oscuro y pecho más claro que el de bianchii, con márgenes verde negro más estrechos (Wikipedia (subespecies)).
Cautividad y papel en la historia
La carpeta de la ficha incluye una fotografía de polluelos recién nacidos entre huevos pálidos, lo que muestra su cría en cautividad en manos de aficionados; no se documenta en las fuentes aquí revisadas su papel en las introducciones europeas, de las que solo principalis formó parte según Delacour (Delacour, 1977). Gerrits lo menciona solo como una de las seis subespecies de alas blancas (Gerrits, 1974).
La ficha original ilustra esta tarjeta con la fotografía del macho de la primera imagen; no consta autor para ninguna de las cuatro fotografías. El nombre de archivo de los polluelos («crysomelasp») es una variante de la grafía crysomelas, que la propia ficha original usa en la cabecera del segundo grupo (Hernández García, 2014).
El epíteto alude, según Beebe, al hábitat: el valle del Zerafshan, en Bujará (Beebe, 1922 (vol. III)). «Samarcanda» es la ciudad cercana a la localidad tipo (BOW, 2022; Delacour, 1977). El autor del nombre, el teniente Tarnovski, fue su descubridor, según Beebe (Beebe, 1922 (vol. III)).
Autor y localidad tipo
Tarnovski, The Field, 77, p. 409, como especie, Phasianus zerafschanicus; localidad tipo, Katla Gurgan, cerca de Samarcanda (BOW, 2022; Delacour, 1977). Delacour, BOW, Madge y la ficha original datan la descripción en 1893; Beebe la fecha en 1891 (cita The Field, 77, 1891, pp. 400 y 409) y da como localidad el valle del Zerafshan (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002). La tabla de Pfarr, tal como se ha transcrito, da «Farnovski, 1893», con una inicial distinta a la del nombre del autor en las demás fuentes (Pfarr, 2012). Se conservan aquí 1893 (la fecha de la mayoría) y la de Beebe, sin elegir entre ellas hasta consultar el volumen de The Field.
Sinónimos y variantes
Grafías: zerafschanicus (forma de Delacour, Madge, BOW y la ficha original), zerafshanicus (Beebe, Gerrits y los archivos de las fotografías), zarafshanicus (Dresser, 1903) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Gerrits, 1974; Madge y McGowan, 2002). Sinónimos: Phasianus klossowskii Tarnovski, 1891 (en el mismo artículo, dedicado al señor Klossovski), Phasianus principalis klossowskii de Zarudny (1891) y Phasianus tarnovskii de Seebohm (1892) (Beebe, 1922 (vol. III)). Madge y McGowan incluyen tarnowskii y klossovskii en la subespecie (Madge y McGowan, 2002). Dresser (1903) la trataba como subespecie de persicus(Beebe, 1922 (vol. III)).
Distribución
La ficha original: vive en el río Zeravshan y en el Kashka-Darya; las indicaciones de poblaciones más al norte parecen dudosas, porque esos territorios están ocupados por chrysomelas(Hernández García, 2014). BOW: valles de Bujará, Zeravshan y Kashkadarya, cerca de Samarcanda, en el sur de Uzbekistán (BOW, 2022); Madge y McGowan: valle del Zerafshan y Kaska Daya, cerca de Samarcanda, en Uzbekistán (Madge y McGowan, 2002). Delacour y Johnsgard: valle del Zerafshan en Bujará, al norte hasta la divisoria entre el Zerafshan y el Syr Daria, al sur hasta las montañas Hissar; puede intergradar con zarudnyi en el oeste, pero la divisoria entre el Syr Daria y el Zerafshan la separa por completo de turcestanicus y las montañas Hissar de bianchii(Delacour, 1977; Johnsgard, 1986). Beebe añade que, en crecida, el Zerafshan inunda casi hasta el Amu Daria, de modo que zarudnyi casi llega a tocarla por el oeste (Beebe, 1922 (vol. III)).
Hábitat
Según Tarnovski, descubridor de la forma, su modo de vida difiere totalmente del de otros faisanes asiáticos por el alto grado de cultivo del valle del Zerafshan: cría y anida en cenagales y pantanos de cañas a orillas del río y toma su alimento en los campos y huertos vecinos; el mejor momento para cazarlo es justo antes del amanecer, cuando se concentra en esos cañaverales (Beebe, 1922 (vol. III)). Es, pues, un faisán de cañaverales ribereños y cultivos de un valle densamente poblado (Beebe, 1922 (vol. III)).
Rasgos del macho
Delacour: se parece mucho a principalis, pero es más dorado y claro, con las marcas oscuras y los bordes pequeños y pardos; collar blanco ancho, interrumpido por delante; garganta púrpura; pecho inferior y lados del abdomen púrpura rosado; abdomen y subcaudales de un rojo óxido vivo; plumas del pecho estrechas y entalladas; es el pariente más cercano de los faisanes kirguises (Delacour, 1977). Beebe: es la forma más oriental del pequeño grupo de faisanes de vientre rufo; se parece a persicus en el color del pecho y a mongolicus en la presencia de collar blanco, dos caracteres que la separan del grupo de principalis(Beebe, 1922 (vol. III)). BOW: color de fondo marrón más claro y marcas oscuras más pequeñas; garganta con brillo púrpura, amplio collar blanco roto, brillo púrpura rosáceo en las partes inferiores y subcaudales oxidadas (BOW, 2022). Madge y McGowan: es la que más se aparta del resto del grupo por su collar blanco bien desarrollado, pero se parece a zarudnyi en el tono general pálido, ante y dorado (Madge y McGowan, 2002). Johnsgard, en cambio, en su clave habla de un collar blanco incompleto y muy estrecho y de flancos con manchas negras y azul púrpura (Johnsgard, 1986).
Hembra
Las fuentes consultadas no describen la hembra aparte; la fotografía de la tarjeta muestra una hembra de fondo dorado y moteado oscuro muy marcado en el dorso y los flancos. Las hembras del grupo de alas blancas son más claras y menos marcadas por debajo que las de cuello negro (Delacour, 1977). Tarnovski dio noticia de una hembra con plumaje de macho abatida por el señor Klossovski en noviembre de 1890 (Beebe, 1922 (vol. III)).
Tamaño y peso
La tabla de medidas de Johnsgard no incluye esta subespecie, y Delacour y BOW no dan medidas propias (BOW, 2022; Delacour, 1977; Johnsgard, 1986). Se carece, pues, en las fuentes aquí revisadas, de medidas y pesos propios.
Medidas por fuente
Ala del macho: 220–241 mm (Salikhbaev y Bogdanov), según Wikipedia, que la considera la subespecie de machos más pequeños del subgrupo (Wikipedia (subespecies)).
Variación
Las fuentes discrepan sobre la anchura del collar blanco (ancho para Delacour y Madge; estrecho e incompleto en la clave de Johnsgard), lo que apunta a variación individual o a error de clave; véase la nota de abajo (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Dresser (1903) la trató como subespecie de persicus, por el color del pecho (Beebe, 1922 (vol. III)). En el análisis genético que cita BOW, zerafschanicus no se examinó (BOW, 2022).
Estado
No se han localizado en las fuentes consultadas datos de población ni de conservación propios de la subespecie. Tarnovski ya señalaba que el alto grado de cultivo del valle condiciona su modo de vida (Beebe, 1922 (vol. III)).
Situación actual (Wikipedia)
Según Wikipedia, vivía originalmente en todo el valle del Zerafshan, en el sur de Uzbekistán, de Farab a Samarcanda y Pendjikent, y hacia el este hasta Dashty-Kozy; hoy está muy fragmentada, su mayor población está en la Reserva Natural de Zerafshan, cerca de Samarcanda (distrito de Jambay), y figura en el Libro Rojo de Uzbekistán; hay contacto secundario con zarudnyi a lo largo del canal Amu-Bujará (Wikipedia (subespecies)). Describe al macho con el collar blanco bien desarrollado pero por lo general estrecho y muy interrumpido por delante o reducido a bandas laterales en media luna, la garganta normalmente rojo púrpura y los márgenes negros apicales de la parte anterior de la espalda ausentes o poco desarrollados; la hembra sería similar a la de zarudnyi(Wikipedia (subespecies)). Para este artículo el autor es G. V. Tarnovski y la fecha de la descripción, 1891, la misma que da Beebe, con localidad tipo en Katla Kurgan (Beebe, 1922 (vol. III); Wikipedia (subespecies)).
Cautividad y papel en la historia
Las fotografías de la ficha son de aves cautivas (en una de ellas, la pareja lleva anillas en las patas). La forma se conoce por los oficiales rusos Tarnovski, que la describió, y Klossovski, que cobró una hembra en noviembre de 1890 (Beebe, 1922 (vol. III)). No se documenta en las fuentes aquí revisadas su papel en las introducciones europeas, de las que solo principalis formó parte entre las alas blancas según Delacour (Delacour, 1977).
Las tres fotografías proceden de la carpeta de la ficha, sin autor. La ficha original ilustraba esta tarjeta con la de macho que se muestra en primer lugar (archivo «zerafshanicus2»).
Faisán de Yarkand (shawii): entre el grupo de alas blancas y el del Tarim
La subespecie de Yarkand cierra, en la clasificación de la ficha original, el grupo de los faisanes de alas blancas; Delacour la sitúa también ahí, y los análisis genéticos citados por Birds of the World la agrupan con bianchii y principalis(BOW, 2022; Delacour, 1977; Hernández García, 2014). Vaurie (1965) y Madge y McGowan, en cambio, la unen a la subespecie del Tarim, de la que la separan los mismos accidentes geográficos que la aíslan del resto de las formas de alas blancas, y Johnsgard anota que ambas intergradan localmente (Johnsgard, 1986; Madge y McGowan, 2002). Por eso se describe aquí, a medio camino entre los dos grupos.
Beebe explica que el nombre honra a Robert Shaw, uno de los pocos exploradores ingleses de la época que llegaron a Yarkand y volvieron con vida (Beebe, 1922 (vol. III)). Jobling no recoge el epíteto con esta grafía entre los de Phasianus colchicus, aunque sí cita el sinónimo chrysomeloides, que Lorenz formó a partir de chrysomelas para esta misma forma (Beebe, 1922 (vol. III); Jobling, 2010).
Autor y localidad tipo
Elliot, Proceedings of the Zoological Society of London, 1870, p. 403; localidad tipo Yarkand (hoy Yarkant, en Xinjiang, China) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). En el mismo artículo (p. 404) Elliot describió además Phasianus insignis, también de Yarkand, hoy sinónimo (Beebe, 1922 (vol. III)).
Historia de su descripción
Elliot la describió a partir de dos machos que Robert Shaw llevó a Inglaterra desde Yarkand; según Elliot, Shaw había cazado muchos de ellos en la provincia, donde el ave parece muy común, y los había tomado al principio por el faisán común (Elliot, 1872 (vol. II)). En su monografía de 1872, Elliot la consideraba uno de los descubrimientos más interesantes hechos entre las gallináceas, porque creía ver en ella, desde un punto de vista darwinista, la forma original de la que habrían descendido todos los faisanes verdaderos: desde ella partiría una línea, a través de elegans (de Stone, en el oeste de Sichuan), del sladeni de Anderson (en Yunnan) y de decollatus de Swinhoe, hasta torquatus, y otra, a través de insignis, hacia mongolicus y, con pocos cambios más, hacia colchicus(Elliot, 1872 (vol. II)). Elliot deseaba que se consiguieran ejemplares vivos para aclimatarlos en Europa (Elliot, 1872 (vol. II)). En la introducción general de la obra insiste en la idea: por reunir en su plumaje rasgos de mongolicus y de colchicus (las formas con y sin anillo), Phasianus shawii le parecía el origen, o al menos el representante más directo del origen, de todos los faisanes de esa forma, y por eso lo colocó a la cabeza de la división; la vasta llanura casi desértica de Mongolia, hasta el Altai, explica en su opinión la escasez de faisanes en el norte, y al salir de ella, en el distrito de Yarkand, se llega al hábitat de algunas de las especies más hermosas de la familia, como shawii e insignis(Elliot, 1872 (vol. I)). Elliot suponía que no suben mucho más allá de la mitad de la altura de esas montañas, puesto que al otro lado del Altai aparece otra especie espléndida, mongolicus(Elliot, 1872 (vol. I)). En su lista de áreas de las especies de 1872 daba para shawii «Yarkand, Turkestán oriental, entre el gran desierto de Gobi y los montes Altai», sin saber la extensión de su área (Elliot, 1872 (vol. I)). En esa obra escribe el nombre como Phasianus shawii y lo titula «Shaw’s Pheasant» (Elliot, 1872 (vol. II)). La descripción de Elliot del macho: sin anillo blanco en el cuello; hombro blanco; rabadilla rojo castaño con reflejos verdosos; plumas de la parte alta del pecho anchas, castaño intenso con borde azul brillante; flancos pardo dorado con una mancha azul oscuro brillante; abdomen negro parduzco; coberteras infracaudales rojas; pico muy grande, de color cuerno amarillento; patas y tarsos grisáceos (Elliot, 1872 (vol. II)).
Distribución
Vive en la región autónoma de Xinjiang (China occidental), en la mitad occidental de la cuenca del Tarim: desde el río Khotan (Hotan) hacia el oeste hasta Yarkand y Kashgar, y hacia el este hasta Maralbashi, el curso bajo del río Aksu y el curso alto del Tarim (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). Delacour la describe como un área grande y aislada, cerrada al norte por el Tian Shan; Beebe añade que el camino de caravanas de Sanju a Kashgar marca su límite suroccidental y que, desde el valle del alto Oxus, la separan los Pamires y el Alai (Beebe, 1922 (vol. III); Delacour, 1977). No hay barrera física clara hacia el este: en algún punto del valle del Tarim medio se encuentra con tarimensis, con la que intergrada localmente (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986).
Macho
Esta subespecie distribuida en la región autónoma de Xinjiang (China Occidental) muestra las características típicas de los faisanes con "alas blancas". Se parece a Ph. c. bianchii en las partes superior y lateral, con lados que tienen un color naranja dorado que se hacen aún más evidentes por las anchas puntas negras de las plumas (Delacour, 1977; Hernández García, 2014). Para Delacour, la cola es algo más clara y amarillenta que en bianchii; solo la parte alta del pecho tiene anchos bordes verdes, mientras que el centro del pecho es rojo cobrizo con bordes negro verdosos de 2–3 mm; flancos y costados, naranja dorado con grandes puntas negras; pecho inferior y lados del vientre, verde oscuro; las plumas del pecho, ligeramente escotadas (Delacour, 1977). Según Beebe, las coberteras alares pequeñas y medianas son blancas o blanco ante; la parte baja de la espalda, la rabadilla y las supracaudales, bronce anaranjado con reflejos verdosos y purpúreos, con una mancha verde a cada lado del raquis; la parte alta de la espalda y el pecho, bordeados de negro a menudo verdoso, con el dorado dominando sobre el negro en el dorso; y las barras negras de la mitad basal de las timoneras centrales, de 3–4 mm (Beebe, 1922 (vol. III)). Madge y McGowan lo distinguen del faisán del Tarim por las coberteras alares blanquecinas y la rabadilla y las supracaudales rojizas (Madge y McGowan, 2002).
Hembra
Muy pálida y poco marcada: Beebe da el color del manto como un rufo ante pálido y el del resto del plumaje como un ante claro, y Delacour y BOW coinciden en que lleva pocas marcas oscuras (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). Se distingue así de las hembras de las formas occidentales y de las del grupo chino, más marcadas, y es muy parecida a la del Tarim (Beebe, 1922 (vol. III); Delacour, 1977).
Tamaño y peso
Macho: ala de 233–250 mm y cola de 370–515 mm (datos de Vaurie, 1965, recogidos por Johnsgard) (Johnsgard, 1986). No se han localizado pesos de esta subespecie en las fuentes consultadas; los de la especie, en los capítulos de medidas (BOW, 2022; Johnsgard, 1986).
Hábitat y altitud
Según Delacour, vive a mayor altitud que las demás subespecies de alas blancas, entre 3.000 y 5.000 pies (unos 900–1.500 m) (Delacour, 1977). Beebe subraya, en cambio, que se mantiene en las laderas bajas y rara vez sube por las montañas (Beebe, 1922 (vol. III)). Es un ave de oasis y de valles fluviales rodeados de desierto y de altas cordilleras, como las demás formas del interior de Asia (Delacour, 1977; Madge y McGowan, 2002).
Variación y sinónimos
Johnsgard anota que esta subespecie, que Vaurie incluyó en el grupo del Tarim, intergrada con tarimensis(Johnsgard, 1986). Beebe recoge como sinónimos Phasianus insignis Elliot, 1870 y Phasianus shawi chrysomeloides Lorenz, 1909 (Turkestán oriental), y cita una determinación errónea como Phasianus chrysomelas (Elliot, 1877, no Severtzov, 1875) (Beebe, 1922 (vol. III)). Phasianus insignis, el «faisán de Yarkand» de la monografía de Elliot, se basó en dos pieles mutiladas, sin cabeza, que Shaw trajo a la vez: eran, según Elliot, grandes como mongolicus, con las coberteras alares blancas bordeadas de ante, la espalda y la rabadilla castaño rojizo intenso y los flancos dorados con una gran mancha verde brillante, pero sin rastro de anillo blanco en las plumas del cuello conservadas (Elliot, 1872 (vol. II)).
Genética
En el análisis de Birds of the World sobre los linajes genéticos, shawii se agrupa con bianchii y principalis en un linaje de alas blancas, y no con tarimensis, que forma uno propio (BOW, 2022). Madge y McGowan, en cambio, la separan del grupo de Asia central por el Tian Shan y la unen a tarimensis, siguiendo a Vaurie (1965) (Madge y McGowan, 2002).
Estado
No hay evaluación propia. Madge y McGowan señalan que se desconoce la situación de muchas poblaciones nativas, y Gerrits decía, de los faisanes de alas blancas en general, que seguían siendo bastante abundantes en su tierra, en parte porque varias de las subespecies crían en regiones poco accesibles (Gerrits, 1974; Madge y McGowan, 2002). La especie es de preocupación menor para la UICN (BirdLife, 2025; BOW, 2022).
En cautividad
No se ha localizado en las fuentes revisadas que se mantenga ni se haya importado en Europa o América; Delacour y Gerrits solo mencionan, entre los grupos de Asia central, a la subespecie kirguís como importada y aclimatada en Europa y América (Delacour, 1977; Gerrits, 1974).
Las cinco fotografías de la tarjeta proceden de la carpeta de la especie y no llevan autor ni lugar; se atribuyen a esta subespecie por el nombre del archivo, y la primera es la de la ficha original (Hernández García, 2014). La subespecie de Yarkand es la forma más oriental de las de alas blancas y la que vive más cerca del Tarim, donde la rabadilla deja de ser cobriza y se vuelve oliva (Beebe, 1922 (vol. III)).
Grupo kirguís (del Syr Daria y de Dzungaria)
Este grupo reúne dos subespecies, turcestanicus y mongolicus, a las que a veces se añade, como tercera, la forma del mar de Aral, bergii(BOW, 2022; Delacour, 1977; Gerrits, 1974; Madge y McGowan, 2002). Sin tener en cuenta la subespecie Ph. c. bergii - Faisán del lago Aral (Zarudny, 1914) - en la medida en que la mayoría de los autores están de acuerdo en considerarlo solo una variedad geográfica de Ph. c. turcestanicus, y no como una subespecie distinta (Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). Aun así, bergii se incluye aquí con su tarjeta y la marca de dudosa, porque el HBW la cuenta entre las subespecies válidas (31 en total) (del Hoyo et al., 1994). Caracterizada por un collar muy evidente, aunque a menudo incompleto, grupa, rabadilla y plumaje en general, que presenta una tendencia a ser de color rojo cobrizo con reflejos bronce. Por lo general, los representantes de este grupo se definen como "mongolia o kirghiz" (Hernández García, 2014).
Delacour los llama «faisanes de Mongolia» y recuerda que es un error, porque ninguno llega a Mongolia: viven en los valles de las estepas kirguisas, desde el mar de Aral hasta el noroeste del Turkestán chino (Delacour, 1977; Johnsgard, 1986). Se parecen a los grupos anteriores en las coberteras alares blancas y castañas, pero el tono general es rojo maroon cobrizo con fuertes reflejos verdes; la garganta y el cuello anterior son de un maroon purpúreo, como en zerafschanicus, su pariente más próximo; las marcas y los bordes negros son pequeños y estrechos; el collar blanco es ancho y se interrumpe por delante; y las plumas del pecho son anchas y cuadradas, no escotadas (Delacour, 1977). Las hembras son grandes y pálidas, con mucho tinte rosa lila en la nuca y en el manto superior (Delacour, 1977). Johnsgard resume el grupo como el de las formas de Turkestán (no de Mongolia) que, como las de alas blancas, tienen blanco en el ala, pero son más cobrizas, con un fuerte brillo verde bronceado y un collar blanco por lo general nítido, aunque incompleto (Johnsgard, 1986). Aunque emparentados con las subespecies más occidentales, los faisanes kirguises no tienen conexión con sus vecinos orientales, de los que los separan altas montañas y desiertos (Delacour, 1977).
Birds of the World cuenta dos subespecies en este grupo, que se encuentran sobre todo en Kazajistán y en el oeste de China, y recuerda que el análisis genético más reciente solo ha incluido a mongolicus, que forma él solo uno de los ocho linajes; turcestanicus no se estudió (BOW, 2022).
Faisán de Syr-Daria o de Syr Daria; en inglés Syr Daria pheasant, también Turkestan pheasant(Beebe, 1922 (vol. III); Delacour, 1977). El epíteto significa, simplemente, «de Turkestán», la región de Asia central donde se describió (Beebe, 1922 (vol. III)). Jobling no recoge este epíteto entre los de Phasianus colchicus.
Autor y localidad tipo
Descrito como Phasianus mongolicus turcestanicus por Lorenz, Ornithologische Monatsberichte, 4, 1896, p. 189; localidad tipo, el río Syr Daria, en el Turkestán (hoy Kazajistán) (BOW, 2022; Delacour, 1977). Se trató primero como subespecie del faisán kirguís y se pasó a Phasianus colchicus con Hartert, en 1917 (Beebe, 1922 (vol. III)).
Sinónimos y variantes
Madge y McGowan incluyen en esta subespecie los nombres triznae, kvaskovskii y bergii(Madge y McGowan, 2002). Beebe recoge además que los primeros ejemplares se citaron como Phasianus colchicus (Lichtenstein, 1823, no Linneo) y como Phasianus mongolicus (Severtzov, 1873, no Brandt) (Beebe, 1922 (vol. III)). Phasianus mongolicus bergii Zarudny, 1914, descrito de las islas de Aral (Noun Kair y Uialy), se diferenciaría por los bordes más oscuros, anchos y escotados de las plumas del pecho y los costados; Delacour no pudo examinarlo y lo consideraba de validez dudosa (Beebe, 1922 (vol. III); Delacour, 1977).
Distribución
Valle del Syr Daria, desde el delta y las islas costeras próximas de la orilla oriental del mar de Aral hacia el este hasta la parte occidental del valle de Fergana y las laderas de las montañas vecinas, al norte y al este (Johnsgard, 1986). Delacour fija el límite oriental en Gulcha, un valle del Alai a unas 90 millas (unos 145 km) al sur de Osh, y el occidental en el desierto de Kyzyl Kum, que lo separa de chrysomelas; lo aíslan de las demás subespecies las cadenas del Tian Shan, el Alai y el Hissar, aunque se han hallado ejemplares intermedios más al sur, y al nordeste lo separan de mongolicus las montañas Karatau, Alexander y Terskei, con la que probablemente intergrada en algunos puntos (Beebe, 1922 (vol. III); Delacour, 1977). Madge y McGowan la sitúan en el sureste de Kazajistán, desde la orilla oriental del Aral a lo largo del Syr Daria hasta el oeste del valle de Fergana, en el este de Uzbekistán, y en las fronteras de Kirguistán; BOW añade pequeñas zonas del norte de Tayikistán (BOW, 2022; Madge y McGowan, 2002).
Macho
El macho adulto de esta subespecie es muy similar al mongol y se distingue, aunque con dificultad, por la coloración rojo cobre de la grupa bastante uniforme; Cuello alto y blanco que cuando se interrumpe es menor que el mongolicus (Hernández García, 2014). Delacour describe la cabeza oscura y brillante, con la corona y la nuca verdes y la garganta y el cuello anterior de un maroon purpúreo, separadas del cuerpo por un anillo blanco; las partes superiores, rojo cobrizo oscuro con fuertes reflejos verdes en el dorso y la rabadilla; las coberteras alares como en las formas de alas blancas, pero con las marcas rojas oscuras y verdosas; la cola castaña con barras negras estrechas y flecos rojo purpúreo; el pecho rojo purpúreo con brillo azul; los costados y flancos, rojo cobrizo vivo con pequeñas barras y bordes azul oscuro; y el abdomen negro apagado, rodeado de verde y púrpura (Delacour, 1977). Para Beebe el rasgo diagnóstico es un collar blanco completo o casi completo por delante, y el manto, el pecho y las manchas oscuras de los flancos con brillo azulado y violeta (Beebe, 1922 (vol. III)). Madge y McGowan lo distinguen de mongolicus por ser más purpúreo y menos verde bronceado por encima, con marcas más marcadas y regulares por debajo y un collar blanco más ancho (Madge y McGowan, 2002).
Hembra
No hay una descripción propia en las fuentes consultadas; Delacour advierte de que las hembras, los jóvenes y los polluelos de todas las subespecies se parecen mucho entre sí, y que las del grupo kirguís son grandes y pálidas, con tinte rosa lila en la nuca (Delacour, 1977).
Tamaño y peso
Machos: ala de 240–263 mm; cuatro machos pesaron entre 1.170 y 1.477 g (media de 1.353 g); hembras: ala de 220–240 mm; cinco hembras pesaron entre 740 y 1.018 g (media de 838 g) (Dementiev y Gladkov, 1967, en Johnsgard) (Johnsgard, 1986). Delacour da para el macho un ala de 250–270 mm (Delacour, 1977).
Hábitat
Beebe lo describe en una región accidentada y poco conocida de gargantas escarpadas y montañas nevadas, con aldeas dispersas y campos de cereal, donde bebe en arroyuelos que en primavera se vuelven torrentes y duerme entre arbustos o cañaverales (Beebe, 1922 (vol. III)). Para el resto de su biología, valen los datos del grupo (Delacour, 1977).
Estado
No hay datos específicos. Es una de las subespecies que no se incluyeron en el análisis genético recogido por BOW (BOW, 2022); la especie es de preocupación menor (BirdLife, 2025).
Cautividad
No se ha localizado en las fuentes revisadas que se haya importado a Europa o a América; Gerrits afirma que, de este grupo, solo mongolicus llegó a Europa y América (Delacour, 1977; Gerrits, 1974).
Las dos fotografías de esta tarjeta no llevan autor; se atribuyen a la subespecie por el nombre del archivo, y la primera es la de la ficha original (Hernández García, 2014).
Faisán del mar de Aral (dudosa)
Phasianus colchicus bergiiZarudny, 1914
Validez
Dudosa. Delacour la considera de validez dudosa y no examinó ejemplares (Delacour, 1977); Madge y McGowan la incluyen en la sinonimia de turcestanicus(Madge y McGowan, 2002) y Johnsgard la deja incluida en esa subespecie (Johnsgard, 1986). El HBW (1994), en cambio, la cuenta como subespecie válida, con lo que suma 31 (del Hoyo et al., 1994). Avibase (consultada el 16 de noviembre de 2026) la trata como «sinónimo menor» (junior synonym, a veces subespecie) de turcestanicus, con el nombre Phasianus colchicus turcestanicus (bergii) (Avibase). Esta ficha la mantiene entre las dudosas y no la cuenta entre las 30 aceptadas.
Descrita como Phasianus mongolicus bergii por Zarudny, Orn. Mitt., 5, 1914, p. 277; localidad tipo, las islas de Noun Kair y Uialy, en el mar de Aral (Delacour, 1977). Avibase da la misma localidad y el mismo protónimo, pero cita la obra como Orn. Vestnik 5 (4): 277, con enlace a la Biodiversity Heritage Library (Avibase); esta ficha conserva la cita de Delacour.
Descripción
Se parecería a turcestanicus y se distinguiría, según se afirma, por los bordes de las plumas del pecho y de los costados, más oscuros, anchos y escotados (Delacour, 1977). Delacour no examinó ejemplares.
Faisán de Kirghiz (o kirguís) o faisán de Mongolia; en inglés Kirghiz pheasant o Mongolian pheasant, en francés faisan de Mongolie(Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014). El nombre es un error geográfico: Delacour insiste en que las aves «de Mongolia» no llegan a ningún punto de Mongolia, y Beebe, que lo explica como un nombre puesto «por oposición», porque el ave apenas entra en el extremo occidental del país; Johnsgard y Wikipedia confirman que no vive allí (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986; Wikipedia). Jobling recuerda que hasta comienzos del siglo XX se consideraba que Mongolia incluía el oeste de Manchuria y partes del norte de China, y que mongolica, mongolicus y mongolus significan «de Mongolia» (Jobling, 2010). «Mongolian pheasant» se ha usado también en inglés para toda la especie (Johnsgard, 1986).
Autor y localidad tipo
Brandt, Bulletin de la Classe physico-mathématique de l’Académie impériale des sciences de Saint-Pétersbourg, 3, 1844, p. 51; localidad tipo, las regiones del Altai y de Mongolia (Beebe la resume como «Altai») (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). El autor es Johann Friedrich von Brandt (1802–1879), zoólogo prusiano al servicio de Rusia (Jobling, 2010).
Historia de su descripción
Pallas la había tratado en 1811 como una variedad del faisán común (Phasianus colchicus var. mongolicus); Brandt fue el primero en describirla como distinta (Elliot, 1872 (vol. II)). Elliot, en 1872, la consideraba, después de su insignis, la más hermosa de todos los faisanes verdaderos, y creía que descendía de aquel; decía que había sido siempre una rareza en las colecciones, que ningún ejemplar había llegado vivo a Europa y que sería una especie excelente para introducir en cotos de caza y para la mesa, por su tamaño (Elliot, 1872 (vol. II)). Elliot reproduce el relato de Atkinson, que la vio por primera vez en las orillas arboladas del Lepsa, un río que desemboca en el Balkhash, ya con anillo blanco; vio aves en gran número en las orillas de todos los ríos pequeños y en los barrancos con arbolado de la gran horda kirguisa al pie del Alatau; y, tras llegar hasta el desierto de Gobi, al sur de las montañas Tangnou, volvió a encontrarla en pequeños ríos de Mongolia, también con anillo (Elliot, 1872 (vol. II)). En la lista de áreas de las especies de su monografía, Elliot la da en la vertiente occidental de los montes Altai y Tarbagatai, abundante en las cercanías de Bujará y hacia el norte hasta el río Irtish, donde se había obtenido en Semipalatinsk (Elliot, 1872 (vol. I)). Meyendorff, en su relato de 1826 del viaje de Orenburg a Bujará, la citaba como el faisán común salvaje entre los ríos Kouwan-daria y Djan-daria (Elliot, 1872 (vol. II)).
Descripción de Elliot (1872)
Macho: coronilla y occipucio de un verde hierba cambiante; garganta castaña con reflejos verdosos; lados del cuello azul acero con reflejos verdes; un ancho anillo blanco en el cuello; espalda rojo encendido, cada pluma con una mancha verde en forma de V en la punta; escapulares negras en el centro con una ancha línea ante paralela al raquis y bordes rojos con reflejos verdes; hombros y resto del ala blancos; rabadilla como la espalda, pero con un matiz verde claro en la mayoría de las luces; pecho superior rojo brillante con las puntas verdes; flancos naranja dorado con una gran mancha verde azulada en la punta de cada pluma; centro del pecho y abdomen verdes; muslos negros; cola muy larga, castaño claro; piel de la cara carmesí, con un mechón de plumas azules bajo el ojo; pico color cuerno; patas y pies grisáceos. Hembra: blanco ante, barrado de negro en la coronilla y la nuca; plumas del manto superior con tinte rosado, salvo las puntas crema con una mancha negra cerca del extremo; el resto de las partes superiores con escasas manchas negras y moteadas de rufo; garganta ante; pecho superior rojizo; partes inferiores ante; cola pardo rufo cruzada por anchas líneas negras divididas por una blanquecina (Elliot, 1872 (vol. II)).
Sinónimos y variantes
Madge y McGowan incluyen en esta subespecie los nombres brandti y semitorquatus(Madge y McGowan, 2002). Beebe recoge, entre otros: Phasianus torquatus Karelin, 1841 (de Tarbagatai, no Gmelin); Phasianus semitorquatus Severtzov, 1875 (al noreste de Kuldja); Phasianus torquatus mongolicus Rothschild, 1901 (no Brandt, retirado por su autor); Phasianus brandti Rothschild, 1901 (retirado en 1903) y Phasianus colchicus mongolicus Rothschild, 1904 (Beebe, 1922 (vol. III); Delacour, 1977). Beebe usa el nombre inglés «Mongolian or Kirghiz ring-necked pheasant» (Beebe, 1922 (vol. III)).
Distribución
Kazajstán - Kirguistán y las áreas circundantes (Hernández García, 2014). En concreto: un área muy extensa del nordeste del Turkestán ruso (hasta los 48° N), las depresiones de los lagos Issyk-kul, Balkhash, Ala-kul y Zaisan, y hacia el este los afluentes del Ili y Dzungaria, de Ebi Nor a Guchen, en el Turkestán chino (Delacour, 1977; Johnsgard, 1986). Madge y McGowan y BOW lo sitúan en el norte del Tian Shan (norte de Kirguistán), hacia el norte por el este de Kazajistán hasta el lago Balkhash y hacia el este hasta el noroeste de Xinjiang y Urumchi (BOW, 2022; Madge y McGowan, 2002). Según Beebe, el valle del Ili es el centro de su área; hacia el oeste llega al Syr Daria y al Aral y hacia el este al Irtish Negro, bajo el Altai, y los ríos de Dzungaria, el Borotala y el Manas, sostienen también una población enorme; un desierto lo separa del faisán de Zerafshan, el Tian Shan de los del Tarim y Yarkand, y el Altai del de Kobdo (Beebe, 1922 (vol. III)).
Macho
En el macho adulto, las partes superiores, y en particular la grupa, se caracterizan por un color rojo cobrizo intenso con reflejos verdosos bien evidentes. Plumas que cubren la parte superior del tórax y que parecen verdes con bordes negros ausentes o no muy evidentes; plumas en el pecho marcadas por bordes bastante estrechos; grupa y coberteras de la cola en el tono rojo menos intensas que P. c. turcestanicus. Cabeza cromáticamente verde-bronce más intensa que P. c. turcestanicus. Cuello muy visible que parece blanco pálido y que a veces puede verse cortado aunque más desarrollado que P. c. turcestanicus (Hernández García, 2014). Beebe lo distingue de todas las formas de rabadilla rojiza y marrón, salvo turcestanicus, por un ancho anillo blanco en el cuello, interrumpido por delante; el manto, el pecho y el pecho inferior son rojo anaranjado bronceado, que a una luz parece púrpura carmín y a otra verde; el pecho y los flancos están rematados de negro verdoso, y el centro del pecho y los lados del abdomen son verde oscuro (Beebe, 1922 (vol. III)). Delacour lo describe como parecido a turcestanicus, pero con un fuerte tinte verde en el pecho y verde bronceado en las partes superiores, y con el collar más estrecho y más ampliamente interrumpido (Delacour, 1977).
Hembra
Beebe la compara con la de chrysomelas, de la que difiere en una mancha negra cerca de la punta de cada pluma del manto superior y en una barra negra que cruza la mitad de la pluma en lugar de un ancho borde negro subterminal (Beebe, 1922 (vol. III)). Delacour describe a las hembras del grupo como grandes y pálidas, con mucho tinte rosa lila en la nuca y el manto superior (Delacour, 1977).
Tamaño y peso
Machos: ala de 248–267 mm y cola de 510–580 mm; peso medio de unos 1.100 g (máximo 1.400 g); hembras: ala de unos 215 mm, peso medio de unos 800 g (máximo 1.000 g) (Delacour, 1977, y Dementiev y Gladkov, 1967, en Johnsgard) (Johnsgard, 1986). Delacour da para el macho un ala de 235–250 mm (Delacour, 1977). Carruthers, citado por Beebe, pesó y midió 40 aves cazadas en diciembre en el valle del Kash y concluyó que, aunque de tamaño semejante, las aves salvajes pesaban menos que los faisanes ingleses, y que los híbridos criados eran siempre más pesados (Beebe, 1922 (vol. III)).
Hábitat y altitud
Matorrales de tamariscos, cañaverales y choperas a lo largo de los ríos y los campos de los oasis, hasta unos 4.000 pies (unos 1.200 m) (Delacour, 1977). Según Carruthers, que cazó en el valle del Ili y en los valles altos del Tekes y del Kash (a 3.000–3.500 pies, unos 900–1.000 m), habita dunas cubiertas de tamariscos donde nunca ha visto un árbol, cañaverales a medias anegados, oasis cultivados y jungla de álamos junto a los ríos, y su compañero Miller lo halló hasta los 4.100 pies (unos 1.250 m) en los valles del Kok-su; en invierno, con la nieve alta durante cuatro meses, depende de las bayas amarillas de un espino, Crataegus sanguinea (que los chinos llaman «comida del faisán») (Beebe, 1922 (vol. III)). Es un ave bien adaptada a un país duro y desolado, frío en invierno y caluroso en verano, de gran territorio (Delacour, 1977).
Comportamiento propio
Carruthers, citado por Beebe, vio por primera vez en esa región aves salvajes que dormían en los árboles: a las cuatro y cuarenta y cinco de la tarde la jungla resonaba con el «cock-cock» de las que buscaban su dormidero; los de las llanuras y cañaverales del Aral, el Balkhash y el Zerafshan, en cambio, vuelan bajo y poco, porque su refugio está en los cañaverales, y muchos no han visto jamás un árbol (Beebe, 1922 (vol. III)). Los kirguises practican en invierno la cetrería con entusiasmo, y su deporte favorito es lanzar azores (karchigai) contra los faisanes; los cazadores nativos los matan al atardecer con escopetas antiguas de avancarga (Beebe, 1922 (vol. III)). Delacour señala que es un ave de aspecto peculiar, que mantiene el cuerpo bajo y casi horizontal, menos erguido que la mayoría de los faisanes verdaderos (Delacour, 1977).
Estado
Sin evaluación propia. Carruthers (a principios del siglo XX) lo consideraba numeroso y poco amenazado, porque los nativos apenas lo cazaban y había pocos enemigos naturales (Beebe, 1922 (vol. III)). La especie es de preocupación menor (BirdLife, 2025).
Cautividad e introducciones
Delacour sostiene que este faisán parece ser la única forma de su grupo introducida y aclimatada, hoy común en Europa y América, grande, salvaje, prolífica y muy resistente; lo trajo vivo a Inglaterra en 1900 Hagenbeck para Lord Rothschild, y las aves criaron en Tring al año siguiente, la primera y única importación conocida (Delacour, 1977; Gerrits, 1974). Birds of the World, en cambio, recoge que mongolicus y torquatus se introdujeron en Europa en la década de 1700, y que la mayor parte de las liberaciones en Hawái, que comenzaron en 1866, fueron de mongolicus y torquatus(BOW, 2022). El estudio genético de Ashrafzadeh y colaboradores (2021) recoge la hipótesis de Boev, según la cual los primeros faisanes de Europa fueron los de la Cólquida (ya hacia el año 500) y solo en el siglo XVIII llegaron mongolicus y torquatus; en Hungría y Serbia hallaron un linaje (el clado B) que agrupa haplotipos de los faisanes mongolicus, torquatus y pallasi, más frecuente en Serbia, que interpretan como una introducción más reciente que la del linaje de la Cólquida, y uno de sus haplotipos (H31) coincide con el de un ave de Zhaosu (China) atribuida a mongolicus(Ashrafzadeh et al., 2021). En su manual de cría, Delacour lo describe como un ave muy grande, con el cuello violeta, un ancho collar blanco, los hombros blancos y el plumaje general rojo oscuro con brillo verde, la hembra pálida y poco marcada por debajo, un ave de caza de Asia central; recuerda que el llamado «ringneck inglés», con collar blanco, no es una raza pura ni estable, sino un híbrido entre el faisán de cuello negro y el kirguís o el chino; y cuenta que en los cotos americanos unos criadores prefieren un faisán de predominio chino y otros uno sobre todo kirguís (Delacour, 1978). El mismo libro ilustra con una serie fotográfica el crecimiento de pollos kirguises a los dos días, ocho días, cinco semanas, siete semanas y un año (Delacour, 1978).
Las cinco fotografías de la tarjeta no llevan autor ni lugar y se atribuyen a la subespecie por el nombre del archivo; la primera, un macho anillado en un recinto, es la de la ficha original (Hernández García, 2014). Delacour recuerda que los faisanes de caza de Europa, que descienden sobre todo de las aves de cuello negro, se han cruzado mucho en el último siglo con los kirguises, los de rabadilla gris y los verdes (Delacour, 1977).
Grupo del Tarim (de rabadilla olivácea)
Subespecie que al desviarse de todas las demás, o más bien, ocupar una posición intermedia con respecto a la última, ha merecido su propio estatus. Se caracteriza por la ausencia de un collar o, en cualquier caso, solo ligeramente visible, plumas de la grupa y capa más o menos oscura de color caqui o verde oliva, con coberteras de las alas de color marrón o marrón claro. La especie que representa a este grupo se llama "del Tarim" (Hernández García, 2014).
Delacour lo llama el grupo de los faisanes de rabadilla olivácea (en francés, faisan du Tarim): una sola subespecie, intermedia en muchos aspectos entre las formas occidentales y las orientales, aislada en los valles de los ríos Tarim y Cherchen, en el centro del Turkestán chino, salvo en el oeste, donde puede intergradar con la de Yarkand (Delacour, 1977). Johnsgard anota que el grupo de la cuenca del Tarim lo forman una subespecie (según Delacour) o dos (según Vaurie), transicionales entre los tres primeros grupos y las formas orientales; la que describe aquí no tiene collar blanco y tiene la rabadilla olivácea, pero conserva las coberteras alares pardo arena claro (Johnsgard, 1986). En la clave de Delacour para los grupos de machos, es el único con «rabadilla amarillo verdosa», frente a los de rabadilla rojiza y los de rabadilla gris verdosa o azulada (Delacour, 1977). Robertson lo cita también como «faisán del Tarim o de rabadilla olivácea», forma intermedia entre las formas occidentales, de rabadilla roja, y el resto de los grupos orientales (Robertson, 1997).
Faisán de Tarim o de rabadilla olivácea; en inglés Tarim pheasant u olive-rumped pheasant; en francés faisan du Tarim(Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). El epíteto procede del río Tarim, cuyo valle inferior es el principal hábitat del ave, según Beebe (Beebe, 1922 (vol. III)). Jobling no recoge este epíteto entre los de Phasianus colchicus.
Beebe recoge: Phasianus shawi Przhevalski, 1877 (del Lob Nor, no de Elliot); Phasianus tarimensis Przhevalski, 1883, sin descripción; Phasianus tarimensis en Dresser (1903) como subespecie de Ph. persicus; y Phasianus colchicus tarimensis en Rothschild (1904) y Hartert (1917) (Beebe, 1922 (vol. III)).
Distribución
Vive en la región autónoma de las controvertidas fronteras de Xinjiang, cuya membresía siempre ha estado en disputa entre China y Kazajistán, encontrando sus hábitats favoritos en las cuencas de los ríos Tarim (de donde toma su nombre) y Turpan (Xinjiang, China Occidental) (Hernández García, 2014). Las demás fuentes la sitúan en las partes oriental y meridional de la cuenca del Tarim, a lo largo del río Tarim (al este del área de shawii), las regiones de Qara Shahr (Karashar) y del lago Bagrach, hasta el Lop Nur, y hacia el oeste a lo largo del Cherchen Darya hasta el Niya Darya (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). No hay en ellas referencias a la cuenca de Turpan.
Límites con las vecinas
Según Beebe, comparte con shawii un área encerrada casi por completo por desiertos y montañas: al norte y al noroeste, la gran muralla del Tian Shan la separa de mongolicus; al este, el desierto sin agua de Kum-Tag la aísla de satscheuensis, de rabadilla gris; y al sureste, el Altyn-Tag, alto y majestuoso, de vlangalii; hacia el oeste, el camino queda más abierto y, a lo largo del Tarim, se encuentra con los ejemplares más orientales de shawii(Beebe, 1922 (vol. III)). Johnsgard confirma que intergrada al oeste con shawii(Johnsgard, 1986).
Macho
Subespecie que se desvía de todas las demás, y es por eso que se merecía un lugar independiente. Ausencia de líneas y cuello supra orbitales; parte extrema del dorso verde oliva con coberteras de alas marrones o marrón claro (Hernández García, 2014). Delacour lo describe con la corona verde bronce; la garganta verde oscuro; el cuello azul, verdoso en la parte posterior; el manto naranja dorado, con plumas estrechas y muy escotadas y una mancha terminal negra diminuta; la parte baja del dorso y la rabadilla amarillo oliva, con algunas manchas verdes; la cola canela arenosa con pequeñas barras negras; las coberteras alares pardo arena claro, las menores grisáceas y las mayores con marcas castañas; la parte alta del pecho verde azulado oscuro que pasa a un rojo cobrizo purpúreo intenso, con plumas como las del manto, escotadas y con una mancha negra poco visible; los flancos naranja cobrizo con pequeñas manchas púrpura; el centro del pecho y los lados del abdomen azul profundo; el abdomen negro apagado; y las coberteras infracaudales castañas con manchas negras (Delacour, 1977). Para Beebe se parece mucho a shawii, pero tiene las coberteras alares pequeñas y medianas pardo rufo arena en lugar de blanquecinas, el pecho rojo bronce encendido con brillo verde aceitoso y púrpura y sin franja marginal negra, y los bordes de la rabadilla y de las supracaudales ante verdoso, no rojo anaranjado (Beebe, 1922 (vol. III)). BOW añade que el macho se distingue sobre todo por carecer de collar blanco, por la rabadilla verde oliva y por las coberteras alares marrones con marcas castañas, y que el dorso es naranja dorado con manchas negras y los flancos cobrizos con pequeñas manchas púrpuras (BOW, 2022). Madge y McGowan: sin collar blanco y con amarillo oliva en la parte baja de la espalda y la rabadilla (Madge y McGowan, 2002).
Cómo se distingue
La clave de Johnsgard la separa de las demás por tener la parte baja del dorso y la rabadilla en su mayor parte verde oliva y la cola menos barrada, sin collar blanco (Johnsgard, 1986). Beebe explica por qué ocupa un lugar especial: desde el Cáucaso hacia el este, todos los faisanes tienen la rabadilla roja cobriza, y de aquí al Pacífico, gris oliva; el del Tarim, con la rabadilla verde amarillenta, es en cierto modo intermedio, aunque por su parentesco con el de Yarkand pertenece sobre todo al grupo occidental, y se distingue de sus vecinos por las coberteras alares pardo amarillentas (amarillo blancuzco en shawii, blanco plateado en mongolicus, gris ceniza con tinte verdoso en vlangalii y gris lavanda en satscheuensis) (Beebe, 1922 (vol. III)). Es también, según Beebe, el lugar donde cambia el color de las plumas largas y deshilachadas de la rabadilla, rasgo característico del género (Beebe, 1922 (vol. III)).
Hembra
Clara y prácticamente sin manchas por debajo, como en los dos grupos anteriores (Delacour); muy parecida a la de shawii (Beebe); marrón claro y casi sin manchas por debajo (BOW) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Tamaño y peso
Macho: ala de 236–247 mm según Delacour; Johnsgard (que cita a Cheng y colaboradores, 1978) da un ala de 240 mm, una cola de 465 mm y un peso de 1.031 g (Delacour, 1977; Johnsgard, 1986). No se han podido leer con claridad las cifras de la hembra en la tabla de Johnsgard.
Hábitat y altitud
Valles y oasis a entre 2.000 y 4.000 pies (unos 600–1.200 m) de altitud (Delacour, 1977). Beebe, en un pie de lámina, lo retrata en los bosques de álamos a lo largo del río Tarim, en bandos que en el duro invierno dependen de las bayas y que a veces duermen en las finas ramas de los álamos para evitar a los enemigos del suelo (zorros y otras alimañas), mientras bajo ellos pasan jabalíes y camellos salvajes y por encima vuelan bandos de gansos silvestres hacia el norte casi antes de que se rompa el hielo (Beebe, 1922 (vol. III)). Beebe describe también los valles fluviales más desolados de Asia central, donde, cuando los ríos crecen y se extienden sobre el desierto, las aves vagan lejos y duermen entre las ruinas de ciudades olvidadas y medio enterradas (Beebe, 1922 (vol. III)).
Estado
Sin evaluación propia ni cifras de población en las fuentes consultadas; Madge y McGowan señalan que se desconoce la situación de muchas poblaciones nativas (Madge y McGowan, 2002). En el análisis genético de BOW, tarimensis forma él solo uno de los ocho linajes, lo que subraya su carácter distinto (BOW, 2022).
Cautividad
Delacour afirma que nunca se ha introducido en Europa ni en América (Delacour, 1977); no se ha localizado en las fuentes revisadas que se mantenga en colecciones.
Las dos fotografías proceden de la carpeta de la especie y no llevan autor ni lugar; se atribuyen a la subespecie por el nombre del archivo, y la de la hembra es la de la ficha original (Hernández García, 2014). La ficha original presenta el grupo del Tarim como el de la subespecie que, al ocupar una posición intermedia, «ha merecido su propio estatus»; así lo ven también Delacour y Johnsgard, y la genética de BOW lo mantiene como linaje propio (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986).
Grupo chino de collar (de rabadilla gris): el subgrupo «torquatus»
Caracterizado por un collar de tamaño variable dependiendo de la subespecie, con algunos en los que puede no ser muy evidente o incluso ausente. Grupa y rabadilla se distinguen por un color azul acero o gris-amarillento de intensidad cromática variable; el plumaje en general es más claro que la de los otros grupos, hasta ahora descritos; coberteras de las alas que van desde marrón a gris claro. Sin embargo, para algunas especies en particular, puede haber una gran variabilidad cromática. Los representantes de este grupo se pueden definir indistintamente como "grupa gris-azul o torquatus / decollatus". Subgrupo "Torquatus" (Hernández García, 2014).
Delacour reúne aquí a todos los faisanes verdaderos de la mitad oriental de Asia, con un plumaje más variado y contrastado que el de los grupos anteriores (Delacour, 1977). Los diferencia por la parte baja del dorso y la rabadilla de un gris lavanda más o menos teñido de azul, verde o ante; el manto y los flancos, siempre más claros y amarillos que los escapulares y el pecho; las coberteras alares grises, en lugar de pardas o blancas; y la cola ante oliváceo con anchas bandas negras y flecos rosa purpúreo (Delacour, 1977). Johnsgard añade que algunas formas tienen «cejas» blancas y otras un collar blanco, pero que estos rasgos son muy variables (Johnsgard, 1986). Birds of the World cuenta 17 subespecies en este grupo, que ocupan la mitad oriental de Asia y cuyos machos tienen un collar blanco que va de ausente a ancho y completo, con un tinte grisáceo o azulado en la rabadilla (BOW, 2022).
Delacour describe así al macho típico del grupo: cabeza y cuello verde azulado; en la mayoría de las formas, la coronilla gris bronceada y las cejas y el collar blancos bien visibles, ausentes en otras, que tienen la coronilla verde oscuro; manto amarillo paja a dorado, con grandes marcas negras; dorso superior y medio gris verdoso con barras verdes y ante; dorso inferior y rabadilla gris lavanda, más o menos teñidos de verde; timoneras amarillo oliva con anchas barras negras en el centro y un flequillo rosa o malva; escapulares granate, castaño o canela, barradas de negro y ante pálido; coberteras alares gris claro, las mayores con marcas granate, castaño o canela ante; pecho cobrizo castaño, granate o verde azulado, con plumas estrechas y escotadas; costados y flancos de naranja cobrizo a dorado o amarillo pálido, siempre en contraste con el pecho; centro del pecho inferior y lados del abdomen negro azulado; ojos de rojos a amarillos (Delacour, 1977). Las hembras se parecen a las del grupo de cuello negro, bastante oscuras y muy marcadas por encima, en el cuello anterior y el pecho, con los costados y flancos fuertemente moteados (Delacour, 1977).
La variación geográfica es, según Delacour, en gran parte continua: salvo algunas formas aisladas del noroeste y de islas, las subespecies tienen una distribución más o menos continua, intergradan y hay amplias poblaciones inestables que no merecen nombre propio (Delacour, 1977). Las formas del norte son grandes y claras, con un ancho collar blanco, cejas blancas y la parte alta del pecho roja; las del este, a lo largo del mar de China, son parecidas, pero más pequeñas, de colores más vivos y con un collar blanco más estrecho e interrumpido por delante; hacia el interior, al oeste, el collar y las cejas se reducen y acaban por desaparecer; en el extremo occidental, los colores se vuelven profundos y oscuros y el pecho se tiñe de verde azulado, que en el suroeste invade casi todas las partes inferiores, mientras que más al norte el pecho es de un granate purpúreo (Delacour, 1977). Johnsgard resume la variación de los machos de toda la especie en tres tendencias de norte a sur: aumento de la saturación del color, reducción del collar blanco y disminución de tamaño; las hembras son esencialmente iguales en todas partes, aunque más oscuras y marcadas en el este (el grupo torquatus) (según Vaurie, 1965) (Johnsgard, 1986).
Delacour cree que este grupo, por su enorme área, representa la población original de la especie, que luego se habría extendido hacia el norte y hacia el oeste, y que los cambios climáticos posteriores a las glaciaciones habrían dejado reducida a distritos aislados, donde evolucionaron subespecies bien marcadas (Delacour, 1977). Las explicaciones genéticas de Birds of the World no coinciden del todo: sitúan el origen de la especie en el borde oriental de la meseta Qinghai-Tíbet, hace unos 1,19 millones de años, y en los linajes de su análisis separan a torquatus, decollatus, karpowi, pallasi y takatsukasae de otro linaje (con hagenbecki, kiangsuensis, satscheuensis, alaschanicus, suehschanensis, strauchi y vlangalii) y de formosanus, que forma el suyo (BOW, 2022).
Los faisanes de este grupo no difieren en sus costumbres de los demás faisanes verdaderos (Delacour, 1977). Donde no se les ha cazado ni atrapado en exceso son muy numerosos; se han hecho raros en las llanuras costeras de China, peladas y muy cultivadas, pero siguen siendo comunes en el interior, donde las colinas conservan mucha cobertura; viven a baja altitud en el este y el norte, y a gran altitud en el oeste, siempre en cañaverales, matorral con árboles dispersos en laderas y mesetas o cerca de arrozales y otros cultivos rodeados de hierbas altas, arbustos y bambúes (Delacour, 1977). Con la excepción de seis formas aisladas en oasis y valles del Turkestán chino y de Mongolia (vlangalii, sohokotensis, alaschanicus, hagenbecki, satscheuensis y edzinensis) y de otra confinada en una isla (formosanus), las subespecies ocupan toda China, Corea y el sur de Manchuria y sus bordes, siempre que haya hábitat adecuado; falta solo donde las condiciones son adversas, en montañas altas, bosques profundos, llanuras secas abiertas y desiertos, y donde el hombre ha destruido su ambiente (Delacour, 1977). Delacour añade que en los treinta años anteriores a su libro había sido destruida o muy reducida en muchos lugares donde antes abundaba, sobre todo cerca de las grandes ciudades, y temía que las condiciones adversas aumentasen (Delacour, 1977).
Los faisanes grises de este grupo, sobre todo las formas orientales con collar blanco (los «ringnecks»), se han introducido en Europa y en América, y dos de ellos, el chino y el de Formosa, se han hecho muy comunes; de las demás, según Delacour, el de Manchuria parece haberse importado también, aunque sin datos precisos; el de Corea se introdujo en Japón, y él mismo recibió algunos en 1926 en Clères, que criaron y se distribuyeron, pero no parece haberse conservado ningún stock puro; el de Stone se recibió en Clères en 1938 y se perdió en 1940; y el de Satchu se crio en Inglaterra y en Italia en 1903–04 y desapareció, aunque a veces se encuentran aves asilvestradas que se le parecen mucho (Delacour, 1977). En conjunto, los faisanes grises son más pequeños, más salvajes y más activos que los de cuello negro, y suelen poner más huevos; los machos son decididamente más bellos (Delacour, 1977).
Faisán de collar de China o faisán de collar chino; en inglés Chinese ring-necked pheasant, Eastern Chinese ring-neck (Beebe) o, simplemente, ringneck, nombre con el que se conoce en caza a las aves de collar (Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). En China, Beebe recoge los nombres teh-chi («pollo salvaje») y shan-chi («pollo de montaña o de colina») (Beebe, 1922 (vol. III)); Saurin, citado por Elliot, el de yeh-chi, «ave silvestre» (Elliot, 1872 (vol. II)). El epíteto, torquatus, significa en latín «adornado con un collar» (torques: collar, torque), según Beebe y Jobling (Beebe, 1922 (vol. III); Jobling, 2010). Beebe lo llamó además «faisán de Gmelin» (Gmelin’s pheasant) (Beebe, 1922 (vol. III)).
Delacour cita Phasianus hemptini La Touche, 1919, de Mopanchow, distrito de Sungtze, en Hupeh; Madge y McGowan incluyen en la subespecie los nombres gmelini y hemptinnii(Delacour, 1977; Madge y McGowan, 2002). Beebe recoge, entre muchos otros, el «Ring Pheasant» de Latham (1783), Phasianus albotorquatus de Bonnaterre (1791) y varios usos del nombre torquatus para aves que hoy corresponden a otras subespecies, como las de Tarbagatai o las de Manchuria (Beebe, 1922 (vol. III)). Elliot lo cita además como Phasianus torquatus var. mongolica de Pallas (Elliot, 1872 (vol. II)).
Distribución
Se distribuye por el este de China, en todo el sur de Hubei - Henan - Shandong - Hunan - Anhui - Jangxi - Jangsu - Shanghai - Fujian y Guangdong, etc., hasta la frontera con Vietnam. Sin embargo, se debe enfatizar que, siendo bastante conocido en avicultura, se ha reintroducido en muchas partes del mundo (Hernández García, 2014). Delacour, Madge y McGowan y BOW la dan, más precisamente, de Shandong y Henan hacia el sur hasta el sur de Guangdong y la frontera con Vietnam, donde intergrada con rothschildi y takatsukasae(BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Delacour la considera la subespecie más extendida de todos los faisanes verdaderos, en el grueso de China, al oeste y al sur de la subespecie citada antes (kiangsuensis), desde el valle del Huang He y Shandong hasta Tonkín, a baja y media altitud, con intergradación con varias formas vecinas y una variación individual considerable (Delacour, 1977). Beebe la sitúa desde Cantón hasta Hunan, al norte por el curso bajo y medio del Yangtsé (río arriba, al menos hasta Ichang) y hasta Pekín, Kalgan y la región de los Ordos; supone que se entrecruza con karpowi en algún distrito del norte y con strauchi y decollatus en el oeste (Beebe, 1922 (vol. III)). Elliot la consideraba la especie con el área más extensa de toda la familia: por el este de China, desde la costa hasta las montañas, hacia el norte hasta el límite oriental de Transbaikalia, y muy común en Amurlandia; y apuntaba que en la llanura relativamente plana entre el litoral y las cordilleras, de Hong Kong a Pekín, solo habita esta especie y, en el sur, un Euplocamus(Elliot, 1872 (vol. I)). Swinhoe, en una carta citada por Elliot, la conocía de Cantón a Pekín y hacia el norte hasta Ichang, a unos 1.000 millas (1.600 km) por el Yangtsé; era muy común cerca de Hankow y en todos los lugares visitados por los europeos al norte del Yangtsé, y bastante rara en las colinas próximas a Pekín (Elliot, 1872 (vol. II)).
Macho
La parte superior de la cabeza grisácea y las líneas sobre el orbital que, aunque no son significativas, aún son visibles. Cuello no particularmente alto y no siempre bien definido y abierto en el frente. Espalda y grupa en su mayor parte son de color gris-azul o azul verdoso (Hernández García, 2014). Delacour: coronilla verde bronce grisácea; cejas y collar blancos, el collar interrumpido por delante; manto amarillo dorado claro; escapulares granate castaño; centro del pecho de un rojo purpúreo intenso, con los lados más claros; flancos amarillo pálido con grandes marcas negras; un parche azul alrededor del abdomen; ala de 240–255 mm y cola de 435–530 mm (Delacour, 1977). Birds of the World la resume como coronilla gris verdosa con cejas blancas y un amplio collar blanco que se rompe por delante, dorso amarillo dorado y escapulares castaños, pecho rojo violáceo que se desvanece a amarillo pálido con marcas negras en el flanco, y vientre azul oscuro (BOW, 2022). Madge y McGowan: manto y flancos amarillo dorado, centro del pecho rojo purpúreo, centro del vientre azulado y collar prominente pero roto por delante (Madge y McGowan, 2002). En la clave de Johnsgard, las plumas del pecho no tienen borde o están apenas bordeadas de negro verdoso, el manto es dorado claro y los escapulares, castaños (frente a los granate de takatsukasae) (Johnsgard, 1986). Beebe distingue su collar, que suele estar interrumpido por delante, del de karpowi y hagenbecki (mucho más ancho) y del de strauchi y de los decollatus más próximos (menos ancho y menos nítido); los flancos son por lo general más oscuros y ricos que en formosanus(Beebe, 1922 (vol. III)). En 1872 Elliot lo describió con la coronilla verde claro, el collar blanco dividido por delante por el verde, la espalda superior roja con las plumas bordeadas de negro, la rabadilla roja con reflejos verdes (a veces con el centro ante de algunas plumas visible), el pecho rojo púrpura metálico rodeado de negro azulado, los flancos castaño dorado con una mancha azul oscuro en cada pluma, el abdomen negro con reflejos verdosos y la piel de la cara escarlata (Elliot, 1872 (vol. II)).
Hembra
Delacour: poco marcada por debajo; Elliot: coronilla negra con la punta pardo claro; garganta blanco amarillento; resto del cuello pardo rojizo con la punta negra; manto superior con plumas castañas en el centro, una barra negra y la punta pardo rufo muy claro; dorso negro en el centro con borde pardo claro moteado de negro; partes inferiores pardo amarillentas; cola más corta que la del macho, castaño oscuro en el centro con barras negras cortadas por una línea irregular ante (Delacour, 1977; Elliot, 1872 (vol. II)). BOW: solo ligeramente marcada por debajo (BOW, 2022). Según Johnsgard, las hembras de toda la especie son esencialmente iguales, aunque tienden a ser más oscuras y marcadas en el este, en el grupo torquatus(Johnsgard, 1986). Las dos hembras de las fotografías de la tarjeta muestran tonos de fondo distintos: una parda amarillenta y otra más gris.
Variación
Desde el norte hasta el sur, la variabilidad morfológica concierne sobre todo al collar ya que cuanto más bajamos hacia el sur, más tiende a adelgazarse y a ser más incompleto, de modo que algunos sujetos pueden presentar solo marcas residuales o vagas, probablemente debido a una mutación genética o hibridación con P. c. decollatus (Hernández García, 2014). Johnsgard (según Vaurie) describe esa misma tendencia clinal, con reducción del collar blanco de norte a sur en toda la especie (Johnsgard, 1986). Delacour la considera la subespecie con más variación individual, y Beebe, tras cazar en el Yangtsé, creía que muchos de los intentos de subdividirla eran solo variantes individuales (Beebe, 1922 (vol. III); Delacour, 1977).
Tamaño y peso
Macho: ala de 240–255 mm y cola de 435–530 mm (Delacour); ala de 240–254 mm (Dementiev y Gladkov, 1967, en Johnsgard); hembra: ala de unos 208 mm (observaciones personales de Johnsgard) (Delacour, 1977; Johnsgard, 1986). No se han localizado pesos propios de esta subespecie en las fuentes revisadas; Cheng (1963) y Cheng y colaboradores (1978) dieron pesos de karpowi, pallasi, kiangsuensis y otras formas vecinas, y para toda la especie la masa de los machos oscila entre unos 770 y 1.990 g (Johnsgard, 1986).
Hábitat y altitud
Cheng (1963) distingue en China tres ambientes: los bordes enmarañados de los ríos, las zonas de colinas cercanas a grandes campos cultivados con pequeños bosquecillos de bambú y matorrales bajos de pino, y las llanuras cultivadas con arroz, trigo o colza (Johnsgard, 1986). Beebe describe lo mismo en el Yangtsé: cañaverales densos, de hasta unos 5 m, que ofrecen refugio a la mayor parte de los faisanes hasta que se cortan, hacia fines de enero, para combustible y techumbres; colinas bajas, de 30 a 60 m, cubiertas de roble bajo, castaño y pino, con pequeñas granjas y plantaciones de bambú; y arrozales llanos (Beebe, 1922 (vol. III)). Zhang Zheng-wang, con una encuesta a biólogos chinos (84 respuestas), halló que más del 60 por ciento daban como hábitat habitual los arbustos, el borde del bosque y las tierras de cultivo, y solo el 16 por ciento los humedales: según Robertson, el faisán chino no es un ave de marismas, sino que ocupa los mismos hábitats que en Occidente (Robertson, 1997). Delacour la da a baja y media altitud (Delacour, 1977).
Biología observada en China
Según Beebe, que cazó y observó en el Yangtsé, los machos cantan al amanecer desde finales de febrero hasta junio; los jóvenes empiezan a cantar con voz débil hacia septiembre y alcanzan su plenitud en octubre, y hay una segunda época de voz de agosto a finales de octubre; los combates entre machos empiezan hacia finales de diciembre y pueden durar hasta junio, y en las zonas de máxima densidad y sin tiro los machos pueden ser tan numerosos que molestan a las hembras que incuban (Beebe, 1922 (vol. III)). Pone de seis a doce huevos, a veces cría dos veces; los pollos nacen en abril, mayo y junio, aunque se anotó un nido con tres huevos el 17 de febrero de 1910 a 290 m de altitud y jóvenes apenas capaces de volar el 24 de diciembre cerca de Tung Ling, en Anhwei (Beebe, 1922 (vol. III)). Duerme en el suelo aun donde hay árboles, salvo donde abundan las alimañas, y los gallos pueden subir a las copas de los robles bajos (Beebe, 1922 (vol. III)). Los polluelos comen poco el primer día o dos, luego insectos y arañas, y tras unos diez días hierba tierna y brotes de arroz; solo a las seis semanas comen semillas (Beebe, 1922 (vol. III)). Delacour precisa que canta de febrero a junio y de agosto a octubre, que los pollos eclosionan de abril a junio y que los machos son polígamos, y se han visto algunos con seis u ocho hembras (Delacour, 1977).
Enemigos, caza y uso en China
Cheng (1963) cita al gato civeta como su enemigo más serio, y también lobos, zorros, águilas y búhos (Johnsgard, 1986). Beebe recoge que se cazaba con lazos de crin de caballo sujetos a un trozo de bambú doblado, con redes extensas hacia las que se empujaba a las aves, y con hembras atadas a una estaca como señuelo, para disparar a los machos que acudían; que se vendía en todos los puertos abiertos, a veces como «pollo de Shantung» donde la venta estaba prohibida (un velado juego con el nombre chino shan-chi); que en noviembre y diciembre se enviaban a Europa, congelados, entre 48.000 y 60.000 faisanes solo desde Hankow; y que un cazador, el señor Wade, anotó 1.801 faisanes abatidos en 23 días con perros en campos abiertos en Ewo (Beebe, 1922 (vol. III)). Los extranjeros, añade, mataban sobre todo hembras, más lentas y fáciles, mientras que los machos escapaban con mayor frecuencia; también los japoneses y los portugueses de Macao cazaban gran número de hembras (Beebe, 1922 (vol. III)). Elliot cita a Lamprey, para quien en Tientsin era la más abundante de las aves de caza de los mercados (la cuarta de las que enumera), con una cantidad «maravillosa» vendida cada invierno, y a Saurin, que decía que en el norte de China abunda y que cerca de Shanghái se mataban a centenares tras la devastación de los Taiping y que los mongoles llevaban miles congelados al mercado de Pekín desde el Amur; a Swinhoe, que en Foochow se vendía por las calles a dos chelines la pieza (Elliot, 1872 (vol. II)).
Creencias y usos locales
Beebe, que reunió datos en las primeras décadas del siglo XX, cuenta que, bajo la ley antigua, un culi que matara caza podía ser castigado con severidad y que la caza mayor se pagaba con la decapitación; había cazadores imperiales a quienes se permitía abatir un número fijo de piezas por distrito y año, con prohibición de matar hembras, y la caza mayor y la cetrería eran pasatiempos reservados a emperadores y príncipes (Beebe, 1922 (vol. III)). En algunos distritos se creía en una especie de «espíritu del polvo» que podía pasar de un faisán vivo a la persona que lo manejara y producir una enfermedad mortal con tos y fiebre (no con las aves muertas); y en partes de Shantung, de Chihli y de las colinas de Chekiang los faisanes que frecuentaban los cementerios se consideraban receptáculos de los espíritus de los antepasados, por lo que los lugareños se oponían a que se les disparara (Beebe, 1922 (vol. III)).
Estado
Sin evaluación subespecífica. Delacour la considera muy extendida, aunque destruida o muy reducida en muchos lugares, sobre todo cerca de las grandes ciudades y en las llanuras costeras, muy cultivadas; en el interior, con mucha cobertura, sigue siendo común (Delacour, 1977). Madge y McGowan la tienen por la más común de los galliformes de China y BirdLife da densidades de 64 a 95 aves/km² para el país, que se consideran habituales (BirdLife, 2025; Madge y McGowan, 2002). La especie es de preocupación menor (BirdLife, 2025; BOW, 2022).
Genética
En el análisis de Birds of the World, torquatus encabeza un linaje que incluye a decollatus, karpowi, pallasi y takatsukasae(BOW, 2022). Ashrafzadeh y colaboradores (2021) recogen haplotipos mitocondriales de aves de Anyang y de Xinyang (China) atribuidas a torquatus que forman un pequeño grupo con uno de los haplotipos hallados en faisanes de Hungría y Serbia (Ashrafzadeh et al., 2021).
Introducciones
Delacour cuenta que llegó a Santa Elena ya en 1513, en circunstancias singulares, de la mano de un desertor portugués, Fernandez Lopez, y se aclimató enseguida; a Inglaterra, en el siglo XVIII, aclimatándose pronto en la finca del duque de Northumberland; en el siglo XIX se hizo común en Europa y en América, sobre todo en Oregón, y sigue siendo la forma predominante en Estados Unidos (Delacour, 1977). Elliot recoge que en Santa Elena las aves, tras muchas generaciones, ya diferían algo de sus antepasados en color y marcas, y que en Nueva Zelanda (Auckland) se soltaron aves de China (de las dos docenas de la primera remesa murieron catorce en el viaje y llegaron vivas siete, cinco de ellas machos, según las cifras que da Elliot, que no cuadran entre sí; en 1856 se soltaron seis más) y se previó que acabarían cruzándose con el faisán de la Cólquida (Elliot, 1872 (vol. II)). En Inglaterra, según Elliot, se cruzó libremente con colchicus y dio la variedad de cuello blanco que se llama «ringneck», muy abundante en todo el país; con las tres especies (colchicus, torquatus y versicolor) naturalizadas era ya difícil hallar un ejemplar puro de cualquiera de ellas (Elliot, 1872 (vol. II)). BOW fecha su llegada a Europa en el siglo XVIII, con mongolicus, y recuerda que la primera liberación con éxito en Norteamérica fue en 1882 en el valle de Willamette (Oregón), tras un intento fallido en Nueva York entre 1730 y 1733, y que en Hawái se soltaron sobre todo mongolicus y torquatus desde 1866 (BOW, 2022). Robertson añade que las aves chinas, importadas directamente o salidas de granjas europeas, se dieron «especialmente bien» en Oregón: de menos de 200 aves iniciales en Willamette se pasó a unas 50.000 en diez años; los grandes éxitos del Medio Oeste (1900–1910) los organizaron los departamentos estatales de caza, y en los años cuarenta Dakota del Sur albergaba, según se creía, de 16 a 30 millones de faisanes silvestres (Robertson, 1997). Green-Armytage añade que en el oeste de Estados Unidos las aves se importaron directamente de China, pero en el este eran con frecuencia reexportaciones de Europa (Green-Armytage, 2002). En Chile, según el criadero Chintaguay (que cita a Goodall, Johnson y Philippi), en 1914 Carlos Haverbeck introdujo 80 faisanes de caza de Alemania, de esta subespecie, en su fundo de Allipén (provincia de Cautín), con gran éxito, y regaló algunas parejas a Augusto Grob, que las soltó en la isla Pichi Colcuma, del lago Ranco; BOW anota, en cambio, que las introducciones cerca de la costa, en Elqui y cerca de La Unión (Valdivia), aparentemente fracasaron, y que una de los años noventa en Coyhaique (Aysén) parece haber tenido éxito (BOW, 2022; del Campo, 2006).
Cautividad y uso cinegético
Delacour lo describe como un ave pequeña pero de colores vivos, con un ancho collar blanco, el pecho rojo oscuro, el dorso superior amarillo, los hombros grises, los flancos naranja y la rabadilla verde; la hembra pálida; un muy buen ave de caza, ampliamente introducida en América (Delacour, 1978). El criadero Chintaguay destaca que la mayoría de los criadores comienza con el faisán de collar de China por la facilidad con que se encuentra, la rapidez con que se reproduce, su resistencia a distintas condiciones ambientales, su relativo bajo costo y su versatilidad (producción ornamental, de carne o para cotos de caza), y menciona una variedad «Jumbo» desarrollada especialmente para carne (del Campo, 2006). Gerrits la menciona como el único faisán de rabadilla gris que merece atención en cautividad en Europa, porque los demás nunca se importaron; y Howman recuerda que muchas de las subespecies puras ya no lo son, por la intervención humana (Gerrits, 1974; Howman, 1993). El «ringneck» de caza, que Delacour califica de híbrido entre el faisán de cuello negro y los kirguises o chinos, no es una raza pura ni estable (Delacour, 1978). Delacour y Howman recuerdan que el faisán de Formosa se cruzó tanto en libertad con el chino que ya no se mantiene puro (Delacour, 1977; Howman, 1993).
Las seis fotografías de esta subespecie (cinco en la tarjeta y una debajo) no llevan autor ni lugar; se atribuyen a ella por el nombre del archivo, y la primera, un macho con la tela metálica de un recinto de fondo, es la de la ficha original (Hernández García, 2014). El libro del autor reproduce además una lámina de John Gould, The Birds of Asia, del faisán de collar de China, como dibujo de dominio público, y fotografías de Saul Villagrana de un macho; la correspondencia con los archivos de la carpeta de la especie no consta (Hernández García, 2014).
Faisán de collar de Setchou o del oasis de Satchu; en inglés Satchu ring-necked pheasant o Satchu Oasis pheasant(Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014). El epíteto procede, según Beebe, de la tierra del ave, el oasis de Satchu, en el extremo occidental de Gansu (Beebe, 1922 (vol. III)). Jobling no lo recoge entre los epítetos de Phasianus colchicus.
Autor y localidad tipo
Pleske, Bulletin de l’Académie impériale des sciences de Saint-Pétersbourg, 1892: Beebe y BOW citan el volumen 13, página 296; Delacour cita la página 136 de la serie nueva, 3 (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). Localidad tipo: al norte de los montes Nan Shan (BOW, 2022; Delacour, 1977). Como en el caso de tarimensis, el nombre figuraba antes en una obra de Przhevalski (1883) sin descripción, y se atribuye a Pleske, no a Przhevalski (Beebe, 1922 (vol. III); Delacour, 1977). La tabla de Pfarr coincide en «Pleske, 1892» (Pfarr (tabla)).
Sinónimos y grafías
Beebe reúne las grafías satscheuensis (la original), satscheunensis (Przhevalski, 1884; Grant, 1893; Rothschild, 1904) y satschuenses (Dresser, 1903, como subespecie de torquatus), y recoge que Seebohm (1888) incluyó aves de este lugar (Satschen) en Phasianus shawi(Beebe, 1922 (vol. III)).
Distribución
Pequeñas poblaciones se encuentran en territorios bastante circunscritos del extremo noroeste de Gansu (China) y las zonas vecinas de Xinjiang (China) (Hernández García, 2014). En concreto, Delacour la sitúa en el extremo oeste de Gansu, al norte de los Nan Shan (Sachow), en los valles del Dan-khe y del Bulunzir y en el lago Halachi, entre 2.000 y 7.000 pies (unos 600–2.100 m); Beebe, en el valle del Buluzin, los marjales y el lago de Khalachi-Nor, el valle del Dankhe y el oasis de Satchu, y en Ansu, Shao-wan y Shanto-po; Johnsgard, en la cuenca del curso bajo de los ríos Tunhwang y Shuleh, hacia el este al menos hasta Ansi (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986). Madge y McGowan y BOW la dan aislada en el extremo noroeste de Gansu (BOW, 2022; Madge y McGowan, 2002). Ninguna de las fuentes consultadas la cita en Xinjiang: Beebe subraya, de hecho, que el desierto de Kum-Tag, sin agua, separa a tarimensis, en el Tarim, de satscheuensis, al este (Beebe, 1922 (vol. III)).
Macho
Delacour la considera muy distinta por el color claro de las partes superiores: coronilla gris verdosa pálida; cejas blancas y collar blanco estrecho, interrumpido por delante; manto amarillo dorado claro; escapulares y coberteras mayores en su mayoría canela arena pálido, y coberteras menores gris claro; pecho naranja cobrizo con estrechos bordes negros; costados y flancos amarillo dorado; ala de 237–251 mm (Delacour, 1977). Beebe la distingue de sus vecinas más próximas (tarimensis, vlangalii y strauchi) por el color muy pálido y el collar blanco, y de torquatus por los bordes de escapulares y secundarias pardo arena en lugar de rojo indio; los bordes del plumaje ventral son anchos y verde purpúreo (Beebe, 1922 (vol. III)). Madge y McGowan: muy pálido y arenoso por encima, pero rojo cobrizo oscuro y amarillo dorado por debajo, con la coronilla pálida y el collar estrecho y roto (Madge y McGowan, 2002). La clave de Johnsgard la separa de edzinensis por el manto dorado pálido con el centro de las plumas blanco (edzinensis lo tiene dorado brillante, sin centros blancos) y la sitúa entre las formas de collar estrecho, casi o totalmente interrumpido por delante, con plumas del pecho bordeadas de verde negruzco y color general muy pálido (Johnsgard, 1986). Según BOW, la corona es gris verdosa pálida con cejas blancas, el collar blanco estrecho y roto, el dorso marrón dorado claro y las coberteras alares casi todas canela pálido, y el pecho naranja cobrizo se desvanece a amarillo dorado en los flancos (BOW, 2022).
Hembra
Muy pálida, según Delacour, con las marcas de la cabeza negras y las demás pardas o canela; para Beebe, mucho más pálida que la de torquatus, con el plumaje dorsal ante pálido y las marcas negras muy reducidas; y para BOW, pálida con marcas oscuras que son negras en la cabeza y marrones en el resto (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Tamaño y peso
Macho: ala de 237–251 mm (Delacour, 1977). No se han localizado ni la cola ni los pesos en las fuentes consultadas.
Hábitat y altitud
Aves de oasis: valles fluviales, marjales y orillas de lagos del extremo del desierto, entre 2.000 y 7.000 pies (unos 600–2.100 m), según Delacour y Beebe (Beebe, 1922 (vol. III); Delacour, 1977). Como las demás subespecies del interior de Asia, depende de la presencia de agua dulce (Delacour, 1977; Johnsgard, 1986).
Parecidos con las vecinas
Delacour señala que se parece mucho a edzinensis, de la que difiere por ser esta ligeramente más brillante y de manto más dorado, con centros blancos en las plumas (Delacour, 1977). Madge y McGowan precisan que edzinensis tiene los escapulares con bordes más oscuros y centros más puros de blanco, y las partes inferiores más pálidas (Madge y McGowan, 2002).
Estado
Sin evaluación propia. Madge y McGowan señalan como posiblemente en peligro a hagenbecki y edzinensis, pero no a esta subespecie; la ficha original habla de «pequeñas poblaciones» en territorios muy circunscritos (Hernández García, 2014; Madge y McGowan, 2002). BOW pide más atención a la conservación por subespecies (BOW, 2022).
Genética
En el análisis genético de BOW, satscheuensis se incluye en el grupo strauchi-vlangalii, junto con alaschanicus, hagenbecki, kiangsuensis, suehschanensis, strauchi y vlangalii, y no en el torquatus estricto (BOW, 2022).
Cautividad
Delacour cuenta que el faisán de Satchu se crio en Inglaterra y en Italia en 1903–04 y desapareció después, aunque de vez en cuando se encuentran aves asilvestradas que se le parecen mucho (Delacour, 1977).
Las tres fotografías de la tarjeta no llevan autor ni lugar y se atribuyen a la subespecie por el nombre del archivo; la primera, un macho con una hembra entre la hierba, es la de la ficha original (Hernández García, 2014). La atribución por el nombre del archivo no se ha podido contrastar con la descripción de las fuentes, que hablan de un plumaje muy pálido (Beebe, 1922 (vol. III); Delacour, 1977).
Faisán de collar de Kobdo; en inglés Kobdo ring-necked pheasant o Hagenbeck’s pheasant(Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014). El nombre de Kobdo deriva de la ciudad del mismo nombre situada al pie de las montañas de Altai (Hernández García, 2014). El epíteto honra, según Beebe, a Carl Hagenbeck, el comerciante alemán de animales vivos (Beebe, 1922 (vol. III)). Es el mismo Hagenbeck que, según Delacour, trajo en 1900 los primeros faisanes kirguises vivos a Inglaterra para Lord Rothschild (Delacour, 1977). Jobling no recoge el epíteto entre los de Phasianus colchicus.
Autor y grafías
Rothschild, Bulletin of the British Ornithologists’ Club, 12, 1901, p. 20 (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). La ficha original y el libro del autor escriben «Rotthschild» (con dos «t»); la forma correcta es Rothschild, y Jobling identifica al autor como Lionel Walter, segundo barón Rothschild de Tring (1868–1937), ornitólogo, entomólogo y editor de Novitates Zoologicae(Hernández García, 2014; Jobling, 2010). El epíteto se escribe hagenbecki en el nombre original y en Delacour, Johnsgard, Madge y McGowan, BOW, Beebe, Fuller y la tabla de Pfarr; hagenbeckii es la forma con que se nombran los archivos de las fotografías de la carpeta de la especie (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002; Pfarr (tabla)). Rothschild publicó en la misma página, la 20 del volumen 12 del Bulletin, el nombre Phasianus brandti para el faisán kirguís, que retiró en 1903 (Beebe, 1922 (vol. III)).
Beebe incluye también, entre los sinónimos de pallasi, citas de Tegetmeier de 1903 y 1904 con el nombre Phasianus hagenbecki, lo que muestra la confusión entre ambas formas, y anota con duda Phasianus alaschanicus de Alphéraky y Bianchi (1908) como posible sinónimo; Madge y McGowan no incluyen sinónimos para esta subespecie (Beebe, 1922 (vol. III); Madge y McGowan, 2002).
Distribución
Endémica de Mongolia. Una pequeña y aislada población de hagenbecki sobrevive en un área entre los ríos Chowd y Buhmurun - provincia UVS - noroeste de Mongolia (Hernández García, 2014). Johnsgard la sitúa aislada en el extremo oeste de la Mongolia exterior, desde las estribaciones septentrionales del Altai, al norte hasta el lago Khara Usu y la cuenca del río Khobdo hasta el lago Achitu Nor; Delacour y Beebe, en el valle de Kobdo, Karra-ussu y Achit-Nor, al norte del Ektag Altai, de 3.000 a 5.000 pies (unos 900–1.500 m) (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986). Birds of the World y Madge y McGowan: oeste de Mongolia, en el valle del Kobdo (BOW, 2022; Madge y McGowan, 2002). Beebe subraya el hiato: pallasi, casi indistinguible, vive a unas 1.500 millas (unos 2.400 km) al este, a través de toda Mongolia; y al oeste solo una cordillera la separa de mongolicus, de rabadilla roja, del que difiere radicalmente en el color (Beebe, 1922 (vol. III)).
Macho
Subespecie que al principio podría confundirse con Ph. c. pallasi, sin embargo en Ph. c. hagenbecki aproximadamente el 10% de los sujetos muestra manchas blanquecinas en los lados de la cabeza, en cambio son bastante frecuentes en Ph. c. pallasi, y también el collar es generalmente mucho más alto. Indicar que en la parte superior de la espalda y los hombros se dibuja una especie de W; Corona de olivo-bronce y tiende a destacar un poco de violeta en la parte superior del pecho y el cuello (Hernández García, 2014). Delacour: muy parecido a pallasi, pero por lo general sin manchas blancas en las mejillas, con el collar blanco todavía más ancho y las partes superiores más pálidas y más rayadas de negro y ante pálido; ala de 260–265 mm (Delacour, 1977). Beebe, en el mismo sentido: normalmente sin la mancha blanca bajo las coberteras auriculares, y con los bordes negros de las plumas del pecho más anchos (Beebe, 1922 (vol. III)). Madge y McGowan: la forma más grande y pálida, con el collar blanco completo, la coronilla pálida y el color de fondo amarillo paja (Madge y McGowan, 2002). La clave de Johnsgard la separa de pallasi porque la mancha negra bajo el ojo suele no llevar mancha blanca, y de karpowi por el color general, muy pálido en hagenbecki y muy oscuro en karpowi(Johnsgard, 1986). BOW añade que el macho tiene un collar blanco más ancho y las partes superiores más pálidas, con más estrías negras y beige (BOW, 2022).
Hembra
Muy moteada, con marcas en su mayoría pardo claro, algo más pálida y rojiza que la de pallasi (Delacour); según BOW, muy moteada con marcas pardo claro más pálidas que las de pallasi(BOW, 2022; Delacour, 1977).
Tamaño y peso
Macho: ala de 260–265 mm, la mayor entre las subespecies, según Delacour y Madge y McGowan, que ponen esta forma como ejemplo de que las poblaciones del norte son más grandes que las del sur (frente a los 210–230 mm de rothschildi, en Yunnan) (Delacour, 1977; Madge y McGowan, 2002). No hay pesos en las fuentes consultadas.
Hábitat y altitud
Valle de Kobdo, de 3.000 a 5.000 pies (unos 900–1.500 m) (Delacour, 1977). Beebe confiesa que del faisán del valle de Kobdo se sabe poco (Beebe, 1922 (vol. III)). En Mongolia, BirdLife recoge densidades muy bajas, de 1–2 aves/km², con la especie al límite de su área (BirdLife, 2025).
Estado
Madge y McGowan señalan que algunas subespecies de área restringida pueden estar en peligro, entre ellas hagenbecki y edzinensis(Madge y McGowan, 2002). La ficha original dice que sobrevive una pequeña población aislada (Hernández García, 2014). Wikipedia indica que su posición necesita aclaración (Wikipedia).
Genética
En los linajes genéticos de Birds of the World, hagenbecki aparece en el grupo strauchi-vlangalii (con alaschanicus, kiangsuensis, satscheuensis, suehschanensis, strauchi y vlangalii) y no con pallasi, karpowi o torquatus, con los que la une la clasificación tradicional por el plumaje (BOW, 2022).
Cautividad
No se ha localizado en las fuentes revisadas que se mantenga en colecciones; Beebe cita un artículo de Tegetmeier de 1903 sobre estas aves, con la anotación «en Londres» (Beebe, 1922 (vol. III)).
Las cuatro fotografías de la tarjeta no llevan autor ni lugar; se atribuyen a esta subespecie por el nombre del archivo, y la primera, la cabeza y el cuello de un macho sujeto con la mano, es la de la ficha original (Hernández García, 2014). La segunda y la tercera muestran un macho posado sobre un montículo, con el collar blanco ancho, los flancos amarillos con motas negras y la rabadilla gris azulada, y la cuarta un detalle del dorso y de los costados de otro macho.
Faisán de Manchuria (o de collar de Manchuria o de Pallas); en inglés Manchurian ring-necked pheasant, y también, según Beebe, Sungarian pheasant, Ussurian pheasant y Alphéraky’s pheasant(Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014). El epíteto honra a Peter Simon Pallas (1741–1811), el eminente naturalista y viajero alemán, explorador de Siberia, que ya había señalado en 1811 una variedad de collar blanco del faisán en los desiertos de los mongoles (Beebe, 1922 (vol. III); Jobling, 2010).
Autor y localidad tipo
Descrito como Phasianus torquatus pallasi por Rothschild, Bulletin of the British Ornithologists’ Club, 13, 1903, p. 43; localidad tipo, el curso bajo del río Sidemi, en Ussurilandia (Manchuria) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). La ficha original y el libro del autor escriben «Rotthschild»; el autor es Walter Rothschild (Lord Rothschild) (Hernández García, 2014; Jobling, 2010). La tabla de Pfarr da «Rothschild, 1903» (Pfarr (tabla)).
Sinónimos y nombres anteriores
Madge y McGowan incluyen en esta subespecie los nombres alpherakyi y ussuriensis(Madge y McGowan, 2002). Beebe habla de «una auténtica salva de nombres» que han oscurecido a esta forma, debida a descripciones apresuradas de aves sueltas de localidades inciertas: Phasianus alpherakyi y P. alpherakyi ussuriensis de Buturlin (1904); Phasianus torquatus mongolicus de Rothschild (1901, no Brandt, retirado luego por el autor); y nombres de Tegetmeier de 1903–04 que confundían esta forma con la de Kobdo (Beebe, 1922 (vol. III)). El primer aviso de un faisán de collar blanco en estas tierras es el de Pallas (1811), que lo trató como «variedad de collar blanco» del común en los desiertos de los mongoles (Beebe, 1922 (vol. III)).
Distribución
Vive en las áreas al noreste de Heilongjiang y Mongolia Interior (Hernández García, 2014). Delacour y Johnsgard la dan en el sureste de Siberia, desde el alto Amur y Ussurilandia al sur del paralelo 44° N, hasta el norte de Chihli, el centro de Manchuria y el norte de Corea por encima de los 40° N, intergradando con karpowi; Beebe, en el norte y centro de Manchuria y en Ussurilandia, desde el Amur hasta la costa del mar del Japón (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986). Madge y McGowan y BOW: Ussurilandia y el sur de Amurlandia (Extremo Oriente ruso), el noreste de Corea del Norte y el noreste de China (norte y este de Heilongjiang) (BOW, 2022; Madge y McGowan, 2002). Ninguna de las fuentes consultadas la cita en Mongolia Interior, donde se citan kiangsuensis y otras formas. Johnsgard señala que la especie es sedentaria, pero que se han descrito movimientos migratorios en esta subespecie (Johnsgard, 1986). En la cuenca del Amur recoge que hubo varias migraciones masivas de faisanes, sobre todo de machos adultos, procedentes de China durante inviernos severos periódicos (Barancheev, 1965) (Johnsgard, 1986).
Macho
Subespecie que cuando es pura es casi inconfundible gracias a una coloración particularmente clara del plumaje, empapada en tonos amarillos y marrón cobre; cabeza verde grisácea con reflejos metálicos azulados, cabeza grisácea y líneas sobre orbitales blancos muy evidentes; Grande y vistoso cuello blanco cerrado; pecho cobre con iridiscencias violetas; grupa azul grisáceo (Hernández García, 2014). Delacour: parecido a karpowi, pero mayor y más claro; coronilla pálida; cejas y collar blancos muy anchos; por lo general, una mancha blanca en las mejillas; manto amarillo paja; escapulares canela castaño claro; rabadilla gris pálido (Delacour, 1977). Beebe resume la diferencia con karpowi y torquatus en el collar blanco más ancho y casi completo, y en el plumaje general más claro, y con hagenbecki en la mancha blanca bajo las coberteras auriculares y en que los bordes negros de las plumas del pecho son menos nítidos (Beebe, 1922 (vol. III)). La clave de Johnsgard se basa en lo mismo: collar completo y ancho, incluso por delante, y mancha negra bajo el ojo con una mancha blanca (Johnsgard, 1986). Madge y McGowan la ven más oscura que hagenbecki, con la coronilla más parda y el plumaje del cuerpo más amarillo dorado (Madge y McGowan, 2002). BOW: coronilla pálida, cejas blancas, collar blanco muy ancho, dorso amarillo paja, escapulares canela castaño y rabadilla gris pálido (BOW, 2022).
Hembra
Clara, pero bien marcada (Delacour); marrón claro y bien marcada (BOW) (BOW, 2022; Delacour, 1977). Según Johnsgard, las hembras de las formas orientales tienden a ser más oscuras y más marcadas (Johnsgard, 1986).
Tamaño y peso
Machos: ala de 248–270 mm según Delacour (Delacour, 1977); ala de 235–245 mm, cola de 435–485 mm y peso de 1.264–1.650 g, y hembras con ala de 210–211 mm, cola de 225–285 mm y peso de 880–900 g, según los datos de Cheng y colaboradores (1978) que recoge Johnsgard (Johnsgard, 1986). Dementiev y Gladkov (1967) pesaron 14 machos, con una media de 1.174,4 g (entre 1.090 y 1.330 g), y nueve hembras, con una media de 1.081,5 g (entre 970 y 1.220 g) (Johnsgard, 1986). Las cifras de ala de Delacour y de Cheng no coinciden.
Hábitat y vida en libertad
Según Beebe, nunca vive en lo alto de las montañas, sino en las laderas bajas y abrigadas o en las llanuras de matorral; en el valle del Ussuri, Przhevalski la halló más abundante junto al lago Hanka y en la costa meridional del mar del Japón, desde la bahía de Possiet hasta Santa Olga y más allá, normalmente cerca de las tierras cultivadas, donde comía todo tipo de grano y hasta patatas jóvenes, que se tragaba enteras; en los robledales se cazaron aves con el buche lleno de bellotas, con las que engordaban mucho en otoño; y la época de cría llegaba hasta fines de junio, con pollos recogidos a principios de julio (Beebe, 1922 (vol. III)). Una fotografía de Beebe del noreste de China retrata la costumbre de bajar una vez al día a los ríos o arroyos a beber y regresar a las laderas herbosas donde anidan y duermen; un macho inmóvil entre la hierba no se levantó hasta que el fotógrafo estuvo a pocos metros y subió casi en vertical unos nueve metros con un fuerte estruendo de alas, y cerca había dos hembras incubando (Beebe, 1922 (vol. III)). Madge y McGowan fechan la cría de la especie desde fines de febrero en Jiangsu hasta mayo–junio en Amurlandia, donde vive esta subespecie (Madge y McGowan, 2002).
Estado
Sin evaluación propia; las fuentes consultadas no dan cifras de población para esta subespecie. Madge y McGowan la citan como local en Ussurilandia, en el Extremo Oriente ruso (Madge y McGowan, 2002). La especie es de preocupación menor (BirdLife, 2025; BOW, 2022).
Genética
En los linajes de BOW, pallasi forma, con decollatus, karpowi, takatsukasae y torquatus, el linaje torquatus(BOW, 2022). Ashrafzadeh y colaboradores (2021) recogen que uno de los haplotipos presentes en los faisanes de Hungría y Serbia, el H51, ya había sido detectado antes en un ave de Xianghai (China) atribuida a pallasi y en otra de Libo atribuida a decollatus(Ashrafzadeh et al., 2021).
Cautividad e introducciones
Delacour cree que el faisán de Manchuria también se importó a Europa y a América, aunque no tiene datos precisos (Delacour, 1977). Beebe cuenta que en Tring, en Inglaterra, Lord Rothschild soltaba faisanes de caza con distintas proporciones de sangre de colchicus, torquatus y hasta versicolor, y que más tarde introdujo una línea de sangre de pallasi, de la que salió una mezcla de aves (Beebe, 1922 (vol. III)). En el estudio de Ashrafzadeh, el linaje al que pertenece pallasi, junto con mongolicus y torquatus, aparece en los faisanes introducidos de Serbia (Ashrafzadeh et al., 2021). La ficha original, al hablar de la subespecie de Formosa, dice que su mutación «clara» sería muy probablemente el resultado de un cruce con pallasi(Hernández García, 2014).
Las seis fotografías de esta subespecie (cinco en la tarjeta y una debajo) no llevan autor ni lugar y se atribuyen a ella por el nombre del archivo; la primera, un macho con una hembra tras una malla, es la de la ficha original. El libro del autor atribuye fotografías de un macho y de una hembra a Scot Vowers y de otro macho a Saul Villagrana; no consta cuáles son (Hernández García, 2014).
Faisán de collar de Corea; en inglés Korean ring-necked pheasant o Corean pheasant; en japonés, korai-kiji (faisán coreano) (Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014). El epíteto honra, según Beebe, a A. W. Karpow, que recogió el ejemplar tipo (Beebe, 1922 (vol. III)). Jobling no recoge este epíteto entre los de Phasianus colchicus.
Beebe recoge, entre otros: Phasianus karpowi buturlini Clark, 1907; Phasianus karpowi karpowi Clark, 1911 (Corea); Phasianus torquatus karpowi Ingram, 1909; y usos del nombre Phasianus torquatus (Taczanowski, 1893; Grant, 1893, en parte) para aves de esta forma (Beebe, 1922 (vol. III)). Madge y McGowan no incluyen sinónimos (Madge y McGowan, 2002).
Distribución
La ficha original no da su área; la describe como «bastante conocida tanto en sus lugares de origen como en avicultura en general» (Hernández García, 2014). Delacour: noreste de Chihli, sur de Manchuria y Corea hasta el paralelo 37° N, aproximadamente; entre los 37° y los 40° N la población es intermedia entre karpowi y pallasi y es inestable; también en las islas de Tsushima y Quelpart; vive a baja altitud, hasta unos 2.000 pies (unos 600 m) (Delacour, 1977). Johnsgard: sur de Manchuria, al sur hasta el norte de Hopeh y la mayor parte de Corea, además de Tsushima y Quelpart; intergrada con pallasi y kiangsuensis, y la población es inestable (Johnsgard, 1986). Madge y McGowan: Corea y el noreste de China (centro de Heilongjiang, al sur hasta el norte de Hebei, en los suburbios de Pekín) (Madge y McGowan, 2002). BOW: noreste de China (sur de Heilongjiang y norte de Hebei) y centro y sur de Corea, incluida la isla de Jeju (Quelpart) (BOW, 2022). Beebe: sur de Manchuria, toda Corea y la isla de Tsushima, hacia el norte hasta Kirin; un ejemplar de Chaoyang (Chihli) era típico de karpowi, salvo por las manchas blancas bajo la oreja, muy tenues; y supone que se mezcla con pallasi y con torquatus en los puntos de contacto (Beebe, 1922 (vol. III)).
Macho
Delacour: parecido a torquatus, pero mayor; coronilla todavía más clara; collar ininterrumpido y ancho por delante; manto y flancos más oscuros y de un amarillo más dorado; ala de 240–260 mm (Delacour, 1977). Beebe: muy cercano a torquatus, con los flancos más oscuros, más pardo dorado (Beebe, 1922 (vol. III)). BOW: similar a torquatus, pero el macho es más grande, con una corona más clara y un collar blanco ininterrumpido más ancho; el dorso y los flancos, más oscuros y amarillo dorado (BOW, 2022). Madge y McGowan: más oscuro y de colores más ricos que pallasi, e intermedio con kiangsuensis(Madge y McGowan, 2002). En la clave de Johnsgard es, entre las formas de collar ancho y completo, la de color general muy oscuro (frente al muy pálido de hagenbecki) (Johnsgard, 1986).
Hembra
Clara, pero bien marcada, según Delacour y BOW (BOW, 2022; Delacour, 1977). Johnsgard anota que las hembras del este son más oscuras y marcadas (Johnsgard, 1986).
Variación local
Bastante conocida tanto en sus lugares de origen como en avicultura en general. Sin embargo, debe enfatizarse que, al igual que otros tipos de phasianidae, las subespecies distribuidas en vastos territorios tienden, según la latitud en la que se encuentran, a mostrar los diferentes colores del plumaje (Hernández García, 2014). Delacour y Johnsgard lo confirman: entre karpowi y pallasi, y entre karpowi y kiangsuensis, hay poblaciones intermedias e «inestables» (Delacour, 1977; Johnsgard, 1986).
Tamaño y peso
Machos: ala de 240–260 mm (Delacour); ala de 217–235 mm, cola de 424–570 mm y peso de 1.000–1.312 g, y hembras con ala de 194–208 mm, cola de 220–290 mm y peso de 545–875 g, según los datos de Cheng y colaboradores (1978) que recoge Johnsgard (Delacour, 1977; Johnsgard, 1986). Cheng (1963) pesó 15 machos, con una media de 1.296 g, y siete hembras, con una media de 798 g (entre 560 y 1.120 g); el intervalo de los machos (de 1.007 a «3.090») que da el texto de Johnsgard es evidentemente erróneo en su extremo superior, de modo que solo se da la media (Johnsgard, 1986). Bohl (1964) indica para los machos de 1.245 a 1.360 g y para las hembras de 906 a 1.245 g (Johnsgard, 1986).
Hábitat y vida en Corea
Roy C. Andrews, que cazó en Corea y cuyo relato recoge Beebe, describe en el sur (Ulsan, a unos 65 km al norte de Pusan) un país de colinas de 15 a 150 m cubiertas de arbustos y pinos pequeños, con valles estrechos de arrozales en terrazas, y los faisanes en las laderas y entre los arbustos, rara vez en las cimas; durante el invierno no emitían ningún sonido, no vio peleas entre machos, pasaban el calor del día ocultos y salían a comer y beber en los arrozales al amanecer y por la tarde; el vuelo es una sucesión de rápidos aleteos seguidos de deslizamiento; los coreanos, a quienes se confiscaron las armas en 1909, los atrapaban con lazos, y los extranjeros mataban miles cada año; en una hora de marcha se levantaban diez o quince aves; en el buche halló arroz, bayas rojas pequeñas y un saltamontes (Beebe, 1922 (vol. III)). Las aves se habían adaptado a siglos de deforestación; la carne es blanca y algo seca, y los coreanos la consideran un manjar, que alcanza buen precio en Año Nuevo; coreanos y japoneses hacían con las largas plumas de la cola pequeñas escobillas para el polvo (Beebe, 1922 (vol. III)). En el noreste de Corea, entre los ríos Tumen y Yalu, en colinas de 150 a 600 m con robles y abedules dispersos, eran menos abundantes; comían mijo, avena y bayas rojas; el macho canta con un grito corto de tres notas agudas, «cuk-cuk-cuk», que se oye a gran distancia, y al levantar el vuelo emite un cacareo rápido y repetido (Beebe, 1922 (vol. III)).
Estado
Sin evaluación propia. En los años en que escribía Andrews (principios del siglo XX), seguían siendo muy abundantes en Corea pese a la caza y a la captura con lazos (Beebe, 1922 (vol. III)). La especie es de preocupación menor (BirdLife, 2025).
Genética
En los linajes de BOW, karpowi forma parte del linaje torquatus (con decollatus, pallasi, takatsukasae y torquatus) (BOW, 2022).
Introducción en Japón y cautividad
BOW recoge que esta fue la subespecie que se introdujo en la isla de Hokkaido, en Japón, por primera vez en 1930, y que sigue bien establecida en el suroeste de la isla (BOW, 2022). Fuller cita el caso de los faisanes verdes nativos de Japón (versicolor, robustipes y tanensis), que se han hibridado con la subespecie coreana para criar más aves en cautividad que luego se sueltan con fines cinegéticos, y que debe investigarse (Maru, 1980; Brazil, 1991) (Fuller y Garson, 2000). Delacour recibió algunas aves en 1926 en Clères, que criaron y se distribuyeron; no parece que se conserve ningún stock puro (Delacour, 1977). Bohl (1964) estudió la forma de Corea y el faisán verde japonés en un informe del Servicio de Pesca y Vida Silvestre de Estados Unidos (Johnsgard, 1986).
Las seis fotografías de esta subespecie (cinco en la tarjeta y una debajo) no llevan autor ni lugar y se atribuyen a ella por el nombre del archivo; la de la ficha original es la de un macho junto a un arbusto. El libro del autor atribuye fotografías de un macho y de una hembra a Siro Serena; no consta cuáles son (Hernández García, 2014).
Faisán de Chansi (la ficha original) o de Shanxi (en el libro del autor «de collar de Shanxi»); en inglés Shansi pheasant(Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). Chansi (la ficha original) y Shansi (Delacour y Johnsgard) corresponden a la actual provincia de Shanxi, que escriben así Madge y McGowan (Madge y McGowan, 2002). Los lugareños lo llaman, según la ficha original, «gallo fritillaria» por su marcada preferencia por esa planta, y «faisán de carbón» porque en algunos casos se acerca a las granjas o a las tiendas de los cazadores para alimentarse del carbón que queda después de apagarse el fuego (Hernández García, 2014). El epíteto alude a Kiangsu (Jiangsu); Wikipedia subraya que, pese al nombre, la subespecie no vive en Jiangsu, y Delacour anota que la localidad tipo, «este de China», es un error por Kalgan (Delacour, 1977; Wikipedia).
Autor y localidad tipo
Descrito como Phasianus holdereri kiangsuensis por Buturlin, Ibis, 1904, p. 407; localidad tipo, «este de China», error por Kalgan (Delacour) (BOW, 2022; Delacour, 1977). Buturlin lo describió, pues, como subespecie de holdereri, un nombre que Madge y McGowan incluyen hoy entre los sinónimos de strauchi; Beebe recoge también Phasianus gmelini kiangsuensis Buturlin, 1908 (Beebe, 1922 (vol. III); Madge y McGowan, 2002). Madge y McGowan incluyen en la subespecie los nombres pewzowi y schensinensis(Madge y McGowan, 2002). La tabla de Pfarr da «Buturlin, 1904» (Pfarr (tabla)).
Distribución
Vive en Mongolia Interior, al noreste de Shaanxi y Hebei (Hernández García, 2014). Delacour y Johnsgard: China al norte del Huang He (Hwang-ho): oeste y sur de Chihli, norte de Shansi y Shensi y partes adyacentes del sureste de Mongolia, a baja y media altitud, con mucha intergradación cerca de los límites norte y sur (Delacour, 1977; Johnsgard, 1986). Madge y McGowan y BOW: noreste de China (oeste de Hebei y la vecina Nei Mongol, norte de Shanxi y de Shaanxi) (BOW, 2022; Madge y McGowan, 2002). Un pie de lámina de Beebe habla de la «desolada tierra de Chihli, en el noreste de China, hogar del faisán de Kiangsu» (Beebe, 1922 (vol. III)).
Macho
Delacour: cercano a decollatus, pero con cejas blancas y un collar fino, por lo general ininterrumpido por delante; flancos, manto y escapulares oscuros y de colores ricos; ala de 240–255 mm (Delacour, 1977). Madge y McGowan: más oscuro y de colores más ricos que las formas anteriores (pallasi y karpowi), con la coronilla oscura y el collar blanco más estrecho (Madge y McGowan, 2002). BOW: cejas blancas y un fino collar blanco completo, con el dorso, los escapulares y los flancos oscuros (BOW, 2022). En la clave de Johnsgard, entre las formas de collar estrecho y plumas del pecho anchamente bordeadas de negro, es la de cejas sucias (blanco sucio) y collar más completo; la de cejas blancas y collar menos completo es alaschanicus(Johnsgard, 1986).
Hembra
No hay descripción propia de la hembra en las fuentes consultadas; los textos de Delacour y de BOW solo describen al macho.
Variación
Dentro de la subespecie hay una cierta variabilidad en términos del cromatismo del plumaje, la altura del collar y la amplitud de las líneas (Hernández García, 2014). Delacour menciona mucha intergradación cerca de los límites norte y sur de su área, y Johnsgard la sitúa entre las formas del norte y las del interior (Delacour, 1977; Johnsgard, 1986).
Tamaño y peso
Machos: ala de 240–255 mm (Delacour); ala de 220–235 mm, cola de 438–675 mm y peso de 1.000–1.100 g, y hembras con ala de 199–215 mm, cola de 238–279 mm y peso de 700–1.000 g, según los datos de Cheng y colaboradores (1978) que recoge Johnsgard (Delacour, 1977; Johnsgard, 1986). Las cifras de ala de ambos autores no coinciden.
Hábitat y altitud
Encuentran su hábitat favorito en prados alpinos ricos en afloramientos rocosos a altitudes de 3000-4000 metros (Hernández García, 2014). Delacour la da, en cambio, a baja y media altitud (Delacour, 1977). Johnsgard recoge que la especie, en el oeste de China, asciende a 13.000 pies (unos 3.950 m) (Vaurie, 1965), y Robertson, que en China se encuentra entre arbustos enanos en cumbres de más de 3.000 m (Johnsgard, 1986; Robertson, 1997). En la reserva de Pangquangou, en Shanxi, creada para proteger al faisán orejudo pardo, Madge y McGowan citan una densidad otoñal de 64 aves/km² en 1989, semejante a la de las fincas gestionadas del Reino Unido; Robertson, que visitó la reserva en 1989, describe cómo viven en el fondo de los valles, donde los campesinos han desbrozado el matorral para hacer pequeños campos, y levantó 16 aves en unas 60 acres de campos y arbustos de espino amarillo, una densidad «muy respetable» (las fuentes no precisan la subespecie de esas aves) (Madge y McGowan, 2002; Robertson, 1997).
Estado
Sin evaluación propia ni cifras de población en las fuentes consultadas, salvo la densidad de Pangquangou citada arriba; Madge y McGowan no la citan entre las subespecies posiblemente en peligro (Madge y McGowan, 2002). La especie es de preocupación menor (BirdLife, 2025).
Genética
En los linajes de BOW, kiangsuensis se incluye en el grupo strauchi-vlangalii (con alaschanicus, hagenbecki, satscheuensis, suehschanensis, strauchi y vlangalii), y Wikipedia la coloca en el grupo strauchi/vlangalii de su clado oriental (BOW, 2022; Wikipedia).
Cautividad
No se ha localizado en las fuentes revisadas que se mantenga en colecciones ni que se haya introducido fuera de China.
Las cuatro fotografías de la tarjeta no llevan autor ni lugar y se atribuyen a la subespecie por el nombre del archivo; la primera, un macho de cabeza oscura y collar blanco fino, es la de la ficha original (Hernández García, 2014).
Autor, año y localidad tipo de estas diez subespecies según cada fuente
La tabla recoge lo que dice cada obra sobre el autor y la fecha de descripción de las diez subespecies tratadas en este apartado. Las diferencias suelen ser de grafía o de una sola cifra, y se explican en las tarjetas; no se corrige ninguna fuente que no se pueda contrastar (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr (tabla)).
Subespecie
Ficha original y libro del autor
Pfarr (tabla)
Delacour (1977), Beebe (1922)
Madge y McGowan (2002), BOW (2022)
Observaciones
shawii
Elliot, 1870 (shawii)
Elliot, 1870 (shawi)
Elliot, Proc. Zool. Soc., 1870, p. 403; Yarkand (shawi)
Johnsgard (1986) da solo los autores, no los años; la tabla de Pfarr procede de una foto de una página del libro aportada por el usuario (Johnsgard, 1986; Pfarr (tabla)).
Resto del grupo chino de collar: once subespecies del oeste, el sur y Taiwán
Las once subespecies que siguen —edzinensis, sohokhotensis, alaschanicus, vlangalii, strauchi, suehschanensis, decollatus, elegans, rothschildi, takatsukasae y formosanus— completan el grupo de rabadilla gris o «grupo chino de collar» (torquatus), que reúne 17 subespecies en las fuentes que siguen a Delacour, a Madge y McGowan y a Birds of the World; las otras seis (torquatus, satscheuensis, hagenbecki, pallasi, karpowi y kiangsuensis) se describen en las tarjetas anteriores (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). Es el grupo más extenso y más variado de la especie: ocupa la mitad oriental de Asia, desde los oasis del Gobi y del Zaidam hasta Taiwán y el norte de Vietnam, y sus machos tienen la rabadilla gris o azulada, las cobertoras de las alas grises y un collar blanco que va de ancho y completo a ausente (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
La ficha original de la guía reparte estas once formas entre dos «subgrupos» de la sección de los faisanes de China: el de torquatus (con edzinensis, takatsukasae y formosanus) y el de decollatus (con decollatus, vlangalii, sohokhotensis, strauchi, suehschanensis, alaschanicus, elegans y rothschildi). Los libros del autor (volumen II) hacen una división parecida, con un «grupo 6» llamado decollatus, y recogen la clave dicotómica de Johnsgard para todas ellas (Hernández García, 2014). Las clasificaciones más recientes, basadas en el ADN, no respetan esa división: agrupan elegans (y quizá rothschildi) en un linaje propio, el más antiguo de la especie; decollatus y takatsukasae con torquatus, karpowi y pallasi; formosanus solo; y vlangalii, strauchi y suehschanensis, con otras formas, en el linaje strauchi-vlangalii(BOW, 2022; Wikipedia). Este capítulo sigue el orden geográfico: primero los oasis del noroeste (Gobi, Alashan, Zaidam), luego las montañas del centro de China, después Yunnan y, por último, el sur: Tonkín y Taiwán.
Las medidas son las que Delacour da para el ala del macho; para edzinensis, sohokhotensis y alaschanicus ni Delacour ni las demás fuentes consultadas ofrecen cifras propias.
Oasis del Gobi, del Alashan y del Zaidam
Cuatro subespecies viven aisladas en oasis, valles fluviales y marjales rodeados de desierto o de alta montaña, en el borde noroccidental del área de la especie: edzinensis (Gobi central), sohokhotensis y alaschanicus (Alashan y montes Helan) y vlangalii (depresión del Zaidam). Delacour las cuenta entre las seis formas aisladas de los oasis y valles del Turquestán chino y de Mongolia, junto con hagenbecki y satscheuensis(Delacour, 1977). Son las menos fotografiadas y las menos estudiadas de todo el grupo.
Curso inferior del Edzin-gol (también llamado Hei-ho), en el Gobi central; hoy, el río Ejin, en Mongolia Interior (China) (BOW, 2022; Delacour, 1977).
Origen del nombre
No figura en Jobling. El epíteto es un adjetivo geográfico formado sobre el nombre del río Edzin-gol, que es la localidad tipo (Delacour, 1977; Jobling, 2010).
Oasis del Gobi central, en el valle del Edzin-gol y cerca del Sokho-nor (Delacour y Johnsgard); norte de Gansu y bajo Ruo Shui (río Ejin), en el oeste de Mongolia Interior (Madge y Birds of the World); la ficha original añade pequeñas poblaciones en regiones vecinas: el Gobi central y Mongolia (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Hábitat
Oasis de desierto y orillas de ríos y lagos, con cañaverales y matorrales de tamariscos, álamos y otros árboles; es el hábitat que Johnsgard describe para los faisanes de oasis de la especie, no un dato específico de esta subespecie (Johnsgard, 1986).
Rasgos del macho
Muy parecido a satscheuensis, pero algo más claro y vivo: manto más dorado, con el centro de las plumas blanco; plumas del pecho con bordes negros más estrechos y menos brillo verde (BOW, 2022; Delacour, 1977).
Rasgos de la hembra
No se describe aparte en ninguna de las fuentes consultadas. En la vecina satscheuensis, la hembra es muy pálida, con las marcas de la cabeza negras y las demás pardas o canela (Delacour, 1977).
Frente a las vecinas
Con satscheuensis: más brillante y de escapularios con más contraste (bordes más oscuros y centros más blancos) y partes inferiores más pálidas (Madge). Con vlangalii, la otra forma de oasis del noroeste: collar blanco completo o casi completo en edzinensis frente a collar apenas visible o ausente en vlangalii(Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Tamaño y peso
Sin medidas propias en las fuentes consultadas; para satscheuensis, Delacour da 237–251 mm de ala (Delacour, 1977).
Estado
Sin evaluación propia. Madge y McGowan incluyen edzinensis entre las subespecies de área restringida que podrían estar amenazadas (con hagenbecki); BirdLife evalúa solo la especie, como de preocupación menor (BirdLife, 2025; Madge y McGowan, 2002).
Cautividad
No se documenta en las fuentes aquí revisadas ninguna cría en cautividad de esta subespecie; Gerrits señala que casi todas las formas del grupo de rabadilla gris nunca llegaron a Europa (Gerrits, 1974).
Texto de la ficha original: Vive en el norte de Gansu, extremo oeste de Mongolia Interior (China), con algunas poblaciones pequeñas distribuidas en las regiones vecinas: el centro de Gobi y Mongolia.
Una forma de río de desierto. El Edzin-gol es el nombre mongol del curso inferior del río que nace en las montañas Qilian y se pierde en el desierto: en las fuentes antiguas aparece como Hei-ho («río negro») y hoy se conoce como Ejin o Ruo Shui (BOW, 2022; Delacour, 1977). Allí, en el Gobi central, describió Sushkin en 1926 esta subespecie, que Delacour sitúa en los oasis del valle del Edzin-gol y en torno al lago Sokho-nor (Delacour, 1977). Es una de las formas más recientes de la especie en el sentido de que se describió ya en el siglo XX, cuando la mayor parte de las subespecies del grupo llevaba décadas descritas; Beebe, que publicó su monografía en 1922, no la conoció (Beebe, 1922 (vol. III)).
Qué la distingue. Delacour y Birds of the World la definen por comparación con satscheuensis, la subespecie del extremo noroeste de Gansu, de color tan pálido: edzinensis es algo más viva, con el manto más dorado y las plumas del manto con el centro blanco (BOW, 2022; Delacour, 1977). Madge y McGowan precisan que los escapularios tienen más contraste (bordes más oscuros y centros blancos más puros) y que las partes inferiores son más pálidas (Madge y McGowan, 2002). En ambas, el collar blanco es completo o casi completo, estrecho y casi o totalmente interrumpido por delante, y el color general es muy pálido (Hernández García, 2014; Johnsgard, 1986).
Un rasgo en el que los libros se contradicen. La clave de Johnsgard (que reproducen los libros del autor) separa satscheuensis de edzinensis por el manto: dorado pálido con centros blancos en satscheuensis, y dorado brillante sin centros blancos en edzinensis(Hernández García, 2014; Johnsgard, 1986). Delacour y Birds of the World dicen lo contrario: es edzinensis la que tiene el manto más dorado con los centros de las plumas blancos (BOW, 2022; Delacour, 1977). Esta guía no elige entre las dos versiones (véase la nota de este capítulo).
Poblaciones pequeñas y aisladas. Delacour agrupa edzinensis con las formas aisladas en oasis y valles del Turquestán chino y de Mongolia, y Madge y McGowan la citan, con hagenbecki, entre las subespecies de rango restringido que podrían estar en peligro (Delacour, 1977; Madge y McGowan, 2002). No existe un censo: Madge señala que el estado de muchas poblaciones nativas es en gran parte desconocido, o muestra descensos bruscos por la caza y la destrucción del hábitat (Madge y McGowan, 2002). La ficha original habla de «poblaciones pequeñas» en las regiones vecinas, sin cifras.
Lo que no se sabe. No se ha publicado, en las fuentes consultadas, ninguna medida del ala ni del peso, ninguna descripción de la hembra, nada sobre su biología reproductiva y ninguna cría en cautividad. En el estudio genético que recoge Birds of the World, edzinensis no se estudió: se pensó que probablemente pertenece al linaje strauchi-vlangalii, que es el que agrupa las formas del noroeste y el centro de China (BOW, 2022).
No figura en Jobling. El epíteto es un adjetivo geográfico formado sobre el oasis de Sohokhoto, que es la localidad tipo (Delacour, 1977; Jobling, 2010).
Sinónimos y variantes de grafía
Variantes del epíteto: sohokhotensis (Madge, BOW, la ficha original, los libros del autor), sohokotensis (Delacour, Johnsgard, Pfarr; también en una cita del propio BOW) y «Zohokhoto» en el nombre español de la ficha original. Beebe no lo reconoce y cita el nombre de Buturlin dentro de la sinonimia de strauchi(Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Pfarr).
Distribución
Aislada en el oasis de Sohokhoto, en el sur del Alashan, y quizá también en las estribaciones de la cordillera Richthofen (Delacour); oasis de Sohokhoto, en los montes Helan, y posiblemente en el Qilian Shan (BOW); oasis del este de Gansu (Madge); la ficha original la sitúa en el desierto de Alxa y en el oeste del desierto de Tengger, en el noroeste de Gansu y Mongolia Interior (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Hábitat
Oasis de desierto y orillas de ríos y lagos con cañaverales y matorrales de tamariscos y álamos, según la descripción general de Johnsgard para los faisanes de oasis; no hay datos propios de esta subespecie (Johnsgard, 1986).
Rasgos del macho
Como strauchi pero con los costados más claros y con marcas negras más grandes, la espalda superior más dorada y cejas y collar blancos anchos (Delacour); machos más claros, con las marcas oscuras entrecortadas (BOW). Según la ficha original: collar evidente y abierto, cabeza con ligera pátina y líneas supraorbitales marcadas, parte alta del pecho verde oscuro y resto cobre oscuro con reflejos violetas (BOW, 2022; Delacour, 1977; Hernández García, 2014).
Rasgos de la hembra
No se describe aparte en las fuentes consultadas; la de strauchi, su forma de origen, es de color pardo oscuro y está muy marcada (BOW, 2022).
Frente a las vecinas
Con alaschanicus: cejas y collar blancos más anchos en sohokhotensis (Delacour, BOW). Con strauchi: más clara y menos oscura (Madge). La clave de Johnsgard la separa de kiangsuensis y de alaschanicus por la ausencia de cejas blancas; Delacour y BOW dicen en cambio que las cejas son anchas y blancas (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Tamaño y peso
Sin medidas propias en las fuentes consultadas.
Estado
Sin evaluación propia ni estima de población; BirdLife evalúa solo la especie (BirdLife, 2025). La ficha original la considera una de las formas más inestables, con variaciones que dependen de la zona y de la influencia de otras subespecies.
Genética
No se incluyó en el estudio de ADN que recoge BOW; se pensó que probablemente pertenece al linaje strauchi-vlangalii(BOW, 2022).
Texto de la ficha original: Se encuentra en el desierto de Alxa y en las zonas occidentales del desierto de Tengger (noroeste de Gansu - Mongolia interior). Se caracteriza por un collar evidente y abierto. Cabeza con ligera pátina y líneas supra orbitales marcadas; parte superior del pecho verde oscuro, mientras que el resto es cobre oscuro con reflejos violetas. Esta es una de las formas más inestables y sus variaciones dependen de la zona y de la influencia con otras subespecies.
Una subespecie nacida como variedad de otra. Buturlin la describió en 1908, en la revista Ibis, no como especie sino como una subespecie de Phasianus strauchi, el faisán de Strauch, del que se consideraba una variante clara de los oasis del sur del Alashan (Beebe, 1922 (vol. III); Delacour, 1977). El nombre del taxón sigue guardando esa filiación en la literatura: Delacour la describe por comparación con strauchi («costados más claros con marcas negras mayores, la espalda superior más dorada y cejas y collar blancos anchos») y Madge y McGowan, con la misma idea, la ven «como strauchi pero más pálida y apagada» (Delacour, 1977; Madge y McGowan, 2002). Beebe (1922) fue más radical: no reconoció la subespecie y la citó entre los sinónimos de strauchi, junto con holdereri, berezowskyi y chonensis; también menciona que Bianchi había llamado decollatus strauchi a ejemplares de Soho-choto, en las montañas Nan-shan (Beebe, 1922 (vol. III)).
Dónde vive, según quién. Las fuentes no coinciden con exactitud. Delacour la da por aislada en el oasis de Sohokhoto, en el sur del Alashan, y apunta que quizá también viva en las estribaciones de la cordillera Richthofen; Johnsgard, que sigue a Vaurie y a Wayre, repite «oasis de Sohokhoto, en el sur del Ala-Shan»; Birds of the World la sitúa en el oasis de Sohokhoto, en los montes Helan, y posiblemente en el Qilian Shan; Madge y McGowan la colocan en el oasis de Soho-Khoto, en el este de Gansu; y la ficha original la sitúa en el desierto de Alxa y el oeste del desierto de Tengger, en el noroeste de Gansu y Mongolia Interior (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Todas coinciden en que es una población de oasis, rodeada de desierto, y en que se encuentra en el entorno de los montes Helan y del Alashan, en el noroeste del área china de la especie.
Cómo se reconoce. El macho conserva buena parte del aspecto de strauchi (dorso dorado con muchas marcas negras, pecho verde oscuro en la parte alta y cobrizo violáceo hacia los costados) pero más claro, con collar y cejas blancos anchos (BOW, 2022; Delacour, 1977; Hernández García, 2014). Las demás fuentes lo describen con la misma idea: Johnsgard lo coloca, en su clave, entre las formas que tienen el verde oscuro del cuello bordeado por el rojo del pecho, las plumas del pecho muy orladas de negro, los flancos ante y un anillo de cuello estrecho (Hernández García, 2014; Johnsgard, 1986). Con todo, la clave de Johnsgard (y los libros del autor, que la reproducen) dicen que en sohokhotensis las cejas blancas faltan, mientras que Delacour y Birds of the World las describen como anchas y blancas; la ficha original, por su parte, las llama «marcadas» (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). Esta guía recoge las tres versiones sin elegir (véase la nota de este capítulo).
La hembra y el joven. Ninguna de las fuentes consultadas describe la hembra ni el plumaje juvenil de esta subespecie. En el grupo de rabadilla gris, las hembras se parecen bastante entre sí: pardas, muy marcadas por encima y delante del cuello y en el pecho, con los flancos muy moteados, y las de las formas occidentales, oscuras (Delacour) (Delacour, 1977). La hembra de la fotografía de esta tarjeta se atribuye a la subespecie por el nombre del archivo; la identificación no está confirmada por el autor de la foto.
Variación y relaciones. La ficha original dice que esta es «una de las formas más inestables» y que sus variaciones dependen de la zona y de la influencia de otras subespecies. Es un comentario coherente con lo que escribió Beebe sobre strauchi a partir de la serie de Ta-pai-shan, la de 28 machos que Hartert analizó: en la misma localidad aparecían ejemplares con y sin collar, con y sin bordes verdes en el pecho, de modo que los caracteres «no eran constantes» (Beebe, 1922 (vol. III)). Sus vecinas inmediatas son alaschanicus, también de los pies de los montes Helan, que se distingue por tener las cejas y el collar blancos más estrechos (BOW, 2022; Delacour, 1977); strauchi, de la que se supone derivada; y, hacia el oeste, edzinensis y satscheuensis, las formas pálidas del Edzin-gol y de Gansu.
Genética y clasificación. El estudio genético que recoge Birds of the World, con seis intrones nucleares y dos loci mitocondriales, no incluyó sohokhotensis ni edzinensis; los autores supusieron que pertenecen al linaje strauchi-vlangalii, el que reúne las formas del noroeste y el centro de China (BOW, 2022). En la lista de Pfarr (con la grafía sohokotensis) figura como subespecie de pleno derecho, con autor Buturlin y año 1908, igual que en Delacour (Delacour, 1977; Pfarr).
Estado y datos que faltan. No hay estima de población ni valoración propia. Madge y McGowan advierten, para el conjunto de la especie, de que el estado de muchas poblaciones nativas es en gran parte desconocido o está en retroceso por la caza y la destrucción del hábitat, y que algunas subespecies de área restringida podrían estar amenazadas, aunque solo nombran dos (hagenbecki y edzinensis) (Madge y McGowan, 2002). Tampoco hay información sobre su reproducción, su comportamiento o su cría en cautividad; en las fuentes aquí revisadas no consta ningún ejemplar de esta subespecie en colecciones europeas.
Del topónimo Ala Shan (Alashan), en Ningxia, en el oeste de China (Jobling) (Jobling, 2010).
Sinónimos y variantes
Descrita como Phasianus alaschanicus, ya con rango de especie. Beebe la cita solo con interrogante, en la sinonimia de hagenbecki. Variantes de grafía y de nombre: Alashan, Ala Shan, Ala-Shans, Ala Chan, Alxa; alaschanicus es la única grafía del epíteto en todas las fuentes (Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2013; Jobling, 2010).
Distribución
Aislada en oasis cerca de las estribaciones occidentales del Alashan (Delacour, Johnsgard); estribaciones occidentales de los montes Helan, en el centro-sur de Mongolia Interior y Ningxia (BOW); aislada en Ningxia, al norte hasta el Nan Shan y al este hasta el Lang Shan (Madge). La ficha original la sitúa «al pie de las montañas Helan», cordillera aislada y desierta (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Hábitat
Oasis de desierto y orillas de ríos y lagos; descripción general de Johnsgard para los faisanes de oasis, no específica de esta subespecie (Johnsgard, 1986).
Rasgos del macho
Cercano a sohokhotensis, pero con cejas y collar blancos más estrechos (Delacour, BOW). Más pálido que kiangsuensis, con cejas más blancas y collar estrecho y roto por delante (Madge). La ficha original: collar angosto, cabeza velada por una ligera pátina clara con líneas supraorbitales o solo trazas de ellas, parte alta del pecho verde oscuro y resto del cuerpo cobre violáceo (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002).
La clave de Johnsgard la separa de kiangsuensis porque tiene las cejas blancas y el anillo del cuello menos completo; kiangsuensis tiene las cejas sucias y el anillo más completo (Hernández García, 2014; Johnsgard, 1986).
Tamaño y peso
Sin medidas propias en las fuentes consultadas.
Estado
Sin evaluación ni cifras propias; BirdLife evalúa solo la especie (BirdLife, 2025).
Genética
Estudiada en el análisis de ADN que recoge BOW, que la asignó al linaje strauchi-vlangalii junto con hagenbecki, kiangsuensis, satscheuensis, suehschanensis, strauchi y vlangalii(BOW, 2022).
Texto de la ficha original: Vive en la parte centro-norte de China, al pie de las montañas Helan, más comúnmente conocida como el antiguo nombre de las montañas Alashan, una cordillera aislada y desierta. Se caracteriza por un collar angosto abierto por detrás, la cabeza velada por una ligera pátina clara con líneas supra orbitales, o solo rastros rudimentarios de estos. Parte superior del tórax verde oscuro, mientras que el resto del cuerpo cobre-violeta.
Un nombre, una cordillera y una fecha doble. Los montes Helan (Helan Shan) son, como dice la propia ficha, la cordillera que durante mucho tiempo se llamó Alashan; el epíteto alaschanicus recoge ese viejo nombre (BOW, 2022; Jobling, 2010). La descripción original, de Alphéraky y Bianchi, apareció en el volumen 12 del anuario del Museo Zoológico de la Academia de San Petersburgo, que lleva en la portada el año 1907 y salió en 1908: de ahí que Delacour escriba «1907 (1908)», Birds of the World dé 1907, y Madge, Beebe, Pfarr y la ficha original, 1908 (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Madge y McGowan, 2002; Pfarr). Las dos fechas se refieren a la misma publicación. Fue descrita como especie, Phasianus alaschanicus, con localidad tipo en las estribaciones occidentales del Alashan (BOW, 2022; Delacour, 1977).
Una duda de Beebe. En su monografía (1922), Beebe no reconoce alaschanicus como forma aparte: la nombra con un signo de interrogación en la sinonimia de hagenbecki, la subespecie del valle de Kobdo, en el oeste de Mongolia (Beebe, 1922 (vol. III)). Delacour y los autores posteriores la mantienen como subespecie propia, y Johnsgard, Madge y Birds of the World la sitúan, sin ese interrogante, entre las formas de oasis del norte de China (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Cómo se reconoce. Todas las fuentes la definen por su parecido con sohokhotensis, la subespecie de un oasis vecino, de la que solo se distingue por tener las cejas y el collar blancos más estrechos (BOW, 2022; Delacour, 1977). Madge y McGowan la comparan con kiangsuensis, la subespecie del norte de China: alaschanicus es más pálida, tiene las «cejas» más blancas y un collar estrecho, roto por delante (Madge y McGowan, 2002). La ficha original dice, en cambio, que el collar es «angosto, abierto por detrás»; como las demás fuentes hablan siempre de un collar interrumpido por delante, esta guía conserva la frase original y señala la diferencia en la nota de este capítulo. El resto del plumaje, según la ficha original, es el de las demás formas del grupo con la parte alta del pecho verde oscuro y el cuerpo cobre violáceo, y una cabeza «velada» por una ligera pátina clara (Hernández García, 2014).
Entre dos clasificaciones. Johnsgard la sitúa en su clave dentro de la rama de las formas que tienen el verde oscuro del cuello bordeado por el rojo del pecho, las plumas del pecho muy orladas de negro y el anillo del cuello estrecho; la separa de sohokhotensis (sin cejas blancas) y de kiangsuensis (cejas sucias y anillo más completo) por tener las cejas blancas y el anillo menos completo (Hernández García, 2014; Johnsgard, 1986). En la clasificación genética que recoge Birds of the World forma parte del linaje strauchi-vlangalii(BOW, 2022). Pfarr la incluye, con grafía alaschanicus, autores Alphéraky y Bianchi y año 1908 (Pfarr).
Hembra, joven y medidas. Ninguna de las fuentes consultadas da medidas, describe a la hembra o al joven ni cita datos de peso o de huevos de esta subespecie. Las hembras que se muestran en las fotografías de esta tarjeta son aves pardas muy punteadas, como las de las demás formas del grupo, de las que Delacour dice que son bastante oscuras y muy marcadas por encima, delante del cuello y en el pecho, con los flancos muy moteados (Delacour, 1977). Su atribución a la subespecie es la de la ficha original; el autor de las fotos no la confirma.
Estado y cautividad. No hay estimas de población ni se cita la subespecie en ninguna lista de amenazas; Madge y McGowan nombran solo dos formas de rango restringido en riesgo (hagenbecki y edzinensis), pero advierten de que el estado de muchas poblaciones nativas es en gran parte desconocido (Madge y McGowan, 2002). No se documenta en las fuentes aquí revisadas ningún ejemplar cautivo; Gerrits recuerda que casi todas las formas de rabadilla gris nunca llegaron a Europa (Gerrits, 1974).
Przhevalski, 1876, Mongolia i Strana Tangutov (en las fuentes, Mongol i Strana Tangut), vol. 2, p. 116; descrito ya como especie, Phasianus vlangalii. El apellido del autor se escribe de muchas maneras: Przhevalski, Przhvalski, Przevalski, Przewalski, Prjewalski. Año coincidente en todas las fuentes (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr).
Según Beebe, en honor de M. E. Vlangali, embajador de Rusia en China; Jobling no recoge el epónimo (sí el de Przhevalski, el autor: Nikolai Mikhailovitch Przhevalski, 1839–1888) (Beebe, 1922 (vol. III); Jobling, 2010).
Zaidam oriental, entre el sur del Koko-nor y las cordilleras Tolai Ula y Burchan Budda, entre 2.000 y 7.000 pies (Delacour); norte de Qinghai, restringida a los marjales de la depresión del Zaidam (Johnsgard); oeste de la cuenca del Zaidam (Madge y BOW). La ficha original añade las áreas vecinas de Xinjiang (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Hábitat
Cañaverales y matorral en el Zaidam; en otoño e invierno se alimenta sobre todo de bayas, que come posado en las ramas (Przhevalski, según Beebe) (Beebe, 1922 (vol. III)).
Rasgos del macho
Sin collar blanco, o solo trazas; corona verde bronceada; manto canela castaño (arena a rojo vivo) con marcas negras; escapularios lisos; pecho superior e inferior y lados del abdomen verde oscuro, que pasa a naranja dorado con bordes negros en los costados; flancos dorado ante; cola bronce canela (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Frente a elegans: manto y escapularios rojo arena y costados ante dorado, no castaño rojizo ni púrpura. Frente a strauchi: bordes verde oscuro (no púrpura verdoso) en las plumas del pecho y los escapularios con borde rojo de la India (Beebe). Frente a satscheuensis: más oscuro y rufo, sin centros claros en los escapularios (Madge) (Beebe, 1922 (vol. III); Johnsgard, 1986; Madge y McGowan, 2002).
Tamaño y peso
Ala del macho, 245–250 mm (Delacour). Sin pesos (Delacour, 1977).
Estado
Sin evaluación ni estima de población. La ficha original dice que algunos autores chinos sugieren que podría haberse extinguido; ninguna de las demás fuentes lo afirma (BirdLife, 2025; BOW, 2022; Madge y McGowan, 2002).
Genética
Da nombre, con strauchi, al linaje strauchi-vlangalii, uno de los ocho que distingue el estudio de ADN que recoge BOW (BOW, 2022).
Texto de la ficha original: Vive en el norte, parte central de China (oeste - noroeste de Qinghai y las áreas vecinas de Xinjiang). Es una subespecie más bien misteriosa y poco estudiada, de las cuales hay muy pocos testimonios fotográficos, hasta tal punto que algunos autores chinos sugieren que puede haberse extinguido.
El descubridor y el embajador. La subespecie la describió el explorador ruso Nikolai Przhevalski (1839–1888) en el segundo tomo de su obra sobre Mongolia y el país de los tangutos, publicado en 1876, tras sus viajes por los marjales del Zaidam, en el norte de Qinghai (Beebe, 1922 (vol. III); Delacour, 1977; Jobling, 2010). Le dio el nombre de un diplomático: según Beebe, vlangalii es un homenaje a M. E. Vlangali, embajador ruso en China (Beebe, 1922 (vol. III)). Es una de las dos subespecies del grupo que Przhevalski describió ese año (la otra es strauchi, nombrada con otro académico ruso) (Beebe, 1922 (vol. III); Delacour, 1977). El nombre inglés usado por los libros antiguos es Tsaidam pheasant, por los grandes marjales donde vive (Beebe, 1922 (vol. III)).
Lo único que se sabe de su vida. Beebe reprodujo lo poco que contó Przhevalski. Encontró esta forma en el Zaidam, en cañaverales y en lugares con matorral; en otoño y en invierno se alimenta sobre todo de bayas, que come posada en las ramas, y en esa época es muy salvaje y cautelosa; no difiere en la voz del faisán de collar chino (torquatus), y empieza a criar muy pronto en primavera: Przhevalski ya la oyó cantar el 13 de febrero (Beebe, 1922 (vol. III)). No hay más datos de comportamiento, de reproducción ni de dieta de esta subespecie en las fuentes consultadas.
Dónde vive. Las fuentes coinciden en que es una forma restringida al Zaidam, pero no en qué parte: Delacour la sitúa en el Zaidam oriental, entre el sur del Koko-nor y las cordilleras Tolai Ula y Burchan Budda, entre 2.000 y 7.000 pies de altitud (unos 600 y 2.100 m); Johnsgard la restringe a los marjales de la depresión del Zaidam, en el norte de Qinghai; Madge y McGowan y Birds of the World, al oeste de la cuenca del Zaidam (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). La ficha original la sitúa en el oeste-noroeste de Qinghai y en las áreas vecinas de Xinjiang. Es una de las poblaciones del grupo más aisladas: Delacour la incluye entre las seis formas confinadas a oasis y valles del Turquestán chino y de Mongolia (Delacour, 1977).
Un macho sin collar y de colores profundos. Delacour lo describe sin collar o con solo trazas, con la corona verde bronceada, el manto canela castaño con marcas negras, los escapularios lisos, el pecho y los lados del abdomen verde oscuro y los costados naranja dorado con bordes negros; la cola, bronce canela, y el ala, de 245 a 250 mm (Delacour, 1977). Johnsgard lo separa en la clave de elegans y rothschildi, que comparten con él el verde oscuro del cuello extendido hasta el centro del pecho, por los flancos dorado ante y el manto rojo arena brillante; elegans y rothschildi tienen los flancos cobre castaño (Hernández García, 2014; Johnsgard, 1986). Beebe precisa, frente a elegans: manto y escapularios rojo arena, costados ante dorado en vez de rojo opaco con brillo púrpura (Beebe, 1922 (vol. III)). Madge y McGowan lo comparan con la forma anterior en su lista, satscheuensis: más oscuro, relativamente rufo por arriba, sin centros claros en los escapularios, con la corona bastante oscura y el collar apenas vestigial (Madge y McGowan, 2002).
La hembra. Es pálida y poco marcada (Delacour); su parte superior se parece a la de la hembra de colchicus, pero por debajo es de color ante pálido (Beebe) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977). De la hembra de strauchi, vecina, la distingue su color más claro: la de strauchi es oscura y está muy marcada (Delacour, 1977).
Su relación con strauchi. Beebe cuenta que algunos machos de Ta-pai-shan, en la serie de strauchi que estudió Hartert, tenían el pecho tan lavado de verde y los bordes de las plumas tan anchos y oscuros que recordaban a vlangalii, aunque por arriba son muy distintos; también que Przhevalski vio que strauchi y vlangalii no se diferencian en voz y costumbres del faisán de collar chino (Beebe, 1922 (vol. III)). Los estudios genéticos recientes que cita Birds of the World han dado la razón a esa cercanía: dos de los linajes principales de la especie se llaman strauchi-vlangalii y elegans, y vlangalii pertenece al primero, el de las formas del noroeste y el centro de China (BOW, 2022; Wikipedia).
Estado: más preguntas que datos. No hay censo ni estima de población. La ficha original dice que algunos autores chinos sugieren que esta subespecie podría haberse extinguido: ninguna de las demás fuentes consultadas hace esa afirmación, que debe leerse como una duda sobre su supervivencia más que como un dato (BOW, 2022; Madge y McGowan, 2002). Birds of the World añade, para el conjunto de la especie, que quizá no todas las subespecies sigan existiendo (BOW, 2022). En cautividad, no se documenta en las fuentes aquí revisadas ningún ejemplar. Las dos ilustraciones de esta tarjeta, un macho y una hembra, no llevan autor.
Las montañas del centro de China: Strauch, Songpan y Koueitcheou
Entre los montes Qinling, el borde oriental del Tíbet y la cuenca de Sichuan se reúnen tres subespecies de colores oscuros y ricos, con el collar blanco reducido o ausente: strauchi (Gansu y Shaanxi), suehschanensis (noroeste de Sichuan) y decollatus (centro de China, desde el este de Sichuan hasta Hubei). Intergradan entre sí y con las vecinas en grandes extensiones: Delacour dice que strauchi pasa a kiangsuensis al noreste, a torquatus y decollatus al este y a suehschanensis al suroeste, y que decollatus intergrada «con todas sus vecinas» (Delacour, 1977). En la clasificación genética que recoge Birds of the World, strauchi y suehschanensis van juntas en el linaje strauchi-vlangalii, y decollatus en el de torquatus(BOW, 2022).
Phasianus holdereri Schalow, 1901; P. berezowskyi Rothschild, 1901 (Hui-Tsian); P. colchicus strauchi Rothschild, 1904; P. decollatus strauchi Bianchi, 1906; P. decollatus berezowskyi Buturlin, 1908; P. strauchi chonensis Grant, 1912. Madge incluye holdereri, berezowskyi y chonensis dentro de strauchi(Beebe, 1922 (vol. III); Madge y McGowan, 2002).
Distribución
Kansu, al norte hasta el río Tetung; al este hasta los montes Tsinling, en Shensi; al sur hasta el noreste de Szechuan (Delacour). Sur de Shaanxi (Qinling), sur y centro de Gansu, hacia el oeste hasta Qinghai y al norte hasta Wuwei (Johnsgard). BOW: centro de China, sur de Shaanxi y sur y centro de Gansu. La ficha original: noreste de Sichuan, sur de Shaanxi, centro y sur de Gansu y este de Qinghai (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986).
Altitud y hábitat
Ave de montaña, hasta 10.000 pies (Przhevalski, según Delacour y Beebe); Beebe, en el pie de una de sus láminas, habla de laderas boscosas hasta una milla y media de altura. En las montañas de Kansu vive en las zonas arboladas; en los valles de Tetunga y Buguk-gol es más abundante, y desaparece más arriba donde escasean los bosques (Beebe, 1922 (vol. III); Delacour, 1977).
Rasgos del macho
Corona verde bronceada; collar blanco ausente, roto o completo; dorso dorado con marcas negras y escapularios similares con marcas castañas; pecho verde oscuro en la parte alta, cobre púrpura en los costados y verde azulado en el vientre. Más oscuro en el oeste y más claro en el este, donde son más frecuentes los collares blancos (BOW, 2022; Delacour, 1977).
Rasgos de la hembra
Oscura, de color pardo oscuro y fuertemente marcada. Según Beebe, la parte superior se parece a la de colchicus pero las plumas de la nuca y del manto tienen la punta apenas teñida de verde oscuro, en lugar de violeta y púrpura (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Tamaño y peso
Ala del macho de 240 a 250 mm (Delacour); la tabla de Johnsgard, con datos de Cheng (1963), da 225–238 mm de ala y cola de 378–595 mm; hembra, ala de 196–215 mm. Peso medio de siete machos, 1.062 g (980–1.204 g), y de siete hembras, 835 g (760–920 g) (Delacour, 1977; Johnsgard, 1986).
Estado
Sin evaluación propia. La ficha original no la califica; BirdLife evalúa solo la especie (BirdLife, 2025). Parece una población estable de montaña, pero no hay cifras en las fuentes consultadas.
Introducciones
BOW cita su introducción reciente en Michigan (Estados Unidos) como posible alternativa para la repoblación cinegética y la ampliación del área de la especie (BOW, 2022).
Texto de la ficha original: Distribuido en el noreste de Sichuan - Sur de Shaanxi - Centro y Sur de Gansu - Este de Qinghai. Subespecie con un plumaje cromático bastante oscuro; cabeza verde oscura con reflejos azulados caracterizada por la ausencia de líneas sobre el orbital y el cuello. Pecho y abdomen verde oscuro; partes superiores cobre marrón rojizo en el que destacan las plumas blanco-grisáceas de los hombros; Caderas marrones cobrizas con plumas bien marcadas de flecos negros.
Un faisán que dio quebraderos de cabeza. Beebe dice que esta forma, que vive «en pleno corazón de China, en una gran masa de montañas revueltas», es típica de su género en los problemas que ha dado a los taxónomos (Beebe, 1922 (vol. III)). Przhevalski la describió en 1876, con localidad tipo en Tetung y Buhuk-gol (Kansu), y la dedicó al académico ruso Strauch (Beebe, 1922 (vol. III); Delacour, 1977). Después fue bautizada de nuevo varias veces: Schalow llamó holdereri a un ave de «el norte de China» en 1901; Rothschild, berezowskyi a otra de Hui-Tsian, también en 1901; Bianchi, decollatus strauchi y decollatus berezowskyi, y Grant, chonensis en 1912 (Beebe, 1922 (vol. III)). Madge y McGowan los agrupan a todos bajo strauchi(Madge y McGowan, 2002).
La serie de Ta-pai-shan. Beebe (1922) mantiene strauchi como subespecie, pero sostiene que las variantes bautizadas a su alrededor no merecen reconocimiento, y su argumento principal es una serie de al menos 28 machos adultos recogidos en Ta-pai-shan, en el centro de los montes Tsin-ling, por los recolectores japoneses de Alan Owston, que Hartert comparó con otros doce de Tring y del Museo Británico. Hartert escribió que ninguno de los caracteres en los que se basaron los autores era constante: la corona era a veces pardo bronceada pero casi siempre verde oscura; el collar blanco, a veces de más de un centímetro de ancho y solo interrumpido por delante, más a menudo estrecho y apenas indicado, y a menudo ausente del todo; la parte superior variaba de color con la estación, porque las barras verdes y cremosas de las plumas se hacen mucho más visibles tras la cría, cuando se desgastan los bordes; las plumas largas centrales de la cola eran a veces más claras y a veces más oscuras; y el pecho, a veces tan lavado de verde y con tan anchos bordes verde oscuros que recordaba a vlangalii, y otras veces casi sin verde, salvo a lo largo del centro (Beebe, 1922 (vol. III)). Hartert añadió que los machos del Tsin-ling coincidían con ejemplares de Kansu de los museos de San Petersburgo y de Moscú y con el tipo de berezowskyi, y que parecía llamativo que el autor de holdereri bautizara strauchi a un ave cazada el mismo día y, por tanto, no lejos (Beebe, 1922 (vol. III)). Delacour resume el resultado con otras palabras: es un faisán oscuro y rico de colores, con mucha variación individual, sobre todo en la presencia o ausencia de un pequeño collar blanco y en la profundidad del color de las partes inferiores; los más occidentales son los más oscuros y algunos tienen mucho azul en el pecho; más al este, el manto y los flancos son más dorados y los collares blancos, más frecuentes; y todas las fases se han obtenido en las mismas localidades, en especial en Taipaishan (Hartert, 1917) (Delacour, 1977). Para Delacour, toda la población parece seguir en un estado de inestabilidad, sin haber alcanzado todavía un patrón definitivo en ninguna parte de su área (Delacour, 1977).
Un collar que unas fuentes ponen y otras quitan. La ficha original afirma que el faisán de Strauch tiene «ausencia de líneas sobre el orbital y el cuello», es decir, sin cejas ni collar blancos; también la clave de Johnsgard la separa de las demás por tener el pecho con un estrecho borde negro y los flancos más oscuros (Hernández García, 2014; Johnsgard, 1986). Delacour, Beebe y Birds of the World dicen que el collar puede faltar, estar roto o ser completo, y Madge y McGowan, que es estrecho y roto y virtualmente ausente en algunos (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). No es una contradicción de fondo: el collar es el rasgo más variable de la subespecie, y la descripción de la ficha original recoge la forma sin collar, que es la más oscura y occidental; las demás fuentes añaden que hacia el este el collar es cada vez más frecuente.
Cómo se reconoce. El macho es un ave oscura: corona verde bronceada; dorso dorado con marcas negras y escapularios con marcas castañas; pecho verde oscuro en la parte alta, cobre púrpura en los costados y verde azulado en el vientre (Delacour y BOW) (BOW, 2022; Delacour, 1977). Madge y McGowan lo ven como kiangsuensis pero más oscuro y de colores más ricos, con el collar estrecho y roto o virtualmente ausente (Madge y McGowan, 2002). Beebe lo distingue de elegans y de vlangalii por el borde púrpura verdoso, y no verde oscuro, de las plumas del pecho; Ogilvie-Grant añade que de elegans se separa por tener el centro de los escapularios blanco ante moteado de negro junto al raquis, y de vlangalii por el borde rojo de la India de esas plumas (Beebe, 1922 (vol. III)). La hembra es oscura y muy marcada; por encima se parece a la de colchicus, pero con la punta de las plumas de la nuca y el manto teñida de verde oscuro, no de violeta y púrpura (Beebe, 1922 (vol. III); BOW, 2022). De la hembra de decollatus, vecina, la distingue su menor tamaño de manchas negras: la de decollatus se parece a la de strauchi pero con las manchas negras de escapularios, coberteras y rabadilla más grandes y marcadas (Beebe, 1922 (vol. III)).
Tamaño y peso. Delacour da para el macho un ala de 240 a 250 mm y para las hembras no da medidas; Johnsgard, que toma los datos de Cheng (1963), indica en su tabla una ala de 225 a 238 mm y una cola de 378 a 595 mm en los machos, y de 196 a 215 mm de ala y 197 a 275 mm de cola en las hembras (la lectura de estas cifras en la copia disponible del libro es dudosa). El peso medio de siete machos fue de 1.062 g (980–1.204 g) y el de siete hembras, de 835 g (760–920 g) (Delacour, 1977; Johnsgard, 1986). Como referencia, Johnsgard recoge para los machos de karpowi un peso medio de 1.296 g y para los de pallasi, de 1.174 g, de modo que el peso medio de los de strauchi queda por debajo de ambos (Johnsgard, 1986).
Hábitat, voz y cría. Beebe reproduce lo que contó Przhevalski: el ave habita las zonas arboladas de las montañas de Kansu hasta unos 10.000 pies, es más numerosa en los valles del Tetunga y del Buguk-gol y desaparece más arriba, donde escasean los bosques; en voz y costumbres no se distingue del faisán de collar chino ni de vlangalii; la cría empieza en marzo o abril y se prolonga hasta mediados de julio; los primeros pollos los obtuvo el 23 de junio; las nidadas son de seis a diez pollos y a veces doce, y los acompañan siempre los dos padres, a menudo con el macho defendiéndolos incluso con más vigor que la hembra (Beebe, 1922 (vol. III)). En el pie de la lámina LIV, Beebe añade que en estas montañas revueltas los faisanes parecen más estrictamente monógamos, con el macho ayudando en el cuidado de los pollos, que en las grandes llanuras del este, donde hay más alimento y las aves son mucho más numerosas; y que las puestas son de seis a doce huevos (Beebe, 1922 (vol. III)). Es un contraste con lo que Delacour escribe del grupo en conjunto, donde los machos son polígamos y se ven con seis a ocho hembras (Delacour, 1977).
Genética y clasificación. El linaje strauchi-vlangalii, uno de los ocho que distingue el estudio de ADN que recoge Birds of the World, lleva su nombre y agrupa también a alaschanicus, hagenbecki, kiangsuensis, satscheuensis, suehschanensis y vlangalii; los autores advierten de que esos grupos «no cuentan con un apoyo sólido» (BOW, 2022). Wikipedia, que sigue el mismo esquema, define el grupo strauchi/vlangalii (los «grey-rumped occidentales») por el collar ausente o estrecho y el pecho dominado por el castaño latonado (Wikipedia).
Estado, caza e introducciones. No hay estima de población: Madge y McGowan dicen que el estado de muchas poblaciones nativas es desconocido, y no señalan a strauchi entre las formas amenazadas (Madge y McGowan, 2002). Entre las subespecies que describe este capítulo, es la única de la que Birds of the World cita una introducción con fines cinegéticos: se introdujo en Michigan como posible alternativa para la repoblación y la ampliación del área de caza (Estados Unidos) (BOW, 2022). En cautividad, la tarjeta muestra ejemplares en recintos de aficionados, sin autor ni datos de procedencia, y en las fuentes consultadas no se documenta una cría específica de la subespecie en las colecciones clásicas.
Bianchi, 1906, Bulletin de l’Académie impériale des sciences de St.-Pétersbourg (5), 24: 83; descrito como Phasianus suehschanensis. Autor y año coinciden en Delacour, Madge, BOW, Pfarr y la ficha original (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr).
No figura en Jobling. El epíteto es de formación geográfica (terminación -ensis, «de»), pero su raíz, suehschan-, no coincide con el topónimo de la localidad tipo (Sungpan), y ninguna de las fuentes consultadas la explica (Delacour, 1977; Jobling, 2010).
Sinónimos y variantes de grafía
Beebe, que no la reconoce, la incluye, con una grafía algo distinta del epíteto, en la sinonimia de elegans. Grafías del epíteto: suehschanensis (Delacour, BOW, Pfarr, ficha original), suehschanenis y suehchanensis (grafías defectuosas en las copias consultadas de Johnsgard y de Madge) y suechschanensis (cuadro de Fuller y Garson, según la copia disponible) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002; Pfarr).
Distribución
Noroeste de Szechuan, al sur del Minshan, y este del Tíbet (Delacour); noroeste de Sichuan, desde la cordillera Min Shan y la región de Sungpan hacia el sur hasta Kwanhsien (Johnsgard); de Songpan al sur hasta Kwansien, en el oeste de Sichuan (Madge, BOW). Intergrada con las vecinas del norte, el este y el sur (Delacour) y con elegans al sur de Kwanhsien (Johnsgard). La ficha original dice «sudeste de Sichuan», que no coincide con ninguna otra fuente (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Altitud y hábitat
Montañas, hasta 10.000 pies (unos 3.000 m), según Delacour (Delacour, 1977).
Rasgos del macho
Corona verde bronceada oscura; sin collar; partes superiores muy oscuras; manto canela cobrizo castaño con mucho negro; escapularios granate con brillo verde; centro del pecho verde azulado, a veces interrumpido por rojo; costados canela castaño; cola pardo purpúrea oscura (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Frente a elegans: manto y escapularios más oscuros y manchados, y brillo azul del pecho menos extenso y más verdoso (Delacour, BOW). Su cola es virtualmente idéntica a la de decollatus (Madge) (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Tamaño y peso
Ala del macho de 220 a 230 mm (Delacour); 217–232 mm de ala, 375–460 mm de cola y 770–1.000 g de peso en la tabla de Johnsgard, con datos de Cheng y colaboradores (1978) (Delacour, 1977; Johnsgard, 1986).
Estado
Sin evaluación propia; BirdLife evalúa solo la especie (BirdLife, 2025).
Genética
Linaje strauchi-vlangalii, con strauchi y vlangalii(BOW, 2022).
Texto de la ficha original: Se encuentra en las áreas del sudeste de Sichuan - Qinghai y el este de Tíbet. Caracterizada por un plumaje bastante oscuro, con una cabeza sin líneas sobre el orbital y falta total de collar.
Una descripción de 1906 con nombre difícil. Bianchi describió esta subespecie en 1906 en el boletín de la Academia Imperial de Ciencias de San Petersburgo, con localidad tipo en Sungpan, en el norte de Szechuan (BOW, 2022; Delacour, 1977). El nombre científico es de los que más se escribe de formas distintas en la literatura: suehschanensis en las fuentes que lo escriben bien (Delacour, Birds of the World, Pfarr, la ficha original), pero también suehschanenis o suehchanensis en el texto de dos libros de referencia y suechschanensis en un cuadro (BOW, 2022; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002; Pfarr). Beebe (1922) no la reconoce y la incluye, con grafías distintas, en la sinonimia de elegans, al lado de otro nombre de Buturlin (1908) (Beebe, 1922 (vol. III)). Los libros posteriores la mantienen como subespecie, vecina de elegans al sur y de strauchi al norte y al este (Delacour, 1977; Johnsgard, 1986).
Un faisán de colores profundos, sin collar. Es una de las subespecies más oscuras del grupo. Delacour la describe con la corona verde bronceada oscura, sin collar, con las partes superiores muy oscuras (el manto canela cobrizo castaño muy marcado de negro, los escapularios granate con brillo verde), el centro del pecho verde azulado —a veces interrumpido por rojo en el medio—, los costados canela castaño y la cola pardo purpúrea oscura (Delacour, 1977). Madge y McGowan la llaman una raza «de patrón fuerte, oscura y de colores ricos», cobriza y granate por arriba con brillo verde bronce, pardo cobrizo por debajo con brillo verde que pasa a púrpura azul en la parte baja del cuello (Madge y McGowan, 2002). Wikipedia destaca que es la única del grupo strauchi/vlangalii en la que el collar blanco y las líneas orbitales suelen faltar y en la que el brillo verde se extiende desde el delantecuello hasta el vientre (Wikipedia). La ficha original resume lo mismo: plumaje bastante oscuro, cabeza sin líneas sobre el orbital y falta total de collar (Hernández García, 2014).
Frente a elegans y decollatus. La subespecie con la que más se la confunde es elegans, la de Yunnan, con la que intergrada al sur de Kwanhsien: elegans tiene el manto y los escapularios de un castaño más claro y brillante, casi sin manchas, el azul del pecho más extenso y menos verdoso y los costados más púrpura (BOW, 2022; Delacour, 1977; Johnsgard, 1986). Con decollatus, la de Koueitcheou, el parecido está en la cola, que Madge y McGowan dan por prácticamente idéntica; decollatus es más pálida arriba y abajo y tiene los escapularios más claramente moteados (Madge y McGowan, 2002). Johnsgard no incluye suehschanensis en su clave, y por eso tampoco aparece en la clave de los libros del autor (Hernández García, 2014; Johnsgard, 1986).
Medidas. Delacour da un ala de 220 a 230 mm para el macho; la tabla de Johnsgard (con datos de Cheng y colaboradores, 1978) recoge 217–232 mm de ala, 375–460 mm de cola y un peso de 770–1.000 g; no hay datos de hembras (Delacour, 1977; Johnsgard, 1986). Es, con elegans, una de las subespecies más pequeñas del grupo: la cifra de peso máxima (1.000 g) queda por debajo de la media de los machos de karpowi (1.296 g) y de pallasi (1.174 g) (Johnsgard, 1986).
Dónde vive. Las fuentes la sitúan en las montañas del noroeste de Sichuan, desde la cordillera Min Shan y la región de Songpan hacia el sur hasta Kwanhsien (Guanxian), y hacia el oeste en el este del Tíbet; Delacour dice que vive en montañas, hasta unos 10.000 pies de altitud, y que intergrada con las subespecies vecinas del norte, el este y el sur (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). La ficha original dice que vive «en el sudeste de Sichuan - Qinghai y el este de Tíbet», lo que no coincide con ninguna de esas fuentes, que la sitúan en el noroeste de Sichuan; en esta ficha se conserva la frase original y la discrepancia se señala en la nota de este capítulo. No hay datos publicados, en las fuentes consultadas, sobre su comportamiento, sus huevos ni su dieta.
La hembra y el estado. La hembra es oscura y está muy marcada, según Delacour y BOW, es decir, mucho menos pálida que las de las formas de oasis del noroeste (BOW, 2022; Delacour, 1977). No hay estima de población, cita en listas de amenazas ni referencia a su captura o cría en cautividad en las fuentes consultadas. Los análisis genéticos recogidos por Birds of the World la sitúan, como a strauchi y vlangalii, en el linaje strauchi-vlangalii(BOW, 2022).
Del latín decollatus, «decapitado» (verbo decollare) (Jobling); para Beebe, «descollado» o «sin collar», en alusión a la falta del collar blanco de las demás formas (Beebe, 1922 (vol. III); Jobling, 2010).
Sinónimos
Sin sinónimos propios en las fuentes consultadas; los nombres berezowskyi y strauchi con decollatus (Bianchi, Buturlin) pertenecen a strauchi(Beebe, 1922 (vol. III)).
Hasta 9.000 pies (unos 2.700 m); laderas de hierba en los espolones de las montañas; evita el bosque y prefiere los campos con arbustos (Pratt, según Beebe) (Beebe, 1922 (vol. III); Delacour, 1977).
Rasgos del macho
Intermedio entre strauchi y torquatus: corona verde oscura, sin cejas ni collar blancos; colores del cuerpo como torquatus pero algo más profundos. Pecho muy orlado de verde oscuro, no púrpura (Beebe); pecho de un púrpura intenso (ficha original) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Hernández García, 2014).
Rasgos de la hembra
Como la de torquatus (Delacour, BOW). Para Beebe se parece a la de strauchi, pero con las manchas negras de escapularios, coberteras y rabadilla más grandes y marcadas (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Frente a las vecinas
Con torquatus: sin collar, corona verde oscura, bordes del pecho verde oscuro, más anchos (Beebe). Con strauchi: más cercana a torquatus; la clave de Johnsgard las separa porque en decollatus faltan las cejas blancas y el anillo y en strauchi hay un estrecho margen negro en el pecho. Con rothschildi: más pálida arriba y abajo y con escapularios más moteados (Madge) (Beebe, 1922 (vol. III); Johnsgard, 1986; Madge y McGowan, 2002).
Tamaño y peso
Ala del macho, 227–235 mm (Delacour); 230–242 mm de ala, 490–576 mm de cola y 1.135–1.990 g de peso, y hembra de 206 mm de ala, 247 mm de cola y 625 g, en la tabla de Johnsgard (Cheng y colaboradores, 1978) (Delacour, 1977; Johnsgard, 1986).
Estado
Sin evaluación propia; BirdLife evalúa solo la especie (BirdLife, 2025).
Genética
Linaje torquatus, con karpowi, pallasi, takatsukasae y torquatus; un haplotipo de ADN mitocondrial de un ave de Libo (China) asignada a decollatus coincide con uno de un ave de Xianghai asignada a pallasi(Ashrafzadeh et al., 2021; BOW, 2022).
Texto de la ficha original: Vive en Guizhou - Sichuan y Western Hebei (China). Los especímenes genéticamente puros gracias a un color bastante particular son fácilmente reconocibles. Cabeza verde brillante sin líneas sobre el orbital; sin anillo en el cuello, muy poco presente; intenso pecho morado; plumas negras de la parte superior de la espalda y los lados con bordes visibles.
El faisán sin collar. Swinhoe encontró este faisán el 13 de mayo de 1869, un día después de llegar a Chungking, en Szechuan, durante un viaje por el Yangtsé: el criado volvió del mercado con un faisán y Swinhoe lo vio antes de que llegara a manos del cocinero. Le llamó la atención de inmediato que no tuviera collar. Intentó conseguir más ejemplares sin éxito, y los nativos le dijeron que nunca habían visto el faisán con collar blanco. Nunca había visto un faisán chino sin collar entre los muchos que había visto de distintas partes de China, y no creía que pudiera ser un cruce entre colchicus y torquatus, porque entre el área de la nueva forma y la de colchicus se interpone el faisán mongol de ancho collar blanco; un faisán de Hankow, 750 millas río abajo, coincidía con el torquatus normal salvo en que el collar estaba roto por delante, con los dos extremos separados tres cuartos de pulgada (Elliot, 1872). Elliot, que reprodujo el relato en su monografía de 1872, la llamó «faisán chino sin collar» (Ringless Chinese Pheasant) y señaló que Père David había obtenido también esta forma en Moupin, cerca de las fronteras del Tíbet, y enviado varios ejemplares vivos al Jardin des Plantes, de París, donde llegaron en excelentes condiciones; difieren algo del tipo de Swinhoe, y por eso Elliot dibujó el estilo de Moupin en la figura sentada de la lámina (Elliot, 1872).
Entre dos mundos. Elliot vio en decollatus y en formosanus los dos extremos de la gran variación de torquatus, producida por causas físicas durante un periodo muy largo; la cadena de formas que ve parte de shawii, pasa por elegans y por decollatus y llega a torquatus(Elliot, 1872). Delacour la describe como intermedia entre strauchi y torquatus, con la corona verde oscura sin cejas ni collar blancos y colores del cuerpo como torquatus pero algo más profundos, e intergradando con todas sus vecinas en grandes extensiones de terreno (Delacour, 1977). Beebe observa que cerca de las gargantas de Ichang, en el Yangtsé, donde el área de decollatus se acerca a la de torquatus, aparecen ya trazas del collar blanco (Beebe, 1922 (vol. III)). La clasificación genética que recoge Birds of the World la agrupa con torquatus, karpowi, pallasi y takatsukasae, no con las subespecies sin collar del oeste (BOW, 2022).
El nombre.Decollatus viene del verbo latino decollare, «decapitar» (de de-, «fuera», y collum, «cuello»); Jobling lo traduce como «decapitado», y Beebe, con el sentido que se le dio al aplicarlo al faisán, «sin collar» (Beebe, 1922 (vol. III); Jobling, 2010). Los nombres vernáculos varían: Koueitcheou en la ficha original (la grafía francesa de Kweichow, la provincia que hoy se escribe Guizhou), Kweichow pheasant en los libros ingleses y faisán sin collar en la lámina de Delacour (Beebe, 1922 (vol. III); Delacour, 1977; Hernández García, 2014).
Dónde vive. Delacour y Johnsgard la sitúan en el centro de China, desde el oeste de Hubei hacia el oeste hasta la cuenca Roja de Sichuan (este de Sichuan) y hacia el sur hasta el noreste de Yunnan y Guizhou; Madge y McGowan y Birds of the World dicen lo mismo (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Beebe la da, además, para el oeste de Hunan y Kwangsi, y para Sichuan hasta Tatsienlu, con cuatro aves recogidas en el norte de Tonkín (Beebe, 1922 (vol. III)). La ficha original dice «Western Hebei»: Delacour escribe «Western Hupeh», es decir, el oeste de Hubei; Hebei es una provincia del norte, muy lejos del área, y la forma más probable de la frase es una confusión entre ambos nombres. La guía conserva la frase original y la señala en la nota de este capítulo.
Hábitat y costumbres. Pratt, que la observó en Szechuan, cuenta, según Beebe, que se encuentra en las laderas de hierba de los espolones de las montañas hasta unos 9.000 pies de altitud; evita las regiones de bosque y prefiere los campos con arbustos; en cautividad dormía siempre en el suelo. Blackwelder halló pollos recién nacidos en Tahopa el 7 de mayo (Beebe, 1922 (vol. III)). En el pie de la lámina LV, Beebe añade que llega hasta Tonkín, que vive más alto que las formas más septentrionales (se ha observado a 9.000 pies) y que prefiere las laderas con arbustos al bosque denso (Beebe, 1922 (vol. III)). Johnsgard no recoge datos de reproducción propios de la subespecie.
Cómo se reconoce, macho y hembra. El macho tiene la corona verde oscura en vez de bronce verdoso, sin las cejas blancas ni el collar de torquatus, y los bordes de las plumas del pecho anchos y verde oscuro, no púrpura (Beebe), con un cuerpo de colores algo más profundos (Delacour) (Beebe, 1922 (vol. III); Delacour, 1977). En la descripción original que reproduce Elliot (1872), la cabeza y el cuello son como los de torquatus pero sin ceja clara; la parte alta de la espalda, amarillo dorado con una mancha verde oscura en el centro de cada pluma; el dorso y las alas, castaño rojizo con centros negros rotos por una estrecha línea blanca; el pecho, rojo profundo con las plumas bordeadas de verde; los flancos, amarillo dorado; el abdomen, negro; y la cola, oliva parda con barras negras estrechas y un ancho margen castaño (Elliot, 1872). La ficha original define lo esencial: cabeza verde brillante sin líneas sobre el orbital, sin anillo en el cuello (o muy poco presente), pecho de un púrpura intenso y plumas negras de la parte superior de la espalda y de los lados con bordes visibles (Hernández García, 2014). Johnsgard la sitúa en la rama sin cejas blancas ni anillo en el cuello, y plumas del pecho anchamente bordeadas de negro, flancos ante (Johnsgard, 1986). La hembra es como la de torquatus (Delacour, BOW) y se parece a la de strauchi, con manchas negras mayores (Beebe) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Tamaño y peso. Delacour da un ala de 227 a 235 mm en el macho. La tabla de Johnsgard, con datos de Cheng y colaboradores (1978), da para el macho un ala de 230 a 242 mm, una cola de 490 a 576 mm y un peso de 1.135 a 1.990 g; para la hembra, 206 mm de ala, 247 mm de cola y 625 g (Delacour, 1977; Johnsgard, 1986). Es la subespecie de este capítulo con un peso máximo registrado más alto, y 1.990 g es el máximo que Johnsgard da para todo el conjunto de las subespecies de la especie (770–1.990 g) (Johnsgard, 1986).
Genética, variación y cautividad. En el estudio genético europeo de Ashrafzadeh y colaboradores (2021), un haplotipo mitocondrial hallado antes por Qu y colaboradores en un ave de Libo (China) asignada a decollatus coincide con el de un ave de Xianghai asignada a pallasi: ejemplo de que las etiquetas subespecíficas de las aves chinas no siempre coinciden con el ADN (Ashrafzadeh et al., 2021). En cautividad, los ejemplares de Père David llegaron en buen estado a París en el siglo XIX (Elliot, 1872); en las fuentes aquí revisadas no consta que se mantenga hoy como línea pura. Las fotografías de esta tarjeta (un macho de cuerpo completo, otro de cerca y una hembra) no llevan autor.
Yunnan y el este del Tíbet: los faisanes más antiguos de la especie
Al suroeste del área de la especie, en las montañas de Yunnan, el oeste de Sichuan, el este del Tíbet y el norte de Myanmar, viven elegans y rothschildi. Son los faisanes verdes y azulados de los que Elliot, que describió el primero en 1870, pensó que acaso eran híbridos entre el faisán común y el faisán verde japonés, hasta que se convenció de que su hábitat lo hacía imposible (Elliot, 1872). Beebe (1922) escribió que elegans, «lejos al sur, dentro de las fronteras de Birmania», podía muy bien representar mejor que ninguna otra forma el color y el patrón ancestrales de la especie (Beebe, 1922 (vol. III)); y el estudio de ADN que recoge Birds of the World le ha dado la razón en lo esencial: elegans es el taxón hermano de todos los demás faisanes comunes, con la posible excepción de rothschildi, que no se estudió (BOW, 2022).
Provincia de Szechuan (Sichuan), cerca de su frontera suroccidental (Delacour, BOW); Beebe cita, según Sclater, los montes Yun-ling, en el oeste de Szechuan (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Origen del nombre
Del latín elegans, «elegante, fino» (Jobling; Beebe: «elegante, gracioso»). El nombre inglés recuerda al Sr. Stone, a cuya mediación se debió la llegada a Inglaterra de muchas de las especies más raras de faisanes, entre ellas los dos primeros ejemplares vivos de esta, procedentes del oeste de Szechuan (Beebe, 1922 (vol. III); Elliot, 1872; Jobling, 2010).
Sinónimos
Phasianus sladeni Anders (nombre manuscrito, publicado por Elliot, 1870, y Anders, 1871), aplicado a las aves de Yunnan; Madge incluye sladeni en elegans. Beebe incluye en su sinonimia el nombre suehschanensis, de Bianchi (1906), que hoy se trata como subespecie aparte (Beebe, 1922 (vol. III); Elliot, 1872; Madge y McGowan, 2002).
Distribución
Montañas del suroeste de Szechuan, noroeste de Yunnan y estados Shan, de 5.000 a 10.000 pies (Delacour). Oeste de Szechwan (Sikang) hasta los 99° E, y hacia el sur hasta la cordillera de Likiang, en el noroeste de Yunnan y noreste de Birmania (Johnsgard). Extremo oriental del Tíbet y oeste de Sichuan adyacente, al sur hasta el noroeste de Yunnan, y norte de Myanmar (Madge, BOW). La ficha original: suroeste de Sichuan, noreste y sudeste de Yunnan, este del Tíbet y áreas del extremo este de Myanmar (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Altitud y hábitat
Entre 5.000 y 10.000 pies (unos 1.500–3.000 m). Hierba y helechos altos, bosques de abetos, hierba y matorral cerca de cultivos, desde las cumbres de las cordilleras del oeste de Yunnan hasta las laderas arboladas de la frontera chino-birmana (Beebe) (Beebe, 1922 (vol. III); Delacour, 1977).
Rasgos del macho
Muy parecido a suehschanensis, pero con manto y escapularios de un castaño más claro y brillante, casi sin manchas, mancha azul del pecho más extensa y menos verdosa, y flancos más púrpura. Corona y cuello verde bronce, garganta verde profunda, pecho verde brillante, sin collar blanco (aunque una de las aves de Birmania tenía uno estrecho por detrás) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Rasgos de la hembra
Corona y cuello pardo oscuro o negro con barras ante; garganta y delantecuello blancuzcos; partes inferiores irregularmente barradas de negro (Beebe, 1922 (vol. III)).
Tamaño y peso
Ala del macho, 220–230 mm (Delacour); 205–230 mm de ala, 410–465 mm de cola y 820–1.250 g de peso en la tabla de Johnsgard (Cheng y colaboradores, 1978); hembra, 184–200 mm de ala, 235–240 mm de cola y 750–800 g. Beebe, con la descripción de Stuart Baker: macho, ala 210,8–228,6 mm, cola 391,1–487,6, tarso 63,5–68,5 y espolón 10,1; hembra, ala 198,1–208,3, cola 246,4–271,8 (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986).
Estado
Sin evaluación propia; BirdLife evalúa solo la especie (BirdLife, 2025).
Genética
Taxón hermano de todos los demás faisanes comunes (con la posible excepción de rothschildi), según Birds of the World; en Wikipedia, grupo «Yunnan», el más basal del clado oriental. Liu y colaboradores fechan su separación en unos 0,23 millones de años, sin cambio de tamaño de población detectable en el grupo (BOW, 2022; Liu et al., 2020 (preprint de 2019); Wikipedia).
Texto de la ficha original: Esta subespecie se encuentra en el suroeste de Sichuan, en el noreste y sudeste de Yunnan, en el este del Tíbet (China) y en las áreas de norte a sur del extremo este de Myanmar. Cabeza de color gris verdoso con la parte superior caracterizada por un velo claro y la ausencia de líneas orbitales; sin collar; pecho y abdomen con una variabilidad cromática bastante amplia de verde oscuro; la parte inferior de la espalda y la espalda gris azulada cubierta con plumas negras que forman vagas rayas con pliegues horizontales en color negro.
Un descubrimiento de coleccionista. Elliot describió esta forma a partir de dos machos vivos que el Sr. Stone, a cuya mediación debían su llegada a Inglaterra muchas de las especies más raras de faisanes, había conseguido en las montañas del oeste de Szechuan y depositó en los Jardines de la Sociedad Zoológica de Londres, en Regent’s Park (Elliot, 1872). Eran muy salvajes e inabordables, pero estaban en muy buen estado; de sus costumbres no se conocían relatos y la voz que emitían era áspera y gutural (Elliot, 1872). La descripción original apareció en 1870 en la revista Annals and Magazine of Natural History, con localidad tipo en la provincia de Szechuan, cerca de su frontera suroccidental (BOW, 2022; Delacour, 1977). El nombre inglés que le puso Elliot en su monografía de 1872, Green-back Golden Pheasant («faisán dorado de dorso verde»), no ha pasado a la literatura posterior, que lo llama faisán de Stone en honor del Sr. Stone, a quien debe el material (Beebe, 1922 (vol. III); Elliot, 1872).
¿Un híbrido? No. Elliot se desconcertó con este faisán porque tenía caracteres que cabría esperar en la descendencia de dos especies tan distintas como el faisán verde japonés y el faisán común: en la serie de relaciones que ordena en su monografía, elegans es el miembro del género más próximo a versicolor, aunque las separan muchas millas de mar y de tierra, y los dos tienen más caracteres comunes en el color del plumaje que cualesquiera otros del género (Elliot, 1872). Como había visto cuatro ejemplares, dos de ellos vivos en Londres, todos exactamente iguales, y como el área de ninguna de las dos especies que recordaba estaba a menos de muchas millas de la de elegans, descartó que fuese un híbrido y lo consideró una especie plenamente válida (Elliot, 1872). En la misma monografía, al describir a shawii, imagina una cadena de formas con dos direcciones: hacia versicolor, a través de elegans y de sladeni (el nombre manuscrito de Anderson para las aves de Yunnan), y hacia torquatus, a través de decollatus(Elliot, 1872). Beebe y Madge tratan después sladeni como sinónimo de elegans(Beebe, 1922 (vol. III); Madge y McGowan, 2002).
Las dos primeras citas fuera de China. Beebe señala que es el único miembro de todo el género que vive dentro de los límites de la India británica, en las colinas de Kachin y los estados Shan del norte y del sur, hoy Myanmar (Beebe, 1922 (vol. III)). Él mismo oyó faisanes cantar cerca de Myitkyina y, a la vuelta de su expedición, identificó un ave medio comida que un cazador kachin había sacado de una trampa: el ejemplar tenía un collar blanco posterior de casi media pulgada de ancho, un carácter inesperado en una subespecie descrita sin collar (Beebe, 1922 (vol. III)). Dos días después mató un macho casi adulto cerca de la ladera por la que bajaban a beber las bandadas de kalij; los nativos los llamaban simplemente «gallina salvaje» (Beebe, 1922 (vol. III)).
Lo que cuentan los cazadores. W. R. Zappey, que cazó elegans en el oeste de Szechuan, escribió a Beebe que los encontraba entre Wa Shan, el país de los lolos, y Tachien-lu, entre 5.000 y 10.000 pies, con más frecuencia en lugares de hierba y arbustos cerca de los cultivos, en familias pequeñas. Un día, al levantar un macho de un matorral hacia un campo arado, un águila real se lanzó sobre él; el faisán se agachó sobre un terrón hasta que el águila estuvo muy cerca y entonces, con una media carrera, media volada de unos pocos pies hacia un lado, esquivó a su atacante; el águila subió, dio varias vueltas y se lanzó de nuevo, y de nuevo el faisán esquivó de lado; esta vez el águila desistió (Beebe, 1922 (vol. III)). El capitán Davies los encontró cerca de las cumbres de las cordilleras del oeste de Yunnan, en hierba larga y helechos o en bosques de abetos, solos o en parejas, y una vez en una bandada de diez (Beebe, 1922 (vol. III)). Según Beebe, el faisán de Stone recorre las alturas arboladas de las montañas de la frontera entre Birmania y China y busca su alimento escarbando entre las hojas secas y los helechos del sotobosque (Beebe, 1922 (vol. III)).
Huevos. Tres huevos de la colección de Charles M. Inglis, que parecían ser de una puesta de siete, eran indistinguibles de los del faisán común, de un pardo oliva profundo, y medían 34,2 × 44,1, 35 × 44,4 y 34,1 × 43,9 mm (Beebe, 1922 (vol. III)). No hay en las fuentes consultadas ningún dato más sobre el nido, el calendario de cría ni la incubación de esta subespecie.
Cómo se reconoce. Delacour la describe como muy parecida a suehschanensis, pero con manto y escapularios de un castaño más claro y brillante y casi sin manchas, la mancha azul del pecho más extensa y menos verdosa y los flancos más púrpura (Delacour, 1977). Madge y McGowan precisan que es más negra por debajo, con más azul púrpura en el pecho y más rojiza, menos granate, en los escapularios (Madge y McGowan, 2002). La descripción detallada de Stuart Baker, que reproduce Beebe, la completa: corona del macho de la frente a la nuca verde bronce, con los penachos de las orejas más oscuros y azulados; garganta verde profundo; delante y a los lados del cuello, azul púrpura profundo; parte alta de la espalda castaño dorado, que pasa a castaño profundo en la espalda y los escapularios; rabadilla y plumas de la cola gris verdoso pálido con barras subterminales verde esmeralda; cola pardo rufo con anchas bandas negras; coberteras alares gris verdoso pálido con reflejos esmeralda; pecho verde brillante con cada pluma estrechamente bordeada de negro aterciopelado; flancos y lados del pecho cobre dorado; piel facial escarlata; patas color plomo (Beebe, 1922 (vol. III)). El macho carece de collar blanco en la mayoría de las descripciones; la clave de Johnsgard lo separa de vlangalii (flancos dorado ante) y de rothschildi (manto y costados más dorados) por tener el manto castaño brillante y los costados más púrpura (Hernández García, 2014; Johnsgard, 1986). La ficha original dice que la espalda y la parte baja de la espalda son «gris azulada», cubiertas de plumas negras que forman rayas vagas (Hernández García, 2014).
La hembra. Beebe copia la descripción de Stuart Baker: corona y cuello pardo oscuro o negro con estrechas barras ante, a veces con un tinte castaño; espalda y escapularios castaño con un subborde blanco; resto de las partes superiores pardo grisáceo pálido con bordes ante estrechos y centros negros; garganta pálida ante-blanquecina obsoletamente barrada de pardo oscuro; frente y pecho superior con barras negras y un lavado rosa rojizo; partes inferiores gris ante con vermiculaciones tenues. Tres hembras de Chang Youn, en China, eran más ricas en color por encima que las más occidentales pero casi sin marcas oscuras en el pecho y el abdomen (Beebe, 1922 (vol. III)). Se distingue de la hembra de colchicus por la garganta y el delantecuello blancos y por las partes inferiores irregularmente barradas de negro (Beebe, 1922 (vol. III)).
Variación, vecinas y medidas. Delacour y Johnsgard la sitúan en el suroeste del área del grupo, desde el oeste de Szechuan (Sikang) hasta los 99° E y hacia el sur hasta la cordillera de Likiang, en el noroeste de Yunnan, y el noreste de Birmania; hacia el norte intergrada con suehschanensis al sur de Kwanhsien (Delacour, 1977; Johnsgard, 1986). Beebe describe una pequeña variación individual y regional (las hembras de China más ricas de color que las de Birmania); la ficha original dice que el pecho y el abdomen tienen «una variabilidad cromática bastante amplia» de verde oscuro (Beebe, 1922 (vol. III); Hernández García, 2014). En cuanto a las medidas, el ala del macho va de 205 a 230 mm (Johnsgard) o de 220 a 230 mm (Delacour); la cola, de 410 a 465 mm; el peso, de 820 a 1.250 g, y el de la hembra, de 750 a 800 g, con un ala de 184 a 200 mm y una cola de 235 a 240 mm (Delacour, 1977; Johnsgard, 1986). Beebe da las medidas de los ejemplares de Stuart Baker: el macho, con 35,5 mm de pico desde la comisura, 210,8–228,6 mm de ala, 391,1–487,6 mm de cola, 63,5–68,5 mm de tarso y un espolón de 10,1 mm; la hembra, con 33 mm de pico, 198,1–208,3 de ala, 246,4–271,8 de cola y 60,9–66 de tarso (Beebe, 1922 (vol. III)).
Un taxón antiguo. El estudio de ADN que recoge Birds of the World sitúa el origen de la especie hace aproximadamente 1,19 millones de años en el borde oriental de la meseta Qinghai-Tíbet o en las montañas adyacentes del suroeste o centro de China, y elegans (centro-sur de China y norte de Myanmar) es el taxón hermano de todos los demás faisanes comunes; de ahí que se hable de un «grupo elegans», con rothschildi, como el primero que se separó de los demás en la expansión hacia el sureste desde la meseta (BOW, 2022). Wikipedia, con otros datos, lo sitúa como el grupo más basal del clado oriental, divergido durante el Calabriense y diversificado hace unos 0,7 millones de años (BOW, 2022; Wikipedia).
Estado, caza y cautividad. No hay estimas de población ni valoración propia. En cautividad, Delacour recibió en Clères algunos faisanes de Stone del oeste de Szechuan en 1938; no criaron en 1939 y se perdieron en 1940, y no consta en sus escritos que haya quedado línea pura (Delacour, 1977). Las fotografías de esta tarjeta, tres machos y una hembra, no llevan autor.
La Touche, Bulletin of the British Ornithologists’ Club 42: 54. Delacour, BOW y Pfarr dan 1922; Madge, la ficha original y los libros del autor, 1921. Descrita ya como subespecie: Phasianus colchicus rothschildi(BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; Pfarr).
Los epónimos rothschildi de Jobling corresponden a Lionel Walter, segundo barón Rothschild de Tring (1868–1937), ornitólogo, entomólogo, coleccionista y editor de Novitates Zoologicae, pero entre los taxones que cita no figura este; que sea el homenajeado es lo más verosímil (describió hagenbecki y pallasi), pero ninguna de las fuentes consultadas lo dice (Delacour, 1977; Jobling, 2010). El autor, La Touche, es casi con seguridad John David Digues La Touche (1861–1935), ornitólogo e inspector de aduanas en China entre 1882 y 1921, según la entrada latouchei de Jobling (Jobling, 2010).
Montañas del este de Yunnan y frontera adyacente de Tonkín, entre 5.000 y 10.000 pies (Delacour, Johnsgard); sureste de Yunnan y norte de Tonkín, en Vietnam (Madge); sureste de Yunnan, noroeste de Vietnam (norte de Tonkín) y norte adyacente de Laos y este de Myanmar (BOW). La ficha original: sureste de Yunnan (Mengzi), sureste de Myanmar, norte de Laos y noroeste de Vietnam (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Altitud y hábitat
De 5.000 a 10.000 pies (unos 1.500–3.000 m), en montañas (Delacour, 1977).
Rasgos del macho
Se parece a elegans, pero el manto es decididamente más claro y dorado; el azul del pecho queda restringido al centro y teñido de rojo; los costados y flancos son de un tono más claro y dorado, y a veces hay trazas de un collar blanco (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Rasgos de la hembra
No se describe aparte en las fuentes consultadas.
Frente a las vecinas
Johnsgard la separa de elegans (manto castaño brillante, costados más púrpura) por el manto y los costados más dorados; el verde oscuro del cuello llega hasta el centro del pecho, como en elegans y vlangalii. Madge: decollatus es más pálida arriba y abajo (Johnsgard, 1986; Madge y McGowan, 2002).
Tamaño y peso
Ala del macho, 210–230 mm (Delacour, Madge); Madge la cita como ejemplo de subespecie meridional, de menor tamaño que las del norte, como hagenbecki (260–265 mm) (Delacour, 1977; Madge y McGowan, 2002).
Estado
Sin evaluación propia; BirdLife evalúa solo la especie (BirdLife, 2025).
Genética
No se estudió en el análisis de ADN que recoge BOW, que la deja como posible miembro del grupo elegans («y tal vez rothschildi») por su proximidad geográfica (BOW, 2022).
Texto de la ficha original: Vive en el sudeste de Yunnan (Mengzi-China) - sureste de Myanmar - norte de Laos - noroeste de Vietnam. Esta subespecie resume en general algunas características de Ph. c. suehschanensis y Ph. c. elegans. El primero presenta el pecho verde oscuro y extendido, el segundo las partes superiores más claras y doradas.
Descrita tarde y poco conocida. La Touche (casi con seguridad el ornitólogo e inspector de aduanas en China J. D. D. La Touche, que ejerció en ese país entre 1882 y 1921) la describió en el Bulletin of the British Ornithologists’ Club, con localidad tipo en las montañas cerca de Mengtsz (hoy Mengzi), en el sureste de Yunnan (BOW, 2022; Delacour, 1977; Jobling, 2010). Es una de las más recientes de la especie: Beebe, que publicó en 1922, no la conoce; Delacour y BOW dan el año 1922, y Madge y McGowan, la ficha original y los libros del autor, 1921 (BOW, 2022; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002).
Un faisán de la frontera. Las fuentes la sitúan en las montañas del este de Yunnan (sureste) y de la frontera con Tonkín, a una altitud de 5.000 a 10.000 pies, intergradando mucho con las subespecies vecinas (Delacour, 1977; Johnsgard, 1986). Birds of the World añade el norte de Laos y el este de Myanmar (BOW, 2022), que son también los países que cita la ficha original (sureste de Myanmar, norte de Laos y noroeste de Vietnam) (Hernández García, 2014). En estas montañas del sur convive con una vecina muy distinta: takatsukasae, la del noreste de Tonkín, cuyas aves —según Delacour— varían según las localidades y son intermedias entre ella y torquatus o rothschildi(Delacour, 1977).
Cómo se reconoce. Es muy parecida a elegans, y todas las fuentes la definen por contraste con ella: tiene el manto más claro y dorado, el azul del pecho restringido al centro y mezclado con algo de rojo, y los costados y flancos más dorados; a veces se ven trazas de un collar blanco (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). La clave de Johnsgard (y la de los libros del autor) las reúne por tener el verde oscuro del cuello extendido hasta el centro del pecho, y las separa por el color del manto y de los costados: castaño brillante y púrpura en elegans; más dorados en rothschildi(Hernández García, 2014; Johnsgard, 1986). La ficha original dice que resume rasgos de suehschanensis (pecho verde oscuro y extendido) y de elegans (partes superiores más claras y doradas). Esta guía conserva la frase; las demás fuentes dicen, en cambio, que es el manto de rothschildi el que es más claro y dorado que el de elegans y que el azul del pecho está más restringido, y no comparan a rothschildi con suehschanensis(BOW, 2022; Delacour, 1977; Madge y McGowan, 2002).
Tamaño. Delacour da para el macho un ala de 210 a 230 mm, y Madge y McGowan usan esa cifra como ejemplo de que las subespecies del norte son mayores que las del sur: las de hagenbecki, del oeste de Mongolia, miden 260 a 265 mm (Delacour, 1977; Madge y McGowan, 2002). No hay medidas de hembras ni pesos.
Genética y clasificación. El estudio de ADN que recoge Birds of the World no analizó a rothschildi: los autores dejan el grupo elegans como formado por elegans y, «tal vez», rothschildi, por la proximidad geográfica, y señalan que elegans es el taxón hermano de los demás, con la posible excepción de rothschildi(BOW, 2022). Wikipedia define un «grupo Yunnan» con las dos formas, de collar blanco y líneas orbitales ausentes (Wikipedia).
Estado y lo que no se sabe. No hay estimas de población, descripción de la hembra, datos de comportamiento o de reproducción, ni cría en cautividad, en las fuentes consultadas. Las ilustraciones de esta tarjeta (un macho dibujado de cuerpo entero) y las fotografías (dos machos y una hembra echada en el suelo) no llevan autor.
Tonkín y Taiwán: las formas del sur
Las dos últimas subespecies del grupo viven en el sur: takatsukasae en el sureste de China y el norte de Vietnam, y formosanus en la isla de Taiwán. Ambas se parecen mucho a torquatus, el faisán de collar de China, y las dos se definen por contraste con él: takatsukasae es más oscura y de colores más ricos; formosanus, más pálida (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). Wikipedia señala que en el grupo torquatus el collar blanco disminuye de norte a sur a lo largo de la serie pallasi, karpowi, torquatus y takatsukasae(Wikipedia). En el estudio de ADN que recoge Birds of the World, takatsukasae pertenece al linaje de torquatus, y formosanus forma un linaje propio (BOW, 2022).
Según Jobling, el epíteto takatsukasae conmemora al príncipe Nobusuke Taka-Tsukasa (1888–1959), ornitólogo, coleccionista y autor japonés (Jobling cita como ejemplo otro género, Monarcha, no este faisán). Delacour menciona en su libro a ese príncipe como uno de los criadores de faisanes más destacados de Japón y como proveedor de aves para su colección de Clères: el vínculo japonés está en el nombre, no en el área de la subespecie (Delacour, 1977; Jobling, 2010).
Sinónimos y variantes
Sin sinónimos en las fuentes consultadas. En la clave de Johnsgard el epíteto aparece escrito takatukasae(Delacour, 1977; Johnsgard, 1986).
Distribución
Sureste de Tonkín y parte adyacente de China, a baja y moderada altitud (Delacour, Johnsgard: Kwangsi); sur de Guangxi y extremo noreste de Tonkín (Madge); sur de Guangxi y noreste de Vietnam (BOW). Las aves del distrito de Pakhoi pertenecen a esta subespecie. La ficha original: sureste de Guangxi y noroeste de Vietnam (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Como torquatus pero más oscuro y de colores más ricos en todo el cuerpo: manto amarillo más profundo, pecho rojo intenso y escapularios granate (BOW, 2022; Delacour, 1977).
Con torquatus: manto dorado más oscuro y escapularios granate, no castaños (clave de Johnsgard). Las aves del noreste de Tonkín son intermedias entre esta forma y torquatus o rothschildi (Delacour) (Delacour, 1977; Johnsgard, 1986).
Tamaño y peso
Ala del macho, 225–245 mm (Delacour). Sin pesos (Delacour, 1977).
Estado
Sin evaluación propia; BirdLife evalúa solo la especie (BirdLife, 2025).
Genética
Linaje torquatus, con decollatus, karpowi, pallasi y torquatus(BOW, 2022).
Texto de la ficha original: Vive en el sudeste de Guangxi (China) y noroeste de Vietnam.
Un nombre japonés para un faisán de Indochina. Es la subespecie más fácil de situar mal. Su nombre científico es el de un príncipe japonés, y eso puede llevar a asociarla con Japón o con Corea, pero Delacour la describió en 1927 a partir de aves de Langson, en Tonkín (hoy Lạng Sơn, en el noreste de Vietnam), y Johnsgard, Madge y BOW la sitúan en el sur de Guangxi (China) y el noreste de Vietnam (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). La subespecie de Corea es karpowi, que se introdujo en Hokkaido, en Japón, en 1930 (BOW, 2022). El epónimo, según Jobling, es Nobusuke Taka-Tsukasa (1888–1959), príncipe y ornitólogo japonés (Jobling, 2010); Delacour dice de él que consiguió para Clères varios pares de faisanes de Mikado capturados en libertad a partir de 1926, que escribió The Birds of Nippon (1933) y que mantuvo, con el marqués Kuroda y el marqués Hachisuka, colecciones notables de faisanes en Japón (Delacour, 1977). No consta en las fuentes consultadas cómo fue la relación entre el príncipe y esta subespecie.
Una forma de transición.Takatsukasae es la más meridional de la serie de formas de collar que, de norte a sur, va de pallasi a karpowi, torquatus y takatsukasae, con un collar blanco cada vez más estrecho (Wikipedia) (Wikipedia). Delacour dice que las aves del noreste de Tonkín varían según las localidades y son intermedias entre takatsukasae y torquatus o rothschildi, y que las del distrito de Pakhoi pertenecen a esta subespecie; Johnsgard sitúa su límite en la provincia de Kwangsi y en el sureste de Tonkín (Delacour, 1977; Johnsgard, 1986). La ficha original dice que vive en el sudeste de Guangxi y en el noroeste de Vietnam; las demás fuentes ponen la subespecie en el noreste (Lạng Sơn está en el noreste de Vietnam), no en el noroeste, de modo que esta guía conserva la frase y señala la discrepancia en la nota de este capítulo (BOW, 2022; Hernández García, 2014; Madge y McGowan, 2002).
Cómo se reconoce. Delacour la describe como parecida a torquatus, pero más oscura y rica de color en todo el cuerpo: manto amarillo más profundo, pecho rojo intenso y escapularios granate; para Madge y McGowan y Birds of the World, la diferencia es la misma (BOW, 2022; Delacour, 1977; Madge y McGowan, 2002). La clave de Johnsgard (y la de los libros del autor) la contrapone a torquatus: ambas con el collar blanco completo o casi, estrecho y casi o totalmente interrumpido por delante, y las plumas del pecho sin borde o solo con barras gris oscuro; en torquatus el manto es dorado brillante y los escapularios, castaños; en takatsukasae, el manto dorado más oscuro y los escapularios granate (Hernández García, 2014; Johnsgard, 1986). La hembra es oscura y está muy marcada (Delacour, BOW) (BOW, 2022; Delacour, 1977). El macho mide de 225 a 245 mm de ala, una cifra algo menor que la de torquatus (240–255 mm) (Delacour, 1977).
Genética y estado. El estudio de ADN que recoge Birds of the World agrupa takatsukasae con torquatus, karpowi, pallasi y decollatus, en un mismo linaje (BOW, 2022). No hay estima de población ni otra valoración de la subespecie; el área, de baja y moderada altitud en la frontera chino-vietnamita, no figura en ninguna lista de amenazas aquí consultada. No se documenta en las fuentes revisadas ninguna cría de esta forma en cautividad.
Sobre las fotografías. Las fotografías de esta tarjeta están atribuidas a la subespecie por el nombre de archivo de la ficha original: los machos aparecen sostenidos en la mano o tendidos sobre la hierba, y las hembras, sobre la nieve; la nieve de las fotografías de hembras no encaja con un área de tierras bajas del sur de Guangxi y el noreste de Vietnam, y la identificación no está confirmada. Ninguna lleva autor.
Isla de Formosa (Taiwán); los ejemplares tipo los trajo Robert Swinhoe (BOW, 2022; Elliot, 1872).
Origen del nombre
Del topónimo Formosa, nombre histórico de Taiwán (Jobling; Beebe: «de Formosa, la isla hogar de esta forma») (Beebe, 1922 (vol. III); Jobling, 2010).
Sinónimos
Phasianus torquatus Swinhoe, 1863 (en parte; no Gmelin), antes de que Elliot la separara; P. colchicus formosanus Rothschild, 1904. Tegetmeier (1904) la trató como raza de torquatus(Beebe, 1922 (vol. III)).
Baja y moderada altitud (Delacour). Elliot dice que abunda en la isla y que el verdadero torquatus no se conoce allí (Delacour, 1977; Elliot, 1872).
Rasgos del macho
Como torquatus, pero con el manto menos dorado, más bien color paja, y los flancos más pálidos, ante blanquecino; collar blanco estrecho, interrumpido por delante; escapularios bordeados de rojo granate; plumas del pecho con bordes verde oscuro (BOW, 2022; Delacour, 1977; Johnsgard, 1986).
Rasgos de la hembra
Solo muy ligeramente más clara que la de torquatus (Delacour, BOW); idéntica a la de torquatus (Beebe); de plumaje oscuro, casi negro, que la distingue fácilmente de la de torquatus (Elliot). Delacour: muy pálida en el stock cautivo (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977; Delacour, 1978; Elliot, 1872).
Frente a las vecinas
Frente a torquatus: manto y flancos más pálidos; en torquatus son más profundos y cálidos (Beebe). El único carácter que Beebe considera fiable en la mayoría de los casos es la palidez del manto y de los flancos (Beebe, 1922 (vol. III); Delacour, 1977).
Tamaño y peso
Ala del macho, 220–245 mm (Delacour). Sin pesos (Delacour, 1977).
Incubación
24–25 días (cuadro de incubación del American Game Bird Park, reproducido por Gerrits) (Gerrits, 1974).
Estado
Sin valoración propia en BirdLife (que evalúa solo la especie). BOW dice que puede no existir ya como forma pura por hibridación con otras subespecies; Madge y McGowan, para el conjunto de la especie en Taiwán, dicen que declina pero aún es común en el sur y el este (BirdLife, 2025; BOW, 2022; Madge y McGowan, 2002).
Genética
Linaje propio, el grupo formosanus, formado solo por esta subespecie; llegó probablemente a Taiwán cuando la isla estaba unida al continente en los periodos fríos del Pleistoceno. Liu y colaboradores solo detectaron flujo genético desde Taiwán hacia el continente (grupo torquatus), y desde Taiwán hacia el linaje strauchi-vlangalii(BOW, 2022; Liu et al., 2020 (preprint de 2019)).
Texto de la ficha original: Endémica de la isla de Taiwán (Formosa), tiene un color bastante distintivo con las plumas de los lados casi blancas con ápices brillantes de color negro. Sin embargo, una de las principales características que lo distinguen, y diferencia los especímenes puros de los híbridos, concierne al collar no demasiado alto, aunque generalmente bien definido, que debe abrirse en la parte frontal del cuello con un espacio medio entre las dos puntas igual a unos 3 cm. La mutación llamada clara, muy probablemente sea el resultado del cruce con P. c. pallasi.
Descrito por Elliot a partir de las aves de Swinhoe. Elliot describió esta forma en 1870 en las actas de la Sociedad Zoológica de Londres, a partir de ejemplares que le trajo Robert Swinhoe, el cónsul británico en la isla, y que pusieron en sus manos para que los describiera (del Campo, 2006; Elliot, 1872). En su monografía de 1872 la llamó, en inglés, Formosan Pheasant y escribió que es el faisán común de la isla de Formosa; que se parece al torquatus chino pero se diferencia de él por muchos rasgos llamativos en los dos sexos; que todos los ejemplares de Swinhoe eran exactamente iguales a los tipos de la lámina y que Swinhoe le aseguraba que coincidían con todos los de la isla (Elliot, 1872). El verdadero torquatus de China, añade, no se conoce en Formosa; y la forma insular, aunque sin duda de origen común, ha experimentado por causas físicas cambios que la hacen reconocible en cualquier lugar (Elliot, 1872). Para Elliot, la variación entre decollatus y formosanus era el rango completo de las formas de torquatus, y vio en el faisán de Formosa otra prueba del cambio de una forma típica por condiciones de vida alteradas en una isla; la consideró el único representante de Phasianus en la región india, aunque quizá debería considerarse una parte periférica de la región paleártica (Elliot, 1872). Swinhoe había incluido antes estas aves, en 1863, en torquatus(Beebe, 1922 (vol. III)).
Cómo la describió Elliot. El macho tiene la frente verde oscuro; una ceja blanca sobre cada ojo desde la mancha verde de la frente hasta la nuca; la corona y la nuca verde claro; la garganta y el cuello verde metálico, azul según la luz; un estrecho collar blanco, interrumpido por delante; la parte alta de la espalda amarillo ante, con la mitad basal de las plumas negra salvo a lo largo del raquis; los escapularios con los centros amarillo blanquecino moteado de negro, separados del ancho margen castaño por una línea negra; el pecho superior rojo profundo, púrpura a ciertas luces, con margen azul oscuro; los flancos blancos, con los extremos de las plumas azul metálico oscuro; el abdomen verde oscuro, separado del blanco de los flancos por una línea de castaño profundo; los muslos negros; las subcaudales rojas; el pico verde amarillento pálido; los tarsos y pies pardos; y el iris blanco (Elliot, 1872). De la hembra dice que se distingue fácilmente de la de torquatus por su plumaje oscuro, casi negro (Elliot, 1872). Delacour, Beebe y BOW, en cambio, dicen que la hembra es solo muy ligeramente más clara que la de torquatus (Delacour, BOW) o idéntica a ella (Beebe) (Beebe, 1922 (vol. III); BOW, 2022; Delacour, 1977).
Un carácter fiable: la palidez. Beebe señala que el único carácter en el que se puede confiar en la mayoría de los casos es la palidez del manto y de los flancos, más profundos y cálidos en torquatus; él mismo tomó dos aves río arriba en el Yangtsé aún más claras que las de Formosa, pero con márgenes verdes muy anchos, mientras que en las aves de Formosa ha visto ese verde casi ausente (Beebe, 1922 (vol. III)). Delacour la distingue de torquatus por el manto menos dorado, más bien paja, y los flancos más pálidos, ante blanquecino; la ficha original recoge un rasgo de otro tipo, el del collar: no demasiado alto, aunque generalmente bien definido, y abierto por delante con un hueco de unos 3 cm entre las dos puntas, lo que serviría para distinguir los ejemplares puros de los híbridos (Delacour, 1977; Hernández García, 2014). La clave de Johnsgard la separa de satscheuensis y edzinensis por los escapularios bordeados de rojo granate (Hernández García, 2014; Johnsgard, 1986). Wikipedia añade que los flancos son blanquecinos con puntas negras y que las plumas del pecho están anchamente orladas de negro, lo que le da un aspecto escamoso (Wikipedia).
Isla y origen. Beebe opinó en 1922 que, como la isla está a más de cien millas de la costa y la forma difiere de las de la costa vecina solo por un plumaje por lo común más pálido, era probable que fuese una introducción más o menos reciente (Beebe, 1922 (vol. III)). Es lo contrario de lo que sostiene el estudio de ADN que recoge Birds of the World: formosanus es un linaje propio, y es probable que llegara a Taiwán cuando la isla estaba conectada al continente durante los periodos fríos del Pleistoceno (BOW, 2022). La diferencia entre las dos versiones la zanja, al menos por ahora, el dato genético; Beebe reconocía también que los machos de Formosa varían bastante entre sí y que las hembras eran indistinguibles de las de las provincias orientales de China (Beebe, 1922 (vol. III)).
En Europa y América desde 1907. Delacour cuenta que el faisán de collar de Formosa se importó por primera vez a Europa en 1907 y que se propagó con rapidez; se cruzó en libertad con otras formas y se diferencia tan poco de torquatus que no puede mantener su pureza en los cotos; hay un gran stock en las faisaneras, pero la mayor parte es mucho más pálida que el ave silvestre normal; y en otra obra añade que el stock de América suele ser demasiado pálido y parcialmente albinístico, y no de color normal (Delacour, 1977; Delacour, 1978). Howman lo cita como ejemplo de una subespecie que ya no es pura: escribe (1979, 1996) que se ha cruzado con los faisanes de collar chinos soltados en la isla, y su edición de 1993 dice que el ejemplo surgió en el Reino Unido al cruzarse con ellos (Howman, 1979; Howman, 1993; Howman, 1996). Esta guía recoge las dos versiones: según Howman 1979/1996, la hibridación ocurrió en Taiwán; según su texto de 1993, en el Reino Unido. En el cuadro de incubación del American Game Bird Park que reproduce Gerrits, el faisán de collar de Formosa necesita de 24 a 25 días (Gerrits, 1974). Delacour lo incluye, con el de cuello negro, el mongol, el de collar chino y el mutante melánico, entre los faisanes de caza más conocidos en cautividad y en los cotos (Delacour, 1978).
La «mutación clara». La ficha original dice que la mutación llamada «clara» es muy probablemente el resultado del cruce con pallasi. Delacour da otra explicación general para la palidez del stock cautivo: es anormalmente pálido y se ha vuelto algo albinístico (Delacour, 1977; Delacour, 1978). Las fuentes consultadas no dicen cuál es la causa de la variedad clara; las dos explicaciones no son excluyentes.
Estado en la naturaleza. BirdLife evalúa solo la especie. Birds of the World dice que formosanus «puede no existir» como tal por la hibridación con otras subespecies; Madge y McGowan, que en Taiwán el faisán común declina pero aún es común en el sur y el este (BirdLife, 2025; BOW, 2022; Madge y McGowan, 2002). La hibridación con aves introducidas del continente es también un problema que Wikipedia generaliza: muchas subespecies están en peligro de desaparecer por cruzarse con las aves introducidas (Wikipedia).
Fotografías. Las fotografías de esta tarjeta (tres machos, uno de ellos con el cuello muy azul, y dos hembras) no llevan autor; están atribuidas a la subespecie por la ficha original. Los dos ejemplares que se muestran después de la tarjeta están en recintos de cautividad: uno, un macho visto por detrás, y el otro, un ave muy clara, que podría ser de la variedad clara, aunque eso no está confirmado.
Las tablas siguientes ponen lado a lado lo que dicen las fuentes de estas once subespecies: quién las describió y cuándo, cómo se distinguen, cuánto miden y pesan y con qué otras formas las agrupan los estudios genéticos. Donde una cifra falta es porque no existe en ninguna de las fuentes consultadas.
Delacour reconoce 17 subespecies en el grupo de rabadilla gris; Johnsgard sigue su esquema; Madge y McGowan fijan la lista de 30 subespecies que sigue Birds of the World (BOW, 2022; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Birds of the World publica la revisión que recoge el estudio genético de ocho linajes (BOW, 2022).
Qué dice el ADN de estas once subespecies
El estudio genético de Liu y colaboradores, publicado en 2020 en el Journal of Biogeography (cuyo preprint se ha leído), analizó 265 aves de toda el área de la especie con siete loci nucleares y dos mitocondriales, y es la base de los ocho linajes que cita Birds of the World (BOW, 2022; Liu et al., 2020 (preprint de 2019)). Sus resultados, aplicados a las once subespecies de este capítulo, se resumen así. Ocho de ellas se muestrearon (alaschanicus, vlangalii, strauchi, suehschanensis, decollatus, elegans, takatsukasae y formosanus); no se muestrearon edzinensis, sohokhotensis y rothschildi(Liu et al., 2020 (preprint de 2019)).
El grupo elegans, el más antiguo. El linaje 1 reúne las muestras de elegans, que son hermanas de todas las demás, aunque ese nodo no tiene apoyo sólido; sus áreas son los montes Hengduan, en el centro-sur de China, y el norte de Myanmar (Liu et al., 2020 (preprint de 2019)). Los autores recuerdan que los Hengduan se consideran una «potencia evolutiva» y que su clima fue relativamente estable y cálido durante las glaciaciones, por lo que sirvieron de refugio a muchas especies, y que su relieve complejo pudo también actuar como barrera; en consonancia, no encontraron cambio del tamaño efectivo de la población en el grupo elegans, que pudo evolucionar aislado con una población estable durante el Pleistoceno tardío (Liu et al., 2020 (preprint de 2019)). Calculan que la especie se extendió desde el borde de la meseta Qinghai-Tíbet hacia el sureste, dando el grupo elegans, hace unos 0,23 millones de años (con un intervalo de 0 a 0,35), y casi a la vez hacia Asia oriental y hacia Asia central, hace unos 0,17 millones de años (0,12–0,23) (Liu et al., 2020 (preprint de 2019)). Rothschildi no se muestreó, pero se parece a elegans en el aspecto, y los autores dicen que hacen falta más estudios para saber si forma parte de ese clado basal (Liu et al., 2020 (preprint de 2019)). El estudio anterior de Kayvanfar y colaboradores (2017) había encontrado ya a elegans, hasta entonces incluida en el grupo torquatus, en la posición basal, con poco apoyo (Liu et al., 2020 (preprint de 2019)).
El grupo strauchi-vlangalii, el de la meseta de loess y el borde del Tíbet. El linaje 2 reúne las muestras de alaschanicus, hagenbecki, kiangsuensis, satscheuensis, suehschanensis, strauchi y vlangalii; es característico de las zonas comparativamente áridas de la meseta de loess del norte de China, pero aparece también en el noreste de la meseta Qinghai-Tíbet hasta el norte de Sichuan, con poblaciones dispersas en la cuenca del Qaidam, Mongolia Interior y el oeste de Mongolia (Liu et al., 2020 (preprint de 2019)). Edzinensis y sohokhotensis, del centro-norte de China, no se muestrearon; lo más probable es que pertenezcan a este linaje (Liu et al., 2020 (preprint de 2019)). En el ADN mitocondrial, un individuo de cada una de las áreas de kiangsuensis, strauchi y suehschanensis aparece dentro del grupo torquatus, y los modelos detectan flujo genético desde torquatus, elegans y formosanus hacia el grupo strauchi-vlangalii (los valores más altos, los de torquatus y de formosanus), lo que concuerda con una zona de contacto en el borde oriental de la meseta de loess (Liu et al., 2020 (preprint de 2019)). Liu y colaboradores recuerdan que un estudio anterior (Liu y colaboradores, 2010) fechaba la divergencia entre strauchi-vlangalii y torquatus en hace unos 0,24–0,22 millones de años, cuando el clima se hizo más frío y seco, y que ese marco temporal es coherente con el suyo; los tamaños efectivos de población son los mayores de todos los linajes en torquatus y en strauchi-vlangalii, y en este último se mantienen estables, con una leve subida reciente (Liu et al., 2020 (preprint de 2019)).
El grupo torquatus y el de Taiwán. El linaje 4 reúne las muestras de decollatus, karpowi, pallasi, takatsukasae y torquatus; ocupa las partes subtropicales húmedas del sur y el este de China hasta el norte de China, el extremo sudeste de Siberia y la península de Corea, y su monofilia no tiene apoyo sólido (Liu et al., 2020 (preprint de 2019)). Es el único linaje de la especie que muestra señales de expansión reciente: el tamaño efectivo de su población aumentó durante los últimos 50.000 años, desde el último periodo glacial, que por lo visto no le afectó negativamente (Liu et al., 2020 (preprint de 2019)). El linaje 3 es el de formosanus, que forma el suyo propio, restringido a Taiwán: la isla estuvo unida repetidamente al continente en los periodos fríos del Pleistoceno, incluido el último, lo que pudo permitir flujo genético recurrente tras una colonización inicial; los autores solo detectaron flujo desde Taiwán hacia el continente (hacia el grupo torquatus), aunque el flujo en sentido contrario podría estar enmascarado por la deriva en la pequeña población insular (Liu et al., 2020 (preprint de 2019)).
Subespecie
Pfarr
Delacour (1977)
Johnsgard (1986)
Madge y McGowan (2002)
BOW (2022)
Ficha original y libros del autor
edzinensis
Sushkin, 1926
Sushkin, 1926
Sushkin (sin año)
Sushkin, 1926
Sushkin, 1926
Sushkin, 1926
sohokhotensis
sohokotensis, Buturlin, 1908
sohokotensis, Buturlin, 1908
Buturlin (sin año)
Buturlin, 1908
Buturlin, 1908
Buturlin, 1908 («Zohokhoto»)
alaschanicus
Alphéraky y Bianchi, 1908
Alphéraky y Bianchi, 1907 (1908)
Alphéraky y Bianchi (sin año)
Alphéraky y Bianchi, 1908
Alphéraky y Bianchi, 1907
Alphéraky y Bianchi, 1908
vlangalii
Przevalski, 1876
Przevalski, 1876
Przevalski (sin año)
vlangalli, Przhevalski, 1876
Przevalski, 1876
Przhvalski, 1876
strauchi
Przevalski, 1876
Przevalski, 1876
Przevalski (sin año)
Przhevalski, 1876
Przevalski, 1876
Przhvalski, 1876
suehschanensis
Bianchi, 1906
Bianchi, 1906
Bianchi (sin año)
Bianchi, 1906
Bianchi, 1906
Bianchi, 1906
decollatus
Swinhoe, 1870
Swinhoe, 1870
Swinhoe (sin año)
Swinhoe, 1870
Swinhoe, 1870
Swinhoe, 1870
elegans
Elliot, 1870
Elliot, 1870
Elliot (sin año)
Elliot, 1870
Elliot, 1870
Elliot, 1970 (error por 1870)
rothschildi
La Touche, 1922
La Touche, 1922
La Touche (sin año)
La Touche, 1921
La Touche, 1922
La Touche, 1921
takatsukasae
Delacour, 1927
Delacour, 1927
Delacour (sin año)
Delacour, 1927
Delacour, 1927
Delacour, 1927
formosanus
Elliot, 1870
Elliot, 1870
Elliot (sin año)
Elliot, 1870
Elliot, 1870
Elliot, 1870
Fuentes: Pfarr (tabla de clasificación), Delacour, Johnsgard (lista de subespecies), Madge y McGowan, Birds of the World, la ficha original y los libros del autor. La tabla de Pfarr es la que aportó el usuario en una fotografía; las lecturas dudosas de la foto no afectan a estas filas (BOW, 2022; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Pfarr).
Subespecie
Rasgo que la define según Delacour, Madge y BOW
Rama en la clave de Johnsgard
edzinensis
Como satscheuensis pero algo más clara; manto más dorado con centros blancos; pecho con bordes negros más estrechos (BOW, 2022; Delacour, 1977)
Anillo estrecho, casi interrumpido; bordes verde negruzco en el pecho; color muy pálido; escapularios con margen pardo arena (Johnsgard, 1986)
sohokhotensis
Como strauchi pero más clara, con marcas negras mayores y dorso más dorado (BOW, 2022; Delacour, 1977)
Collar estrecho, a veces cejas; pecho muy bordeado de negro; cejas ausentes (Johnsgard, 1986)
Macho (Johnsgard, con datos de Cheng y colaboradores)
Hembra (Johnsgard)
Otras fuentes
vlangalii
245–250 mm
sin datos
sin datos
—
strauchi
240–250 mm
ala 225–238 mm; cola 378–595 mm; peso medio 1.062 g (980–1.204 g)
ala 196–215 mm; cola 197–275 mm; peso medio 835 g (760–920 g)
Cheng (1963), según Johnsgard
suehschanensis
220–230 mm
ala 217–232 mm; cola 375–460 mm; 770–1.000 g
sin datos
—
decollatus
227–235 mm
ala 230–242 mm; cola 490–576 mm; 1.135–1.990 g
ala 206 mm; cola 247 mm; 625 g
—
elegans
220–230 mm
ala 205–230 mm; cola 410–465 mm; 820–1.250 g
ala 184–200 mm; cola 235–240 mm; 750–800 g
Beebe (Stuart Baker): macho, ala 210,8–228,6 mm, cola 391,1–487,6 mm, tarso 63,5–68,5 mm, espolón 10,1 mm; hembra, ala 198,1–208,3 mm, cola 246,4–271,8 mm, tarso 60,9–66 mm
rothschildi
210–230 mm
sin datos
sin datos
Madge: ala 210–230 mm
takatsukasae
225–245 mm
sin datos
sin datos
—
formosanus
220–245 mm
sin datos
sin datos
—
edzinensis, sohokhotensis, alaschanicus
sin datos
sin datos
sin datos
—
Para el conjunto de las subespecies, Johnsgard da rangos de ala de 205 a 276 mm en el macho y de 184 a 240 mm en la hembra, y de peso de 770 a 1.990 g y de 545 a 1.018 g; Madge y McGowan, una longitud total de 75–89 cm en el macho y de 53–62 cm en la hembra, con las poblaciones del norte mayores que las del sur (Beebe, 1922 (vol. III); Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Las cifras de la tabla de Johnsgard proceden de una copia con errores de lectura, y las de strauchi (ala de 225–238 mm) difieren de las de Delacour (240–250 mm); en el peso hay que tener en cuenta que son pocas aves.
Subespecie
Linaje (Liu y colaboradores; BOW)
¿Muestreada en ese estudio?
Grupo según Wikipedia
Grupo según la ficha original y los libros del autor
Como otras aves domesticadas o trasladadas a países donde no existían, los faisanes verdaderos han desarrollado cambios en el plumaje. Delacour distingue entre simples fases de color, por fortalecimiento, debilitamiento o desaparición de pigmentos, que se originan en alteraciones accidentales fijadas por selección artificial y solo sobreviven aisladas y manejadas por el hombre, y un único caso de mutación bien definida, el de los machos, hembras y polluelos del faisán melánico, cuyo plumaje ha adquirido un patrón fundamentalmente distinto (Delacour, 1977). Han aparecido aberraciones desde el albinismo completo hasta el melanismo parcial, pero solo unas pocas se han consolidado por cría selectiva; Delacour cree que la mayoría se originó en un stock mixto de P. colchicus en el que las subespecies colchicus y torquatus tuvieron el papel principal (Delacour, 1977). Robertson confirma que las mutaciones solo se ven de verdad en granjas cinegéticas o donde se sueltan esas aves, y duda de que muchas durasen en estado silvestre (Robertson, 1997).
Variedad o mutación
Descripción
Origen y situación
Fuente
Melánico («tenebrosus», «obscuro»)
Macho de verde metálico oscuro y azul, con alas y abdomen negro oliváceo; hembra casi negra con reflejos verdes y púrpura; polluelos negros o chocolate con blanco
Mutación verdadera que cría fiel; en Norfolk desde hacia 1880; estabilizada en Europa y América desde 1933
Todo blanco, con ojos azules, pico y patas blancos; los machos conservan las carúnculas rojas pigmentadas, de modo que no es un albino verdadero; cría fiel
Fase fijada por selección; Chintaguay menciona una variedad blanca, no albina, desarrollada para criaderos intensivos
Plumaje con pequeñas barras y manchas blancas; resulta de cruzar blancos con normales; cepa antigua con la peculiaridad de poner con mucha más abundancia que cualquier otro faisán, casi todas las estaciones
En el macho, todas las partes rojas sustituidas por crema isabelino, con cabeza y cuello verdes y bordes y marcas negros que resaltan, con o sin collar blanco; hembra mayormente ante isabelino; plumas inferiores blancas y colores pálidos en las puntas
Las variedades se mantienen en cautividad como líneas de cría y no son subespecies (del Campo, 2006; Delacour, 1977).
El mutante melánico («tenebrosus»)
Es la variedad más conocida y más extendida. Delacour describe al macho en su fase final como metálico verde por encima, salvo las alas y el abdomen, que son oliva negruzco, y la cola oliva pardo con barras negras y flecos bronceados muy reducidos; el pecho y los costados, azul purpúreo con el astil claro anteado, y el cuello azulado; la hembra es de un negro hollín con reflejos verdes y purpúreos en la cabeza, el cuello, el pecho y el manto, y algunos astiles claros; y los polluelos son negros o de chocolate oscuro con mucho blanco irregular en la cabeza y las partes inferiores (Delacour, 1977). En una fase menos perfecta, el macho conserva barras ante y rojas en los costados, y la hembra tiene el plumaje castaño oscuro o negruzco con barras y bordes pardo pálido del patrón normal (Delacour, 1977).
Su historia es tan interesante como el aspecto. Según Delacour (que cita a Hachisuka), en un día de invierno de 1925, al inspeccionar los almacenes de aves de Cambridge, Hachisuka vio una gallina que, por el color, parecía un urogallo; la compró y, disecada, resultó ser una hembra adulta; se la enseñó a lord Rothschild, que dijo conocer bien ese tipo de faisán, hallado en Norfolk desde hacia 1880, y le mostró un macho al que Hachisuka dio el nombre de tenebrosus (1927), la primera vez que se describía debidamente una forma mutante, pues las anteriores habían sido descritas como especies o subespecies (Delacour, 1977). Hachisuka demostró la mutación criándola en Japón, donde crió fiel durante varias generaciones; a la vez se hizo común y popular en Inglaterra y en Francia, por su gran tamaño y su vitalidad; y se acentuaron sus caracteres hasta que apareció una fase más oscura (Delacour, 1977). Delacour añade que desde 1933 la fase muy oscura se estableció en Europa y en América, donde son comunes los machos de verde oscuro y azul y las gallinas negras, y que la mutación ha llegado al final de su curso y se ha estabilizado (Delacour, 1977). Gerrits fecha la presencia en Inglaterra en 1880, en la colección de lord Rothschild; dice que se supone que la mutación tuvo lugar en Japón, y que desde 1933 es bastante común en Europa y América (Gerrits, 1974). Se ha hallado además una hembra de tipo tenebrosus en Japón entre faisanes verdes silvestres, por lo que probablemente todas las formas de Phasianus pueden producirla (Delacour, 1977).
La confusión con un híbrido es un clásico: durante años se pensó que estas aves eran híbridos de colchicus y versicolor, y Delacour, Robertson y Johnsgard lo desmienten. Los híbridos reales tienen el manto verde brillante con barras rojas y ante, los escapularios granate que contrastan con el manto, las cobertoras gris claro como en el faisán verde, el pecho verde azulado brillante, los flancos con una ancha barra roja subterminal y la rabadilla gris; y la hembra y los jóvenes híbridos se parecen a los padres y no a los de tenebrosus(Delacour, 1977). Robertson lo prueba con la genética: los cruces entre común y verde dan hembras y pollos de aspecto normal, mientras que los cruces de melánicos con ambos dan la mitad de crías normales y la mitad melánicas; además, las hembras y los polluelos melánicos son pardo chocolate (Robertson, 1997). Madge y McGowan aconsejan distinguir al melánico del verde por la rabadilla oscura, las alas gris oscuro y las partes inferiores negruzcas, frente a las alas y la rabadilla gris azuladas y las partes inferiores más verdes del verde; y a la hembra melánica, castaño oscuro con marcas ante y negras, mucho más oscura y rojiza que la del verde (Madge y McGowan, 2002). Johnsgard añade que es algo mayor, con cola de más de 350 mm, y casi enteramente negro hollín con brillo verdoso o azulado en cabeza, cuello, pecho y manto (Johnsgard, 1986).
Fuente
Qué dice del melánico
Observación
Delacour (1977)
Mutación verdadera; cría fiel, no produce intermedios al cruzarse con la forma original; más apta que la original; acaba sustituyéndola si no se interfiere
Surgió en poblaciones asilvestradas de Europa hace cien años; al principio macho más oscuro que el cuello negro con mucho azul y verde; hembra caoba; ahora macho verde y azul oscuro brillante y hembra negro verdoso; fuerte, vigoroso, mejor adaptado a los cotos de Europa que las formas asiáticas
La mutación más común; en toda el área, también China, Europa y Norteamérica, en especial en Gran Bretaña, donde los guardas la han alentado; machos muy oscuros, hembras de un marrón chocolate uniforme, a veces con babero blanco; mutación, no híbrido
Cruces con el común o el verde: la mitad normal, la mitad melánica (Robertson, 1997)
Green-Armytage (2002)
Ave grande y vigorosa; mutación y no subespecie; cría fiel; a veces con algunas plumas blancas en el cuello; algunos criadores experimentan con nuevas mutaciones
«Melanistic», también «tenebrosos», «azules» o «verdes»; colores tornasolados más oscuros y parejos; las hembras notablemente más oscuras que las de collar
Señala que han surgido varias mutaciones en los faisanes verdaderos y las ilustra con fotografías de un macho melánico, uno blanco y uno «California Golden Buff»
No da descripciones de las variedades (Howman, 1993)
Madge y McGowan (2002)
Variante melánica («tenebrosus») frecuente entre las poblaciones introducidas, quizá más frecuente en el Reino Unido
Todas las formas de Phasianus se sustituyen geográficamente y se cruzan libremente si se juntan, con híbridos completamente fértiles; por eso Delacour las considera, sin duda, el gran complejo que los taxonomistas progresistas llaman superespecie (Delacour, 1977). Los híbridos entre subespecies son la razón principal de que las aves de coto de Europa y América sean mestizas: Delacour (1978) señala que el llamado «English Ringneck», de collar blanco, es un híbrido de cuello negro con mongol o chino, y no una raza pura ni estable (Delacour, 1978). Green-Armytage apunta que las subespecies del Cáucaso se han cruzado en libertad y en cautividad y que las hembras son tan parecidas que ni un criador concienzudo puede estar seguro de la identidad de su descendencia (Green-Armytage, 2002). En Tring, Rothschild soltó faisanes con sangre de colchicus, torquatus e incluso versicolor y, tras introducir sangre de pallasi, aparecieron aves indistinguibles de la forma silvestre satscheuensis, que vive en el corazón de China (Beebe, 1922 (vol. III)). Y Delacour recuerda que el faisán Príncipe de Gales, soltado en Hampshire, desapareció de los cotos por hibridación con los de cuello negro y otros (Delacour, 1977).
Entre especies, la tabla de hibridación de Johnsgard (1999) que adapta el criadero Chintaguay recoge, para el faisán común, los siguientes cruces; se transcribe lo que se lee con claridad en la imagen de la tabla (del Campo, 2006; Johnsgard, 1999):
Cruce con el faisán común
Resultado según la tabla de hibridación (Johnsgard, 1999)
Otras fuentes
Faisán verde (Phasianus versicolor)
Híbridos de ambos sexos fértiles
Delacour: híbridos completamente fértiles; en Hawái y Japón, hibridación hasta la desaparición del verde o del común (BOW, 2022; Delacour, 1977)
Faisán venerado (Syrmaticus reevesii)
Híbridos machos fértiles o a veces fértiles
BOW: en cautividad y quizá en libertad; descendientes mayoritariamente machos; espermatozoides a menudo deformes, pero hay retrocruzamientos que llegan a la madurez; Delacour: solo los machos híbridos son fértiles (BOW, 2022; Delacour, 1977)
Faisán dorado (Chrysolophus pictus)
Híbridos machos fértiles o a veces fértiles
—
Faisán de Lady Amherst (C. amherstiae)
Híbridos machos fértiles o a veces fértiles
—
Faisán plateado (Lophura nycthemera)
Híbridos machos fértiles o a veces fértiles
—
Faisán kalij (Lophura leucomelanos)
Hibridación notificada en cautividad
—
Gallo bankiva (Gallus gallus)
Hibridación recíproca notificada
—
Faisán cobrizo (Syrmaticus soemmerringii)
Híbridos notificados como estériles
Johnsgard: la fertilidad reducida de los cruces Phasianus × Syrmaticus es la razón por la que no fusiona los dos géneros (Johnsgard, 1986)
Faisán de Elliot (S. ellioti)
Registro de hibridación cuestionable
—
Pavo real azul (Pavo cristatus)
Registro de hibridación cuestionable
—
La tabla es la de la imagen de la web (fuente: Johnsgard, The Pheasants of the World, 2.ª ed., 1999, traducida y adaptada por P. P. del Campo, v. 2.0 del 24-6-2005); la lectura de las celdas se ha hecho sobre la imagen (del Campo, 2006; Johnsgard, 1999).
Fuera de la familia, BOW recoge cruces silvestres en Europa con el gallo lira y con el urogallo (sin retrocruzamientos), y en Estados Unidos con el gallo de las praderas grande (al menos una vez), el grévol y el gallo fuliginoso (BOW, 2022). Los híbridos con el faisán verde tienen especial interés: en Hawái, donde ambas especies se soltaron y se hibridaron con bastante libertad, el verde puro y los híbridos se desplomaron entre las décadas de 1970 y 1990 y el común sigue extendido; en Honshu, donde se intentó repetidamente soltar el común, la hibridación fue sustancial pero tanto los comunes puros como los híbridos desaparecieron en gran medida (BOW, 2022). Delacour recuerda que los híbridos colchicus × versicolor son completamente distintos de los melánicos, y Johnsgard que, donde coinciden, el verde es el que sufre (Delacour, 1977; Johnsgard, 1986).
Poblaciones introducidas y cinegéticas
Casi todos los faisanes comunes del mundo son hoy de origen mixto. El conjunto de las poblaciones introducidas procede de varias subespecies, a menudo sin registros; Madge y McGowan recuerdan que en muchas partes del mundo las aves soltadas son de varios orígenes, a menudo mezclados, y BOW que la identificación subespecífica es difícil por las introducciones, extirpaciones, translocaciones y reintroducciones (BOW, 2022; Madge y McGowan, 2002). Johnsgard lo resume: las poblaciones introducidas de Europa, Norteamérica, Hawái, Japón, Australia y Nueva Zelanda representan numerosas subespecies (y, en algunos casos, P. versicolor) y las aves de Turquía, Bulgaria y Tracia pueden ser nativas o introducidas (Johnsgard, 1986).
Región
Subespecies o linajes que se han soltado
Fuente
Europa
Primero colchicus (desde el año 500); desde el siglo XVIII también mongolicus y torquatus; después formosanus (1907), melánicos y mezclas con versicolor; los ejemplares de coto actuales son mestizos
Linajes mitocondriales B (grupo mongolicus, que incluye mongolicus, torquatus y pallasi) y F (grupo colchicus), con el F mucho más frecuente y extendido y el B sobre todo en Serbia; las sueltas recientes de aves criadas no han creado linajes distintos
torquatus y mongolicus sobre todo, con muchos intergrados; strauchi en Michigan; en el oeste, aves llegadas directamente de China; en el este, de Europa
Fuera de Asia no hay, pues, poblaciones «puras» de una subespecie en libertad, salvo quizá aves de colchicus en el sureste de Europa y las poblaciones asiáticas nativas (Ashrafzadeh et al., 2021; BOW, 2022).
Ashrafzadeh y colaboradores midieron la variación del faisán introducido en Hungría y Serbia con 74 muestras de aves abatidas legalmente en 2014–2015 y concluyeron que la población húngara es mucho más homogénea y la serbia, mucho más mezclada, que el linaje F, del grupo colchicus, se introdujo mucho antes que el B y está mucho más extendido, y que hay señales de una expansión demográfica; recomiendan, para la gestión, que se tenga en cuenta un «tamaño de vecindad» genético de hasta 50 km, mucho mayor que el ámbito de hogar conocido (unos 0,05–0,1 km²), de modo que las sueltas de aves criadas en cautividad pueden tener un efecto genético a una escala mucho mayor de la que prevén los gestores (Ashrafzadeh et al., 2021). Los autores advierten de que, si las aves liberadas tienen baja aptitud, su mayor impacto puede ser la transmisión de enfermedades y parásitos, y de que las sueltas no han evitado el descenso de las poblaciones de ambos países en los últimos treinta años (Ashrafzadeh et al., 2021).
En Gran Bretaña, la población que cría en libertad es pequeña en comparación con los 35 millones de aves liberadas cada otoño; Robertson dice que el faisán es, con frecuencia, tratado como un animal de coto y como un ave «odiada» por los observadores de aves, pero que probablemente ha atraído más fondos para su estudio que ninguna otra ave silvestre (BOW, 2022; Robertson, 1997). En Norteamérica, la caza deportiva del faisán es una de las mayores: casi 20 millones de aves cobradas cada año, según Johnsgard (1986), y 9,5 millones según el plan de acción de la UICN (Fuller y Garson, 2000; Johnsgard, 1986). Los programas de cría y suelta con millones de aves parecen mantener, según Green-Armytage, un equilibrio con el número de adultos que los cazadores trasladan del campo a la mesa (Green-Armytage, 2002).
Más fotografías de subespecies, de gbp.bio
Estas fotografías proceden de la página de las 30 subespecies de Phasianus colchicus de gbp.bio (Global Birds Project, de Giuliano Forni), que las recoge con los créditos que se indican en cada pie.
Un ave de leyenda desde Jasón, caza imperial en China, ave de mesa en Roma y, hoy, un emblema del campo y de la caza en medio mundo.
El faisán común es probablemente el ave silvestre que más ha acompañado al hombre en Occidente: de la leyenda de los argonautas y los banquetes romanos a los cotos de caza europeos, y de la caza imperial china a los sellos de correos (Beebe, 1922 (vol. III); del Campo, 2006; Delacour, 1977; Robertson, 1997).
El faisán en la antigüedad: Colchis, Grecia y Roma
La tradición clásica liga el faisán a la expedición de Jasón y los argonautas al río Fasis, en la Cólquida, en busca del vellocino de oro; a su regreso, Jasón habría llevado los primeros faisanes a Grecia hacia el 1300 a. C., según Robertson (Robertson, 1997). Jobling anota que de esa tradición viene el propio nombre científico: Phasianus, del griego, «el ave del Fasis»; y colchicus, «de la Cólquida», porque ahí se descubrió el ave (Jobling, 2010). En Grecia se consideraba un ave de lujo; Ptolomeo I Sóter, compañero de Alejandro y fundador de la dinastía grecoegipcia, era un gran aficionado a su carne, según el criadero Chintaguay (del Campo, 2006). Los romanos lo criaron en pajareras, lo cebaron con bolitas de harina de trigo y aceite de oliva, y dejaron recetas (De re coquinaria, atribuida a Apicio) y mosaicos, algunos con faisanes de ancho collar blanco que no existen en la Cólquida, un misterio que Robertson relaciona con la Ruta de la Seda y con los bordados de seda chinos (del Campo, 2006; Robertson, 1997). En Gran Bretaña, el testimonio más antiguo seguro es el misal de Sherborne (hacia 1400), y a finales del siglo XV los nidos silvestres estaban protegidos por decreto real (Robertson, 1997).
Caza imperial, creencias y mercados en China
Beebe, que recogió varias tradiciones chinas sobre el faisán en el Yangtsé, cuenta que los chinos lo llaman teh-chi («gallina salvaje») o shan-chi («gallina de monte») y que en los puertos se vendía como «pollo de Shantung», un disfraz fácil del nombre chino cuando los reglamentos locales prohibían venderlo (Beebe, 1922 (vol. III)). Las leyes chinas para proteger la caza se remontaban, según él, a la época del gran Kublai Khan: los cazadores imperiales solo podían matar un número fijo de piezas por distrito y estaba prohibido matar hembras; la caza mayor y la cetrería de caza menor eran pasatiempo imperial y principesco, aunque en su época las leyes se cumplían poco (Beebe, 1922 (vol. III)). Algunas creencias eran más curiosas: los chinos temían a una serpiente que canta, la She-kung-Chiao, de cabeza como la piel escarlata de un pavo, que imitaría el canto del faisán para atraerlo y matarlo, y no se acercaban al lugar donde oían un canto de faisán inusual; en algunos distritos creían en un «espíritu del polvo» que pasa del faisán vivo al hombre y le causa una enfermedad fatal con tos y fiebre; y en ciertas zonas de Shantung, Chili y Chekiang pensaban que los faisanes de los grandes cementerios albergaban los espíritus de los antepasados y se oponían a que se les disparara (Beebe, 1922 (vol. III)). En Asia central, Beebe cita que los kirguises practican con entusiasmo la cetrería con azores, y que su deporte favorito es lanzar azores contra faisanes (Beebe, 1922 (vol. III)).
El faisán del campo europeo y norteamericano
En el Reino Unido, el faisán es a la vez el ave de caza más popular y un ave que los aficionados a la observación de aves miran con desdén: según Robertson, en una votación se lo eligió «el ave más odiada» y se lo declaró «mamífero honorario» para distanciarlo de las demás aves, aunque probablemente ha atraído más fondos para su estudio que ninguna otra ave silvestre; su colección personal reúne más de 600 trabajos científicos, y más de mil científicos han trabajado con él (Robertson, 1997). Para el criadero Chintaguay es «el rey de las aves de caza por su particular vuelo», y su carne, suave, magra y de sabor delicado, se aprecia en la alta cocina, aunque hay que consumirlo joven (del Campo, 2006). Beebe enviaba la imagen contraria: «gallinas de caza» abatidas por miles; llegó a documentar 1.801 faisanes cobrados en 23 días en Ewo, sobre perros en campo abierto, y habla de bolsas de «ciento a ciento cincuenta aves» al día en el Yangtsé (Beebe, 1922 (vol. III)). En Norteamérica, el faisán es, junto con el pavo, el ave de caza más cobrada; BOW nota que su caza figura entre las más estudiadas del continente (más de 800 publicaciones solo en Norteamérica) y que el «gallo faisán» es popular incluso entre quienes no cazan por su espectacular aspecto (BOW, 2022).
Curiosidades
Dato
Detalle
Fuente
El faisán que no vuela mucho
Alcanza 61 km/h, pero rara vez vuela más de 180 m; prefiere correr, nadar o esconderse
Algunos sellos postales del mundo dedicados a esta especie.
Los sellos que se reproducen proceden de más de treinta emisiones de países de Europa, Asia y América, y muestran al faisán común en paisajes de campo, de cañaveral y de nieve, casi siempre como un macho de collar blanco o sin él; algunos son hojas bloque de emisiones nacionales, como las de Azerbaiyán y Moldavia, que representan aves sin collar visible y encajan en el grupo de cuello negro; otros, de caza, como el «sello de hábitat» del faisán de Minnesota (un sello de cuota de caza, no postal) o el de Dakota del Sur, ave de ese estado, y el sobre de primer día de 1998 (Hernández García, 2014).
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Ashrafzadeh, M. R., Khosravi, R., Fernandes, C., Aguayo, C., Bagi, Z., Lavadinović, V. M., Szendrei, L., Beuković, D., Mihalik, B. y Kusza, S. (2021). Assessing the origin, genetic structure and demographic history of the common pheasant (Phasianus colchicus) in the introduced European range. Scientific Reports, 11: 21721. doi:10.1038/s41598-021-00567-1
Ashrafzadeh, M. R., Khosravi, R., Fernandes, C., Aguayo, C., Bagi, Z., Lavadinović, V. M., Szendrei, L., Beuković, D., Mihalik, B. y Kusza, S. (2021). Assessing the origin, genetic structure and demographic history of the common pheasant (Phasianus colchicus) in the introduced European range. Scientific Reports, 11: 21721. doi:10.1038/s41598-021-00567-1
Ashrafzadeh, M. R., Khosravi, R., Fernandes, C., Aguayo, C., Bagi, Z., Lavadinović, V. M., Szendrei, L., Beuković, D., Mihalik, B. y Kusza, S. (2021). Assessing the origin, genetic structure and demographic history of the common pheasant (Phasianus colchicus) in the introduced European range. Scientific Reports, 11: 21721. doi:10.1038/s41598-021-00567-1.
Beebe, W. (1922). A Monograph of the Pheasants, vol. III. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1922). A Monograph of the Pheasants, vol. III. Londres: H. F. Witherby (para la New York Zoological Society).
BirdLife International (2025). Phasianus colchicus. The IUCN Red List of Threatened Species 2025: e.T45100023A280926744. doi:10.2305/IUCN.UK.2025-2.RLTS.T45100023A280926744.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
BirdLife International (2025). Species factsheet: Common Pheasant Phasianus colchicus. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2025). datazone.birdlife.org. Descargada el 30 de octubre de 2026.
BirdLife International (2025). Species factsheet: Common Pheasant Phasianus colchicus. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2025). datazone.birdlife.org. Descargada el 30 de octubre de 2026.
Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan).
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ) / Hong Kong: T.F.H. Publications.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vol. I. Nueva York: edición del autor (ejemplar digitalizado de la Biblioteca Estatal y Universitaria de Gotinga).
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vol. II. Nueva York: edición del autor (ejemplar digitalizado de la Biblioteca Estatal y Universitaria de Gotinga).
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas).
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants. Nueva York: edición del autor (texto leído en la copia digitalizada de la Biblioteca Estatal y Universitaria de Gotinga).
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
Giudice, J. H., Ratti, J. T. y Mlodinow, S. G. (2022). Ring-necked Pheasant (Phasianus colchicus), versión 1.1 (publicada el 25 de octubre de 2022). En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe1 · doi:10.2173/bow.rinphe1.01.1 (consultada el 30 de octubre de 2026).
Giudice, J. H., Ratti, J. T. y Mlodinow, S. G. (2022). Ring-necked Pheasant (Phasianus colchicus), versión 1.1 (publicada el 25 de octubre de 2022). En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe1. DOI 10.2173/bow.rinphe1.01.1. Leída el 30 de octubre de 2026 en la versión en español de la ficha.
Giudice, J. H., Ratti, J. T. y Mlodinow, S. G. (2022). Ring-necked Pheasant (Phasianus colchicus), versión 1.1 (publicada el 25 de octubre de 2022). En Birds of the World (N. D. Sly, ed.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/rinphe1 (consultada el 30 de octubre de 2026; secciones de sistemática, distribución, plumajes y conservación; doi:10.2173/bow.rinphe1.01.1).
Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
Green-Armytage, S. Extraordinary Pheasants. Nueva York: Harry N. Abrams (año de edición por confirmar: no figura en las páginas consultadas).
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Lepage, D. Avibase: Phasianus colchicus turcestanicus (bergii) (Common Pheasant (turcestanicus, syn. bergii)), identificador Avibase D1B0658DED28CF37. Avibase, la base de datos de aves del mundo (Bird Studies Canada y Birds Canada). avibase.bsc-eoc.org. Consultada el 16 de noviembre de 2026.
Liu, S., Liu, Y., Jelen, E., Aliabadian, M., Yao, C.-T., Li, X., Kayvanfar, N., Wang, Y., Vahidi, F., Han, J., Sundev, G., Zhang, Z. y Schweizer, M. (2020). Regional drivers of diversification in the late Quaternary in a widely distributed generalist species, the common pheasant Phasianus colchicus. Journal of Biogeography, 47 (12): 2714-2727. doi:10.1111/jbi.13964. Se ha leído la versión preprint de bioRxiv (23 de diciembre de 2019, sin revisión por pares; doi:10.1101/2019.12.21.881813), titulada Regionally divergent drivers of historical diversification in the late Quaternary in a widely distributed generalist species, the common pheasant Phasianus colchicus.
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
Pfarr, J. (2012). True Pheasants: A Noble Quarry. Surrey (Columbia Británica): Hancock House (tabla de clasificación con autor y año de cada subespecie; año y editorial según la cita de Ashrafzadeh et al., 2021).
Pfarr, J. (2012). True Pheasants: A Noble Quarry. Surrey (Columbia Británica): Hancock House Publishers (año y editorial según la cita de Ashrafzadeh y colaboradores, 2021; el libro tiene 248 páginas). Tabla de clasificación (columnas «Species», «Credited» y «Year») aportada como fotografía de una página del libro.
Pfarr, J. True Pheasants: A Noble Quarry. Tabla de clasificación («Species», «Credited», «Year») fotografiada de una página del libro y aportada por el usuario (3 de noviembre de 2026); año y editorial de la edición pendientes de confirmar.
Robertson, P. A. (1997). Pheasants. Voyageur Press (cabecera de página de la obra: «A Natural History of the Pheasant»).
Robertson, P. A. (1997). Pheasants. Voyageur Press (cabecera de página de la obra: «A Natural History of the Pheasant»).
Robertson, P. A. (1997). Pheasants. Voyageur Press (cabecera de página de la obra: «A Natural History of the Pheasant»).
Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
Wikipedia (en inglés). Common pheasant. en.wikipedia.org/wiki/Common_pheasant (consultada el 30 de octubre de 2026; secciones de taxonomía, subespecies y distribución).
Wikipedia (en inglés). Common pheasant. en.wikipedia.org/wiki/Common_pheasant (consultada el 30 de octubre de 2026; solo se leyó la primera parte del artículo).
Wikipedia (en inglés). Common pheasant. en.wikipedia.org/wiki/Common_pheasant. Los datos citados son los del recuadro «Información ampliada» de la ficha original de la web (que remite a esta página) y los resúmenes de otros redactores de esta ficha.
Wikipedia (en inglés). Subspecies of Phasianus colchicus (sigue la lista del Congreso Ornitológico Internacional, versión 15.1). en.wikipedia.org/wiki/Subspecies_of_Phasianus_colchicus (consultada el 3 de noviembre de 2026; datos que remiten a Dementyev, Vaurie, Hartert, Delacour, Salikhbaev y Bogdanov, Kayvanfar et al., Aliakbari et al. y libros rojos regionales).
Zhang, L., An, B., Backström, N. y Liu, N. (2014). Phylogeography-based delimitation of subspecies boundaries in the common pheasant (Phasianus colchicus). Biochemical Genetics, 52: 38-51. doi:10.1007/s10528-013-9626-5. Solo se ha leído el resumen (Europe PMC).
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán común — Phasianus colchicus spp. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/comun.php.

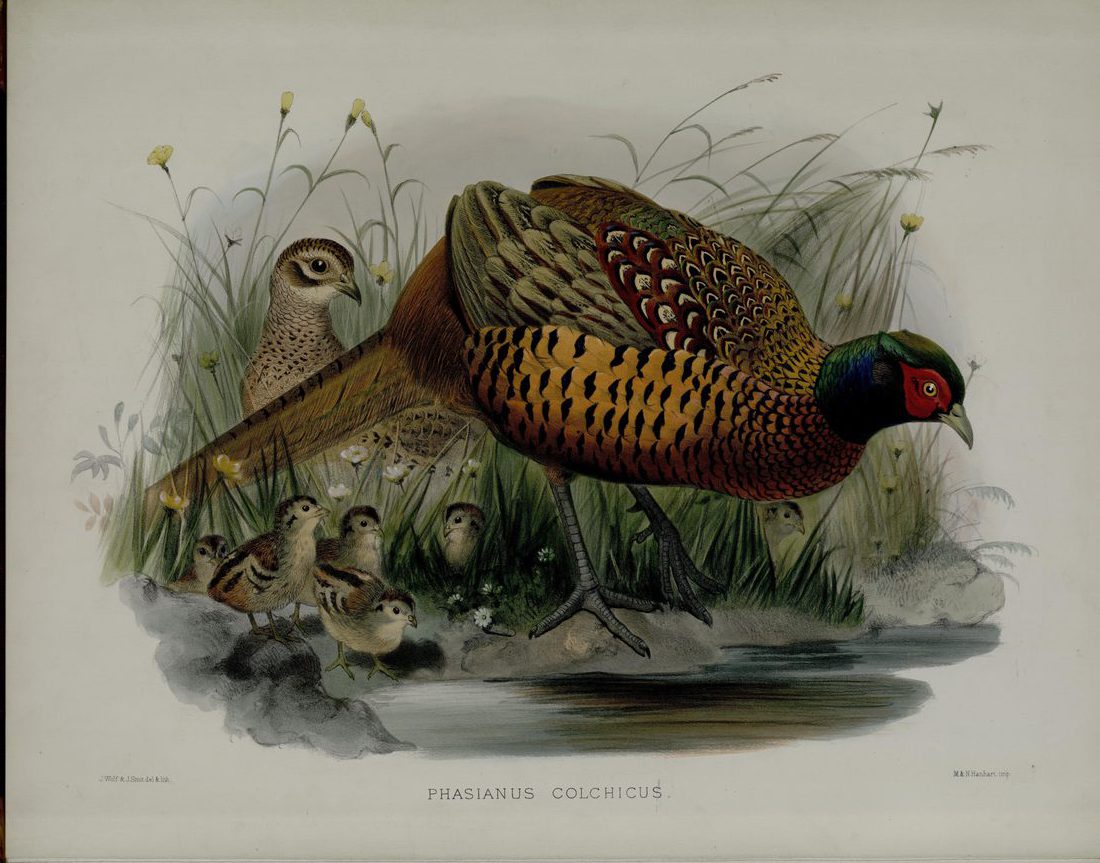
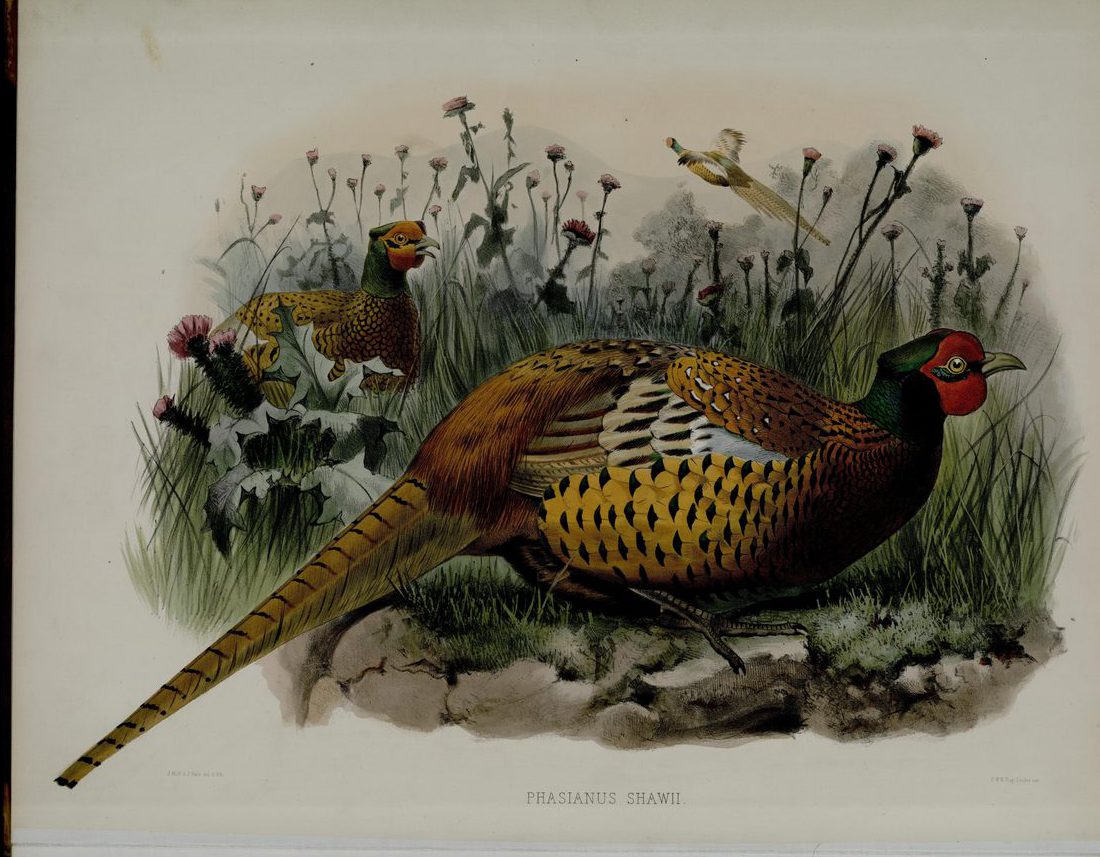
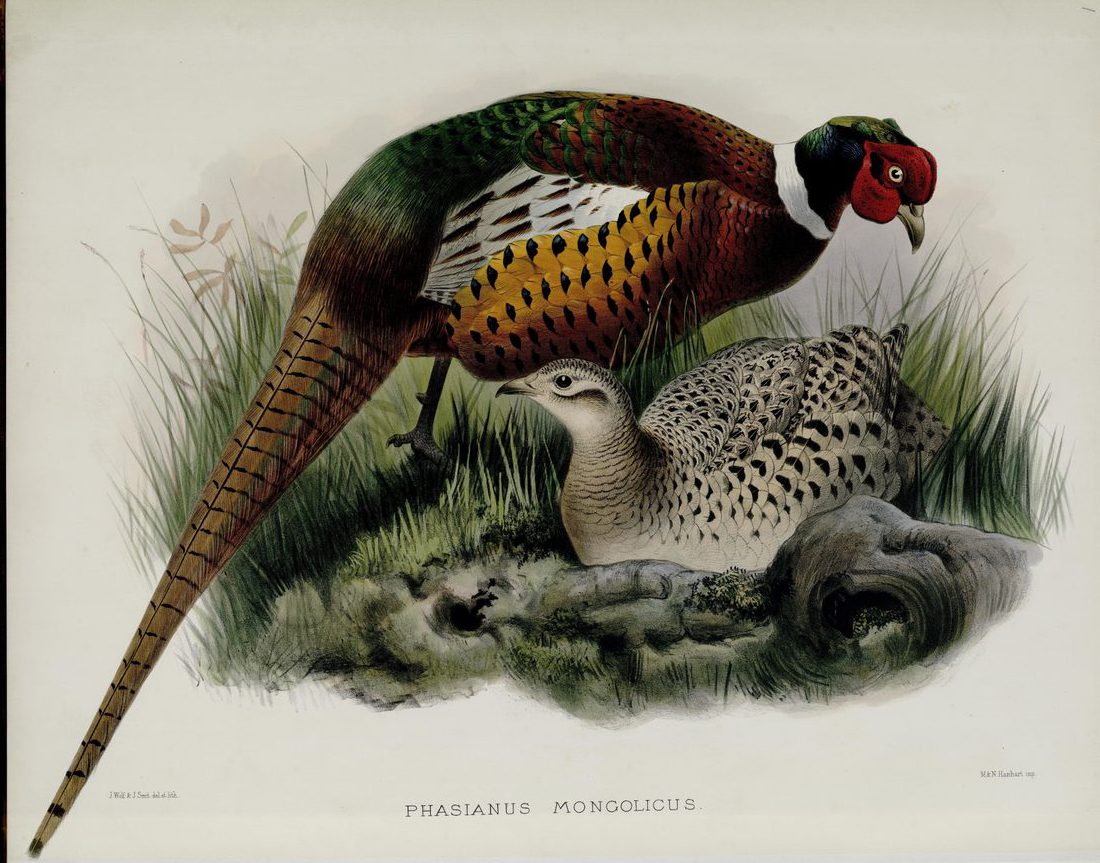
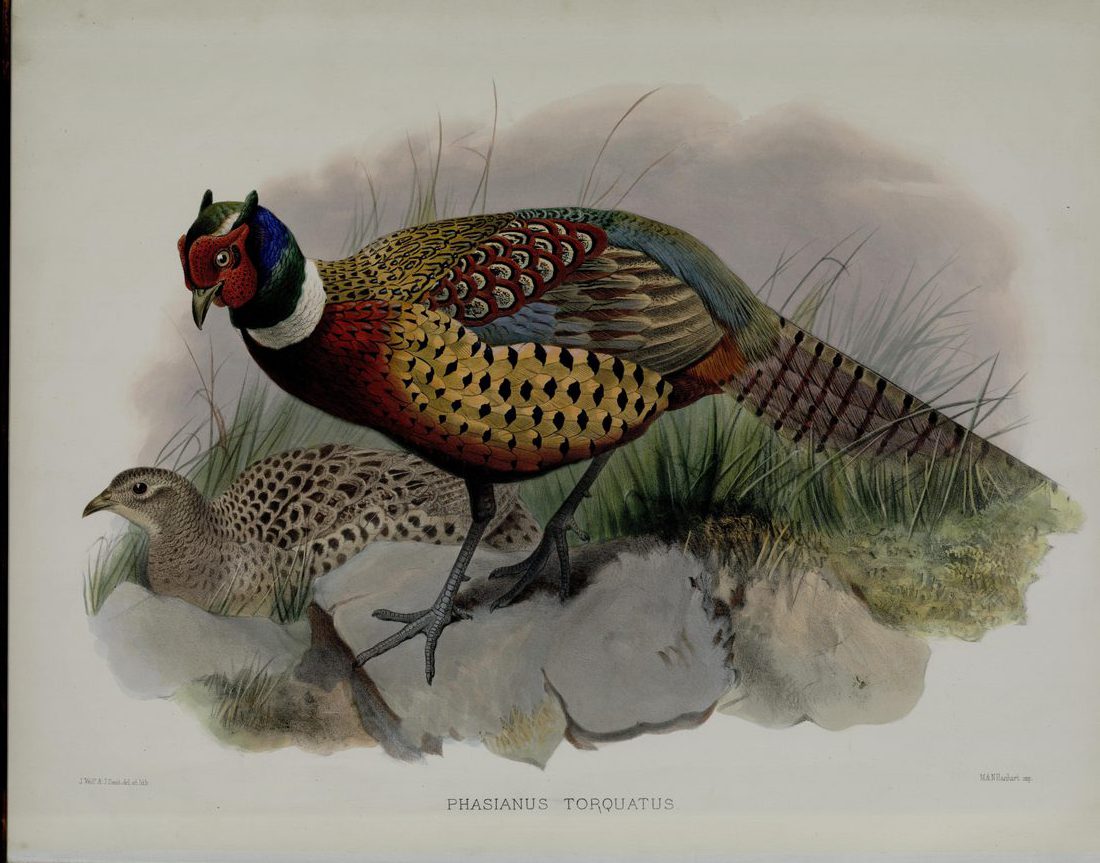
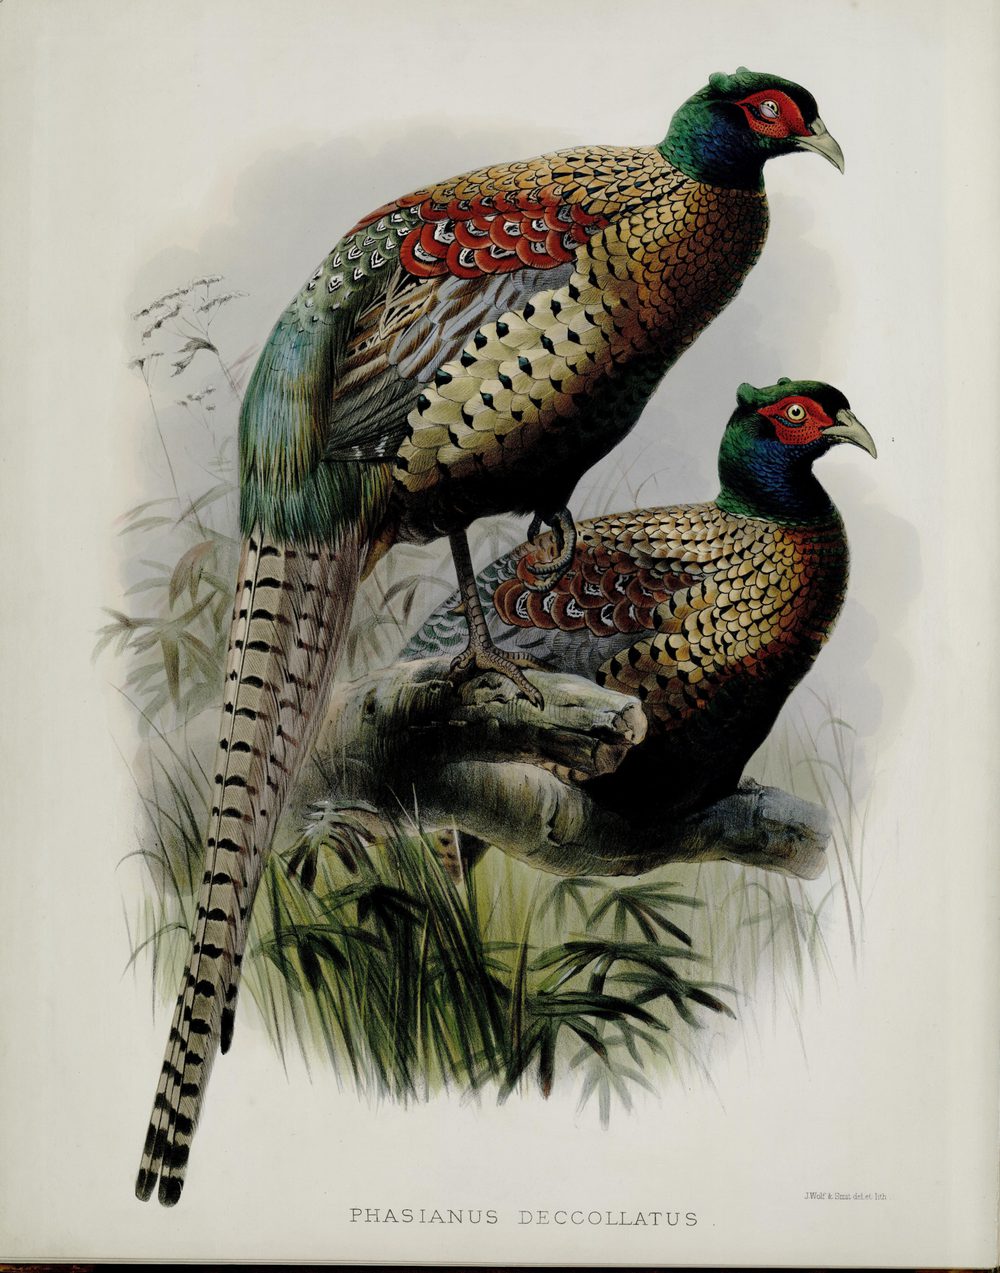
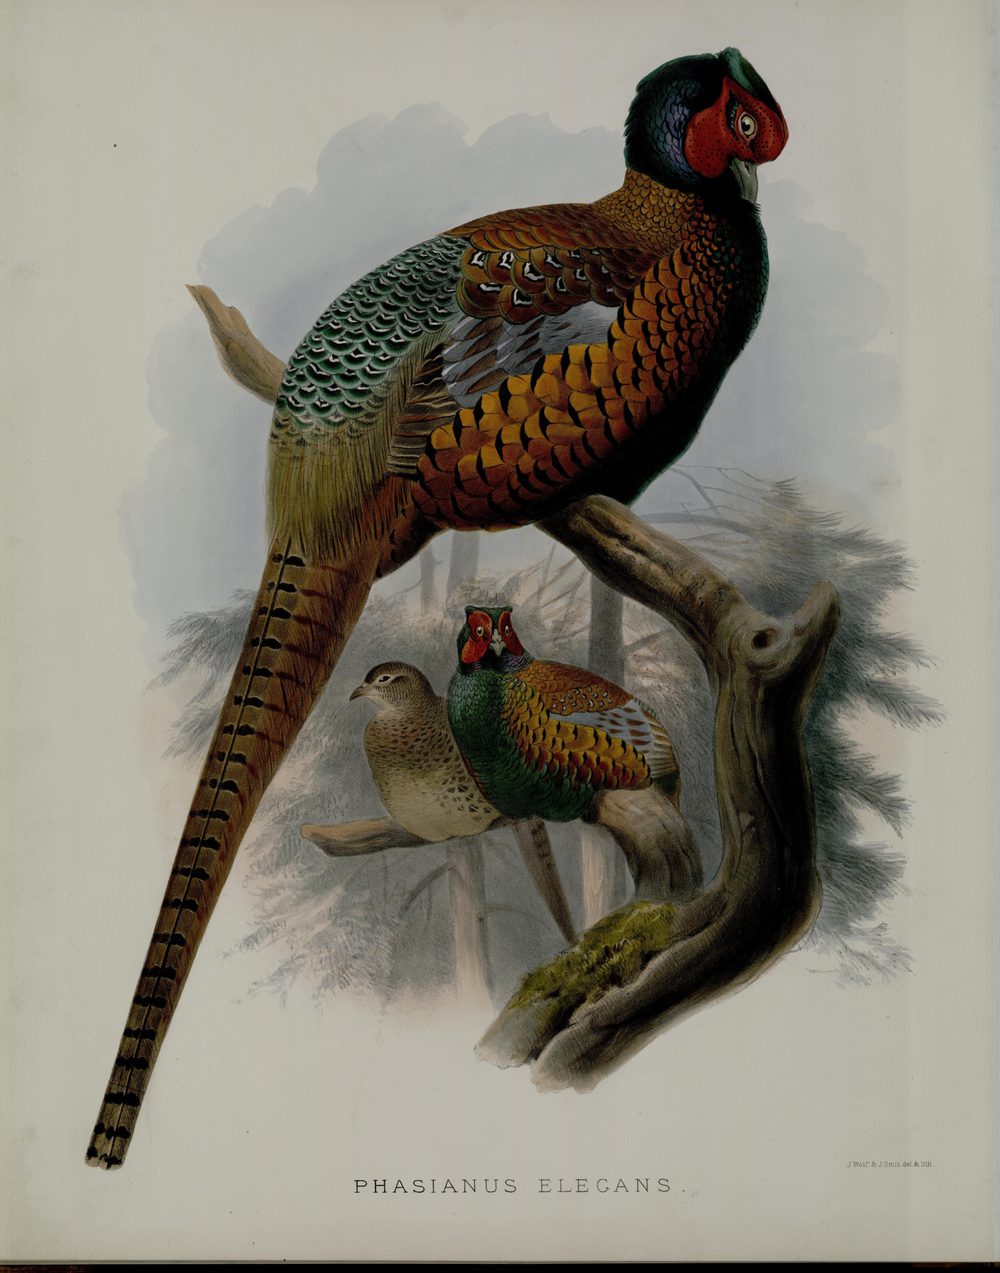


 1 día

 5 días
 7 días
 10 días
 15 días
 21 días
 30 días
 45 días

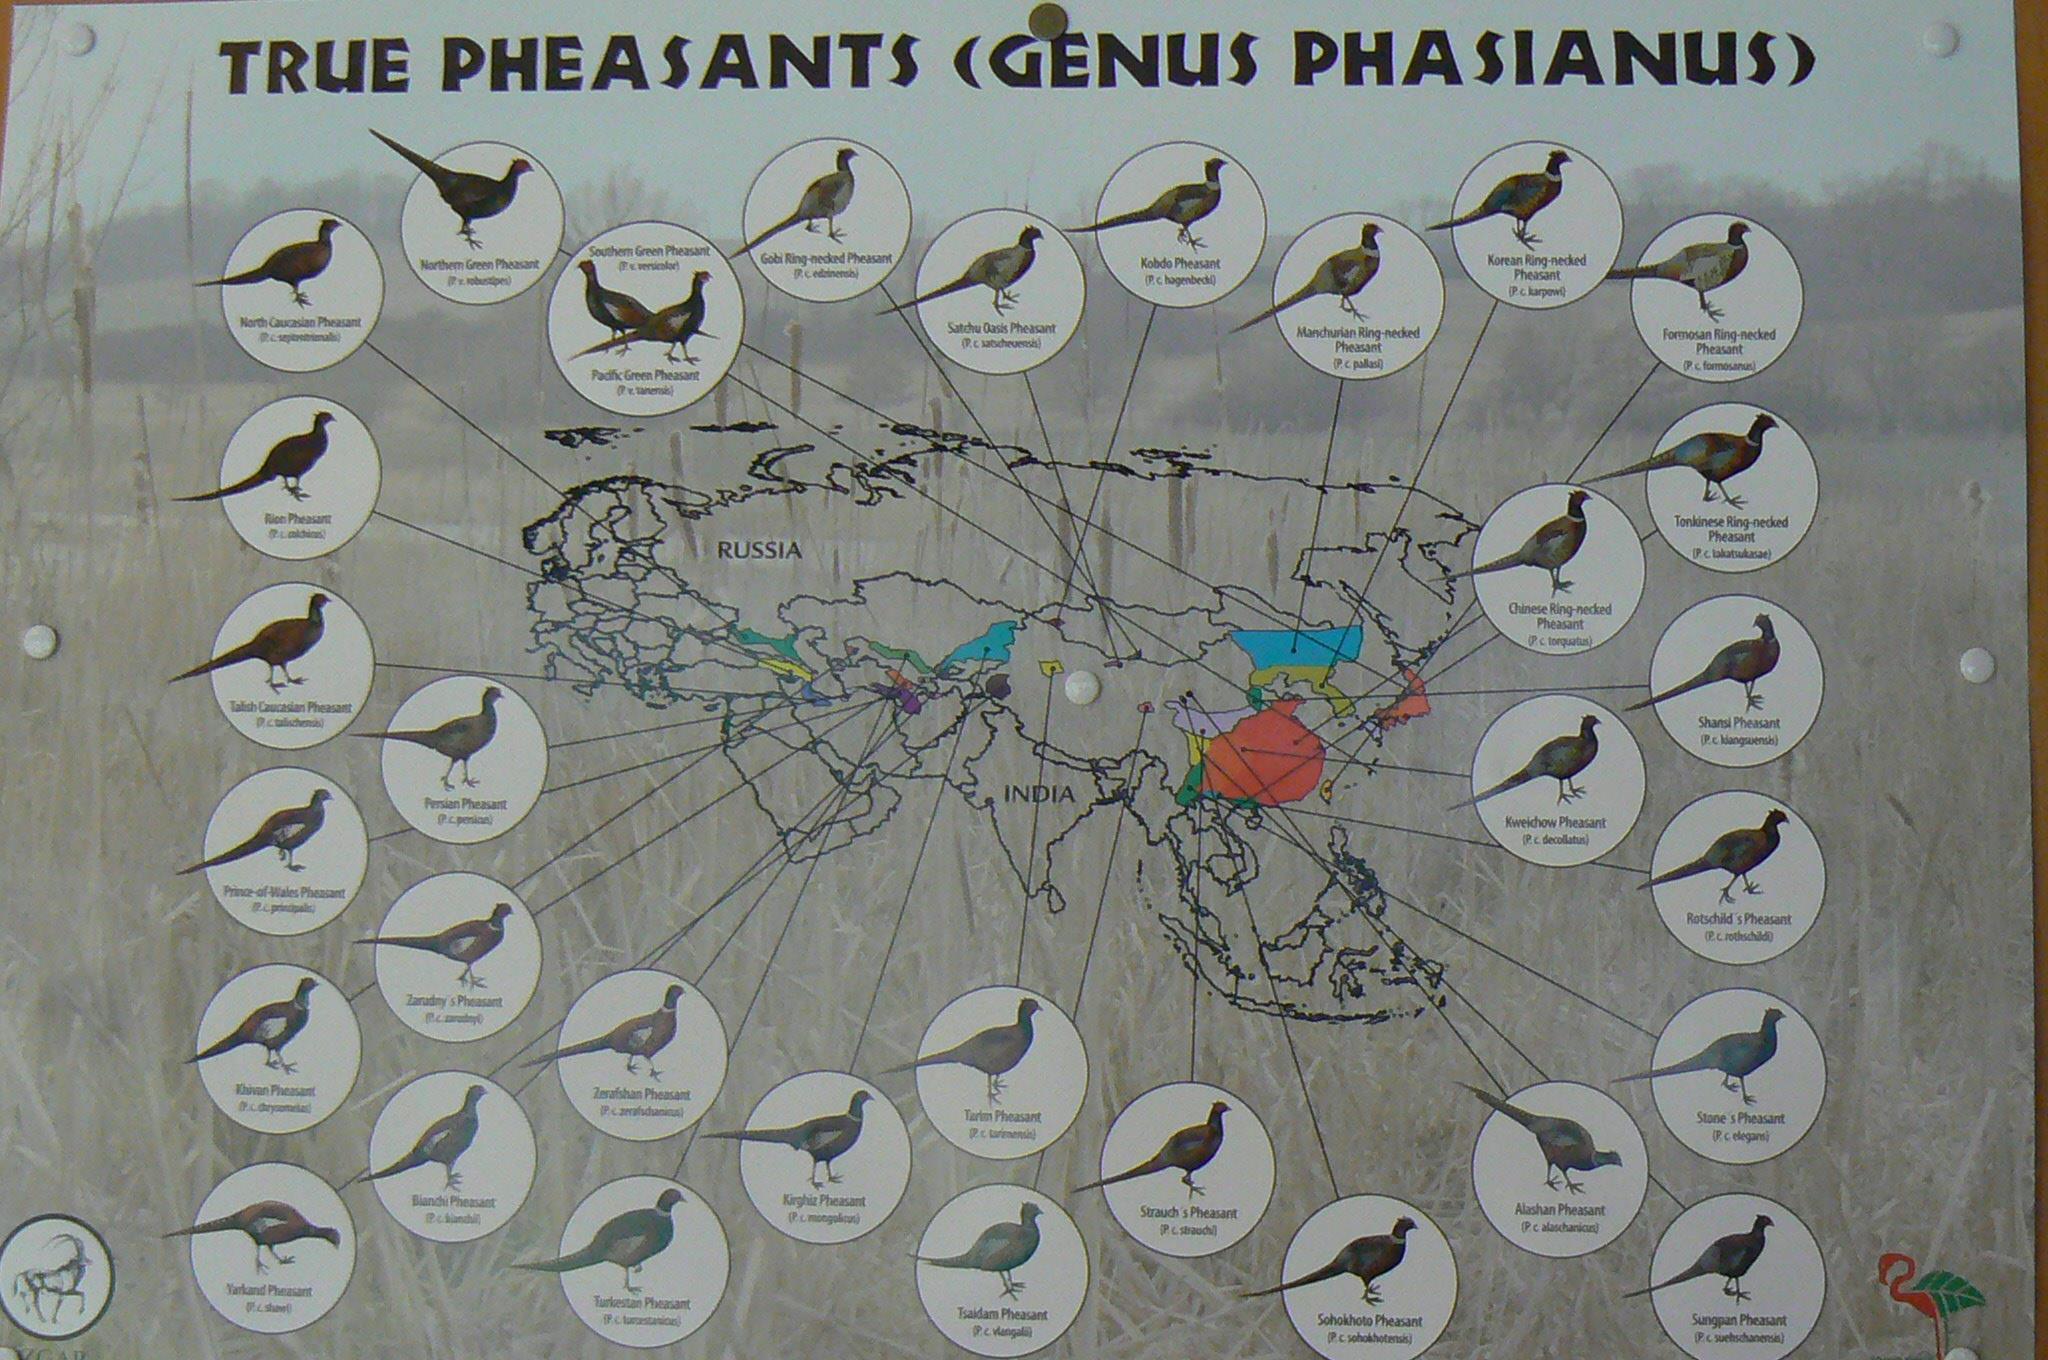
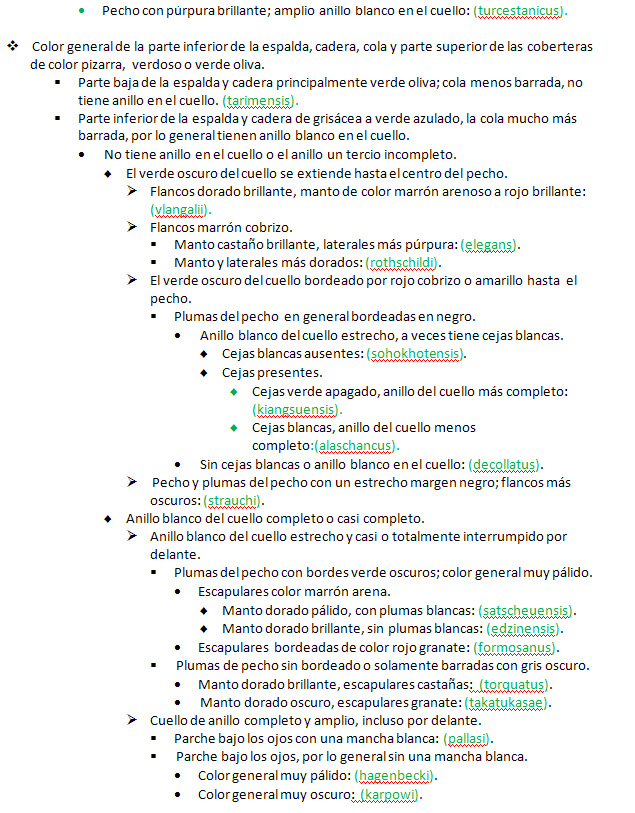


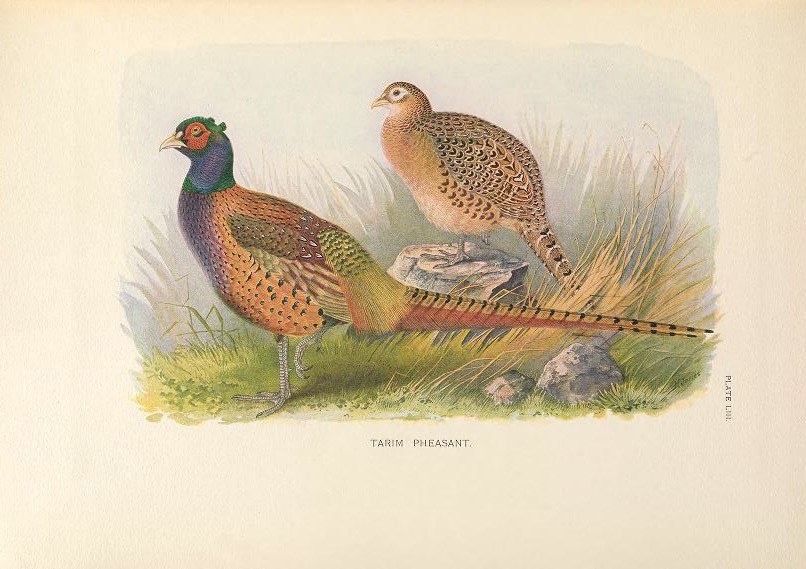
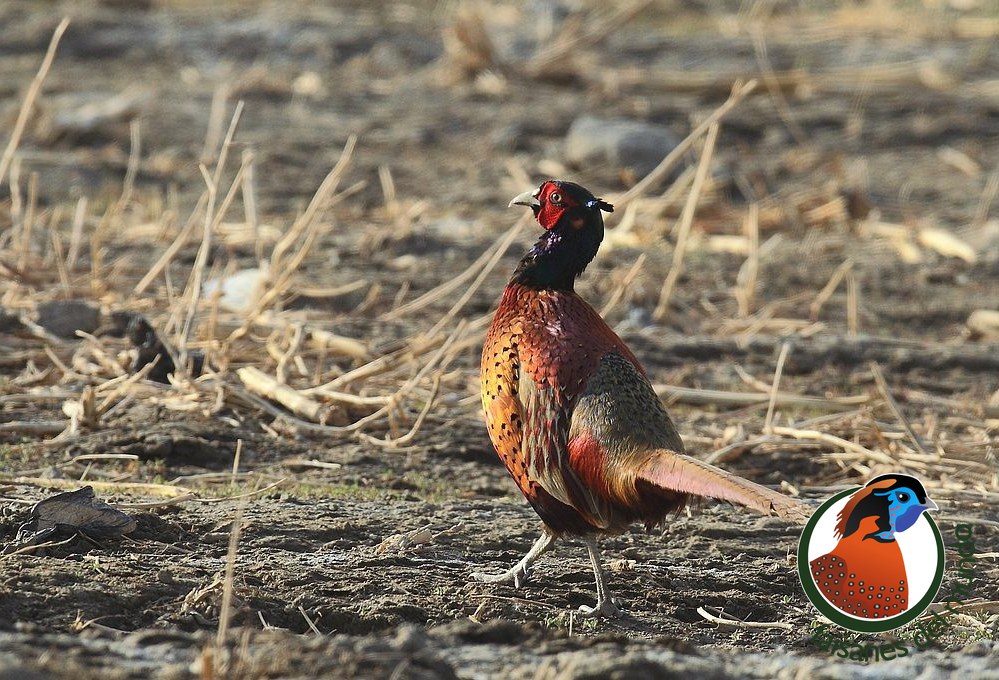
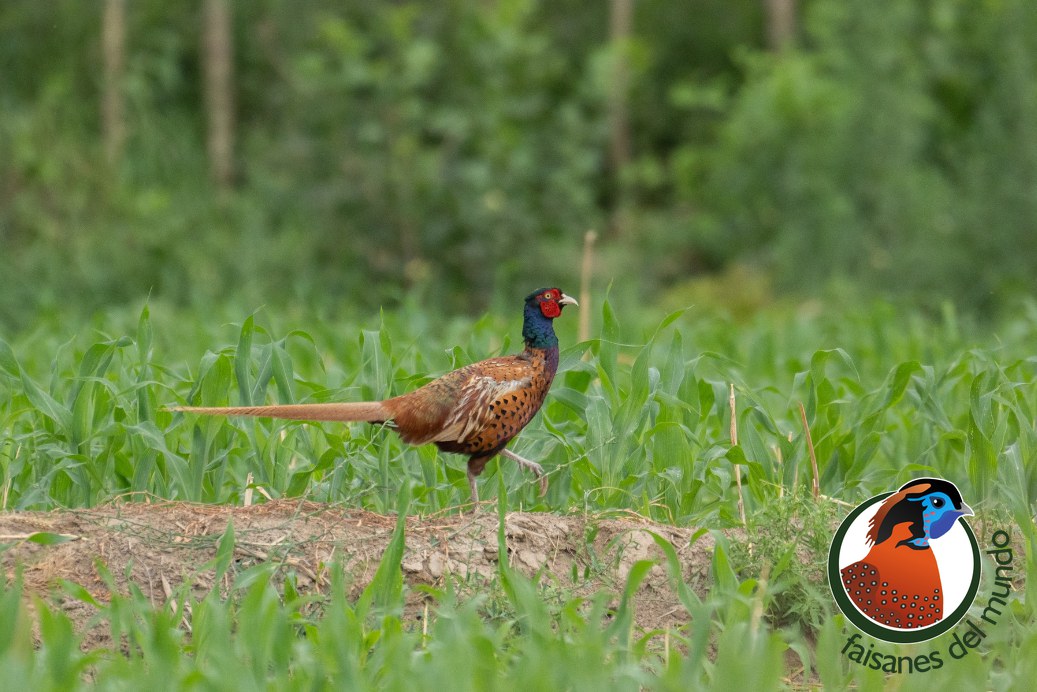


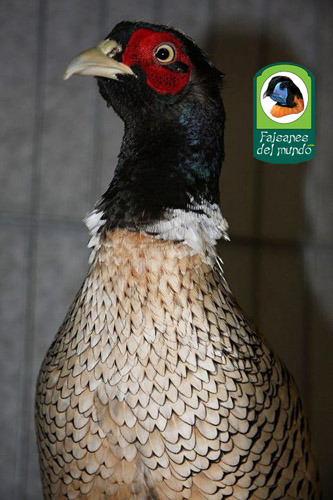


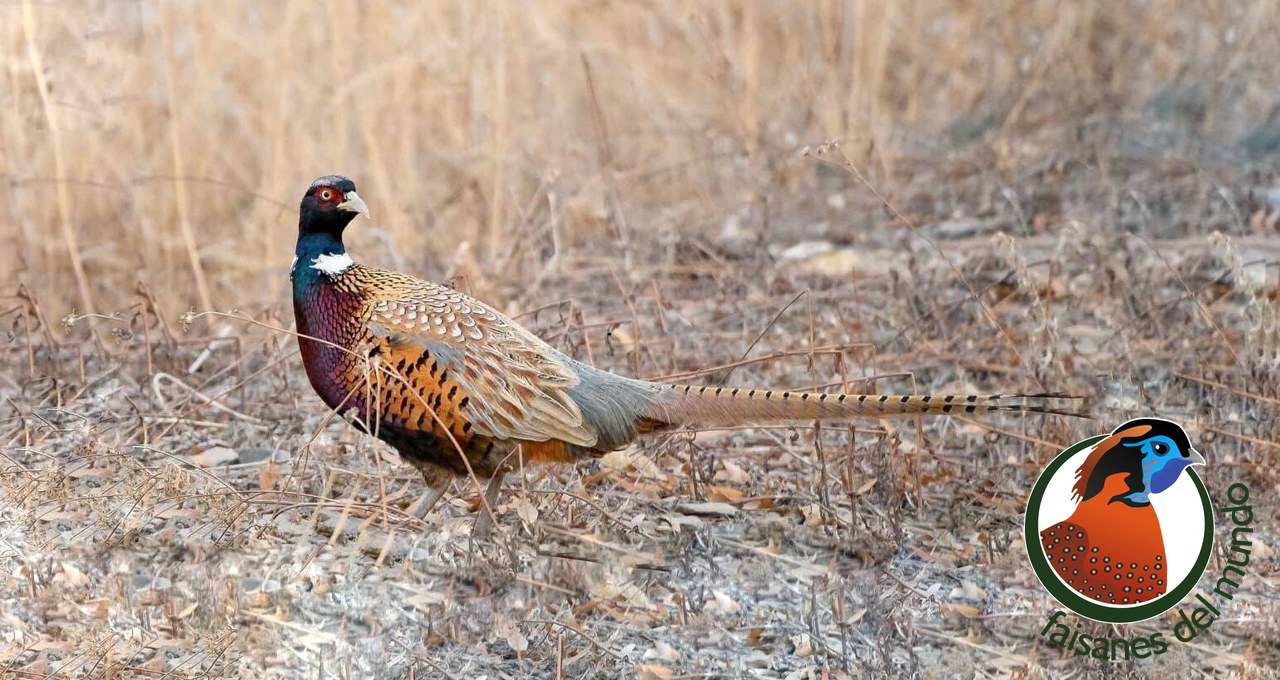
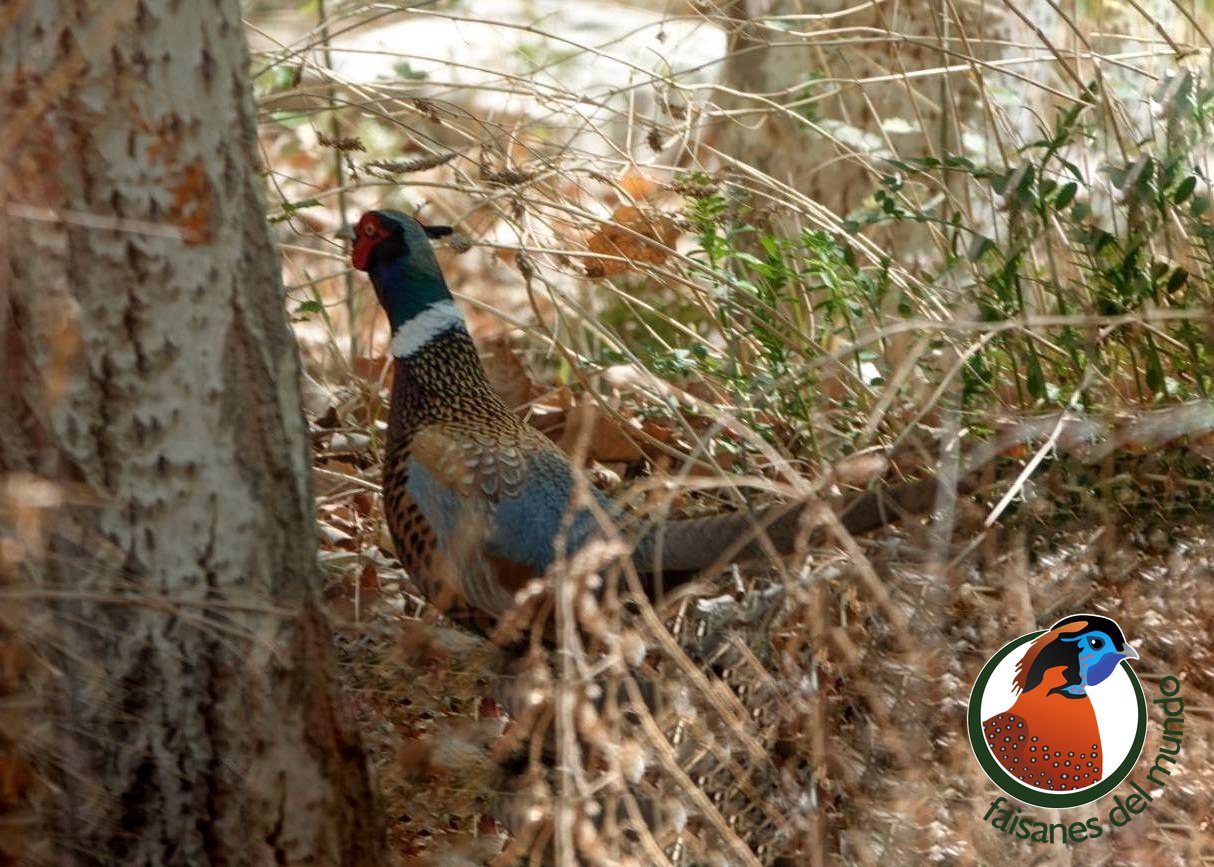
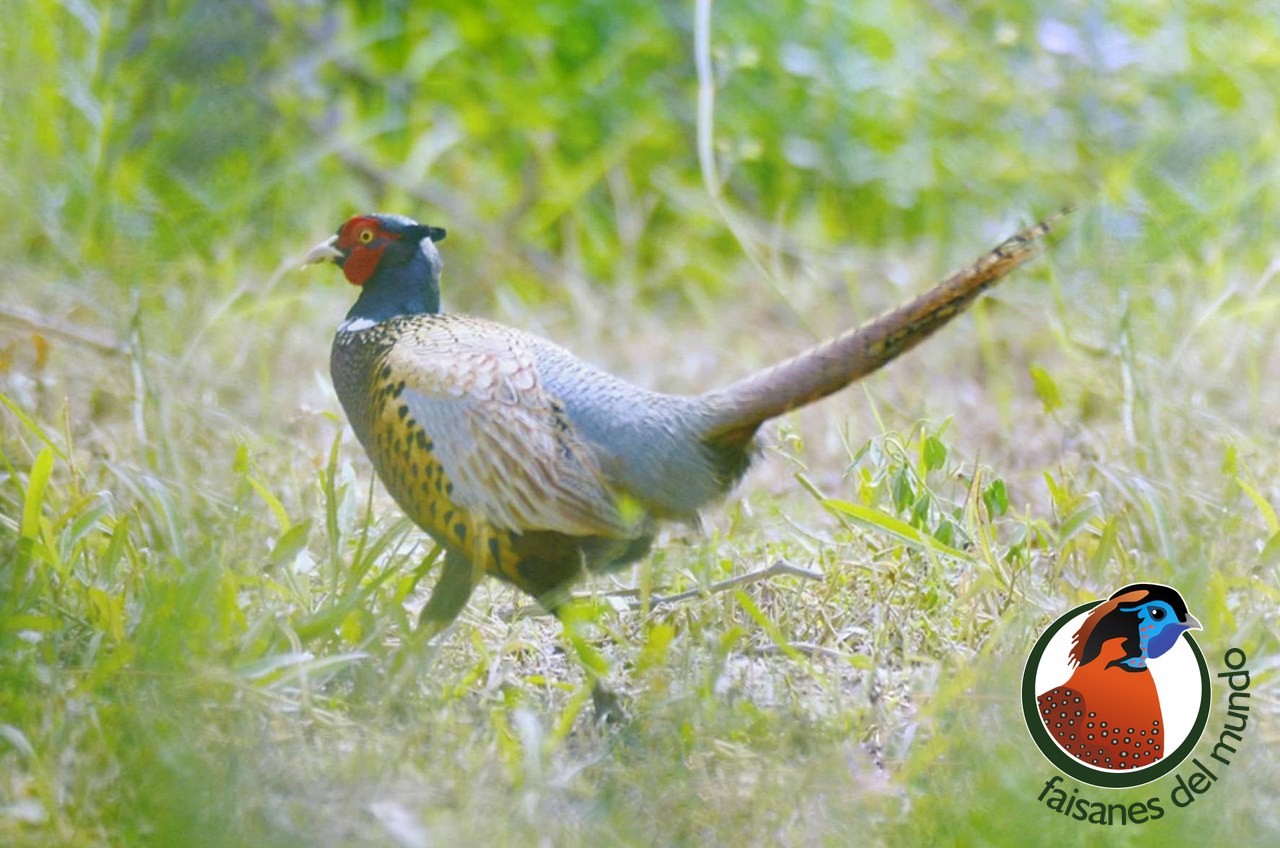


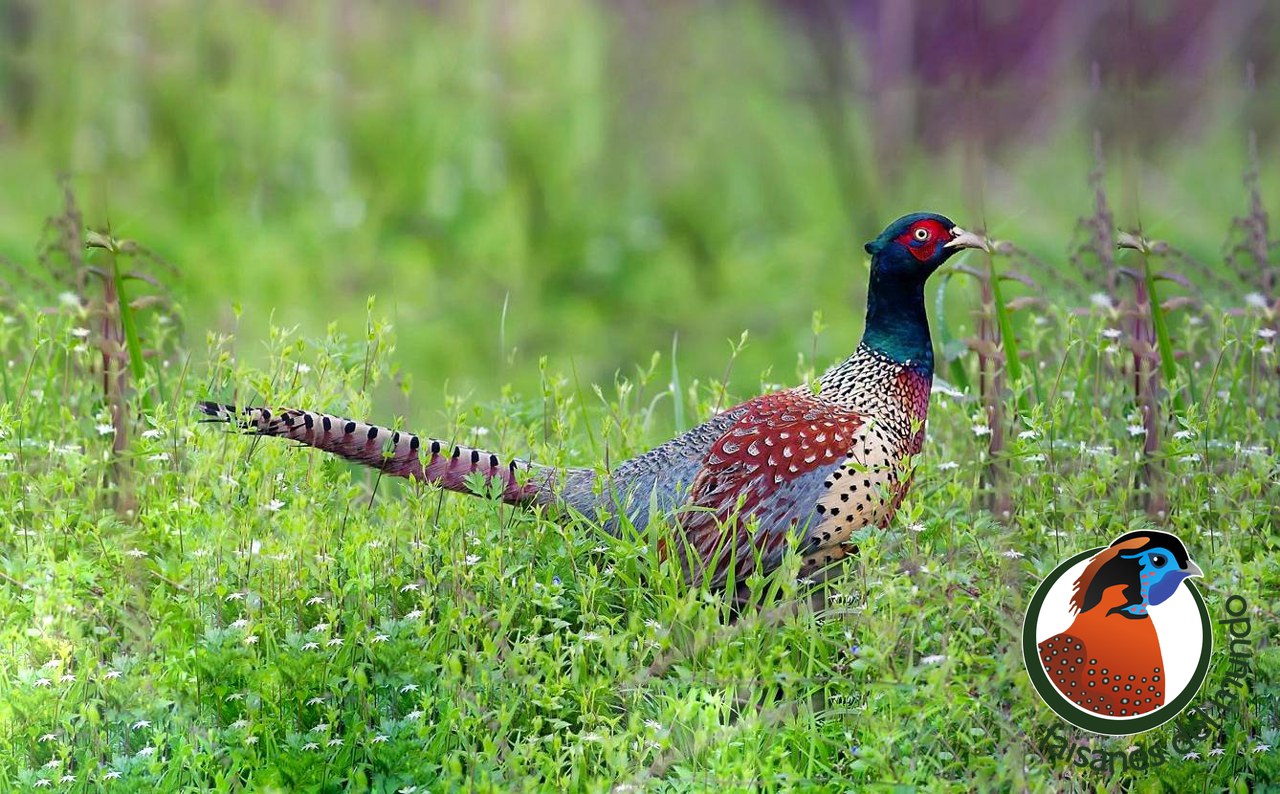
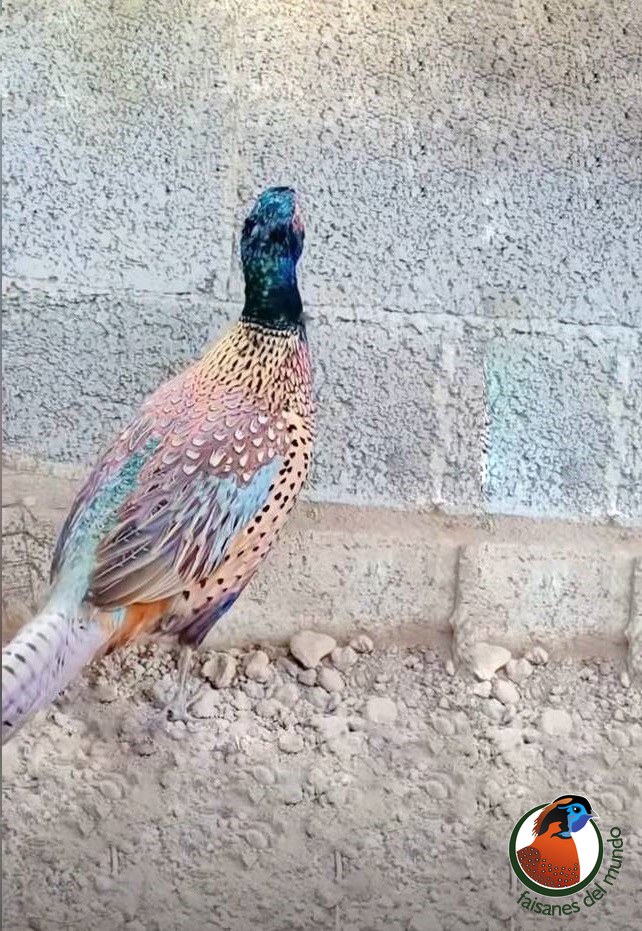



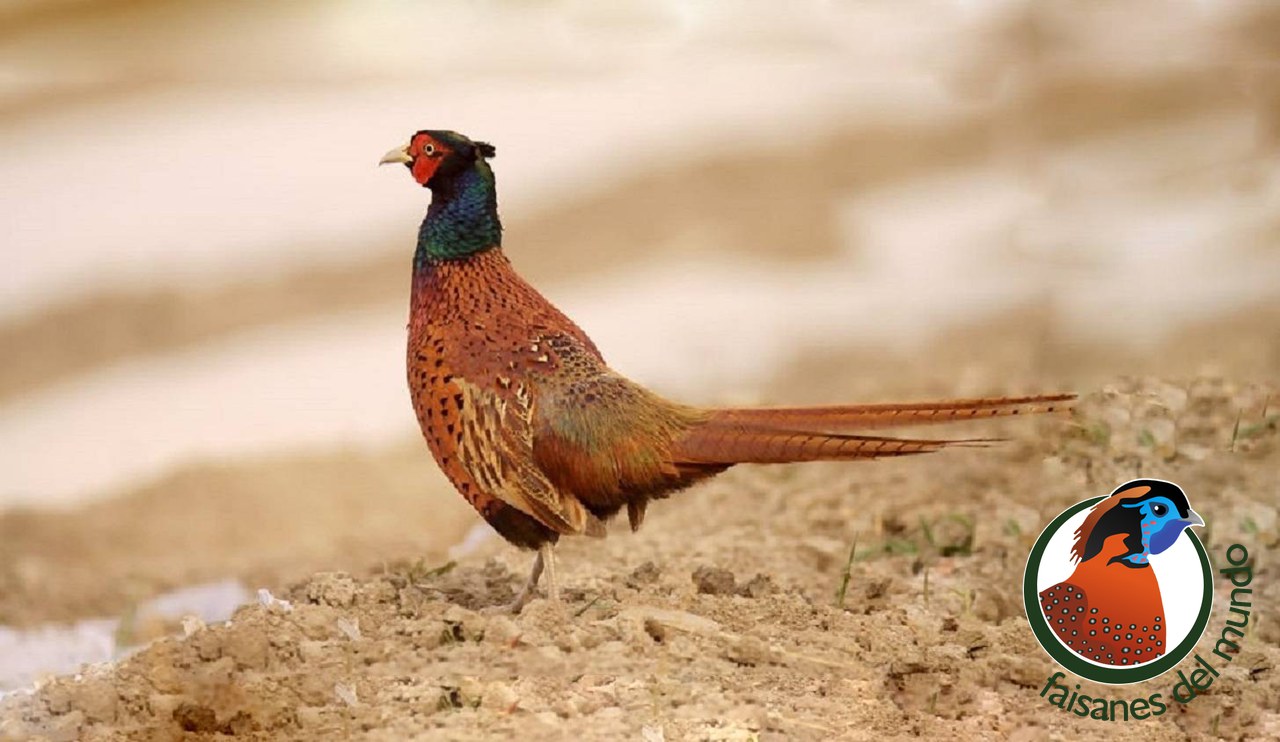
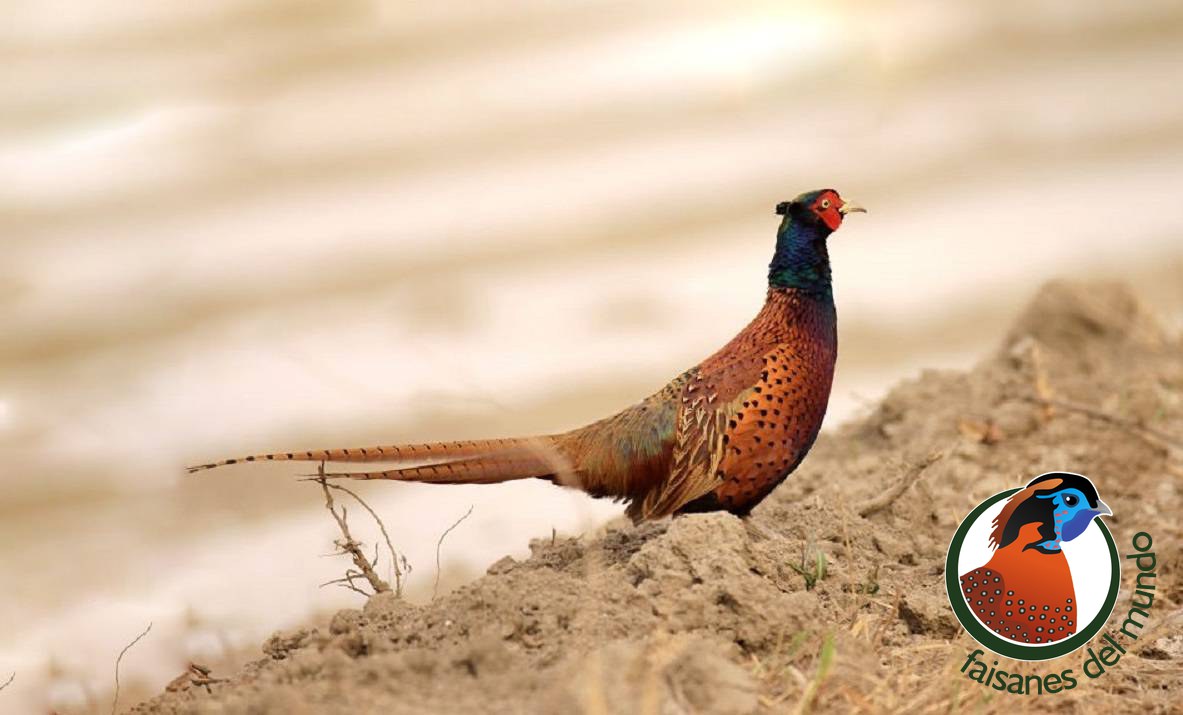
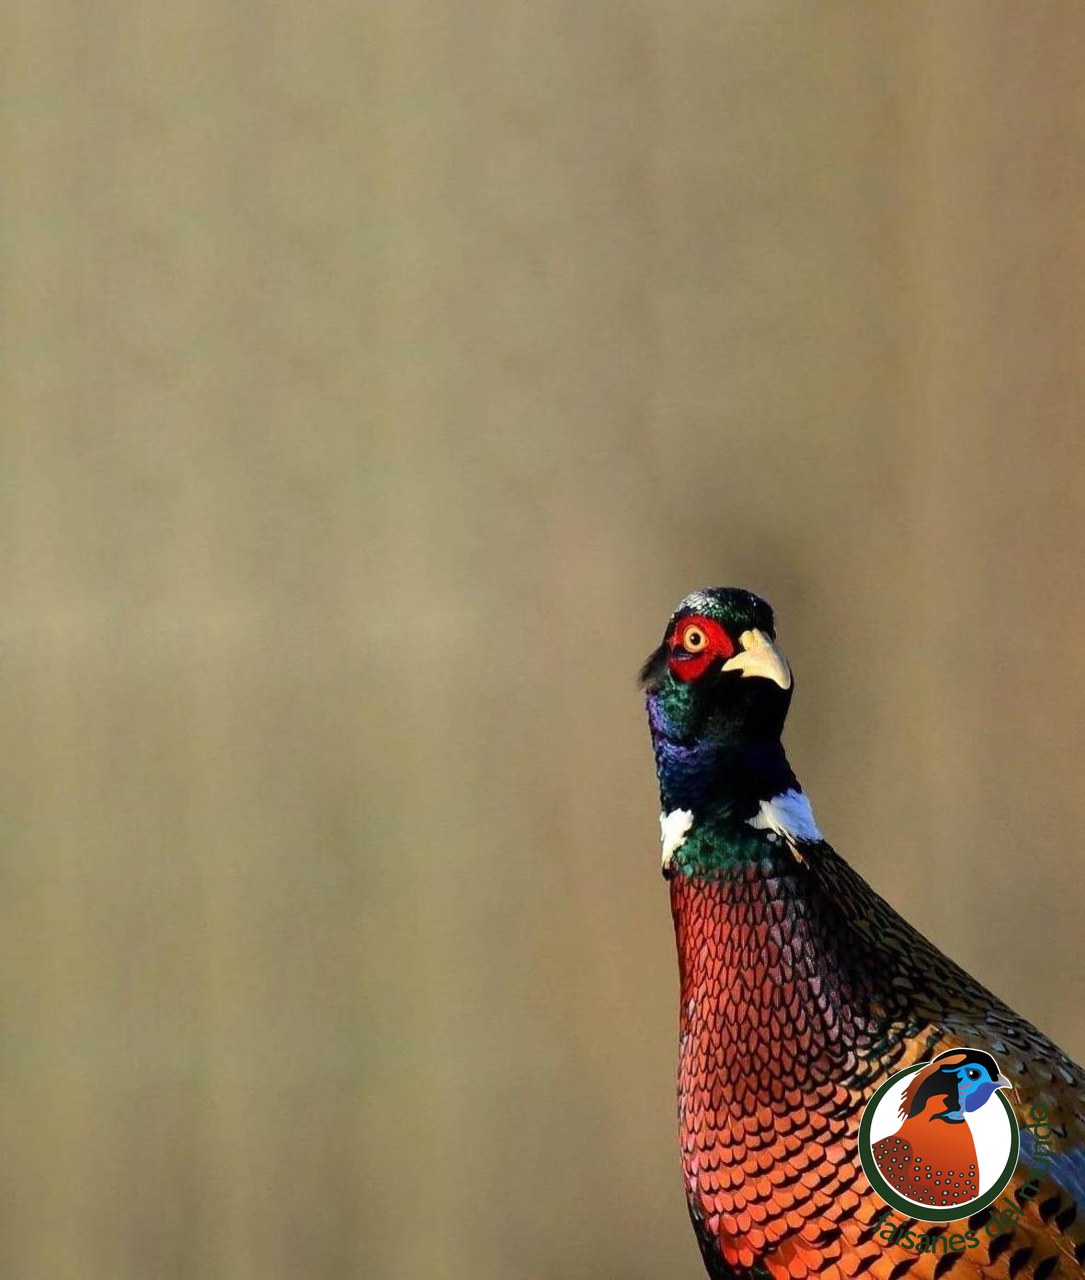

.jpg)
.gif)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)

.jpg)


.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)
.jpg)


.jpg)
.jpg)
.jpg)
.jpg)
.JPG)


