Polyplectron bicalcaratum (Linnaeus, 1758)LC — Preocupación menor
Es el faisán pavo más común en la avicultura. Descrito inicialmente como «pavo bicalcaratus», pronto fue clasificado en el género Polyplectron. El nombre bicalcaratum procede de «bi» (2) y «calcar» (espolones). Su denominación chinquis deriva del chino «tshinquis» o «Chin-tchienkhi», aunque su verdadero nombre en chino es «hui-kongquezhi».
🇪🇸 Faisán Pavo gris o chinquis🇬🇧 Grey Peacock-pheasant🇫🇷 éperonnier de Chinquis🇩🇪 Indochina-Pfaufasan🇮🇹 Speroniere chinquis🇵🇹 Faisão-pavão-cinzento
El faisán pavo gris o chinquis (Polyplectron bicalcaratum) es una especie de la familia Phasianidae propia del Sudeste asiático y catalogada por la UICN como de preocupación menor. Es el faisán pavo más frecuente en la avicultura. (BirdLife DataZone, 2024; Hernández García, 2014; Roles, 1976)
Es un faisán pavo de plumaje gris pardo finamente moteado de blanco o de ante, con ocelos de verde y violeta azulado en el manto, las alas y la cola. El macho lleva una cresta de plumas finas que, al erguirse, cae hacia delante sobre el pico, una gorguera en la nuca, la garganta blanca, la piel desnuda de la cara de amarillo pálido a rosado y el iris blanquecino o gris pálido; la hembra, más pequeña, más oscura y de ocelos pequeños y negruzcos, carece de espolones (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). El macho mide 56–76 cm y la hembra, 48–55 cm; los pesos publicados van de unos 500 a 910 g en el macho y de unos 400 a 500 g en la hembra (Beebe, 1922; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Su historia científica empieza con dos machos vivos que llegaron a Londres hacia 1745 y que George Edwards dibujó; Linneo los bautizó en 1758 como Pavo bicalcaratus y Temminck creó para ellos el género Polyplectron en 1813 (según la taxonomía de esta guía, Beebe, Delacour y Johnsgard) (Avibase; Beebe, 1922; Delacour, 1977). Buffon dio a esta ave el nombre de «chinquis» en 1771, que Howman y el libro del autor siguen usando en la avicultura (Beebe, 1922; Buffon, 1771; Hernández García, 2014; Howman, 1993). En cautividad se mantienen desde mediados del siglo XIX (machos desde 1857, parejas desde 1863 o 1864) y han criado con regularidad desde 1863–1866 (Delacour, 1977; Roles, 1976).
Vive en bosques húmedos de colinas y de tierras bajas, sobre todo densos y con sotobosque de bambú, desde el nivel del mar hasta unos 1.400–2.000 m según la fuente, en nueve países: la India (nordeste), Bután, Bangladés, Myanmar, China (suroeste), Tailandia, Laos, Vietnam y, según BirdLife, Camboya (BirdLife DataZone, 2024; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). BirdLife calcula una extensión de presencia de 2.590.000 km² (BirdLife DataZone, 2024).
Figura como de preocupación menor (LC) desde 2010 en las evaluaciones de BirdLife, la última de 2024, con una población que no se ha cuantificado y una tendencia que se sospecha decreciente por la pérdida de hábitat y, localmente, la caza (BirdLife DataZone, 2024). Está en el Apéndice II de la CITES (BirdLife DataZone, 2024; Howman, 1993; WII, 2007). La guía original reconoce cuatro subespecies (bicalcaratum, bakeri, bailyi y ghigii), pero hoy BOW y la lista del IOC la tratan como monotípica, y el faisán pavo de Hainan, antes subespecie, es una especie aparte con su propia ficha (Avibase; BOW, 2020; Hernández García, 2014; Wikipedia).
Un ave dibujada en Londres en 1745, un nombre que viene del chino y una familia de formas geográficas cuyo número no se pone de acuerdo.
El faisán pavo gris es la especie de Polyplectron de mayor área, la más variable y la más conocida en libertad y en cautividad; es la especie sobre la que se fundó el género, y su relación con el faisán pavo de Germain y con el de Hainan es el asunto que más ha movido su sistemática (Beebe, 1922; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Posición taxonómica
Rango
Taxón
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Género
Polyplectron Temminck, 1813
Especie
Polyplectron bicalcaratum (Linnaeus, 1758)
Subespecies
cuatro en la guía original; véase el capítulo de subespecies
El autor va entre paréntesis porque Linneo describió la especie en otro género, Pavo: Pavo bicalcaratus, en la 10.ª edición del Systema Naturae (1758, p. 156), con «China» como localidad tipo, que Lowe restringió después a Thoungyah, en Birmania (Avibase; Beebe, 1922; del Hoyo et al., 1994). Beebe incluye el género en la subfamilia Argusianinae, y el criadero Chintaguay la mantiene (Beebe, 1922; del Campo, 2006). Delacour da como especie tipo del género, por monotipia, Polyplectron chinquis Temminck, equivalente a Pavo bicalcaratus Linneo (Delacour, 1977).
Delacour reconocía seis especies de Polyplectron, Johnsgard siete y Madge y McGowan ocho; el libro del autor, en su lista del volumen I, recoge siete especies, con el faisán pavo gris dividido en cinco subespecies, una de ellas la de Hainan (katsumatae), que lleva una nota al pie («algunos autores lo consideran una especie separada»); en el volumen II, el de Hainan tiene ficha propia (Delacour, 1977; Hernández García, 2013; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). En esta web, como en las listas actuales, el faisán pavo de Hainan es una especie aparte y tiene su propia ficha (Avibase; BirdLife DataZone, 2024; Hernández García, 2014; Wikipedia).
Origen del nombre
La ficha original lo explica así: descrito inicialmente como «pavo bicalcaratus», pronto fue clasificado en el género Polyplectron; el nombre bicalcaratum procede de «bi» (2) y «calcar» (espolones); su denominación chinquis deriva del chino «tshinquis» o «Chin-tchienkhi», aunque su verdadero nombre en chino es «hui-kongquezhi». (Hernández García, 2014)
El epíteto bicalcaratum viene del latín bi-, «dos», y calcar, «espuela», es decir, «de dos espolones», según Jobling y Wikipedia; y el nombre del género, Polyplectron, del griego polus, «muchos», y plektron, «espolón de gallo» (Jobling, 2010; Wikipedia). Es el origen de «espolonero», el nombre español de estas aves; el criadero Chintaguay explica que se les llama así porque tienen dos, e incluso tres, pares de espolones, y que se llaman «faisán pavo» porque en el cortejo abren la cola en abanico, de forma parecida a un pavo real (del Campo, 2006). Johnsgard dice que los machos del género llevan de uno a tres espolones cortos (Johnsgard, 1986); sobre el número en esta especie, véase el capítulo de morfología.
Jobling dice que la etimología de chinquis es «no descubierta» y recoge que es el «Chinquis» de Buffon (1770–1783); Beebe afirma que chinquis viene del nombre chino Chin-tchien-khi, y Johnsgard da tshinquis y chin-tchien-khi como las voces chinas de las que derivaría (Beebe, 1922; Jobling, 2010; Johnsgard, 1986). La propia página de Buffon, que se reproduce más abajo, dice que conserva el nombre «Chinquis», formado a partir del nombre chino chin-tchien-khi(Buffon, 1771). La página de GBP escribe que chinquis es una deformación del chino «tshinquis», aunque el nombre local sea otro (Forni, GBP). El nombre chino actual que da Avibase es 灰孔雀雉 (huī kǒng-què zhì, «faisán pavo gris»), que coincide con el «hui-kongquezhi» de la ficha original (Avibase; Hernández García, 2014).
Nombres vernáculos
Idioma
Nombre
Comentario
Español
faisán pavo gris; chinquis; faisán pavo (espolonero) gris o chinquis; espolonero gris o común; espolonero chinquis; faisán chinqui; pavo-faisán gris
el primero y el segundo, de la ficha original; el tercero, del libro del autor; el cuarto y el quinto, de Avibase (el cuarto, también del criadero Chintaguay); el sexto, del criadero Chintaguay; el último, de sus tablas (Avibase; del Campo, 2006; Hernández García, 2014)
asamés: munowwar, deyodahuk, deoderik; asamés de Cachar: dao dip, dao dai dip, mejoor; garo (Meghalaya): deodurug, deo-dirrik; naga: burruninrui; birmano: doungkulla (Arakán y Pegú), daung-kula (norte de Birmania y Yunnan); tenasserim: shuay dong; kachin: wo-graw
nombres que recogen el WII (2007) y Beebe (1922; con grafías antiguas) (Beebe, 1922; WII, 2007)
Avibase registra más de treinta nombres en otros idiomas; BOW cuenta 33 nombres (Avibase; BOW, 2020).
Historia nomenclatural
El faisán pavo gris fue el primero de los faisanes pavo que conoció Europa, y tiene por ello una sinonimia larga: los nombres anteriores a Linneo, el nombre de Linneo, las numerosas combinaciones y los nombres que se aplicaron a aves cautivas. La cronología resume lo que dicen las fuentes (Avibase; Beebe, 1922; Delacour, 1977; Johnsgard, 1986).
George Edwards dibuja, en 1745, dos machos vivos que poseía el médico londinense James Monro (Munro), y los describe en 1747 como «Peacock Pheasant from China» (láminas 67 y 69 de la parte II de su Natural History); el ave pasó después a lord Orford (Beebe, 1922; Delacour, 1977; Wikipedia).
Linneo describe Pavo bicalcaratus (Systema Naturae, 10.ª ed., p. 156), con hábitat «China», a partir de las láminas de Edwards (Avibase; Beebe, 1922; Wikipedia).
Brisson trata el ave como «Le Paon de la Chine» y «Le Paon du Tibet» en su Ornithologie (1760); Linneo cita a Brisson en la 12.ª edición (1766), con lo que deja claro de qué ave se trata (Beebe, 1922).
Buffon la llama «Le Chinquis», nombre que da lugar a una larga confusión (Beebe, 1922; Buffon, 1771).
Müller da valor científico al nombre al describir Pavo chinquis(Beebe, 1922).
Latham la llama «Iris Peacock» (1783) y Gmelin, Pavo tibetanus (1788), que tiene seguidores hasta el siglo XX (Beebe, 1922).
Temminck funda el género Polyplectron (taxonomía de esta guía, Beebe, Delacour y Johnsgard, en su Histoire naturelle des pigeons et des gallinacés, t. 2, p. 363) sobre Polyplectron chinquis(Avibase; Beebe, 1922; Delacour, 1977).
Gray publica los nombres atelospilum, cyclospilum y enicospilum (1867), con localidades en los montes de Laos y el nordeste de la India, y Hume nombra Polyplectron intermedius (1873, 1877) para el país Lushai; Beebe incluye todos en la sinonimia (Beebe, 1922).
Hartert advierte de que el ave que describió Linneo era la indochina y no la de la península malaya, error que, según Beebe, se había mantenido durante 144 años (Beebe, 1922).
Beebe publica su monografía (vol. IV): trata como subespecies del gris a germaini y reconoce como especie propia el faisán pavo de Hainan (Beebe, 1922).
Delacour y Jabouille describen ghigii (Bulletin of the British Ornithologists’ Club 45: 30; localidad tipo, Mailanh, en Annam) (Avibase; Delacour, 1977).
Lowe describe bakeri y bailyi (Ibis, p. 477 y p. 482), y restringe la localidad tipo de la especie a Thoungyah, en Birmania (Avibase; Delacour, 1977; Johnsgard, 1986).
Madge y McGowan reconocen cuatro subespecies y tratan katsumatae como especie aparte (Madge y McGowan, 2002).
El IOC trata el faisán pavo de Hainan como especie independiente, según el libro del autor (Hernández García, 2014).
BOW (2020) describe la especie como monotípica y BirdLife (2024) no lista subespecies; la UICN la mantiene en preocupación menor (BirdLife DataZone, 2024; BOW, 2020).
Avibase, en su tabla de sinonimia ampliada, registra como sinónimos más modernos Polyplectron chinquis Temminck, 1813, y, entre los de las subespecies, Polyplectron bicalcaratum bakeri (Lowe, 1925), P. bicalcaratus bailyi (Lowe, 1925) y Polyplectrum chinquis ghigii (Delacour y Jabouille, 1924) (Avibase).
Posición dentro del género
Delacour dice que el faisán pavo gris es la especie más septentrional del género, que ocupa una gran área, que incluye varias subespecies poco diferentes y que está muy especializada, en direcciones distintas de las de las especies malayas, también elaboradas (Delacour, 1977). Johnsgard cree que esta especie y la de Germain son una forma de transición entre los faisanes pavo más generalizados (el de Sumatra y el de Rothschild) y las formas más especializadas del resto del género; los parientes más próximos del grupo serían, tras ellos, los faisanes pavo malayo y de Borneo (Johnsgard, 1986). El HBW anota que a veces se la ha considerado superespecie con la de Germain (del Hoyo et al., 1994).
Wikipedia resume los datos moleculares de Kimball y colaboradores (2001): el gris pertenece a un clado continental asiático con el de Germain, el de Sumatra y el de Rothschild, cuyos ancestros se separaron en un periodo muy corto, y la especie habría evolucionado en el Sudeste asiático continental, probablemente entre el Plioceno superior y el Pleistoceno inferior, hace entre 3,6 y 1 millones de años; la propia Wikipedia advierte de que los datos moleculares tienen un valor limitado para esta especie, la más variable y extendida, porque no se conoce el origen de los ejemplares analizados, quizá cautivos y de subespecie indeterminable (Wikipedia). El libro del autor, en el volumen II, repite la datación (entre el Plioceno superior y el Pleistoceno medio, hace 5–1 millones de años) (Hernández García, 2014).
Solo se anotan rasgos que dan las fuentes; Madge y McGowan advierten de que los rangos de Germain, Hainan y Malayo no se solapan con el del gris (Madge y McGowan, 2002). La confusión con otros faisanes pavo es solo posible en la península malaya, donde el gris ya no vive (Johnsgard, 1986; Madge y McGowan, 2002).
03
Historia
De dos machos dibujados en Londres en 1745 a los grandes envíos desde Calcuta, las primeras crías en Europa y los primeros estudios de campo en Birmania.
La historia del faisán pavo gris es la de los faisanes pavo en Europa: dos machos vivos que se dibujaron en 1745, un siglo de confusiones de nombres, envíos masivos de aves capturadas con lazos desde Calcuta y colecciones donde siguió siendo, hasta hoy, la especie más frecuente del género. (Beebe, 1922; Delacour, 1977; Hernández García, 2014; Roles, 1976)
Los dos machos de 1745 y la lámina de Edwards
Delacour cuenta que los primeros faisanes pavo conocidos fueron dos machos vivos que llegaron a poder de James Monro, de Londres, y que George Edwards pintó en 1745; pertenecían a esta especie, que no volvió a introducirse hasta 1857 (solo machos) y 1863 (parejas) (Delacour, 1977). Beebe precisa que la lámina 67 de Edwards se dibujó en 1745, que las láminas 67 y 69 de su Natural History (1747) muestran dos ocelos en cada pluma de la cola, prueba de que se trataba del ave indochina y no de la malaya, y que el ave pertenecía al doctor James Monro y pasó después a lord Orford, en cuya casa vivía todavía (Beebe, 1922). Wikipedia añade que Edwards se basó en un ave viva que se regaló a Robert Walpole, primer conde de Orford (Wikipedia).
Edwards escribió que el ave era mayor que el faisán común y que, aunque la llamaba «faisán», no la tenía por de esa clase: las plumas de la cola son planas y redondeadas en la punta, no puntiagudas ni arqueadas, y el ave no arquea la cola al caminar; la comparó con una piel de marta cibelina tachonada de joyas de colores, y destacó que tuviera dos pares de espolones, algo que le parecía más raro y notable que toda su belleza (Beebe, 1922). Green-Armytage recoge, de la misma obra, que era un ave «de color grave» y una de las mayores bellezas de la naturaleza (Green-Armytage, 2002).
Linneo, Brisson y Buffon: un nombre que tardó en asentarse
En la décima edición del Systema Naturae (1758) Linneo incluyó el ave entre los pavos reales, con el nombre Pavo bicalcaratus y «China» como patria, y citó las láminas de Edwards; en la duodécima (1766) añadió a Brisson, que la había tratado en 1760 como «el pavo real de China» y «el pavo real del Tíbet», con una lámina donde se ven los dos ocelos de cada pluma de la cola (Beebe, 1922). En 1771 Buffon la llamó «Le Chinquis», y esto inició una confusión que duró muchos años; cinco años después Müller dio valor científico al nombre con Pavo chinquis y la mayoría de los ornitólogos lo siguieron, aunque el tibetanus de Gmelin (1788) también tuvo defensores (Beebe, 1922). Beebe, por ello, consideró sinónima una enorme masa de literatura; Hartert había advertido en 1902 de que durante 144 años nadie se dio cuenta de que el ave que describió Linneo era la indochina (Beebe, 1922).
La imagen reproduce la página 365 del tomo II de la Histoire naturelle des oiseaux de Buffon, que abre el artículo «Le Chinquis». En ella, Buffon dice que, en la duda de si es un verdadero pavo real, le conserva el nombre «Chinquis», que forma con su nombre chino chin-tchien-khi; que es la décima especie del género de los faisanes de Brisson; que se encuentra en el Tíbet, de donde Brisson tomó pie para llamarlo «pavo real del Tíbet»; que su tamaño es el de una pintada; que tiene el iris amarillo, el pico ceniciento y los pies grises, y el fondo del plumaje ceniciento con líneas negras y puntos blancos, y que el adorno principal son unas manchas redondas de azul brillante, que cambian a violeta y a oro, repartidas sobre las plumas del dorso (Buffon, 1771).
De 1857 a 1866: parejas, primeras crías y los primeros boletines de aclimatación
Según Delacour, los machos llegaron en 1857 y las parejas en 1863 (en otro pasaje, en 1864); el Jardín de Aclimatación de París recibió algunas aves en 1863; en Londres empezaron a criar en 1866, y otras habían criado en París poco después de 1863 (Delacour, 1977). Gerrits fecha en 1863 la llegada de más ejemplares a Europa, con crías poco después, tras los de 1745 que murieron sin criar (Gerrits, 1974); Roles dice que la forma nominal se crio por primera vez en cautividad en 1863 (Roles, 1976). Al principio las aves seguían siendo delicadas y salvajes, pero criaban, y la especie quedó pronto bien establecida (Delacour, 1977).
La literatura de cría de la especie es temprana: Beebe cita en su sinonimia las notas de Sclater (1879) sobre el comportamiento en cautividad, la monografía de Godry en el boletín de aclimatación (1888), a la que remitirán Delacour y todos los criadores posteriores, el artículo de Evans (1891) sobre la duración de la incubación, el de Fauque (1907) sobre el mismo asunto, los de Pocock (1910 y 1911) sobre la exhibición de cortejo y el de Mitchell (1911) sobre la longevidad en cautividad (Beebe, 1922; Delacour, 1977).
Capturas con lazo y envíos desde Calcuta
Beebe vio, en la tienda de un comerciante de aves de Calcuta, cincuenta o más cajas apiladas a la vez, cada una con un chinquis a la espera de embarcarse hacia Europa (Beebe, 1922). Delacour dice que las aves capturadas en libertad siguieron llegando de la India y de Indochina hasta hace poco, que la mayoría de las que se embarcan en Calcuta pertenecen a las formas grises (bailyi y bakeri) y que la forma pardusca, la nominal, llega pocas veces de Birmania, aunque él la llevó varias veces a Cleres desde Laos, igual que a ghigii desde Annam y Tonkin (Delacour, 1977). Roles, en cambio, solo conoce en cautividad dos formas, bicalcaratum y bakeri(Roles, 1976).
En las colecciones del siglo XX
Delacour dice que fue común en las pajareras europeas hasta 1940, que aún quedan unas cuantas parejas y que sigue siendo rara en América; Gerrits dice que fue común hasta la Segunda Guerra Mundial y que después se hizo rara en Europa y se encuentra pocas veces en América (Delacour, 1977; Gerrits, 1974). Roles, en 1976, la considera la especie más común del género en cautividad, bien representada en pajareras de los Estados Unidos y de Europa; Howman da para su situación en cautividad la valoración «buena» (1993), y el libro del autor, en 2014, la llama el faisán pavo más común en la avicultura (Hernández García, 2014; Howman, 1993; Roles, 1976).
La ficha original añade, citando a GBP, que precisamente por ser el faisán pavo más extendido en la avicultura, las poblaciones cautivas —sobre todo en Norteamérica— han sufrido una notable hibridación entre líneas y subespecies a lo largo de las décadas, lo que ha comprometido la pureza genética de muchos ejemplares de colecciones privadas y provocado casos esporádicos de infertilidad en los machos (Forni, GBP). Delacour ya decía que las aves importadas se adaptaron bien a la cautividad y criaron bien, y que se habían mezclado en muchas ocasiones (Delacour, 1977).
Los primeros estudios de campo
Beebe observó la especie en libertad en el norte de Birmania y en el oeste de Yunnan, donde pasó varias semanas en su hábitat, y es, junto con Baker, una de las fuentes principales de los datos de campo que recogen los autores posteriores (Beebe, 1922; Johnsgard, 1986). Los datos de la India proceden de los naturalistas coloniales: Hume y Marshall, Stuart Baker (1899, 1905, 1916 y 1930), Harington (1909, 1910), Hopwood, Venning e Inglis, que Beebe recoge en su sinonimia con sus localidades (Cachar, Chittagong, Manipur, Arakán, Assam oriental, Bhamo) (Beebe, 1922; Johnsgard, 1986). Los datos modernos proceden de BirdLife y de las prospecciones recogidas en HBW y en el boletín del WII de 2007 (nordeste de la India), que se resumen en los capítulos de distribución y de conservación (BirdLife DataZone, 2024; del Hoyo et al., 1994; Madge y McGowan, 2002; WII, 2007).
Cronología
Edwards dibuja los dos primeros machos vivos, propiedad de James Monro, en Londres (Beebe, 1922; Delacour, 1977).
Daniel Giraud Elliot dedicó a este faisán pavo dos láminas en su Monograph of the Phasianidae (1872): una rotulada «Polyplectron thibetanum» y otra, «Polyplectron bicalcaratum» (Elliot, 1872). Se reproducen aquí tal como aparecen en el ejemplar digitalizado. Véase Daniel Giraud Elliot.
El libro del autor reproduce además un dibujo de John Gould de su obra A Century of Birds from the Himalaya Mountains (1830–1832) con un faisán pavo gris y su pareja.
El ave sobre la que Temminck fundó el género Polyplectron, con el nombre chinquis, aparece en una lámina de su Nouveau recueil de planches coloriées d’oiseaux, con dibujos de Nicolas Huet y Jean-Gabriel Prêtre. Véase Coenraad Jacob Temminck.
«Polyplectron chinquis» (hoy P. bicalcaratum), macho adulto; lámina del Nouveau recueil de planches coloriées d’oiseaux de Temminck y Laugier, con dibujos de Huet y Prêtre. Wikimedia Commons, <a href="https://commons.wikimedia.org/wiki/File:Polyplectron_bicalcaratum_1838.jpg" target="_blank" rel="noopener">Polyplectron bicalcaratum 1838.jpg</a>; dominio público.
04
Morfología y plumajes
Un faisán gris pardo con una cresta que cae sobre el pico, una gorguera en la nuca y ocelos de violeta y verde en las alas y en la cola; la hembra, más pequeña y más oscura.
El macho
♂ El macho tiene la cabeza gris, con unas finas plumas que forman un copete; la garganta y las mejillas son de color blanco sucio, los ojos grises y el pico oscuro. El cuello, la nuca, el pecho y la espalda son de un gris amarronado. Las alas y la cola poseen unos preciosos ocelos, y las patas son de color negro pizarra. Algunos ejemplares pueden llegar a tener hasta cuatro o cinco espolones. (Hernández García, 2014)
Delacour describe al macho como mucho mayor que la hembra y de plumaje más elaborado; sus ocelos del manto, de las alas y de la cola se parecen a los del faisán pavo de Germain, pero son más claros y más azules, con reflejos rojo purpúreos, y están bordeados de blanco, no de pardo dorado; los de la cola, mayores y de un verde más claro; el plumaje general es parecido, pero más claro y gris, con las manchas de arriba mayores y más pálidas y las barras de abajo más claras y marcadas; toda la garganta es blanca; la corona lleva plumas largas, como pelos, barradas de gris claro y oscuro, que forman una cresta erguida que, al abrirse, cae hacia delante sobre el pico; y la nuca, una gorguera de plumas anchas y esponjosas que se puede hinchar hacia la cabeza (Delacour, 1977).
Madge y McGowan precisan que las cubiertas supracaudales son largas, algunas muy alargadas y capaces de cubrir hasta la mitad de la cola, con pares subterminales de ocelos; que la cola, de 22–24 plumas muy alargadas y graduadas, de punta ancha y roma, lleva en cada una un par subterminal de ocelos de verde metálico; que el ocelo del manto, de los escapularios, de las coberteras y de los terciarios es único, azul violáceo con reflejos verdes, rodeado por anillos negro y ante; que las primarias son de un negro apagado y sin marcas; y que la cabeza y la mayor parte del cuello son de un gris pardo oscuro, finamente barrado de ante pálido o blanco grisáceo, que se vuelve blanquecino en la barbilla y la garganta, mientras que el resto del cuerpo es pardo negruzco, con barras y moteado de ante finos e irregulares (Madge y McGowan, 2002). BOW, según el recuadro de la ficha original, añade que el macho tiene una cresta completa que, extendida, cae hacia delante sobre el pico, y que cada ocelo del manto y de las alas está rodeado por un anillo blanco; y Wikipedia, que los ocelos presentan un brillo iridiscente entre azulado y verdoso, que solo se aprecia del todo cuando la luz incide directamente sobre las plumas durante el despliegue del macho (BOW, 2020; Wikipedia).
Beebe, que tuvo en las manos aves cazadas y vivas, describe al macho adulto con las plumas de la corona alargadas, desflecadas y recurvadas, como una cresta de cepillo de color pardo negruzco finamente barrado de blanco, y en las aves plenamente adultas con tanto blanco que parece escarchada; las plumas de la nuca son largas y de barbas sueltas, con el pardo en lugar del blanco y el barrado más grueso. Todo el plumaje superior es pardo, desde el sepia oscuro al fusco, con abundantes motas y manchas blancas o blanco ante, que aumentan de tamaño del manto a la cola. El manto, los escapularios, las coberteras y los terciarios llevan una banda blanca en la punta y, dentro de ella, un ocelo redondo e iridiscente enmarcado por anillos completos de negro y de pardo; el ojo metálico es de un verde oscuro que pasa a violeta en el borde y da reflejos púrpura y azul según la luz; los anteriores miden menos de 10 mm de diámetro, y los de los terciarios, unos 15 mm (Beebe, 1922).
Según Beebe, las primarias son pardas y lisas, sin ocelos en sus coberteras; las secundarias muestran un cambio brusco, con un punteado blanco denso, y todas las coberteras secundarias llevan ocelos muy grandes; los ocelos mueren bruscamente en el manto inferior, de modo que la parte baja de la espalda, el obispillo y las supracaudales más cortas carecen de ellos. Las plumas de la cola y las supracaudales largas llevan cada una dos ocelos, uno en el centro de cada barba, enmarcados en negro y pardo, y con el círculo blanco ausente o limitado al lado proximal. Las supracaudales ocelladas largas forman una especie de segunda cola, separada de las demás supracaudales: en un ave con 20 timoneras hay 18 de estas plumas; con la exhibición frontal completa forman un anillo interior de ocelos por debajo de los de la cola. Los ocelos caudales son más bien ovalados, enteramente verdes, y cambian a púrpura. El número de timoneras varía de 20 a 24 en los machos adultos, normalmente 22, sin relación con la localidad ni con la edad, y la secuencia de muda no se altera por tener menos o más (Beebe, 1922).
Johnsgard, siguiendo a Baker (1928), describe todo el plumaje superior de pardo ante a grisáceo, las plumas pilosas de la cabeza y el cuello finamente vermiculadas de blanco ante, y el resto con manchas ante pálidas que tienden a formar barras difusas en la parte baja de la espalda, el obispillo y las supracaudales; los ocelos de las plumas del manto, de las coberteras (salvo las menores más externas) y de los terciarios interiores son verde azul violeta, cada uno rodeado por una banda estrecha pardo negruzca y otra más ancha, blanca; los de la cola, mayores, ovalados y más verdes, con un anillo externo pardo pálido; la barbilla, la garganta y a veces el cuello anterior son de ante pálido; el resto del plumaje inferior, como el dorso, pero con barras mejor definidas en el pecho y los flancos; y, por debajo, los ocelos de la cola se ven como manchas negruzcas (Johnsgard, 1986). Roles lo describe como un ave pardo grisácea oscura cubierta de minúsculas manchas gris claro o blancas, que forman barras en el plumaje inferior y el obispillo; con los ocelos del manto y de las alas azul claro con anillos negro y blanco y reflejos rojo purpúreos; con los ocelos gemelos de la cola y de las coberteras mayores verde esmeralda que pasa a púrpura, con anillos negro y gris ante claro; con el plumaje fino de la corona y de la nuca, delicado y como pelo, que forma una cresta y una gorguera destacadas durante el cortejo; y con las mejillas y la garganta de un gris blanquecino (Roles, 1976).
La imagen de la cabeza no lleva pie en la ficha antigua; muestra la cara del ave, con la piel desnuda alrededor del ojo, y parte de los ocelos del manto y de las alas. La ficha original añade, citando a Wikipedia, que la piel desnuda de la cara puede variar entre tonos rosados y amarillentos según el individuo, enmarcando unos ojos con iris grisáceo (Wikipedia).
La fotografía siguiente es de B. Sharma y ha sido retocada con inteligencia artificial; los colores y el plumaje pueden no ser exactos. Se incluye con la etiqueta correspondiente.
Delacour describe a la hembra mucho menor que el macho, con todo el plumaje más oscuro, más apagado y de dibujo irregular, los ocelos pequeños, mal definidos, negros con reflejos violeta, y la cola, la cresta, la gorguera y las patas cortas (Delacour, 1977). Beebe da a la hembra dos tercios de la longitud del macho y una cola poco más de la mitad de larga; las plumas de la cabeza, menos desflecadas y no recurvadas, forman una cresta mucho menos visible; barbilla y garganta blancas; cuello y manto superior pardo oscuro, finamente barrado de pardo ante pálido; las primarias y sus coberteras, pardas y lisas; el resto del manto y de las alas, pardo negruzco con varias barras transversales punteadas de ante pálido o ferruginoso y una banda terminal blanca; y los ocelos en las mismas zonas que en el macho, pero «en un estado muy inferior de desarrollo»: un área negra redondeada, a menudo con brillo púrpura, bajo la banda blanca terminal (Beebe, 1922).
Beebe examinó hembras que siempre tenían diez pares de timoneras; los ocelos de las timoneras son apenas manchas verdes ovales sin marcos de otros colores, muy variables según el ave (en un ejemplar adulto solo había trazas de brillo en las plumas centrales), y en la mitad de los ejemplares había ocelos en las supracaudales, «a pesar de lo que afirman muchos autores en contra»; el pico es negro en la mitad terminal, con la base y la piel facial de carne amarillenta o rosada; las patas son de color plomo oscuro y, como norma, carecen de espolones, sin ni siquiera indicio de su lugar (Beebe, 1922). Johnsgard dice que la hembra es parecida al macho, pero más apagada, con los anillos negros y blancos de los ocelos sustituidos por barras rotas, sin ocelos en las plumas cortas de la cola, con el blanco o ante de la garganta más extenso y con la cresta más desarrollada y plumosa; y que las hembras muy viejas casi no se distinguen de los machos, salvo por la cola más corta (Johnsgard, 1986). Madge y McGowan escriben que es más pequeña, con cresta, gorguera y patas relativamente más cortas, plumaje apagado, ocelos negruzcos y pequeños (que prácticamente no existen en la cola) y un moteado ante irregular más fino en las partes superiores (Madge y McGowan, 2002). Roles dice que las hembras son más pequeñas, más apagadas y más oscuras, de un pardo grisáceo; que los ocelos del macho se sustituyen por manchas negruzcas, con ligera iridiscencia púrpura en las de la cola y los terciarios; y que la cara es blanco grisácea (Roles, 1976). GBP añade que la hembra tiene una coloración menos brillante y menos ocelos, negros con borde blanco y sin iridiscencia metálica, y que suele carecer de espolones (Forni, GBP).
Juvenil y macho de primer año
Beebe describe el plumaje juvenil como un plumaje de dibujo muy poco definido, con el plumón persistiendo mucho tiempo en la cabeza y el cuello y el plumaje del cuerpo, de las alas y de la cola pardo oscuro, moteado de rufo en la punta y los bordes; las marcas más decididas están en los terciarios, que son puntiagudos y llevan de seis a ocho barras rotas e irregulares de rufo moteado y una banda terminal ancha del mismo color, que encierra un espacio triangular pardo oscuro sin marcas. El macho de primer año alcanza solo el desarrollo de color y dibujo de la hembra adulta, con el plumaje de la cabeza y la nuca pardo y obscuramente barrado, y empieza a notarse brillo en las coberteras mayores y los terciarios, donde se forma un ocelo violeta con reflejos verdosos; el iris es avellana y la cara, amarillo pálido; las timoneras de esa muda son veinte. Unos meses después de adquirir ese plumaje, una pluma arrancada es sustituida por otra de colores y dibujo plenamente adultos; Beebe lo comprobó en un joven al que se le habían arrancado cinco plumas del manto (Beebe, 1922).
El macho de segundo año ya se distingue de los mayores por los espolones pequeños, menos gris en la cabeza, la garganta con el blanco menos puro, y los ocelos más pequeños y oscuros, con las marcas de las timoneras más moteadas (Beebe, 1922). Delacour dice que el plumaje adulto se alcanza en el segundo año; que los machos jóvenes se parecen al principio a las hembras, pero se distinguen por el mayor tamaño y las patas mucho más largas, con solo restos de espolones; y que los machos de primer año son más pequeños y apagados, con todo el plumaje vermiculado de blanco, gris pálido o ante, los ocelos irregulares y de azul negruzco, la cresta, la gorguera y la cola cortas, y sin espolones (Delacour, 1977). Johnsgard, que cita a Delacour, escribe que el plumaje adulto «se alcanza por lo general el primer año», y Howman, que el plumaje adulto completo es el del primer año; Madge y McGowan describen el macho de primer año como más pequeño y apagado, con la cresta y la gorguera relativamente más cortas, los ocelos negruzcos, la cola más corta y los espolones ausentes o débiles; y el juvenil como muy parecido a la hembra, aunque el joven macho puede tener ocelos metálicos violeta mayores tras unas semanas (Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002).
Denley y Delacour dicen que el sexo de los faisanes pavo es difícil de determinar durante los primeros meses; hacia esa edad el macho es algo mayor y de cola más larga, con ocelos redondos, más oscuros y marcados, mientras que los de la hembra son «en forma de flecha»; los machos llegan al plumaje completo en el segundo año, cuando empiezan a desarrollar espolones, aunque no siempre (Delacour, 1978). Howman añade que el crecimiento de los espolones es un buen indicio del sexo, que a las catorce semanas los sexos suelen distinguirse por comparación si hay machos y hembras, y recomienda como libro específico el folleto de Loyl Stromberg (Howman, 1993). GBP dice que los machos jóvenes se parecen a las hembras adultas, pero se distinguen por el porte erguido y la cabeza alta (Forni, GBP).
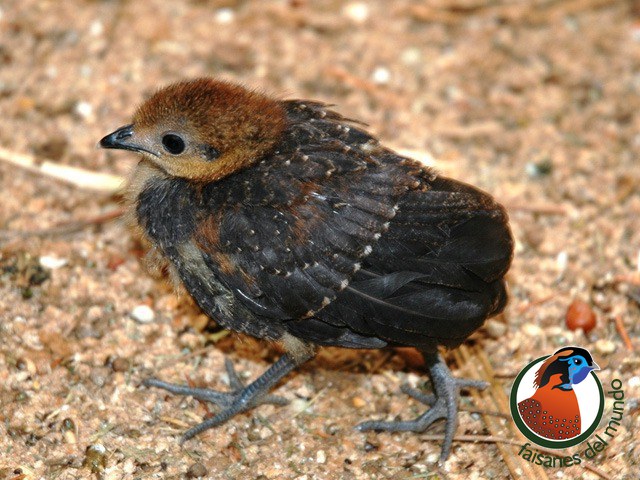
Los polluelos son marrones, con el pecho y la parte inferior del cuerpo amarillos, y destacan las dos rayas amarillas que recorren la espalda. (Hernández García, 2014) Beebe describe el polluelo con el dorso, desde la frente hasta el mechón de la cola, de rufo oscuro o chocolate, con dos anchas bandas laterales de amarillo ante pálido desde la región escapular hasta la cola; el plumón de las alas, rojizo oscuro; la cara, los costados y las partes inferiores, de amarillo ante, con las coberteras auriculares rojizo oscuro y un tinte similar en el pecho; sin marcas faciales distintas; siete primarias y seis secundarias que brotan pronto; iris gris pizarra, pico negro y patas de carne oscura; al nacer se parece a un polluelo de faisán dorado, pero mucho más oscuro (Beebe, 1922). Delacour lo describe pardo oscuro por encima, con las bandas dorsales ante pálido, y las partes inferiores ante rojizo; HBW, con plumón pardo oscuro por encima y beige rojizo por debajo; BOW, según el recuadro de la ficha original, con plumón pardo oscuro por encima y rufo por debajo (BOW, 2020; del Hoyo et al., 1994; Delacour, 1977).
Delacour dice, para el género, que los faisanes pavo mudan las plumas de la cola a partir del tercer par, hacia dentro y hacia fuera, como los argus; Beebe, que en el gris la secuencia de la muda no se altera por tener 20 o 24 timoneras (Beebe, 1922; Delacour, 1977). Johnsgard no recoge datos específicos de la muda de esta especie y las demás fuentes consultadas no dan datos sobre la época de muda en libertad (Johnsgard, 1986).
Aspecto general
Todas las fuentes coinciden en que se trata de un ave grácil y de aspecto sobrio, cuyo mayor adorno son los ocelos: Edwards la comparó con una piel de marta cibelina tachonada de joyas; Delacour la considera una especie encantadora y de aspecto atractivo; y Gerrits remite a la lámina en color de su libro, que, dice, la presenta muy bien (Beebe, 1922; Delacour, 1977; Gerrits, 1974).
05
Medidas y peso
Los datos de la guía original, contrastados con la literatura.
Macho ♂Hembra ♀
Longitud
♂56–76 cm
♀48–55 cm
Alas
♂21–24 cm
♀17–21 cm
Cola
♂35–40 cm
♀23–25 cm
Tarso
♂75–80 mm
♀65–70 mm
Peso
♂568–910 g.
♀460–500 g
Tamaño frente al resto de la colecciónlongitud total del macho · 51 especies
Faisán pavo gris · 76 cm
050100150200 cm
En el faisán pavo gris el macho mide entre 56 y 76 cm de longitud y la hembra, entre 48 y 55 cm. Las alas miden de 21 a 24 cm en el macho y de 17 a 21 cm en la hembra; la cola, de 35 a 40 cm y de 23 a 25 cm, respectivamente, y el tarso, de 75 a 80 mm en el macho y de 65 a 70 mm en la hembra. En cuanto al peso, el macho oscila entre 568 y 910 g, mientras que la hembra pesa de 460 a 500 g. (Hernández García, 2014)
Birds of the World da para el macho una longitud de 56 a 76 cm, una cola de 35 a 40 cm y un peso de 568 a 910 g; para la hembra, de 48 a 55 cm, una cola de 23 a 25,5 cm y un peso de unos 460 a 500 g, cifras que corresponden a las formas nominal y bakeri. Longitudes y colas coinciden con la tabla de la web; los pesos son muy similares (500–900 g en el macho y 500 g en la hembra según la tabla) (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002).
el dato de longitud es el límite inferior de la hembra de otras fuentes (WII, 2007)
Las diferencias se deben, sobre todo, a que cada autor toma las medidas de una forma distinta (en ejemplares de museo, en aves cautivas o en aves silvestres) y a que Madge y McGowan, Delacour y Johnsgard dan las cifras de bakeri(Beebe, 1922; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
La ficha original da para el huevo entre 44,5 y 51 mm de largo y de 37 a 39 mm de ancho (cifras corregidas por decisión editorial) y lo describe blanquecino. (Hernández García, 2014) Beebe midió dos puestas de dos huevos recogidas cerca de Margherita, en Assam, en junio (46 × 39 y 46 × 37 mm; 48 × 37 y 44,5 × 37,5 mm), de color blanco rosado pálido, de forma oval ancha, con unos pocos hoyuelos calcáreos finos repartidos de forma irregular por un lado de dos de ellos; y vio huevos mucho más moteados de blanco, con el blanco rellenando los hoyuelos y extendido en un pequeño manchón detrás de cada uno en dirección al polo menor (Beebe, 1922). Delacour da para bakeri huevos de 45–51 × 37–38 mm, blanco rosado a blanco ante; Johnsgard, huevos de bakeri de unos 48 × 37,5 mm y con un peso fresco estimado de 37,3 g (Delacour, 1977; Johnsgard, 1986). BOW, según el recuadro de la ficha original, los describe de color crema pálido a chocolate intenso, con puntas blancas, y Beebe recoge de Stuart Baker que son «ricos en tono», como los de la gallina cochinchina (Beebe, 1922; BOW, 2020).
Los bosques húmedos de colinas y de tierras bajas desde el Himalaya oriental hasta Indochina: nueve países, de la India a Vietnam.
Mapa de distribución. Pulsa para ampliar.
El faisán pavo gris vive en las montañas del Himalaya, en Birmania, el centro y el norte de Vietnam, el norte y el oeste de Tailandia y Bután, en bosques tropicales o subtropicales situados a unos 1500 m de altitud. (Hernández García, 2014)
Área de distribución
Delacour dice que el gris es la especie más septentrional del género y que va de Sikkim y Birmania a Tonkin, y, hacia el sur, hasta el norte de Tenasserim, el norte de Siam y el centro de Annam (hacia los 16° N) (Delacour, 1977). Madge y McGowan lo dan del límite occidental, en Sikkim, en las estribaciones del Himalaya oriental, hacia el este por el nordeste de la India, Bután, el este de Bangladés, Myanmar y el sur de China (oeste de Yunnan y sur de Guangxi; las referencias del este del Tíbet son probablemente erróneas), y hacia el sur por gran parte de Tailandia hasta el sur de Laos y el centro de Vietnam (Tonkin y norte de Annam) (Madge y McGowan, 2002). Avibase, que sigue a Clements, lo resume como del nordeste de la India y Bután al extremo sur de China, y hacia el sur hasta la base de la península malayo-tailandesa, el centro de Laos y el centro de Vietnam (Avibase).
Wikipedia, según el recuadro de la ficha original, escribe que su área abarca Bangladés, el nordeste de la India, Birmania (Myanmar), el sur de China y el norte de Tailandia, ocupando bosques de tierras bajas y de colinas; sin embargo, está ausente de la mayor parte de Indochina y de toda la península malaya. Al margen de su categoría UICN de preocupación menor por tratarse de una especie de amplia distribución, figura incluida en el Apéndice II de CITES, que regula el comercio internacional de ejemplares silvestres (Wikipedia). BirdLife da una extensión de presencia de 2.590.000 km², reconoce como países de presencia actual y origen nativo a Bangladés, Bután, Camboya, China, la India, Laos, Myanmar, Tailandia y Vietnam, y señala que no se conoce el área de ocupación ni si la extensión de presencia decrece (BirdLife DataZone, 2024).
País por país
País
Situación según las fuentes
Fuente
India
residente, bastante común en bosques no alterados del Himalaya central y oriental (Sikkim, Arunachal Pradesh) y del nordeste (Assam, Meghalaya, Manipur, Mizoram, Nagaland y Tripura); de unos 30 m de altitud en Karimganj (Assam) a unos 1.200 m; registrado en más de 18 áreas protegidas; en Sikkim, citado todavía en 1999 en Kewzing (sur) y en la reserva de Pangolakha (este), aunque Madge y McGowan dudan de que siga en Sikkim
antes muy común en el norte y en Tenasserim y común en el resto, salvo en el Pegu Yoma; sin datos recientes; Beebe la encontró en el norte de Birmania y el oeste de Yunnan; según él, en Yunnan occidental y en los estados shan no parece cruzar al este del Salween
extendida y bastante común en las áreas mayores y mejor protegidas, con una población estimada en miles, quizá estable o en ligero descenso; según Madge y McGowan, rara y local; Parque Nacional de Thung Salaeng Luang
razonablemente común en varias zonas, con una población que parece sana pese a una caza furtiva intensa; ghigii en el centro; el nominal hasta el centro (Nape)
Barail Wildlife Sanctuary; Thorangtlang Wildlife Sanctuary; bosques de la cordillera de Barail
India
las tres IBA/KBA que BirdLife identifica para la especie (criterio A3); suman 1.192 km², con una cobertura media de áreas protegidas del 0 % (evaluación de 2016)
bosques húmedos de Birmania y del norte de Siam (Gerrits, 1974)
Beebe
cerca del nivel del mar en el límite sur; hasta 6.000 pies (unos 1.800 m) según Davison, en la cumbre del Mooleyit
él mismo la cazó a alturas casi tan grandes en el norte de Birmania (Beebe, 1922)
Johnsgard
hasta 4.000 pies (unos 1.200 m), rara vez más; en la región india, de las llanuras y las estribaciones hasta unos 2.000 pies (unos 600 m), raramente hasta 6.000 pies (unos 1.800 m)
las cifras no concuerdan entre sí dentro de la misma obra (Johnsgard, 1986)
Las conversiones de pies a metros son aproximadas.
Hábitat
Delacour la sitúa en bosques húmedos de colinas, a menudo en barrancos, solos o en pareja, y Beebe, en bosques de colinas, con preferencia por las laderas de bambú a primera hora de la mañana y al final de la tarde, y por el bosque denso de árboles el resto del día; solo se aventura en las llanuras donde hay selva densa (Beebe, 1922; Delacour, 1977). Johnsgard dice que es un ave de los bosques tropicales de tierras bajas, sobre todo frecuente en la maleza densa de las orillas de arroyos, en el bosque perennifolio denso, en matorrales enredados y vegetación secundaria, o en bosque mixto de bambú y matorral espeso; que el hábitat ideal es la maleza densa y el bosque de árboles pequeños que se desarrolla tres o cuatro años después de abandonar un arrozal de ladera; y que se asocia con barrancos en terreno muy accidentado, con afloramientos rocosos y monte espeso en medio del bosque virgen, casi siempre con agua cerca durante la cría (Johnsgard, 1986). Madge y McGowan hablan de bosque perennifolio y semiperennifolio de tierras bajas, con sotobosque denso que incluye bambú (Madge y McGowan, 2002). BOW, según el recuadro de la ficha original, añade que vive en bosque denso siempreverde o semicaducifolio, incluidas zonas con abundante bambú en el sotobosque, y que también se ha registrado en bosque secundario degradado o quemado y en parches de bosque relicto, al menos en Laos (BOW, 2020). Green-Armytage la describe en selvas muy densas, cerca del agua y entre rocas y barrancos (Green-Armytage, 2002).
En el nordeste de la India, el WII la da en el sotobosque denso de bosque tropical húmedo de hoja ancha perennifolio y semiperennifolio, y en bosque perennifolio y caducifolio con sotobosque perennifolio; no suele verse en los bordes de cultivos cercanos al bosque ni en las plantaciones de té arboladas (WII, 2007). Beebe cita, a un escritor, un hábitat «prohibitivo» de montañas de cinco a siete mil pies (unos 1.500–2.100 m) cubiertas de árboles, maleza, bambú y ratán espinoso, tan enmarañado que no se avanza más de cien yardas (unos 90 m) por hora; él dice que lo comprobó todo en persona, pero no a la vez (Beebe, 1922).
Johnsgard dice que no hay estimas de densidad de población; Beebe, que le pareció localmente bastante común y que vio trece en un paseo de cuatro o cinco millas (unos 6–8 km), una cifra notable por lo discretas que son estas aves; añade que no tiene idea de su área de campeo, porque es imposible seguir a un ave más de unos metros (Beebe, 1922; Johnsgard, 1986). BirdLife tampoco cuantifica la población (BirdLife DataZone, 2024).
Movimientos
Johnsgard dice que no hay indicios de desplazamientos importantes; Beebe, que no tiene idea de movimientos estacionales, y que no observó el cambio diario de zonas de alimentación que se ve en los faisanes de hábitats más abiertos; BirdLife la clasifica como no migradora; HBW y BOW no dan información sobre movimientos (Beebe, 1922; BirdLife DataZone, 2024; del Hoyo et al., 1994; Johnsgard, 1986).
Compañeros de hábitat y depredadores
Madge y McGowan señalan que el gris no se solapa con el de Germain, el de Hainan ni el malayo (Madge y McGowan, 2002). En un paseo por el barranco, Beebe vio un gris que pasaba junto a un rinoceronte que se revolcaba en el barro y seguía su camino sin inmutarse, y piensa que está acostumbrado a los gaur (Beebe, 1922). Respecto a los depredadores, Beebe dice que un ave capturada con lazo se encuentra y se devora en una o dos horas, lo que muestra lo numerosos que son sus enemigos, y que los lazos con estacas altas las libran de las civetas, los chacales y otros pequeños carnívoros; Johnsgard dice que no hay información específica (Beebe, 1922; Johnsgard, 1986). Un gris fue, además, uno de los dos pollos que, en un caso que cuenta Corder, expulsaron de la comida a un pollo de faisán de Swinhoe criado con ellos (Corder).
07
Comportamiento y voz
Un ave recelosa y casi invisible en la espesura, más conocida por su voz que por su presencia, que en cautividad se vuelve confiada.
Costumbres
Beebe, que dedicó varias semanas a observarlo en Birmania, lo consideró una de las aves más difíciles de ver; sus sentidos son agudísimos, está siempre alerta, los charlatanes de la espesura dan la voz de alarma y, si se acerca uno, escapa sin ruido; casi nunca vuela, y sube a los árboles para dormir (y el macho, para llamar) (Beebe, 1922). Dice que se mueve por la selva con un paso alto, deteniéndose y mirando alrededor, inmóvil como una piedra y a menudo con una pata recogida, y que, cuando corre, mantiene la cabeza y la cola bajas y las patas parecen centellear; que, sorprendida en una rama baja, se deja caer al suelo con las alas cerradas, y que, en terreno abierto, salta a la espesura más próxima sin intentar volar (Beebe, 1922). Baker, en cambio, dice que es un volador lento y pesado hasta que se aleja, y que luego baja las laderas a gran velocidad (Beebe, 1922). El WII la describe como muy esquiva y muy rápida de patas, y señala que se oye más de lo que se ve, sobre todo en la época de cría (WII, 2007). Madge y McGowan escriben que es muy desconfiada y que, ante la menor perturbación, se aleja por el sotobosque en lugar de levantar el vuelo (Madge y McGowan, 2002).
Beebe vio un dormidero seguro, en una rama horizontal de un árbol caducifolio, sobre un denso crecimiento de bambúes, donde dormían dos aves cada noche; abandonaron el lugar tras ser alarmados una noche de luna (Beebe, 1922). Beebe también describe cómo un ave que escarbaba junto a un bambú, sin alzar la cabeza como hacen otros faisanes, desapareció a ojos vistas, quedándose inmóvil entre sombras: cuando llegó al lugar, su forma se había diluido en una mezcla de sombras (Beebe, 1922). Las aves que oyó parlotear a solas, entre bocados de insectos o de moho, mantenían un suave canturreo de contento durante veinte minutos (Beebe, 1922).
Johnsgard dice que no son aves sociales, sino que viven en pareja o, a lo sumo, en pequeños grupos durante todo el año, y que, tras dejar a los padres, los jóvenes no forman nunca bandos; se ignora dónde duermen (Johnsgard, 1986). Madge y McGowan dicen que se encuentra solo o en pareja, y que en la época de cría pueden verse grupos familiares; su presencia casi siempre se delata por el canto, que puede oírse de manera irregular durante el día en la época de cría y al amanecer y al anochecer en el resto del año (Madge y McGowan, 2002). El WII la describe aislada o en pareja (WII, 2007).
En cautividad, Howman la describe como un faisán delicioso y amistoso, que exhibe constantemente sin preocuparse de las personas, y Roles, como un ave bella, mansa y encantadora, de temperamento tranquilo, confiada, amistosa y siempre atenta a su pareja (Howman, 1993; Roles, 1976). Beebe, sin embargo, recuerda que en un aviario vio perseguir sin descanso a un macho por otro, hasta que se retiró al segundo en el límite del agotamiento, y deduce de los espolones que en libertad debe de haber peleas serias (Beebe, 1922).
Organización social
Baker dudaba de que la especie fuera polígama en libertad; creía que cada pareja tiene un territorio bien definido, del que se excluye a otras en la época de cría, y que el vínculo de pareja dura todo el año, porque siempre que se mata o captura un ave de un sexo, casi siempre hay otra del sexo opuesto cerca; Beebe añade que se han registrado parejas en todos los meses (Beebe, 1922; Johnsgard, 1986). Johnsgard cita a Ridley para decir que, en la mayoría de los faisanes pavo, la pareja se disuelve hacia el momento de la incubación, y que no hay indicios de que el macho ayude a cuidar de los pollos (Johnsgard, 1986). BOW, según el recuadro de la ficha original, y Madge y McGowan dicen que el sistema de apareamiento no está claro: se sospecha monogamia, pero se ha comunicado poligamia en cautividad (BOW, 2020; Madge y McGowan, 2002). La ficha original añade, según GBP, que en libertad la especie se comporta como monógama, que en cautividad se adapta con facilidad a esquemas poligámicos con un macho y varias hembras y que, tras la eclosión, en algunos casos el macho participa activamente ayudando a alimentar a los pollos, un comportamiento paternal poco habitual entre los faisanes (Forni, GBP). GBP escribe que el macho dominante primero, y algunos subadultos después, ayudan a la madre a alimentar a la prole los primeros días y en otras tareas (Forni, GBP).
La voz
Fuente
Llamada del macho
Otros sonidos
Observaciones
Beebe (1922)
un «phee-hoo» muy fuerte, líquido y penetrante, cada diez o quince segundos o con un minuto o más entre una y otra
de seis a doce graznidos roncos seguidos, como de rana o sapo, «qua-qua-qua» o «wak-wak-wak»; alarma, a menudo tras un trueno o un disparo; varios machos pueden responder a la vez
el macho lo emite desde una rama baja o un tronco caído, nunca desde el suelo; también se oye casi todos los meses; Beebe cree que, en la descripción de un «ladrido áspero, corto y doble», se confunden dos llamadas (Beebe, 1922)
Johnsgard (1986)
un silbido fuerte, «trew-tree» o «taa-pwi»; según Baker, una nota fuerte, de risa o chasquido, desde un tocón o una rama baja, a veces con un suave aleteo; según Wayre, un silbido musical de dos sílabas
un «putta» áspero, que empieza lento y se acelera; un «canto» de gorjeos que suben y bajan durante varios minutos
los machos cantan no solo en la época de cría, sino durante buena parte del año (Johnsgard, 1986)
Delacour (1977), según Terry Jones
un doble silbido fuerte, a intervalos de un segundo y medio, más grave que el del de Germain
un «putta, putta, putta» áspero, lento y luego rápido; un canto de gorjeos continuos y bajos, de varios minutos, durante el despliegue; la alarma es un cacareo parecido al «putta», menos fuerte y más rápido
el ave de cinco espolones que tuvo David-Beaulieu llamaba cinco veces cada vez (Delacour, 1977)
Madge y McGowan (2002)
un silbido agudo, «trew-tree», «taa-pwi» o «phee-hoi» (la segunda nota más larga y ascendente), repetido hasta cinco veces a intervalos variables
un «qua qua qua» o «wak wak wak» gutural y ronco, que puede ser de alarma, porque se oye a veces al ser molestada
llamadas guturales repetidas deprisa, que se oyen en cualquier momento del día cuando los machos están en sus zonas de exhibición, y solo al amanecer y al atardecer el resto del año
–
los machos limpian con las uñas una pequeña zona del suelo y baten las alas rápidamente (Forni, GBP)
Las transcripciones de los sonidos son las que dan los autores en inglés; no son equivalentes entre sí. La ficha antigua tiene un apartado rotulado «Sonidos y llamadas de la especie» sin contenido; en la ficha de BOW figuran 230 grabaciones, junto con 6.056 observaciones, 2.451 fotografías y 81 vídeos en eBird y Macaulay Library (consulta del 14 de noviembre de 2026) (BOW, 2020).
El número de espolones y la voz: una creencia de los meos
Delacour recoge que los meos del alto Laos, que ya conocían las anomalías del número de espolones, creían que algunos machos tienen siete u ocho, y que cuando un faisán pavo llama repite su nota tantas veces como espolones tiene; y que el ave de cinco espolones de David-Beaulieu llamaba exactamente cinco veces cada vez, «una curiosa coincidencia» (Delacour, 1977).
08
Alimentación
Omnívoro, de hojarasca y bambú: semillas, frutos caídos, termitas y otros invertebrados; en cautividad, pienso, fruta, hojas e insectos.
Estos faisanes pueden alimentarse con un buen pienso para faisanes, acompañado de frutas (manzana, pera, etc.), hojas, insectos y frutos secos. (Hernández García, 2014)
En libertad
En libertad su dieta es omnívora y forrajea principalmente en el suelo del bosque, escarbando entre la hojarasca en busca de semillas, termitas y otros invertebrados, además de frutos caídos (Wikipedia). Según BOW, la dieta incluye bayas, frutas (se han identificado ciruelas y Zizyphus), semillas, higos silvestres (Ficus), larvas, hormigas, otros insectos, caracoles y otros animales pequeños; prefiere especialmente las termitas, consume semillas de bambú cuando están disponibles y también arroz y grano de cultivo de las aldeas; busca el alimento de forma lenta y sigilosa, arañando el suelo, y suele encontrarse sola, en parejas o en pequeños grupos familiares (BOW, 2020; del Hoyo et al., 1994).
Beebe dice que la dieta es variada: semillas duras y blandas, frutos pequeños, hojas, insectos y gusanos de todo tipo, y pequeños caracoles con su concha; varios escritores han citado árboles que atraen a estas aves cuando el fruto madura, que se alimentan a primera hora de la mañana tanto en las ramas como en el suelo; cuando cazó aves cerca de aldeas kachin encontró siempre arroz con cáscara en el buche, junto con pequeños insectos, y vio que les gustaba un fruto de menos de 10 mm que simulaba un tomate en miniatura (Beebe, 1922). Baker recuerda su preferencia por varios higos, ciruelas silvestres, el ber (Zizyphus) y las semillas de bambú, y la considera omnívora, que a veces come brotes jóvenes de cultivos verdes; Ali y Ripley añaden granos, bayas, orugas, caracoles y otros animales pequeños, con las termitas como bocado preferido (Johnsgard, 1986). Beebe añade que el pequeño diezmo de arroz que un ave de vez en cuando cobra en los arrozales no merece consideración (Beebe, 1922). GBP incluye entre sus presas insectos, moluscos, anfibios, pececillos y pequeños vertebrados, además de vegetales (Forni, GBP).
Johnsgard describe la manera de buscar el alimento como lenta, metódica y muy sigilosa: araña en silencio y sin aspavientos, se mueve sin ruido por el sotobosque y se escurre bajo los obstáculos en lugar de saltarlos (Johnsgard, 1986). Beebe dice que busca insectos y semillas en el suelo del bosque sin levantar la cabeza para vigilar, pendiente en cambio de oídos y vista (Beebe, 1922).
Fuente
Alimentos citados para la especie
Wikipedia (recuadro de la ficha original)
semillas, termitas y otros invertebrados, frutos caídos (Wikipedia)
BOW (recuadro de la ficha original) y HBW
bayas, ciruelas, Zizyphus, semillas, higos silvestres (Ficus), larvas, hormigas, otros insectos, caracoles; termitas; semillas de bambú; arroz y grano de cultivo (BOW, 2020; del Hoyo et al., 1994)
Beebe (1922)
semillas duras y blandas, frutos pequeños, hojas, insectos, gusanos, pequeños caracoles; arroz con cáscara; un fruto de menos de 10 mm parecido a un tomate (Beebe, 1922)
Baker (según Johnsgard) y Ali y Ripley (según Johnsgard)
higos, ciruelas silvestres, ber, semillas de bambú, brotes de cultivos verdes; granos, bayas, orugas, caracoles; termitas (Johnsgard, 1986)
GBP
insectos, moluscos, anfibios, pececillos y pequeños vertebrados, y vegetales (Forni, GBP)
Delacour (1977)
omnívoro, acepta con facilidad insectos y fruta (Delacour, 1977)
Solo en el caso de Beebe y de Baker se trata de observaciones directas de aves silvestres (Beebe, 1922; Johnsgard, 1986).
En cautividad
Delacour dice que los faisanes pavo se alimentan con grano, fruta, bayas y una papilla o gránulos ricos, y que no gustan de las verduras como la hierba y la lechuga; que conviene darles carne cruda troceada, y que el insecto vivo, sobre todo los gusanos de la harina, es útil en los primeros días de los pollos (Delacour, 1977). Delacour (1978) añade que en cautividad hay que darles carne picada, insectos y fruta, que son comedores muy ligeros, jóvenes y adultos, y que conviene empezar a ofrecer gravilla y gusanos a las 24 horas de nacer; cada pollo come una media de seis gusanos al día (Delacour, 1978). Roles dice que prosperan con un pienso proteico, a menudo de pavos reproductores, complementado con fruta e insectos (Roles, 1976). Howman muestra a un gris aceptando un cacahuete de aperitivo y a otro que saca gusanos de la harina de una taza y los ofrece a sus pollos, y dice que para los pollos conviene tener a mano gusanos de la harina o larvas limpias de mosca (Howman, 1993). La ficha original añade que la alimentación de los pollos se hace con un pienso con un 40 % de proteínas (Hernández García, 2014).
09
Cortejo y exhibición
Una de las exhibiciones más bellas de los faisanes: el macho ofrece un bocado a la hembra y despliega alas y cola como un abanico de ocelos.
La parada nupcial del faisán pavo gris combina la exhibición lateral de los faisanes comunes y la exhibición frontal de los argus y los pavos reales, y remata con un abanico de ocelos que el macho abre delante de la hembra tras ofrecerle un bocado. (Beebe, 1922; Delacour, 1977; Johnsgard, 1986)
La parada nupcial comienza a mediados de marzo. El macho abre la cola, extiende un ala hacia arriba y otra hacia abajo y emite un suave chillido. Suele ofrecer insectos a la hembra y, si no puede brindarle este tipo de alimento, no desaprovecha un palito o una piedra, que pueden servirle de reclamo. (Hernández García, 2014)
Delacour dice que, en todas las especies de Polyplectron, el macho tiene una exhibición lateral normal, en la que camina con delicadeza alrededor de la hembra ofreciéndole bocados y cloqueando suavemente; que, en las especies de cola ancha, añade una exhibición frontal notable, con el cuerpo bajo sobre los tarsos doblados mientras el manto, las alas y la cola se extienden en un círculo plano salpicado de manchas iridiscentes; y que en el gris se suma a ello la cresta y la gorguera, abiertas y dirigidas hacia delante, que dan a la danza una belleza especial (Delacour, 1977).
Beebe cita la descripción de Godry (1888): el macho anda con ligereza y levanta sobre la cabeza una pequeña cresta de plumas finas que cae hacia delante sobre el pico; hincha el plumaje con orgullo y despliega con gracia, mientras camina, una de sus alas, unas veces la derecha y otras la izquierda; de vez en cuando rasca el suelo; cuando encuentra un insecto o un granito lo coge con ansia y, sosteniéndolo delicadamente en la punta del pico, invita a la hembra con un gorjeo encantador y prolongado a aprovechar el hallazgo; cuando ella se acerca, el macho se yergue sobre las patas, hincha mucho el plumaje, le lanza el bocado y, en el momento en que ella va a recogerlo, la saluda a su manera inclinándose con viveza y desplegando de pronto alas y cola en forma de abanico; entonces su ojo brilla con el mayor fuego y todos los ocelos aparecen en sus colores más brillantes, con tintes irisados según la luz (Beebe, 1922).
Beebe cita también a Darwin (El origen del hombre), según el cual el pavo real se coloca delante de la hembra con la cola extendida transversalmente, para mostrar a la vez la garganta y el pecho azules; el Polyplectron, en cambio, tiene el pecho de color oscuro y los ocelos repartidos más allá de la cola, por lo que no se pone de frente, sino que levanta y despliega las plumas de la cola un poco en diagonal, bajando el ala extendida del mismo lado y alzando la del lado contrario, de modo que los ocelos de todo el cuerpo quedan expuestos a la vez ante la hembra, y esta, a cualquier lado que se vuelva, ve siempre las alas desplegadas y la cola oblicua (Beebe, 1922). Según Beebe, Pocock (1911) demostró que eso es solo la mitad de la verdad, pero él no distingue dos exhibiciones: el macho, desde el comienzo del cortejo en los primeros días cálidos de la primavera hasta el pleno despliegue frontal, pasa por muchas etapas, cada vez más complejas y vigorosas, pero todas fases de una misma exhibición (Beebe, 1922).
Beebe describe las etapas así: primero, el macho sube y baja repetidamente la cresta recurvada, que, al erguirse, se desplaza hacia delante y cubre en parte el pico; luego, cuando la hembra aparece a lo lejos, se nota un temblor y un despliegue parcial de alas y cola; este despliegue se centra enseguida en la hembra, y el macho mantiene a la vista todo el plumaje ocelado posible según la posición de ella; Beebe lo vio hacer desde una percha, desde el interior de un árbol perennifolio de follaje denso, donde cada movimiento estaba constreñido, y a un ave que, en una jaula de transporte de techo muy bajo, se aplastó y extendió sobre todo el suelo disponible cuando una hembra, en la jaula de enfrente, sacó la cabeza entre los barrotes (Beebe, 1922). En esta fase el macho rasca el suelo, al principio con nerviosismo y sin mirar siquiera si ha desenterrado algo comestible; más tarde se provee de un insecto o de algo apetecible, que a veces sostiene mientras sigue a la hembra en silencio; emite el canto bajo de satisfacción o de «cría» varias veces, y esto suele atraer a la hembra (Beebe, 1922).
Cuando la hembra está a dos o tres pies (unos 60–90 cm), el macho lanza el bocado hacia ella; Beebe no está seguro de que lo haga a propósito, porque el comienzo de la exhibición frontal completa va acompañado de varias sacudidas violentas de la cabeza, quizá para erguir del todo la cresta, y puede ser que el alimento caiga en una de esas sacudidas involuntarias, aunque le agrada pensar que lo lanza como cebo (Beebe, 1922). Simultáneamente, las plumas del pecho se hinchan y el ave se inclina hacia delante, mostrando cada ocelo de una manera que Beebe nunca había visto representada correctamente: las muñecas se bajan casi hasta el suelo, sin abrir las primarias, que quedan apuntando hacia arriba, como en el ala cerrada; las coberteras, las secundarias y los terciarios se abren al máximo, los más internos se juntan por encima y ocultan la espalda lisa, y los más externos tocan el suelo; la cola y la hilera de supracaudales mayores quedan perfectamente verticales y se abren en un semicírculo completo, hasta a una o dos pulgadas (2,5–5 cm) del suelo, con los ocelos de las plumas más cortas visibles por fuera de los de las secundarias y las coberteras (Beebe, 1922). Lo más notable, para él, es la aparente independencia entre las primarias y las secundarias y sus coberteras: estas, incluso las de algunas filas cortas, se abren mucho más allá de las primarias cerradas, algo que no ocurriría ni se creería posible en el despliegue normal de un ala (Beebe, 1922). Para Beebe, la exhibición frontal es característica de los argus, los pavos reales, los tragopanes y los monales, pero solo es evidente la relación entre este grupo y el argus; en los demás sería un paralelismo (Beebe, 1922).
Johnsgard, que cita a Pocock y a Beebe, dice que, aunque en el gris se dan los despliegues lateral y frontal, el lateral es distinto del habitual de los faisanes: el ala más próxima apenas se baja, mientras que la más lejana se alza con fuerza, se abre al máximo y se dirige hacia delante, de modo que la punta queda muy por delante de la cabeza, algo retraída; la cola se abre del todo y se tuerce hacia la hembra, formando un abanico casi vertical, con lo que quedan expuestos al máximo los ocelos de la cola y los de la parte superior de las alas; las plumas de la corona se erigen y se dirigen hacia delante, hacia la base del pico; y esta exhibición es, al parecer, silenciosa (Johnsgard, 1986). La segunda exhibición, más típica, suele ir precedida de un silbido gorjeante y melodioso que sirve de reclamo de alimento y al que la hembra suele acudir corriendo; el macho se enfrenta a ella, abre y extiende la cola y las alas e inclina el cuerpo hasta la vertical, bajando la cabeza y el pecho al suelo, y forma un notable dibujo visual de escudo pardo plumado, más o menos triangular o redondeado, atravesado por bandas curvas de ocelos iridiscentes (Johnsgard, 1986). Johnsgard, siguiendo a Pocock, dice que esta postura se aproxima mucho a la exhibición frontal del argus, en que las plumas de las alas se juntan en el centro sobre el lomo, ocultando no solo el dorso liso, sino también casi toda la cabeza, tapada por las primarias de un ala; y que, de esta manera, el gris es un buen eslabón de comportamiento entre las exhibiciones laterales del faisán pavo de Rothschild y la exhibición más claramente frontal del gran argus y los pavos reales (Johnsgard, 1986).
La hembra puede responder a la exhibición con una postura similar, pero menos desarrollada, aunque lo más habitual es que no preste atención; la cópula no se ha descrito específicamente, pero probablemente sigue a la exhibición (Johnsgard, 1986). Beebe escribe, en el pie de sus láminas, que la hembra no se ve afectada por la belleza de la exhibición ni por la regularidad de la forma o del dibujo, sino, al parecer, por una reacción subconsciente a la repetición continuada del cortejo (Beebe, 1922). Stokes y Williams (1972) ilustraron con un sonograma la llamada de ofrecimiento de comida: una serie muy rápida (unas nueve por segundo) de notas bastante agudas (Johnsgard, 1986).
Fuente
Tipo de exhibición
Detalles
Guía original
abre la cola, un ala hacia arriba y otra hacia abajo; suave chillido; ofrece insectos, palitos o piedras
andar «majestuoso» alrededor de la hembra, con la cabeza alta y la cresta y la gorguera erguidas; gorjeos; deja caer el bocado y adopta de inmediato la posición de exhibición
un «suspiro» fuerte y áspero cuando parece esforzarse hacia la hembra, inclinando el plumaje hacia delante (Roles, 1976)
Howman (1993)
exhibe constantemente, sin preocuparse de las personas
fotografías de un macho exhibiéndose a una hembra sobre rocas (Howman, 1993)
GBP
los machos, en las zonas despejadas que limpian, baten rápidamente las alas mientras lanzan llamadas guturales
Las descripciones de cortejo se hacen sobre todo con aves cautivas; para la naturaleza solo hay las observaciones que cita GBP (Beebe, 1922; Forni, GBP; Johnsgard, 1986).
Pareja y llamada
La llamada que acompaña al cortejo es, según Delacour, citando a Terry Jones, un canto de gorjeos continuos y bajos que dura varios minutos mientras el macho se despliega delante de la hembra; Roles señala los gorjeos o «cheeps» con que el macho llama a la hembra antes de soltar el bocado y de adoptar la posición de exhibición (Delacour, 1977; Roles, 1976). En cautividad, el macho puede tener varias hembras, y en libertad se supone que es monógamo; véase el capítulo de comportamiento (BOW, 2020; Forni, GBP; Madge y McGowan, 2002).
10
Reproducción en la naturaleza
Poco más que lo que se sabe de unos pocos nidos: marzo a junio en la India, dos huevos, 21 días de incubación y pollos que se esconden bajo la cola de la madre.
En libertad los datos de reproducción son escasos y proceden de unos pocos nidos de Cachar y Assam y de observaciones de aves cautivas; la cría se da de marzo a junio en el nordeste de la India, sobre todo en abril y mayo, y la puesta es de dos huevos. (Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Johnsgard, 1986; WII, 2007)
Calendario
EFMAMJJASOND
Nordeste de la India (HBW, BOW, WII, Johnsgard)de marzo a junio, sobre todo abril y mayo
Bangladés (HBW, BOW)abril y mayo
Beebe (vol. I): faisanes pavo del nortedel norte, de marzo a mayo; más al sur se prolonga hasta junio
Beebe, según Baker: Cachar y Assammayo y junio son «seguramente» los meses favoritos; dos puestas de Margherita (Assam), de junio
GBPde abril a julio, con las lluvias
Cautividad (Beebe)de finales de febrero a finales de julio; lo habitual, finales de marzo y primera mitad de abril
Cautividad en el norte (guía original, criadero Chintaguay)principios de marzo
Cautividad en el sur (criadero Chintaguay)principios de septiembre
Howman (cautividad en el hemisferio norte)es de las especies que empiezan a poner más pronto, a finales de febrero; en su tabla, el inicio de la puesta tiene una «gran variación»
BOW y HBW dicen que el nido se sitúa en un hueco, normalmente en la base de una mata de bambú o en arbustos espesos, con preferencia por las marañas de vegetación secundaria (BOW, 2020; del Hoyo et al., 1994). Johnsgard, siguiendo a Baker (1930), añade que está siempre en una selva muy densa; que, si se pone entre bambúes, es en bambú mezclado con matorral y no en bosques de bambú ralo y abierto; que un sitio favorito es la vegetación secundaria enmarañada, casi impenetrable junto al suelo, y que casi siempre está a no más de unos cientos de yardas (unos 300 m) de un arroyo o una charca (Johnsgard, 1986). Baker dice que los huevos están en unas pocas hojas y desechos acumulados en un pequeño hueco, en un barranco o cerca de él, donde el sotobosque es denso (Beebe, 1922). Según Beebe, en la época de lluvias la hembra se retira a las zonas más recónditas de la selva, quizá a un bambusal denso, y pone los huevos en el suelo entre helechos, musgo y hojas caídas; se sienta tan quieta durante tres semanas que su plumaje pardo, moteado, se funde con la vegetación (Beebe, 1922). Él mismo encontró el nido de esta especie y de otra próxima, con dos huevos a medio incubar, y la hembra que casi pisó salió con un chillido que lo alarmó casi tanto como a ella (Beebe, 1922).
En el nido que encontró el señor Clarke, en Cachar, en mayo, con los huevos muy avanzados, el nido estaba al pie de un arbusto grande entre hierba y pequeña caña, en terreno ondulado; la hembra salió volando al acercarse ellos, y el cazador kuki que le acompañaba la capturó cubriendo el nido con una cesta de hierba en forma de cono: tras unos quince minutos, la hembra había vuelto al nido y se había metido en la cesta; el nido era circular, de unas nueve pulgadas (unos 23 cm) de diámetro y tres (unos 8 cm) de profundidad, hecho de ramitas y hojas colocadas sin orden y con un forro escaso de plumas de la propia ave, y lo bastante coherente como para trasladarse con el huevo; los huevos eran de color café con leche; el pollo que nació, cubierto de plumón grisáceo, parecía un polluelo de gallina y murió a la semana, pese a todos los cuidados (Beebe, 1922). El WII da el nido en el suelo, entre vegetación espesa (WII, 2007). GBP dice que es una fosa poco profunda excavada en la espesura, forrada de materiales blandos y secos del entorno, y que a veces se encuentra sobre elevaciones naturales, montones de ramas, troncos podridos o termiteros (Forni, GBP).
Puesta e incubación
Tras la cópula, la hembra pone dos huevos por puesta, de entre 44,5 y 51 mm de largo y de 37 a 39 mm de ancho, y puede realizar seis puestas. Los huevos son blanquecinos y se incuban durante 22 días. (Hernández García, 2014)
Beebe afirma que hay abundantes pruebas de que la puesta normal de esta especie y de todos los demás faisanes pavo es de dos huevos; en los archivos del boletín de la Sociedad de Aclimatación y otros lugares halló registros de al menos sesenta puestas, todas de dos huevos salvo una, de un solo huevo puesto el 25 de febrero, y añade unos treinta registros más, entre ellos media docena suyos (Beebe, 1922). Stuart Baker, citado por Beebe, escribió que en Cachar del norte ponen de dos a seis huevos, por lo común cuatro o cinco, como los de la gallina; Beebe lo contradice: en varias hembras que disecó solo había dos óvulos a punto de ser puestos y Hume escribió que en cautividad la hembra pone dos o tres veces al año y solo dos huevos por nidada (Beebe, 1922). Johnsgard dice que, en cautividad, la puesta es invariablemente de uno o dos huevos, y que la mayoría de las observaciones en libertad apoyan la puesta de dos, aunque Baker creía que en bakeri las de tres o cuatro no son raras y se han citado algunas de cinco o seis, y no creía que se debieran a la puesta de varias hembras (Johnsgard, 1986). Madge y McGowan dan «normalmente 2, raramente hasta 5» huevos de color crema pálido a ante achocolatado, con puntos blancos (Madge y McGowan, 2002). En cautividad, los huevos se ponen cada dos días y la hembra empieza a incubar en cuanto pone el segundo (Beebe, 1922).
Fuente
Huevos por puesta
Incubación
Observaciones
Guía original (2014) y tabla del criadero Chintaguay
Las cifras aproximadas de varias fuentes se aceptan como correctas; la mayoría da 21 días y Howman, el criadero Chintaguay y la guía original, 22.
Número de puestas
La ficha original dice que la hembra puede realizar seis puestas (Hernández García, 2014). Delacour dice que lo normal son cuatro o cinco puestas, que, si se retiran los huevos, la hembra pone de nuevo en un par de semanas, y que una hembra importada puso en Cleres en 1931 hasta dieciséis huevos; Beebe, que una hembra puede dar de ocho a doce o incluso catorce huevos en una temporada, si ésta y la dieta son favorables; Johnsgard, citando a Flieg (1973), de tres a seis puestas por temporada con un intervalo medio de 21 días entre ellas; Roles, hasta quince huevos por temporada, con tres o cuatro puestas por lo común; y Delacour (1978), que si se retiran pueden poner cinco veces entre marzo y junio (Beebe, 1922; Delacour, 1977; Delacour, 1978; Hernández García, 2014; Johnsgard, 1986; Roles, 1976). Howman escribe que, si se recogen los huevos, se pueden obtener puestas cada tres semanas durante un tiempo (1993) o cada cuatro (1979 y 1996) (Howman, 1979; Howman, 1993; Howman, 1996).
Los polluelos
Beebe, a partir de las aves cautivas, cuenta que el chillido del polluelo es mucho más agudo que el del pollo de gallina, pero se oye pocas veces, solo cuando está en apuros; que, cuando los cría una gallina enana, a veces los pisotea o muere de hambre más a menudo que en otras especies; que, con su propia madre, los dos pollos van pegados tras ella, bien a cubierto bajo la cola, y salen solo de vez en cuando, cuando ella los llama a un bocado, tras el cual vuelven a esconderse; que son tan fieles a ella que se les puede dejar ir con la madre todo el día sin peligro de que se pierdan, a diferencia de otros faisanes; y que, durante al menos una semana, toman todo su alimento del pico de la madre y pueden estar en un plato de comida sin saber comer hasta que ella recoge un bocado y se lo da; una vez que aprenden a comer solos, cazan insectos con gran rapidez y éxito y aprenden pronto a volar y a saltar al aire para perseguirlos (Beebe, 1922). Johnsgard lo confirma: los jóvenes siguen a la madre bajo su cola, que se lleva baja y algo abierta, y cuando ella encuentra un bocado llama y los pollos salen disparados a por él y vuelven a toda prisa; durante los primeros días se alimentan directamente del pico de la madre; Beebe añade que a esa edad cuesta distinguir los sexos (Beebe, 1922; Johnsgard, 1986).
La serie anterior muestra a una hembra con sus pollos de siete, trece y veintisiete días, y a un pollo de cuarenta y ocho días, en cautividad (Hernández García, 2014). Delacour describe al polluelo con plumón pardo oscuro por encima, con las bandas dorsales pálidas, y de ante rojizo por debajo; HBW y BOW, con plumón pardo oscuro por encima y beige rojizo o rufo por debajo (BOW, 2020; del Hoyo et al., 1994; Delacour, 1977). Beebe añade que, al mirar a la madre desde arriba, uno ignoraría a menudo que la acompañan pollos, de tan escondidos que van (Beebe, 1922).
11
Cría en cautividad
La especie de faisán pavo más fácil de mantener: rústica, mansa y de cría regular desde hace siglo y medio, aunque de pollos delicados los primeros días.
Los criadores conocen la especie desde mediados del siglo XIX: se adapta bien a la pajarera, es casi totalmente rústica y cría con regularidad, con pollos que necesitan un cuidado especial los primeros días. (Delacour, 1977; Hernández García, 2014; Howman, 1993; Roles, 1976)
Instalaciones y carácter
El faisán pavo gris alcanza la madurez sexual durante el primer año de vida. Las dimensiones aproximadas de la pajarera deben oscilar entre 10 y 15 m². (Hernández García, 2014)
Howman recomienda una pajarera mínima de 100 a 150 pies cuadrados (9,3 a 14 m²) para una pareja, con un buen refugio seco; dice que es casi totalmente rústica y que en los países templados solo necesita un refugio cerrado en los distritos muy fríos (Delacour, 1977; Howman, 1979; Howman, 1993; Howman, 1996). Delacour (1978) indica que los grises y los de Germain necesitan un refugio con calefacción solo si la temperatura baja de 20 °F (unos −7 °C); Gerrits, que es bastante resistente y que en nuestro clima requiere poco cuidado, aunque conviene un refugio; Roles, que es bastante resistente y que su manejo no difiere de forma importante del de los demás faisanes pavo (Delacour, 1978; Gerrits, 1974; Roles, 1976). Corder, para una pareja de faisanes pavo, recomienda como mínimo absoluto unos 100 pies cuadrados (10 m²), con mucha cobertura, y pide el mayor espacio posible; menciona que los faisanes pavo no mordisquean la hierba de sus recintos, por lo que se pueden tener en pajareras con césped (Corder).
Delacour recomienda, para el género, aislar cada pareja, porque los machos son monógamos, aunque en muy contadas ocasiones se han mantenido tríos con éxito; en Cleres asociaban a veces los faisanes pavo con tragopanes y gallos de la jungla en grandes pajareras plantadas, pero casi siempre el argus los perseguía por parecerse demasiado a ellos (Delacour, 1977). Corder cuenta que un polluelo de faisán de Swinhoe, criado sin problemas con dos polluelos de faisán pavo gris, fue de pronto expulsado de la comida por ellos, y que hubo que separarlo y alimentarlo aparte para que se recuperase (Corder). En una fotografía de Howman, de un macho de gris exhibiéndose, se ve la trampilla de acceso al refugio que hay detrás; Corder dice, para los faisanes en general, que lo habitual es poner esas trampillas a ras de suelo y cerca de una esquina, porque los faisanes caminan por el perímetro (Corder; Howman, 1979; Howman, 1993).
Howman dice, para los faisanes en general, que casi todos pueden aceptar cajas de nido; que se deben poner a principios de marzo, excepto para los faisanes pavo grises, que ponen antes y para los que hay que adelantarlas; que deben medir unas 18 pulgadas (46 cm) de largo y 12 × 12 pulgadas (30 × 30 cm) de sección, con un reborde de 3 a 4 pulgadas (8–10 cm) para retener la arena y la paja del fondo; y que se fijan unas pulgadas por encima del suelo, sobre ladrillos de 4,5 pulgadas (11 cm), para que no se pudran (Howman, 1993). Para los faisanes pavo, una cesta de nidificación a varios pies del suelo es probablemente preferible a una caja en el suelo (Howman, 1993).
Las puestas se describen en el capítulo de reproducción y el cortejo, en el del mismo nombre. En cautividad, Delacour dice que las hembras empiezan a poner a principios de marzo; que, si se retiran los huevos, ponen de nuevo en un par de semanas; y que los huevos no se conservan mucho tiempo, por lo que hay que ponerlos a incubar en pocos días; Roles añade que la viabilidad de los huevos de Polyplectron baja mucho más deprisa que la de otros géneros, y que hay que incubarlos, bajo gallina enana o en incubadora, lo antes posible; y Delacour (1978), que conviene usar una gallina ligera que llame bien a los pollos (Delacour, 1977; Delacour, 1978; Roles, 1976).
Incubación
Delacour dice que las hembras del gris son buenas madres y que la última puesta puede dejarse para que la incuben ellas; Gerrits, que la hembra es una madre extraordinariamente buena (Delacour, 1977; Gerrits, 1974). Howman recomienda criar los pollos bajo una gallina enana y, para ello, tener gallinas cluecas ya a finales de febrero, porque algunos faisanes, como el faisán pavo gris, empiezan a poner entonces; Howman da además consejos de manejo de las gallinas cluecas (separar las que están enfermas, tratar las parasitosis antes de la cría, dejar huevos en los nidos para que se pongan cluecas y construir un túnel que oscurezca el nido) (Howman, 1993).
La pauta general de incubación artificial de del Campo, medida siempre «a la altura media del huevo», es la siguiente (del Campo, 2006):
Fase
Valor recomendado
Conservación de los huevos antes de incubar
13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo
Cuándo empezar a incubar
Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo
Precalentamiento
6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación
Temperatura
37,5 °C durante toda la incubación, hasta que el pollo se seca
Humedad relativa
55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo
Volteo
3 o 4 veces al día, hasta tres días antes de la eclosión
Últimos tres días
Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora
Duración (faisán pavo gris)
22 días según la tabla de postura, Howman y la guía original; 21 según Beebe, Delacour, Johnsgard, Madge y McGowan, el HBW y BOW; 20–22 según la tabla del libro del autor
Después de nacer
24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días)
La alimentación de los pollos se realiza con un buen pienso para faisanes con un 40 % de proteínas. Hemos de tener cuidado inicialmente ya que este tipo de faisanes tienen dificultades para comer solos. (Hernández García, 2014)
Delacour dice, para los faisanes pavo, que los pollos son delicados los primeros días, se refugian bajo la cola de la madre y comen solo de su pico, sin querer picar el alimento del suelo; que, criados bajo una gallina enana, esta debe ser mansa y ligera y que, si no llama bien, hay que darles de comer a mano insectos en la punta de una aguja o de unas pinzas; y que asociar uno o dos polluelos de faisán dorado con ellos les enseña a comer y permite criarlos en criadoras eléctricas, aunque no hay que mezclarlos con demasiados otros, con seis como máximo; comen poco, y los insectos vivos, sobre todo los gusanos de la harina, son útiles los primeros días o semanas (Delacour, 1977). Beebe escribe que, si el polluelo sale de una gallina enana, puede morir pisoteado o de hambre más a menudo que en otras especies, y que, durante al menos una semana, los pollos solo comen del pico de la madre; si esta no los alimenta, hay que darles el alimento con unas pinzas pequeñas y puntiagudas, y, cuando han aprendido a comer solos, ya no corren peligro (Beebe, 1922). Howman aconseja criar los pollos bajo una gallina enana y, si se usa incubadora y lámpara, dar de comer a mano gusanos de la harina o larvas limpias de mosca los primeros días (Howman, 1979; Howman, 1993; Howman, 1996). Roles dice que los pollos no son especialmente difíciles, que se bastan solos tras los primeros días y que prosperan con un pienso de pollitos de alto contenido proteico, con insectos de complemento (Roles, 1976).
Semana
Días
Temperatura
Dónde
1
1–2
36 °C
Nacedora
1
2–7
32 °C
Criadora
2
8–14
30 °C
Criadora
3
15–21
28 °C
Criadora
4
22–28
26 °C
Criadora
5
29–35
24 °C
Jaula de recría (calor solo de noche durante la primera semana)
6–8
36–56
sin aporte
Jaula de recría
Pauta general de calor suplementario del criadero Chintaguay para faisanes; lo decisivo es observar a las aves (del Campo, 2006).
La anilla
Corder, que reproduce la tabla de anillas de Aviornis, da para el faisán pavo gris («Grey PP») un diámetro de 10 mm, el mismo que para las demás especies de faisán pavo; el libro del autor da el mismo valor (Corder; Hernández García, 2014).
Híbridos en la pajarera
Los híbridos del gris con el faisán pavo de Germain se han obtenido con frecuencia, y otros cruces se detallan en el capítulo de subespecies; Delacour añade que los faisanes pavo no parecen cruzarse con facilidad con otras aves de caza (Delacour, 1977). Recomendación editorial: no mezclar el gris con el de Germain ni con aves de subespecie desconocida en un programa de cría para la conservación.
Longevidad y datos de cautividad
Beebe cuenta que de treinta y nueve aves que pasaron por el Jardín Zoológico de Londres, la vida media fue de cuatro años y medio, y que una vivió quince años (Beebe, 1922). Johnsgard escribe, de los faisanes pavo en general, que suelen ser longevos (Johnsgard, 1986). La sinonimia de Beebe cita el trabajo de Mitchell (1911) sobre la longevidad de la especie en cautividad (Beebe, 1922).
Cría para la conservación
En el reparto de programas de conservación ex situ de la guía original, el faisán pavo gris figura como «No recomendado»: son las especies que no precisan de planes de conservación ex situ porque los ejemplares son insuficientes o inexistentes, o bien son muy abundantes y no hace falta acción (Hernández García, 2014). BirdLife indica que la especie no está sometida a conservación ex situ (BirdLife DataZone, 2024). Para comparar, el faisán pavo de Rothschild y el malayo tienen ESB europeo y el de Palawan, EEP (Hernández García, 2014).
Población en cautividad
Fecha
Fuente
Situación en cautividad
hasta 1940
Delacour (1977)
común en las pajareras europeas; después, unas pocas parejas; rara en América (Delacour, 1977)
hasta la Segunda Guerra Mundial
Gerrits (1974)
común en Europa; después, rara en Europa y poco frecuente en América (Gerrits, 1974)
1976
Roles (1976)
la especie más común en cautividad, bien representada en los Estados Unidos y en Europa (Roles, 1976)
bien representada, con dificultad para asegurar la pureza por la hibridación, sobre todo en EE. UU. y Canadá (Forni, GBP)
Ninguna de las fuentes consultadas da una cifra de ejemplares cautivos del faisán pavo gris.
12
Estado de conservación
De preocupación menor, con una enorme área de distribución y una población que no se ha cuantificado y que se sospecha en descenso.
LC
Preocupación menor
Especie de amplia distribución; la población se sospecha en descenso, pero no lo bastante rápido para acercarse a los umbrales de amenaza (BirdLife, 2024). Región: Sudeste asiático.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La justificación de la categoría
La UICN la clasifica como de preocupación menor (LC) en la evaluación de 2024. BirdLife explica que la especie tiene un área extremadamente grande y no se acerca a los umbrales de vulnerable por el criterio del tamaño del área (extensión de presencia inferior a 20.000 km² junto con un declive o una fluctuación); que el tamaño de la población no se ha cuantificado, pero no se cree que se acerque a los umbrales de vulnerable por el criterio del tamaño de la población (menos de 10.000 individuos maduros con un declive continuo superior al 10 % en diez años o tres generaciones); y que, aunque la tendencia parece decreciente, el declive no se considera lo bastante rápido para acercarse al umbral de vulnerable por el criterio de tendencia (más del 30 % en diez años o tres generaciones) (BirdLife DataZone, 2024). Como la duración de la generación es de 5,9 años, tres generaciones son unos 18 años (BirdLife DataZone, 2024).
2.590.000km²
de extensión de presencia, según BirdLife
5,9años
de duración de la generación, según BirdLife
9países
con presencia nativa y residente, según BirdLife
Cómo ha ido cambiando la valoración
Año
Fuente
Valoración
1994
HBW (Mace-Lande)
no amenazada a escala global; las formas bicalcaratum, bakeri, bailyi y ghigii «seguras»; la de Hainan, en peligro (del Hoyo et al., 1994)
2000
Fuller y Garson (plan de acción de los faisanes)
riesgo menor, preocupación menor: gran área de distribución, tolerante a cierto impacto humano (Fuller y Garson, 2000)
2002
Madge y McGowan
no se puede dar una valoración global de la población por la vaguedad de las evaluaciones y las diferencias entre países (Madge y McGowan, 2002)
2007
WII
categoría de la UICN «otros»; Anexo I de la ley india de protección de la vida silvestre; CITES II (WII, 2007)
BirdLife da como «no reconocida» la especie en sus evaluaciones de 1988, 1994, 2000, 2004 y 2008 (BirdLife DataZone, 2024).
El historial en la Lista Roja, según BirdLife
Año
Categoría de la Lista Roja
Criterios
2024
Preocupación menor (LC)
N/A
2016
Preocupación menor (LC)
–
2013
Preocupación menor (LC)
–
2012
Preocupación menor (LC)
–
2010
Preocupación menor (LC)
–
2008, 2004, 2000, 1994 y 1988
No reconocida
–
Un cambio de categoría no refleja necesariamente un cambio real, sino quizá un mejor conocimiento (BirdLife DataZone, 2024).
Población silvestre: todas las estimas
Año
Fuente
Estima
Base
2024
BirdLife
sin cuantificar
«localmente común a bastante común y rara» (del Hoyo et al., 1994); sospechada en descenso (BirdLife DataZone, 2024)
2020
BOW
sin cifra mundial
rara en Bangladés, muy rara y en descenso en China, bastante común en las zonas mejor protegidas de Tailandia (miles); sana en Laos (BOW, 2020)
2002
Madge y McGowan
sin cifra mundial
localmente no rara en el nordeste de la India y frecuente en Bután; rara y local en Tailandia; razonablemente común en Laos (Madge y McGowan, 2002)
1994
HBW
sin cifra mundial; en Tailandia, «miles»
Tailandia: población estimada en miles, quizá estable o en ligero descenso (del Hoyo et al., 1994)
c. 1918–1922
Beebe
sin cifra; trece aves en una caminata de 6–8 km
él mismo vio la especie como localmente bastante común (Beebe, 1922)
Ninguna de las fuentes consultadas da una cifra de individuos de la especie.
Tendencia
BirdLife califica la tendencia de decreciente, con derivación sospechada, y no sabe si hay un declive continuo en el número de individuos maduros, en el de subpoblaciones o en la extensión de presencia o el área de ocupación; considera que no hay fluctuaciones extremas (BirdLife DataZone, 2024). Según HBW, en China el área de la especie «se reduce» en Hainan (la forma ahora separada), pero quizá se amplía en Yunnan; Madge y McGowan precisan que en China podría ser expansión aparente por la intensidad de las búsquedas (del Hoyo et al., 1994; Madge y McGowan, 2002).
Medidas de conservación
BirdLife indica que no hay plan de recuperación, ni programa de seguimiento sistemático, ni plan de gestión de la caza ni control de especies invasoras; que se han identificado sitios de conservación en todo el área, y que la especie no está sometida a conservación ex situ; ninguna de las fuentes consultadas propone medidas específicas distintas de la protección del hábitat (BirdLife DataZone, 2024; del Hoyo et al., 1994; Madge y McGowan, 2002). Madge y McGowan dicen que los datos de población son demasiado vagos para una valoración global y que no hay datos recientes de Myanmar (HBW dice lo mismo de Birmania y de Laos) (del Hoyo et al., 1994; Madge y McGowan, 2002); el WII recoge la presencia de la especie en áreas protegidas del nordeste de la India y la caza fuera de ellas (WII, 2007).
Poblaciones introducidas y asilvestradas
Ninguna de las fuentes consultadas (BirdLife, BOW, HBW, Madge y McGowan, Delacour, Johnsgard, WII, Wikipedia, GBP y los libros de aviculturas) menciona poblaciones introducidas o asilvestradas del faisán pavo gris; BirdLife da todos los países de presencia como de origen nativo y residente, y no registra introducciones ni reintroducciones (BirdLife DataZone, 2024; del Hoyo et al., 1994; Forni, GBP; Madge y McGowan, 2002; Wikipedia). Wikipedia ilustra su artículo con un ave de un centro de naturaleza de Birmingham, es decir, cautiva (Wikipedia).
Población en cautividad
Véase el capítulo de cría en cautividad: ninguna fuente da una cifra de ejemplares cautivos del gris, y todas coinciden en que es la especie de faisán pavo más frecuente en las colecciones (Forni, GBP; Hernández García, 2014; Roles, 1976).
Áreas protegidas
BirdLife identifica tres IBA/KBA para la especie, todas en la India (Barail, Thorangtlang y los bosques de la cordillera de Barail), con una cobertura media de área protegida del 0 % (BirdLife DataZone, 2024). El WII, el HBW y Madge y McGowan citan además numerosas áreas protegidas con presencia de la especie en el nordeste de la India, Tailandia y Vietnam (véase el capítulo de distribución) (del Hoyo et al., 1994; Madge y McGowan, 2002; WII, 2007).
CITES
La especie figura en el Apéndice II de la CITES según BirdLife (con 183 partes), HBW, Howman (1993), WII y Wikipedia (BirdLife DataZone, 2024; del Hoyo et al., 1994; Howman, 1993; WII, 2007; Wikipedia). BirdLife marca como «No» las casillas «incluida en legislación internacional» y «sometida a controles internacionales de gestión o comercio», y a la vez lista el Apéndice II de la CITES entre los instrumentos clave; la discrepancia es del propio documento (BirdLife DataZone, 2024).
13
Amenazas y protección
La pérdida de bosque, los lazos y el comercio de aves vivas y de carne: presiones localmente graves sobre una especie extendida.
HBW, BOW y Madge y McGowan dicen que la presión principal es la que sufre el hábitat, aunque la caza excesiva también es un problema; BOW añade que es más abundante en bosque primario que en bosque talado (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002). BirdLife sospecha que la población decrece por la pérdida y la degradación del hábitat y, localmente, la sobreexplotación (BirdLife DataZone, 2024). Fuller y Garson recogen que la agricultura de rozas, en el nordeste de la India, ha afectado a los hábitats del tragopán de Blyth y del faisán pavo gris (Kaul et al., 1995) (Fuller y Garson, 2000). Johnsgard escribe que la especie prospera bajo la sucesión de bosque secundario y que probablemente seguirá siendo relativamente común, aunque la deforestación es una amenaza en algunas zonas (Johnsgard, 1986). En el sur de China, en la isla de Hainan, la tala pone presión sobre la forma de Hainan (hoy especie aparte) (Fuller y Garson, 2000).
La ficha de BirdLife no detalla la gravedad, el plazo ni el alcance de cada amenaza (BirdLife DataZone, 2024).
Caza y trampeo
Beebe cuenta que las aves son capturadas con lazos en gran número, y que en los claros nuevos que abren en el bosque los habitantes de Cachar las cazan cuando salen al borde del claro a primera hora de la mañana: se dobla un árbol joven y se ata a la punta un cordel con un lazo clavado y extendido alrededor de un hueco poco profundo; en el fondo, unos trozos de bambú sirven de pedal y llevan atadas bayas rojas que el ave busca; un solo picotazo suele soltar el disparador y el lazo atrapa el cuello o las patas; para atrapar un ave viva se usa un árbol delgado, que le permite apoyarse en el suelo, y el lazo se revisa antes del anochecer; para el consumo se usa un resorte más fuerte, que alza al ave, y que a menudo la mata en el acto y la sube fuera del alcance de las civetas, los chacales y otros carnívoros (Beebe, 1922). En Tenasserim se atrapa a la hembra al nido con una cesta de hierba en forma de cono (Beebe, 1922). Delacour dice que son fáciles de capturar con lazos tendidos junto a vallas o atados a un árbol joven (Delacour, 1977).
Johnsgard dice que la especie es muy vulnerable al lazo (Baker, 1930; Beebe), pero que eso no parece una amenaza grave salvo muy localmente, y que, al parecer, no se caza específicamente por sus plumas ni por su carne (Johnsgard, 1986). El WII dice, en cambio, que la especie es muy buscada por los cazadores; en las encuestas de los estados del nordeste y el Himalaya, la especie se cazó en los dos estados estudiados en que estaba presente (el 100 %), y en los mercados de Nagaland, Arunachal Pradesh y Mizoram estudiados en 2006–2007 se vendió un faisán pavo gris por 350–400 rupias; en Damdei (Manipur) se encontraron muchas aves y cálaos recién cazados, a pesar de que el hábitat estaba en buen estado (WII, 2007). Madge y McGowan dicen que la caza es un problema serio en algunas áreas, y BOW, que en Laos, pese a la caza furtiva intensa, las poblaciones parecen sanas (BOW, 2020; Madge y McGowan, 2002).
Uso y comercio
Beebe vio, en una tienda de Calcuta, cincuenta o más cajas con aves vivas a la espera de ser embarcadas hacia Europa; Delacour confirma que las capturas de aves silvestres siguieron llegando de la India y de Indochina hasta hace poco (Beebe, 1922; Delacour, 1977). BirdLife señala que la especie se encuentra en tres de siete conjuntos de datos de comercio evaluados, con una prevalencia alta (BirdLife DataZone, 2024). Para el consumo local, véase el apartado anterior (WII, 2007).
Protección legal
La especie figura en el Apéndice II de la CITES, que obliga a controlar el comercio internacional, y en la India está incluida en el Anexo I de la ley de protección de la vida silvestre (Wild Life Protection Act) (BirdLife DataZone, 2024; Howman, 1993; WII, 2007). Howman recuerda que la CITES afecta a la compra y la venta de las especies incluidas, que cada país la administra de una forma y que, ante cualquier duda, conviene consultar a la oficina oficial correspondiente (Howman, 1993).
Cuatro subespecies en la guía original, cinco en los clásicos y ninguna en las listas actuales: una especie de gris al oeste y pardo al este, con formas poco conocidas.
Se reconocen cuatro subespecies de faisán pavo gris, descritas a continuación junto con su área de distribución y sus rasgos distintivos; no obstante, como se explica en la información ampliada del final de la página, su validez no está exenta de controversia. (Hernández García, 2014)
La información ampliada de la página de subespecies de la ficha original dice que el IOC no reconoce actualmente ninguna subespecie válida para P. bicalcaratum; que la forma de Hainan, antes tratada como subespecie (P. b. katsumatae), se considera hoy una especie de pleno derecho, el faisán pavo de Hainan; y que P. b. bailyi fue descrita a partir de un único ejemplar cautivo de origen desconocido, lo que arroja dudas sobre su validez como taxón silvestre (Wikipedia). Birds of the World trata hoy a Polyplectron bicalcaratum como especie monotípica, sin subespecies reconocidas, pero su ficha describe variación geográfica entre las formas clásicas: el macho es más grisáceo en el oeste (más pálido en bakeri y más oscuro en bailyi) y más pardo en el este; en ghigii se ha señalado además que los ocelos están completamente rodeados de beige, aunque se entremezcla con la forma nominal en Laos (BOW, 2020).
Chittagong, colinas Chin y Kachin, nordeste de Assam y Birmania; al este, hasta el oeste de Tonkin; al sur, hasta el sur de Tenasserim y el suroeste de Siam en el oeste, y el centro de Laos (Nape) en el este (Delacour, 1977). Madge y McGowan: sur de China, Myanmar y este de Bangladés hasta el norte de Laos; HBW: oeste y sur de Birmania, hacia el este por el suroeste de China (oeste de Yunnan) hasta el noroeste de Vietnam, y hacia el sureste hasta el suroeste de Tailandia, al norte del istmo de Kra (del Hoyo et al., 1994; Madge y McGowan, 2002).
Rasgos distintivos
Macho y hembra parecidos a bakeri, pero en general más pardos, con manchas y rayas ante; Madge y McGowan toman esta forma como referencia de su descripción de la especie (Delacour, 1977; Madge y McGowan, 2002). Una serie de machos de Margherita (alto Assam, al sur del Brahmaputra) es idéntica a los birmanos; las plumas de ala y cola de un macho adulto y de uno inmaduro que encontró Dillon Ripley en diciembre de 1947 en Dening (colinas Mishmi, al norte del Brahmaputra) son más oscuras que las de ninguna otra ave, con fondo pardo negruzco y manchas ante, y Delacour cree que probablemente se pueda nombrar una subespecie nueva cuando haya ejemplares completos de esa zona (Delacour, 1977; Madge y McGowan, 2002).
Tamaño
Beebe (aves de Birmania): ♂ 680–750 mm de longitud, ala 215–230 mm, cola 355–430 mm, tarso 75 mm; ♀ 500 mm, ala 190 mm, cola 250 mm, tarso 67 mm. Cheng et al. (1978, según Johnsgard): cuatro ♂ de 660–710 g y dos ♀ de 460 y 500 g (Beebe, 1922; Johnsgard, 1986).
Estado
HBW (Mace-Lande, 1994): «segura»; según Delacour, llega pocas veces de Birmania a las colecciones; Roles conoce en cautividad esta forma y bakeri; la nominal se crio por primera vez en 1863, según Roles (del Hoyo et al., 1994; Delacour, 1977; Roles, 1976).
Autor y localidad tipo
Linnaeus, 1758 (Systema Naturae, 10.ª ed., p. 156; como Pavo bicalcaratus); «China» (error); localidad restringida a Thoungyah (Birmania) por Lowe (Avibase; del Hoyo et al., 1994; Delacour, 1977).
Faisán pavo gris o Chinquis, que vive en Birmania, el este de Bangladés, el suroeste de China (oeste de Yunnan), el oeste y el suroeste de Tailandia, el norte de Laos y el noroeste de Vietnam (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). La tarjeta original no llevaba texto; la imagen es la que asigna a esta forma (un detalle del plumaje, sin pie ni autor) (Hernández García, 2014).
Faisán pavo gris del Himalaya
Polyplectron bicalcaratum bakeriLowe, 1925
Distribución
Sikkim, Bután y oeste de Assam, hacia el sur hasta Manipur y Sylhet, entremezclándose con la forma nominal en el este del área (Delacour, 1977; Johnsgard, 1986); Madge y McGowan: nordeste de la India (de Sikkim a Assam y Arunachal Pradesh) y Bután; HBW: colinas del nordeste de la India y Bután, de Sikkim al este hasta Manipur y quizá hasta Birmania; GBP: territorios de colinas del nordeste de la India, del centro y este de Bután, oeste de Assam y este de Manipur, y probablemente Myanmar (del Hoyo et al., 1994; Forni, GBP; Madge y McGowan, 2002).
Rasgos distintivos
Tono general grisáceo; manchas y marcas blanco ante o blancas; la más pálida y más gris de las formas, según Madge y McGowan (Delacour, 1977; Madge y McGowan, 2002). GBP la describe de color gris plata en ambos sexos, con el macho de manchas y variegaciones blancas puras, ocelos pardo azulados con reflejos azul cielo, violeta oscuro y rojo púrpura, piel desnuda alrededor del ojo rojo rosada e iris blanquecino; en la hembra adulta, garganta blanca, ocelos violeta e iris gris (Forni, GBP). El libro del autor añade que los ocelos de la cola no están rodeados por bandas estrechas grises (Hernández García, 2014).
Tamaño
Delacour: ♂ 650–750 mm de longitud, ala 210–240 mm, cola 350–400 mm, culmen 22–25 mm, tarso 75–80 mm; ♀ 550 mm, ala 175–215 mm, cola 230–255 mm, culmen 18–20 mm, tarso 65–70 mm; huevos de 45–51 × 37–38 mm. Madge y McGowan: ♂ 568–910 g, ♀ 460–500 g (dos aves). Johnsgard: huevos de unos 48 × 37,5 mm, de 37,3 g de peso fresco estimado (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Estado
HBW (Mace-Lande, 1994): «segura»; es, con bailyi, la forma que se embarca con más frecuencia desde Calcuta y la que Roles conoce en cautividad, junto con la nominal (del Hoyo et al., 1994; Delacour, 1977; Roles, 1976).
Autor y localidad tipo
Lowe, 1925 (Ibis, p. 477); «Bhutan Doars» (Delacour); Avibase da el nombre original Polyplectron bicalcaratum bakeri(Avibase; Delacour, 1977).
Faisán pavo gris del Himalaya, que vive en Sikkim, Bután, Assam y Manipur, según la tarjeta original, que añade que presenta manchas y dibujos blancos y mide entre 65 y 70 cm (macho) y 55 cm (hembra). La tarjeta no llevaba fotografía y se mantiene sin ella (Hernández García, 2014). Las fuentes consultadas no dicen a quién honra el epíteto bakeri en este caso (Jobling no recoge un Baker de Polyplectron) (Jobling, 2010).
Desconocida; Delacour piensa que no es Siam, como se sugirió, sino quizá partes del oeste de Assam o del Himalaya oriental, porque la mayoría de los ejemplares vivos embarcados desde Calcuta pertenecen a esta forma tan gris; HBW: desconocida, quizá oeste de Assam o Himalaya oriental; Madge y McGowan: Himalaya oriental, probablemente nordeste de la India, con la localidad de los ejemplares incierta (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002).
Rasgos distintivos
Parecida a bakeri, pero aún más gris y oscura, con manchas y rayas de un blanco puro; Madge y McGowan: gris muy oscuro, con marcas casi blancas puras (Delacour, 1977; Madge y McGowan, 2002). GBP escribe que el macho se parece a bakeri pero con el gris más oscuro, y que la hembra carece de pequeños ocelos (o los tiene muy escasos) en las plumas de la cola y las coberteras caudales, donde hay barras anchas y muy visibles (Forni, GBP).
Wikipedia: descrita a partir de un ave cautiva de procedencia desconocida; se han visto ejemplares parecidos en ocasiones, pero la validez del taxón y, si es distinto, su área siguen sin conocerse (marcada como «disputada») (Wikipedia).
Autor y localidad tipo
Lowe, 1925 (Ibis, p. 482); localidad desconocida; Avibase da el nombre original Polyplectron bicalcaratus bailyi(Avibase; Delacour, 1977). Roles lo escribe «baileyi» (Roles, 1976). La lámina LXXVII de Beebe, rotulada «germaini», representa, según Lowe, esta forma (Delacour, 1977; Johnsgard, 1986).
Centro y norte de Annam al norte de los 16° N y este de Tonkin, entremezclándose con la forma nominal a lo largo del río Rojo y en el centro de Laos (Delacour, 1977); Madge y McGowan: centro de Laos y norte y centro de Vietnam, con intermedios con la forma nominal citados en Laos; GBP: norte y centro de Vietnam, centro de Laos, extremo norte de Camboya y quizá el sureste de China (Forni, GBP; Madge y McGowan, 2002).
Rasgos distintivos
Parecida a la nominal, pero algo más parda; los ocelos de las timoneras están siempre rodeados por completo por un ancho borde gris ante, no atenuado hacia la punta como en las demás subespecies (Delacour, 1977). Madge y McGowan: más pardo que la nominal, con los bordes ante de los ocelos de la cola completos y limpios, sin cortes por la punta del ocelo (Madge y McGowan, 2002). Johnsgard, en su clave: mayor (ala por lo general de más de 200 mm) que la forma de Hainan (Johnsgard, 1986). GBP: macho gris humo oscuro, con piel desnuda alrededor del ojo gris pizarra claro; hembra parecida a la de bailyi, pero con estrías más marcadas (Forni, GBP).
HBW (Mace-Lande, 1994): «segura»; Delacour la llevó vivas a Cleres desde Annam y Tonkin; la lámina de Delacour muestra una hembra y un macho en despliegue de esta forma (del Hoyo et al., 1994; Delacour, 1977).
Autor y localidad tipo
Delacour y Jabouille, 1924 (Bulletin of the British Ornithologists’ Club 45: 30); Mailanh, Annam (Delacour); Avibase da el nombre original Polyplectrum chinquis ghigii(Avibase; Delacour, 1977).
Faisán pavo de Ghigi, que vive «en Laos, norte y centro de Vietnam», según la tarjeta original, que añade que tiene los ocelos bordeados por una anilla gris y mide entre 65 y 70 cm (macho) y 55 cm (hembra). La tarjeta no llevaba fotografía y se mantiene sin ella (Hernández García, 2014). Las fuentes consultadas no explican a quién honra el epíteto; Delacour menciona la pajarera del profesor Ghigi en Bolonia (Delacour, 1977).
Clave dicotómica de Johnsgard (1986): tramo que lleva a la especie y a sus subespecies
A. Rectrices centrales con ocelos bien desarrollados; zona facial desnuda grande en los adultos
B. Manto y cubiertas con ocelos metálicos, tarsos con espolones; cabeza con cresta (machos)
C. Plumaje ventral pardo; costados del pecho no iridiscentes; cola sin bandas o motas subterminales oscuras
D. Rectrices externas sin ocelos en la barba interna; cola de menos de 350 mm: faisán pavo malayoPolyplectron malacense
DD. Rectrices externas con ocelos en la barba interna; cola de más de 350 mm
E. Color general gris negruzco oscuro; garganta no blanca; piel facial rojiza: faisán pavo de GermainPolyplectron germaini
EE. Color general gris claro; garganta blanca; piel facial amarillenta: faisán pavo gris
F. Ocelos de las rectrices rodeados de anchas bandas gris ante
G. Mayor (ala por lo general de más de 200 mm): faisán pavo gris de GhigiPolyplectron bicalcaratum ghigii
GG. Menor (ala de menos de 200 mm): faisán pavo gris de HainanPolyplectron katsumatae
FF. Ocelos de la cola no rodeados de anchas bandas gris ante
G. Más gris, con manchas y rayas de un blanco puro: faisán pavo gris de LowePolyplectron bicalcaratum bailyi
GG. Más pardo, con más manchas y rayas ante
H. Más grisáceo, con las manchas más blanquecinas: faisán pavo gris del HimalayaPolyplectron bicalcaratum bakeri
HH. Más pardusco, con las manchas más ante: faisán pavo gris birmanoPolyplectron bicalcaratum bicalcaratum
BB. Sin espolones ni cresta; iridiscencia del manto reducida o ausente (hembras)
C. Rectrices externas con ocelos bien definidos en las dos barbas; ocelos del manto a menudo algo iridiscentes
D. Márgenes posteriores de los ocelos dorsales redondeados, con un flequillo blanco suelto; cuerpo en general más gris: faisán pavo grisPolyplectron bicalcaratum
DD. Márgenes posteriores de los ocelos dorsales con chevrones o bordes en flecha; cuerpo en general más pardo: faisán pavo de GermainPolyplectron germaini
Johnsgard dice que es la más extendida y variable de los faisanes pavo, con variación tanto en color como en tamaño; que la forma más pequeña y parda es la más oriental (la de Hainan, aislada); que las formas continentales muestran un cambio clinal del gris del oeste al pardo del este (hasta aproximarse a germaini, que se puede considerar la representante más sudoriental de la serie), con poca o ninguna variación de tamaño; y que la cresta y la gorguera cortas de la de Hainan, junto con su tamaño reducido, sugieren un eslabón intermedio con germaini(Johnsgard, 1986). Delacour dice que los grises continentales varían gradualmente, más grises al oeste y más pardos al este, y que las subespecies son difíciles de distinguir en cautividad (Delacour, 1977). Roles describe las mismas gradaciones: bakeri, la más occidental, es grisácea con marcas blanco ante a blancas; bailyi, más gris y oscura, con marcas blancas puras; la nominal, más parda, con marcas ante; y ghigii, más parda aún, con el ancho borde gris ante de los ocelos de la cola (Roles, 1976).
El faisán pavo de Hainan, antigua subespecie
El faisán pavo de Hainan (Polyplectron katsumatae Rothschild, 1906) es, en esta guía y en las listas actuales, una especie aparte con su propia ficha. Beebe lo trató ya como especie; Delacour, Johnsgard y HBW, como subespecie del gris; Madge y McGowan, de nuevo como especie; el libro del autor lo cuenta como subespecie en el volumen I (con una nota) y como especie con ficha propia en el II, donde señala que el IOC lo trata como especie independiente desde 2010 (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2013; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). Es la forma más pequeña (macho de 53–65 cm, hembra de 40–45 cm), con ocelos azules y verdes y el borde blanco ancho en la punta; sus datos propios están en su ficha (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002).
Híbridos
Cruce
Resultado
Fuente
Gris × Germain
híbridos obtenidos con frecuencia en cautividad; es el único cruce que marca la tabla de hibridación del criadero Chintaguay para el gris (hibridación reportada en cautividad); Avibase registra el híbrido Polyplectron bicalcaratum × germaini; ninguna fuente dice si son fértiles
según Denton (1978, citado por Johnsgard), los híbridos de Rothschild y gris son plenamente fértiles; un híbrido F1 hizo la exhibición frontal del gris y un macho retrocruzado con el de Rothschild tendió a hacerla lateral; un grupo de híbridos F1 con gris, con solo un año de edad, puso seis huevos y sacó dos pollos que murieron en una semana
La tabla de hibridación del criadero Chintaguay, adaptada de Johnsgard (1999), no marca ningún otro cruce para el gris (del Campo, 2006; Johnsgard, 1999).
Mutaciones de color
Ninguna de las fuentes consultadas menciona mutaciones de color del faisán pavo gris; la ficha de del Campo recoge solo las subespecies (del Campo, 2006).
Estudios genéticos
Según Wikipedia, los datos del ADN mitocondrial (citocromo b y bucle D) y de un intrón nuclear (ovomucoide G) confirman que el gris pertenece a un clado continental asiático con el faisán pavo de Germain, el de Sumatra y el de Rothschild; la secuencia de la ovomucina parece haber evolucionado de forma convergente o con una menor tasa de mutación en el gris y en el de Sumatra; y, al faltar estudios filogeográficos específicos, los datos moleculares tienen un valor limitado en esta especie, porque no se sabe el origen de los ejemplares analizados (Wikipedia).
15
Cultura y curiosidades
Un ave dibujada en Londres antes de recibir nombre científico, citada por Darwin, ave nacional de Myanmar según Avibase y centro de creencias sobre sus espolones.
Las fuentes consultadas recogen pocos usos culturales de la especie, pero sí algunas curiosidades: un dibujo de 1745, una cita de Darwin, una creencia de los meos sobre los espolones y la condición de ave nacional de Myanmar. (Avibase; Beebe, 1922; Delacour, 1977)
Ave nacional de Myanmar
Avibase recoge, en su resumen tomado de Wikipedia, que el faisán pavo gris es el ave nacional de Myanmar (Avibase). El artículo de Wikipedia consultado el 14 de noviembre de 2026 ya no incluye esa frase (Wikipedia). Las demás fuentes consultadas no la mencionan.
Un ave dibujada antes de tener nombre
Las láminas 67 y 69 de Edwards, de 1747, y la página de Buffon (1771) que se reproduce en el capítulo de historia son los primeros retratos y el primer artículo dedicado a la especie; Linneo bautizó el ave en 1758 a partir de las láminas de Edwards (Avibase; Beebe, 1922; Buffon, 1771). Darwin dedicó a la exhibición del Polyplectron un párrafo y un grabado en El origen del hombre, según Beebe (Beebe, 1922).
Un rinoceronte y un faisán pavo
Beebe cuenta que, en su último día en el campamento, mientras recorría el fondo de un barranco, vio algo brillar entre las plantas y creyó que era el lomo de un búfalo de agua revolcándose en el barro: era un rinoceronte, que no esperaba ver en una región tan septentrional (los nativos no habían visto ninguno desde hacía once años); un faisán pavo gris salió sin miedo de la ladera cubierta de palmeras hacia la bestia, bebió junto a ella, que bufaba y se revolcaba, y se internó en la espesura sin volver la cabeza. Beebe lo atribuyó a que estaba acostumbrado a los gaur, o «bisontes», de la zona (Beebe, 1922).
El número de espolones y la voz: una creencia de los meos
Delacour recoge que los meos, que ya habían notado las anomalías en el número de espolones, creían que algunos machos tienen siete u ocho, y que cuando un faisán pavo llama repite su nota tantas veces como espolones tiene; el ave de cinco espolones de David-Beaulieu llamaba exactamente cinco veces cada vez (Delacour, 1977).
Nombres en las lenguas locales
Los nombres locales que recogen las fuentes (asamés, garo, naga, birmano, kachin y chino) figuran en el capítulo de sistemática (Beebe, 1922; WII, 2007). Los nombres del chino son «hui-kongquezhi» en la ficha original y 灰孔雀雉 (huī kǒng-què zhì) en Avibase (Avibase; Hernández García, 2014).
Sellos, monedas y usos tradicionales
Ninguna de las fuentes consultadas menciona sellos, monedas ni usos tradicionales (alimentarios, medicinales o rituales) de la especie, salvo la caza y la venta de carne en el nordeste de la India, que se tratan en el capítulo de amenazas (WII, 2007).
Láminas, fotografías y libros
La especie figura en las láminas 26 y 27 de Delacour (de ghigii, hembra y macho exhibiéndose), en la lámina 44 de Madge y McGowan (152a y 152b), en la lámina I y la figura 39 de Gerrits (con una lámina en color), en la lámina LXXVI de Beebe y en sus fotograbados del nido y los huevos y de las exhibiciones lateral (65) y frontal (66), en las fotografías de Kenneth W. Fink y Jean Howman de Howman (1993), en las láminas de aves cautivas de Roles (1976) y en las figuras de Johnsgard (la 36, con las posturas del macho, dibujadas a partir de fotografías del autor) (Beebe, 1922; Delacour, 1977; Gerrits, 1974; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976). El libro del autor reproduce un dibujo de John Gould de A century of Birds from the Himalayas (1830–1832), de dominio público (Hernández García, 2014). Beebe cita además, en su sinonimia, la lámina 50 de The Birds of Asia de Gould (1871) para este ave (Beebe, 1922).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Avibase: la base de datos de aves del mundo (Lepage, D., Bird Studies Canada). Polyplectron bicalcaratum (Linnaeus, C 1758), identificador 824E5471AC97F6CD. avibase.bsc-eoc.org. Consultada el 14 de noviembre de 2026 (resumen, nombres vernáculos y tabla de sinonimia).
Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
BirdLife International (2024). Polyplectron bicalcaratum. The IUCN Red List of Threatened Species 2024: e.T22736199A263601893. doi:10.2305/IUCN.UK.2024-2.RLTS.T22736199A263601893.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
BirdLife International (2024). Species factsheet: Grey Peacock-Pheasant Polyplectron bicalcaratum. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2024). datazone.birdlife.org. Descargada el 14 de noviembre de 2026. La ficha remite a del Hoyo et al. (1994), Bird et al. (2020) y Donald et al. (2024), que no se han consultado directamente.
Buffon, G.-L. Leclerc, conde de (1771). Histoire naturelle des oiseaux, t. II. París: Imprimerie royale, artículo «Le Chinquis», p. 365 (fecha y paginación según la sinonimia de Beebe, 1922; solo se ha visto la página 365, reproducida en esta ficha). Obra de dominio público.
Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan; ficha 147, Grey Peacock-pheasant, pp. 547–548).
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; láminas de dominio público).
Forni, G. Global Bird Project (GBP.bio): Polyplectron bicalcaratum (texto en italiano). gbp.bio/polyplectron-bicalcaratum (consultada el 14 de noviembre de 2026). La ficha original de esta web toma de ella algunos recuadros; remite a BirdLife International (2013), Lalthanzara et al. (2014) y Sathyakumar y Kaul (2007), que no se han consultado directamente.
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
McGowan, P. J. K., Kirwan, G. M. y Christie, D. A. (2020). Gray Peacock-Pheasant (Polyplectron bicalcaratum), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/grypep2 · doi:10.2173/bow.grypep2.01. El texto completo es de pago; en la consulta del 14 de noviembre de 2026 solo fue accesible la introducción (especie monotípica, categoría LC, 33 nombres, publicada el 4 de marzo de 2020, texto actualizado por última vez el 16 de octubre de 2015); los demás datos de esta ficha que se atribuyen a BOW proceden de los recuadros de la ficha original de esta web.
Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
Sathyakumar, S. y Sivakumar, K. (eds.) (2007). Galliformes of India. ENVIS Bulletin: Wildlife and Protected Areas, vol. 10 (1). Dehradun: Wildlife Institute of India. Ficha de especie del faisán pavo gris (p. 49 del boletín), capítulos sobre los galliformes del Himalaya y del nordeste de la India (Sikkim, Arunachal Pradesh, Manipur, Nagaland, Mizoram y Assam) y sobre la caza y los mercados (según Kaul et al. y Hilaluddin et al., que no se han consultado directamente).
Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
Wikipedia (en inglés). Grey peacock-pheasant. en.wikipedia.org/wiki/Grey_peacock-pheasant (consultada el 14 de noviembre de 2026). Los datos atribuidos a Wikipedia proceden de los recuadros de la ficha original de esta web y del artículo vigente.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán pavo gris — Polyplectron bicalcaratum. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/chinquis.php.

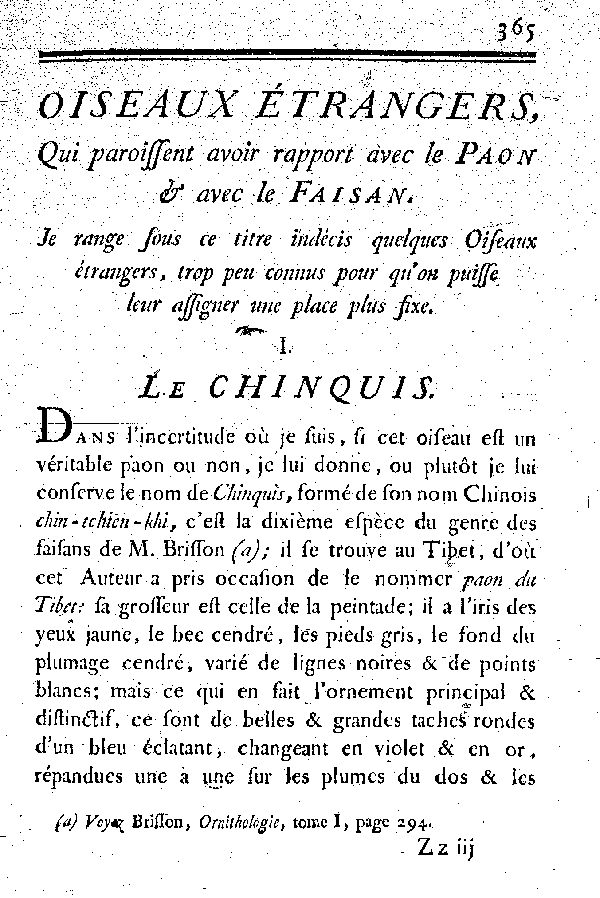
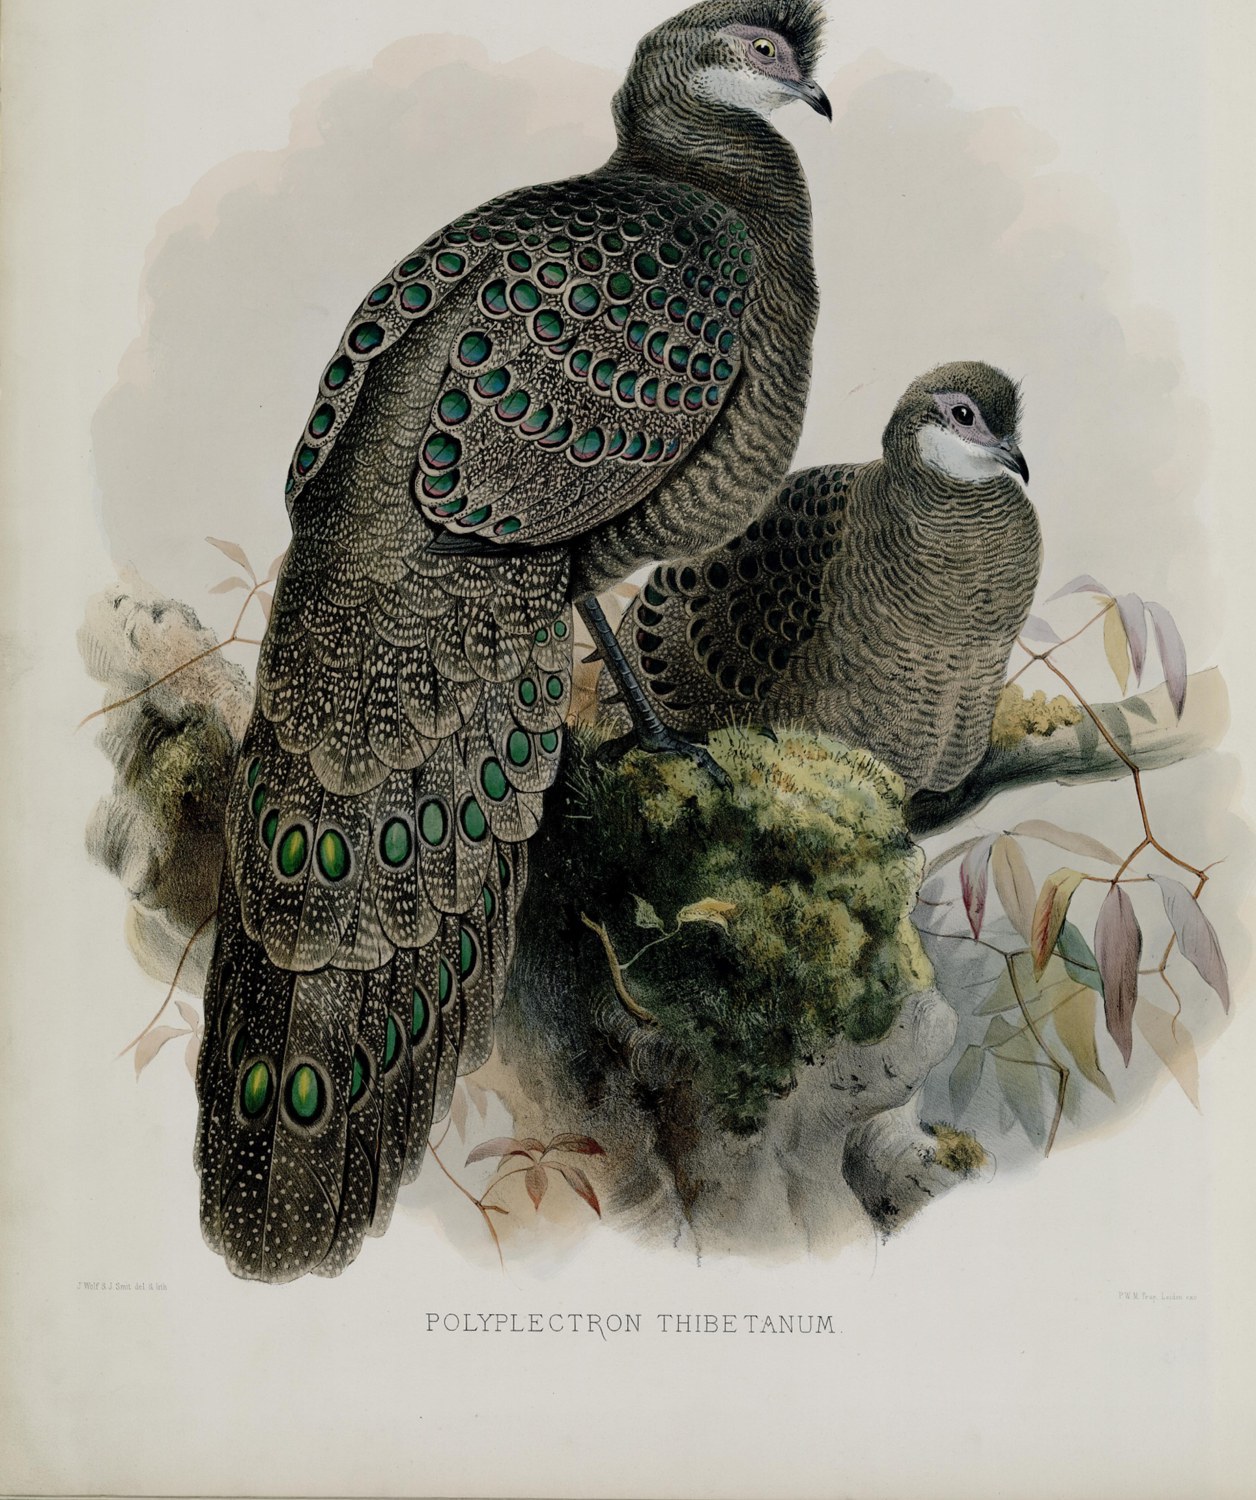
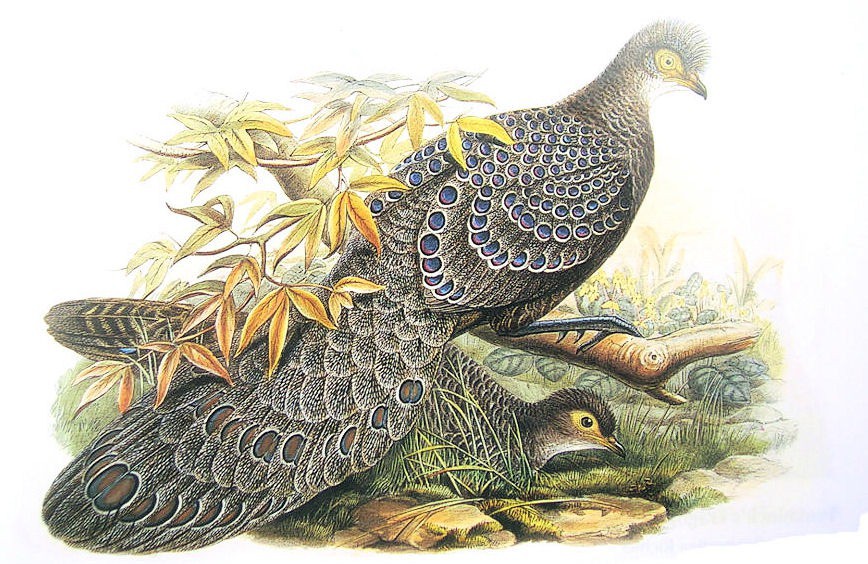
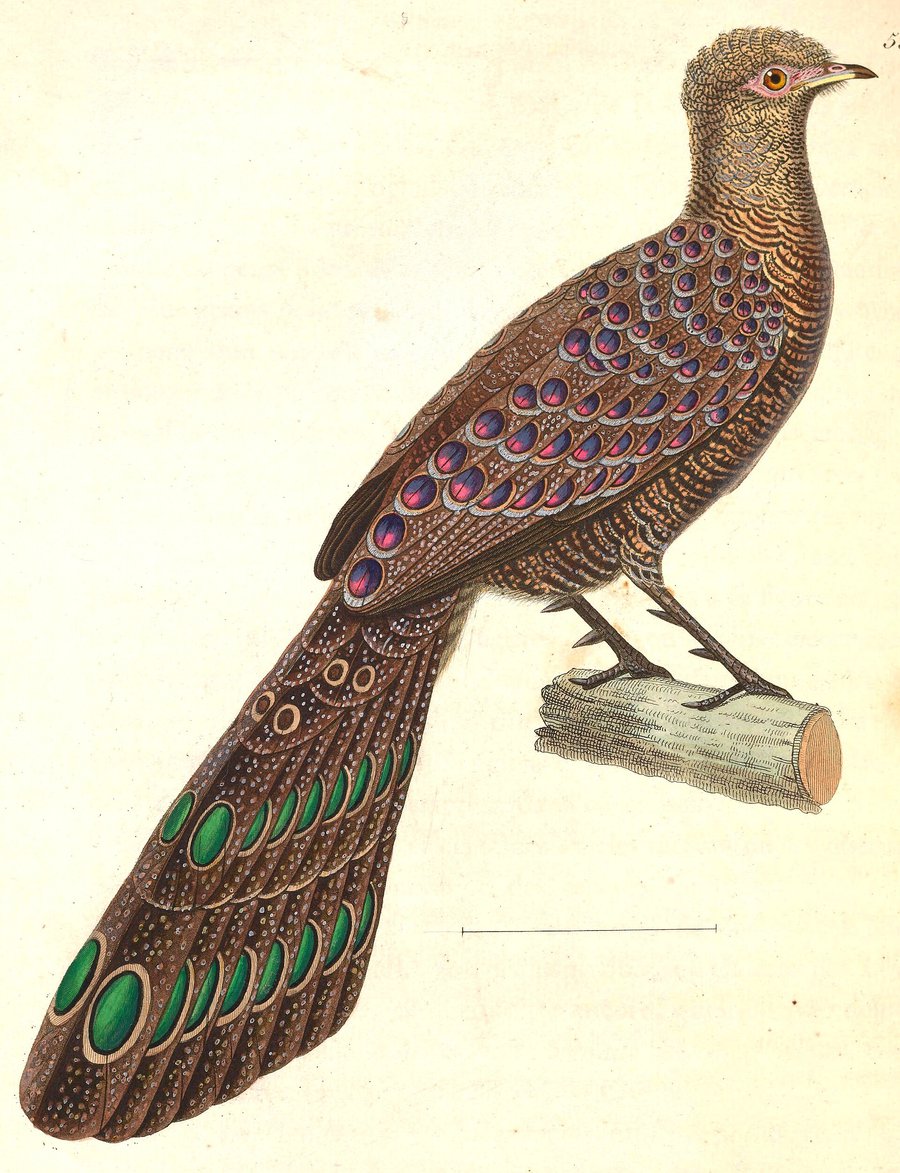


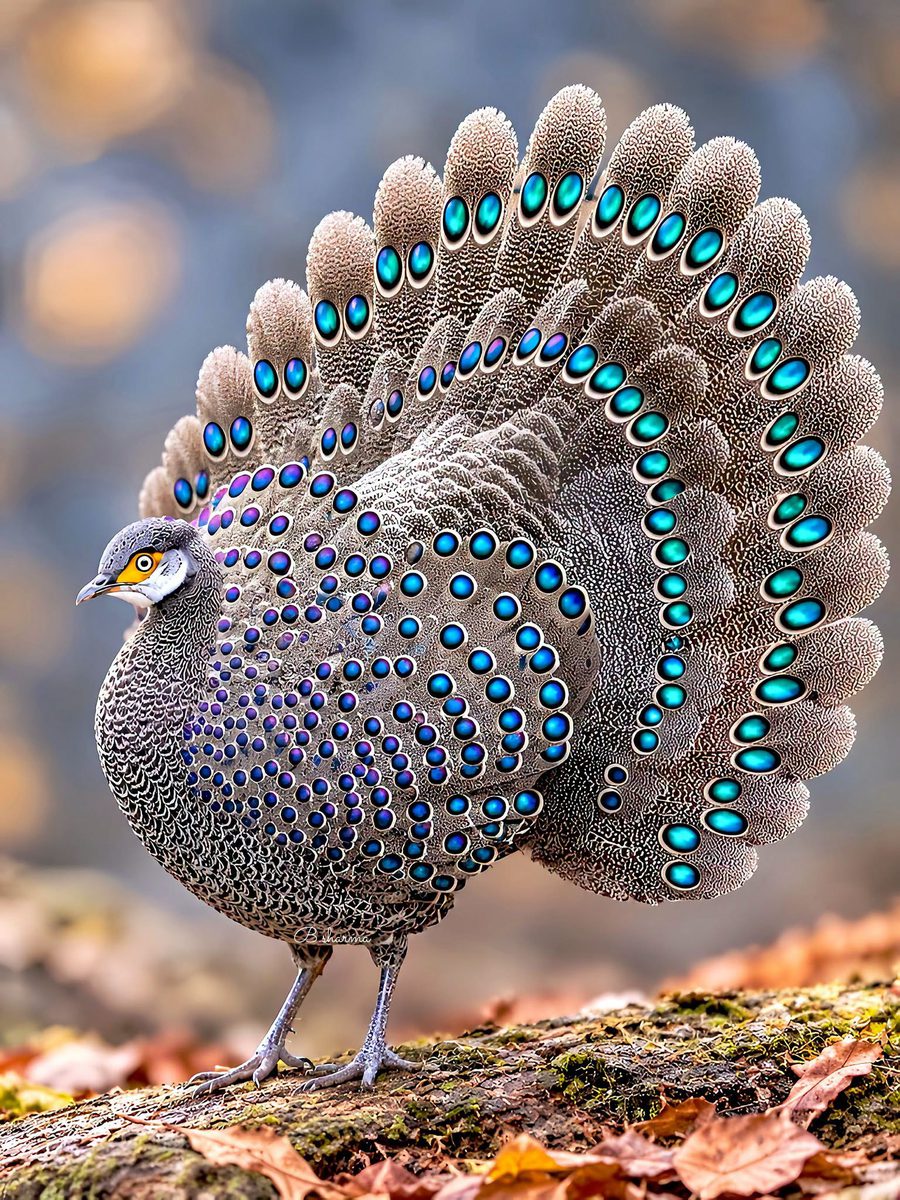


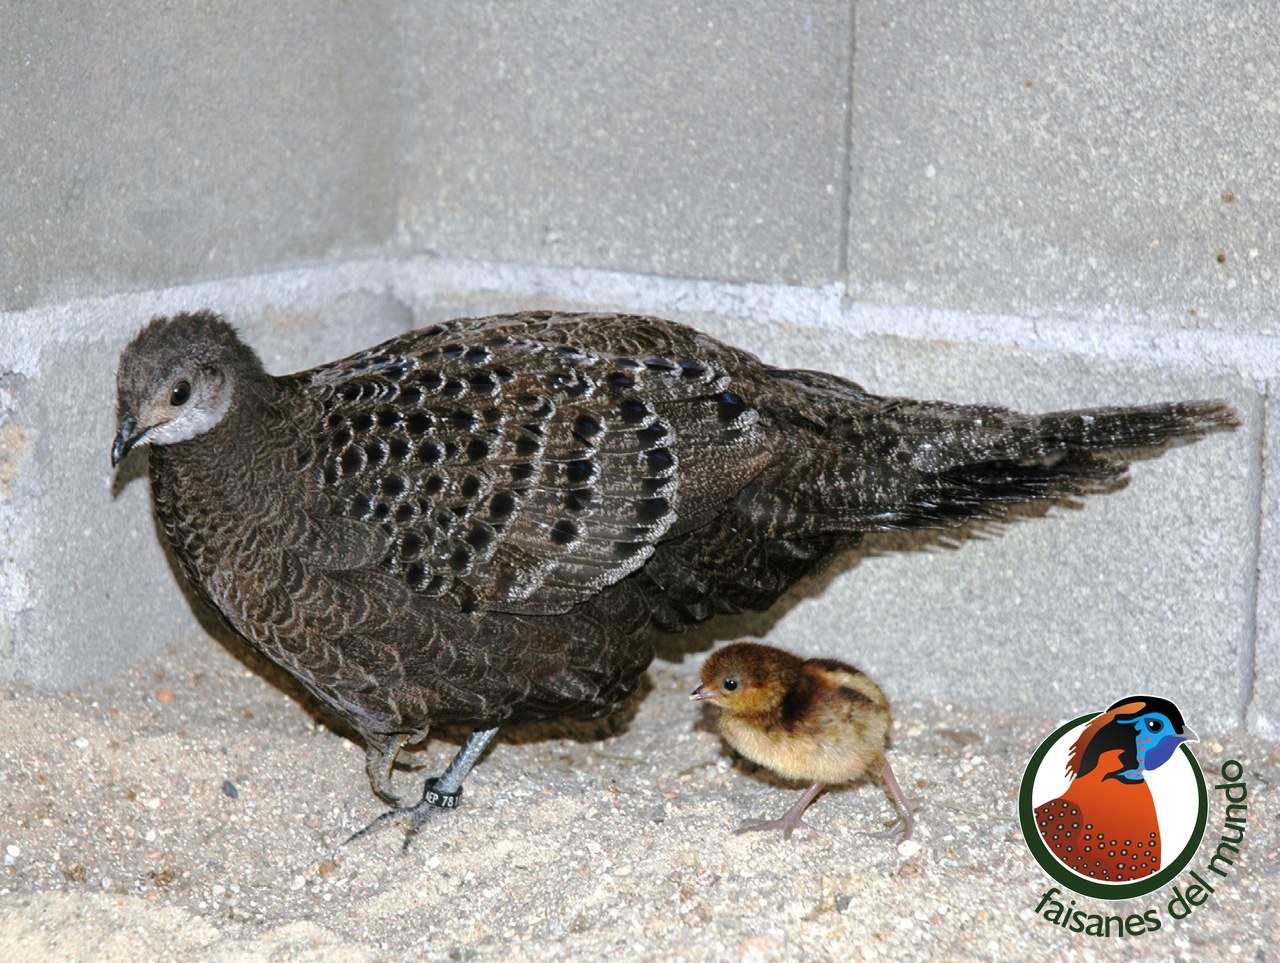
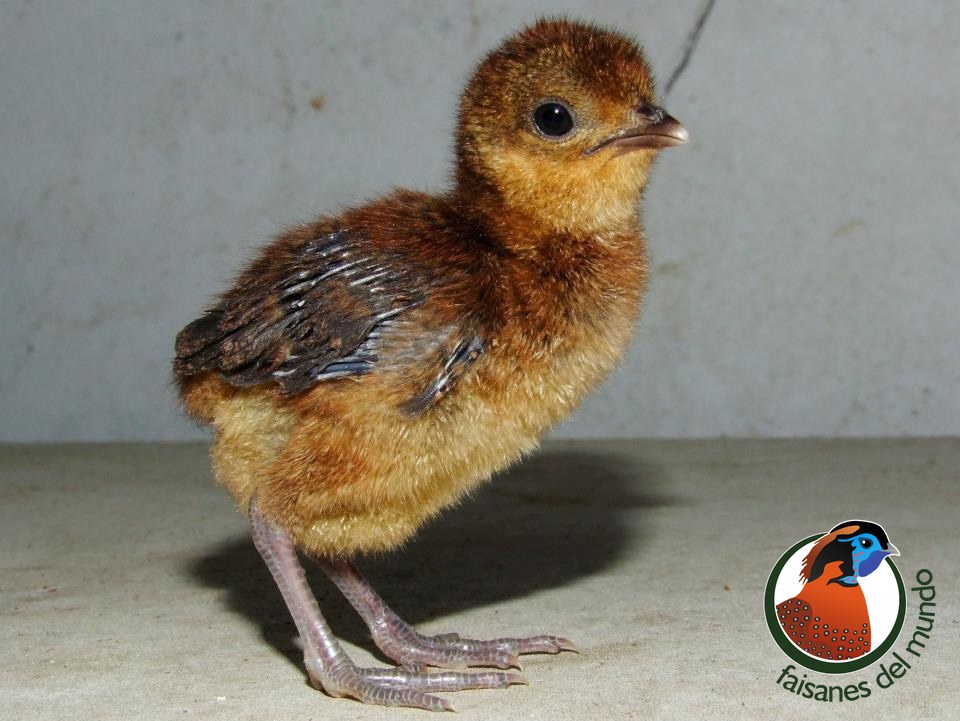 5 días