Resumen
La especie de un vistazo.
El faisán Lady Amherst (Chrysolophus amherstiae) es una especie de la familia Phasianidae, del género Chrysolophus, propia del oeste de China y catalogada por la UICN como de preocupación menor.
Es un faisán de montaña, esquivo y de cola extraordinariamente larga. El macho mide entre 130 y 173 cm de longitud total, de los cuales entre 83 y 115 cm corresponden a la cola; la hembra, parda y barrada, mide de 66 a 68 cm (BOW, 2020; Madge y McGowan, 2002). Visto de pasada, el macho parece simplemente blanco y negro, pero buena parte de las zonas oscuras son de un verde azulado brillante, las alas son de un azul purpúreo, la parte baja de la espalda es amarillo vivo y las puntas alargadas de las coberteras de la cola, rojo anaranjado (BOW, 2020). Como en su pariente el faisán dorado, una esclavina (golilla) de plumas grandes rodea la cabeza y se despliega como un abanico durante el cortejo (Delacour, 1977; Madge y McGowan, 2002).
Vive más al sur y, sobre todo, a mayor altitud que el dorado: en el noreste de Myanmar, el sureste del Tíbet y el suroeste de China, entre 1.800 y 4.600 m, aunque casi siempre entre 2.100 y 3.600 m (BOW, 2020; Madge y McGowan, 2002). Las áreas de ambas especies casi se tocan en China, pero no se conoce que se solapen (Johnsgard, 1986; Madge y McGowan, 2002).
Su historia es de las más singulares entre los faisanes. Dos machos vivos salieron de la India hacia Londres en 1828, vinculados a la condesa Sarah Amherst, y sobrevivieron solo unas semanas; hubo que esperar hasta 1869 para que otra remesa, esta vez capturada por un misionero francés en Sichuan, asentara la especie en las colecciones europeas (Beebe, 1922; Delacour, 1977). Como en esos primeros años llegaron más machos que hembras, los machos sobrantes se cruzaron con hembras de dorado, y la pureza de las líneas de pajarera es desde entonces el gran asunto de esta especie en cautividad (Delacour, 1977; Gerrits, 1974; Howman, 1979). En libertad, en cambio, es un ave muy poco estudiada, de hábitat denso y difícil acceso (Johnsgard, 1986; Madge y McGowan, 2002).
La monografía publicada en 1992 en Pekín por Yang Lan y colaboradores, del Instituto de Zoología de Kunming, ha permitido ampliar esta ficha con lo que sabemos hoy de la especie en su medio y en cautividad: un estudio de campo de 1986–1987 en el oeste de Kunming (con un territorio medio del macho de 0,076 km², densidades de 1,14 a 2,12 machos territoriales por km² y la primera descripción detallada de nidos, incubación, pollos y voces); la cronología de la muda y las primeras constantes fisiológicas; los análisis cromosómicos, enzimáticos y de ADN mitocondrial que sitúan al dorado como su pariente más próximo, con una separación estimada de unos 0,6 millones de años; y cuatro años de experiencia de cría en cautividad, con recintos, dietas, incubación y enfermedades (Yang et al., 1992). A ello se suman los datos más recientes de BirdLife (2018) sobre la categoría de amenaza, que sigue siendo de preocupación menor aunque con tendencia decreciente (BirdLife, 2018).
- 130–173cmlongitud total del macho
- 2.100–3.600mde altitud habitual (1.800–4.600 m en total)
- 6–12huevosde puesta habitual en cautividad
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoLCPreocupación menor - Tendencia de la población decreciente · evaluación de 2018 · Lista Roja de la UICN (BirdLife International, 2018)
Ficha técnica
- Nombre científico
- Chrysolophus amherstiae (Leadbeater, 1829) (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
- Clasificación
- Orden Galliformes · familia Phasianidae · subfamilia Phasianinae · género Chrysolophus J. E. Gray, 1834
- Subespecies
- Ninguna: especie monotípica (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
- Nombres comunes
- ES faisán de Lady Amherst o faisán Lady · EN Lady Amherst’s pheasant · FR faisan de Lady Amherst · DE Diamantfasan, Amherstfasan · IT fagiano di Lady Amherst · PT faisão de Lady Amherst · chino seng-ky («gallina de los brotes») y kwa-kwa-chi · wokree entre los pueblos de Birmania y Yunnan (Beebe, 1922; Johnsgard, 1986)
- Longitud total
- ♂ 130–173 cm (cola de 83 a 115 cm) · ♀ 66–68 cm (BOW, 2020; Madge y McGowan, 2002)
- Peso
- ♂ 675–850 g · ♀ 624–804 g (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
- Hábitat
- Bosque con bambú, matorral denso y laderas rocosas de montaña, de 1.800 a 4.600 m (sobre todo 2.100–3.600 m) (BOW, 2020; Madge y McGowan, 2002)
- Distribución
- Noreste de Myanmar, sureste del Tíbet y suroeste de China (de Sichuan a Yunnan y Guizhou) (BOW, 2020; Madge y McGowan, 2002)
- Puesta
- 6–12 huevos en cautividad; 6–7 en los nidos naturales descritos; incubación de 22–25 días según las fuentes, solo la hembra (BOW, 2020; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
- Madurez
- Plumaje adulto del macho en el segundo año; fértil a menudo desde el primero (Gerrits, 1974; Johnsgard, 1986; Madge y McGowan, 2002)
- Estado de conservación
- Preocupación menor (LC); población de decenas de miles de aves (BOW, 2020; Madge y McGowan, 2002)
- Cariotipo
- 2n = 82 cromosomas; macho ZZ, hembra ZW (Yang et al., 1992)
- Territorio del macho
- Medio de 0,076 km² (0,041–0,145) en un bosque de la meseta de Yunnan (Yang et al., 1992)
- Dieta
- Omnívora, sobre todo vegetal: 91,7 % vegetal y 8,3 % animal en 51 buches y estómagos de Yunnan y Sichuan (Yang et al., 1992)
- Evaluación de BirdLife
- Preocupación menor (2018); tendencia decreciente; extensión de presencia de 394.000 km² (BirdLife, 2018)
Sistemática y nomenclatura
Un nombre en honor de una condesa y una posición taxonómica pegada a la del dorado.
El género Chrysolophus reúne solo dos especies, el faisán dorado y el faisán de Lady Amherst, ambas de las montañas de China y de las regiones vecinas del Tíbet y Birmania (Delacour, 1977; Johnsgard, 1986). Delacour las consideraba un grupo sin parientes próximos (Delacour, 1977).
Posición taxonómica
| Rango | Taxón |
|---|---|
| Reino | Animalia |
| Filo | Chordata |
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Subfamilia | Phasianinae |
| Género | Chrysolophus J. E. Gray, 1834 |
| Especie | Chrysolophus amherstiae (Leadbeater, 1829) |
| Subespecies | Ninguna |
Clasificación tradicional que sigue esta guía; la ubicación de los géneros dentro de la familia varía según los autores (Beebe, 1922; Madge y McGowan, 2002).
El primer volumen del libro del autor del sitio desglosa la jerarquía completa en la que se sitúan todos los faisanes: dominio Eucariota, reino Animalia, filo Chordata, subfilo Vertebrata, clase Aves, subclase Neornithes, infraclase Neoaves, parvclase Galloanserae, superorden Gallomorphae, orden Galliformes (Temminck, 1820), parvorden Phasianida, superfamilia Phasianoidea y familia Phasianidae; en ella, el género Chrysolophus (J. E. Gray, 1834) contiene solo C. pictus y C. amherstiae, esta última sin subespecies (Hernández García, 2013). El segundo volumen recoge como nombre alemán Diamantfasan y recuerda que Leadbeater clasificó inicialmente la especie como Phasianus amherstiae (Hernández García, 2014).
Origen del nombre
El nombre del género procede del griego: chryseos («dorado») y lophos («cresta») (Johnsgard, 1986); la ficha original de esta web da la forma khrusolophos, «de cresta dorada» (Wikipedia). Aplicado al conjunto del género, el nombre describe sobre todo al dorado: la cresta del Lady Amherst es rojo carmesí (Beebe, 1922; Delacour, 1977). El epíteto amherstiae rinde homenaje a Sarah, condesa de Amherst (1762–1838) (Beebe, 1922; Johnsgard, 1986); Leadbeater, que describió el ave, propuso el nombre como tributo a la dama a quien los ornitólogos debían conocer la especie (Beebe, 1922).
Los nombres vernáculos recogidos por los naturalistas son todos de origen local. Beebe da seng-ky («gallina de los brotes», por su alimento favorito, los brotes de bambú) y kwa-kwa-chi (onomatopeya china), además de wokree entre los kachin y otras tribus de Birmania y Yunnan; el misionero Carreau recoge además el nombre chino de «faisán de las flores» (Beebe, 1922; Johnsgard, 1986). En alemán se la conoce como Diamantfasan y como Amherstfasan (Beebe, 1922; Johnsgard, 1986).
Nombres en chino y en las lenguas de su área
El libro de Yang y colaboradores, la primera monografía china sobre la especie, usa como nombre oficial 白腹锦鸡 (báifù jǐnjī), que se traduce literalmente por «gallo de brocado de vientre blanco», frente a 红腹锦鸡 (hóngfù jǐnjī, «de vientre rojo»), el faisán dorado; el género Chrysolophus es 锦鸡属 (jǐnjī shǔ). Recoge además un buen número de nombres locales por regiones y pueblos, casi todos sin explicación en el texto (Yang et al., 1992):
| Nombre | Región o lengua | Sentido, según el libro |
|---|---|---|
| 箐鸡 (qìngjī); también escrito 衾鸡 (lectura dudosa) | Yunnan | Se le llama así por vivir en los bosques de ladera junto a valles y arroyos («gallo de quebrada»); el libro explica el apodo al describir su hábitat (Yang et al., 1992) |
| 铜鸡 (tóngjī) | Sichuan | Literalmente «gallo de cobre»; también es la abreviatura que usan los autores chinos citados por el libro para el Lady Amherst, frente a 金鸡 (jīnjī, «gallo de oro») para el dorado (Yang et al., 1992) |
| 笋鸡 (sǔnjī) | Sichuan | Por su afición a los brotes de bambú, de donde viene el nombre popular; significa lo mismo que el seng-ky que recogió Beebe (Beebe, 1922; Yang et al., 1992) |
| 宽宽鸡 (kuānkuānjī) | Sichuan | El libro no explica su sentido (Yang et al., 1992) |
| 花箐鸡 (huā qìngjī) el macho; 麻簧鸡 (máhuángjī) la hembra | Guizhou | Nombres distintos para cada sexo; el libro no los glosa (Yang et al., 1992) |
| 垅宗 (lǒngzōng), 打敲 (dǎqiāo) y un tercer nombre de lectura dudosa | Tibetano | Transcripciones en caracteres chinos, sin significado en el libro (Yang et al., 1992) |
| 庄七 (zhuāngqī), 尖冲 (jiānchōng) | Lisu | Sin significado en el libro (Yang et al., 1992) |
| 哈 (hā) | Yi | Sin significado en el libro (Yang et al., 1992) |
En inglés, el libro cita Lady Amherst’s Pheasant (Howard et al., 1980) y Chinese Copper Pheasant (Zheng Zuoxin, 1987). Los caracteres y su transcripción proceden de un texto escaneado con errores; algunos nombres tienen lectura dudosa (Yang et al., 1992).
Elliot cita además, a partir de una carta del misionero Carreau publicada en el boletín de la Sociedad de Aclimatación de París (1870), el nombre «faisán de las flores» (Houd-se-Ky, en la grafía de la época) con el que los chinos conocían a esta especie (Elliot, 1872).
Jobling identifica a la homenajeada de amherstiae por su vínculo con el marido: Sarah, condesa Amherst (1762–1838), primera esposa de William Pitt Amherst, primer conde Amherst de Arracan, que fue gobernador general de Bengala entre 1823 y 1828. La terminación -ae es el genitivo femenino latino: el nombre dice «de Amherst» en femenino, algo coherente con que el homenaje sea para ella (Jobling, 2010).
En cuanto al género, Jobling lo explica como khrusolophos, «de cresta dorada», una palabra griega ya compuesta, y no registra otro sentido para Chrysolophus (Jobling, 2010).
Dos nombres genéricos hoy sinónimos aparecen en su diccionario con etimología. Thaumalea, el nombre de Wagler que citan las fichas, procede del griego thauma, «prodigio» o «maravilla». Epomia procede del griego epomios, «sobre el hombro» (de un arnés o atalaje), sin que el autor diga a qué rasgo del ave alude (Jobling, 2010).
Un tercer testigo apunta en el mismo sentido que Jobling. Elliot (1872), en la sinonimia de la especie, da el nombre de Hodgson como Epomia amherstii, con la referencia a las Zoological Miscellany de Gray, de 1844, y no como Epornia; la grafía Epornia de Beebe podría ser, por tanto, una variante de Epomia; con las fuentes aquí revisadas no puede demostrarse (Beebe, 1922; Elliot, 1872; Jobling, 2010). Elliot explica además por qué usó Thaumalea y no Chrysolophus: porque el nombre de Gray estaba ya empleado en entomología y porque resultaba inapropiado, ya que no todas las especies del grupo tienen la cresta dorada (Elliot, 1872).
Historia nomenclatural
La especie fue descrita a partir de los dos machos enviados desde la India en 1828 (véase el capítulo de historia). La secuencia de nombres que recoge Beebe es la siguiente (Beebe, 1922):
- Benjamin Leadbeater describe y figura la especie como Phasianus amherstiae en las Transactions de la Sociedad Linneana. Beebe cita el volumen de 1828, pero la fecha de autoridad que adoptan Delacour, Johnsgard y Madge es 1829. Delacour anota que la localidad tipo, «montañas de Cochinchina», es un error por Yunnan (Beebe, 1922; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
- Temminck usa la forma Phasianus amherstia (Beebe, 1922).
- Wagler, al separar los faisanes dorados de Phasianus, los incluye en Thaumalea, nombre que resultó inválido (véase la ficha del faisán dorado) (Beebe, 1922).
- J. E. Gray propone Chrysolophus, el nombre genérico válido desde entonces (Beebe, 1922; Delacour, 1977).
- Hodgson publica Epornia amherstii (Beebe, 1922).
- Gray publica la combinación actual, Chrysolophus amherstiae (Beebe, 1922).
Elliot (1872) recoge la misma secuencia con matices. En su cronología del género sitúa la descripción de Leadbeater en 1828 (el año del volumen que cita Beebe); remite al tomo 16, p. 129, de las Transactions de la Sociedad Linneana y reúne las citas de Wagler (Isis, 1832, p. 1228), Gray (1844 y 1867), Sclater (1863 y 1870), Gould (The Birds of Asia, 1866) y Hodgson (1844) (Elliot, 1872). Elliot da como área «China, en la frontera del Tíbet oriental» (Swinhoe) y «de Yunnan a la provincia de Sichuan» (Sclater), y en su lista de distribución por especies la cita del este de Sichuan, muy abundante en Ta-tsien-loo (Kangding), en la frontera tibetana (Elliot, 1872). El libro chino de Yang y colaboradores coincide con la referencia de Leadbeater (Trans. Linn. Soc. London, 16: 129), da Yunnan como localidad tipo y atribuye a Gray (1834) la elección del faisán dorado como especie tipo de Chrysolophus (Yang et al., 1992).
Sinonimia principal
| Nombre | Autor y fecha |
|---|---|
| Phasianus amherstiae | Leadbeater, 1828/1829 |
| Phasianus amherstia | Temminck, 1830 |
| Thaumalea amherstiae | Wagler, 1832 (género preocupado) |
| Epornia amherstii | Hodgson, 1844 |
| Chrysolophus amherstiae | Gray, 1867 |
Selección de la sinonimia que recoge Beebe (Beebe, 1922).
El género y sus parientes
Los dos Chrysolophus comparten un conjunto de rasgos tan peculiar (cola de 18 plumas muy larga y ligeramente abovedada, esclavina de plumas grandes que se extiende en abanico, plumas del cuerpo especializadas, espolón corto) que casi nadie ha dudado de su afinidad (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). La textura de las plumas ornamentales es, sin embargo, distinta en cada especie. En el dorado, las de la corona, la parte inferior y la espalda están deshilachadas y sedosas, y solo las de la esclavina y la parte alta de la espalda son anchas y cuadradas; en el Lady Amherst, las plumas blancas del vientre son normales y, en cambio, las del pecho, la espalda, las alas y las escapulares son anchas, cuadradas o redondeadas, con bordes metálicos (Delacour, 1977). Beebe comparó la esclavina de ambas: la del Lady Amherst es una pluma menos especializada, más larga y estrecha, de punta redondeada y no truncada, de modo que, completamente extendida, no se resuelve en una alineación tan perfecta de barras concéntricas como la del dorado (Beebe, 1922).
Sobre el parentesco con otros géneros, Delacour veía afinidades con Phasianus (por el modo de cantar) y con Polyplectron (por las notas de llamada), mientras que Johnsgard, por los pollos y el comportamiento, sitúa más cerca a Lophura y al grupo Syrmaticus–Phasianus (Delacour, 1977; Johnsgard, 1986). Un análisis de proteínas de la clara del huevo no logró separar ambas especies, aunque sí detectó una diferencia en la albúmina: el dorado parece haber perdido uno de los tres tipos que se distinguen; con esos datos, Johnsgard propone tratarlas como una superespecie (Johnsgard, 1986). Para la discusión de las dos especies como grupo, véase también la ficha del faisán dorado.
Lo que dicen los huesos, los cromosomas y el ADN
El proyecto del Instituto de Zoología de Kunming (1986–1989) no se limitó a la ecología: comparó también el esqueleto, los cromosomas, las isoenzimas y el ADN mitocondrial del Lady Amherst con los del faisán dorado y el faisán común, y en el esqueleto además con el gallo bankiva. Los resultados, que Yang y colaboradores utilizan para discutir la posición taxonómica de la especie, se resumen a continuación; el propio libro advierte de que la muestra de cada análisis es pequeña (Yang et al., 1992).
| Estudio | Resultado para el Lady Amherst | Comparación |
|---|---|---|
| Esqueleto (23 esqueletos de Gallus, Phasianus y Chrysolophus) | Columna con 16 vértebras cervicales y cinco torácicas; pigostilo mayor que en los otros dos géneros, que los autores interpretan como adaptación al peso de la cola; cráneo con las apófisis postorbitaria y cigomática sin fusionar; esternón más corto y ancho | El tibiotarso es más largo en Chrysolophus que en Phasianus y en Gallus; el tarsometatarso de Phasianus es el más corto (Yang et al., 1992) |
| Esqueleto: Lady Amherst frente a dorado (48 medidas óseas) | Solo tres medidas difieren de forma significativa: la ulna del macho (54 mm de media), la altura del proceso de la quilla del esternón del macho (24,3 mm) y la ulna de la hembra (52,4 mm) | Dorado: ulna del macho 51,3 mm, quilla del macho 22,3 mm, ulna de la hembra 48 mm (Yang et al., 1992) |
| Agrupamiento por distancia euclídea (22 ejemplares) | Los machos de Lady Amherst se agrupan a 5,94802; las hembras, a 7,00907 | Los machos de dorado, a 6,08824. Gallus se une primero a Phasianus (13,0012) y luego a Chrysolophus (15,3379) (Yang et al., 1992) |
| Cariotipo | 2n = 82 cromosomas; macho ZZ, hembra ZW; el par 1 y el Z son submetacéntricos, el 3, el 4 y el W subtelocéntricos y los demás telocéntricos; en el macho se contaron 41 bivalentes en la meiosis | El dorado también tiene 2n = 82 (Benirschke et al., 1971) (Yang et al., 1992) |
| Isoenzimas (esterasa, hígado) | 8 bandas en el macho | Dorado, 5 bandas; faisán común, 11. Dorado y Lady Amherst comparten 5 bandas de igual movilidad (similitud del 62 %); dorado y común, 23 %; Lady Amherst y común, 35 %. El patrón de amilasa es idéntico en las dos especies de Chrysolophus (5 bandas) (Yang et al., 1992) |
| ADN mitocondrial (10 enzimas de restricción) | Distancia genética (P) frente al dorado: 0,012; fracción de fragmentos compartidos: 0,807 | Faisán común frente al Lady Amherst: P = 0,067 (fragmentos compartidos, 0,327); frente al dorado: P = 0,085 (0,250). Entre los géneros Phasianus y Chrysolophus: 0,076 (Yang et al., 1992) |
| Ovoalbúmina (clara de huevo) | Patrón electroforético indistinguible del del dorado | Baker (1965) comparó 22 dorados y 10 Lady Amherst; Liu (1988), con isoelectroenfoque, halló perfiles parecidos entre las dos especies y claramente distintos de los del faisán común, el gallo bankiva y el plateado (Yang et al., 1992) |
Todas las cifras proceden del libro de Yang y colaboradores (1992); el texto disponible es un escaneo con errores, y las medidas óseas individuales no pudieron leerse. La estima de ADN mitocondrial se hizo con una muestra de cada especie.
Los autores traducen la distancia de 0,012 entre el Lady Amherst y el dorado a una separación muy reciente: aplicando una tasa de cambio del 2 % por millón de años (Shields et al., 1987), las dos especies se habrían separado hace unos 0,6 millones de años, y los géneros Phasianus y Chrysolophus hace unos 3,6 millones (Yang et al., 1992). Subrayan que 0,012 es menos de lo habitual entre especies de aves, y que 0,076 entre géneros cae todavía dentro del intervalo (0,004–0,090) que se registra entre especies del mismo género en otras aves, de modo que Phasianus y Chrysolophus serían géneros muy próximos (Yang et al., 1992).
Yang y colaboradores recogen cuatro posturas sobre la categoría del par: (1) dos especies monotípicas, la de Peters (1934), Delacour (1957) y Zheng Zuoxin y colaboradores (1978); (2) una sola especie, con el dorado y el Lady Amherst como simples variantes genéticas, comparables a las variaciones de plumaje de las aves de corral, la de Baker (1965); (3) dos subespecies, la de Liu y colaboradores (1989); y (4) un complejo de superespecie, la de Johnsgard (1986) (Yang et al., 1992). Su propia conclusión, tras repasar los criterios clásicos de especie (diferencias morfológicas estables, áreas y hábitats propios y aislamiento reproductivo), es que son dos especies de parentesco muy estrecho: los machos son inconfundibles y los caracteres óseos permiten separarlas; en las zonas de contacto no existen poblaciones intermedias, sino solo híbridos ocasionales; y lo que las mantiene separadas en la naturaleza es sobre todo un aislamiento ecológico previo al apareamiento, porque ocupan hábitats distintos. Como la divergencia es tan reciente, las barreras reproductivas no están completamente formadas, y por eso en cautividad los híbridos son totalmente fértiles (Yang et al., 1992).
Cómo distinguir al Lady Amherst de su pariente, el faisán dorado
| Rasgo | Faisán de Lady Amherst | Faisán dorado |
|---|---|---|
| Esclavina del macho | Blanca con borde negro y reflejo azul acero; plumas largas, estrechas y redondeadas | Naranja, con dos barras negro azuladas; plumas anchas y cuadradas |
| Cabeza del macho | Corona verde metálico y cresta carmesí discreta; cara y garganta negras con motas verdes | Copete dorado, sedoso; cara y garganta rojizas |
| Vientre del macho | Blanco puro | Escarlata |
| Cola del macho | Blanca con barras negras; 83–115 cm | Parda moteada; 63–79 cm |
| Patas y piel orbital de la hembra | Gris azuladas | Amarillas |
| Hembra | Garganta y vientre más claros; cola con barras más anchas y punta roma | Cabeza más lisa; cola con barras más finas y de punta aguda |
| Altitud | Principalmente 2.100–3.600 m (1.800–4.600 m) | Principalmente 800–1.600 m |
| Voz del macho | «cheek ker-chek», tres notas, acento en la primera | «ka-cheek», dos notas, acento en la segunda |
| Huevos (Delacour) | 46–53 × 34–37 mm; 6–12 por puesta | 42–46 × 33–35 mm; 5–12 por puesta |
| Distribución | Noreste de Myanmar, sureste del Tíbet, suroeste de China | Centro de China |
Las áreas de las dos especies casi se tocan en China, pero no se conoce que se solapen (Madge y McGowan, 2002). Comparación elaborada con (Beebe, 1922; Delacour, 1977; Gerrits, 1974; Johnsgard, 1986; Madge y McGowan, 2002).

Historia
De una condesa en la India a las pajareras de Europa.
La historia del faisán Lady Amherst en Occidente se cuenta en dos tiempos separados por cuatro décadas: los dos machos que llegaron a Londres en 1828 y apenas sobrevivieron unas semanas, y la remesa de 1869 con la que la especie se asentó en las colecciones (Beebe, 1922; Delacour, 1977).
Lady Amherst fue la responsable de enviar en 1828 el primer espécimen a Londres, que no sobrevivió al viaje pero sirvió para redactar la descripción oficial de la especie. No fue hasta 1869 cuando se introdujeron en Europa los primeros especímenes vivos: cinco machos y una hembra, capturados por un misionero francés en Sichuan y recibidos en el zoo de Londres por J. J. Stone. Posteriormente, casi todos los ejemplares, excepto un macho, fueron enviados al zoo de Amberest, destinados al Sr. Wakemans. Hubo éxito de cría, aunque la hembra que había llegado fue matada por un macho al año siguiente. Afortunadamente, Stone recibió otra pareja en el zoo de Londres en 1870, que crio con éxito 14 pollos en 1871 (Delacour, 1977).
La condesa Amherst y los primeros ejemplares
Beebe reproduce el relato con que Leadbeater presentó la especie a la Sociedad Linneana. Según él, la vuelta a Inglaterra del conde Amherst dio a conocer una de las aves más espléndidas de las que se habían presentado a los ornitólogos en muchos años: dos machos de la especie nueva, regalo del rey de Ava (Birmania) a sir Archibald Campbell, que se los entregó a la condesa. Ella los conservó unos dos años y consiguió traerlos vivos a Inglaterra, aunque solo sobrevivieron unas semanas al viaje. Leadbeater propuso el nombre Phasianus amherstiae en homenaje a la dama, y añadió un detalle curioso: el aspecto magnífico de los ejemplares se debía a que, antes de meterlos en las jaulas del viaje, les habían cortado las larguísimas plumas de la cola a unos cinco centímetros del cuerpo (Beebe, 1922). Delacour precisa que las aves llevaban un par de años en la India, que fueron enviadas a Londres en 1828 y que la descripción se publicó en 1829 (Delacour, 1977).
La remesa de 1869 y los primeros criadores
Durante muchos años no llegó ningún ejemplar más; la especie no estuvo representada en el zoo de Londres hasta 1869 (Beebe, 1922). En julio de ese año ingresaron cinco machos y una hembra, que J. J. Stone había recibido de un corresponsal en Hankow y que, según informó Swinhoe a Sclater, habían sido obtenidos por un misionero francés residente en el pie de las montañas de Yung-ling, en la parte lejana de Sichuan; Delacour concreta que los recogió en Tatsienlu (la actual Kangding) (Beebe, 1922; Delacour, 1977). Sclater señaló que la hembra era hasta entonces desconocida y que, como cabía esperar, se parecía mucho a la del dorado; con ella quedaba probado que el área de la especie iba de la frontera birmana de Yunnan, donde la había obtenido el doctor Anderson, hasta Sichuan (Beebe, 1922).
Las actas de la Sociedad Zoológica permiten precisar aquel ingreso. En la sesión del 1 de noviembre de 1869, Sclater, como secretario, dio cuenta de los ingresos de julio: seis faisanes de Lady Amherst depositados el 16 de ese mes por Stone, que, tras muchos intentos infructuosos, había conseguido por fin añadir la especie a la lista de las aves introducidas. Solo una hembra sobrevivió al viaje; los demás eran machos adultos o en cambio de plumaje. Stone había recibido las aves de su corresponsal de Hankow, pero Sclater sabía por Swinhoe que las había conseguido originalmente un misionero francés residente en «Ta-kien-lieou», como escribe Sclater (Proc. Zool. Soc. 1869: 468) (Sclater, 1869). Habían pasado cuatro décadas desde que la condesa Sarah Amherst llevó vivos a Inglaterra los dos machos que apenas sobrevivieron unas semanas (Beebe, 1922; Sclater, 1869).
Casi todos los ejemplares de aquella remesa, salvo un macho, se enviaron al zoo de Amberes, al cuidado del señor Wekemans; allí se criaron híbridos al año siguiente, pero la única hembra murió a manos de un macho. Por fortuna, Stone recibió otra pareja en 1870, que crio con éxito en el zoo de Londres en 1871: catorce pollos (Delacour, 1977). Mairet refiere la llegada de dos machos y tres hembras a Ferrières en junio de 1873 y su cría en 1874 (Delacour, 1977); Howman, por su parte, da 1874 como el año en que se criaron por primera vez (Howman, 1979; Howman, 1996). La rareza de aquellos años la ilustra una subasta del zoo de Amberes de 1873, en la que una pareja alcanzó 2.850 francos (Beebe, 1922).
- Dos machos vivos salen de la India hacia Londres, regalo del rey de Ava a la condesa Amherst; sobreviven unas semanas (Beebe, 1922; Delacour, 1977).
- Leadbeater describe la especie (Beebe cita el volumen de 1828) (Beebe, 1922; Delacour, 1977).
- Julio: llegan a Londres cinco machos y una hembra capturados en Sichuan; la hembra, hasta entonces desconocida, se describe poco después (Beebe, 1922; Delacour, 1977).
- Febrero y marzo: en la Sociedad Zoológica, Swinhoe y Sclater identifican a monseñor Chauveau, obispo de Sebastopol, en Ta-tsien-leou (Sichuan), como origen de las aves llegadas en 1869 (Swinhoe y Sclater, 1870).
- Stone recibe una nueva pareja; en 1871 se crían en Londres 14 pollos (Delacour, 1977).
- Llegan nuevas aves a Ferrières, donde crían en 1874; una pareja se subasta en Amberes por 2.850 francos (Beebe, 1922; Delacour, 1977).
- Una docena de aves capturadas en las cercanías de Yunnan Fu (Kunming) llega a Clères: es la primera aportación de sangre silvestre en mucho tiempo (Delacour, 1977).
- El censo que maneja Howman contabiliza 3.177 faisanes de Lady Amherst en cautividad, frente a 6.400 dorados (Howman, 1979).
La versión de Elliot (1872)
Elliot, que escribió pocos años después de la remesa de 1869, cuenta la historia inicial con algunas variantes. Según él, los dos machos fueron obtenidos por sir Archibald Campbell, que los recibió del rey de Ava y los entregó a la condesa Amherst, quien consiguió llevarlos vivos a Inglaterra, donde sobrevivieron solo unas semanas; Leadbeater describió la especie ante la Sociedad Linneana y se la dedicó a ella. Elliot sitúa la procedencia en «Cochinchina», el mismo error de localidad que corrige Delacour, y añade un dato que no aparece en las demás fuentes: uno de los dos ejemplares pasó a ser propiedad del conde de Derby y se conservaba en el Museo de Derby, en Liverpool, mientras que el otro quedó en la familia del conde Amherst, y durante mucho tiempo fueron los únicos representantes de la especie en Europa (Delacour, 1977; Elliot, 1872). Elliot no ahorra elogios: como adorno de pajarera no tiene rival, es más llamativo que el dorado, se acomoda bien al cautiverio y, al vivir en regiones frías, no debería ser difícil aclimatarlo en Inglaterra, por lo que le parecía un excelente añadido para parques y cotos (Elliot, 1872).
El mismo autor reproduce una carta de monseñor Chauveau, obispo de Sebastopol, fechada en la región de Ta-tsien-lou (la actual Kangding, en la frontera tibetana de Sichuan) y dirigida al cónsul británico en Hankow, Medhurst, que Swinhoe dio a conocer en las actas de la Sociedad Zoológica de Londres en 1870 (Elliot, 1872). El misionero cuenta que habían reunido nueve ejemplares, algunos en buen estado y otros no; que las aves eran muy abundantes en aquellas colinas, pero extremadamente cautelosas; que, según los nativos, cuando ven un puñado de maíz o de arroz en un rincón de la ladera sospechan una trampa y no se acercan, sino que barren con las largas colas parte del grano para comerlo sin peligro; que los adultos rechazaban todo alimento y picoteaban con crueldad los dedos de quien se les acercaba, mientras que los jóvenes eran mansos y comían grano de la mano; y que las colas medían por lo común 24 pulgadas (unos 61 cm) (Elliot, 1872). Elliot no dice si estas aves son las que llegaron a Londres en 1869; las actas de la Sociedad sí lo establecen, como se cuenta a continuación.
Los Proceedings de 1870 cuentan cómo se llegó a identificar al misionero. El 24 de febrero de 1870 se leyó en la Sociedad Zoológica una comunicación de Swinhoe: en Hankow, el verano anterior, el cónsul británico le había dicho que los faisanes de Lady Amherst vivos que habían pasado por allí camino de Inglaterra se habían recibido de un sacerdote francés, monseñor Chauveau, obispo de Sebastopol, destinado en «Ta-tsien-leou», en la frontera tibetana, y que le había dejado copiar la carta del obispo, que es la que reproduce Elliot (Proc. Zool. Soc. 1870: 111) (Swinhoe y Sclater, 1870). Sclater comentó que no cabía duda de que eran las aves recibidas después por Stone y depositadas durante un tiempo en los jardines de la Sociedad, y situó Ta-tsien-leou en la ladera de las montañas de Yung-lin, entre el Tíbet y la provincia china de Sichuan (pp. 111–112) (Swinhoe y Sclater, 1870). En la sesión siguiente, la del 10 de marzo, Sclater añadió que Stone había puesto en sus manos copias de dos cartas de Chauveau, al que titula obispo de Sebastopol y vicario apostólico de Lhasa, dirigidas al cónsul inglés en Hankow, Medhurst, una de ellas la que había citado Swinhoe. De ahí que no hubiera duda de que las aves reunidas por Chauveau eran las que acabaron en manos de Stone y de que el faisán era «muy abundante» en las colinas del oeste de la provincia de Sichuan, más allá de la ciudad de «Ta-tsien-loo», por donde pasa una de las grandes rutas a Lhasa (pp. 128–129) (Swinhoe y Sclater, 1870). Según la información que Stone le había dado, las colecciones de pieles recibidas en París, entre las que estaban las del nuevo Lophophorus l’huysii, el nuevo Ithaginis geoffroyi y el nuevo Crossoptilon drouynii (nombres de la época), habían sido reunidas probablemente en el mismo distrito, que parecía así un país de interés extraordinario por sus faisánidos (p. 129) (Swinhoe y Sclater, 1870).
Cómo se fue conociendo en su tierra
Del Lady Amherst en libertad se supo durante mucho tiempo casi tanto como del dorado, es decir, muy poco; Beebe afirmaba que su área exacta seguiría ignorándose mientras el centro del continente no se abriera a la exploración (Beebe, 1922). Las primeras noticias vinieron de misioneros. Carreau, misionero francés en el Tíbet, la cazó, capturó, mantuvo y crio, y la describió como un ave extremadamente salvaje; el padre David, a partir de las experiencias del colegio de Moupin, observó que cría con facilidad en cautividad si se captura joven (Beebe, 1922). Beebe la estudió en la frontera entre Yunnan y Birmania; en Pheasant Jungles la cuenta entre las especies que halló y estudió en sus campañas por las montañas fronterizas de Birmania, y en otra obra reproduce una fotografía de un barranco del norte de Yunnan en cuyo entorno vio Lady Amherst a lo largo de los arroyos de montaña (Beebe, 1926; Beebe, 1927). A partir de entonces las aportaciones han sido escasas: un cazador deportivo, Davies, la halló en Yunnan y Guizhou en 1901, y hubo estudios de campo de los que Madge y McGowan extrapolaron una población de decenas de miles de aves (Beebe, 1922; Madge y McGowan, 2002).
La monografía china de 1992 y la historia de su estudio en China
Las fuentes chinas son más antiguas que cualquier descripción occidental, aunque no siempre distinguen bien las dos especies del género. Yang y colaboradores citan como registro clásico la entrada «鷩雉» del volumen 48 (sección de aves) del Bencao Gangmu (Compendio de materia médica), publicado en la dinastía Ming, en 1596. Allí se recogen para estos faisanes los nombres de «gallina de monte» (山鸡), «gallo de brocado» (锦鸡), «gallo de oro» (金鸡) y otros, y se describe un ave de talla algo menor que una gallina, con el dorso de dibujos rojizos y amarillos, el cuello verde y el vientre rojo, y otra, el «gallo de brocado», de dibujos más vistosos, a la que se compara con el pavo real por los cinco colores del pecho; el texto remite a su vez al Erya y al Yi Zhou Shu. Los autores concluyen que los chinos antiguos ya conocían la forma y la distribución de ambas especies del género (Yang et al., 1992). En cuanto a la ciencia moderna, el libro recuerda que el primer ejemplar de Lady Amherst recogido en China lo reunió Anderson en 1868 en el oeste de Yunnan, en Momien (la actual Tengchong), según Rothschild (1926), y que los registros de localidades de captura de especímenes de la especie se acumularon después en los informes de Rothschild (1926), Riley (1926 y 1931), Bangs (1933), Stone (1933) y Dolan (1938), y en los de autores chinos como Zheng Zuoxin y colaboradores (1962, 1963, 1965), Li Guiyuan y colaboradores (1976), Xu Yangong (1983), Wu Mingchuan (1984), el propio Yang y colaboradores (1986 y 1987) y Wei Tianhao y colaboradores (1988) (Yang et al., 1992).
La ecología de la especie, en cambio, se conocía muy mal. Los datos estaban dispersos en informes faunísticos y crónicas locales, y las monografías sobre faisanes eran poco detalladas; el estudio de campo previo más detallado sobre la reproducción era el de Yang y colaboradores de 1981, que había seguido seis nidos, al que se sumaban los trabajos de Han Lianxian y colaboradores sobre las voces (Yang et al., 1992). El gran salto llegó con el proyecto «Ecología, biología y cría artificial del faisán de Lady Amherst», financiado por la Fundación Nacional de Ciencias Naturales de China y por el Comité de Ciencia y Tecnología de Yunnan, que el Instituto de Zoología de Kunming de la Academia China de Ciencias desarrolló durante cuatro años, de enero de 1986 a diciembre de 1989, con la participación de 26 personas (tres investigadores superiores, cinco de nivel medio y dieciocho jóvenes, entre ellos estudiantes de maestría y de doctorado) (Yang et al., 1992). Su fruto fue el libro Zhōngguó zhìlèi: Báifù jǐnjī («Los fásidos de China: el faisán de Lady Amherst»), dirigido por Yang Lan y publicado en Pekín por la editorial China Forestry Publishing House en marzo de 1992, con un tiraje de 1.500 ejemplares y un resumen en inglés (Yang et al., 1992). El prólogo del profesor Zheng Guangmei lo presenta como el primer resumen sistemático y completo del conocimiento científico de la especie, y recuerda que, hasta entonces, los estudios de su biología en cautividad habían sido muy escasos, a pesar de que las aves de pajarera de otros países estaban muy hibridadas (Yang et al., 1992). El libro abarca la ecología de campo (distribución, hábitat, territorio, nido, incubación, alimentación, voces y densidad), la biología (esqueleto, muda, fisiología, nutrición del cuerpo, cromosomas, isoenzimas y ADN mitocondrial) y la cría artificial (instalaciones, reproducción, alimentación, manejo y enfermedades); sus resultados se citan en los capítulos correspondientes de esta ficha.
Un ave de pajarera con la pureza en entredicho
Tras las remesas de la década de 1870 no se importaron más ejemplares durante mucho tiempo, de modo que todos los Lady Amherst de América y otros lugares descienden de aves criadas en Europa (Delacour, 1977; Gerrits, 1974). Y, como en un principio llegaron más machos que hembras, los machos sobrantes se cruzaron con hembras de dorado; la cría posterior de esos híbridos con Lady Amherst produjo una línea de supuestos Lady con rastros de sangre de dorado, hasta el punto de que Gerrits, Delacour y Howman coinciden en que los ejemplares puros eran, y siguen siendo, más escasos de lo deseable (Delacour, 1977; Gerrits, 1974; Howman, 1979). Howman lo considera, tras el pavo real común, el competidor más cercano del dorado como faisán ornamental (Howman, 1979). Delacour reconocía que, aunque había aves puras disponibles, eran más raras de lo que debieran (Delacour, 1977). Más detalles sobre cómo reconocer una línea pura se dan en el capítulo de cría en cautividad.
Las poblaciones introducidas fuera de China
Según el libro de Yang y colaboradores, que sigue aquí a Howman (1979) y a Lever (1987), la especie se llevó por primera vez a Inglaterra en 1828, los primeros pollos se criaron en 1874, año que también da Howman (Howman, 1979; Yang et al., 1992); Delacour, en cambio, cuenta la cría de catorce pollos en Londres en 1871 (Delacour, 1977). Con esa base, el libro resume las sueltas con fines cinegéticos y de ornato, que dejaron en Gran Bretaña una pequeña población asilvestrada, mezclada en parte con el dorado (Yang et al., 1992):
- El marqués de Bute establece una población liberada en Mount Stewart, en la isla de Bute (Escocia); por esas fechas, el duque de Bedford mantenía en Cairnsmore, cerca de Newton Stewart (Wigtownshire), una población híbrida de Lady Amherst y dorado, y en Woburn (Bedfordshire) una población de línea pura (Yang et al., 1992).
- Lord Montagu libera Lady Amherst en el bosque de su finca de Beaulieu (Hampshire) (Yang et al., 1992).
- Sueltas en Richmond Park (Londres) en 1928–1929 y 1931–1932, y en un parque de exhibición de animales de Bedfordshire en 1930 (Yang et al., 1992).
- El servicio federal de caza de Estados Unidos los lleva a Hawái; en 1932 se sueltan en Oahu y después en otras islas, sin que llegara a establecerse ninguna población (Yang et al., 1992).
- El conde de Iveagh los libera en Elveden, cerca de Thetford (Suffolk) (Yang et al., 1992).
- La especie se incorpora a la lista de aves de Gran Bretaña e Irlanda; el libro estima entonces la población británica en 100–200 parejas (Yang et al., 1992).
Donde se soltaron a la vez Lady Amherst y dorado hubo confusión de líneas, y el principal problema de la especie en Gran Bretaña es, según el libro, la pérdida de pureza por hibridación con el dorado (Yang et al., 1992). Fuera de las islas británicas, las tentativas documentadas fracasaron: el Ministerio de Agricultura de Colombia y un club de caza intentaron aclimatar esta y otras especies de faisán sin éxito (Sick, 1968), y en Nueva Zelanda Thomson (1922) registró la llegada de un «faisán de diamante», posiblemente esta especie, a la Sociedad de Aclimatación (una pareja en Opoho), sin que conste que se liberara (Yang et al., 1992). Del precio que alcanzaban las parejas en aquellos primeros años hay dos cifras distintas en las fuentes: 800 dólares en 1873 según el libro chino, que cita a Zheng Zuoxin y colaboradores (1963), y 2.850 francos en la subasta de Amberes de ese mismo año que cita Beebe, que no son comparables sin conocer el cambio de moneda (Beebe, 1922; Yang et al., 1992).
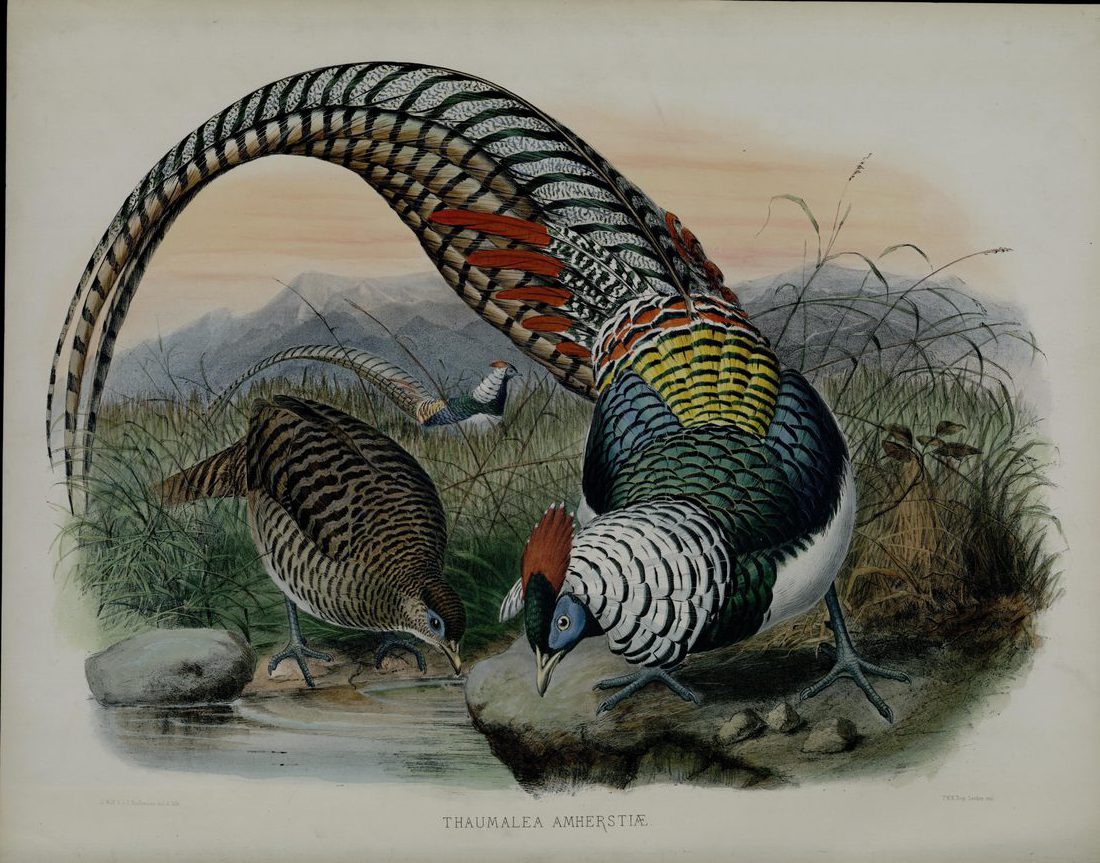
Daniel Giraud Elliot dedicó a esta especie una lámina litográfica, coloreada a mano y rotulada «Thaumalea amherstiae», en su Monograph of the Phasianidae (1872) (Elliot, 1872 (láminas)). Véase Daniel Giraud Elliot.
Morfología y plumajes
Un macho blanco y negro por fuera, verde, azul, amarillo y rojo por dentro.
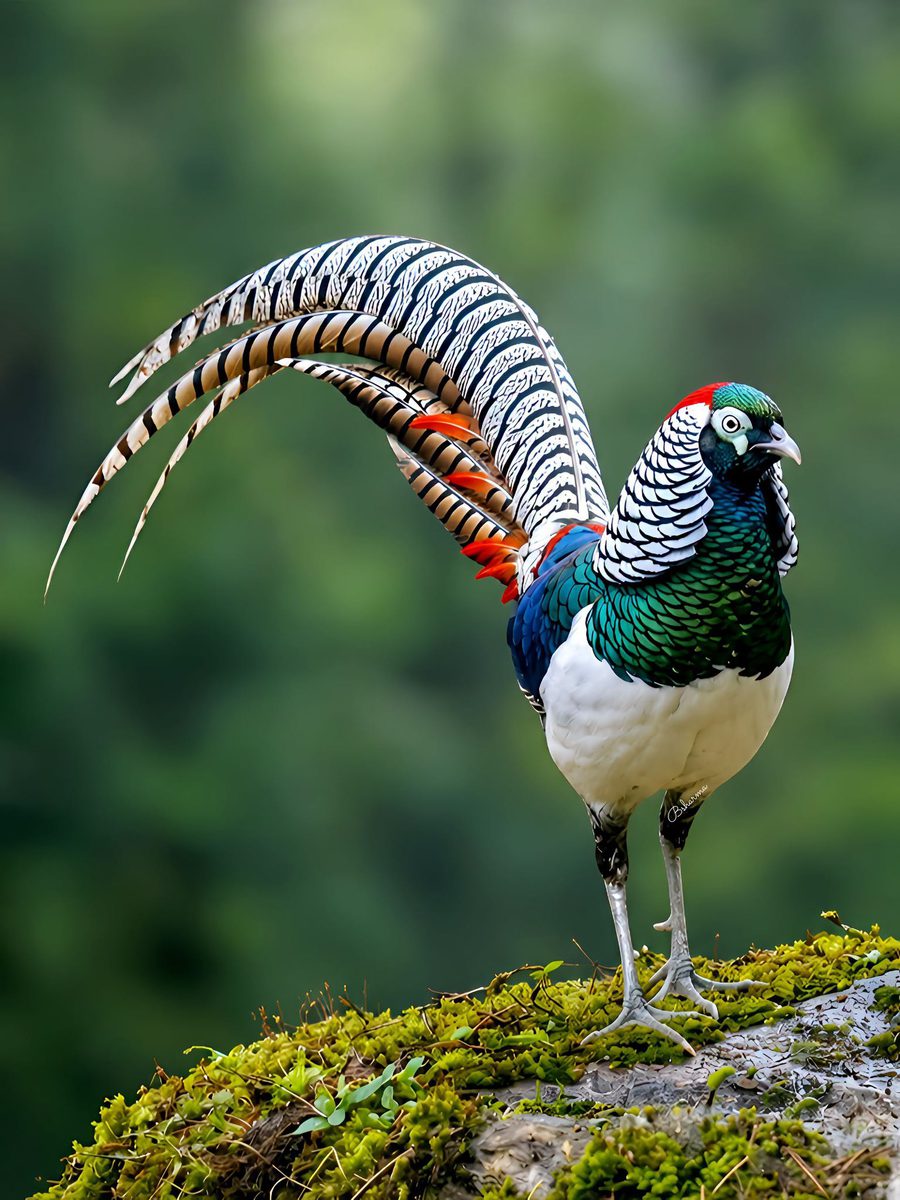
♂ El macho tiene la cabeza de color verde, con una cresta roja. La golilla es blanca con rayas negras, las alas son azules, la espalda amarilla y el pecho verde, mientras que el vientre es blanco. La cola es muy larga, de color blanco rayado en negro y en forma de V invertida; en su arranque salen unas finas plumas rojas. Las patas son delgadas y de color gris, al igual que el pico.
Macho adulto
Con más detalle: la corona está cubierta de plumas cortas de verde bronce metálico; de la nuca nace una cresta estrecha de plumas alargadas, rígidas y casi sin barbillas, de un rojo carmesí que Madge describe más bien como naranja rojizo, y caediza (Beebe, 1922; BOW, 2020; Delacour, 1977; Madge y McGowan, 2002). La frente, la barbilla, la garganta y los lados de la cabeza y del cuello son negros, con una mota verde brillante en cada pluma (Delacour, 1977; Madge y McGowan, 2002). La esclavina, que arranca de la nuca, es de plumas blancas con un ancho borde terminal negro con reflejo azul acero; a media altura, la pluma lleva una barra transversal azul acero que queda casi oculta cuando la esclavina está cerrada (Beebe, 1922). El manto, las escapulares y el pecho son de un verde azulado metálico, cada pluma con un borde negro (en el pecho, ancho y convexo, que da al conjunto un aspecto negro intenso) (Beebe, 1922; Delacour, 1977; Madge y McGowan, 2002).
La espalda baja y el obispillo son negros con un flequillo muy ancho de amarillo dorado, separado del negro por una barra verde oscuro; las plumas del obispillo tienen el flequillo bermellón en el centro y blanco a los lados (Beebe, 1922; Delacour, 1977). Las supracaudales cortas son negras, orladas de blanco las laterales y de escarlata las centrales; las largas son blancas, irregularmente barradas de azul y verde metálico y anchamente rematadas de rojo anaranjado (Beebe, 1922; Delacour, 1977). Las coberteras medianas y mayores y las terciarias son de un rico azul purpúreo; las primarias, pardo negruzcas con el borde externo blanco ante, y las secundarias externas, negras y sin marcas (Beebe, 1922; Madge y McGowan, 2002). Todo el vientre, desde el pecho, es de un blanco puro, salvo los flancos posteriores y los muslos, barrados de pardo oscuro, y las subcaudales, negras con barras blancas (Beebe, 1922; Delacour, 1977; Madge y McGowan, 2002).
La cola, de 18 plumas, es larguísima y termina en punta; el par central puede ser hasta siete veces más largo que el externo (Beebe, 1922). Las plumas centrales son blancas, con unas veinticuatro barras arqueadas de azul acero de unos 10 mm de ancho, separadas por espacios del doble, moteados e irregularmente rayados de negro; las demás tienen barras negras rectas en la barba externa, sobre un fondo pardo oliváceo, y barbas internas negras moteadas de blanco (Beebe, 1922). El patrón de barras es lo que da a la cola su aspecto blanco y negro visto de lejos. En el arranque de la cola, las puntas de las supracaudales forman esos finos hilos rojos o anaranjados que mencionan la guía original y Delacour (BOW, 2020; Delacour, 1977).


Las partes blandas son de tonos fríos, en contraste con el amarillo del dorado: la piel facial desnuda y la carúncula son de un blanco azulado a verdoso, el pico y las patas gris azulado, y el iris, claro (blanquecino o amarillo pálido) (Beebe, 1922; BOW, 2020; Delacour, 1977). Beebe describe además la piel facial como azul, cubierta de diminutas plumillas, el pico como córneo amarillento con la mandíbula superior más oscura y las patas como gris pizarra (Beebe, 1922). En el macho adulto Beebe midió espolones delgados y agudos de 8 a 10 mm, de crecimiento lento; Madge y McGowan, en cambio, los describen como muy pequeños, a menudo casi invisibles (Beebe, 1922; Madge y McGowan, 2002).
El macho según Elliot (1872) y según Yang y colaboradores (1992)
Dos descripciones más, separadas por 120 años, completan el retrato del macho. Elliot (1872) lo describe con la cabeza, la garganta y la parte alta del pecho azul oscuro, verdes con determinada luz, y una larga cresta carmesí rica, con la punta blanco amarillenta; la esclavina blanca, con los márgenes verde oscuro y líneas verde claro en su interior; el dorso verde brillante, con un ancho margen verde oscuro en cada pluma; las primarias pardo oscuro; las secundarias y el resto del ala azul oscuro con reflejos verdosos y bordes negros; las plumas de la rabadilla pardas en la base, luego verdes y finalmente amarillo dorado, el color más llamativo; las supracaudales pardas en la base, luego verdes y blancas, y rematadas en escarlata; el abdomen y los flancos blancos; las plumas centrales de la cola gris claro, cruzadas por barras verdes y moteadas de negro, y las laterales pardas y blanco grisáceo en la barba externa, con barras onduladas negras (Elliot, 1872). Yang y colaboradores (1992) describen un ave de frente, corona y occipucio verde dorado esmeralda, con una cresta filiforme rojo bermellón brillante en el occipucio; la esclavina blanca, con el extremo de cada pluma bordeado de verde muy oscuro y, cerca de la punta, una fina banda ondulada negra en el centro; el dorso alto, las escapulares y el pecho verde dorado esmeralda, con el borde negro cerca de la punta de las plumas, que da un dibujo en escamas; la parte baja de la espalda con las puntas amarillo dorado brillante, algo mezcladas con las manchas verde negruzcas de las bases; la rabadilla y las puntas de las supracaudales cortas centrales de naranja rojizo brillante; las supracaudales cortas exteriores blancas con un fino borde negro; y las largas con la base blanca, cubierta de vermiculaciones negras como nubes y la punta naranja rojiza, que cuelgan en flecos a ambos lados de la base de la cola (Yang et al., 1992).
En la cola y las alas, los autores chinos precisan que las 18 timoneras son graduadas, que las centrales son especialmente largas, ligeramente curvadas hacia abajo, blandas, anchas y comprimidas lateralmente y cubren las externas, con el raquis pardo negruzco y la barba blanca marcada por unas veinticuatro bandas arqueadas verde negruzcas (cifra de lectura dudosa en el texto escaneado), la barba externa teñida de pardo amarillento y la interna también con vermiculaciones de nube verde negra; que las alas son cortas, redondeadas y pardo negruzcas, con diez primarias, de las que la quinta y la sexta son las más largas y la primera la más corta, incluso más que la décima; que en las dos o tres secundarias más externas la barba externa está bordeada de blanco; que las terciarias y las coberteras alares son verde azul metálico con la punta bordeada de negro; y que el vientre y los flancos son de un blanco puro, mientras las subcaudales son pardo negruzcas con un ligero brillo verde metálico (Yang et al., 1992). Las descripciones coinciden en lo esencial con las que ya recogía esta ficha, y solo discrepan en detalles de color de las partes blandas, que se comparan en la tabla siguiente.
| Rasgo (macho adulto) | Beebe, Delacour y BOW | Elliot (1872) | Yang et al. (1992) |
|---|---|---|---|
| Iris | Claro: blanquecino o amarillo pálido (Beebe, 1922; BOW, 2020; Delacour, 1977) | Amarillo paja (Elliot, 1872) | Amarillo brillante (Yang et al., 1992) |
| Piel de la cara | Blanco azulado a verdoso, o azul con diminutas plumillas (Beebe, 1922; BOW, 2020; Delacour, 1977) | Azul oscuro (Elliot, 1872) | Azul rosáceo (párpados y zona desnuda de la cara) (Yang et al., 1992) |
| Carúncula de la mejilla | Blanco azulado a verdoso (Beebe, 1922; Delacour, 1977) | No la menciona | Verde amarillento claro; se hincha en celo y cubre la base del pico inferior y la mejilla (Yang et al., 1992) |
| Pico | Gris azulado (BOW, 2020; Delacour, 1977); córneo amarillento con la mandíbula superior más oscura (Beebe, 1922) | Verdoso pálido (Elliot, 1872) | Gris azulado, con la comisura parda (Yang et al., 1992) |
| Patas | Gris azulado o gris pizarra (Beebe, 1922; Delacour, 1977) | Gris plomo azulado (Elliot, 1872) | Gris azulado, con un espolón en el tarso (Yang et al., 1992) |
Los colores de las partes blandas cambian con la edad y con la época de cría, y los autores no usaron los mismos términos; las diferencias no son, por tanto, necesariamente contradicciones.
Hembra
♀ La hembra tiene una estructura similar a la del macho, pero es de menor tamaño y carece de colores vivos: en su lugar, está cubierta de plumas marrones. La cola mide aproximadamente 30 cm.
Delacour y Johnsgard la describen con detalle: corona, lados de la cabeza, cuello, manto, garganta inferior y pecho superior con un fuerte baño rojizo castaño; garganta superior y vientre claros, a veces blancos; lores, mejillas y auriculares gris plateado moteado de negro; espalda muy vermiculada; y cola de plumas redondeadas (no puntiagudas) con anchas barras irregulares negras, ante y gris pálido vermiculadas de negro (Delacour, 1977; Johnsgard, 1986). El iris es pardo (a veces amarillo pálido o grisáceo en las aves viejas), la piel orbital es gris pizarra azulado claro y el pico y las patas son gris azulado (BOW, 2020; Delacour, 1977; Johnsgard, 1986). Madge y McGowan precisan que la garganta es blanca y sin marcas y que carece de espolones (Madge y McGowan, 2002). En la cara, la piel está poco emplumada y en los adultos queda al descubierto, de color azul, como en el macho (Beebe, 1922).

| Fuente | Tamaño frente a la hembra del dorado | Otros rasgos que señala |
|---|---|---|
| Beebe (1922) | Sin diferencias constantes de tamaño ni de color de pluma | Piel facial escasamente emplumada, desnuda y azul en los adultos (Beebe, 1922) |
| Delacour (1977) y Gerrits (1974) | Más grande | Barrado más negro con brillo verde; cola redondeada, con barras mucho más marcadas; patas y piel orbital grisáceas (Delacour, 1977; Gerrits, 1974) |
| Johnsgard (1986) | Mayor en promedio (ala de más de 180 mm) | Más oscura y más barrada; piel orbital azul claro en lugar de amarilla (Johnsgard, 1986) |
| Madge y McGowan (2002) | Algo más grande | Marrón más cálido, más barrada, corona más rufa que contrasta con la garganta blanca; cola de punta roma (Madge y McGowan, 2002) |
| Birds of the World (2020) | Algo menor | Menos barrada; tono rufo más intenso; plumas de la cola más redondeadas (BOW, 2020) |
El acuerdo es general en el color de patas y piel orbital y en la forma de la cola; el tamaño y el grado de barrado se contradicen entre fuentes.
Elliot (1872) describe la hembra como muy parecida a la del dorado, con la cabeza y las partes superiores castaño ricas, con barras pardo oscuro, mucho más anchas en las alas; los flancos pardo amarillentos barrados; la garganta y el centro del pecho blanco ante; la cola parda, barrada y moteada de pardo oscuro; la piel de la cara muy restringida y azul, como en el macho; el pico pardo y las patas gris plomo (Elliot, 1872). Yang y colaboradores añaden numerosos detalles: la frente y la ceja pardo rojizo oscuro; la corona, la nuca, el dorso alto, las coberteras alares y las remeras cubiertas de bandas alternas pardo rojizas y negras; las puntas del dorso alto y de las escapulares pardo amarillento claro, salpicadas de finos puntos negros; del dorso bajo a las supracaudales, bandas onduladas vermiculadas y rayas finas de pardo y negro mezclados, de aspecto moteado; los lores y las plumas cortas de la cara blanco grisáceo y las auriculares gris plata con negro; el mentón y la garganta blancos, con el borde de las plumas pardo rojizo y negro; el pecho y los flancos pardo rojizo pálido, con dos o tres bandas negras en cada pluma; el centro del abdomen blanco pardo claro; y la cola larga y estilizada, con bandas onduladas pardo rojizas y negras entre las que se mezclan manchas negras irregulares, que en el par central tienen brillo verde muy oscuro (Yang et al., 1992). Dan además el color de las partes blandas de la hembra: iris pardo, piel facial gris azulado claro, comisura del pico parda, tarso y dedos gris azulado (Yang et al., 1992). Una particularidad que anotan: dos hembras nacidas en junio de 1988 y dos hembras capturadas en el campo en agosto tenían solo 16 timoneras en octubre de 1989, mientras que las demás aves observadas tenían 18 (Yang et al., 1992).
Plumajes según la edad
El macho adulto completa su plumaje en el segundo año, y en el primero pasa por un plumaje intermedio entre el de la hembra y el del macho (Beebe, 1922; Madge y McGowan, 2002).
| Etapa | Descripción |
|---|---|
| Polluelo (plumón) | Muy parecido al del dorado, pero más ante, menos amarillento y mayor, con el plumón más espeso y largo (Delacour, 1977). Por encima, pardo fulvino bandeado de beige pálido; por debajo, blanco ante (BOW, 2020). |
| Juvenil | Se parece a la hembra, pero con barras más difusas, la corona casi sin marcas, las barras de flancos y cola más débiles y un tono menos rufo (Delacour, 1977; Madge y McGowan, 2002). |
| Macho de primer año | Plumaje de transición, distinto en cada individuo: plumas del cuerpo barradas de rufo y negro, con la espalda baja pardo rufa moteada de negro; cabeza y cuello con grados variables del negro, verde y blanco del adulto; destellos azulados y verdosos en las coberteras. La cola es la región más adelantada y avanza siempre de las plumas externas hacia las internas, como en la muda. Corona verde oscura sin cresta, esclavina corta de gris oscuro a blanco, supracaudales largas y rojo herrumbre. Longitud de unos 700 mm y cola de unos 400 mm; espolones planos y triangulares de unos 5 mm (Beebe, 1922; Delacour, 1977; Johnsgard, 1986). |
| Macho de segundo año | Muy parecido al adulto, pero con la esclavina no del todo desarrollada (plumas más pequeñas), las coberteras alares más moteadas de negro y ante y las prolongaciones rojas de las supracaudales menos desarrolladas (BOW, 2020; Madge y McGowan, 2002). |
| Macho adulto | Plumaje completo desde el segundo año, como se describe más arriba (Gerrits, 1974; Madge y McGowan, 2002). |
Crecimiento y muda del plumaje: el estudio de Kunming
Yang y colaboradores siguieron semana a semana el crecimiento de las remeras y de las timoneras en pollos criados en cautividad, con una revisión diaria durante la primera semana y una semanal después. Contaron en la especie 4 plumas de álula, 10 primarias, 13 secundarias, 3 terciarias y 18 timoneras. El plumaje de pollo está completo hacia la semana 5, con machos y hembras iguales; la muda posjuvenil es completa y las primarias se renuevan todas durante el primer año (Yang et al., 1992). El orden de las semanas procede del texto; la matriz original, que daba el inicio de cada pluma semana a semana, no es legible en el ejemplar escaneado (Yang et al., 1992).
| Pluma | Orden de crecimiento | Orden y semanas de la muda posjuvenil | Duración media |
|---|---|---|---|
| Álula (4) | A3 y A2, luego A1 y por último A4 (que sale en la semana 6) | A3 (semana 8), A2 (10), A1 (16) y A4 (31–34) | Crecimiento: 45,2 días; muda: 169,6 días |
| Primarias (10) | Primero P10 a P4 (siete brotes ya el primer día); P3 en la semana 2, P2 en la 3 y P1 en la 4 | P10 (semana 5), P9 (6), P8 (8), P7 (9), P6 (10), P5 (14), P4 (15), P3 (17), P2 (19) y P1 (25) | Crecimiento: 28,5 días; muda: unos 142 días |
| Secundarias (13) | S3 a S11, después S2, S12 y S13 y por último S1 | S3 (semana 7), S4 (8), S5 (9), S6 (10), S7 (12), S8 y S9 (14) y las demás hasta la 21 | Crecimiento: 29,6 días; muda: 87,8 días |
| Terciarias (3) | Salen en la semana 3 | T1 y T2 (semana 16), T3 (19); todas sin vaina en la 22 | — |
| Timoneras (18) | R1 a R8 en la semana 2; R9, el par externo, en la 3 | Centrípeta: R9, R8 y R7 (semana 6), R6 y R5 (7), R4 (8), R3 (9), R2 (10) y R1 (11); todas nuevas hacia la semana 23 | Crecimiento: 10,5 días; muda: 39,5 días |
Los autores observaron una dispersión individual de unas dos o tres semanas en cada pluma. La muda de las timoneras es simétrica y centrípeta, como en el dorado; en la álula el orden difiere del descrito para el dorado, porque las plumas centrales salen y mudan primero y la más interna (A4) la última (Yang et al., 1992).
Para el cuerpo, la sucesión de cambios que describen es la siguiente. Hasta la semana 1, el ave está toda cubierta de plumón; en la 2 asoman los brotes en todo el cuerpo salvo la cabeza, el cuello y los flancos; en la 5 todo el cuerpo lleva plumaje juvenil. En los machos, en las semanas 8–9 aparecen plumas blancas en el vientre; en la 10 mudan las dos timoneras centrales y salen otras blancas con rayas oscuras oblicuas, parecidas a las del adulto pero más cortas y rectas, y la cabeza se vuelve más negra con brillo verde cobrizo; en la 19, mientras las hembras jóvenes ya han mudado a un plumaje como el de la hembra adulta, algo más pequeño, los machos empiezan a lucir en la coronilla plumas verde esmeralda dorado brillante, una esclavina pequeña gris blanquecina con borde negro verdoso y las dos primeras plumas rojo anaranjado de la cresta; en la 21 la piel de la cara del macho se vuelve azul pálido, mientras que la de la hembra es gris blanquecina; y en la 27 la rabadilla y las puntas de las supracaudales empiezan a mudar a naranja rojizo, aunque el plumaje del cuerpo y las timoneras externas siguen manchados de pardo hasta que la muda del otoño del año siguiente da el plumaje de adulto completo (Yang et al., 1992). En los adultos, la muda posnupcial de los machos va de julio a octubre, y la de las hembras empieza tras la puesta, en julio o agosto, y termina a finales de octubre o principios de noviembre (Yang et al., 1992).
El mismo libro ofrece descripciones propias de las etapas jóvenes. El macho subadulto de aproximadamente un año se parece a la hembra adulta, pero la corona ya ha mudado a plumas negras con brillo verde dorado; la esclavina es más pequeña, pardo grisácea o blanco grisácea, con el borde verde negruzco; las plumas de la cara y la garganta tienen la base blanca y el borde negro, lo que forma un dibujo moteado (algunos son casi enteramente pardo negruzcos); y las timoneras son ya blancas y rayadas de negro como las del adulto, pero más cortas y rígidas. El joven de cuatro o cinco meses tiene la corona pardo negruzca moteada de ante, los lores, el mentón y la garganta con plumas cortas blancas, y el resto del plumaje como el de la hembra (Yang et al., 1992). Del pollo recién nacido describen un plumón de color castaño pardo, con una línea negra desde la frente a la corona, una banda pardo negruzca en la nuca y otra ancha a lo largo del dorso, y la cara, la garganta y las partes inferiores amarillentas; el pico, las patas y los dedos amarillos (Yang et al., 1992). En el campo, otra descripción de pollos recién nacidos da el pico superior con la base pardo negruzca y la punta amarillo carne, el iris pardo claro y las partes inferiores blanco pardas, con el diente de huevo, que empieza a desprenderse al día siguiente de la eclosión (Yang et al., 1992).
Hembras que adoptan el plumaje del macho
Como en el dorado y otros faisanes (véase la ficha del dorado), algunas hembras mudan con la edad hacia un plumaje de macho. Beebe observó y disecó varias hembras de Lady Amherst en pleno cambio y las describió como de una belleza inusual: en la fase intermedia, las plumas de la esclavina son de un gris azulado muy delicado, con grandes manchas irregulares de rojo muy pálido, un borde negro estrecho, una banda de cobre bronce encendido y una amplia zona de gris claro; tras unas pocas mudas, el plumaje se parece ya al del macho (Beebe, 1922). Una de ellas, que adoptó plumaje de gallo a los siete años, seguía viva a los once años y cuatro meses (Beebe, 1922).
Corder, en un manual de la World Pheasant Association, ilustra el fenómeno con hembras de Lady Amherst y de tragopán de Blyth y lo llama ginandria. Lo describe como el equivalente aviar de la menopausia: la hembra deja de poner y de producir hormonas femeninas, suele mostrarse letárgica y a veces muere, pero si sobrevive recupera el vigor al cabo de unos meses, y en la muda siguiente muestra algo de coloración masculina, que aumenta en cada muda posterior. Los criadores inexpertos lo llaman «cambio de sexo», lo cual no es correcto; el macho sigue cortejando a la hembra ginandra aunque ya no vaya a poner (Corder).
Variación y pureza
Beebe señala que dos machos nunca son exactamente iguales en el plumaje de primer año (Beebe, 1922). Lo que más preocupa a los criadores, sin embargo, no es la variación natural, sino los rasgos que delatan sangre de dorado: rojo en los flancos y los muslos, restos de moteado en la cola, puntas escarlata en lugar de naranja en las supracaudales o una cresta demasiado grande (véase el capítulo de cría en cautividad) (Delacour, 1977; Gerrits, 1974). Johnsgard advierte de que muchas aves criadas en cautividad muestran grados variables de intermedio por la hibridación de generaciones anteriores (Johnsgard, 1986).
Delacour, en su manual de cría, resume los rasgos de un ejemplar puro con una lista corta: una pequeña cresta roja, la corona verde, nada de rojo en las partes inferiores y una cola claramente barrada. Las hembras son pardo rojizas con barras negras, sin tinte amarillo, y el pico y las patas, gris azulados; los machos de primer año son pardos, con una esclavina corta grisácea y la cola blanquecina (Delacour, 1978). Yang y colaboradores vieron en octubre de 1988, en el zoo de Guiyang, un macho comprado en la región con el vientre teñido de rojo, que podía ser un híbrido natural (Yang et al., 1992).
Fisiología y composición corporal
Los biólogos de Kunming aportaron también los primeros valores fisiológicos normales de la especie, medidos en 23 aves sanas criadas en cautividad. Son una referencia útil para vigilar la salud de las aves, pero sus autores los consideran provisionales (Yang et al., 1992).
| Parámetro | Macho | Hembra |
|---|---|---|
| Hemoglobina (g/100 ml de sangre) | 7,97 ± 0,418 | 9,13 ± 0,763 |
| Eritrocitos (millones/mm³) | 3,70 ± 1,05 | 3,49 ± 0,48 |
| Leucocitos (por mm³) | 22.850 ± 1.125 | 23.312 ± 761 |
| Linfocitos / heterófilos (% de los leucocitos) | 54,33 / 40,33 | 53,62 / 39,25 |
| Eosinófilos / basófilos / monocitos (%) | 2,5 / 1 / 2,33 | 3,125 / 1,2 / 3,25 |
Hemoglobina corregida para el núcleo de los eritrocitos de las aves. Proteínas séricas (6 aves): albúmina 44,76 %; globulinas alfa 14,90 %, beta 16,27 % y gamma 24,06 %. Para comparar, los autores citan en el gallo y la gallina una hemoglobina de 10,3 y 9,80 g/100 ml, eritrocitos de 4,00 y 3,07 millones/mm³ y leucocitos de 20.400 y 18.900/mm³ (Yang et al., 1992).
La temperatura corporal de los pollos recién nacidos medida fue de 38,89 °C de media (36,9–40,4 °C, en 12 mediciones); la de los pollos de una semana a cinco o seis meses, de 42,465 °C (39,3–44,5 °C, en 285 mediciones), y la de adultos de dos años, de 41,7 a 42,8 °C. La frecuencia respiratoria de cinco adultos fue de 40,4 ± 7,26 respiraciones por minuto, claramente mayor que la de la gallina doméstica (22–25), quizá por estrés (Yang et al., 1992). En cuanto al crecimiento del peso, hacia los 41 días de edad llegan al 21,01 % (machos) y 23,66 % (hembras) del peso adulto, cuando al nacer representaban el 2,47 % y el 2,89 % (Yang et al., 1992). De los 30 esqueletos de pollos preparados (de 1 a 143 días), los autores deducen que el cráneo, que al nacer ya tiene entre el 44,5 y el 50,3 % de su tamaño adulto, supera el 95 % a los 143 días; que la osificación del cráneo, la mandíbula, el esternón y el carpometacarpo se completa hacia esa edad; que el pigostilo se fusiona de atrás hacia delante; y que el miembro anterior crece más deprisa que el posterior (Yang et al., 1992). El análisis de la composición de tejidos se hizo con tres adultos criados en jaula y dos capturados en el campo, y con seis huevos frescos:
| Tejido (porcentaje) | Silvestres | En jaula |
|---|---|---|
| Músculo pectoral: agua / proteína / grasa | 67,01 / 28,65 / 1,42 | 70,58 / 22,69 / 1,36 |
| Músculo del muslo: agua / proteína / grasa | 71,29 / 21,00 / 2,52 | 72,40 / 23,61 / 2,11 |
| Hígado: agua / proteína / grasa | 66,15 / 23,87 / 3,91 | 69,94 / 20,56 / 3,57 |
| Hígado: azúcares totales | 0,785 | 4,747 |
La asignación de cada cifra a su columna es la más probable, porque el texto escaneado de la tabla está muy desordenado (Yang et al., 1992). En los huevos, la clara tiene 10,47 % de proteína y la yema 12,12 % de proteína y 30,14 % de grasa (Yang et al., 1992).
La carne de la especie, de la que los autores dicen que es fina y sabrosa, es rica en proteína y pobre en grasa. Los autores explican la mayor proteína del pectoral de las aves silvestres por su mayor actividad de vuelo, y la del muslo de las enjauladas por su mayor actividad de andar, y atribuyen la diferencia en los azúcares del hígado a que las aves capturadas habían pasado un largo ayuno antes del análisis (Yang et al., 1992). En todos los tejidos hallaron abundantes sodio, calcio, fósforo, magnesio y hierro; mercurio no detectable; y cadmio y plomo muy por debajo de los límites internacionales para alimentos (0,5 ppm de cadmio y 7 ppm de plomo) (Yang et al., 1992).
Medidas y peso
Los datos de la guía original, contrastados con la literatura.
Según la tabla, el macho alcanza una longitud de 130 cm y la hembra de 66 cm, con un peso de 600 a 800 g en ambos sexos. Las alas miden de 20 a 23 cm en el macho y de 18 a 20 cm en la hembra. La diferencia más notable se da en la cola, de 83 a 115 cm en el macho y de 28 a 37 cm en la hembra, mientras que el tarso mide entre 75 y 80 mm en el macho y entre 66 y 73 mm en la hembra.
Medidas según distintas fuentes
Las cifras de los distintos autores no coinciden del todo. En parte se debe a que proceden de muestras pequeñas (los pesos de Cheng y colaboradores son de cinco machos y cinco hembras), y en parte a que la cola, la medida más variable, depende de la muda y del desgaste. Se recogen todas para que cada lector juzgue (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
| Fuente | Longitud ♂ | Longitud ♀ | Cola ♂ | Cola ♀ | Peso ♂ | Peso ♀ |
|---|---|---|---|---|---|---|
| Tabla original de esta guía | 130 cm | 66 cm | 83–115 cm | 28–37 cm | 600–800 g | 600–800 g |
| Beebe (1922) | 1.200 mm (ejemplar descrito) | — | — | — | — | — |
| Delacour (1977), recogido por Gerrits | 1.300–1.700 mm | 660–680 mm | 860–1.150 mm | 310–375 mm | — | — |
| Johnsgard (1986), sobre Cramp y Simmons (1980) y Cheng et al. (1978) | — | — | 830–950 mm | 286–318 mm | 675–850 g | 624–804 g |
| Madge y McGowan (2002) | 130–173 cm | 66–68 cm | 830–1.150 mm | 286–375 mm | 675–850 g | 624–804 g |
| Birds of the World (2020) | 130–173 cm | 66–68 cm | 83–115 cm | 28–37 cm | 675–850 g | 624–804 g |
Johnsgard añade, tomándolo de Delacour, que la cola puede alcanzar 1.150 mm en los machos y 375 mm en las hembras. Birds of the World da además una envergadura de 70 a 85 cm (sin distinguir sexos). (Beebe, 1922; BOW, 2020; Delacour, 1977; Gerrits, 1974; Johnsgard, 1986; Madge y McGowan, 2002)
| Medida | Macho | Hembra | Fuente |
|---|---|---|---|
| Ala | 205–235 mm (Delacour y Madge); 215–226 mm (Cramp y Simmons); 20–23 cm (tabla original) | 183–203 mm (Delacour y Madge); 194–203 mm (Cramp y Simmons); 18–20 cm (tabla original) | Delacour; Madge y McGowan; Johnsgard |
| Tarso | 75–85 mm (Delacour y Madge); 75–80 mm (tabla original) | 66–74 mm (Delacour y Madge); 66–73 mm (tabla original) | Delacour; Madge y McGowan |
| Culmen | 25 mm | 23 mm | Delacour; Gerrits |
| Huevo (tamaño) | 45 × 34 mm (tabla original); 46 × 35 mm y 31,1 g de peso fresco (Johnsgard); 46–53 × 34–37 mm (Delacour); 49,5 × 35,5 mm fuera del área nativa (BOW); 45 × 36 mm de media en una puesta de siete (Beebe) | Varias fuentes | |
| Polluelo al nacer | Siete pollos del zoo de San Diego pesaron 24,1 g de media al nacer, 149 g a los 30 días; cinco de ellos, 207 g a los 40 días | Johnsgard | |
| Macho de primer año | longitud ≈ 700 mm · cola ≈ 400 mm | Beebe; Delacour |
(Beebe, 1922; BOW, 2020; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
Medidas de aves chinas: el libro de Yang y colaboradores (1992)
La monografía china da una tabla propia de medidas, tomadas en aves de la región de Kunming y de Sichuan: 15 machos adultos, 6 hembras adultas y 9 subadultos. Los pesos medios superan en el macho a los de la hembra, como en todas las demás fuentes, y el peso medio de los machos (casi 877 g) es algo mayor que los extremos que dan Johnsgard y Madge para su muestra (675–850 g) (Johnsgard, 1986; Madge y McGowan, 2002; Yang et al., 1992).
| Medida (media y rango) | Macho adulto (n = 15) | Hembra adulta (n = 6) | Subadulto (n = 9) |
|---|---|---|---|
| Peso (g) | 876,7 (740–1.000) | 602 (485–800) | 742,6 (595–820) |
| Longitud total (mm) | 1.198 (1.000–1.323) | 626 (590–845) | 771,3 (710–845) |
| Culmen (mm) | 28,3 (25–31) | 26,8 (25–30) | 28,3 (27–32) |
| Ala (mm) | 219 (217–226) | 193,3 (185–213) | 208 (199–214) |
| Cola (mm) | 880,8 (714–1.278) | 321,5 (285–365) | 435 (390–415) |
| Tarso (mm) | 78,6 (74–88) | 73,3 (66–81) | 74,3 (70–81) |
El texto de esta tabla del libro, obtenido por OCR, salió desordenado: la asignación de columnas se ha reconstruido por el orden de lectura, y varios valores son sospechosos (el máximo de longitud total de la hembra, el máximo de cola del macho y el rango de cola del subadulto, que no contiene a su media) (Yang et al., 1992).
| Huevos y pollos | Cifras | Origen |
|---|---|---|
| Huevos del campo (20) | 45,9 (43,7–47,5) × 35,3 (34,0–41,5) mm; 28,1 g (24,0–33,0) | Yang et al. (1981), citado en Yang et al. (1992) |
| Huevos de un nido en Gulu (6) | 45,5 × 34,6 mm (43 × 33 a 46,2 × 35,3); 29,8 g de peso medio | Kunming, 1987 (Yang et al., 1992) |
| Huevos en cautividad (358) | 47,17 × 35,48 mm (41 × 34 a 50,9 × 37,5); 32,74 g de media (27–38) | Kunming, 1987–1989 (Yang et al., 1992) |
| Pollos recién nacidos en el campo (6) | 21,8 g (19–23); culmen 9 mm; tarso 23,5 mm; ala 26,8 mm | Gulu (Yang et al., 1992) |
| Pollos recién nacidos en cautividad (22) | 21,04 ± 0,36 g (18–25); temperatura corporal 38,83 ± 0,24 °C | Kunming (Yang et al., 1992) |
| Pollos del zoo de San Diego | 24,1 g al nacer (7); 149 g a los 30 días; 207 g a los 40 días (5) | Johnsgard (1986) (Johnsgard, 1986) |
Los huevos de las hembras criadas por Yang y colaboradores son, según ellos, mayores y más pesados que los silvestres, diferencia que atribuyen quizá a la alimentación (Yang et al., 1992).
Distribución y hábitat
Montañas del suroeste de China, el sureste del Tíbet y el noreste de Myanmar, a más altura que el dorado.
El faisán Lady Amherst habita en el oeste de China, en espacios cubiertos de bambú y arbustos espinosos y en colinas rocosas, a una altitud de entre 2.000 y 4.000 m.

Área de distribución
Las fuentes coinciden en lo esencial —el suroeste de China, el sureste del Tíbet y la frontera de Myanmar— pero describen los límites de forma algo distinta, y todas reconocen que el área exacta se conoce mal (Beebe, 1922; Johnsgard, 1986; Madge y McGowan, 2002).
| Fuente | Límites del área |
|---|---|
| Beebe (1922) | Extremo oriental del Tíbet propiamente dicho, montañas de Sichuan occidental y de Yunnan septentrional, hasta apenas unos kilómetros dentro de Birmania (Beebe, 1922). |
| Père David (citado por Beebe) | Las montañas arboladas más altas del oeste de Sichuan, Yunnan, Guizhou y el este del Tíbet (Beebe, 1922). |
| Delacour (1977) | Sureste del Tíbet y suroeste de China: de Sichuan occidental a Yunnan central, al sur hasta Mengtz, además de Guizhou y las fronteras del norte de Birmania (Delacour, 1977). |
| Johnsgard (1986) | Desde unos 31° N, al oeste de Kwanhsien (Sichuan occidental), hacia el oeste hasta el río Salween y hacia el sur hasta el noreste de Birmania; al este, hasta unos 23° N en Yunnan y el oeste de Guizhou (Johnsgard, 1986). |
| Madge y McGowan (2002) | Del noreste de Myanmar, junto a la frontera con China, hacia el este por Yunnan hasta el oeste y centro de Guizhou, y al norte por el sureste del Tíbet hasta el centro de Sichuan (incluido el Emei Shan) (Madge y McGowan, 2002). |
| Birds of the World (2020) | Noreste de Myanmar, extremo sureste del Tíbet y sur de China, del oeste de Sichuan a Yunnan y el oeste de Guizhou (BOW, 2020). |
La relación con el dorado es de vecindad sin contacto. Père David aseguraba que ambas especies nunca se encuentran en la misma montaña ni en el mismo valle y que el Lady Amherst, muy celoso, no deja acercarse al dorado, único capaz de competir con él (Beebe, 1922); Johnsgard no halló contacto entre ambas en China (Johnsgard, 1986), y Madge y McGowan precisan que, aunque las áreas casi se tocan, no se conoce que se solapen (Madge y McGowan, 2002).
Localidades y límites según el libro chino
Yang y colaboradores sitúan el área de la especie en las montañas del suroeste de China, aproximadamente entre 23° y 30° N y entre 97° y 106° E (los minutos de las coordenadas son de lectura dudosa en el texto escaneado). Recuerdan que el primer ejemplar recogido en China fue el que obtuvo Anderson en 1868 en Momien, en el oeste de Yunnan (la actual Tengchong), según Rothschild (1926), y reúnen las localidades de captura registradas por investigadores chinos y extranjeros hasta 1989 (Yang et al., 1992):
| Provincia o país | Localidades (grafía en pinyin) |
|---|---|
| Sichuan (13) | Pingshan, Emei, Ya’an, Tianquan, Baoxing, Xichang, Dechang, Huidong, Ganluo, Meigu, Ebian, Kangding, Muli |
| Yunnan (31) | Gongshan, Lushui, Tengchong, Yingjiang, Lijiang, Dali, Fengqing, Cangyuan, Gengma, Zhenkang, Kunming, Chuxiong, Dayao, Binchuan, Deqin, Yuxi, Qujing, Yongshan, Zhaotong, Suijiang, Yanjin, Huize, Xundian, Lunan, Tonghai, Luxi, Shizong, Luoping, Mile, Shiping, Mengzi |
| Guizhou (6) | Weining, Hezhang, Shuicheng, Panxian, Xingyi, Bijie |
| Guangxi (5) | Xilin, Longlin, Tianlin, Leye, Jingxi |
| Tíbet | Sureste del Tíbet (Zheng Zuoxin, 1987) |
| Myanmar | Bhamo y el nordeste del norte del Estado Shan, en la zona fronteriza con China (Smythies, 1986) |
Dos nombres de Yunnan (Yongshan y Yanjin) y algunos otros se han transcrito por su lectura más probable, porque el texto escaneado los altera (Yang et al., 1992). La relación procede de la compilación de los autores y de sus propios registros recientes; no equivale a un mapa de distribución actual.
Zonas de contacto con el faisán dorado
La frase de Madge y McGowan de que no se conoce solapamiento entre las dos especies contrasta con la lectura de Yang y colaboradores, que revisan los registros de captura de ambas y hallan localidades donde se han recogido las dos: Baoxing (Sichuan), Zhaotong (Yunnan), Guiyang (Guizhou) y la zona de Xilin, Longlin, Tianlin y Jingxi (Guangxi) (Madge y McGowan, 2002; Yang et al., 1992). De ahí deducen una banda de mosaico y solapamiento de las áreas en tres tramos: al norte, las montañas del borde occidental de la llanura de Sichuan occidental (Baoxing, Emei, Pingshan); en el centro, la región de Zhaotong, en el nordeste de Yunnan, y las montañas al oeste de la ciudad de Guiyang; y al sur, las montañas de Longlin, Xilin, Tianlin y Jingxi, en el oeste de Guangxi (Yang et al., 1992). Los autores califican la distribución de las dos especies de alopátrica, pero con zonas de mosaico y solapamiento; en ellas solo se han hallado individuos híbridos ocasionales, como el macho capturado en 1964 en el condado de Xuyong (Sichuan), a 1.500 m, en un paisaje donde alternan bosque latifoliado de montaña y cultivos (véase el capítulo de subespecies, mutaciones e híbridos) (Yang et al., 1992). La separación de hábitat es el factor que, según ellos, evita el intercambio de genes: el Lady Amherst vive sobre todo a 1.500–3.000 m, en bosque subtropical de frondosas perennes y en bosques mixtos de coníferas y frondosas, mientras que el dorado ocupa mayormente de 400 a 1.700 m, en bosques mixtos de coníferas y frondosas perennes, y en bosques mixtos de frondosas caducifolias y perennes (Yang et al., 1992). La dieta de ambos es parecida, vegetal sobre todo, y el canto del macho y la danza de cortejo también (Yang et al., 1992).
Relieve, clima y vegetación del área
El libro describe el relieve del área en cinco tipos: la montaña-meseta del sureste del Tíbet y el oeste de Sichuan; la alta montaña y los cañones de las cordilleras transversales del suroeste de Sichuan y noroeste de Yunnan; la parte norte de la meseta montañosa del suroeste de Yunnan; la meseta del oeste y del centro de Yunnan; y la meseta del oeste de Guizhou con las montañas medias y colinas de Yunnan y Guangxi (Yang et al., 1992). El clima es subtropical húmedo de monzón: la temperatura media de enero suele superar los 5 °C (10 °C al sur de los 25° N), la mínima absoluta no baja de unos –5 °C, hay entre 220 y 340 días sin helada en los valles, y el mes más cálido rara vez pasa de unos 20 °C de media. La lluvia ronda los 1.000 mm anuales y se concentra de mayo a octubre (el 85 % del total, sobre todo de julio a septiembre), pero en las profundas gargantas de los ríos Jinsha, Lancang y Nu, donde el terreno cae bruscamente, no llega a 800 mm anuales y el efecto foehn da un aspecto semiárido (Yang et al., 1992). La vegetación se reparte, según los autores, en cuatro grandes tipos (Yang et al., 1992):
| Tipo de vegetación | Altitud y distribución | Especies principales |
|---|---|---|
| Bosque subtropical de frondosas perennes | Laderas umbrías y húmedas, de 1.500 a 2.800 m | Fagáceas de los géneros Cyclobalanopsis, Castanopsis y Lithocarpus; Schima; en lo más alto o al norte, robles caducifolios. Muy dañado hoy en distinto grado |
| Pinar subtropical | De 1.500 a 2.800 m, en solanas y suelos pobres; deriva a menudo de la destrucción del robledal | Pinus yunnanensis y, en segundo lugar, P. massoniana; a veces mezclado con robles y con Alnus nepalensis |
| Sabana arbustiva subtropical | Valles bajos y semiáridos de los ríos Jinsha, Lancang y Nu, sobre todo por debajo de 1.500 m | Matorrales suculentos espinosos y árboles caducifolios dispersos |
| Vegetación de alta montaña | Por encima del bosque subtropical, hasta un límite arbóreo de unos 3.500–3.800 m | Bosque umbrío subalpino de abetos, píceas, Pseudotsuga y alerces; por encima, matorral de rododendros y prados de Kobresia |
Con los datos de años de observación, los autores concluyen que la especie habita sobre todo a unos 1.500–3.000 m, en el bosque subtropical de frondosas perennes y en las zonas de bosque mixto de coníferas y frondosas, y que es muy rara en los valles secos y cálidos por debajo de 1.500 m y en las regiones frías de alta montaña por encima de 3.000 m (Yang et al., 1992). Y precisan que su apodo regional de «gallo de quebrada» procede de que vive sobre todo en bosques de ladera junto a los valles fluviales y los arroyos (Yang et al., 1992).
Altitud
La guía original da una banda de 2.000 a 4.000 m. La literatura es coherente con ella, con algunas precisiones. Las altitudes antiguas se dan en pies; la conversión se indica entre paréntesis.
| Fuente | Altitud |
|---|---|
| Tabla original de esta guía | 2.000–4.000 m |
| Père David (citado por Beebe) | Entre 6.000 y 9.000 pies (unos 1.800–2.700 m), en los bambusales enmarañados (Beebe, 1922) |
| Davies (citado por Beebe) | 7.000 pies (unos 2.100 m) en Yunnan occidental y 7.700 pies (unos 2.350 m) en Guizhou (Beebe, 1922) |
| Delacour (1977) | Entre 7.000 y 12.000 pies (unos 2.100–3.650 m) (Delacour, 1977) |
| Johnsgard (1986) | Normalmente entre 7.000 y 12.000 pies, y localmente hasta 15.000 pies (unos 4.600 m) en Yunnan (Johnsgard, 1986) |
| Madge y McGowan (2002) | 1.800–4.600 m, habitualmente 2.100–3.600 m (Madge y McGowan, 2002) |
| Birds of the World (2020) | Principalmente 2.100–3.600 m; 1.800–4.600 m en el área nativa (BOW, 2020) |
| Fotografías de esta ficha | Kangding (oeste de Sichuan), a 2.000–2.300 m |
Todos los autores coinciden en que vive claramente más alto que el dorado (principalmente 800–1.600 m) (BOW, 2020; Delacour, 1977; Gerrits, 1974; Howman, 1979; Madge y McGowan, 2002).
Yang y colaboradores aportan otros registros extremos. El más alto es el de una localidad del noroeste de Yunnan citada como Ndamucho (lectura dudosa), a 14.000 pies (unos 4.268 m), según Riley (1931); el más bajo, el del oeste de Guangxi, entre 600 y 800 m, según Wu Mingchuan (1984); y en el nordeste de Birmania, Smythies (1986) da de 5.000 a 8.000 pies (1.524–2.439 m; la cifra inferior es de lectura dudosa en el texto escaneado) (Yang et al., 1992). Otros autores chinos que citan dan 2.000–4.000 m (Zheng Zuoxin y colaboradores, 1963 y 1978), 1.500–4.000 m (Li Guiyuan y colaboradores, 1985; con estancia en bosques de alta montaña en verano y descenso a zonas de cultivo de montañas bajas en invierno) y 1.500–2.800 m en Weining y Xingyi, en Guizhou, en bosques de frondosas perennes y mixtos de media montaña con rocas (Yang et al., 1981) (Yang et al., 1992). El rango vertical relativo que resumen los autores es, pues, de 600 a 4.268 m, con un óptimo en torno a los 1.500–3.000 m (Yang et al., 1992).
Hábitat
El hábitat típico es la ladera rocosa y escarpada de montaña cubierta de bambú denso o matorral espinoso, con arroyos de montaña cercanos (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002). Beebe, que observó la especie en los barrancos de la frontera entre Yunnan y Birmania, la describió en un paisaje de torrentes helados que bajan desde unas dos millas de altura (unos 3.200 m), entre bambú verde brillante, orquídeas y musgo; los pájaros utilizan los costados escarpados de esos valles como vías naturales de paso (Beebe, 1922). Allí encontró una pareja rascando entre los guijarros de un banco de arena junto a un torrente, en un tramo cubierto de bambú bajo (Beebe, 1922).
Delacour señala que vive en terreno rocoso, sobre todo en matorrales y bambúes de cuyos brotes se alimenta, y también en bosques y matorral; cerca de Yunnan-Fu (Kunming) vive en los extensos bosques sagrados que rodean las pagodas (Delacour, 1977). Carreau, que la conoció en torno a Ta-lin-pin (a unos 29° N y 102° E), aseguraba, en cambio, que no la había encontrado nunca en el bosque, sino en laderas desoladas cubiertas de zarzas, espinos y claros de hierba (Beebe, 1922).
A pesar de la vistosa apariencia del macho, estas aves son muy difíciles de ver en su hábitat natural, que es denso; por consiguiente, poco se conoce de su comportamiento en el medio silvestre.
En las poblaciones introducidas de Inglaterra, Madge y McGowan señalan que ocupan parques arbolados con rododendros y plantaciones forestales jóvenes o mixtas, y que al madurar los monocultivos de una sola especie el sotobosque desaparece y el lugar deja de ser adecuado (Madge y McGowan, 2002). La existencia de árboles, por sí sola, no describe pues la calidad del hábitat para esta especie; el ejemplo es de Inglaterra y no demuestra que todos los bosques maduros sean inadecuados en China (Madge y McGowan, 2002). Howman anotaba en 1993 que los estudios de campo entonces recientes sugerían cierta adaptabilidad de la especie a algunas prácticas agrícolas nuevas dentro de su hábitat original, sin precisar cuáles, por lo que no cabe concluir que tolere cualquier transformación del paisaje (Howman, 1993).
El hábitat del estudio de Kunming (Gulu)
El estudio de campo más completo hasta ahora de la especie se hizo en la zona de Gulu, en el distrito de Xishan, al oeste de la ciudad de Kunming, en las estribaciones de los montes Wumeng, en la meseta central de Yunnan. Allí, en 1986–1987, los autores observaron un territorio de unos 35 km², entre 1.750 m (la aldea de Caijia, en el valle del río Tanglang) y 2.641 m (la montaña Fengbai), es decir, con un desnivel de 891 m; con una temperatura media anual de 12–15 °C, una lluvia de 1.000–1.200 mm repartida en una estación seca y otra húmeda muy marcadas, y hasta 257 días sin helada (Yang et al., 1992). El Lady Amherst vive allí en tres tipos de vegetación (Yang et al., 1992):
| Tipo de bosque en Gulu | Especies características | Comentario |
|---|---|---|
| Bosque mixto perennifolio de coníferas y frondosas | Fagáceas (Castanopsis, Cyclobalanopsis, Lithocarpus, Quercus acutissima), camelias, Pinus armandii, P. yunnanensis, Keteleeria; sotobosque de arbustos como Myrica nana, Pyracantha y Myrsine | El principal y más extendido; en el borde del bosque se cultivan trigo, maíz y patata |
| Bosque secundario de Pinus armandii | El pino de Armand con pocas fagáceas, Cornus capitata y Vaccinium sprengelii; rododendros y zarzas (Rubus) en el sotobosque | Las tierras de cultivo del borde están sobre todo en barbecho |
| Bosque secundario mixto de árboles y arbustos caducifolios | Alnus nepalensis, Coriaria sinica y rosáceas (Rosa, Rubus) | Con frutos que alimentan a los polluelos en verano |
En la zona de Kunming el Lady Amherst vive, pues, sobre todo en bosque mixto perennifolio de coníferas y frondosas, en coníferas y en bosque mixto caducifolio, y es un fásido forestícola bastante típico. Aunque en ocasiones se le vio activo en laderas peladas con matorral y árboles dispersos, los autores subrayan que esos lugares son siempre bosque talado, y que las aves que allí se ven se han visto forzadas a adaptarse a un nuevo hábitat tras la destrucción del original (Yang et al., 1992). Esta lectura se aparta de la que daban Zheng Zuoxin y colaboradores (1963 y 1978), para quienes normalmente no aparece en bosque, sino en montañas rocosas y yermas y entre matorrales espinosos y bosque bajo, y es afín a la de Davies y a la de BOW (Beebe, 1922; BOW, 2020; Yang et al., 1992).


Más información en otras fuentes
Birds of the World · Wikipedia · estudio de fragmentación del hábitat (2022)
Sonidos y llamadas de la especie
Comportamiento y voz
Un ave de sotobosque que se ve poco, se oye menos y se delata por la cola.
Por su carácter huidizo y su hábitat denso, se sabe de ella mucho menos de lo que sugiere su fama en las colecciones: Johnsgard no halló en 1986 estudios detallados de su voz ni comparaciones con la del dorado, y las observaciones de campo siguen siendo escasas (Johnsgard, 1986; Madge y McGowan, 2002).
Locomoción y huida
Es un ave típicamente esquiva, que se mantiene al abrigo del arbusto denso en el borde del bosque y que rara vez se ve; lo que suele delatarla es la larga cola blanca barrada, que llama la atención cuando desaparece por un sendero del bosque (Madge y McGowan, 2002). Beebe notó que el macho llamaba siempre la atención: la esclavina y la cola blancas no se confundían con nada y destacaban incluso con el ave inmóvil, de modo que, aunque la hembra estuviera a la vista y el macho oculto entre el bambú, lo normal era descubrir antes al macho (Beebe, 1922).
Beebe, Delacour y Gerrits coinciden en que echa a volar con más facilidad que el dorado. Beebe cuenta que sorprendió a varias aves solas al llegar de improviso, cuando un dorado habría escapado a pie, aunque advierte que ese hábito puede depender del terreno: las aves de bambú abierto se levantan más fácilmente que las de bosque cerrado y denso (Beebe, 1922). Gerrits añade que, al ser perseguidas, estas aves se lanzan al vuelo antes que las de dorado (Delacour, 1977; Gerrits, 1974). Carreau observó que, si el ave volaba hacia arriba, podía abatirla, pero que si descendía desaparecía con una rapidez tal que no había modo de cazarla (Beebe, 1922). La guía original lo resume diciendo que, aunque pueden volar, prefieren correr, y que si se asustan alzan el vuelo hacia arriba a gran velocidad y con un sonido distintivo. Davies, en Yunnan, la describió como un ave difícil de hacer volar, que se levanta sin cantar y con poco ruido de alas, y de carne «blanda», muy fácil de abatir (Beebe, 1922).
Duermen en los árboles durante la noche. Aunque pueden volar, prefieren correr; si se asustan, son capaces de alzar el vuelo hacia arriba a gran velocidad y con un sonido distintivo.
Ritmo de actividad diaria y dormideros
Las observaciones de Kunming dan por primera vez un cuadro horario de la jornada. El ave duerme de noche oculta en la copa de un árbol y baja al suelo al amanecer; vaga por el bosque en busca de comida, sobre todo por los senderos, sin ruta ni dirección fijas; es muy alerta y, al oír un ruido anormal o ver un peligro, corre a esconderse; corre muy deprisa por el bosque y, si no logra escapar, levanta el vuelo y se posa en un árbol alto o se deja planear ladera abajo (Yang et al., 1992). Tras comer, se arregla el plumaje y descansa en las ramas, o cava un hoyo en un lugar soleado, de suelo suelto y seco y bastante oculto, para darse un baño de tierra; en la estación seca (noviembre–abril) bebe una vez al día en arroyos y acequias (Yang et al., 1992). Sube a dormir a ramas situadas entre 1,8 y 3,5 m sobre el suelo, entre el follaje denso; el dormidero es muy fijo en la época de cría y menos fuera de ella (Yang et al., 1992). En primavera y verano se encarama entre las 17:30 y las 18:06 y baja entre las 6:17 y las 7:00; en invierno sube entre las 18:18 y las 18:37 y baja entre las 7:46 y las 8:00, de modo que en la estación cálida sube más tarde y baja más pronto, y en la fría al revés, algo que los autores relacionan con la duración del día (Yang et al., 1992). La actividad de alimentación tiene dos picos: el principal, entre las 8:00 y las 11:00, y otro, más suave, al final de la tarde; hacia el mediodía disminuye y aumentan el reposo y el baño de tierra (Yang et al., 1992).
Macho y hembra ante el peligro
En su conducta ante el peligro, el Lady Amherst sigue el patrón de los faisanes dimórficos: si la alarma viene de lejos, los machos echan a volar enseguida mientras las hembras se agazapan durante más o menos tiempo, según el grado del peligro; Beebe lo comprobó en el dorado y en el Lady Amherst, entre otros (Beebe, 1926).
Vida social
Las referencias coinciden en una sociabilidad estacional. Fuera de la época de cría se ve al Lady Amherst solo, en pareja o en tríos; en otoño e invierno se forman grupos mayores, de 20 a 30 aves, en las zonas de alimentación productivas (BOW, 2020; Delacour, 1977; Gerrits, 1974; Madge y McGowan, 2002). Cheng (citado por Johnsgard) aclara que estos grupos son habitualmente de un macho con una o dos hembras, y que los más grandes agrupan probablemente varias familias, con hembras, jóvenes del año y algunos machos de segundo año ya con su plumaje (Johnsgard, 1986). Beebe añade que en otoño varias familias se juntan y permanecen juntas todo el invierno; los jóvenes de plumaje femenino dan entonces la impresión de una gran mayoría de hembras. Al año siguiente, los jóvenes parecen llevar vidas solitarias, y los bandos de otoño se engrosan con esas aves de segundo año, ya mermadas por los enemigos (Beebe, 1922). Carreau, por su parte, vio bandos de veinte o treinta individuos en las montañas más rocosas y desoladas, que en invierno, cuando los arroyos se helaban, bajaban a beber y volvían a subir; al desplazarse siguen los senderos en fila (Beebe, 1922).
Son capaces de soportar condiciones atmosféricas severas de frío y humedad. En los meses de invierno suelen congregarse grupos de hasta 30 individuos, pero la relación entre los machos y las hembras se ciñe a la época de reproducción, en la que los machos dominantes se acoplan con varias hembras. A continuación, estas se separan para proceder a la incubación, mientras ellos defienden su territorio con gran agresividad.
Vida social en el estudio de Kunming
Las observaciones de Gulu perfilan el año social con más precisión que las generales. En la época de cría, el macho tiene un comportamiento ritualizado de cortejo y la hembra se encarga sola de la cría; desde la puesta hasta que los jóvenes son subadultos, los pollos siguen a la madre en grupo y no se vio a machos agruparse con las hembras y las crías. A partir de octubre se juntan las hembras, los subadultos y los machos de distintas familias y forman los grupos de actividad, alimentación y dormida del invierno: en diciembre de 1986 el mayor grupo invernal observado reunía más de 20 aves, el menor tenía solo 5, y lo más frecuente eran grupos de algo más de 10 (Yang et al., 1992). Estos grupos se deshacen desde principios de marzo, cuando los machos se pican a menudo entre sí y los grupos se dispersan (Yang et al., 1992). Otros autores chinos que cita el libro hablan de pequeños grupos de 4 a 8 aves que se mueven por una misma colina durante la cría, con un macho adulto y el resto de hembras y subadultos (Yang et al., 1992).
Con las demás aves del entorno mantiene relaciones variadas. El faisán común, de laderas con hierba y bosque claro, y la perdiz de bambú de pecho castaño, del borde del bosque junto a cultivos, tienen un hábitat algo distinto y no se molestan: en las observaciones de los autores no se vio al faisán común y al Lady Amherst alimentándose ni durmiendo juntos, y la perdiz de bambú a veces come en el mismo sitio, pero a cierta distancia. Los pequeños paseriformes no compiten por la diferencia de dieta, y su actividad sirve de alarma: cuando salen espantados con gritos de alarma, el faisán permanece pegado al nido con la cabeza girando para vigilar (Yang et al., 1992). La corneja de pico grueso y la urraca azul de pico rojo roban huevos y pollos, y el busardo común ataca a adultos y jóvenes; cada vez que aparecen, el faisán da la alarma y se oculta (Yang et al., 1992).
Movimientos estacionales
Aunque soporta cualquier clima, por duro que sea, y no se desplaza en busca de abrigo, la falta de alimento le obliga a moverse. Beebe halló, en todos los lugares de Yunnan donde pudo observarla o recoger noticias fiables, una migración apreciable: las aves bajan desde las alturas a valles más protegidos o se desplazan hacia el sur a lo largo de una cresta, hasta una exposición soleada (Beebe, 1922). Cheng (citado por Johnsgard) señala que, al vivir a más altitud que el dorado, sus desplazamientos estacionales son más notables y que durante el mal tiempo bajan a las faldas de la montaña (Johnsgard, 1986); Delacour dice que la nieve intensa las empuja a veces valle abajo, pero que por lo demás no abandonan las laderas y crestas altas (Delacour, 1977). Madge y BOW anotan movimientos altitudinales apreciables (BOW, 2020; Madge y McGowan, 2002).
Territorialidad y rivalidad
Père David describió al Lady Amherst como muy celoso en libertad y declaró que ni siquiera tolera al dorado en el lugar donde se ha establecido (Beebe, 1922). En cautividad los machos son pendencieros y poco fiables, con una animosidad especial hacia los machos de dorado (Beebe, 1922); Gerrits indica que los machos son algo más agresivos que los del dorado (Gerrits, 1974). Beebe oyó llamadas de desafío en libertad, lo que se interpreta como indicio de territorialidad (Johnsgard, 1986). En cuanto a competidores, Johnsgard señala que se encuentra a una altitud similar a la del faisán común y puede tener contacto con el faisán koklass; no se conocen sus depredadores (Johnsgard, 1986).
Territorio, dormidero y relevo de machos
El estudio de Gulu es el que mejor describe el territorio del macho. El celo suele empezar a principios de marzo; entonces los machos de los grupos invernales se pican entre sí y el grupo se disgrega. De finales de marzo a principios de abril los machos van en su mayoría solos o encabezando a varias hembras. Desde principios de marzo el macho de mayor rango canta ya su llamada de cría, pero todavía sin un fuerte sentido territorial, sobre todo en días nublados y frescos, al atardecer y al amanecer tras una llovizna; desde mediados de abril comienza el apogeo, con un canto muy frecuente (algunos machos cantan casi todo el día) y territorios bastante fijos: los autores lo resumen en la fórmula local «una cumbre, un faisán de quebrada». La ocupación de territorio y el canto duran hasta mediados o finales de junio, cuando la hembra entra en la incubación y el macho en la muda (Yang et al., 1992). Para medir el territorio siguieron a los machos cantores en jornadas completas (de 6:00 a 20:00, una cada siete días), marcaron las posiciones en un mapa topográfico a escala 1:50.000 y, con 14 observaciones de día completo de 9 machos, hallaron una superficie media de 0,076 km² (7,6 ha; máximo 0,145 km², mínimo 0,041 km²) (Yang et al., 1992). El macho no deja entrar a otro en su territorio y persigue al intruso hasta matarlo; los cazadores locales lo saben, y colocan un macho domesticado como señuelo para que cante: el macho silvestre acude siempre al canto buscando pelea (Yang et al., 1992).
Cada macho territorial tiene su dormidero bastante fijo dentro del territorio, y si no hay molestias sube cada noche al mismo árbol; si lo inquietan, se esconde en otro lugar, pero al día siguiente o al tercero vuelve. Los autores presenciaron cómo un macho territorial fue ahuyentado de noche por un cazador furtivo y fue a dormir al territorio de otro macho: a la mañana siguiente el dueño del territorio cantó desde su árbol con el cuello estirado, el intruso permaneció callado y, en cuanto hubo luz suficiente para bajar del árbol, regresó volando a su territorio, desde donde cantó cinco minutos después (Yang et al., 1992). El hecho de que el macho cante con voz alta y tenga un dormidero tan fijo lo expone a los cazadores. Tras abatir al macho territorial, a los 3–6 días ya aparecía otro macho cantando en el mismo territorio, y en un caso, tras ser abatido este de nuevo a los 7 días, apareció un tercero; los autores lo interpretan como un relevo por machos flotantes, de modo que solo el macho dominante del grupo ocupa territorio, canta y tiene opción de aparearse, y el de segundo rango asciende cuando falla el primero (Yang et al., 1992).
Enemigos naturales
Johnsgard no conocía depredadores de la especie, pero el estudio de Gulu enumera varios. Entre los mamíferos, el gato leopardo y una comadreja (mustélido amarillo) atacan a adultos y jóvenes, y la ardilla de vientre rojo puede comerse los huevos; entre las rapaces, el busardo común, el cernícalo y un gavilán depredan pollos y a veces atacan a adultos; la urraca azul de pico rojo y la corneja de pico grueso aprovechan que la hembra sale del nido para robar huevos y atacan a los pollos; y entre los reptiles, la cobra real: en el estómago de una ejemplar abatida se hallaron huesos del faisán y a la entrada de su madriguera, varias plumas de la especie (Johnsgard, 1986; Yang et al., 1992). Los autores señalan, además, que las hembras anidan relativamente cerca de las sendas del monte (50–150 m), quizá porque en los lugares con mucha actividad humana y ganadera los depredadores como la comadreja y el gato montés atacan menos (Yang et al., 1992).
Densidad de la población reproductora
Para estimar la densidad, Yang y colaboradores eligieron en Gulu cuatro parcelas de bosque adecuado separadas por barrancos, cultivos y caminos. Del 5 de abril al 10 de junio de 1986 contaron los machos territoriales por su canto (siete recuentos por parcela, uno cada cinco días, de 6:30 a 10:30 y de 18:30 a 20:00), y del 15 de junio al 15 de julio censaron a las hembras con pollos imitando el piar de los polluelos para que respondieran (cinco recuentos por parcela, uno cada tres días) (Yang et al., 1992).
| Parcela y bosque | Superficie (km²) | Machos territoriales (media de 7 recuentos) | Densidad de machos (aves/km²) | Hembras con pollos (media de 5 recuentos) | Densidad de hembras (aves/km²) |
|---|---|---|---|---|---|
| I. Secundario mixto de coníferas y frondosas perennes | 1,8 | 3,9 | 2,12 | 6,2 | 3,44 |
| II. Secundario mixto de coníferas y frondosas perennes | 2,08 | 4,4 | 2,11 | 8 | 3,8 |
| III. Secundario mixto de árboles caducifolios y matorral | 1,82 | 3,7 | 2,03 | 7,6 | 4,18 |
| IV. Secundario de Pinus armandii | 4,02 | 4,7 | 1,14 | 12,2 | 3,02 |
Medias generales: 1,85 machos/km² y 3,61 hembras con pollos/km². Algunas cifras de recuentos individuales eran de lectura dudosa en el texto escaneado; las medias y densidades concuerdan entre sí (Yang et al., 1992).
La densidad de machos territoriales en la parcela de pinar de Pinus armandii fue muy significativamente menor que en las otras tres (nivel del 1 %), que no difirieron entre sí; los autores lo atribuyen a que ese bosque es más monótono y ofrece menos alimento y peores lugares para ocultar los dormideros, y a que allí los machos que cantan para ocupar territorio son más fáciles de descubrir y matar (Yang et al., 1992). Fuera de las parcelas, en el resto de la zona de observación (23,1 km², sin contar cultivos ni parcelas) se contaron 24 machos y 45 hembras con pollos, unas 3 aves/km²; los autores consideran que es una subestimación, porque se hizo un solo recuento, los cazadores locales actúan con intensidad y no se pudo contar a los machos que no cantan ni a las hembras sin pollos (Yang et al., 1992).
La voz del macho
La llamada del macho durante la época de cría es áspera y estridente, semejante a la del dorado pero de tres notas, con el acento en la primera: «cheek ker-chek»; también se emiten llamadas de una o dos notas (BOW, 2020; Madge y McGowan, 2002). Delacour y Johnsgard coinciden en que voz y exhibición se parecen mucho a las del dorado, con silbido grave y áspero y notas chasqueantes durante el cortejo (Delacour, 1977; Johnsgard, 1986). Davies describió la nota como un sonido peculiar y rasposo (Beebe, 1922). Existe un análisis sonográfico de las llamadas de la especie, publicado en chino (Madge y McGowan, 2002), y Stokes y Williams (1972) analizaron la llamada de alimentación, de tres a cuatro notas por segundo, muy cortas y con una ligera inflexión ascendente, muy parecida a la del faisán común (Johnsgard, 1986). Beebe observó que la pareja se llamaba con un cacareo bajo y suave cuando alguno había descubierto un lugar con mucha comida, y señaló que oír a la hembra llamar así a su compañero, a varios metros, es una muestra poco frecuente de altruismo en las aves (Beebe, 1922).
El repertorio de voces según los espectrogramas
El estudio de Kunming grabó y analizó con espectrógrafo el repertorio de la especie, que clasifica en ocho categorías según su relación con la conducta: canto del macho, llamada de contacto o reunión, alarma, amenaza, miedo, llamada de la madre a los pollos, ataque y alerta. Es un ave no canora, de siringe poco desarrollada y simple, de modo que emite solo llamadas de sílabas sencillas, pero ricas en significados (Yang et al., 1992).
| Llamada | Quién y cuándo | Sonido | Datos del espectrograma |
|---|---|---|---|
| Canto del macho (crow call) | Macho, en la época de cría | Ronco y estridente, de gran volumen; de una, dos o tres notas («ga», «ga ga», «ga—ga ga»); la de tres notas es la más frecuente | De tres notas: cuatro armónicos de 1,6 a 4,1 kHz y duraciones de 0,15, 0,12 y 0,12 s; de una nota, 0,2 s; de dos notas, 2,2–3,6 kHz y 0,2 y 0,15 s (Yang et al., 1992) |
| Contacto o reunión | Individuos del grupo; otoño, invierno y principios de primavera | Suave y fina; de 2 a 5 notas, casi siempre 3, parecida a «xu xu xu» con un final fricativo | Primera nota de 1,2–5,3 kHz y 0,12 s; segunda y tercera, de tono musical con ruido, de 0,2 y 0,16 s; intervalos de 0,41 y 0,32 s (Yang et al., 1992) |
| Alarma | Cualquier ave; la hembra con pollos añade un grito ronco | «xi-ya», muy aguda; la hembra suma un «gua» ronco | «gua»: de 1 a más de 10 kHz y 0,18 s; «xi–ya»: dos armónicos de 2–11,5 kHz y 0,56 s (Yang et al., 1992) |
| Miedo | Hembra sujeta | Serie continua de «wu–a» | Primera llamada de 0,25–3,3 kHz y 0,35 s; la segunda, de 0,2–5,8 kHz y 0,5 s (Yang et al., 1992) |
| Amenaza | El libro no lo precisa | Serie rápida de cinco ruidos breves («ia jia jia jia») | De 1 a 10 kHz; la llamada completa dura 0,25 s (Yang et al., 1992) |
| Llamada a los pollos | Hembra con cría | «guo guo guo», de 2 o 3 notas; más tenue y lenta que la de la gallina doméstica | Primera nota de 0,4–4,3 kHz y 0,2 s; segunda de 0,24 s; intervalo de 0,51 s (Yang et al., 1992) |
Además registraron el «zizizi» del pollo que busca a la madre, el «hu hu» al picar la mano de una persona, y el «hu—hu—hu» y un «xu» silbante del macho durante la exhibición. Los sonidos se transcriben como los da el libro, en onomatopeyas chinas (Yang et al., 1992).
El canto del macho aparece desde finales de marzo, cuando el grupo entra en la estación de cría, y alcanza su máximo entre abril y junio, sobre todo por la mañana temprano y al atardecer; los autores lo vinculan con la conducta territorial y de cortejo y suponen que está controlado por las hormonas sexuales: advierte a los otros machos y orienta a las hembras. La llamada de contacto se oye sobre todo fuera de la cría, cuando el grupo se alimenta o se reúne tras un susto, y los cazadores la imitan con un silbato para atraerlos. Ante un perro de caza o un peligro repentino, el ave da la alarma y los demás huyen en desbandada; la hembra con pollos, al descubrir a una persona o a una rapaz, da la alarma y los pollos se esconden al instante (Yang et al., 1992). La llamada de tres notas de Yang, de las que la primera es la más larga, concuerda con el «cheek ker-chek» con acento en la primera nota que recogen Madge y McGowan; solo difiere la transcripción onomatopéyica (BOW, 2020; Madge y McGowan, 2002; Yang et al., 1992).
Alimentación
Insectos, brotes de bambú, hojas, semillas y frutos.
Al igual que el faisán dorado, el faisán Lady acepta todo tipo de alimentos para faisanes: tanto piensos como semillas, bayas e incluso insectos.
En libertad
En la naturaleza se alimentan en el suelo, de grano, hojas e invertebrados, además de bambú, frambuesas y otros alimentos similares.
El dato más detallado procede de Beebe, que examinó el buche de dos machos en la frontera entre Yunnan y Birmania: el primero contenía arañas (de tres especies, nuevas para la ciencia) y tijeretas; el segundo, una masa de tijeretas de cinco o seis especies, casi todas inmaduras y propias de pedregales, varias arañas y pequeños escarabajos, quince brotes de bambú y varios trozos de fronda de helecho (Beebe, 1922). Bajo las piedras y la corteza, el propio Beebe recogió cerca de cuarenta especies de tijeretas, muchas nuevas para la ciencia (Beebe, 1922). Los brotes de bambú parecen ser un alimento preferido (BOW, 2020), hasta el punto de que el nombre chino seng-ky significa «gallina de los brotes» (Beebe, 1922; Johnsgard, 1986). En nueve aves recogidas en Sichuan y Yunnan, Cheng y colaboradores hallaron además grano, frutos secos, semillas y gravilla (Johnsgard, 1986).
Según Cheng (1963), cuando busca alimento escarba entre los guijarros y la grava al pie de los bambúes sombríos y puede vadear aguas poco profundas, dando la vuelta a los cantos para buscar invertebrados (Johnsgard, 1986). Beebe describe la escena: la pareja, muy atenta, volteaba piedras mayores que un huevo con vigorosos arañazos, buscaba insectos entre la arena húmeda y permaneció diez minutos sin salir del pequeño promontorio de guijarros; vadeaban las aguas someras y la larga cola del macho arrastraba por el agua (Beebe, 1922). En las zonas de alimentación productivas, a finales de otoño y en invierno, se congrega a veces en grupos de hasta 20 o 30 aves (BOW, 2020). Los polluelos se han visto comer frutos de Rubus, Coriaria sinica y Vaccinium sprengelii (BOW, 2020).
La dieta en las series chinas de análisis de buches
Varios autores chinos han analizado el contenido del buche y del estómago de aves abatidas o capturadas, con resultados que coinciden en lo esencial: la dieta es sobre todo vegetal (Yang et al., 1992).
| Serie | Aves y lugar | Alimento vegetal | Alimento animal |
|---|---|---|---|
| Zheng Zuoxin et al. (1963, 1978) | 8 buches de Huidong (Sichuan), abril–mayo | Más del 50 % de cultivos agrícolas | — |
| Yang et al. (1981) | 18 aves del oeste y suroeste de Guizhou; 14 solo con alimento vegetal | 97,01 % (cultivos, 27,59 %) | 2,99 % (en las 4 aves restantes) |
| Yang et al. (1986) | 20 aves recogidas todo el año en el oeste de Yunnan y el oeste de Sichuan | 95,7 % | 4,3 % |
| Yang et al. (1992) | 51 buches y estómagos recogidos en varios años en Yunnan y Sichuan (meses 1, 4, 5, 6 y 8–12) | 91,7 % | 8,3 % (8,2 % en el resumen en inglés del libro) |
Los porcentajes son por peso. El pueblo da a la especie el nombre de «gallo de brotes de bambú» (笋鸡) por su afición a los brotes (Yang et al., 1992).
La dieta cambia con las estaciones. En primavera come sobre todo brotes tiernos, tallos, hojas y flores de plantas y helechos; en verano busca bayas de cerezo de monte (Prunus), de Coriaria, de Vaccinium sprengelii y de Rubus; y en otoño e invierno, sobre todo frutos de Dichotomanthes tristaniaecarpa (牛筋条) y de Cornus capitata y frutos secos de varias fagáceas (Yang et al., 1992). La tabla de especies del libro, que enumera unos cuarenta taxones, incluye también Fragaria, Photinia, Pyrus pashia, Rosa longicuspis, Debregeasia edulis, Vaccinium bracteatum, Viburnum, bellotas de Cyclobalanopsis y Quercus acutissima, semillas de Pinus armandii y de Litsea, hojas y semillas de gramíneas, Artemisia, Plantago, trigo y maíz cultivados, setas, helechos y musgos (Yang et al., 1992). Entre los animales, los autores anotan hormigas (con sus huevos), larvas de lepidópteros, escarabajos, elatéridos, moscas, saltamontes, grillos y termitas (Yang et al., 1992). Los nombres científicos de las plantas, que el libro da en latín, están muy alterados en el texto escaneado, y se han dado aquí solo los que se identifican con seguridad razonable.
La técnica de alimentación es de dos tipos: picotear en el suelo los frutos maduros caídos, los tallos, las hojas y los invertebrados, o volar a una rama y picotear los frutos y hojas de su extremo. Las bayas, las semillas pequeñas, los brotes y las hojas se tragan directamente; los frutos secos grandes, como las bellotas, se golpean verticalmente con el pico contra el suelo para quitarles la cáscara y se tragan después de partir la almendra en varios trozos (Yang et al., 1992). Los lugares de alimentación no suelen ser fijos, salvo en verano y otoño, cuando fructifican el cerezo de monte, la Coriaria y el Cornus y maduran las bellotas: entonces el ave puede comer varios días seguidos bajo el mismo árbol, con una dieta muy uniforme. En el examen de estómagos se halló un buche con solo frutos de Dichotomanthes o frutos secos, con un peso neto de hasta 55 g (Yang et al., 1992). A veces va también a las tierras de cultivo a comer trigo, maíz y otros cultivos (Yang et al., 1992). La estampa que cuenta Elliot a partir de los misioneros de Ta-tsien-lou es de otro tipo: según los nativos, al ver un puñado de maíz o de arroz en una ladera, el ave sospecha una trampa y no se acerca, sino que barre con la larga cola parte del grano para comerlo sin peligro (Elliot, 1872).
En cautividad
En pajarera acepta la dieta habitual de los faisanes: el criterio de Howman es el de una dieta estándar de faisán (Howman, 1979; Howman, 1996), y Père David ya observó que se acomoda a toda clase de alimentos, como la gallina doméstica (Beebe, 1922). Carreau mantuvo uno con pan y arroz, con lo que engordó mucho (Beebe, 1922). Para la alimentación de los pollos y de los adultos, las pautas actuales y los errores que conviene evitar son los mismos que para los demás faisanes ornamentales; se describen en la ficha del faisán dorado. Los criadores de Chintaguay insisten en la base de la dieta: un alimento balanceado, adaptado a cada etapa, porque en cautividad las aves solo comen lo que se les da, y desaconsejan alimentarlas únicamente con maíz o trigo (del Campo, 2006). Recomendación editorial: ofrecer, además del pienso, alimentos que recuerden los de su dieta natural —brotes tiernos o hojas, y larvas o insectos— y asegurar agua limpia y fresca.
Experimentos de alimentación en Kunming
El equipo de Kunming dedicó una parte importante de su trabajo a establecer una dieta de cautividad para la especie, con experimentos de preferencia, de consumo y de aprovechamiento de los alimentos (Yang et al., 1992). En los zoos chinos, según Zheng Zuoxin y colaboradores (1978), se daban cada día semillas de cultivos como sorgo, maíz partido, trigo y arroz en comedero (en la estación lluviosa podían esparcirse por el suelo), y cada mañana y cada tarde hortalizas, preferiblemente de hoja, con un 1 % de sal y un 2 % de harina de huesos, y alimentos animales; en la época de cría se añadían insectos (langostas, etc.) y conchas (Yang et al., 1992). Desde 1985, con las aves capturadas en los montes del oeste de Kunming, los autores emplearon granos (maíz, trigo, cacahuete y pipas de girasol), pienso expandido, «wotou» (un pan de harina de maíz cocido al vapor) y piensos mixtos comerciales para gallina; forrajes verdes (brotes de trigo, trébol, col pequeña, cucurbitáceas y zanahoria); y, como alimento animal, huevo cocido y larvas del escarabajo de la harina (Tenebrio molitor) (Yang et al., 1992).
Para ver qué preferían las aves, ofrecieron durante 105 días (del 1 de febrero al 16 de mayo de 1988), en un recinto con dos machos y tres hembras adultos, siete alimentos a la vez: maíz, cacahuete, pipas de girasol, larvas de Tenebrio, forraje verde, wotou y pienso comercial de gallina. El consumo fue del 57,84 % del maíz ofrecido, del 75,24 % de las pipas de girasol y del 96,25 % del wotou; del cacahuete, las larvas y el forraje verde se consumió el 100 %; y del pienso comercial de gallina, casi nada. Los preferidos fueron, por tanto, el cacahuete, las larvas y el verde; después, el wotou, y al final el maíz y las pipas (Yang et al., 1992). El wotou empleado llevaba, entre otros ingredientes, harina de maíz (23,40 %), harina de soja (23,40 %), harina de trigo (20 %), azúcar blanco (6,70 %) y harina de pescado (3,40 %) (las cifras del libro, obtenidas por OCR, no suman el 100 %) (Yang et al., 1992).
Un segundo experimento comparó dietas. Un grupo de un macho y dos hembras fue alimentado del 1 de febrero de 1988 al 31 de enero de 1989 solo con pienso comercial de gallina ponedora y forraje verde. Durante los doce meses el crecimiento y el desarrollo de los adultos fue bueno, sin diferencia con el grupo alimentado con la dieta de formulación propia; las dos hembras pusieron 39 huevos entre el 27 de abril y el 28 de junio (19,5 por hembra), pero la eclosión fue solo del 55,5 % y la supervivencia, del 20 %, con mucha mortalidad embrionaria a mitad de la incubación y pollos débiles. El contenido de proteína del huevo fue del 9,93 % en el grupo del pienso comercial y del 14,42 % en el de la dieta propia: los nutrientes del pienso de ponedora, concluyeron, no cubren las necesidades del faisán de Lady Amherst para producir huevos de incubar (Yang et al., 1992). Recomendación editorial: este resultado, obtenido con un solo grupo, es de 1988–1989 y de un tipo de pienso chino de la época; sirve de aviso sobre la importancia de la calidad del huevo, pero no como pauta de manejo actual.
| Etapa | Proteína (%) | Energía bruta (kJ/kg) | Fibra bruta (%) |
|---|---|---|---|
| Pollos (de 1 día a 2 meses) | 18,87–21,38 | 11.703,23–13.434,00 | 7,42 |
| Jóvenes (de 2 a 15 meses) | 17,88–18,87 | 11.123,91–11.703,23 | 7,83 |
| Período no reproductor (de agosto a abril) | 15,17 | 10.549,12 | 7,56 |
| Período reproductor (de abril a agosto) | 18,76 | 13.935,40 | 8,57 |
Proporciones nutritivas de la ración que proponen Yang y colaboradores. En el período no reproductor la ración lleva mucha menos grasa y más hidratos de carbono (el gasto principal es la muda y la acumulación de grasa contra el frío); en el reproductor, más proteína, grasa y energía. La asignación de cifras a filas es la más probable en un texto escaneado muy desordenado (Yang et al., 1992).
El consumo de alimento se midió de febrero de 1988 a enero de 1989 en 4 machos y 11 hembras adultos: 28,01 ± 1,41 g por ave y día en el período reproductor (abril–agosto) y 39,90 ± 1,65 g en el no reproductor (septiembre–marzo); en energía, 419,85 ± 26,52 kJ y 436,14 ± 22,13 kJ, sin diferencia significativa, de modo que el mayor consumo en el período no reproductor se debe a que se redujeron los alimentos de alta grasa y proteína (cacahuete, larvas) y, en invierno, a la necesidad de más alimento para combatir el frío (Yang et al., 1992). Con la fórmula que se usa en avicultura para la energía de una ponedora, calcularon para una hembra de 0,555 kg y huevos de 32,7 g una necesidad de 384,83 kJ por día, algo menos que lo ingerido realmente, y una cantidad teórica de alimento de 34,18 g diarios frente a los 28,01 g reales, lo que da una eficiencia de aproximadamente el 82 %; concluyeron que la proporción de alimentos usada era razonable y que, como las aves enjauladas se mueven poco, la energía del alimento no debe ser alta, para evitar la obesidad (Yang et al., 1992).
En un tercer ensayo, con siete pollos de la primera generación nacida en cautividad (tres de 4 semanas y cuatro de 7 semanas), compararon un pienso comercial de pollitos y una mezcla propia de maíz (69,6 %) y cacahuete (30 %). Ganaron 61,67 y 107,50 g en 28 días; la relación de eficacia proteica fue de 0,49 y 0,61, la digestibilidad verdadera de la proteína del 94 y del 93 %, el valor biológico del 61 y del 53 %, y el aprovechamiento de la energía del alimento superó el 90 % en ambos casos (91,94 y 93,83 %); los autores advierten de que, por tratarse de pocos pollos de una especie rara, es un ensayo de referencia y no cumple del todo las exigencias estadísticas (Yang et al., 1992). Para los jóvenes de 2 a 11 meses proponen una ración de maíz (5 %), cacahuete (5 %), wotou (20 %), pienso de gallina de calidad (55 %), larvas de Tenebrio (5 %) y forraje verde (10 %); a los 12 meses los machos jóvenes pueden criarse con un 80–90 % de pienso de gallina de calidad, y las hembras, casi maduras, pasar ya a la ración de la época de cría (Yang et al., 1992).
Cortejo y exhibición
Un halo blanco y negro desplegado alrededor del ojo.
El cortejo es muy similar al del faisán dorado. El macho realiza una serie de saltos mientras emite un sonoro chillido y se ayuda de la golilla, que utiliza para cubrirse la cara. Todos estos movimientos se repiten de forma continua durante la época de cría e incluso fuera de ella.
Una exhibición lateral casi idéntica a la del dorado
Johnsgard considera que los repertorios de exhibición de las dos especies son prácticamente iguales, si no idénticos (Johnsgard, 1986). El macho corre alrededor de la hembra en círculos amplios, intenta bloquearle el paso y se detiene de golpe en una postura estática, con el ojo lo más cerca posible de la cabeza de ella; la esclavina se estira por el lado más próximo a la hembra, en torno al ojo, mientras el ala cercana desciende, el cuerpo se inclina hacia ella para enseñar la espalda y el obispillo, y la cola se ladea; se oye entonces un silbido agudo (Delacour, 1977; Johnsgard, 1986). La secuencia completa se describe en la ficha del faisán dorado. En el Lady Amherst, la esclavina se proyecta hacia delante y oculta el pico y los lados de la cabeza (Madge y McGowan, 2002). Gerrits añade que la cresta se levanta, que la esclavina se extiende como un abanico y que el macho gira alrededor de la hembra extendiendo el lado que le muestra, con un silbido peculiar; la espalda se muestra de la mejor manera posible y la cola se abre en vertical (Gerrits, 1974).
Delacour describe el cortejo del género como una verdadera exhibición: el macho salta delante de la hembra, primero por un lado y luego bruscamente por el otro, emitiendo un silbido grave y áspero y notas chasqueantes, sin aleteo ruidoso (Delacour, 1977). Beebe, comparando los cortejos de los faisanes, presentó la exhibición lateral como una conducta que culmina, en su forma más compleja, en la del Lady Amherst y la del faisán de cola blanca (Beebe, 1926).
Lo que distingue su cortejo del del dorado
Una diferencia concreta: mientras en el dorado el cortejo alimentario (tidbitting) se ha visto rara vez, en el Lady Amherst Stokes y Williams (1972) lo registraron con una grabación sonográfica de la llamada de alimentación (Johnsgard, 1986). La esclavina del Lady Amherst, más larga, estrecha y de punta redondeada, no se alinea en anillos concéntricos tan perfectos como la del dorado cuando se extiende (Beebe, 1922). En conjunto, la exhibición tiene una estructura similar, pero un aspecto visual distinto: un halo blanco y negro, en lugar del abanico naranja y negro del dorado (Beebe, 1922; Delacour, 1977).
Estación del cortejo
En el centro de Yunnan, los machos exhiben en pequeños claros de bosque de coníferas y de bosque perennifolio secundario desde mediados de marzo (BOW, 2020; Madge y McGowan, 2002). La guía original señala que estos movimientos se repiten de forma continua durante la época de cría e incluso fuera de ella. La cría empieza, según Johnsgard, hacia principios de abril y se prolonga durante mayo y junio (Johnsgard, 1986).
Sistema de apareamiento
El sistema de apareamiento no está claro: se han visto machos con una hembra, con dos y, más raramente, con más (BOW, 2020; Madge y McGowan, 2002). Beebe observó un macho emparejado con una hembra, y dos veces un macho con dos hembras, que consideró una excepción (Beebe, 1922; Johnsgard, 1986). En cautividad el Lady Amherst es poligínico, y Rutgers y Norris aconsejaban tres o cuatro hembras por macho (Johnsgard, 1986); la guía original lo describe también como polígamo.
El cortejo en libertad y en cautividad según el estudio de Kunming
Yang y colaboradores observaron el cortejo tanto en libertad como en cautividad, y su descripción añade detalles a la general. En el campo, el cortejo y la cópula se hacen sobre todo en el suelo, en claros poco frecuentados de la parte media y alta de las laderas, de madrugada y al atardecer. El macho gira sin cesar alrededor de la hembra; la carúncula rosa verdosa bajo el ojo se congestiona y se hincha; la esclavina se despliega en abanico circular y el macho extiende a ratos, al máximo, hacia delante y abajo, la parte que da a la hembra; las alas caen y el cuerpo se inclina hacia ella mostrando el obispillo amarillo y rojo, y la cola se abre en abanico por ese lado; recorre arcos circulares o semicirculares y emite con el pico abierto un «hu—hu—hu», que mantiene de uno a unos segundos, y, cuando la persigue, un «xi» suave y agudo, parecido a un silbido. Si la hembra se desplaza, el macho salta en arco para adelantarse y repite la figura. De vez en cuando pica la cabeza de la hembra; si esta se agacha, salta sobre su dorso y le agarra con el pico las plumas de la coronilla, ladea la cola para que las cloacas coincidan y se completa la cópula. La exhibición dura entre 7 y 45 minutos, y es, como en el dorado, de tipo lateral típico (Yang et al., 1992). Green-Armytage la resume en una frase: los dos Chrysolophus hacen una exhibición lateral mucho más modesta que la del pavo real, con solo el abanico de la esclavina y la cabeza ladeada hacia el objeto de su deseo, y la usan también como aviso, con un siseo audible, ante los machos rivales (Green-Armytage, 2002). Elliot, mucho antes, ya había señalado que el macho del género arrastra la esclavina sobre su cara por el lado que da a la hembra, y que el Lady Amherst, una especie rara, tiene un apéndice de ese tipo muy grande (Elliot, 1872).
En cautividad, los autores describen dos grados de celo. En el celo superficial, el macho canta, se le hinchan las carúnculas de la cara, abre la esclavina, pasea con prisa y se muestra cerca de la hembra, pero sin perseguirla con intensidad y durante poco tiempo; en el celo profundo hay danzas intensas de exhibición, persecución y cópula, de larga duración. En la exhibición lateral el ala del lado de la hembra cuelga y el hombro opuesto se levanta ligeramente; las plumas azul turquesa de la espalda alta y de los hombros y las blancas del dorso bajo, mezcladas con doradas y naranja rojizo, quedan expuestas; el macho corre en arco o en círculo a unos 40–50 cm de la hembra, arrastrando la cola blanca de rayas oblicuas negras, con los flecos naranja rojizo de las supracaudales ondeando al ritmo del paso. En la exhibición frontal, menos frecuente, la esclavina se despliega en abanico hacia delante, cubre la cara desnuda y la base del pico y deja solo los ojos para vigilar a la hembra; si esta se gira para huir, el macho pasa de inmediato a la forma de perfil, y al acercarse a su cabeza se detiene en seco, con una pata adelante y otra atrás y el dorso inclinado hacia ella, mientras emite un «hu-hu» muy rítmico (Yang et al., 1992). La hembra, cuando aún no está en celo, evita al macho con todas sus fuerzas, y a menudo aprovecha un descuido para esconderse en la vegetación, de donde el macho la saca para seguir; el cortejo puede repetirse así hasta unos 50 minutos. Cuando el cortejo llega al clímax la hembra deja de huir, camina despacio delante del macho y este, con la cabeza alta, la sigue de cerca, le pisa la cola, le presiona el obispillo con el pecho y le agarra las plumas de la nuca con el pico, a veces durante 15–20 minutos, hasta que la hembra se agacha e inmoviliza. La cópula dura de 2 a 3 segundos: el macho resbala a menudo, y entonces la hembra abre ligeramente las alas y las deja caer para que él suba de nuevo; tras ella, el macho desciende y la hembra se levanta, bate las alas y corre a esconderse (Yang et al., 1992).
Los comportamientos de la época de cría, en cautividad, siguen un calendario preciso. Según las observaciones de cinco grupos reproductores (seis machos y dieciséis hembras adultos), los machos empiezan a cantar a finales de febrero o principios de marzo; las primeras exhibiciones y cópulas se ven a mediados de marzo, el máximo llega en abril–mayo y se desvanece en junio–julio. Un macho puede cantar seguido más de 200 veces, sobre todo al amanecer y al atardecer; antes de la puesta, a veces la hembra sigue de cerca al macho con la cola ligeramente abierta, sacudiéndola arriba y abajo, y emite un suave «di didi» (Yang et al., 1992). Midieron la frecuencia del celo durante la jornada (de 6:00 a 20:00) en tres machos y tres momentos de la temporada:
| Momento de la cría | Celo superficial (veces/día) | Celo profundo (veces/día) | Duración media del celo profundo (min) |
|---|---|---|---|
| Principios de abril | 3 ± 1,09 | 0,66 ± 0,66 | 14,5 ± 14,5 |
| Mediados de mayo | 7,11 ± 1,66 | 2,88 ± 0,61 | 59,44 ± 15,96 |
| Finales de junio | 0,83 ± 0,48 | ya no ocurre | — |
En todos los períodos el celo, superficial y profundo, es más frecuente de 6:00 a 7:00; las cópulas con éxito se producen sobre todo entre las 6:00 y las 7:00 y entre las 19:00 y las 20:00 (Yang et al., 1992).
La frecuencia de ambos tipos de celo difiere significativamente entre la mitad y el final de la temporada, y el celo profundo muestra, además, diferencias significativas entre individuos (Yang et al., 1992). Corder añade un dato de manejo: algunas especies, como el dorado y el Lady Amherst, parecen necesitar una sola cópula para fecundar todos los huevos de la hembra, a diferencia de otras, como el monal, que necesitan fecundar cada huevo; de ahí que, ante un macho que se coma los huevos, se pueda retirar al macho una vez empezada la puesta (Corder).
Reproducción en la naturaleza
Lo poco que se sabe del nido, la puesta y la crianza en libertad.
El faisán Lady es polígamo. Sus huevos son de color blanco y la puesta comienza a mediados de abril. La hembra pone entre 12 y 15 huevos (45 × 34 mm), que se incuban durante 24 a 25 días.
Calendario anual
El calendario es orientativo: procede de poblaciones y fuentes distintas y no hay un ciclo anual publicado para toda el área.
El nido
Hay muy pocas descripciones. En Yunnan, el nido es una depresión redonda y poco profunda, apenas forrada de hojas muertas, situada bajo matorrales o ramas secas (BOW, 2020; Madge y McGowan, 2002). Beebe cita una puesta de siete huevos del sur de Sichuan hallada en una ligera hondonada del suelo entre el matorral de bambú (Beebe, 1922). Johnsgard, por su parte, recoge solo dos puestas silvestres, probablemente incompletas (de cuatro y siete huevos), ambas halladas en bosque denso y puestas al abrigo de un arbusto (Johnsgard, 1986).
Puesta y huevos
Los huevos son de un color entre beige y crema, algo más ricos en cautividad, y no tienen manchas (Beebe, 1922; BOW, 2020; Delacour, 1977; Gerrits, 1974). Beebe describe los de la puesta de siete como de un blanco cremoso pálido, de unos 45 × 36 mm de media (Beebe, 1922). Delacour da 46–53 × 34–37 mm (Delacour, 1977); Johnsgard, 46 × 35 mm y 31,1 g de peso fresco (Johnsgard, 1986); BOW, unos 49,5 × 35,5 mm fuera del área nativa (BOW, 2020). El texto original de la guía habla de huevos blancos de 45 × 34 mm.
| Fuente | Huevos por puesta | Observaciones |
|---|---|---|
| Guía original (2007) | 12–15 | Huevos blancos de 45 × 34 mm; incubación de 24 a 25 días |
| Beebe (1922) | 7 (la puesta silvestre que cita) | Nido en hondonada entre bambú (Beebe, 1922) |
| Gerrits (1974) | 5–12 en aves jóvenes; bastantes más en hembras de más de un año | Incubación de 23 días (Gerrits, 1974) |
| Delacour (1977) | 6–12 | Incubación de 23 días (Delacour, 1977) |
| Howman (1979 y 1996) | 6–12 | Incubación de 22 días (Howman, 1979; Howman, 1996) |
| Johnsgard (1986) | 6–12 en cautividad (hembras de dos años o más); dos puestas silvestres de 4 y 7 | Incubación de 22–23 días, más a menudo 22 (Johnsgard, 1986) |
| Madge y McGowan (2002) | 6–7 | Incubación de 24 días en cautividad (Madge y McGowan, 2002) |
| Birds of the World (2020) | 6–7 en el área nativa (cuatro nidos con seis, uno con siete); 6–12 fuera de ella | Incubación de 24 días en cautividad (BOW, 2020) |
| Chintaguay (2006) | 8–12 en la naturaleza; 20–50 por temporada en criadero | Incubación de 23–25 días (del Campo, 2006) |
| Hernández (2014), capítulo de la especie | 12–15 | Huevos blancos de 45 × 34 mm; incubación de 24 a 25 días (Hernández García, 2014) |
| Hernández (2014), ficha técnica de incubación | 6–7 | Incubación de 22–23 días; puesta desde principios de abril (hemisferio norte) o principios de octubre (sur); madurez sexual a los 2 años (Hernández García, 2014) |
La puesta de 12–15 huevos de la guía original es superior a las cifras publicadas para la naturaleza.
Incubación y crianza de los pollos
La incubación corre a cargo de la hembra sola, que también cuida a los pollos sin ayuda; el macho no interviene en la defensa del nido ni en el cuidado de los pollos (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002). Beebe indica que la incubación dura de 23 a 24 días y que el cuidado y el régimen de los pollos no difieren del dorado (Beebe, 1922). Johnsgard recoge datos de crecimiento del zoo de San Diego: siete pollos recién nacidos pesaron de media 24,1 g, 149 g a los 30 días y, los cinco que se midieron a los 40 días, 207 g (Johnsgard, 1986). En cuanto a la madurez, las hembras suelen poner ya en su primer año, mientras que los machos no alcanzan su plumaje completo hasta el segundo, aunque pueden mostrar actividad sexual al año de edad con un éxito reproductor limitado (Johnsgard, 1986).
Nidos y puesta: lo observado en Kunming y en otras localidades
Yang y colaboradores hallaron y siguieron seis nidos en Gulu. Todos estaban en el suelo, en una depresión poco profunda, circular u oval, forrada con pocas hojas secas recogidas en el sitio y algunas plumas de la hembra; cinco se hallaban en bosque mixto de coníferas y frondosas con fagáceas, Pinus yunnanensis y Keteleeria, y uno en bosque caducifolio de árboles y arbustos con Alnus nepalensis, Hypericum, Cornus capitata y helechos. Dos nidos estaban ocultos bajo ramas secas de un árbol talado y cuatro, en matorral denso; todos eran muy difíciles de ver, con una sola entrada y salida, entre 1.950 y 2.400 m de altitud. De los seis, solo uno estaba lejos de caminos de monte; los otros cinco se hallaron a 50–150 m de las sendas del bosque, algo que los autores relacionan con que los depredadores atacan menos donde hay actividad humana y ganadera. La coloración protectora de la hembra favorece la incubación (Yang et al., 1992). En el trabajo de Yang y colaboradores de 1981, los seis nidos estaban también en el suelo, en la parte media y alta de la ladera, bajo ramas secas y hojas caídas de árboles talados, en una mata de avellano y en una hendidura de una roca grande, y los cinco que se midieron tenían, por término medio, 9,2 cm de altura, 7,5 cm de profundidad y un diámetro exterior de unos 25 × 29 cm (Yang et al., 1992).
Los huevos que describen son blanco crema o amarillo ante pálido, lisos y sin manchas; de 28 huevos recogidos en 1981, el 72 % era de color pardo amarillento claro, y el color se oscurece con los días de incubación (Yang et al., 1992). El tamaño de la puesta completa observada fue de 6–7 huevos; según los lugareños, el mínimo que han visto es de 5 y el máximo de 9, un intervalo que coincide con el de los nidos de Yang y colaboradores de 1981 (una puesta de 9, una de 8, dos de 6 y dos de 5) (Yang et al., 1992). Observaron, además, que la hembra pone un huevo cada dos días, mientras que en el estudio de 1981 se había escrito que pone uno al día, a veces con un día de salto, y que tarda entre 7 y 12 días en completar la puesta (Yang et al., 1992). El primer huevo con cáscara dura a punto de ponerse se halló en el oviducto de una hembra cazada el 18 de abril, y la puesta se prolonga hasta julio; cada hembra adulta pone una sola vez por año. Entre las depredaciones registradas, una hembra fue abatida el 4 de junio y su nido destruido, y en otro nido los huevos fueron robados y comidos el 6 y el 7 de junio (Yang et al., 1992).
La incubación observada de principio a fin
Los autores siguieron desde un puesto de observación oculto el nido n.º 5, hallado el 23 de mayo de 1987 con cuatro huevos; la puesta completa fue de seis, y la hembra empezó a incubar al poner el último, lo que confirma que inicia la incubación con el último huevo (Yang et al., 1992). La incubación corre íntegramente a cargo de la hembra, que incuba de día y de noche; no se vio al macho cerca del nido: el más próximo al nido n.º 4 cantaba y se movía a más de 500 m, y el más cercano al n.º 5, a más de 200 m, y ninguna de las cinco veces que la hembra del nido n.º 4 se asustó y dio la alarma acudió un macho. Esto contradice lo que habían escrito Yang y colaboradores en 1981, que decían que el macho se mueve a 10–50 m del nido y acude cantando si la hembra se asusta (Yang et al., 1992). La hembra tiene un fuerte apego al nido: ante voces o fotografías cercanas permanecía inmóvil, y solo cuando el fotógrafo se acercaba a menos de 1 m salía de pronto con un grito de alarma y volvía a incubar tras 35–70 minutos (Yang et al., 1992). Sale a comer sobre todo al atardecer, entre las 17:00 y las 20:00, y la duración de cada salida depende de la abundancia de alimento cerca del nido: 59–76 minutos en el nido n.º 4, pobre en alimento, y solo 13–29 minutos en el n.º 5, con un gran rodal de Coriaria a 50–100 m, de cuyos frutos volvía con el pico teñido de púrpura; con mal tiempo no sale, y el día siguiente al comienzo de la incubación y el día antes de la eclosión tampoco. Al salir y al volver es muy cuidadosa y vigila varios minutos desde la boca del nido (Yang et al., 1992). En el nido, la hembra voltea los huevos con el pico, cambia de postura y de orientación varias veces al día y se arregla las plumas, salvo cuando llueve; en la fase temprana arroja hacia atrás hojas y hierbas secas (Yang et al., 1992).
El huevo pierde agua durante la incubación: seis huevos con un peso medio inicial de 29,8 g pesaban 27,8 g el día 11, 26,3 g el día 16 y 24,8 g el día 21, lo que equivale a pérdidas acumuladas del 6,7, el 11,5 y el 16,5 % que da el libro. El día 22 de incubación, a las 19:04, tres huevos mostraban ya pequeñas grietas triangulares y se oía el piar del pollo dentro; desde ese día la hembra voltea más a menudo los huevos y emite la llamada de reunión de los pollos. El día 24, a las 8:13, se vieron los dos primeros pollos asomar bajo el ala de la hembra; a las 9:27 los seis habían salido del huevo, y a las 13:50 la hembra los sacó del nido (Yang et al., 1992).
| Fuente | Incubación (días) | Circunstancias |
|---|---|---|
| Yang et al. (1981) | 21 | Observada en el campo; temperatura del huevo: cara superior 40,3 °C, inferior 37,3 °C |
| Yang et al. (1992) | 24 (eclosión completa al día 24; primeras grietas al día 22) | Nido n.º 5 de Gulu, 1987 |
| Yang et al. (1992) | 23 | Cautividad: una nidada de 8 huevos, incubada 17 días por la hembra y 6 más por una gallina doméstica |
| Johnsgard (1986), recogido por Yang et al. | 22–23, con mayor frecuencia 22 | En cautividad |
Los autores comentan que la incubación observada en cautividad es dos días más o un día menos que en el campo (Johnsgard, 1986; Yang et al., 1992).
Los pollos en libertad
Una vez seco el plumón, el pollo recién nacido se mueve alrededor del nido picoteando tierra y hojas secas, en períodos de 2 a 5 minutos, y vuelve a refugiarse bajo el vientre de la madre; tras un tiempo en el nido, los pollos salen guiados por ella en busca de comida y no regresan. Son alertas y ágiles y se esconden bien: al ver a una persona o al oír la alarma de la madre corren a ocultarse entre el matorral, las hojas secas o las grietas de rocas o del suelo. La madre los protege con intensidad: cuando una persona imita el piar de los pollos, emite el «guo guo guo» y acude; si se atrapa a un pollo, se planta con las alas caídas y la cola extremadamente desplegada y disputa su presa, en contraste con su cautela habitual (Yang et al., 1992). Durante la cría lleva a los pollos por el borde del bosque cerca de los cultivos, donde hay más comida y matorral denso; mientras no vuelan, no sube a los árboles de noche, sino que los cobija bajo el vientre y duerme oculta en el matorral o bajo ramas secas (Yang et al., 1992). Se alimentan sobre todo de frutos de Rubus, Coriaria y Vaccinium sprengelii, bayas muy azucaradas, y a veces de insectos; la madre rompe el fruto con el pico y el pollo lo come, hasta que crece y lo picotea entero; hacia el mes de edad el pollo ya puede volar a 1–2 m de altura y sigue a la madre a los árboles a comer bayas, y ante el peligro se esconde en un árbol o se deja planear ladera abajo (Yang et al., 1992). La caza de las madres imitando el piar de los pollitos, que practican los montañeses, condena a los pollos a morir y es, según los autores, una de las causas de la fuerte disminución reciente de la población local (Yang et al., 1992).
Cría en cautividad
Sencilla y agradecida, con un asunto de fondo: mantener la pureza.
La reproducción de este faisán no presenta serias dificultades.
Se reproduce bastante bien, siempre que se evite la consanguinidad de los reproductores. La fertilidad de los machos no es muy elevada, pero tampoco suele ser baja, y los pollos, una vez nacen, se crían perfectamente. Durante su fase de crecimiento necesitan un aporte vitamínico y, una vez adultos, conviene cuidar la higiene de los aviarios. Para disfrutar de su precioso plumaje es conveniente mantenerlos en aviarios amplios.
Instalaciones y carácter
El Lady Amherst se adapta a pajareras pequeñas; Howman recomienda 9,3 m² (100 pies cuadrados) o más, igual que para el dorado, y considera a ambos igual de rústicos (Howman, 1979; Howman, 1996). Père David lo describió como un ave fuerte que no se inmuta con el frío ni la nieve y que se adapta a todo tipo de alimentos como la gallina doméstica; criada joven, se cría con facilidad en cautividad (Beebe, 1922). Sin embargo, Carreau advirtió de un rasgo de carácter importante: el ave es extremadamente salvaje, y un ejemplar mantenido en un establo cubierto de paja se escondía tan bien que más de quince días creyó que estaba muerto. Recomendaba que la pajarera ofreciera algún lugar donde, ante el menor ruido, el ave pudiera esconderse, y plantar arbustos para ello; también aconsejó no exponerla demasiado al calor del sol (Beebe, 1922).
Los pollos son algo más delicados que los del dorado y los machos algo más agresivos, pero por lo general es un ave ideal de pajarera (Delacour, 1977; Gerrits, 1974). Beebe señala que los machos son pendencieros y poco fiables, con una animosidad especial hacia los machos de dorado (Beebe, 1922). Varios machos pueden convivir si no hay hembras a la vista (Delacour, 1977; Gerrits, 1974). Los criadores de Chintaguay incluyen al Lady entre las especies ornamentales recomendables para empezar, tras el dorado, y señalan que sus machos alcanzan el plumaje adulto hacia el año y cuatro meses aproximadamente, aunque con buen manejo pueden reproducirse el primer año (del Campo, 2006); Beebe, en 1922, lo situaba al frente de la lista de especies que un aficionado podía abordar tras haber adquirido experiencia con dorados y plateados (Beebe, 1922).
Recintos y equipamiento: lo que recomiendan Delacour, Corder y el estudio de Kunming
Delacour califica a los dos Chrysolophus de especies muy adecuadas para pajarera: pequeñas, increíblemente bellas, rústicas, mansas y fáciles de mantener y de criar, ya bien aclimatadas; quien empiece con faisanes debería comenzar con una de ellas o con ambas; se pueden mantener varias hembras con un macho, y crían normalmente al segundo año, aunque en cautividad a menudo ya al primero (Delacour, 1978). Para las especies pequeñas, como el dorado y el Lady Amherst, bastan recintos que den doce por seis pies por ave (unos 6,7 m² por ave), y es aconsejable dividir cada recinto en dos compartimentos con una puerta de alambre para poder separar al macho de la hembra en caso de peleas, de ingestión de huevos o de enfermedad, sin tener que atrapar a las aves (Delacour, 1978). La World Pheasant Association recomienda, para un grupo reproductor, un recinto de no menos de 9 m², y los autores chinos, tras cuatro años de ensayos, consideran adecuada una superficie de 8–10 m² por grupo con unos 2 m de altura (Yang et al., 1992).
El libro de Kunming describe con detalle un recinto tipo. Puede ser de doble hilera (con un pasillo central, para cría a gran escala), de una sola hilera, circular o cuadrado; en los de hilera, la relación de longitud a anchura ronda 5:1 o 4:1, porque la distancia permite a las aves correr y evitar las molestias sin chocar contra la malla. Cada recinto debe tener un patio de ejercicio y un refugio; en este, una caja-nido de tablas de unos 100 × 60 × 60 cm (o de ladrillo), y entre un tercio y la mitad de la parte superior del recinto se cubre con teja de plástico contra el viento y la lluvia, con una percha a 50 cm del techo. Los laterales son de malla metálica, con un zócalo de ladrillo o piedra de 50–100 cm de altura, que impide que zorros, gatos monteses y comadrejas caven galerías y evita que las aves de recintos contiguos se vean y se picoteen; si no hay muro, la malla debe enterrarse 30 cm (Yang et al., 1992). El suelo del patio es mejor arenoso, blando y bien drenado, con un foso de arena fina para el baño de arena, que además proporciona gastrolitos, y con troncos o piedras para afilar el pico; en el centro y en los bordes se plantan arbustos y uno o dos árboles de hoja ancha, porque la especie descansa y se arregla las plumas en los árboles y se alimenta en parte de sus hojas. Los autores chinos plantaron arbustos silvestres de la zona de Kunming (rododendros, Myrsine, Myrica) y, como árboles, ciruelos y manzanos. Comederos y bebederos se ponen colgados, en un punto resguardado de la lluvia y de posición fija; recomiendan los de plástico de tipo avícola, que se rellenan solos, y advierten de que el césped plantado en un recinto pequeño con muchas aves lo pisan y picotean en pocas semanas (Yang et al., 1992).
Un detalle práctico es el del anillado: la ficha de Corder, para el Lady Amherst, da un tamaño de anilla de 10 mm (12 mm para el dorado), mientras que el libro del autor del sitio da la misma cifra, 10–12, para los dos Chrysolophus y no indica la unidad (Corder; Hernández García, 2014). Corder pide además no crear híbridos como el cruce de dorado y Lady Amherst, porque las aves de conservación son demasiado valiosas para contaminarlas así, y recuerda que casi tres cuartas partes de las aves del libro genealógico internacional del faisán de Edwards tuvieron que excluirse a causa de una única hibridación accidental (Corder).
Captura de reproductores silvestres y adaptación
En 1992, la cría de la especie acababa de comenzar en China, y el grupo del Instituto de Zoología de Kunming procedía de aves capturadas en montañas cercanas. El libro describe los métodos que usaban los montañeses de Yunnan: el reclamo con un macho criado a mano como señuelo y lazos corredizos de crin, solo de abril a junio, porque se aprovecha la defensa del territorio; los lazos colgantes en puntos de actividad frecuente (comederos, bebederos y lugares de baño), utilizables todo el año y que dejan al ave viva, colgada de una pata; y la batida invernal con un silbato de imitación, que hace responder al bando y permite acorralarlo hacia un cercado con lazos, con el riesgo de que las aves mueran asfixiadas si no se las libera pronto (Yang et al., 1992). Los autores señalan que la captura puede hacerse en cualquier estación, pero con mejor resultado en otoño-invierno, porque entonces forman bandos y, tras un tiempo de adaptación, ponen en la siguiente primavera, mientras que las capturadas en primavera están estresadas y por lo general no ponen ese año; y que en verano, cuando cría los pollos, no debe capturarse, para proteger el aumento de la población silvestre (Yang et al., 1992). Si el trayecto es de un día, las aves se llevan en cajas de cartón o tablero de fibra con un ave por compartimento, o en fundas de tela abiertas por los dos extremos; al llegar, se examina si tienen alimento en el buche y, si no, se las alimenta a la fuerza con maíz, cacahuete, trigo o frutos silvestres, con suavidad y hasta saciarlas a la mitad, porque las aves recién capturadas rechazan la comida por estrés y pueden morir de hambre. Se las mete en recintos con abundantes ramas para esconderse, con varios bebederos y el alimento esparcido por el suelo, y se minimizan las entradas del cuidador; las aves con la piel de la cabeza abierta por golpes se capturan, se desinfectan y se suturan con catgut, para que no queden calvas ni se deforme el pico (Yang et al., 1992). Tras unas dos semanas de aislamiento, con buen estado, se hace cuarentena e inmunización, y solo entonces se forman los grupos reproductores en proporción de 1 macho por 2 o 3 hembras (Yang et al., 1992).
Parejas, tríos y madurez
Beebe indica que el Lady Amherst, como el faisán de Reeves y el plateado, se aparea al menos con dos hembras, y que, en las especies que aceptan varias, la proporción de huevos fértiles depende de los que pone la favorita; y aconseja, como norma general, tener al menos dos hembras para que el macho no acose a una sola hasta matarla (Beebe, 1922). Rutgers y Norris (1970) aconsejaban tres o cuatro hembras por macho (Johnsgard, 1986). Aunque hasta los dos años no adquieren todo su llamativo plumaje, son fértiles mucho antes. Gerrits desaconseja, no obstante, criar con aves de un año, porque los mejores resultados se obtienen con aves de más edad (Gerrits, 1974). Los criadores de Chintaguay dan la madurez sexual a los dos años, con algunos casos de cría en el primero, aunque con baja fertilidad (del Campo, 2006).
El período previo a la cría va, según los autores chinos, de octubre a marzo: las aves ya han terminado la muda, no ha empezado el cortejo y la función sexual está en reposo, de modo que no se afecta la reproducción por manejarlas. Dos machos adultos juntos en un recinto se pelean con violencia en la época de cría y se picotean hasta sangrar; por eso cada grupo debe tener un macho adulto con dos o tres hembras adultas. Como reproductores eligen machos de dos años o más, sanos, de plumaje espléndido, activos y con un canto sonoro y frecuente, y hembras de un año o más, sanas y con un grado de engorde normal; en los adultos de la F1 criados en cautividad, la selección de las parejas se hace cada otoño o invierno según el archivo de cada grupo, para evitar la consanguinidad (Yang et al., 1992). Para la puesta preparan nidos: un cobertizo de ramas y hojas en el borde del recinto, con el suelo cubierto de agujas de pino, hojas secas y paja de arroz, y un cobertizo de fieltro asfáltico de 1,5 m de largo y 1 m de ancho y de alto con paja; se forman con la paja nidos poco profundos en cuenco (17 × 17 cm y 5 cm de profundidad, y 20 × 20 cm y 6 cm), donde pusieron por turno cuatro hembras, y en el período siguiente (1988–1989) cajas de madera de 70 × 50 × 30 cm con paja, que aceptaron todas las hembras (Yang et al., 1992). Los machos jóvenes, hacia los 10 meses de edad (la primavera siguiente), muestran conductas sexuales inmaduras y se pelean y se arrancan las plumas, a veces hasta sangrar; los autores aplican la despicadura (recorte de la punta del pico) como medida eficaz contra las peleas y el picoteo de plumas, también en las hembras, y a los 15–18 meses los machos están sexualmente maduros (Yang et al., 1992). Recomendación editorial: la despicadura es una práctica de granja intensiva que hoy se discute por razones de bienestar y que no se recomienda aquí; la alternativa es separar al ave pendenciera, como el propio libro sugiere para los machos que siguen peleando.
Puesta y recogida de huevos
Howman da como fecha de los primeros huevos principios de abril y 22 días de incubación (Howman, 1996). El criadero Chintaguay da, en su tabla de postura, principios de abril en el hemisferio norte y principios de octubre en el sur, y en la ficha de la especie fines de marzo y fines de septiembre, respectivamente (del Campo, 2006). Si se retiran los huevos para incubarlos con madres sustitutas o en incubadora, la hembra puede poner de 20 a 50 por temporada, frente a los 8–12 que pondría e incubaría en libertad (del Campo, 2006). Gerrits indica que las hembras jóvenes ponen de cinco a doce huevos y las de más de un año bastantes más (Gerrits, 1974).
La puesta en cautividad en Kunming (1987–1989)
La puesta en cautividad que cuentan los autores chinos es mucho mayor que la silvestre. Observaron la puesta de 19 hembras en siete grupos durante tres temporadas: suele empezar en abril–mayo y acabar en junio–julio, y en algunos grupos se prolongó hasta agosto; ponen en general un huevo cada dos días, algunas hembras cada dos o tres días y alguna un huevo diario. Antes de poner, la hembra se inquieta una o dos horas, corre cerca del nido, entra y sale repetidamente, y por fin entra de cabeza, picotea las hierbas del borde y las arroja hacia atrás 10–20 veces antes de acuclillarse; el huevo sale en 2–3 minutos, y la mayoría de las hembras, al salir, va directamente al bebedero y al baño de arena (Yang et al., 1992). En total hubo 33 puestas anuales de hembras, con 545 huevos, una media de 16,52 huevos por hembra y temporada (mínimo 9, máximo 37), claramente superior a la silvestre, lo que a juicio de los autores indica que en cautividad la tasa de reproducción puede aumentar de forma gradual (Yang et al., 1992).
| Grupo y año | Machos : hembras | Huevos puestos | Huevos por hembra |
|---|---|---|---|
| A, 1987 | 1 : 5 | 63 | 12,6 |
| A, 1988 | 1 : 5 | 48 | 9,6 |
| A, 1989 | 1 : 3 | 79 | 26,3 |
| B, 1988 | 1 : 3 | 26 | 8,66 |
| C, 1988 | 1 : 2 | 39 | 19,5 |
| C, 1989 | 1 : 2 | 43 | 21,5 |
| D, 1988 | 1 : 3 | 34 | 11,33 |
| D, 1989 | 1 : 3 | 38 | 12,66 |
| E, 1989 | 1 : 2 | 73 | 36,50 |
| F, 1989 | 1 : 2 | 39 | 19,50 |
Selección de las filas legibles de la tabla de puesta de los autores (en el escaneo, las columnas de fertilidad y eclosión por grupo no son fiables). Entre las 19 hembras, la puesta varió mucho de una a otra y, en el mismo grupo, de un año a otro; no apareció una correlación clara con la edad (Yang et al., 1992).
Los autores comentan que la inestabilidad de la puesta en cautividad tiene causas complejas: además de la alimentación, la molestia humana y los factores fisiológicos de cada ave influyen estrechamente en el número de huevos por temporada (Yang et al., 1992). Los huevos son como los silvestres, pero algo mayores y más pesados (en 358 medidos, 32,74 g de media); de los puestos, el 92,84 % se llevó a incubar, el resto se perdió porque algunos machos y hembras se comen los huevos, o porque algunas hembras ponen en suelo duro y se rompen. En esos tres años, solo el 41,9 % de los huevos incubados resultó fértil, porque en cautividad el ave muestra una clara selección de pareja, y a veces no hay cópula o fracasa por molestias; y de los fértiles eclosionó el 64,62 %, ya que en la incubación artificial un descontrol de temperatura y humedad o un mal desarrollo propio del huevo producen a menudo una mortalidad embrionaria a mitad del desarrollo. Cómo elevar la fertilidad y la eclosión, concluyen, sigue siendo un tema pendiente (Yang et al., 1992).
Incubación y crianza
Gerrits da 23 días de incubación y subraya que la devoción de la madre por sus pollos es muy grande; los pollos son pequeños pero fuertes y se crían sin dificultad, con la madre, con una gallina nodriza o en incubadora (Delacour, 1977; Gerrits, 1974). Los criadores de Chintaguay dan para esta especie un período de incubación de 23 a 25 días (del Campo, 2006). Para el resto —conservación de los huevos, temperatura y humedad de la incubadora, nacedora, crianza con calor y alimentación de los pollos— rigen los parámetros generales de los faisanes de criadero, descritos con detalle en la ficha del faisán dorado, con la salvedad de que la duración de la incubación aquí es algo mayor (del Campo, 2006). Como orientación, los criadores de Chintaguay recomiendan una temperatura de incubación de 37,5 °C, de 55 a 60 % de humedad relativa hasta tres días antes de la eclosión y de 65 a 70 % durante los tres últimos días (del Campo, 2006).
Tres métodos de incubación comparados en Kunming
Durante tres temporadas (1987–1989) los autores chinos compararon la incubación natural en cautividad, la incubación por gallina doméstica y la incubación en incubadora eléctrica sencilla (Yang et al., 1992). En la incubación natural, un macho y cinco hembras se mantuvieron en una jaula de malla de 6 × 6 × 4 m, con un cobertizo de ramas a modo de matorral y el suelo cubierto de paja y hojas; las hembras hicieron cuatro nidos en el suelo, el primer huevo se puso el 8 de abril y el último el 21 de junio, y las cinco hembras pusieron 63 huevos (12,6 por hembra). Mientras incubaban, mostraban gran apego al nido y no temían a la gente: si se las molestaba con la mano o con una rama, atacaban con el pico y silbaban sin dejar el nido; la temperatura media de incubación fue de 36,57 ± 0,128 °C (mínima 36 °C y máxima 37,5 °C). De las tres nidadas incubadas por la hembra, dos no estaban fecundadas; la tercera, de ocho huevos, tenía buen desarrollo, pero al llegar el día 17 la hembra, al oír a dos pollitos recién eclosionados que se habían metido en el recinto, corrió al nido a criarlos, por lo que se pasaron los huevos a una gallina doméstica, y a los 6 días eclosionaron (23 días en total). Observaron además a una hembra que trasladó todos sus huevos, de un nido a otro situado a 50 cm, sorteando una rama de unos 8 cm de grosor (Yang et al., 1992). La cría de los pollos por la hembra es parecida a la de la gallina: se mueve por el recinto con un suave «guo-guo» y se agacha cada poco rato, unos 10 minutos, para que los pollos se calienten bajo sus alas o su vientre (Yang et al., 1992).
La incubación por gallina doméstica clueca es, según los autores, uno de los métodos más exitosos. Hay que elegir gallinas sanas, mansas, de gran apego al nido y sin vicios; antes de incubar se lavan la gallina, el nido y la paja con benzalconio al 0,5 % o con permanganato potásico al 0,5 %, se prueba con dos huevos de gallina y, tras uno o dos días de firmeza, se sustituyen por los huevos del faisán, desinfectados en una solución de permanganato potásico al 0,5 % a 40 °C durante 2–3 minutos; una gallina puede incubar de 15 a 20 huevos de faisán. El nido se coloca en una habitación tranquila, ventilada y con luz tenue; durante los primeros 7 días los huevos se ventilan una vez cada dos días durante 20–30 minutos, y después una o dos veces al día, volteándolos a mano. Las temperaturas medidas fueron de 38,5–41,6 °C en el huevo en contacto con el vientre de la gallina, 36–40,5 °C bajo el huevo y 36,5–37 °C en el borde del nido (Yang et al., 1992). Se hizo ovoscopia tres veces: a los 5–7 días se distinguen los fértiles (red de vasos sanguíneos y disco germinal, que gira con el huevo) de los infértiles (rosados y transparentes); a los 14 días los vasos alantoideos se cierran en el extremo pequeño y la cámara de aire aumenta; y a los 20–21 días el embrión vivo es oscuro y opaco, el huevo está caliente y se ven vasos en el borde de la cámara, mientras que el muerto es turbio, sin vasos y frío. A los 21–22 días se puede además sumergir el huevo en agua tibia a 40 °C: los huevos con embrión normal oscilan de lado a lado, los retrasados oscilan débilmente y los de embrión muerto no se mueven; el baño, de 2–3 minutos, afloja la cáscara y acelera la eclosión (Yang et al., 1992).
La mortalidad embrionaria con gallina, en las tres temporadas, fue del 4,67 % en la fase temprana, del 8,95 % a mitad, del 5,06 % en la tardía y del 1,56 % tras picar la cáscara; la alta de mitad de incubación puede relacionarse con el estado nutricional del huevo y con el almacenamiento. El pollo se oye piar a los 22–23 días; desde que empieza a picar hasta que sale pasan en general de 8 a 15 horas (de 20 a 36 horas en los débiles, a los que hay que ayudar). El huevo perdió de media el 19,93 % de su peso por pérdida de agua hasta la eclosión al día 23, y su temperatura subió, en la cara superior, de 38 a 41,5 °C, y en la inferior, de 36 a 40,5 °C (Yang et al., 1992). En la incubadora eléctrica de control automático se desinfecta antes con formol y permanganato y los huevos se sumergen 3 minutos en permanganato al 0,5 %; se incuba a 38–38,5 °C al principio, algo menos hacia el final por el calor del embrión, con una humedad del 65–70 % por evaporación de una bandeja de agua; demasiada humedad da embriones mal desarrollados y pollos de abdomen hinchado, y demasiado poca hace que las plumas del pollito se peguen a la cáscara y muera asfixiado. Se voltean los huevos cada una o dos horas, con una ventilación de 5–10 minutos tras cada volteo, y con más frecuencia al final (Yang et al., 1992).
Cría de pollos y jóvenes según el estudio de Kunming
Los pollitos nacidos en cautividad (22 medidos) pesaron al nacer 21,04 ± 0,36 g y su temperatura corporal fue de 38,83 ± 0,24 °C; son más pequeños que los de gallina y llevan un diente de huevo amarillo claro en la punta del pico (Yang et al., 1992). Con gallina, los pollitos permanecen 8–12 horas bajo el vientre de la madre adoptiva, hasta que se secan y se retrae el ombligo; después pasan a una sala de cría limpia, seca y ventilada, con el suelo cubierto de arena fina y comederos y bebederos estrechos para que no se mojen ni pisen la comida. Si hay varias gallinas, se divide la sala en compartimentos de no menos de 1,5 m² y 1 m de altura, durante un mes. Los autores advierten de que las gallinas domésticas suelen tener pullorosis y coccidiosis, que contagian a los pollitos (Yang et al., 1992). En caja de cría (una caja de 100 × 50 × 37 cm, con resistencias en tres paredes, una bombilla de 60 W y un regulador de temperatura), los pollos de 1 a 7 días se crían dentro y después salen y entran a un patio; la temperatura óptima fue de 32 °C de 1 a 3 días de edad, 30 °C de 4 a 7, 28 °C de 8 a 10 y 25 °C de 13 a 20 días, y hacia los 21 días, con el plumaje completo, pueden vivir a temperatura ambiente normal. Si la temperatura es baja, los pollitos se apiñan y pierden el apetito; si es alta, están inquietos, beben más y se inducen enfermedades respiratorias (Yang et al., 1992). Cada método tiene sus ventajas: la caja de cría es apta para lotes grandes con mejores condiciones higiénicas y sin contagios de la gallina, pero exige cuidar la temperatura y más mano de obra; la gallina es apta para lotes pequeños y regula ella misma la temperatura (Yang et al., 1992).
Los pollitos de menos de una semana, que digieren y absorben poco y tienen poco apetito, se alimentan con yema de huevo cocida triturada y larvas vivas de Tenebrio, cinco o seis veces entre las 8:00 y las 22:00 y en pequeñas cantidades; a partir de los 7 días se dan 2–3 comidas diarias, con cantidades crecientes, y en el agua se añaden tabletas de calcio (una por ave y día a la semana de edad y 2–3 a los 40–60 días); a los 60 días se pasa al alimento de jóvenes (Yang et al., 1992). De 7 a 30 días, las raciones del libro llevan sobre todo pienso de pollitos, wotou, yema de huevo y larvas, y de 30 a 60 días más pienso y menos huevo; la asignación de los porcentajes por alimento es de lectura dudosa en el escaneo. Para los jóvenes, la densidad adecuada es de 2–3 aves por m² de recinto, con más perchas, comederos y bebederos; en invierno duermen apiñados para calentarse; y como en libertad forman bandos, pueden criarse en grupo (Yang et al., 1992). Tras dos meses, los machos mudan al plumaje de joven; los jóvenes son más resistentes a los cambios de clima y a las enfermedades que los pollitos (Yang et al., 1992).


Ficha técnica de incubación y anilla
El apéndice práctico del segundo volumen del libro del autor del sitio reúne una ficha técnica de incubación de los faisanes. Para el Lady Amherst da 6–7 huevos, 22–23 días de incubación, puesta desde principios de abril (hemisferio norte) o principios de octubre (hemisferio sur) y madurez sexual a los dos años; el dorado, con el que se compara, tiene 5–12 huevos, 22 días y puesta desde finales de marzo o fines de septiembre (Hernández García, 2014). La misma obra da un diámetro de anilla de 10–12 para los dos Chrysolophus (el libro no indica la unidad) (Hernández García, 2014).
| Especie | Huevos | Incubación (días) | Época de puesta (N / S) | Madurez sexual (años) | Anilla |
|---|---|---|---|---|---|
| Lady Amherst | 6–7 | 22–23 | Principios de abril / principios de octubre | 2 | 10–12 |
| Dorado (comparación) | 5–12 | 22 | Finales de marzo / fines de septiembre | 2 | 10–12 |
Ficha técnica de incubación y diámetros de anilla del libro del autor del sitio (Hernández García, 2014).
Si la incubación falla
El mismo apéndice resume las causas más probables de los problemas de eclosión, válidas para cualquier faisán (Hernández García, 2014):
| Síntoma | Causas probables |
|---|---|
| Muchos huevos claros | Huevos almacenados demasiado tiempo o en malas condiciones; mala temperatura (sobrecalentamiento en los primeros días) |
| Muchos embriones muertos | Temperatura demasiado alta o demasiado baja al principio, volteo incorrecto, aireación defectuosa |
| Pollos formados y muertos antes de picar | Mala humidificación (también en la nacedora), temperaturas inadecuadas, aireación defectuosa |
| Huevos picados con el pollo muerto en la cáscara | Humedad insuficiente en incubadora o nacedora, desinfección incorrecta, aireación defectuosa, temperatura baja |
| Nacimientos tardíos | Temperatura muy baja en la incubadora; almacenamiento muy prolongado de los huevos |
| Pollos viscosos | Temperatura muy baja, o temperatura y humedad muy elevadas; aireación defectuosa |
| Patas y dedos torcidos | Temperatura elevada en la nacedora, humedad muy baja en la incubadora, volteo incorrecto |
| Pollos débiles, pequeños o blandos | Débiles: temperatura elevada. Pequeños: huevos pequeños o humedad muy baja. Blandos: temperatura muy alta o muy baja, o aireación insuficiente |
| Pollos poco emplumados | Temperatura muy alta en la incubadora, humedad baja, ventilación demasiado fuerte en la nacedora |
Enfermedades frecuentes y reproducción asistida
El libro del autor incluye un capítulo sobre las enfermedades aviarias comunes del faisán, redactado con la colaboración del veterinario Antonio García Montané y basado en un atlas de enfermedades de las aves de corral; no son específicas del Lady Amherst, pero afectan a cualquier faisán de criadero (Hernández García, 2014). Las dominantes son parasitarias, a las que se suma el síndrome de enteritis transmisible, ligado a la cría intensiva, la sobredensidad y la mala higiene (Hernández García, 2014).
| Enfermedad | Rasgos principales según el libro |
|---|---|
| Coccidiosis | La enfermedad parasitaria más corriente, a cualquier edad y especialmente grave en el pollito; se transmite por heces sobre la comida o el agua. En la forma cecal, tras 5–7 días de incubación aparece diarrea amarillo verdosa, luego marrón y a veces sangrienta, con abatimiento y sed; la muerte llega a los 2–4 días. Los ooquistes resisten 15–20 meses en el suelo; la prevención es la higiene y evitar la humedad |
| Tricomoniasis | Frecuente junto a la coccidiosis; grave solo en el pollito débil; el agua sucia de los bebederos es la principal fuente de contagio; puede causar hasta un 40 % de mortalidad |
| Capilariosis, teniasis, ascaridiasis | Parasitosis digestivas que causan adelgazamiento y diarrea y hacen a las aves más sensibles a otras infecciones; la prevención pasa por la higiene del terreno y las desparasitaciones |
| Singamosis (gusano rojo o del pico abierto) | Gusanos que obstruyen la tráquea del joven; favorecida por la sobrepoblación y los suelos húmedos y ricos en materia orgánica |
| Enteritis transmisible | Proliferación anormal de un colibacilo intestinal, con postración y diarrea marrón maloliente; aparece al encadenar lotes sin vacío sanitario; requiere antibiograma |
| Salmonelosis | Muy resistente en el medio; puede matar del 20 al 80 % de los afectados; diarrea abundante amarillo verdosa y maloliente |
| Pasteurelosis (cólera aviar) | Muerte súbita; en la forma sobreaguda mata a la mitad en 4–5 horas; se desarrolla a favor del estrés |
| Micoplasmosis | Cojera por inflamación articular o problemas respiratorios crónicos; influye en la puesta, los nacimientos y la calidad de los jóvenes |
Recomendación editorial: ante cualquier sospecha, consultar a un veterinario; el libro insiste en la higiene, no hacinar, rotar los parques de los pollos, usar bebederos limpios, manipular lo menos posible a las aves y no vacunar a los reproductores en época de cría (Hernández García, 2014).
Otra técnica que describe el apéndice es la inseminación artificial, útil en especies que producen muchos huevos infértiles, arriesgada y reservada a personas con experiencia; el libro la ilustra con el tragopán de Cabot, que sin ella probablemente no estaría en las colecciones, y no la menciona para el Lady Amherst, cuya fertilidad masculina la propia guía describe como ni muy elevada ni baja (Hernández García, 2014).
Enfermedades de la especie en el estudio de Kunming
Yang y colaboradores vigilaron en la especie diez enfermedades entre mayo de 1988 y enero de 1989, con 12 sueros y 16 huevos de aves de cautividad y un total de 125 pruebas. Concluyen que las principales son la enfermedad de Newcastle, la pullorosis, la tuberculosis aviar, la coccidiosis y los piojos de las plumas; el cólera aviar fue esporádico y la clamidiosis no mostró daños evidentes (Yang et al., 1992).
| Enfermedad | Resultado en el Lady Amherst | Observaciones del libro |
|---|---|---|
| Newcastle | 3 de 16 muestras positivas (18,75 %), con título de inhibición de la hemaglutinación de 1:256 | El 80 % de las aves carecía de anticuerpos: ante una cepa virulenta habría graves pérdidas; recomiendan vacunar con un programa y con vigilancia inmunológica |
| Pullorosis (Salmonella pullorum) | 1 de 16 (6,25 %) | Se transmite por el huevo y reduce la supervivencia de los pollos y de la F1 |
| Clamidiosis aviar | 1 de 7 (14,28 %), sin síntomas | Virulencia muy variable según la cepa |
| Tuberculosis aviar | 1 caso en la autopsia | Adelgazamiento y anemia progresiva; en las reproductoras de una granja de Kunming, la prueba intradérmica dio un 1,4 % |
| Coccidiosis | 3 de 12 (25 %), infección leve | La más grave en cautividad: pollos de menos de 2 meses mueren por ella |
| Gripe aviar A, micoplasmosis, viruela aviar, hepatitis por cuerpos de inclusión, enfermedad de Marek | Todas negativas (con pocas muestras) | Los autores señalan que la muestra es pequeña y hay que profundizar |
En las aves silvestres recogidas en el campo hallaron dos piojos masticadores de las plumas del cuello, lumbares y abdomen, con una tasa de parasitismo relativamente alta en primavera y verano, y entre los endoparásitos, sobre todo el nematodo Ascaridia de la gallina en el intestino delgado (hallado en el 90 % de las aves silvestres disecadas, con 253 nematodos en una sola) y, en un ave, dos tenias; ninguno de estos dos endoparásitos se halló en la F1 ni en la F2 criadas en cautividad (Yang et al., 1992). La coccidiosis es la enfermedad parasitaria más grave de la cría: ataca sobre todo a los pollos de 15 a 45 días, con una mortalidad del 50 % o más (más del 80 % con tratamiento inadecuado); los ooquistes viven de 4 a 9 meses en el suelo y de 15 a 18 meses en patios con sombra de árboles, de manera que el uso continuado de recintos viejos y de gallinas como incubadoras favorece las epidemias; la época de mayor riesgo es de mayo a agosto, que coincide con la cría de los pollitos (Yang et al., 1992). El programa de prevención del libro propone, a modo de ejemplo, yema de huevo con arroz humedecido y furazolidona para los pollitos de 3–5 días, vacuna de Newcastle (con cepas atenuadas, no de virulencia media) a los 10 días, un anticoccidiano (clopidol o zoalene) a las 4 semanas, vacuna inactivada de Newcastle o vacuna contra la viruela a las 10–12 semanas, y vacuna contra el cólera aviar a las 14–18 semanas, con desparasitación periódica, baños de arena con azufre y desinfección de recintos y utensilios (Yang et al., 1992). Recomendación editorial: los fármacos, dosis y vacunas dependen de la legislación de cada país y de cada momento, y deben ser pautados por un veterinario; los datos del libro son de 1988–1992 y se citan solo como descripción de la experiencia de Kunming.
Longevidad en cautividad
Beebe recoge que, de 87 Lady Amherst mantenidos en el zoo de Londres, uno alcanzó la edad máxima de ocho años y un mes, y la vida media fue de veinte meses; las condiciones eran las de recintos reducidos y sin hierba (Beebe, 1922). Una hembra que adoptó plumaje de macho a los siete años seguía viva a los once años y cuatro meses (Beebe, 1922).
Pureza de las líneas
En cautividad es un faisán frecuente en las colecciones, aunque no abundan los ejemplares puros, debido a la falta de importación de nuevos ejemplares y a algún cruce anterior. Los ejemplares puros se distinguen, entre otras razones, por el blanco limpio del pecho, así como por su larga cola y el collar plateado.
Es el asunto más importante de la cría de esta especie. Como los primeros machos importados no iban acompañados de hembras suficientes, se cruzaron con hembras de dorado y de ahí salieron muchos supuestos Lady Amherst impuros; la práctica de cruzar de nuevo la descendencia con Lady Amherst («cruce de retorno») ha generado un gran número de híbridos, y hoy un Lady puro es relativamente raro (Delacour, 1977; Gerrits, 1974). Delacour y Gerrits enumeran los indicios de impureza: rojo en los flancos y los muslos, restos de moteado en la cola, puntas de las supracaudales escarlata en lugar de naranja y una cresta demasiado grande. Un macho de resto perfecto con toda la corona escarlata es también signo de sangre de dorado, y no debe usarse para criar (Delacour, 1977; Gerrits, 1974). En las hembras, la ausencia del rico tono rojizo en cabeza, garganta y pecho es otro signo de impureza; Delacour anota además que las hembras adultas recogidas en el norte de Yunnan figuran con el iris amarillo pálido en las etiquetas, mientras que casi todas las vivas que vio lo tenían pardo (Delacour, 1977). El libro del autor del sitio documenta hasta qué punto el problema es serio: en el proyecto belga «Dorados 5000», que identificó líneas puras de dorado con ayuda de pieles de museo (París, Berlín y Tring), análisis de ADN con la WPA y cuatro tablas publicadas en 2006 para distinguir ejemplares puros e híbridos de ambos sexos, el resultado para el Lady fue que solo un ejemplar puro se confirmó por el control europeo de ADN: un macho belga nacido de un huevo importado de China, emparejado con una hembra cedida por Michel Klat, que no crió en 2006 (Hernández García, 2014). Recomendación editorial: adquirir las aves a criadores que garanticen su origen, anotar la genealogía de cada pareja y descartar los ejemplares con cualquiera de esos rasgos.
Estado de conservación
Una especie con población de decenas de miles, de la que se sabe poco.
Población estable y extendida. Región: China.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
Está catalogado como de preocupación menor por la UICN, ya que la población, tanto en la naturaleza como en cautividad, es bastante numerosa, debido a su buena adaptación y a su facilidad para reproducirse.
Cómo ha ido cambiando la valoración
El historial de categorías de la Lista Roja de la UICN que recoge la ficha original es el siguiente.
| Año | Categoría UICN |
|---|---|
| 2016 | Preocupación menor (LC) |
| 2012 | Preocupación menor (LC) |
| 2009 | Preocupación menor (LC) |
| 2008 | Preocupación menor (LC) |
| 2004 | Preocupación menor (LC) |
| 2000 | Menor riesgo / menor preocupación (LR / lc) |
| 1994 | Menor riesgo / casi amenazado (LR / nt) |
| 1988 | Casi Amenazado (NT) |
Historial de la Lista Roja según la ficha original de esta web.
| Año | Fuente | Valoración |
|---|---|---|
| 1922 | Beebe | Por el número de aves cazadas con lazo y a tiros por los chinos, la consideraba bastante más rara que el dorado (Beebe, 1922). |
| 1986 | Johnsgard | Nada puede decirse de su estado en libertad; es muy recelosa y vive en hábitats más remotos que el dorado, por lo que se supone que su población no está en peligro obvio (Johnsgard, 1986). |
| 2000 | Fuller et al. (UICN/WPA) | Área global bastante extensa, con una población estimada en solo decenas de miles de aves; subcategoría «casi amenazada» dentro del antiguo riesgo menor (Fuller y Garson, 2000). |
| 2002 | Madge y McGowan | Población de decenas de miles; había sido considerada globalmente casi amenazada; solo se la cita de la reserva natural de Jinzhongshan (Madge y McGowan, 2002). |
| 2020 | Birds of the World | Población estimada en decenas de miles; se tiene por una especie cuyo hábitat sufre presiones y fragmentación y que se caza como alimento; anteriormente casi amenazada (BOW, 2020). |
| Sin fecha | Lista Roja de biodiversidad de China | Casi Amenazada (estudio de 2022). |
El tamaño de la población no se ha medido con precisión. Madge y McGowan, a partir de unos trabajos intensivos de campo, extrapolan una población de decenas de miles de aves; el plan de acción de 2000 y Birds of the World aportan estimas del mismo orden (BOW, 2020; Fuller y Garson, 2000; Madge y McGowan, 2002). Madge y McGowan señalan que, sorprendentemente, solo se la cita de una reserva, la de Jinzhongshan, aunque seguramente se encuentra en otras (Madge y McGowan, 2002).
La evaluación de BirdLife de 2018
La ficha de BirdLife International, leída el 3 de noviembre de 2026, confirma la categoría de preocupación menor, con la última evaluación en 2018 (ya en 2016, 2012, 2009, 2008 y 2004 era la misma; la tabla de la ficha original llega solo hasta 2016) (BirdLife, 2018). La justificación recuerda que la especie tiene un área muy extensa (una extensión de presencia de 394.000 km², sin migración) y que, aunque la tendencia parece decreciente, el descenso no se cree lo bastante rápido para acercarse a los umbrales de vulnerable (más del 30 % en diez años o tres generaciones, con una longitud generacional de 5,0 años); y que el tamaño de la población, de moderadamente pequeño a grande, no se acerca al umbral de menos de 10.000 individuos maduros con descenso continuo (BirdLife, 2018). BirdLife no da una cifra de individuos maduros: la estima es de 2009, con calidad de datos pobre, y la tendencia de «decreciente» se sospecha por la destrucción y fragmentación del hábitat y por niveles insostenibles de caza para alimento (BirdLife, 2018). Solo se han identificado dos áreas importantes para las aves y la biodiversidad con la especie, ambas en China: la reserva natural de Baima Xueshan (94,65 % protegida, evaluada en 2009) y Wuliangshan (0 % protegida, evaluada en 2012), que suman 2.537 km² y tienen una cobertura media protegida del 47,33 %; no hay plan de recuperación ni programa de seguimiento sistemático, y la especie ni está incluida en legislación internacional ni sujeta a controles internacionales de comercio ni a conservación ex situ en el sentido de BirdLife (BirdLife, 2018). Los usos que registra son el alimento humano (de subsistencia, a escala nacional) y el comercio internacional de aves de exhibición (BirdLife, 2018).
Conservación ex situ y categorías
El segundo volumen del libro del autor del sitio dedica un capítulo a la conservación. Recuerda que la cría en cautividad es un camino para conservar la especie en su hábitat, y no un fin en sí mismo, y que en Europa los programas ex situ de la EAZA tienen dos niveles: el EEP, el más intensivo, con libro genealógico, análisis demográficos y genéticos y plan de gestión, y el ESB, que se limita a recopilar datos de nacimientos, muertes y traslados de todas las instituciones que mantienen la especie (Hernández García, 2014). En los programas regionales del grupo de asesoría de galliformes de la EAZA (año 2000), el faisán Lady Amherst figura como «no recomendado», categoría que se aplica a las especies que no precisan plan ex situ, porque los ejemplares son insuficientes o inexistentes o bien son muy abundantes; el dorado tiene la misma calificación (Hernández García, 2014). Las otras categorías del libro son seguimiento de población, studbook y EEP (Hernández García, 2014).
El libro explica también las categorías de la UICN que usa: «menos preocupante» (LC o LR/lc) es la de riesgo más bajo, que incluye taxones ampliamente distribuidos, y «casi amenazada» (NT o LR/nt) la próxima a la amenaza o con posibilidad de calificarse en una categoría de mayor riesgo en un futuro próximo (Hernández García, 2014). El libro dedica además un apartado a explicar el convenio CITES (acordado en Washington el 3 de marzo de 1973 y en vigor desde el 1 de julio de 1975, con sus Apéndices I, II y III), pero no consigna ningún apéndice para el Lady Amherst (Hernández García, 2014).
- +10.000avescomo mínimo: se estiman decenas de miles
- 2paísescon presencia nativa: China y Myanmar
- 1reservaconocida con la especie: Jinzhongshan
Amenazas y protección
Pérdida y fragmentación del hábitat, caza y erosión genética de las aves de pajarera.
La amenaza principal es la pérdida y la creciente fragmentación del hábitat forestal (BOW, 2020; Madge y McGowan, 2002).
Amenazas
| Amenaza | Detalle | Fuente |
|---|---|---|
| Pérdida y fragmentación del hábitat | Fragmentación del hábitat y desarrollo económico de las zonas rurales donde vive. | Madge y McGowan; BOW; estudio de 2022 (BOW, 2020; estudio de 2022; Madge y McGowan, 2002) |
| Caza para el consumo | Se caza como alimento; la caza furtiva prolongada ha hecho descender sensiblemente la población en China. | BOW; estudio de 2022 (BOW, 2020; estudio de 2022) |
| Lazos y trampas | Los nativos de la zona la esperaban en invierno y la capturaban con lazos; solo sacaban poco de su plumaje y de su carne por la escasez de lazos. | Carreau, en Beebe (Beebe, 1922) |
| Comercio de pieles y plumas | En Rangoon se confiscó un cargamento de pieles destinado a los sombrereros de Europa en el que, entre cientos de pieles de kalij plateado, había unas pocas de Lady Amherst. | Beebe (Beebe, 1921) |
| Hibridación y deterioro de las líneas cautivas | Cruces con el faisán dorado a lo largo de generaciones han dejado pocos ejemplares puros en cautividad. | Delacour; Gerrits; Howman (Delacour, 1977; Gerrits, 1974; Howman, 1979) |
Birds of the World la considera una especie cuyo hábitat sufre presiones y fragmentación y que se caza como alimento (BOW, 2020); Madge y McGowan añaden que la principal amenaza es la pérdida de hábitat y su fragmentación creciente (Madge y McGowan, 2002). Johnsgard, en 1986, creía que su carácter muy receloso y su hábitat remoto la protegían (Johnsgard, 1986).
La presión de caza y de tala en Yunnan, según el estudio de Kunming
Los autores chinos describen una presión humana bien concreta en la zona de estudio. La tala del bosque por los lugareños se intensificó en los años anteriores al estudio y deterioraba día a día el hábitat; como el ave tiene un área de residencia bastante fija y el macho canta con voz alta en la época de cría, se descubre con facilidad, y en otoño e invierno, cuando se agrupa, se puede atraer y localizar al bando con un silbato de reclamo, de modo que es muy fácil de capturar y abatir. En la cría, la hembra protege tanto a los pollos que los montañeses la atrapan imitando su piar, y al morir la madre los pollos mueren también (Yang et al., 1992). La roturación de tierras de cultivo se extiende cada día en las zonas de población densa, y la recolección de leña y el pastoreo desplazan a las hembras de algunas parcelas; en las censadas, los machos territoriales eran muy significativamente menos abundantes en el pinar de Pinus armandii, donde cantar para ocupar territorio hace al macho más fácil de descubrir y matar (Yang et al., 1992). Por último, la compra de pieles de la Oficina de Comercio Exterior de la provincia de Yunnan entre 1954 y 1984 tuvo una tendencia a la baja que los autores expresan con una recta de regresión (Y = 20.593,19 – 702,78 t, con t en años); desde 1984 se dejó de comprar pieles de animales silvestres bajo protección nacional, lo que frenó en parte la caza indiscriminada, pero la costumbre de cazar para comer carne continúa y desperdicia muchas pieles (Yang et al., 1992).
Protección
La literatura consultada no recoge programas de conservación específicos para la especie. Madge y McGowan solo la citan en una reserva, la de Jinzhongshan, y piden más información sobre su presencia en otras áreas protegidas (Madge y McGowan, 2002). El plan de acción de la UICN y la WPA del año 2000 la sitúa en la categoría de riesgo menor «casi amenazada» y se limita a señalar el tamaño estimado de su población (Fuller y Garson, 2000). El estudio de 2022 sobre los hábitats adecuados de ambas especies de Chrysolophus advierte de que necesitan protección urgente (estudio de 2022).

Las medidas de protección que propuso el libro chino
En el momento del libro (1992), el faisán de Lady Amherst figuraba como especie de protección prioritaria de primera clase en la lista de animales silvestres de protección nacional promulgada por el Consejo de Estado de China en 1989 (Yang et al., 1992). Con los datos de su estudio, Yang y colaboradores proponen tres medidas: crear reservas naturales específicas para la especie en el centro y el oeste de Yunnan y el suroeste de Sichuan, donde las poblaciones silvestres son más abundantes y mejor conservados están los bosques; difundir en el área de distribución las técnicas de cría artificial, bajo el principio de que el aprovechamiento racional es el mejor medio de conservación, para que la población de montaña aumente sus ingresos y se despierte su conciencia de proteger voluntariamente el germoplasma silvestre; y establecer una veda de caza de marzo a septiembre de cada año, para proteger la época de reproducción y de cría (Yang et al., 1992). No se ha consultado el estado legal actual de la especie en China, y los datos de 1989 pueden haber cambiado.
Subespecies, mutaciones e híbridos
Ninguna subespecie natural; algunas mutaciones de cautividad y muchos híbridos.
No se reconoce ninguna subespecie de faisán Lady Amherst.
La especie es monotípica para todos los autores consultados (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002).
No obstante, como ocurre en muchas de las especies que llevan mucho tiempo en cautividad, siempre surgen mutaciones que los aficionados reproducen en sus aviarios.
En cautividad se dan, además, mutaciones muy diversas. Algunas de ellas se estudian a continuación:
- Faisán lady negro (Chrysolophus amherstiae mut)
- Faisán lady plata (Chrysolophus amherstiae mut)
- Faisán lady blanco (Chrysolophus amherstiae mut)
Faisán Lady negro (Chrysolophus amherstiae mut.)
Mutación generada en los Estados Unidos a partir de la selección de ejemplares oscuros.
El libro del autor del sitio coincide: de las mutaciones surgidas en cautividad, la más llamativa es la oscura, que presenta como producto de una selección de cruces de faisán Lady Amherst con faisanes dorados de garganta oscura (Hernández García, 2014).
Es la más documentada de las variedades. Según el relato de Clifton Nicholson, Jr., de Roughwood Volières (Estados Unidos), que se reproduce a continuación, el proyecto nació hace unos treinta años: la idea era transferir el gen del dorado de garganta oscura al Lady Amherst mediante cruces con dorados oscuros y volver a cruzar repetidamente con Lady Amherst puros de otras líneas, para acabar con un Lady oscuro casi puro. Los primeros cruces dieron aves de color normal, todas portadoras del gen oscuro y con un 50 % de sangre de Lady Amherst; las aves se anillaron, se llevaron registros durante más de treinta años y los híbridos que cumplieron su propósito no se vendieron ni se regalaron (Nicholson (trad.)). Hacia 1986, en el simposio de la World Pheasant Association celebrado en Tailandia, el autor vio en una colección de ese país unas aves que su propietario llamaba «faisanes de Lady Amherst de Siberia», adquiridas a un criador chino por más de diez mil dólares la pareja, y que le sorprendieron por su color nuevo; el texto conservado termina de forma abrupta (Nicholson (trad.)).


Faisán Lady plata (Chrysolophus amherstiae mut.)
Es una de las mutaciones más recientes. Se trata de ejemplares con colores intermedios, gris plateado; la hembra es muy parecida al faisán Ghigi (Chrysolophus pictus luteus).


Faisán Lady blanco (Chrysolophus amherstiae mut.)
La variedad blanca documentada en la ficha original es en realidad albina, y la narró Ricky Wharry en el boletín de la World Pheasant Association (Wharry, 2018). Tras varias temporadas con una pareja pura y sin sangre de dorado, nacieron entre más de treinta pollos normales varios pollos albinos de ojos rojos; los primeros murieron en las horas siguientes a la eclosión, y dos pudieron criarse, a mano, con dedicación. Ya adultos formaron pareja entre sí; en su primer año pusieron siete huevos, todos infértiles, y no se obtuvo segunda generación (Wharry, 2018).


Cómo distinguir a las hembras de los dos Chrysolophus
Las hembras de las dos especies se parecen mucho. La clave que sigue procede de Johnsgard y figura en el libro del autor del sitio (Hernández García, 2014; Johnsgard, 1986):
- Patas grises. Anillo del ojo azulado.amherstiae · faisán de Lady Amherst
- Patas amarillas. Anillo del ojo amarillento.pictus · faisán dorado
Híbridos
Los dos Chrysolophus se cruzan con facilidad; los híbridos de primera generación son totalmente fértiles y dan combinaciones sin fin, a menudo muy bellas pero sin interés particular según Delacour, aunque Beebe las consideraba de una belleza inusual (Beebe, 1922; Delacour, 1977; Gerrits, 1974). Beebe reproduce dos tipos generales de híbridos entre ambas especies: uno con una esclavina azul blanquecina de puntas rojas y otro con la esclavina más parecida a la del dorado (Beebe, 1922). El cruce con el dorado se ha tratado ya en detalle en la ficha del dorado, en particular la variedad de garganta oscura, que Thomas obtuvo en 1911 en la segunda generación de un cruce entre Lady Amherst y dorado (Beebe, 1922).
Dos híbridos descritos con detalle: el de Elliot (1872) y el natural de Xuyong (1964)
Elliot incluyó en su monografía, aunque había decidido no figurar híbridos, uno de macho de Lady Amherst y hembra de dorado criado en la pajarera de Stone y depositado en los jardines del Regent’s Park, en el mismo recinto que los dorados, junto al del Lady Amherst: sus marcas eran muy regulares y los colores bien repartidos, sin mezclas ni moteados, salvo en la garganta, donde pugnaban el rojo del dorado y el verde oscuro del Lady Amherst; y una barra ante rota en la parte alta del pecho, donde empieza el blanco del Lady Amherst, delataba la impureza del origen, un color que no tiene el macho de ninguna de las dos especies. Elliot vio en Amberes, en noviembre de 1871, otro híbrido igual, aunque con el ante reducido a una gran mancha a cada lado del pecho (Elliot, 1872).
El híbrido natural lo describió Deng Qixiang (1974), y Yang y colaboradores lo reproducen: un macho capturado el 19 de octubre de 1964 en Shutian, condado de Xuyong, en el sur de Sichuan, a 1.500 m, en un paisaje donde alternan bosque latifoliado de montaña (fagáceas, lauráceas, abedules y euforbiáceas, con Pinus massoniana y Cunninghamia) y tierras de cultivo, justo en la zona de contacto de las áreas de las dos especies (Yang et al., 1992). Pesaba 732 g y medía 1.045 mm de longitud total, con culmen de 22 mm, ala de 190 mm, cola de 740 mm y tarso de 98 mm; la longitud y la cola eran intermedias entre el dorado y el Lady Amherst; el peso y el tarso eran mayores que en ambos (vigor híbrido); y el culmen y el ala, más cortos que en los dos progenitores (Yang et al., 1992). Los caracteres de pluma y partes blandas se repartían así:
| Carácter | Descripción del híbrido de Xuyong | Parecido |
|---|---|---|
| Cresta filiforme | Rojo púrpura pálido; más larga y numerosa que en el Lady Amherst, algo menor que en el dorado | Intermedio |
| Esclavina | Blanca, con borde negro y banda transversal negro azulada en cada pluma; punta en arco | Lady Amherst (color) y dorado (punta) |
| Cuello inferior y región interescapular | Verde esmeralda metálico con las puntas de las plumas rodeadas de líneas negras | Lady Amherst |
| Dorso bajo | Plumas más anchas y cuadradas; base pardo negruzca; en el centro, una raya negra con naranja rojizo a cada lado | Lady Amherst (base) y dorado (naranja) |
| Supracaudales y cola | Supracaudales negras con puntos amarillo claro y la punta estrecha en rojo oscuro; timoneras centrales negras con puntos canela | Dorado |
| Garganta y cara | Lores, mentón, garganta y mejillas negruzcos claros; plumas de la garganta pardo negruzco con tinte castaño rojizo y banda roja en la punta | Lady Amherst e intermedio |
| Pecho y flancos | Banda transversal blanco amarillenta y amarillo rojiza; abdomen con base pardo claro, manchas negras y punta roja | Intermedio |
| Iris y partes blandas | Iris amarillo pálido; piel desnuda del ojo amarilla, más oscura que en el dorado; pico y patas gris córneo claro | Lady Amherst (iris), intermedio (resto) |
Resumen de la descripción de Deng Qixiang (1974) recogida por Yang y colaboradores (1992) (Yang et al., 1992).
Los autores concluyen que este individuo y la fertilidad total de los híbridos criados en cautividad prueban que el desarrollo de los caracteres de aislamiento reproductivo entre las dos especies no es del todo completo (Yang et al., 1992). Yang y colaboradores recogen además, a partir de Johnsgard (1986) y de Rutgers y Norris (1970), la fertilidad de los híbridos del dorado con otros fasiánidos: con el faisán de Wallich, estériles; con el plateado, las hembras híbridas son estériles y los machos fértiles; y con el faisán común, el verde y el de Reeves, solo algunos machos pueden reproducirse (Yang et al., 1992). Son datos del dorado, y no se aplican sin más al Lady Amherst, cuya tabla se ha dado más arriba.
Con otros géneros, Gerrits y Delacour indican que los híbridos con Phasianus, Syrmaticus y Lophura producen machos fértiles, pero hembras estériles, que a menudo muestran plumaje masculino, y que con Lophophorus y Gallus son estériles (Delacour, 1977; Gerrits, 1974). La tabla de hibridación de Johnsgard (1999) que adaptó del Campo da un panorama algo distinto para el Lady Amherst:
| Cruce con el Lady Amherst | Resultado reportado |
|---|---|
| Faisán dorado | Híbridos de ambos sexos fértiles; hibridación conocida en estado salvaje |
| Faisán común y faisán versicolor | Híbridos reportados; los machos son fértiles o a veces fértiles |
| Faisán de Reeves (venerado), faisán kalij, faisán de Swinhoe y faisán de Elliot | Híbridos reportados como estériles; hibridación reportada en cautividad |
| Tragopán de Cabot y faisán impeyan (monal del Himalaya) | Híbridos reportados como estériles; hibridación reportada en cautividad |
Tabla de hibridación de Johnsgard (1999), traducida y adaptada por del Campo (columna del Lady Amherst); no hay cruces reportados con el gallo silvestre rojo, el faisán plateado ni otras especies no citadas. Del Campo advierte de que la hibridación con el dorado no es una práctica recomendable y de que han surgido así varias «subespecies» de fantasía, la mayoría infértiles (del Campo, 2006; Johnsgard, 1999).
Cultura y curiosidades
Una condesa, un regalo de reyes y los sellos de correos.
Pocas aves deben su nombre a una historia tan personal: la de Sarah Amherst, una dama de la India colonial, y el soberano birmano que, según Leadbeater, regaló los primeros ejemplares (Beebe, 1922; Wikipedia (S. Amherst)).
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.


Una condesa naturalista
Sarah Amherst (1762–1838) fue una naturalista y botánica activa durante su estancia en la India colonial, donde impulsó la recolección y documentación de numerosas especies animales y vegetales; el árbol Amherstia nobilis lleva también su nombre. La propia especie se bautizó en honor de ella, y no de su marido, en reconocimiento a su papel real (Johnsgard, 1986; Wikipedia (S. Amherst)).
Cola cortada para el viaje
Leadbeater relató que el espléndido aspecto de los dos machos en Inglaterra se debía, en parte, a la juiciosa decisión de recortarles las larguísimas plumas de la cola a unos cinco centímetros del cuerpo antes de meterlos en las jaulas del viaje desde la India (Beebe, 1922).
Ilustraciones históricas
El apéndice del segundo volumen del libro del autor del sitio ilustra la ficha técnica con un dibujo del Lady Amherst de John Gould, tomado de The Birds of Asia, de dominio público al haber expirado su derecho de autor (Hernández García, 2014).
Un ave de provecho: carne, plumas y pieles
El libro chino de 1992 recuerda que, además de su valor ornamental, el Lady Amherst tiene una carne tierna y fina, apta para el consumo, y un plumaje tan rico que sirve de materia prima para adornos y artesanías, como las pinturas de plumas; desde antiguo los departamentos de suministro y comercialización compraron pieles de macho para exportarlas (Yang et al., 1992). Lo califica de faisán ornamental tradicional, cuenta que en 1873 una pareja llegó a costar 800 dólares, recuerda que, según Howman (1979), quizá no quedaban en cautividad ejemplares de línea pura, y ve por ello a la especie como una de las que tienen futuro en la cría de faisanes silvestres de China (Howman, 1979; Yang et al., 1992). Green-Armytage, en un libro de fotografías de faisanes, resume la historia del nombre con la versión de Campbell y el rey de Ava, y la de la muerte de las aves traídas por los Amherst en dos semanas; destaca que son resistentes y fáciles de criar y recuerda que los machos, importados en mayor número que las hembras, se cruzaron con hembras de dorado; y señala que, para restaurar la pureza, algunos criadores importan ejemplares silvestres de Extremo Oriente y mantienen aparte a dorados y Lady Amherst (Green-Armytage, 2002). Este autor sitúa el área en el Tíbet oriental, el norte de Myanmar y las partes occidentales de Sichuan y «Hunan»; las demás fuentes aquí revisadas dan Yunnan, y no Hunan (BOW, 2020; Green-Armytage, 2002; Madge y McGowan, 2002).
Más información en otras fuentes
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
- Beebe, W. (1927). Pheasant Jungles. Nueva York: G. P. Putnam's Sons (reed. World Pheasant Association, 1994).
- BirdLife International (2018). Chrysolophus amherstiae. The IUCN Red List of Threatened Species 2018: e.T22679358A131905673. doi:10.2305/IUCN.UK.2018-2.RLTS.T22679358A131905673.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
- BirdLife International (2018). Species factsheet: Lady Amherst’s Pheasant Chrysolophus amherstiae. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2018). datazone.birdlife.org. Descargada el 3 de noviembre de 2026.
- Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ): T.F.H. Publications (© 1973 y 1978).
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, 2 vols. Nueva York: edición del autor (ejemplar digitalizado de la Biblioteca Estatal y Universitaria de Gotinga; láminas de dominio público).
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas).
- Esta guía. Philip Lutley Sclater (1829–1913): el secretario de la Sociedad Zoológica, en «El gabinete de los naturalistas» (autores/sclater.php); apartado «Sclater y los faisanes» y discrepancias entre las fuentes.
- Estudio sobre la fragmentación del hábitat de Chrysolophus spp. (2022). PubMed Central, PMC9404440
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- McGowan, P. J. K. y Kirwan, G. M. (2020). Lady Amherst's Pheasant (Chrysolophus amherstiae), versión 1.0. En Birds of the World (J. del Hoyo et al., eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/laaphe1 · doi:10.2173/bow.laaphe1.01
- Nicholson, C., Jr. (Roughwood Volières). «Crear un nuevo faisán: The Dark Lady Amherst», texto traducido que se reproduce en la ficha original de esta web.
- Sclater, P. L. (1869). [Informe del secretario sobre los ingresos en la Menagerie de la Sociedad; sesión del 1 de noviembre de 1869]. Proceedings of the Zoological Society of London 1869: 468. Internet Archive, archive.org/details/per_proceedings-of-the-general-meetings-for-scient_1869_9. Leída en el texto digitalizado el 18 de noviembre de 2026.
- Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
- Swinhoe, R. (1870), comunicación leída en la sesión del 24 de febrero, y Sclater, P. L. (1870), observaciones en las sesiones del 24 de febrero y del 10 de marzo («Mr. Sclater on Amherst's Pheasant»). Proceedings of the Zoological Society of London 1870: 111–112 y 128–129. Internet Archive, archive.org/details/per_proceedings-of-the-general-meetings-for-scient_1870_10. Leídas en el texto digitalizado el 18 de noviembre de 2026.
- Wharry, R. (2018). Relato sobre los polluelos albinos de faisán Lady Amherst. WPA News, n.º 107 (World Pheasant Association).
- Wikipedia (en inglés). Lady Amherst's pheasant. en.wikipedia.org/wiki/Lady_Amherst's_pheasant
- Wikipedia (en inglés). Sarah Amherst. en.wikipedia.org/wiki/Sarah_Amherst
- Yang Lan (杨岚) et al. (1992). 中国雉类 白腹锦鸡 [Zhōngguó zhìlèi: Báifù jǐnjī; «Los fásidos de China: el faisán de Lady Amherst»; título inglés: The Chinese Phasianids: Lady Amherst’s Pheasant]. Pekín: China Forestry Publishing House (中国林业出版社), 1.ª ed., marzo de 1992. ISBN 7-5038-0812-8/S.0405. Libro en chino con resumen en inglés, del Instituto de Zoología de Kunming (Academia China de Ciencias). Se ha leído en un texto obtenido por OCR, con erratas; las cifras dudosas se señalan en el texto.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán Lady Amherst — Chrysolophus amherstiae. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/lady.php.


