Lophophorus sclateri (Jerdon, 1870)LC — Preocupación menor
Es una especie muy poco conocida, por lo que se desconoce la mayor parte de sus costumbres. Su nombre conmemora al zoólogo británico Philip Lutley Sclater.
🇪🇸 Faisán monal de Sclater o monal coliblanco🇬🇧 Sclater's monal🇫🇷 Lophophore de Sclater🇩🇪 Weißschwanz-Glanzfasan🇮🇹 Lofoforo di Sclater🇵🇹 Faisão Tragopan Sclater
El faisán monal de Sclater (Lophophorus sclateri), conocido también como monal coliblanco, es una especie de la familia Phasianidae y del género Lophophorus, propia del Himalaya oriental. Actualmente se clasifica como de preocupación menor, aunque en el pasado se consideró vulnerable. Esta guía describe dos subespecies, aunque se admite una tercera. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013; Madge y McGowan, 2002)
Es uno de los tres monales del mundo y el más escurridizo. El macho, de 63 a 68 cm de longitud, tiene la cabeza verde con la piel del ojo azul, el cuello cobrizo, el manto con reflejos de púrpura, verde y cobre, el pecho negro y, sobre todo, una amplia zona blanca que va de la mitad de la espalda a la cola; esta es blanca con una banda castaña y casi no tiene cresta, de ahí el nombre inglés de «monal sin copete» (Beebe, 1918; BOW, 2020; Delacour, 1977; Madge y McGowan, 2002). La hembra, parda y blanquecina, de dibujo fino y sin cresta, se parece a la del monal del Himalaya, pero tiene un moteado más apretado y un dorso bajo grisáceo bien visible cuando levanta el vuelo (Johnsgard, 1986; Madge y McGowan, 2002).
Vive en el Himalaya oriental: el noreste de la India (Arunachal Pradesh), el sureste del Tíbet, el norte de Myanmar y el oeste de Yunnan (BOW, 2020; Fuller y Garson, 2000; Madge y McGowan, 2002). Habita prados alpinos y subalpinos de matorral de rododendros y laderas rocosas muy empinadas, normalmente entre 3.000 y 4.200 m, y en otoño e invierno desciende a bosques de coníferas situados a 2.000–3.000 m (BOW, 2020; Hernández García, 2013). Es la especie menos conocida de su género: el único ejemplar cautivo del que hay noticia llegó a Londres en 1870, el primer occidental que dice haberlo visto en libertad fue William Beebe, en el invierno de 1910, y los primeros nidos activos documentados se localizaron en Gaoligong (Yunnan) en 2015 y 2016 (Beebe, 1918; Bibi et al., 2024; Delacour, 1977).
Su población, repartida en un área pequeña y de acceso muy difícil, sería inferior a 10.000 aves y declina de forma moderada, sobre todo por la caza para alimento y por la tala; se considera estable en China y en descenso sospechado en el resto del área (BOW, 2020; Madge y McGowan, 2002). Fuller y colaboradores (2000) y Madge y McGowan (2002) la clasificaban como vulnerable; la UICN la clasifica hoy como de preocupación menor, y figura en el Apéndice I de CITES (BOW, 2020; Fuller y Garson, 2000; Madge y McGowan, 2002; Wikipedia).
La taxonomía no está cerrada. Además de la subespecie nominal (sclateri) y de la oriental (orientalis, Davison, 1974), un tercer taxón de cola totalmente blanca, descubierto en Arunachal Pradesh a finales de los años noventa y descrito como arunachalensis en 2004, se admite en algunas listas y se trata con reservas en otras (Fuller y Garson, 2000; Madge y McGowan, 2002; WII, 2007; Wikipedia).
63–68cm
longitud total del macho
3.000–4.200m
banda de altitud más habitual (2.000–3.000 m en invierno)
ES faisán monal de Sclater, monal coliblanco, monal sin copete · EN Sclater’s monal, crestless monal · FR lophophore de Sclater · DE Weißschwanz-Glanzfasan (también Stahlhuhn) · IT lofoforo di Sclater · PT faisão tragopan Sclater (rótulo de la ficha original) (Beebe, 1918; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002)
Prados alpinos y subalpinos con matorral de rododendros, laderas rocosas escarpadas y, en invierno, bosques de coníferas (Abies) con sotobosque de bambú, de 2.000 a 4.200 m (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
2–3 huevos en los nidos estudiados en libertad; 3–5 según la cifra que se cita de ordinario; incubación de 28 días según Birds of the World y 32 días seguidos en un nido vigilado, a cargo de la hembra (Bibi et al., 2024; BOW, 2020; Madge y McGowan, 2002)
Un monal descrito a partir de un ave viva traída por tribus de las montañas de Assam, con un nombre para un secretario de la Sociedad Zoológica de Londres.
El monal de Sclater es una de las tres especies del género Lophophorus, el grupo de grandes faisanes metálicos de las altas montañas del Himalaya y de China occidental (Delacour, 1977; Hernández García, 2013; Madge y McGowan, 2002). Lo describió el doctor Thomas C. Jerdon en 1870 a partir de un macho vivo llevado desde las colinas Mishmi, y su nombre rinde homenaje al ornitólogo Philip Lutley Sclater (Beebe, 1918; Delacour, 1977).
Posición taxonómica
Rango
Taxón
Reino
Animalia
Filo
Chordata
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Género
Lophophorus Temminck, 1813
Especie
Lophophorus sclateri Jerdon, 1870
Subespecies
L. s. sclateri Jerdon, 1870 · L. s. orientalis Davison, 1974 · L. s. arunachalensis Kumar y Singh, 2004 (admitida por algunas listas)
El género Lophophorus lo creó Temminck en 1813, con el monal del Himalaya como especie tipo (Delacour, 1977). Elliot fundó en 1871 un subgénero, Chalcophasis, para el monal de Sclater, y Hachisuka propuso en 1939 otro, Metallophasis, para el monal chino; Delacour los considera meros sinónimos de Lophophorus, porque las tres especies están tan claramente emparentadas que no hay motivo para separarlas en géneros (Beebe, 1918; Delacour, 1977).
El epíteto específico, sclateri, honra a Philip Lutley Sclater (1829–1913), a quien Beebe llama «el eminente ornitólogo inglés» (Beebe, 1918; Wikipedia). Sclater nació en Hampshire, estudió en Winchester y en Oxford, ejerció como abogado y fue durante cuarenta y dos años, de 1860 a 1902, secretario de la Sociedad Zoológica de Londres; fundó y dirigió la revista The Ibis y en 1858 propuso la división del mundo en seis regiones zoogeográficas que aún se usan (Wikipedia (P. Sclater)). Entre los muchos taxones que llevan su nombre figura este monal (Wikipedia; Wikipedia (P. Sclater)). El libro del autor del sitio escribe por error «Philip Sclater Lutley», con los apellidos invertidos, aunque la ficha de esta web da el nombre correcto (Hernández García, 2013).
En inglés lo llamó Beebe Sclater’s impeyan pheasant, y hoy se impone Sclater’s monal (Beebe, 1918; Madge y McGowan, 2002). Delacour cuenta que los primeros monales cautivos fueron los de Lady Impey, en la India, pero que murieron durante el viaje y nunca llegaron vivos a Inglaterra (Delacour, 1977). «Monal» procede de un nombre vernáculo del Himalaya central (monaul, moonal), que Jerdon ya empleaba en 1870 (Beebe, 1918; Johnsgard, 1986).
Jobling confirma la dedicatoria: sclateri honra a Philip Lutley Sclater (1829–1913), ornitólogo y coleccionista inglés, y Lophophorus figura en la larga lista de géneros en los que el diccionario cita ese epíteto en su honor. Distingue de él a su hijo, William Lutley Sclater (1863–1944), ornitólogo inglés que dirigió el Museo de Ciudad del Cabo de 1896 a 1906, cuyo nombre aparece en otros taxones (Cyanomitra, Spizocorys) pero no en este monal (Jobling, 2010).
El diccionario aclara además los nombres de los dos subgéneros que la ficha menciona. Chalcophasis, el que Elliot creó para esta especie, une el griego khalkos («cobre») con el latín moderno phasis («faisán»); Metallophasis, el que Hachisuka propuso para el monal chino, une el griego metallon («metal») con ese mismo phasis. Ambos figuran en Jobling como sinónimos de Lophophorus(Jobling, 2010).
En cuanto a la subespecie, orientalis es simplemente el adjetivo latino «oriental», de oriens, orientis («este»), con el que Davison designó a las aves del noreste de Myanmar y del oeste de Yunnan (Jobling, 2010). Jobling no incluye arunachalensis, de modo que de ese nombre no hay explicación en el diccionario (Jobling, 2010).
Nombres comunes y vernáculos
Idioma
Nombre
Fuente
Español
faisán monal de Sclater, monal coliblanco, monal sin copete
Los nombres locales conocidos son escasos: el Wildlife Institute of India recoge tratta y poa padio (mishmi de Arunachal) y pur di (mishmi chuikatta), y un informe citado por Delacour da pede para Pachakshiri, en el sureste del Tíbet (Delacour, 1977; WII, 2007). En Yunnan, Beebe no halló a nadie que conociera o supiera nombrar al ave (Beebe, 1918).
Historia nomenclatural
Jerdon describe la especie en The Ibis (p. 147) como Lophophorus sclateri y la repite ese año en las actas de la Sociedad Asiática de Bengala; Sclater la comenta en las de la Sociedad Zoológica de Londres (Beebe, 1918).
Elliot, en su monografía de los faisánidos, la coloca en el subgénero Chalcophasis; Oates (1898) y Sharpe (1899) siguen usando Chalcophasis sclateri(Beebe, 1918; Delacour, 1977).
Se describe la hembra, nueve años después que el macho; Hume incluye la especie en su obra sobre las aves de caza de la India (1879) y la llama «monal sin cresta» (crestless moonal) en 1880 (Beebe, 1918).
Beebe publica la descripción más detallada del macho y de la hembra y relata su observación en Yunnan (Beebe, 1918).
Hachisuka propone Metallophasis para el monal chino; Delacour (1977) deja ambos subgéneros en sinonimia (Delacour, 1977).
Kumar y Singh descubren en Arunachal Pradesh un monal de cola totalmente blanca, que Madge y McGowan tratan provisionalmente como una forma de la especie (Fuller y Garson, 2000; Madge y McGowan, 2002).
El género reúne tres especies: el monal del Himalaya (L. impejanus), el de Sclater y el chino (L. lhuysii), que forman una serie de especies que se sustituyen unas a otras a lo largo de la cordillera, de oeste a este (Johnsgard, 1986; Madge y McGowan, 2002). Delacour los describe como aves pesadas, de patas fuertes y cortas, pico largo con la mandíbula superior curvada y que cubre la inferior, y cola de 18 plumas, ancha, plana y casi cuadrada, algo más corta que el ala; los machos tienen un plumaje superior metálico y el inferior de un negro aterciopelado, y las hembras y los jóvenes son pardos y jaspeados (Delacour, 1977; Johnsgard, 1986).
Con el monal del Himalaya lo une un parentesco muy estrecho. Johnsgard no duda de que sea pariente muy próximo y de que quizá no se haya separado de él desde hace mucho; Davison propuso una separación en el Pleistoceno y sugirió que la banda blanca de la cola, más ancha y visible en las poblaciones occidentales del monal de Sclater, serviría como señal de aislamiento visual donde ambas especies pueden encontrarse; los machos occidentales tienen además partes inferiores más pardo-leonadas que negruzcas, otro rasgo posible de reconocimiento durante la exhibición frontal (Johnsgard, 1986). Delacour apunta que el monal de Sclater y el del Himalaya tienen casi la misma talla, pero que el primero tiene patas y pico más largos y cola más corta, y que el monal chino es mucho mayor, con cola proporcionalmente más larga, tarso más corto y dedo medio más largo (Delacour, 1977).
Los monales ocupan una posición aislada entre los faisanes: Delacour no ve vínculos claros con otros géneros, y Johnsgard coincide en que no hay relaciones filéticas evidentes dentro del grupo de los faisanes (Delacour, 1977; Johnsgard, 1986). El informe del Wildlife Institute of India, apoyándose en trabajos filogenéticos, ubica al linaje de los tragopanes, el faisán sangriento, los monales y el koklass en la base del árbol de los faisanes, y señala que un análisis morfológico acercó al monal a los urogallos (WII, 2007).
Cómo distinguir el monal de Sclater de los otros dos monales
Especie
Macho
Hembra
Monal de Sclater
Cola blanca con una ancha banda castaña (según Beebe, castaña con una ancha banda terminal blanca); dorso, rabadilla y supracaudales blancos; cresta corta y rizada, sin plumas con el raquis desnudo
Sin cresta; partes inferiores finamente vermiculadas, sin estrías claras; dorso bajo grisáceo con barrado fino; cola con barras blancas estrechas y una punta blanca ancha
Monal del Himalaya
Cola enteramente castaña; larga cresta «de pavo real» con plumas de raquis desnudo; parche blanco en el dorso separado de la cola por rabadilla oscura
Con una cresta corta; garganta blanca limpia; partes inferiores y superiores estriadas de claro; dorso bajo ante, con barras
Monal chino
Cola azul verdosa brillante; cresta colgante; amplia zona blanca en la rabadilla; mucho mayor
La mayor; dorso bajo casi blanco; cola barrada de pardo rojizo, sin punta blanca
Un ave viva traída de las colinas Mishmi, un ejemplar solitario en el zoo de Londres, un naturalista que la vio en Yunnan y un siglo de silencio.
La historia del monal de Sclater es corta y está llena de huecos: un macho vivo que llegó a manos de Jerdon en 1870, la única estancia de la especie en un jardín zoológico, la observación de Beebe en Yunnan en 1910, las expediciones de los años treinta al sureste del Tíbet y, mucho después, el hallazgo de una forma de cola blanca y de los primeros nidos (Beebe, 1918; Bibi et al., 2024; Delacour, 1977; Madge y McGowan, 2002).
El descubrimiento de Jerdon
El primer ejemplar conocido, según Beebe, fue un macho vivo traído de las colinas Mishmi. Al ver el ave por primera vez, Jerdon la encontró en un plumaje tan deslucido que, aunque la consideró distinta del monal del Himalaya, no pudo describirla. El macho vivía en Shillong, en las colinas Khasi, en buen estado y fuera de su poder; al recuperar las plumas de la cola pudo afirmar que se trataba claramente de otra especie, y así lo publicó en The Ibis en 1870 (Beebe, 1918; Delacour, 1977). Beebe recuerda que este descubrimiento acompañó al del tragopán de Blyth, igual que la perdiz sangrienta de Geoffroy se había dado a conocer con un monal nuevo (Beebe, 1918).
Ese mismo ejemplar pasó después a manos de Jerdon y se envió vivo al zoo de Londres. Beebe da como fecha de llegada a Inglaterra el 12 de marzo de 1870, y Delacour el 10 de marzo; los dos coinciden en que vivió un año y ocho meses y en que es el único registro de la especie en cautividad (Beebe, 1918; Delacour, 1977). Jerdon lo describía manso y dispuesto a comer de la mano, con una dieta de arroz y maíz y una gran afición a las hojas de lechuga y de col (Beebe, 1918; Delacour, 1977). El tipo se conserva en el Museo Británico, donde ha perdido casi todo el brillo iridiscente del manto, del dorso y de las coberteras por el desgaste de las plumas, y hoy su tono general es un negro humoso apagado (Beebe, 1918).
La hembra y los primeros datos
La hembra se describió nueve años después que el macho (Beebe, 1918). En los años siguientes el monal de Sclater siguió siendo una de las aves más raras en las colecciones científicas: Beebe cuenta que los pocos ejemplares conocidos se habían conseguido gracias a las tribus del interior y que no había en la literatura ni un solo dato sobre la vida silvestre del ave ni sobre la región que habitaba (Beebe, 1918). Las tribus mishmi y abor bajaban de sus montañas a la feria anual de Sadiya, en el extremo del valle de Assam, y llevaban a veces pieles o incluso aves vivas, y por esa vía llegaron los pocos ejemplares que había (Beebe, 1918; Beebe, 1926).
Beebe en Yunnan, invierno de 1910
Beebe, durante su viaje en busca de los faisanes de Asia, se topó con el monal de Sclater por casualidad en el noroeste de Yunnan, cerca de la frontera con Birmania, mientras estudiaba los faisanes de esa región en el invierno de 1910 (Beebe, 1918; Beebe, 1926). Se consideraba el primer hombre blanco que lo había visto o cazado en su hábitat y lo anotó en su diario con todos los detalles del entorno, porque eran los únicos datos de campo que existían sobre la especie (Beebe, 1918).
El relato es el de un día de comienzos de invierno. Acampado en la cumbre pelada de una loma redondeada, en una cordillera cuyas laderas muestran las cicatrices de antiguos cultivos de mijo en las que, en lugar de robles y castaños, crece un bambú achaparrado casi impenetrable, Beebe remontó a pie un barranco sombrío y escarpado, entre bananos silvestres con tallos cubiertos de ortigas que le azotaban las manos y la cara, y al agarrarse a un tronco de banano caído descubrió una cobra real que se alejó sin atacarle (Beebe, 1918). Allí, en un suelo removido por ciervos y faisanes, encontró dos o tres plumas verdes y púrpura iridiscentes que no sabía identificar, y luego oyó chasquidos y un rascar entre las hojas (Beebe, 1918).
Se arrastró a gatas por la senda de un sambar y fue apartando hojas una a una hasta ver, a través de una pantalla de follaje, un macho espléndido que cavaba con el pico casi sin pausa, dando vueltas en círculo; lo observó cinco minutos hasta que el ave se alejó sin sospechar nada. Beebe disparó a ciegas contra las hojas que aún se movían y halló el ave muerta a unos 2 m (seis pies) del claro; otros dos —una pareja de hembras o de machos jóvenes— salieron entonces del suelo y desaparecieron volando (Beebe, 1918; Beebe, 1926). Los habitantes de la zona, a los que preguntó los días siguientes, no sabían nada de ella ni tenían nombre para el ave; Beebe supuso que los tres eran aves llegadas desde más al norte, de un territorio donde no podía entrar ningún occidental, y concluyó que había que ampliar el área hacia el este para enlazar las colinas Mishmi con las montañas del Salween (Beebe, 1918). El macho que cobró estaba comiendo pequeños fragmentos de raíces suculentas y se había tragado además una cantidad sorprendente de tierra y detritos (Beebe, 1918).
Beebe volvió sobre el episodio en Pheasant Jungles (1927), donde precisó que el monal de Sclater era el más raro de todos los monales y que en todos los museos del mundo no había más que dos o tres pieles (Beebe, 1927). En su libro de 1926 escribió, con cierto pesimismo, que las altas crestas que habita son tan estrechas y su área tan limitada que en el mundo no podían quedar muchos ejemplares y que quizá no se pudiera ver al ave antes de que se extinguiera (Beebe, 1926). La historia posterior ha matizado ese temor (BOW, 2020; Madge y McGowan, 2002).
Las expediciones al Tíbet y a Assam
Delacour recoge las noticias de varios exploradores que, entre 1913 y 1938, completaron el mapa (Delacour, 1977):
Bailey encuentra el monal «común» en el alto Dibang y a ambos lados del paso de Yongyap; lo cita también en Pome, donde se hablaba de otro monal con una «cresta de plumas largas» (Delacour, 1977).
Baker menciona una puesta de cinco huevos de la especie, recogida entre el 1 y el 3 de junio a unos 9.000 pies (unos 2.700 m) en una cumbre al norte de Sadiya (Johnsgard, 1986).
Kingdon Ward la registra en el cañón del Tsangpo, en Ata Kang La y en el valle de Adung, en la cabecera del Irrawaddy, de donde se extiende al norte de Birmania y a la divisoria Shweli–Salween, en Yunnan (Delacour, 1977).
Ludlow ve tres machos que salen de un matorral de rododendros a 12.000 pies (unos 3.650 m) en Na La, sobre Migyitun, y comprueba, por la voz de alarma y la banda blanca de la cola, que no son monales del Himalaya; un aldeano le enseña la piel de un macho cazado el invierno anterior (Delacour, 1977).
Ludlow consigue una buena serie en la vertiente sur de Lo La, a 11.500 pies (unos 3.500 m), en un bosque de abeto plateado con un denso sotobosque de rododendros; las aves están en época de cría (Delacour, 1977; Johnsgard, 1986).
Davison describe la subespecie oriental (orientalis) y, más tarde, discute la separación entre el monal de Sclater y el del Himalaya (Johnsgard, 1986).
Johnsgard anota, según King (1981), que la especie podría haber desaparecido ya de Nagaland, pero que hasta 1968 aún era bastante común en algunas zonas del norte de Birmania, sobre todo entre 2.440 y 2.745 m (Johnsgard, 1986).
Katti y colaboradores documentan en las colinas Mishmi que la intensidad de la caza ha reducido significativamente las densidades de población (Fuller y Garson, 2000).
Kumar y Singh descubren en Arunachal Pradesh el monal de cola blanca y confirman que la especie es localmente bastante común (Fuller y Garson, 2000; Madge y McGowan, 2002).
Bibi y colaboradores estudian los nidos de acantilado y el comportamiento de incubación en Gaoligong, Yunnan (Bibi et al., 2024; BOW, 2020).
Entre las observaciones de Ludlow figura la de que los lobas, los habitantes locales, cazan con lazo a este monal: eligen un pequeño claro del bosque donde el ave acude a comer por la mañana y por la tarde, lo rodean con una cerca de ramas con huecos para el paso de las aves y cuelgan sobre cada hueco lazos de bambú (Delacour, 1977). Ludlow vio también a un macho que, tras caer su compañero, en vez de huir se posó en un árbol cercano (Delacour, 1977). Sheriff vio al monal de Sclater al norte de la cordillera principal, en Tsari Sama (valle de Langong) y en Turn La, en la cabecera del Nayu Chu; Ludlow no pudo confirmar si aparece al norte del Tsangpo, porque los aldeanos a los que preguntó dijeron que no (Delacour, 1977).
Del olvido a los primeros datos de nidos
Durante la segunda mitad del siglo XX se sabía muy poco más. Johnsgard (1986) escribía que casi no se conocía nada de la especie en su medio natural, que no se había descrito ningún nido y que no se había criado en cautividad, y la tenía por rara (Johnsgard, 1986). Madge y McGowan (2002) decían que «no existía información fiable sobre el nido, la puesta o la incubación» y subrayaban la dificultad de viajar por un territorio remoto y políticamente sensible (Madge y McGowan, 2002). El plan de acción de la UICN (2000) añadía que el ave era local y poco común en Myanmar, sin registros recientes (Fuller y Garson, 2000).
La situación cambió con el estudio de campo en la reserva de Gaoligongshan, en Yunnan, donde en 2015 y 2016 se localizaron por primera vez nidos activos, situados en plataformas de acantilados, y se siguió con registradores de temperatura la incubación de la hembra (Bibi et al., 2024; BOW, 2020). Los resultados, que se detallan en el capítulo de reproducción, han permitido completar por fin una parte de la biología de la especie (Bibi et al., 2024).
04
Morfología y plumajes
Un negro de reflejos metálicos, un blanco que cubre toda la grupa y una cola de dos colores.
♂ El macho de vivos colores metálicos, presenta una cabeza verde, donde destaca la piel que recubre el ojo de color azul, el cuello rojo haciéndose naranja conforme desciende hacia la espalda, las salas de un verde morado, pecho negro, pico largo y fuerte, patas robustas, parte inferior de la espalda blanca, la cola blanca atravesada por una espesa franja marrón, en la cabeza no se aprecia copete. (BOW, 2020; Hernández García, 2013)
Es un ave de gran tamaño, de entre 63 y 68 cm de longitud (unos 68 cm en las descripciones más habituales), ligeramente menor que el monal chino. Los machos pesan entre 2.267 y 2.948 g y las hembras entre 2.126 y 2.267 g. El rasgo que distingue al macho de los demás monales es la extensa zona blanca que va desde la mitad de la espalda hasta la parte superior de la cola. (BOW, 2020; Madge y McGowan, 2002; Wikipedia)
Se le conoce también como «monal sin copete», porque, a diferencia de sus parientes L. impejanus y L. lhuysii, carece de la característica cresta metálica en lo alto de la cabeza; en rigor, la cresta no desaparece del todo, sino que queda reducida a unas pocas plumas cortas y curvadas hacia delante. Su único congénere en el mismo territorio es L. impejanus. (Beebe, 1918; BOW, 2020; Madge y McGowan, 2002)
Macho adulto
La descripción más minuciosa es la de Beebe, que tuvo en la mano un macho cobrado en Yunnan (Beebe, 1918). Los lores (la zona entre el ojo y el pico) están desnudos; la frente y la cara tienen un plumón escaso de diminutas plumas ovaladas verdes y, en la base de la narina, hay un mechón denso de plumillas. La coronilla es de un verde azulado con reflejos púrpura, y sus plumas, muy curvadas hacia delante, forman la cresta corta y rizada; las coberteras auriculares tienen un brillo púrpura más intenso, pero no se rizan. La nuca y los lados del cuello son de un cobre rojizo brillante (Beebe, 1918; Delacour, 1977).
El manto, las escapulares largas, las coberteras medianas y mayores internas y las terciarias son de un púrpura profundo que cambia a verde metálico según la luz; las coberteras del pliegue del ala forman un parche verde brillante que vira a azul y a púrpura, y el resto de las coberteras son de un verde dorado y un cobre intenso. Las secundarias internas son verde dorado, un brillo que se pierde hacia fuera hasta desaparecer en las barbas externas; las primarias y sus coberteras son de un negro mate (Beebe, 1918; Delacour, 1977).
La parte inferior de la espalda, la rabadilla y las supracaudales son de un blanco puro, con tallos negros muy finos en la rabadilla y en las supracaudales más cortas (que parecen faltar o reducirse en algunos ejemplares de las colinas Mishmi), y todas las plumas blancas tienen un ancho borde deshilachado de un blanco brillante (Beebe, 1918; Delacour, 1977). El plumaje inferior es de un pardo negruzco oscuro, con brillo púrpura en la garganta, los costados y los flancos (Beebe, 1918; Madge y McGowan, 2002). La cola es de un castaño oscuro con una ancha banda terminal blanca; la mitad oculta de cada pluma es negra, con cinco a siete barras blancas irregulares, rotas en manchas (Beebe, 1918; Delacour, 1977). Delacour subraya que todos los colores metálicos son menos brillantes y más «nubosos» que en el monal del Himalaya (Delacour, 1977).
El pico es córneo, de un amarillo anaranjado más oscuro en las puntas (blanquecino sucio según Baker, citado por Johnsgard); la piel desnuda alrededor del ojo y de los lores es de un azul vivo en ambos sexos; el iris es pardo; las patas son pardas, pardo verdosas o verdosas pálidas según el autor (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Los espolones son cortos, gruesos y robustos, de unos 13 mm, y a veces solo hay uno, mientras la otra pata tiene un nódulo aplanado (Beebe, 1918). El tarso está emplumado a lo largo del frente y de los lados (Beebe, 1918; Delacour, 1977). El pico es fuerte y marcadamente curvo, con la mandíbula superior ensanchada y cubriendo la inferior, un utensilio de excavar; las patas son recias y la cola de 18 plumas es algo más corta que la de los otros monales (Delacour, 1977; Madge y McGowan, 2002).
Hembra
♀ La hembra, de constitución semejante a la del macho, es en su totalidad de color marrón crema y blanco. Destacan las patas grisáceas, el pico largo y fuerte, el reborde azul del ojo y la parte inferior de la espalda, que es blanca. (BOW, 2020; Hernández García, 2013)
La hembra se distingue de la del monal del Himalaya porque carece de la ancha garganta blanca y de las estrías del vientre estrechamente barradas, y presenta estrías más marcadas en las partes superiores. El macho juvenil se parece a la hembra adulta, aunque con el manto más oscuro, la rabadilla más blanca y algo de canela en la cola. El macho de primer año es intermedio entre ambos sexos adultos y muestra plumas de un verde metálico en el dorso. (BOW, 2020; Madge y McGowan, 2002)
Beebe y Madge, que describen a la hembra con más detalle, coinciden en lo esencial (Beebe, 1918; Madge y McGowan, 2002). La barbilla y la garganta son blancas o blanco ante; la coronilla, la cara y el cuello, pardo negruzcos, con una marca subterminal en V de color ante en cada pluma, que da un aspecto pecoso; el manto y la parte alta de la espalda son de un rico pardo umbra, con una raya central de un rufo-ante pálido y un moteado disperso; las coberteras menores, más rufas, tienen mucho moteado rufo, y las mayores y las secundarias internas, barras rufas más regulares (Beebe, 1918; Madge y McGowan, 2002). De la mitad de la espalda a las supracaudales el plumaje es de un gris jaspeado: un fondo blanco grisáceo muy irregularmente barrado de pardo oscuro, con el raquis blanco brillante, y las supracaudales se vuelven cada vez más blancas. Las rectrices son negras, con barras blancas estrechas y algo irregulares y una ancha punta blanca; las centrales muestran un moteado rufo entre las barras (Beebe, 1918; Madge y McGowan, 2002).
Las partes inferiores empiezan bruscamente en el pecho: una vermiculación fina de ante pálido sobre un fondo pardo umbra, en proporciones casi iguales, que da un tono oliváceo general; hacia atrás las vermiculaciones se hacen algo más gruesas, y en los costados se funden con el gris más frío y más groseramente dibujado de la rabadilla. Faltan, por tanto, las estrías pálidas de las otras hembras de monal (Beebe, 1918; Madge y McGowan, 2002). El pico es amarillento (más pálido que el del macho); las patas, pardas; los espolones son nódulos aplanados que a veces se alargan (Beebe, 1918; Madge y McGowan, 2002). El informe del Wildlife Institute of India subraya además la mayor extensión de piel azul alrededor del ojo, la parte superior y el manto más oscuros, y las partes inferiores más uniformes, sin las manchas gris blanquecinas del monal del Himalaya (WII, 2007).
Se sabe muy poco de las edades. Johnsgard recoge que el plumaje inmaduro no se había descrito, aunque supone que los machos de primer año se parecen a las hembras, como en el monal del Himalaya (Johnsgard, 1986). Madge y McGowan señalan que el joven es muy parecido a la hembra y que un macho juvenil tenía las partes superiores barradas de canela, y no pecosas; el macho de primer año es intermedio entre los sexos, más grande que la hembra, con negro variable en la garganta y plumas verde metálico en las partes superiores (Madge y McGowan, 2002). En el género, Delacour y Gerrits anotan que el macho no adquiere el plumaje adulto hasta el segundo año (Delacour, 1977; Gerrits, 1974).
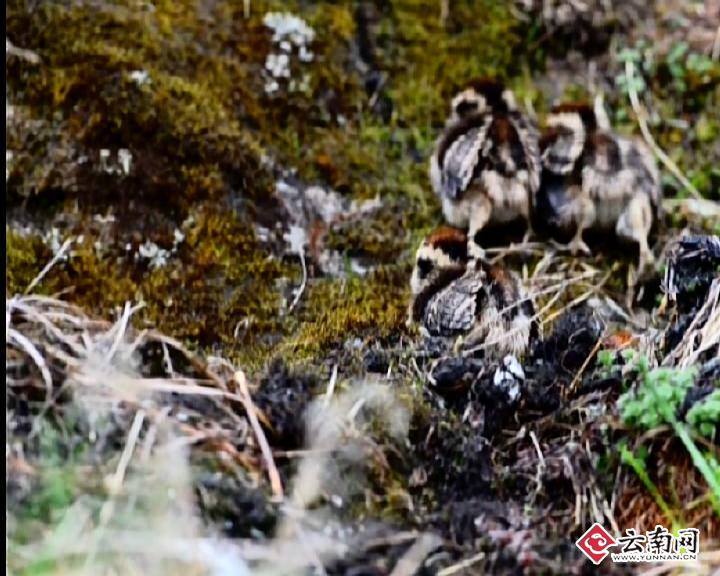
No hay descripción publicada del polluelo de esta especie; la de Delacour del plumón se refiere solo al monal del Himalaya (Delacour, 1977). La web conserva una fotografía de polluelos en la naturaleza, que se muestra en el capítulo de reproducción. En cuanto a la muda, Delacour apunta, para el género, que la cola se renueva de las plumas externas hacia las internas, como en los demás monales (Delacour, 1977; Johnsgard, 1986).
05
Medidas y peso
Un faisán corpulento, algo menor que el monal chino, con una hembra casi tan pesada como el macho.
El faisán monal de Sclater es un ave de gran tamaño. El macho mide entre 64 y 68 cm de longitud, con alas de 29 a 31 cm, cola de 19 a 23 cm, tarso de 73 mm y un peso de entre 2,5 y 3 kg. La hembra, de proporciones algo menores, alcanza entre 62 y 64 cm de longitud, con alas de 26 a 30 cm, cola de 18 cm, tarso de 71 mm y un peso de 2,2 kg. (Hernández García, 2013; Madge y McGowan, 2002)
Macho ♂Hembra ♀
Longitud
♂64–68 cm
♀62–64 cm
Alas
♂29–31 cm
♀26–30 cm
Cola
♂19–23 cm
♀18 cm
Tarso
♂73 mm.
♀71 mm.
Peso
♂2,5–3 kg.
♀2,2 kg.
Tamaño frente al resto de la colecciónlongitud total del macho · 51 especies
Faisán monal de Sclater · 68 cm
050100150200 cm
La longitud total de la especie se cifra en 63 a 68 cm. Los pesos conocidos van de 2.267 a 2.948 g en el macho y de 2.126 a 2.267 g en la hembra, un intervalo algo más amplio por arriba y por abajo que el de la tabla (2,5-3 kg y 2,2 kg, respectivamente). Con unos 2,3-2,9 kg de media, el monal de Sclater es un faisán corpulento, aunque de tamaño moderado dentro de su género. (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
El género Lophophorus solo cuenta con tres especies: el monal del Himalaya (L. impejanus), el propio monal de Sclater y el monal chino (L. lhuysii). Este último es el mayor de los tres, con un peso medio de 3,18 kg. En cuanto a los huevos, en un nido estudiado en las montañas Gaoligong, en el oeste de Yunnan, la masa media fue de 85,8 g (n = 5). (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
Medidas según distintas fuentes
Las medidas de la especie tienen un origen muy reducido: casi todas remiten a los pocos ejemplares que pasaron por manos de Beebe y de Baker, o a las series de museo recogidas por Ludlow y Kinnear y por colectores chinos (Beebe, 1918; Johnsgard, 1986; Madge y McGowan, 2002). Beebe midió un macho y una hembra; Delacour copia sus cifras; Johnsgard reúne las de Ali y Ripley, Baker y Cheng y colaboradores; Madge y McGowan las resumen, y el informe del Wildlife Institute of India solo da una longitud corporal de 68 cm y el peso como «desconocido» (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; WII, 2007).
63,2 × 45,4 mm de media y unos 70,5 g de peso fresco estimado (Johnsgard); masa media de 85,8 g (BOW, Gaoligong, n = 5); 68,41 ± 6,47 g (Bibi et al., n = 6 huevos de 2 nidos)
Comparación de Madge y McGowan (2002) para las tres especies del género; la cifra del monal chino procede de un solo ejemplar de cada sexo (Johnsgard, 1986; Madge y McGowan, 2002).
06
Distribución y hábitat
Entre el Tíbet, Arunachal Pradesh, Birmania y Yunnan: el rincón más remoto del Himalaya.
Es una especie endémica de la cordillera del Himalaya oriental: se distribuye desde el noreste de la India (Arunachal Pradesh) y el sureste del Tíbet hasta el norte y noreste de Myanmar y el oeste de Yunnan, en el centro-sur de China. Existen registros recientes de Arunachal Pradesh, donde es bastante común a nivel local. En Yunnan las cifras son estables y en Myanmar se describe como poco común. Es localmente común en la Reserva Natural de Gaoligongshan y también está presente en la de Lujian, en Yunnan. (BOW, 2020; Fuller y Garson, 2000; Madge y McGowan, 2002)
Colinas Mishmi y Abor hacia el este, hasta las montañas del norte de Birmania y de Yunnan. Su observación en el noroeste de Yunnan, cerca de la frontera birmana, enlazó las colinas Mishmi con las montañas del Salween (Beebe, 1918).
Delacour (1977)
Alto Assam (colinas Mishmi y Abor) y sureste del Tíbet, hacia el este hasta el noreste de Birmania y Yunnan. Encontrado en Yunnan hasta unos 13.000 pies (unos 3.960 m) y en Sadiya a 10.000 pies (unos 3.050 m), en bosque denso (Delacour, 1977).
Johnsgard (1986)
Himalaya oriental y sur del Tíbet, aproximadamente entre los 93° E y los 97° E, y probablemente hasta el río Salween en el Tíbet; al norte hasta al menos los 30° 20’ N en el valle de Po Yigrong y al sur hasta el norte de Birmania (valle del Adung y región de Hpimaw, hacia los 26° N), al este hasta las montañas del noroeste de Yunnan, en la frontera con Birmania, y al sur hasta la divisoria Shweli–Salween (25° 30’ N). Sedentario (Johnsgard, 1986).
Madge y McGowan (2002)
Himalaya oriental, de las zonas fronterizas del oeste o centro de Arunachal Pradesh y el sureste del Tíbet (al oeste hasta Lo La, a 93° E) hacia el este por el norte de Birmania y el oeste de Yunnan, al oeste del río Salween (Madge y McGowan, 2002).
Fuller y colaboradores (2000)
Endémico del Himalaya oriental, de Arunachal Pradesh por el norte de Myanmar y el sureste del Tíbet hasta el oeste de Yunnan (Fuller y Garson, 2000).
Wildlife Institute of India (2007)
En la India, solo en Arunachal Pradesh, entre 3.000 y 4.000 m: especie residente y rara (WII, 2007).
Birds of the World (2020)
Desde el sureste del Tíbet hacia el sur hasta el noreste de Arunachal Pradesh, y hacia el este hasta el norte de Yunnan y el norte de Myanmar (subespecie nominal); noreste de Myanmar y suroeste de Yunnan (orientalis) (BOW, 2020).
La mayor parte del área es de acceso muy difícil, y por eso casi todos los datos proceden de unos pocos registros de expediciones (Fuller y Garson, 2000; Madge y McGowan, 2002).
En el extremo oriental de su área el monal de Sclater coincide en cierto modo con el del Himalaya: Ludlow situaba el encuentro entre los meridianos 92° y 93° E, y Madge y McGowan describen una especie «encajada» entre dos poblaciones de monal del Himalaya, con solapamiento marginal al menos en Myanmar, donde el de Sclater suele ocupar cotas más bajas (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). El informe del Wildlife Institute of India recuerda que, en la India, la especie no está cubierta por la red actual de áreas protegidas o que no se conoce con detalle su distribución en ellas (WII, 2007).
Hábitat y altitud
Habita en prados alpinos y subalpinos de matorrales de rododendro y en laderas rocosas escarpadas, por lo general entre los 3.000 y los 4.200 metros de altitud. En China aparece desde los 2.500 m, en bosques de coníferas con sotobosque de bambú y en matorrales subalpinos de rododendros; en Myanmar se cree que permanece por encima del límite del arbolado, sin bajar de unos 2.600 m. En Arunachal Pradesh se ha observado, en verano y otoño, entre 3.400 y 4.200 m, en matorrales alpinos de rododendros enanos, y en invierno en bosques de Abies densa. En octubre, o más en general en otoño e invierno, desciende a los bosques templados, a 2.000-3.000 m, donde su área se superpone con la de Lophophorus impejanus (al menos en Myanmar y en el suroeste de China, el monal de Sclater suele aparecer a menor altitud que el monal del Himalaya); la población de Arunachal Pradesh baja hasta unos 3.000 m en invierno, aunque los movimientos estacionales no están bien documentados. (BOW, 2020; Hernández García, 2013; Madge y McGowan, 2002)
El plan de acción de la UICN añade que la especie vive en bosques de coníferas con sotobosque de bambú, en matorral subalpino de rododendros, en bosque de azaleas, en zonas de enebro y cotoneaster, en claros herbosos y en laderas rocosas, entre 3.000 y 4.200 m, y que desciende hasta los 2.000 m en invierno (Fuller y Garson, 2000). Ludlow la describió en el bosque de abeto plateado con un denso sotobosque de rododendros de Lo La, y Johnsgard resume su hábitat como el de un bosque denso con claros herbosos o por encima del límite del bosque, a más de 9.000 pies (unos 2.740 m) (Delacour, 1977; Johnsgard, 1986).
El paisaje del hábitat de Yunnan lo describió Beebe: laderas muy empinadas en las que las cicatrices de los antiguos cultivos de mijo han dejado un bambú achaparrado casi impenetrable, barrancos con torrentes entre rocas redondeadas, bosques de bananos silvestres y árboles perennifolios de pocas hojas bajas y, en la cumbre, un ramillete de hojas de Caladium bajo el cual escarbaba el macho (Beebe, 1918). Beebe añade que, según las observaciones de campo de la época, el ave parecía ligada a cotas de más de una milla sobre el mar (Beebe, 1918).
Fuente
Altitud
Fuller y colaboradores (2000) / Ludlow y Kinnear (1944)
3.000–4.200 m; 3.400–4.200 m en verano y otoño en Arunachal Pradesh; 2.000–3.000 m en otoño e invierno (BOW, 2020; Hernández García, 2013)
Wildlife Institute of India (2007)
3.000–4.000 m, en bosque de abeto con denso sotobosque de rododendros (WII, 2007)
Bibi et al. (2024), Gaoligong
Nidos entre 3.535 y 3.892 m, en una zona de 3.000 a 4.100 m, sobre todo por encima del límite del bosque (Bibi et al., 2024)
La especie se encuentra en disminución a un ritmo moderado, principalmente como resultado de la presión de caza, aunque los datos obtenidos hasta la fecha son poco claros debido a la inaccesibilidad de su hábitat. La población total podría ser inferior a 10.000 individuos; se considera estable en China y en descenso sospechado en el resto del área. Faltan estudios y acciones de conservación específicas. (BOW, 2020; Madge y McGowan, 2002)
07
Comportamiento y voz
Un ave de las cumbres que se oye desde lejos, vive en pequeños grupos y se pelea con ferocidad.
La llamada territorial se oye desde lejos: es un aullido lastimero que sube de tono al final, con una duración cercana a ocho segundos y repetido más o menos cada tres segundos. Se ha comparado con la voz de un búho y con la de un zarapito. Cuando el ave se alarma o levanta el vuelo emite un chillido agudo y estridente o una serie rápida de notas entrecortadas. Un macho posado sobre una roca fue registrado, además, con una llamada de doble tono. (BOW, 2020; Madge y McGowan, 2002; WII, 2007)
Vida social
Casi todo lo que se sabe del comportamiento de la especie procede de observaciones breves y dispersas, porque nadie la había estudiado a fondo hasta el trabajo de Gaoligong (Bibi et al., 2024; Johnsgard, 1986; Madge y McGowan, 2002). Johnsgard escribía que no se había descrito nada sobre el sistema de apareamiento ni la territorialidad, y que probablemente se parecían al del monal del Himalaya (Johnsgard, 1986).
Las observaciones disponibles sugieren que es bastante sociable: Madge y McGowan cuentan que en verano se la ve en bandos entre el matorral y los riscos por encima del límite del bosque, donde se confunde con el entorno, y que parece gregaria incluso en la época de cría (Madge y McGowan, 2002); el informe del Wildlife Institute of India la describe como un ave que suele verse sola, en parejas o en pequeños grupos (WII, 2007). En el noreste de la India suele verse en grupos de dos o tres aves, de las que solo una es un macho adulto (BOW, 2020; Hernández García, 2013). El plan de acción de la UICN, en cambio, la presenta como solitaria durante la cría, en primavera, y gregaria en invierno (Fuller y Garson, 2000). Ludlow levantó tres machos juntos de un matorral de rododendros a finales de mayo, y Johnsgard deduce que los machos pueden seguir siendo bastante sociables incluso en plena época de cría (Delacour, 1977; Johnsgard, 1986). Beebe, por su parte, se encontró en un mismo lugar con tres aves: un macho y otras dos que salieron volando, quizá hembras o machos jóvenes (Beebe, 1918).
El estudio de Gaoligong aportó la primera cuantificación del comportamiento agresivo. Durante los dos años de campo los autores contaron una sola interacción intensa entre machos en 2015 y 45 en 2016, de las que 36 fueron persecuciones, algunas de hasta 3 km, y 9 peleas intensas (Bibi et al., 2024). Las peleas duraron de media 57 minutos, con un mínimo de 5 y un máximo de 137; en una de ellas, el 22 de abril de 2015, se contaron 37 ataques en 133 minutos, y en otra, el 2 de mayo de 2016, 52 ataques en 283 minutos (Bibi et al., 2024). Los autores interpretan esta intensidad como un indicio de fuerte competencia por las hembras y quizá por los escasos lugares de nidificación de cada ladera (Bibi et al., 2024).
Dormidero, desplazamientos y alarma
No hay descripciones detalladas del dormidero de la especie; la fotografía de un grupo de machos posados en las ramas de un abeto en la niebla (de Birdnet.cn) muestra al menos que usan percha en árboles. Madge y McGowan indican que busca comida a primera hora y al final de la tarde, en claros del bosque (BOW, 2020; Madge y McGowan, 2002); Ludlow y Kinnear (citados por Johnsgard) anotaron lo mismo (Johnsgard, 1986). En verano, después de la eclosión, el ave sube a la zona alpina y se encuentra entre los precipicios rocosos (Delacour, 1977).
Los movimientos estacionales no están bien documentados: Johnsgard supone que bajan a zonas libres de nieve en invierno y suben a los prados alpinos en verano; el plan de acción de la UICN dice que descienden hasta los 2.000 m, y Birds of the World precisa que en otoño e invierno, entre 2.000 y 3.000 m, pueden encontrar recursos adicionales donde su área se superpone con la del monal del Himalaya (BOW, 2020; Fuller y Garson, 2000; Johnsgard, 1986).
Beebe cuenta que dos aves salieron del suelo «como bombas vivas» a pocos pies de él y desaparecieron al instante, y Ludlow vio que un segundo macho, en lugar de escapar tras el disparo, se detuvo en pleno vuelo y se posó en un árbol cercano (Beebe, 1918; Delacour, 1977). Según Ali y Ripley, citados por Johnsgard, la llamada de alarma la repite a veces un «centinela» desde un peñasco que domina la ladera (Johnsgard, 1986).
En Lo La solo oyó un silbido, de un timbre distinto del del monal del Himalaya; el 30 de mayo de 1936 reconoció la especie, entre otras cosas, por su «llamada de alarma poco familiar» (Delacour, 1977).
Ali y Ripley (citados por Johnsgard)
Silbido salvaje, sonoro, muy parecido al del monal del Himalaya pero de otro timbre; la llamada de alarma es chillona, ronca y bastante quejumbrosa, intermedia entre la del pavo real y la de la gallina de Guinea; puede repetirla un centinela (Johnsgard, 1986).
Madge y McGowan (2002)
En alarma, una llamada repetida, estridente y bastante áspera y quejumbrosa; la llamada del macho, que se oye de lejos, es un silbido sonoro «go-li», similar al del monal del Himalaya y descrito como «mitad búho y mitad zarapito» (Madge y McGowan, 2002).
Wildlife Institute of India (2007)
Alarma: un grito estridente, áspero y quejumbroso, repetido; también un silbido salvaje y resonante, parecido al del monal del Himalaya pero de otro tono; transcrita como «woah, woaah, woahh, waaah, waaah, waaah, griiik» (WII, 2007).
Birds of the World (2020) y ficha original
Aullido lastimero, ascendente al final, de unos 8 segundos y repetido más o menos cada 3; se oye de lejos; chillido de alarma o notas cortadas al levantar el vuelo; un macho sobre una roca emitió una llamada de dos tonos (BOW, 2020).
Depredadores
No se ha descrito un solo depredador de la especie en libertad. Johnsgard supone que serán grandes rapaces, como el águila real, y varios mamíferos depredadores (Johnsgard, 1986). En Gaoligong, los autores del estudio de nidos recuerdan que en el mismo hábitat viven comadrejas siberianas (Mustela sibirica) y otros carnívoros capaces de llegar a los nidos, y que un aguilucho pálido intentó atacar un nido en un estudio anterior (Luo y Han, 2011), pero la hembra incubando lo disuadió; no se registró depredación de ningún nido durante su estudio (Bibi et al., 2024).
08
Alimentación
Raíces, tubérculos y semillas que desentierra con el pico, a primera hora y al atardecer.
En estado salvaje, el faisán monal de Sclater se alimenta de larvas de coleópteros, zanahorias salvajes, raíces y tubérculos. (BOW, 2020; Hernández García, 2013)
En libertad
Se sabe muy poco de su dieta, pero la mayoría de las observaciones indican que se alimenta escarbando, al igual que sus parientes, en prados alpinos y subalpinos y en laderas rocosas escarpadas, entre los 3.000 y los 4.200 m de altitud. Se han citado semillas de Polygonum, tubérculos de un arísaro (Arisaema sp.) y cabezuelas de cardo. (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
En la molleja de tres hembras abatidas en Arunachal Pradesh se hallaron pequeños guijarros, raíces, tubérculos, semillas y fragmentos de corteza u hojas, y el buche de otra hembra contenía hojas de Potentilla, Cardamine y Gaultheria. Suele buscar alimento a primera hora de la mañana y a última de la tarde, normalmente en claros del bosque. Al descender en otoño e invierno hacia bosques templados algo más bajos (2.000-3.000 m), donde su rango se superpone con el del monal del Himalaya, puede encontrar recursos alimentarios adicionales. (BOW, 2020; Madge y McGowan, 2002)
Los datos más antiguos proceden de Beebe, que examinó el contenido del macho que cobró en Yunnan: se alimentaba de trozos cortos y torcidos de raicillas suculentas, y con ellas había tragado una cantidad llamativa de tierra y detritos (Beebe, 1918). Johnsgard anota, además de las semillas de Polygonum y las cabezuelas de cardos de Ali y Ripley, que se habían analizado muy pocos contenidos de buche o de molleja, y que la forma del pico induce a pensar que la técnica de forrajeo es la misma que la del monal del Himalaya: excavar con el pico, sin rascar con las patas (Delacour, 1977; Johnsgard, 1986). Para el género, Delacour apunta raíces, bulbos, bayas, semillas y brotes, además de larvas y gusanos, que desenterrar durante horas (Delacour, 1977).
Fuente
Alimentos señalados
Beebe (1918), un macho en Yunnan
Trozos cortos y torcidos de raicillas suculentas; tierra y detritos tragados con ellas (Beebe, 1918)
Ali y Ripley (citados por Johnsgard)
Semillas de Polygonum; cabezuelas de cardos o de flores de cabeza dura (Johnsgard, 1986)
Madge y McGowan (2002)
En Arunachal Pradesh, tubérculos de Arisaema; en general, se alimenta escarbando (Madge y McGowan, 2002)
Birds of the World (2020)
Tres mollejas con guijarros, raíces, tubérculos, semillas y fragmentos de corteza u hojas; un buche con hojas de Potentilla, Cardamine y Gaultheria(BOW, 2020)
Ficha original y libro de 2013
Larvas de coleópteros, zanahorias salvajes, raíces y tubérculos (Hernández García, 2013)
Wikipedia
Probablemente tubérculos, raíces, bulbos, artrópodos, roedores, semillas y flores, como en el resto del género (afirmación sin cita en la fuente) (Wikipedia)
Los datos son escasísimos y casi todos de pocos individuos; la mención de roedores de Wikipedia es una suposición sin base publicada, y no la recogemos como dato.
En cautividad
El único ejemplar cautivo, el de Londres, comía de la mano y se alimentaba de arroz y maíz, con especial afición a las hojas de lechuga y de col (Beebe, 1918; Delacour, 1977). Al no haber cría en cautividad de la especie, no hay pautas propias de manejo. Para el monal del Himalaya, Howman indica una alimentación a base de pienso de aves de corral y de grano, y Delacour cita a los criadores franceses: cereales (maíz, trigo, alforfón), mucha verdura, y en invierno raíces de endibia y de diente de león o zanahorias cortadas; durante la cría, pan rallado y huevo duro, un huevo por pareja (Delacour, 1977; Howman, 1979; Howman, 1996). Recomendación editorial: ante la falta de datos, cualquier proyecto con la especie tendría que partir de las pautas del monal del Himalaya, con ejemplares en un recinto amplio de suelo excavable, y documentar con rigor lo que coman y toleren.
09
Cortejo y exhibición
Un cortejo apenas observado, con un posible mensaje en el blanco de la cola.
La exhibición nupcial del monal de Sclater casi no se conoce: nadie la ha descrito con detalle y solo el estudio de Gaoligong, en 2016, registró cortejos en el campo, sin copulaciones (Bibi et al., 2024; Johnsgard, 1986).
Lo que se ha observado en Gaoligong
Entre abril y junio de 2016 se registraron 16 exhibiciones de cortejo; la primera fase de cada una duró de media unos 877 segundos, aunque con una enorme variación (de 10 segundos a 59 minutos; n = 13). Las hembras no respondieron, y los autores no vieron ninguna cópula (Bibi et al., 2024). La competencia entre machos fue, en cambio, intensa, como se describe en el capítulo de comportamiento (Bibi et al., 2024).
La exhibición de los monales, según Delacour y Gerrits
Como no hay descripción de la especie, conviene recordar la del género, que Delacour y Gerrits resumen así: el macho se acerca a la hembra con pasos largos y vacilantes, describiendo amplios círculos y con el ala interior bajada, de modo que oculta las patas; extiende el cuello, mantiene el pico hacia abajo, pegado al cuello, con la cresta erguida y vibrante, y picotea nervioso el suelo al excitarse (Delacour, 1977; Gerrits, 1974). Después adopta una posición frontal: levanta y abre la cola al máximo, con la cabeza y el pico contra el suelo y las alas separadas, haciendo reverencias rítmicas hacia delante y hacia atrás; las plumas del dorso y de las alas se erizan poco, pero las del manto y del cuello se hinchan, encerrando la cabeza, y así luce los colores metálicos, el dorso blanco y la cola (Delacour, 1977; Gerrits, 1974). Delacour la compara con la danza del pavo real, con la diferencia de que las alas no se llevan hacia delante sino que quedan a los costados del cuerpo, parcialmente abiertas (Delacour, 1977; Gerrits, 1974).
Lo único que se ha propuesto sobre la exhibición propia de la especie es una hipótesis de Davison, citada por Johnsgard: la banda blanca de la cola sería más ancha en las poblaciones occidentales del monal de Sclater, y los machos occidentales tienen las partes inferiores más pardo-leonadas que negruzcas, como una señal específica que serviría, en la exhibición frontal, para evitar que se crucen con el monal del Himalaya en la zona donde ambas especies se encuentran (Johnsgard, 1986).
Sistema de apareamiento
Birds of the World indica que se desconoce el sistema de apareamiento, y Johnsgard que nada se había escrito sobre él (BOW, 2020; Johnsgard, 1986). En Gaoligong, donde se vigilaron varios nidos, la hembra fue la única responsable de la incubación, y el estudio no pudo confirmar ningún comportamiento paterno (Bibi et al., 2024). Delacour, al hablar del género, cree probable la poligamia, con los machos que se reúnen con las hembras y los jóvenes en verano, y de nuevo se separan en otoño (Delacour, 1977).
10
Reproducción en la naturaleza
Nidos en repisas de acantilado a casi 4.000 m, dos o tres huevos y una hembra que casi no abandona la puesta.
Se sabe muy poco acerca de esta especie, ya que en la actualidad no se encuentra en cautividad en ninguna colección, por lo que anticipar su tipo de reproducción resulta muy arriesgado. No obstante, se presupone que es similar a la de los demás monales. La reproducción es muy poco conocida y se desconoce el sistema de apareamiento. En el noreste de la India suele verse en grupos de dos o tres aves, de las que solo una es un macho adulto. (BOW, 2020; Hernández García, 2013; Johnsgard, 1986)
Se cita generalmente una puesta de tres a cinco huevos, aunque en los nidos estudiados en el campo la puesta fue de 2 a 3 huevos. Según algunas descripciones, el macho guarda el nido y ayuda a la hembra en el cuidado de los pollos; no se sabe si participa en la defensa del nido, aunque se cree que es muy probable. Sin embargo, en el estudio de campo la hembra fue la única responsable de la incubación. (Bibi et al., 2024; BOW, 2020; Wikipedia)
Un estudio de campo reciente en las montañas de Gaoligong, en el suroeste de China (oeste de Yunnan), localizó por primera vez varios nidos activos de esta especie, situados en repisas y huecos de acantilados entre 3.535 y 3.892 m de altitud. Un mismo nido, en la repisa de una gran roca a 3,8 m del suelo, se utilizó durante dos años y posiblemente tres. (Bibi et al., 2024; BOW, 2020)
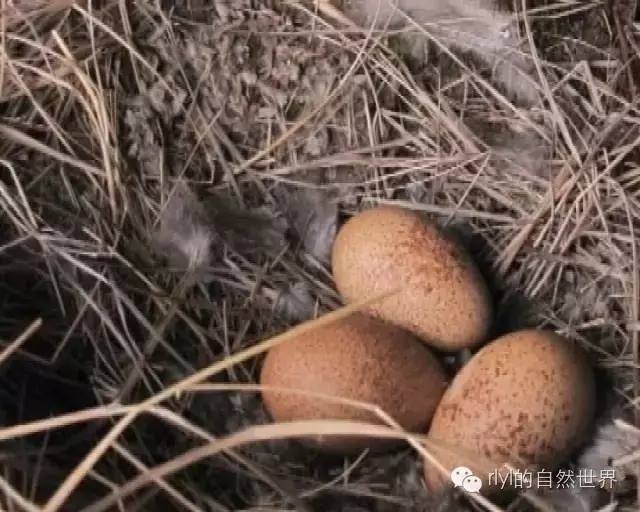
La puesta comenzó a finales de marzo y los pollos nacieron a principios de mayo. Los huevos, de color crema con finas manchas pardo rojizas, pesaron de media 85,8 g, y la incubación duró 28 días. La hembra permaneció sobre ellos el 97 % del tiempo, en sesiones de casi 26 horas de media, y las puestas eclosionaron con éxito. Aves recogidas en el Tíbet a mediados de mayo se encontraban en condición reproductora. (Bibi et al., 2024; BOW, 2020; Delacour, 1977; Johnsgard, 1986)
Calendario anual
EFMAMJJASOND
Inicio de la puesta e incubaciónfinales de marzo a abril en Gaoligong; el inicio de la incubación se calculó entre el 30 de marzo y el 30 de abril (Bibi et al.; BOW)
Eclosiónprincipios de mayo y hasta finales de mes; dos pollos vistos el 22 de mayo de 2015 (BOW; Bibi et al.)
Aves en condición reproductoramediados de mayo en el Tíbet (Ludlow y Kinnear, 1938; Madge)
Pareja con dos críasprincipios de junio en el oeste de Yunnan (Madge)
Huevos recogidos (Baker)puesta de cinco huevos recogida entre el 1 y el 3 de junio al norte de Sadiya (Johnsgard)
Ficha técnica del libro de 2014época de puesta en el hemisferio norte: mediados de mayo (Hernández García)
El calendario es orientativo: procede de observaciones puntuales de zonas muy distintas (Gaoligong a 3.535–3.892 m, el sureste del Tíbet y Assam), y no hay un ciclo anual completo publicado.
El nido
Los nidos estudiados en Gaoligong estaban en acantilados grandes, en una plataforma «hundida» orientada al sur, y el estudio describe seis lugares de nido (tres activos y tres inactivos, pero usados en años anteriores), todos entre 3.535 y 3.892 m (Bibi et al., 2024). Los acantilados medían, como máximo, 15 × 8 m, 15 × 20 m y 16 × 21 m; la plataforma estaba, de media, a 6,97 ± 1,49 m del suelo (n = 3), y los nidos medían unos 67,5 × 59,5 cm, 73,5 × 52,5 cm y 75,8 × 31,95 cm (Bibi et al., 2024). El nido de la ficha original, a 3,8 m del suelo, es el de Birds of the World; las cifras de Bibi y colaboradores son la altura media de las plataformas, y no hemos podido determinar si se refieren al mismo nido (Bibi et al., 2024; BOW, 2020).
Un nido, el número 2, se usó en 2015 y en 2016; en otros se hallaron cáscaras de años anteriores, y los autores consideran que la reutilización es «no infrecuente» y que apunta a que los lugares aptos son escasos (Bibi et al., 2024). Los autores interpretan la preferencia por repisas orientadas al sur como una forma de reducir el riesgo de depredación y de favorecer el desarrollo de los embriones, aunque advierten de que no la elimina del todo (Bibi et al., 2024). Es un modo de anidar distinto del que Madge y McGowan describen para el monal del Himalaya, un hueco en la hierba, protegido a menudo por una roca o un árbol caído (Madge y McGowan, 2002).
Puesta y huevos
La puesta fue de 2,75 ± 0,5 huevos (2 o 3), en cuatro nidos de tres lugares; los 11 huevos eclosionaron (100 %) (Bibi et al., 2024). Los huevos son de color crema con finas manchas pardo rojizas (BOW, 2020). Johnsgard, que no conoció ningún nido en libertad, da para la especie unas medidas de 63,2 × 45,4 mm; Baker, citado por él, mencionó una puesta de cinco huevos recogida en una montaña al norte de Sadiya (Johnsgard, 1986). La ficha original y el libro de 2013 dicen que, en libertad, las puestas son de unos cinco huevos (Hernández García, 2013).
En Gaoligong la incubación se siguió con registradores de temperatura y desde una tienda de observación camuflada (Bibi et al., 2024). La hembra incubó sola: estuvo sobre los huevos el 97,2 % del tiempo (entre el 95,7 y el 98,4 % según el nido), con sesiones de 25,69 ± 13,79 horas de media y salidas de apenas 1,04 ± 0,45 horas, aproximadamente una vez al día o cada dos días, para alimentarse (Bibi et al., 2024). Es una dedicación superior a la que se ha observado en otros faisánidos de montaña con los que los autores la comparan (la perdiz de Sichuan, el faisán sanguinolento y la perdiz de nieve, con menos del 85 %, y el faisán de Reeves, con el 93,11 %) (Bibi et al., 2024).
Birds of the World da una duración de la incubación de 28 días, y en el nido que se vigiló de principio a fin el seguimiento duró 32 días, del 30 de abril al 31 de mayo de 2016; los demás nidos se vigilaron entre 18 y 32 días (Bibi et al., 2024; BOW, 2020). Los pollos abandonaron el nido entre el 1 y el 31 de mayo, y se vieron dos pollos cerca de un nido el 22 de mayo de 2015 (Bibi et al., 2024). Para el monal del Himalaya, Howman da 28 días de incubación, y Madge y McGowan, 28 días para el chino; el libro del autor da también 28 días para el de Sclater (Hernández García, 2014; Howman, 1979; Madge y McGowan, 2002).
No se sabe nada seguro de la crianza de los pollos. Algunas descripciones aseguran que el macho guarda el nido y ayuda a la hembra con los pollos, pero en el único estudio de campo no se observó (Bibi et al., 2024; BOW, 2020). Beebe, en cambio, relata que en su observación de Yunnan, junto al macho solo había «una pareja de hembras o de machos jóvenes» (Beebe, 1918). La fotografía de unos pollos pequeños, entre musgo y matojos, muestra ejemplares con el plumón dorsal pardo y negro, y la mancha oscura en la cabeza, propios de pollos de faisán de pocos días; se tomó en Yunnan y lleva el sello de un medio chino (BOW, 2020).
11
Cría en cautividad
Un único ejemplar documentado, en 1870, y ninguna cría registrada en las fuentes consultadas.
En las fuentes aquí revisadas no se documenta que la especie se haya mantenido en cautividad más allá de ese ejemplar ni que se haya criado: Beebe, Delacour y Johnsgard la citan como un ave vista viva una sola vez, en Londres, y Roles, en 1976, escribe que ninguno de los dos monales raros estaba entonces en cautividad, hasta donde pudo averiguar, y que ninguno se había criado nunca (Roles, 1976); esa ausencia de documentación en obras de décadas anteriores no permite afirmar que no haya existido otro ejemplar después. Howman omite su descripción por falta de espacio, ya que ningún monal salvo el del Himalaya estaba en cautividad, y Gerrits indica que los otros dos son muy raros y muy caros, si es que se consiguen (Beebe, 1918; Delacour, 1977; Gerrits, 1974; Howman, 1979; Johnsgard, 1986). El plan de acción de la UICN (2000) deja en blanco la casilla de las aves cautivas, en una tabla que da cifras para el monal chino (15–20 aves), y la tabla de postura del criadero Chintaguay deja sin datos la madurez, la puesta y la incubación (del Campo, 2006; Fuller y Garson, 2000). El programa regional de zoológicos europeos (EAZA, 2000) que recoge el libro de 2014 solo menciona a los monales del Himalaya (seguimiento de población) y chino (no recomendado), y no incluye al de Sclater (Hernández García, 2014).
El ejemplar de Londres
Se trataba de un macho traído de las colinas Mishmi, que Jerdon había visto en Shillong y que, tras recuperar las plumas de la cola, pudo identificarse como especie nueva; llegó a Londres en marzo de 1870 y vivió allí, según Beebe y Delacour, un año y ocho meses (véase el capítulo de historia, donde se comenta la discrepancia con la cifra de «poco más de dos años» de la ficha original) (Beebe, 1918; Delacour, 1977; Hernández García, 2013). Era muy manso y comía de la mano, y se mantuvo con arroz y maíz, con una afición especial a las hojas de lechuga y de col (Beebe, 1918; Delacour, 1977). Para Beebe y para Delacour, ese ejemplar es el único registro de la especie en cautividad (Beebe, 1918; Delacour, 1977).
Los datos que figuran en la ficha técnica del libro del autor
La ficha técnica de incubación del volumen II de Faisanes del mundo. Guía práctica da para el monal de Sclater una puesta de 3 a 5 huevos, una incubación de 28 días, la época de puesta a mediados de mayo en el hemisferio norte y una madurez sexual a los 2 años; y el diámetro de anilla recomendado es de 14 mm, el mismo que para los otros dos monales (Hernández García, 2014). Son datos de referencia del género y de las pocas observaciones de campo, no de cría de la especie, que no existe; los mismos 3–5 huevos aparecen en Madge y McGowan, que los citan para el cautiverio aunque ni ellos ni Johnsgard conocen cría alguna (Johnsgard, 1986; Madge y McGowan, 2002). El criadero Chintaguay, en cambio, deja la fila de la especie en blanco (del Campo, 2006).
Qué se podría esperar: lecciones del monal del Himalaya
La experiencia de los criadores con el monal del Himalaya, la única especie del género que se mantiene regularmente, da pistas, pero no son datos del monal de Sclater (Delacour, 1977; Gerrits, 1974; Howman, 1979; Howman, 1996). Howman recomienda para una pareja de monal del Himalaya una pajarera de unos 18,6 m² (200 pies cuadrados) con base de hierba y arena, y advierte de que el pico, adaptado para excavar, causa estragos en una pajarera demasiado pequeña (Howman, 1979; Howman, 1996). Delacour, citando a Ghigi, señala que los monales son fuertes pero muy sensibles a los gérmenes y a los parásitos, que el suelo es de máxima importancia porque excavan mucho y que son aves de gran altura, que no sufren el frío o la nieve pero toleran mal la humedad estancada (Delacour, 1977). En una colección de monales del Himalaya la incubación dura 28 días, y la madurez completa del macho llega en el segundo año (Gerrits, 1974; Howman, 1979; Howman, 1996).
Para la incubación artificial, los criadores de Chintaguay indican, para los faisanes en general, almacenar los huevos a 13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo, y comenzar la incubación al día siguiente de la puesta y siempre antes de los 10 días (lo ideal es no pasar de 7), pues la fertilidad cae deprisa con la edad del huevo; la temperatura de incubación es de 37,5 °C (del Campo, 2006). Para el resto de los parámetros (humedad, volteo, nacedora, calor en la crianza), véase el capítulo de cría en cautividad de la ficha del faisán dorado, con la salvedad de que en los monales la incubación es de 28 días y no de 22 (del Campo, 2006; Howman, 1979).
12
Estado de conservación
De vulnerable a preocupación menor, con una población pequeña, remota y mal conocida.
LC
Preocupación menor
Población estable y extendida. Región: Himalaya.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La valoración de la UICN sobre esta especie ha evolucionado con el tiempo: figuró como vulnerable en el plan de acción de 2000 y en las obras de comienzos de siglo, y hoy se clasifica como de preocupación menor, pese a que su población es pequeña, está fragmentada y se sospecha que declina (BOW, 2020; Fuller y Garson, 2000; Madge y McGowan, 2002; Wikipedia). Figura además en el Apéndice I de CITES (BOW, 2020; Fuller y Garson, 2000; WII, 2007).
Cómo ha ido cambiando la valoración
Año
Fuente
Valoración
1986
Johnsgard (King, 1981)
Especie «rara»; podría haber desaparecido de Nagaland, pero hasta 1968 era bastante común en partes del norte de Birmania (Johnsgard, 1986).
2000
Fuller et al. (UICN/WPA)
Vulnerable (criterios C1; C2a): población probablemente pequeña, naturalmente fragmentada y en descenso significativo; prioridades: aclarar la taxonomía, hacer censos, investigar y proteger el hábitat (Fuller y Garson, 2000).
2002
Madge y McGowan
Vulnerable; población de menos de 10.000 aves; presiones, sobre todo la pérdida de hábitat y la caza, localizadas y de pequeña escala (Madge y McGowan, 2002).
2007
Wildlife Institute of India (UICN, 2006)
Vulnerable en la UICN; Anexo I de la ley india de protección de la vida silvestre; Apéndice I de CITES; «residente y rara» (WII, 2007).
Preocupación menor; población de menos de 10.000 aves, estable en China y con descenso sospechado en el resto del área (BOW, 2020).
2023
BirdLife International, citada por Wikipedia
Preocupación menor «por su amplia área de distribución», a pesar de que la población decrece (Wikipedia).
No hemos podido contrastar con la Lista Roja el año de la reclasificación de vulnerable a preocupación menor (BOW, 2020; Wikipedia).
Tamaño de la población y tendencia
Madge y McGowan sugieren una población de menos de 10.000 aves, y la ficha original recoge la misma cifra (BOW, 2020; Madge y McGowan, 2002). No hay recuentos directos de toda el área: la especie es difícil de ver, su hábitat es de acceso complicado y buena parte del territorio, en el sureste del Tíbet y en el norte de Myanmar, es de acceso restringido por motivos políticos (Fuller y Garson, 2000; Madge y McGowan, 2002). En Arunachal Pradesh es localmente bastante común; en Yunnan, estable; en Myanmar es poco común y no hay registros recientes (BOW, 2020; Fuller y Garson, 2000). En Gaoligong, además, Bibi y colaboradores señalan que los lugares de nido son escasos y que la competencia entre machos es muy intensa, lo que podría afectar a la dinámica de la población (Bibi et al., 2024).
Áreas protegidas y medidas en marcha
Entre las medidas que se están adoptando para evitar la pérdida de esta especie figuran la realización de estudios en Yunnan, en el sureste del Tíbet y en Arunachal Pradesh para determinar el estado de la población y su rango de distribución, así como estudios detallados que evalúen sus preferencias de hábitat y sus principales amenazas. También se desarrollan campañas en las áreas protegidas de Towang, Kameng Occidental y Arunachal Pradesh, y se evalúa la contribución de la red de áreas protegidas a su conservación con el fin de desarrollar una gestión adecuada en todo su rango. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013)
Se ha registrado en la Reserva Nacional de Gaoligongshan (donde es localmente común) y en la de Lujian, en Yunnan (BOW, 2020; Fuller y Garson, 2000). En la India, la creación del santuario de vida silvestre del valle de Dibang, de 4.149 km² y de 1.500 a más de 5.000 m de altitud, ofrece una protección adicional; pero el informe del Wildlife Institute of India subraya que ninguna de las áreas protegidas de Arunachal Pradesh alberga a la forma arunachalensis, y recomienda proteger hábitats de la especie como reservas comunitarias o de conservación y hacer censos que determinen su estado, su distribución y la calidad de su hábitat (Fuller y Garson, 2000; WII, 2007). El plan de acción de la UICN proponía, como objetivos, aclarar la distribución y el estatus taxonómico de la subespecie de Arunachal, hacer más censos en Yunnan, el sureste del Tíbet y Arunachal, estudios ecológicos detallados sobre el hábitat, la alimentación y las amenazas, y campañas a favor de áreas protegidas en los distritos de Tawang, West Kameng, East Kameng y Lower Subansiri (Fuller y Garson, 2000).
10.000aves
como máximo, población mundial estimada (Madge; BOW)
IApéndice
de CITES
3países
con presencia nativa: India, Myanmar y China
13
Amenazas y protección
Caza para alimento y plumas, tala y una inaccesibilidad que protege tanto como oculta.
Amenazas. La caza para la alimentación es la principal amenaza individual y, además, la caza de plumas constituye un problema localizado en la India, aunque en parte del noreste del país se considera un ave sagrada y su caza está prohibida por un tabú. Estas causas han reducido considerablemente la densidad de población. La degradación del hábitat como resultado de la tala es otra de las amenazas. El faisán monal de Sclater figuró como vulnerable en la Lista Roja de Especies Amenazadas, pero en la actualidad se clasifica como de preocupación menor; se encuentra en el Apéndice I del CITES. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013; Madge y McGowan, 2002)
Amenazas
Amenaza
Detalle
Fuente
Caza para alimento
Es la principal amenaza individual en toda el área; en las colinas Mishmi, la intensidad de la caza ha reducido de forma significativa las densidades de población.
Los lobas, en el sureste del Tíbet, cercan un claro con una valla de ramas con huecos y cuelgan lazos de bambú para capturar a las aves que acuden a comer mañana y tarde; no tienen dificultad en capturarlas.
La degradación del hábitat por la tala es una amenaza más localizada; el hábitat de la forma de cola blanca de Arunachal Pradesh parece poco amenazado por lo inaccesible.
Los nidos de Gaoligong están en pocas repisas de acantilado, reutilizadas a menudo, y la competencia entre machos es intensa; ambas cosas podrían afectar a la dinámica de la población.
Madge y McGowan afirman que las presiones, sobre todo la pérdida de hábitat y la caza, parecen bastante localizadas y de pequeña escala, algo poco sorprendente en un hábitat tan remoto (Madge y McGowan, 2002). El informe del Wildlife Institute of India clasifica al monal de Sclater, junto con el tragopán de Blyth, entre las especies amenazadas de la India, y recuerda que los galliformes se siguen cazando, tanto para subsistencia como para venta, pese a la Ley de Protección de la Vida Silvestre, y que las especies amenazadas sufren más estos efectos (WII, 2007). Beebe temía en 1926 que las aves, de áreas tan limitadas, se extinguieran antes de que se las pudiera ver (Beebe, 1926).
Protección legal y medidas
El monal de Sclater figura en el Apéndice I de CITES, que prohíbe en general su comercio internacional, y en el Anexo I de la ley india de protección de la vida silvestre (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013; WII, 2007). El libro de 2013 del autor del sitio lo incluía en la Lista Roja como vulnerable cuando se redactó, categoría que hoy ya no es la vigente (Hernández García, 2013). El plan de acción de la UICN propone aclarar la taxonomía, hacer censos, estudios ecológicos y campañas a favor de nuevas áreas protegidas, y el libro de 2014 no incluye a la especie en los programas de cría ex situ de los zoológicos europeos (Fuller y Garson, 2000; Hernández García, 2014).
14
Subespecies y variación
Dos subespecies, una tercera forma de cola blanca todavía en discusión y ninguna mutación conocida.
Se reconocen dos subespecies de faisán monal de Sclater, que se presentan a continuación. Se admite además una tercera, L. s. arunachalensis, de descripción reciente, que se comenta más abajo. (Hernández García, 2013; Madge y McGowan, 2002; Wikipedia)
La subespecie nominal, L. s. sclateri, ocupa desde el sureste del Tíbet hacia el sur hasta el noreste de la India (noreste de Arunachal Pradesh) y hacia el este hasta el norte de Yunnan y el norte de Myanmar. L. s. orientalis habita en el noreste de Myanmar y el suroeste de Yunnan. La franja blanca de la cola del macho es más estrecha en orientalis (10-20 mm) que en la nominal (20-28 mm); la hembra de orientalis tiene la rabadilla y las coberteras supracaudales grisáceas con un barrado blanquecino poco visible, mientras que la de la nominal presenta un barrado oscuro estrecho. (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
La tercera, L. s. arunachalensis, fue descrita en 2004 para el noroeste de Arunachal Pradesh (distritos de Lower Subansiri y East Kameng, y posiblemente hasta la cordillera de Sela). El macho tiene la cola totalmente blanca, sin castaño, y la hembra se distingue por un plumaje general más oscuro. (BOW, 2020; WII, 2007; Wikipedia)
Del sureste del Tíbet (al oeste hasta Lo La, a 93° E) hacia el sur hasta el noreste de Arunachal Pradesh, y hacia el este hasta el norte de Yunnan y el norte de Myanmar. Localidad típica: colinas Mishmi, en el Alto Assam (Beebe, 1918; BOW, 2020; Madge y McGowan, 2002).
Rasgos distintivos
Macho: franja blanca de la cola de 20–28 mm, más ancha que en orientalis; hembra: rabadilla y supracaudales grisáceas con un barrado oscuro estrecho (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002).
Tamaño
Macho: longitud 64–68 cm, ala 298–317 mm, cola 195–223 mm, tarso c. 73 mm, peso c. 2.267–2.948 g. Hembra: 62–64 cm, ala 266–302 mm, cola 180–185 mm, tarso 71 mm, 2.126–2.267 g (Madge y McGowan, 2002).
Hábitat
Prados alpinos y laderas rocosas entre 3.000 y 4.200 m; en invierno, bosques de coníferas más bajos; en el sureste del Tíbet, bosque de abeto plateado con sotobosque de rododendros (BOW, 2020; Delacour, 1977).
Estado
Sin valoración propia: se aplica la de la especie (preocupación menor; CITES I) (BOW, 2020).
Es la forma que describió Jerdon y a la que se refieren, salvo indicación contraria, casi todos los datos de esta ficha. La ficha original ilustraba esta tarjeta con la fotografía de un macho sobre la nieve rotulada «Monal Sclater - Arunachal Pradesh», y el libro de 2013 lista la subespecie nominal con ese mismo rótulo, aunque su área, según Birds of the World y Madge y McGowan, es mucho más amplia que Arunachal Pradesh (BOW, 2020; Hernández García, 2013; Madge y McGowan, 2002). Davison sugirió que la banda blanca de la cola, aquí más ancha, y las partes inferiores más pardo-leonadas en las poblaciones occidentales actuarían como señales de aislamiento visual frente al monal del Himalaya (Johnsgard, 1986).
Monal de Sclater oriental
Lophophorus sclateri orientalisDavison, 1974
Distribución
Noreste de Myanmar y suroeste (Birds of the World) u oeste (Madge y McGowan) de Yunnan. Según Davison, desde el alto Irrawaddy hacia el este hasta el noroeste de Yunnan y hacia el sur por la divisoria Shweli–Salween (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002).
Rasgos distintivos
Macho: franja blanca de la cola más estrecha, de 10–20 mm (10,5–20 mm en Madge y McGowan) frente a los 20–28 mm de la nominal; hembra: rabadilla y supracaudales grisáceas con un barrado blanquecino poco visible, en vez del barrado oscuro estrecho de la nominal (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002).
Sin valoración propia; la especie en Myanmar es poco común y no tiene registros recientes en el plan de acción de la UICN (Fuller y Garson, 2000).
La ficha original repite en la tarjeta de esta subespecie la misma fotografía de la nominal (el macho sobre la nieve) y, por error, le atribuye el texto de la clave dicotómica de las hembras de Lophophorus; ninguna de las fotografías de la web está identificada como orientalis, por lo que esta subespecie se presenta sin imagen propia. Madge y McGowan advierten de que ni esta subespecie ni la nominal están ampliamente aceptadas (Madge y McGowan, 2002). Su autor es G. W. H. Davison; la ficha original y el libro de 2013 escriben «Davidson» (Hernández García, 2013; Johnsgard, 1986).
Lophophorus sclateri arunachalensisKumar y Singh, 2004
Distribución
Noroeste de Arunachal Pradesh (distritos de Lower Subansiri y East Kameng, y posiblemente hasta la cordillera de Sela); Madge y McGowan citan además Tawang (BOW, 2020; Madge y McGowan, 2002; WII, 2007).
Rasgos distintivos
Macho: cola totalmente blanca, sin la banda castaña; en los ejemplares de Taksing (alto Subansiri) las plumas son blancas con una base oscura y, en algunas, una pequeña mancha castaña en el centro. Hembra: de plumaje general más oscuro (BOW, 2020; Madge y McGowan, 2002; WII, 2007).
Taxón de estatus incierto: Madge y McGowan lo tratan provisionalmente como una forma de la especie; el libro de 2013 recuerda que falta confirmación por ADN; ninguna área protegida de Arunachal Pradesh alberga esta forma (Hernández García, 2013; Madge y McGowan, 2002; WII, 2007).
Es la «subespecie occidental» de la que habla el Wildlife Institute of India, que además la cita como ejemplo de taxón que podría elevarse de rango cuando haya datos de campo y genéticos (WII, 2007). Para Madge y McGowan, la población de cola blanca podría ser una tercera subespecie, una especie nueva o un híbrido entre el monal del Himalaya y el de Sclater, y de ahí que la traten, hasta que haya resultados, como una forma del de Sclater (Madge y McGowan, 2002). La Lista de Aves del Mundo del COI la admite como subespecie (Wikipedia). El libro de 2013 describe la forma como la que tiene la mitad de las rectrices enteramente blancas, «sin la banda roja», y la ficha original, como de cola totalmente blanca; el libro escribe el nombre arunachelensis(Hernández García, 2013). La fotografía muestra un macho con la cola entera blanca, atribuido a esta forma por su rasgo característico; la ficha original no la rotula.
Clave dicotómica de los monales (según Johnsgard)
El libro de 2013 reproduce, y la ficha de la subespecie original recoge, la clave de Johnsgard para separar a los machos y a las hembras del género Lophophorus, incluidas las dos subespecies descritas del monal de Sclater (Hernández García, 2013; Johnsgard, 1986). Se presenta en forma de árbol de decisión; debajo se conserva el texto tal como figura en la ficha original.
Clave dicotómica de Lophophorus (según Johnsgard, 1986)
Partes superiores en su mayoría iridiscentes (machos).
Cola azul verdosa.L. lhuysii (monal chino)
Cola mayormente castaña, de menos de 250 mm.
Cola enteramente castaña; plumas de la cresta con el raquis desnudo.L. impejanus (monal del Himalaya)
Cola blanca y castaña; plumas de la cresta cortas y rizadas.
Banda blanca de la cola de 20–28 mm de ancho.L. s. sclateri (monal de Sclater occidental)
Banda blanca de la cola de 10–20 mm de ancho.L. s. orientalis (monal de Sclater oriental)
Partes superiores pardas y sin iridiscencia (hembras).
Dorso bajo blanco puro; ala de al menos 315 mm.L. lhuysii (monal chino)
Dorso bajo barrado de negro o de pardo; ala de menos de 300 mm.
Con cresta; partes inferiores de dibujo grueso; dorso bajo barrado de ante y negro.L. impejanus (monal del Himalaya)
Sin cresta; partes inferiores finamente moteadas; dorso bajo barrado de pardo y blanco.L. sclateri (monal de Sclater)
Texto de la clave en la ficha original, tal como se conserva
Los machos se diferencian por la banda blanca al final de la cola.
Claves para diferenciar las hembras «Lophophorus»: Hembras generalmente marrones y no iridiscentes.
> Parte baja de la espalda de color blanco. Las alas miden más de 31 cm. (lhuysii).
> Parte baja de la espalda barrada en blanco o marrón. Las alas miden menos de 30 cm.
> Con cresta. Parte trasera marcada con oscuras líneas gruesas. (impejanus).
> Sin cresta. Parte trasera finamente marcada en blanco y marrón (sclateri).
Variación individual y geográfica
Delacour considera que no hay variaciones geográficas constantes en el género y que las formas chambanus, mantoui y obscurus del monal del Himalaya son aberraciones melánicas individuales (Delacour, 1977). En el monal de Sclater, el mismo autor anota que en algunos ejemplares de las colinas Mishmi los finos tallos negros de las plumas blancas de la rabadilla son escasos o faltan (Delacour, 1977). Madge y McGowan advierten de que la anchura de la banda castaña de la cola varía mucho incluso dentro del área de la subespecie nominal (Madge y McGowan, 2002). Delacour no reconocía ninguna subespecie; Madge y McGowan dicen que las dos descritas no están ampliamente aceptadas y que la especie quizá sea monotípica, y el plan de acción de la UICN pide investigar su validez; Davison basó orientalis sobre todo en la anchura de la banda de la cola (Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002). El libro del autor del sitio coincide: a falta de un estudio de ADN, no se puede afirmar que estas subespecies sean correctas, porque es una zona con muchas variaciones geográficas (Hernández García, 2013).
No hay híbridos documentados del monal de Sclater. La tabla de hibridación de Johnsgard (1999), en la versión de del Campo, no incluye al monal de Sclater, y solo muestra para el monal del Himalaya algunos cruces reportados en cautividad con otros faisanes (del Campo, 2006; Johnsgard, 1999). Delacour señala, en general, que los monales se cruzan con facilidad con otros faisanes (orejudos, cheer, plateado, kalij, Lady Amherst y gallina doméstica) y que todos los híbridos son estériles (Delacour, 1977). Madge y McGowan mencionan que el monal de cola blanca de Arunachal Pradesh podría ser, hipotéticamente, un híbrido entre el monal del Himalaya y el de Sclater, hipótesis que ningún estudio ha probado (Madge y McGowan, 2002). Recomendación editorial: ninguna de estas combinaciones tiene valor para la conservación, y dado que las fuentes consultadas no documentan aves cautivas, no debe forzarse ningún cruce.
15
Cultura y curiosidades
Un nombre de homenaje, plumas para abanicos, un ave sagrada y un sello de Bután.
El monal de Sclater es, entre los faisanes del mundo, uno de los que menos huella han dejado en la cultura popular occidental, precisamente por lo difícil que ha sido verlo: su historia se cuenta sobre todo en los diarios de unos pocos exploradores y en los nombres que le dan los pueblos de las montañas donde vive (Beebe, 1918; Delacour, 1977; WII, 2007).
Un nombre de homenaje
Su nombre científico conmemora a Philip Lutley Sclater, uno de los grandes ornitólogos ingleses del siglo XIX y durante cuatro décadas secretario de la Sociedad Zoológica de Londres; fue también quien describió el okapi a la ciencia occidental en 1901 sin haber visto uno vivo (Wikipedia (P. Sclater)). El ejemplar vivo de Jerdon se envió al zoo de Londres, de cuya Sociedad Zoológica era entonces secretario (Beebe, 1918; Wikipedia (P. Sclater)).
Un ave sagrada y una pluma codiciada
En parte del noreste de la India se considera un ave sagrada y su caza está prohibida por un tabú, pero las plumas se buscan para ornamentos y abanicos (BOW, 2020; Fuller y Garson, 2000). Entre los mishmi de Arunachal se conoce con nombres como tratta, poa padio y pur di(WII, 2007). Y en el sureste del Tíbet los lobas la cazan con un ingenioso sistema de vallas y lazos de bambú que Ludlow describió en 1944 (Delacour, 1977).
En los libros: láminas y relatos de viaje
En el libro de Beebe de 1926 el macho aparece en una lámina pintada por G. E. Lodge (lámina XIV), y el de Delacour, ilustrado por J. C. Harrison, dedica a la especie la lámina cuatro (macho) y la lámina dos (hembra) (Beebe, 1926; Delacour, 1977). El relato de Beebe, con la escena de la cobra y la tarde en el bosque de bananos, sigue siendo la única descripción de un encuentro con la especie por parte de un observador occidental, y se ha reeditado en varios libros del autor (Beebe, 1918; Beebe, 1926; Beebe, 1927).
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
Beebe, W. (1927). Pheasant Jungles. Nueva York: G. P. Putnam's Sons (reed. World Pheasant Association, 1994).
Bibi, N., Gao, G., Liang, D. y Luo, X. (2024). High incubation attendance and nesting site constraints of the Sclater's monal in an alpine environment in southwestern China. Ecology and Evolution, 14(12): e70665. PubMed Central, PMC11617325 · doi:10.1002/ece3.70665
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
McGowan, P. J. K., Kirwan, G. M., de Juana, E. y Boesman, P. F. D. (2020). Sclater's Monal (Lophophorus sclateri), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/sclmon1 · doi:10.2173/bow.sclmon1.01
Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
Sathyakumar, S. y Sivakumar, K. (eds.) (2007). Galliformes of India. ENVIS Bulletin: Wildlife and Protected Areas, vol. 10 (1). Dehradun: Wildlife Institute of India. Incluye la ficha de especie del monal de Sclater y el capítulo sobre los faisanes de Arunachal Pradesh.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán monal de Sclater — Lophophorus sclateri. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/monalsclater.php.