Resumen
La especie de un vistazo.
El faisán prelado (Lophura diardi) es una especie de la familia Phasianidae y del género Lophura, propia del sudeste asiático y catalogada por la UICN como casi amenazada.
Es un faisán grande y esbelto, de unos 80 cm el macho y 60 cm la hembra, y la diferencia entre ambos se debe sobre todo a la cola. El macho es gris azulado, con la cara de piel roja muy extensa, un copete negro azulado que cae hacia atrás, un parche dorado en mitad de la espalda, la rabadilla azul con ribete carmesí, la cola larga y verde oscura, y las patas rojas; la hembra es castaña, con las alas y la parte central de la cola negras con un barrado blanco amarillento que no tiene ninguna otra hembra de su género (del Hoyo et al., 1994; Delacour, 1977; McGowan y Kirwan, 2020 (BOW)). Madge y McGowan lo resumen así: un macho gris, esbelto y de patas largas, rojo en la cara y con la cola oscura, y una hembra rufa de alas y cola muy barradas (Madge y McGowan, 2002).
Su nombre científico procede de una descripción de 1856 del príncipe Charles-Lucien Bonaparte, que en las Comptes rendus de la Academia de Ciencias de París creó el género Diardigallus y dio al ave el nombre de Diardigallus prelatus, citando como nombre de Temminck, «Euplocomus diardi», el que hoy se usa como epíteto; «Diard» es el naturalista francés Pierre-Médard Diard (1794–1863) (Avibase; Bonaparte, 1856; Jobling, 2010; Wikipedia (P.-M. Diard)). La primera lámina en color de un macho es de Gould (1860), a partir de un ave viva que el cónsul británico en Siam, sir Robert Schomburgk, obtuvo de una colección de un templo (Gould, 1860).
Vive en las selvas de tierras bajas del este de Myanmar (históricamente), el norte, el este y el sureste de Tailandia, Laos, Camboya y Vietnam, sobre todo en bosques siempreverdes, semisiempreverdes y de bambú, desde el nivel del mar hasta unos 800 m y excepcionalmente 1.150 m; BirdLife da una extensión de presencia de 1.040.000 km² (BirdLife, 2025; McGowan y Kirwan, 2020 (BOW)). Es el ave nacional «de facto» de Tailandia, donde se llama kai fa phaya lo (Wikipedia (en); Wikipedia (símbolos de Tailandia)).
La UICN la califica como casi amenazada (NT, evaluación de 2025, criterios A2cd+3cd+4cd): su población no está estimada con rigor, se infiere en descenso por la pérdida de bosque y la caza con lazos, y se calcula en «decenas de miles»; los textos más antiguos hablaban de 5.000–10.000 aves (BirdLife, 2025; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)). Las evaluaciones de 2011, 2012 y 2016 la dieron como de preocupación menor (BirdLife, 2025).
En cautividad es una especie relativamente común, llegada a Europa en 1862 y criada por primera vez en Francia en 1866; es manejable y resistente, aunque es sensible al frío y a la humedad, y el macho, con sus espolones, puede ser agresivo con otras aves y con la hembra (Delacour, 1977; Hernández García, 2013; Howman, 1993; Roles, 1976). El libro del autor la incluye en la categoría «seguimiento de población» de los programas regionales de cría (Hernández García, 2014).
- 80cmde longitud del macho (cola de 33–36 cm); la hembra, unos 60 cm
- 0–800mde altitud (BirdLife); excepcionalmente, 1.150 m
- 1.040.000km²de extensión de presencia (BirdLife, 2025); población sin estimar
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoNTCasi amenazado - Tendencia de la población decreciente · evaluación de 2025 · criterios A2cd+3cd+4cd · Lista Roja de la UICN (BirdLife International, 2025)
Ficha técnica
- Nombre científico
- Lophura diardi (Bonaparte, 1856); protónimo Euplocomus diardi (Avibase); en el texto de Bonaparte, Diardigallus prelatus (Avibase; BirdLife, 2025; Bonaparte, 1856; Hernández García, 2013)
- Clasificación
- Orden Galliformes · familia Phasianidae · género Lophura Fleming, 1822 (Beebe, 1921; BirdLife, 2025; Hernández García, 2013; Johnsgard, 1986)
- Subespecies
- ninguna: especie monotípica (BirdLife, 2025; Hernández García, 2013; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW))
- Nombres comunes
- ES faisán prelado · faisán siamés (BOW, Avibase) · faisán espalda de fuego siamés · EN Siamese Fireback · Diard’s Fireback · FR faisan prélat · DE Prälatfasan · IT fagiano prelato (libro del autor); «dorso di fuoco siamese» (Avibase) · PT faisão-prelado · TH ไก่ฟ้าพญาลอ (kai fa phaya lo) (Avibase; Hernández García, 2013; Madge y McGowan, 2002; Wikipedia (en); Wikipedia (th))
- Longitud total
- ♂ c. 80 cm; ♀ c. 60 cm (Delacour, 1977; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW))
- Peso
- ficha original: ♂ 900–1.000 g, ♀ 600–700 g; BOW: ♂ 1.420 g (un ejemplar), ♀ 680–1.025 g (Hernández García, 2013; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW))
- Hábitat
- Bosque de tierras bajas: siempreverde, semisiempreverde, de bambú, secundario y matorral, a menudo junto a caminos y pistas forestales (BirdLife, 2025; Delacour, 1977; McGowan y Kirwan, 2020 (BOW))
- Distribución
- Tailandia (BirdLife: noreste y sureste; BOW: norte, centro y este), Laos, Camboya y Vietnam; históricamente, el este de Myanmar (BirdLife, 2025; McGowan y Kirwan, 2020 (BOW))
- Altitud
- 0–800 m; ocasionalmente hasta 1.150 m (BirdLife, 2025); en Khao Yai se han registrado más arriba de 800 m (Round y Gale, 2008; Suwanrat et al., 2014)
- Puesta
- 4–8 huevos de color rosa pálido, redondeados, de unos 48 × 38 mm; en libertad, media de 6,4 huevos (n = 18 nidos) (Delacour, 1977; McGowan y Kirwan, 2020 (BOW); Suwanrat et al., 2014)
- Incubación
- 23–24 días en libertad; 24–25 días en cautividad (Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; McGowan y Kirwan, 2020 (BOW); Suwanrat et al., 2014)
- Madurez
- plumaje adulto en el primer año; cría habitual a partir del tercero, aunque a veces fértiles en el segundo (del Campo, 2006; Delacour, 1977; Howman, 1993; Johnsgard, 1986)
- Estado de conservación
- Casi amenazado (NT; 2025, A2cd+3cd+4cd) (BirdLife, 2025)
- Población
- sin estimar con rigor («decenas de miles»; BirdLife, 2025); 5.000–10.000 aves (Madge y McGowan, 2002; BOW) (BirdLife, 2025; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW))
- Protección
- no figura en CITES; presente en varias áreas protegidas de Tailandia, Laos, Camboya y Vietnam (BirdLife, 2025; CITES (Species+); McGowan y Kirwan, 2020 (BOW))
- Cautividad
- relativamente común; «seguimiento de población» en el libro del autor; primera cría en Francia en 1866 (Delacour, 1977; Hernández García, 2014; Howman, 1993)
Sistemática y nomenclatura
Un nombre que Temminck no llegó a publicar, un género creado en su honor por Bonaparte y un epónimo, Diard, que recorrió Cochinchina antes de que el ave tuviera nombre.
El faisán prelado pertenece al género Lophura, el de los faisanes de espalda de fuego, plateados y afines. Bonaparte lo describió en 1856 sobre aves del Museo de Leiden, bajo el nombre Diardigallus prelatus, aunque el epíteto que hoy se usa, diardi, es el que Temminck le había puesto en manuscrito y que Bonaparte cita en el mismo párrafo; la especie es monotípica (Avibase; Bonaparte, 1856; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)).
Posición taxonómica
| Rango | Taxón |
|---|---|
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Género | Lophura Fleming, 1822 |
| Especie | Lophura diardi (Bonaparte, 1856) |
| Subespecies | ninguna (monotípica) |
El autor va entre paréntesis porque Bonaparte describió la especie en otros géneros, Euplocomus (nombre de Temminck) y Diardigallus; la lista de BirdLife, Avibase y la taxonomía de esta guía dan «(Bonaparte, 1856)» (Avibase; BirdLife, 2025; del Hoyo et al., 1994). El género Lophura lo propuso Fleming en 1822 en The Philosophy of Zoology, según Beebe, que incluye a Diardigallus Bonaparte entre los sinónimos del género (Beebe, 1921).
Origen del nombre
El género Lophura viene del griego lophos, «cresta», y oura, «cola» (Jobling), aunque Beebe lo explica como «cola espesa o con cresta» (λοφουρος, «bushy or crested tail») (Beebe, 1921; Jobling, 2010). El libro del autor y la ficha original dicen que Euplocomus, el género con el que se describió la especie en su forma «Euplocomus diardi», alude a su cresta; Jobling da Euplocomus (sinónimo de Lophura) del griego euplokamos, «de buenos rizos» (Hernández García, 2013; Jobling, 2010).
El epíteto diardi honra a Pierre-Médard Diard (1794–1863; Jobling escribe 1795), naturalista francés que trabajó para la Compañía holandesa de las Indias Orientales; Beebe lo llama «el explorador francés M. Diard» (Beebe, 1921; Jobling, 2010; Wikipedia (P.-M. Diard)). Bonaparte lo explica con claridad: ningún viajero merecía más que Diard dar su nombre a una especie nueva, y una torpeza había impedido hasta entonces que se le hiciese justicia, de modo que dedicaba su nombre, como género, al «magnífico gallinaceo» (Bonaparte, 1856). Del género Diardigallus, Jobling dice que viene del nombre específico Euplocomus diardi y del latín gallus, «gallo» (Jobling, 2010).
El nombre español «prelado» y el francés «prélat» vienen de prelatus («praelatus», en la grafía de Beebe, Gould y Elliot). Bonaparte da dos motivos: el color violeta que predomina en el ave, «o al menos que salta a los ojos menos exigentes», y la preferencia de que es digna esta nueva especie (Bonaparte, 1856). Jobling define prelatus como «mostrado, sacado a la luz» (de praeferre) (Jobling, 2010). La ficha original y el libro del autor lo explican de otro modo: Euplocomus praelatus haría honor, con su plumaje, a los más altos dignatarios eclesiásticos (Hernández García, 2013).
Nombres comunes
| Idioma | Nombre | Observaciones |
|---|---|---|
| Español | Faisán prelado | la guía y su taxonomía; «faisán siamés» en HBW, Avibase y Wikipedia en español; «espalda de fuego siamés», «lomo de fuego siamés» y «perlado» en el criadero Chintaguay (Avibase; del Campo, 2006; del Hoyo et al., 1994; Hernández García, 2013; Wikipedia (es)) |
| Inglés | Siamese Fireback | también «Diard’s Fireback»; Beebe: «Siamese Crested Fireback»; Howman: «Siamese Fireback Pheasant» (Beebe, 1921; Hernández García, 2013; Howman, 1993; Madge y McGowan, 2002) |
| Francés | Faisan prélat | Delacour, Johnsgard, HBW y Wikipedia (del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Wikipedia (fr)) |
| Alemán | Prälatfasan | libro del autor y Avibase; Beebe: «Praelat»; Johnsgard: «Praelat, Pralatfasan» (Avibase; Beebe, 1921; Hernández García, 2013; Johnsgard, 1986) |
| Italiano | Fagiano prelato | libro del autor; Avibase da «dorso di fuoco siamese» (Avibase; Hernández García, 2013) |
| Portugués | Faisão-prelado | Avibase; para Portugal, «faisão-siamês» (Avibase) |
| Neerlandés | Kuifloze Prelaatfazant | Avibase (Avibase) |
| Sueco | Siamesisk eldrygg | Avibase (Avibase) |
| Japonés | Shimahakkan (シマハッカン) | Avibase (Avibase) |
| Chino | 戴氏火背鹇 | Avibase (en chino tradicional, 泰國火背鷴) (Avibase) |
| Tailandés | Kai fa phaya lo (ไก่ฟ้าพญาลอ) | Wikipedia y Avibase; la edición inglesa lo glosa como «faisán del señor Lo» (véase el capítulo de cultura) (Avibase; Wikipedia (en); Wikipedia (th)) |
| Siamés («native») | Kai-pha | Beebe, Johnsgard y Delacour; «Kaipha» en el criadero Chintaguay (Beebe, 1921; del Campo, 2006; Johnsgard, 1986) |
Avibase recoge además nombres en una veintena de idiomas más (afrikáans, búlgaro, catalán, checo, danés, esperanto, estonio, finés, croata, húngaro, lituano, noruego, polaco, ruso, eslovaco, esloveno, serbio, turco, ucraniano) (Avibase).
La descripción original (1856)
El príncipe Charles-Lucien Bonaparte describió el ave en la sesión de la Academia de Ciencias del 25 de agosto de 1856, en un texto titulado «Excursions dans les divers musées d’Allemagne, de Hollande et de Belgique, et Tableaux paralléliques», publicado en el tomo 43 de las Comptes rendus hebdomadaires (pp. 410–421; la descripción, en las pp. 414–415) (Bonaparte, 1856). Avibase da como referencia original «Compt. Rend. Hebd. Acad. Sci. 43 p. 415», como protónimo Euplocomus diardi y como localidad tipo «sin localidad indicada = Cochinchina»; HBW lo traduce como «sur de Vietnam» (Avibase; del Hoyo et al., 1994). Delacour da la misma cita y añade «ex Temminck; Cochin China» (Delacour, 1977).
El pasaje es breve. Bonaparte propone el género Diardigallus y explica que Temminck había querido dedicar a Diard un faisán con el nombre Phasianus diardi, pero que ese faisán era el faisán versicolor japonés de Vieillot; que el Alectrophasis figurado por Guérin con el nombre de Diard no se distingue del cuvieri; y que más recientemente se había querido llamar «diardi» al verdadero Acomus erythrophthalmus de Raffles. «Esperemos que, por fin, su nombre pueda quedar —escribe— y, además, como genérico, para el magnífico gallinaceo al que se lo imponemos, con la plena aprobación de los señores Temminck y Schlegel», y añade que el ave figura entre las pequeñas láminas que Schlegel preparaba para su manual de zoología (Bonaparte, 1856). Describe el género como «un verdadero gallo sin barbillas» (un véritable Coq sans pendeloques), que debe seguir inmediatamente a Gallus (Bonaparte, 1856).
La descripción del ave, en francés, dice que tiene las mejillas desnudas y rojas, una pequeña aigrette de un negro azulado en lo alto de la cabeza, la garganta de un negro aterciopelado que se extiende en collar por la nuca, el cuello, el dorso y el pecho de un verde plomizo, más claro por debajo y finamente vermiculados de negro y blanco, el vientre de negro azulado mezclado con púrpura, una placa de oro que atraviesa la parte baja de la espalda, las plumas siguientes rojas de cobre con barras de azul acero, las alas enteramente vermiculadas y como «ocelladas» por manchas violetas alargadas con borde blanco, y la cola, «completamente de gallo pero profundamente bifurcada», de un verde botella uniforme (Bonaparte, 1856). Bonaparte sitúa el ejemplar que describe en Leiden: Gould lo recuerda al decir que el nombre prelatus fue propuesto por Bonaparte «para ejemplares conservados en el Museo de Leiden» (Gould, 1860).
Sinonimia y combinaciones
| Nombre | Autor y año | Observaciones |
|---|---|---|
| Euplocomus diardi | Bonaparte, 1856 (ex Temminck, manuscrito) | protónimo según Avibase, HBW y Delacour; en Bonaparte, nombre de Temminck (Avibase; Bonaparte, 1856; del Hoyo et al., 1994; Delacour, 1977) |
| Diardigallus prelatus | Bonaparte, 1856 | el nombre que Bonaparte da al ave y género nuevo; Gould lo escribe Diardigallus prælatus y Beebe Diardigallus praelatus (Beebe, 1921; Bonaparte, 1856; Gould, 1860) |
| Gallus diardi | Temminck (manuscrito), en Schlegel, Handl. d. Dierk., 1857, p. 379 | según Beebe y Elliot (Beebe, 1921; Elliot, 1872) |
| Diardigallus fasciolatus | Blyth, 1858 (J. As. Soc. Bengal 27) | descrito en una carta a Inglaterra, a partir de aves llegadas a Calcuta; debía ceder ante prelatus (Gould). Beebe da la p. 280; Gould, la p. 115 (Beebe, 1921; Elliot, 1872; Gould, 1860) |
| Diardigallus crawfurdi | Schomburgk, 1862; antes Phasianus crawfurdii Gray (en Griffith) | basado en un dibujo de la colección de Crawfurd; Gould lo tuvo por la hembra, Elliot por una hembra de lineatus y Beebe por un híbrido de Gennaeus; véase la historia (Beebe, 1921; Elliot, 1872; Gould, 1860) |
| Acomus crawfurdi | Bonaparte, 1856 | la hembra, según Elliot (en el texto de 1856, Bonaparte pone otro crawfurdi, de Borneo, en una nota) (Bonaparte, 1856; Elliot, 1872) |
| Euplocamus (Diardigallus) praelatus | Sclater, 1863 (Proc. Zool. Soc. y List of Phasianidae) | Sclater y Wolf, Zoological Sketches, 2.ª serie, 1867; Gray, 1867; Schomburgk, Ibis, 1864 (Beebe, 1921; Elliot, 1872) |
| Euplocomus praelatus | Elliot, 1872, Monograph of the Phasianidae, vol. 2, lám. 24 | Elliot escribe Euplocamus en el texto y Euplocomus en la lámina (Beebe, 1921; Elliot, 1872) |
| Lophura diardi | Grant, 1893; Beebe, 1921 | combinación actual, tal como la usan Beebe, Delacour, Johnsgard y las listas modernas (Beebe, 1921; BirdLife, 2025; Delacour, 1977; Johnsgard, 1986) |
| Diardigallus diardi | Sharpe, 1899 | cuando el género Diardigallus se mantenía aparte (Beebe, 1921) |
La lista procede de las sinonimias de Beebe y de Elliot; no se han comprobado una a una en las fuentes originales, salvo la de Bonaparte y la de Gould.
Blyth y el nombre «fasciolatus»
Gould cuenta, en el texto de su lámina, que casi a la vez que él recibía el ave de Siam, el zoólogo Edward Blyth escribió a Inglaterra describiéndola a partir de ejemplares recién llegados a Calcuta y diciendo que le había dado el nombre de Diardigallus fasciolatus, «nombre específico que debe, sin embargo, ceder ante el de prelatus, propuesto antes por el difunto príncipe Charles Bonaparte para ejemplares del Museo de Leiden» (Gould, 1860). Gould añade que Blyth tuvo delante el ave viva, de la que dedujo que las plumas de la cola se vuelven hacia fuera, como en el gallo lira, y que Blyth proponía además un género nuevo, Diardigallus (Gould escribe «Deardigallus» en un lugar), al que Bonaparte «ha seguido en su estela» (Gould, 1860). El orden cronológico que reconoce Gould es el de Bonaparte (1856) primero y Blyth después; según Beebe y Elliot, Blyth publicó el nombre en 1858 (Beebe, 1921; Elliot, 1872; Gould, 1860).
Cómo ha cambiado su género
Elliot (1872) mantuvo la especie en Euplocamus («intermedia entre los gallos y los verdaderos faisanes») y consideró innecesario el género Diardigallus, que a lo sumo podría valer como subgénero (Elliot, 1872). Gould opinaba que estaba muy cerca de Euplocomus y que apenas se podía separar de él (Gould, 1860). Beebe (1921) agrupó a los faisanes de espalda de fuego en Lophura por la cresta y el dorso metalizado y reconoció que diardi merecía «una separación subgenérica acusada, aunque solo fuese por el plumaje, casi único, de la hembra», y la señaló como la especie más aberrante del género (Beebe, 1921). Delacour y Johnsgard la mantienen en Lophura, y las listas modernas, también (Avibase; BirdLife, 2025; Delacour, 1977; Johnsgard, 1986).
Un trabajo genético reciente, citado por BOW, no halló pruebas de que Lophura sea polifilético; identificó cinco clados, uno de ellos formado por esta especie y L. ignita (con L. rufa) (McGowan y Kirwan, 2020 (BOW)). Se menciona el trabajo sin que en la parte leída figure su referencia.
Parientes próximos
| Dato | Fuente |
|---|---|
| Clado genético con L. ignita y L. rufa (el noble y el noble malayo de esta guía, como especies o subespecies según las listas) | BOW (McGowan y Kirwan, 2020 (BOW)) |
| Pariente cercano de los faisanes de espalda de fuego con cresta y sin ella; su área de distribución no está lejos de la de rufa; el de espalda de fuego sin cresta de Borneo sería el más generalizado, y podría imaginarse como antecesor del plumaje del prelado | Johnsgard (Johnsgard, 1986) |
| Postura y proporciones parecidas a las del kalij: forma «transicional» entre los kalijes y los faisanes de espalda de fuego típicos | Johnsgard (Johnsgard, 1986) |
| La hembra recuerda a la del faisán de Swinhoe, que tiene patas más cortas y la parte superior moteada | Madge y McGowan; Johnsgard (Johnsgard, 1986; Madge y McGowan, 2002) |
| Intermedia entre los gallos y los verdaderos faisanes | Elliot, 1872 (Elliot, 1872) |
El pariente que Bonaparte nombra en su texto es Gallus: «cousin germain des Coqs» (Bonaparte, 1856).
Localidad tipo
Avibase: «sin localidad indicada = Cochinchina»; HBW: «sur de Vietnam»; Delacour: Cochinchina (Avibase; del Hoyo et al., 1994; Delacour, 1977). Bonaparte no da localidad y describe aves de Leiden (Bonaparte, 1856; Gould, 1860). Diard, el homenajeado, estuvo en Cochinchina (Wikipedia en inglés dice que en la primavera de 1824 se le suponía en Cochinchina; la francesa, que tras 1821 estuvo en Cochinchina, Annam y Camboya y fue de los primeros europeos en visitar Angkor) (Wikipedia (P.-M. Diard)). Ninguna de las fuentes leídas dice que Diard recogiera el ejemplar tipo.
Historia
Un ave sin nombre publicado, una lámina de Gould tomada de un ejemplar de templo y un faisán llegado a París como regalo del rey de Siam.
La historia del faisán prelado empieza en los museos europeos: Temminck lo conoció, lo llamó en manuscrito y no llegó a publicarlo; Bonaparte lo describió en 1856 y Gould lo dibujó en 1860 a partir de un ejemplar que sir Robert Schomburgk obtuvo en Siam. Desde la década de 1860 se cría en zoológicos y colecciones de Europa (Bonaparte, 1856; Delacour, 1977; Elliot, 1872; Gould, 1860).
Cronología
- El primer ejemplar que llegó a Europa, según Elliot, se envió a Temminck, en el Museo de Leiden, que le dio el nombre manuscrito Gallus diardi; Bonaparte habla de ejemplares del Museo de Leiden y de la aprobación de Temminck y Schlegel (Bonaparte, 1856; Elliot, 1872; Gould, 1860).
- Bonaparte lee ante la Academia de Ciencias de París su texto sobre los museos de Alemania, Holanda y Bélgica: crea el género Diardigallus y llama Diardigallus prelatus al faisán (Bonaparte, 1856).
- Schlegel incluye el ave, con el nombre Gallus diardi de Temminck, en su manual de zoología (lámina V, fig. 55), según Beebe (Beebe, 1921).
- Edward Blyth publica en el Journal of the Asiatic Society of Bengal el nombre Diardigallus fasciolatus para aves llegadas a Calcuta; Gould dice que Blyth escribió a Inglaterra y que su nombre debía ceder ante el de Bonaparte (Beebe, 1921; Elliot, 1872; Gould, 1860).
- John Gould publica, en la parte XII del volumen VII de The Birds of Asia, la lámina 21 con el macho y el texto de Schomburgk; el ave procedía de un templo siamés (wat) (Gould, 1860).
- Schomburgk precisa que la especie vive en los estados shan, al este de Kieng-mai (Chiang Mai), en Muang Nan y Muang Phi, y describe su Diardigallus crawfurdi (Proc. Zool. Soc.); el rey de Siam envía al Museo de París un ejemplar o una pareja, según los autores (Delacour, 1977; Elliot, 1872; Howman, 1993).
- Sclater publica el ave en su List of Phasianidae (1863); el Jardín de Aclimatación de París recibe un macho en 1863 y una pareja de Saigón en 1864; Schomburgk cuenta en The Ibis (1864) la vida en cautividad de un macho y dos hembras (Beebe, 1921; Delacour, 1977; Elliot, 1872).
- Primeras crías en cautividad, en el Jardín de Aclimatación: tres machos y cinco hembras en 1866; cinco machos y dos hembras en 1867; la especie se reparte pronto por Europa (Delacour, 1977).
- Daniel Giraud Elliot publica la lámina XXIV de su monografía, con el macho y la hembra, y dice que la especie ya ha criado en casi todos los zoológicos de Inglaterra y del continente y que «ya no se debe considerar rara» (Elliot, 1872).
- William Beebe, en el volumen II de su monografía, describe con detalle los plumajes y la muda del ala de un macho joven; las láminas XXXV (de G. E. Lodge) y XXXVI (de H. Grønvold) son de esta especie (Beebe, 1921).
- Siguen llegando a Europa aves capturadas en Indochina (Delacour, 1977).
- Harrison publica una nota sobre la exhibición del faisán prelado, citada por HBW (del Hoyo et al., 1994).
- El Consejo de Ministros tailandés refrenda, según Wikipedia, que sea el ave nacional «de facto» de Tailandia (Wikipedia (símbolos de Tailandia)).
- Suwanrat y sus colegas siguen 21 nidos en la Reserva de la Biosfera de Sakaerat (Tailandia) (Suwanrat et al., 2014).
- BirdLife evalúa de nuevo la especie como casi amenazada (A2cd+3cd+4cd) (BirdLife, 2025).
Descubrimiento y descripción
Fue descrito inicialmente como Euplocomus diardi y, bajo el nombre de Diardigallus praelatus (Bonaparte, 1856), llegó a considerarse el único representante de un género propio, Diardigallus. Beebe, que prefería agrupar a los faisanes de espalda de fuego en Lophura por la cresta y el dorso metalizado, reconocía sin embargo que el prelado merecía al menos una separación subgenérica. Su nombre local en Siam, recogido por este autor, era «kai-pha», y en inglés se le llamaba también faisán de Diard (Diard's fireback). (Beebe, 1921; Bonaparte, 1856; Hernández García, 2013; Jobling, 2010)
El primer macho figurado, publicado por Gould en 1860 en Birds of Asia, procedía de un ejemplar vivo que el cónsul general británico en Siam, sir Robert Schomburgk, obtuvo de una pequeña colección de animales de un templo (wat) siamés. Gould añadió como supuesta hembra el dibujo de un ave de Ava (Birmania) que, según Beebe, era en realidad un mal representante de un joven híbrido; y las primeras ilustraciones del macho erraron además al dibujar la cola, bien con las plumas vueltas hacia fuera, bien cortas y poco curvadas, cuando en realidad se mantienen muy juntas y describen una curva elegante hacia abajo. (Beebe, 1921; Gould, 1860)
Beebe cuenta que Temminck fue el primero en dar nombre al ave, pero que como nunca lo publicó «no contó para nada»; Elliot dice lo mismo: el primer ejemplar que llegó a Europa se envió a Temminck en Leiden, que le dio el nombre manuscrito de Gallus diardi, nombre que, «por estar solo en manuscrito, cede ante el que le impuso el príncipe Bonaparte» (Beebe, 1921; Elliot, 1872). Bonaparte, en 1856, dice que el nombre Phasianus diardi de Temminck se había aplicado por error a otro faisán y que esperaba que el nombre de Diard quedase, ahora como género, para el nuevo ave (Bonaparte, 1856). La descripción de Bonaparte y su discusión están en el capítulo de sistemática.
Gould tuvo noticia del ave por un dibujo de Finlayson, hecho en Siam cuarenta años antes, que halló entre los dibujos de la Casa de la India Oriental; sacó un calco, lo envió a Schomburgk y le pidió que intentara conseguir un ejemplar; Schomburgk respondió en el siguiente correo que había visto un ave viva en una colección siamesa y que se la enviaría (Gould, 1860). En su carta, Schomburgk cuenta que se enteró de que había animales vivos en un templo, que le llamó la atención «un magnífico faisán», que le dijeron que venía «del país de arriba» (la respuesta habitual a cualquier pregunta sobre dónde viven aves o animales), que pagó el precio que pedían, y que el ave era tan mansa que le dio escrúpulo matarla, de modo que la hizo ahogar «de la manera más suave» (Gould, 1860). El dueño la había alimentado con alevines de pescado, gambas y camarones en lugar de cereales (Gould, 1860). Schomburgk no vio el ave en la colección del rey; el primer ministro (el Kalahome) le dijo que se hallaba en Rapri o Raxaburi (según el mapa de Bowring, a unos 13° 33′ N y 100° E; probablemente la actual Ratchaburi) (Gould, 1860). Más tarde, en las Proceedings of the Zoological Society de 1862, precisó que el hábitat era «los estados shan, al este de Kieng-mai, en Muang Nan, Muang Phi, etc.» (Elliot, 1872).
Por la misma época Blyth describió el ave a partir de ejemplares llegados a Calcuta y la bautizó Diardigallus fasciolatus; Gould anota que ese nombre debía ceder ante el de Bonaparte, propuesto antes. También se complicó la historia con el nombre Phasianus crawfurdii: en la edición de Griffith del Animal Kingdom de Cuvier, Gray describió un ave a partir de un dibujo que tenía Crawfurd, y Gould pensó que podía ser la hembra del prelado; Sclater lo dudaba, porque los ejemplares de Leiden que se decían hembras de esta especie no se parecían al dibujo (Gould, 1860). Gould incluyó en la lámina, «a lo lejos», una copia reducida del dibujo de Crawfurd «por si resultara ser una representación de la hembra»; la figura de color pardo es la aludida (Gould, 1860).
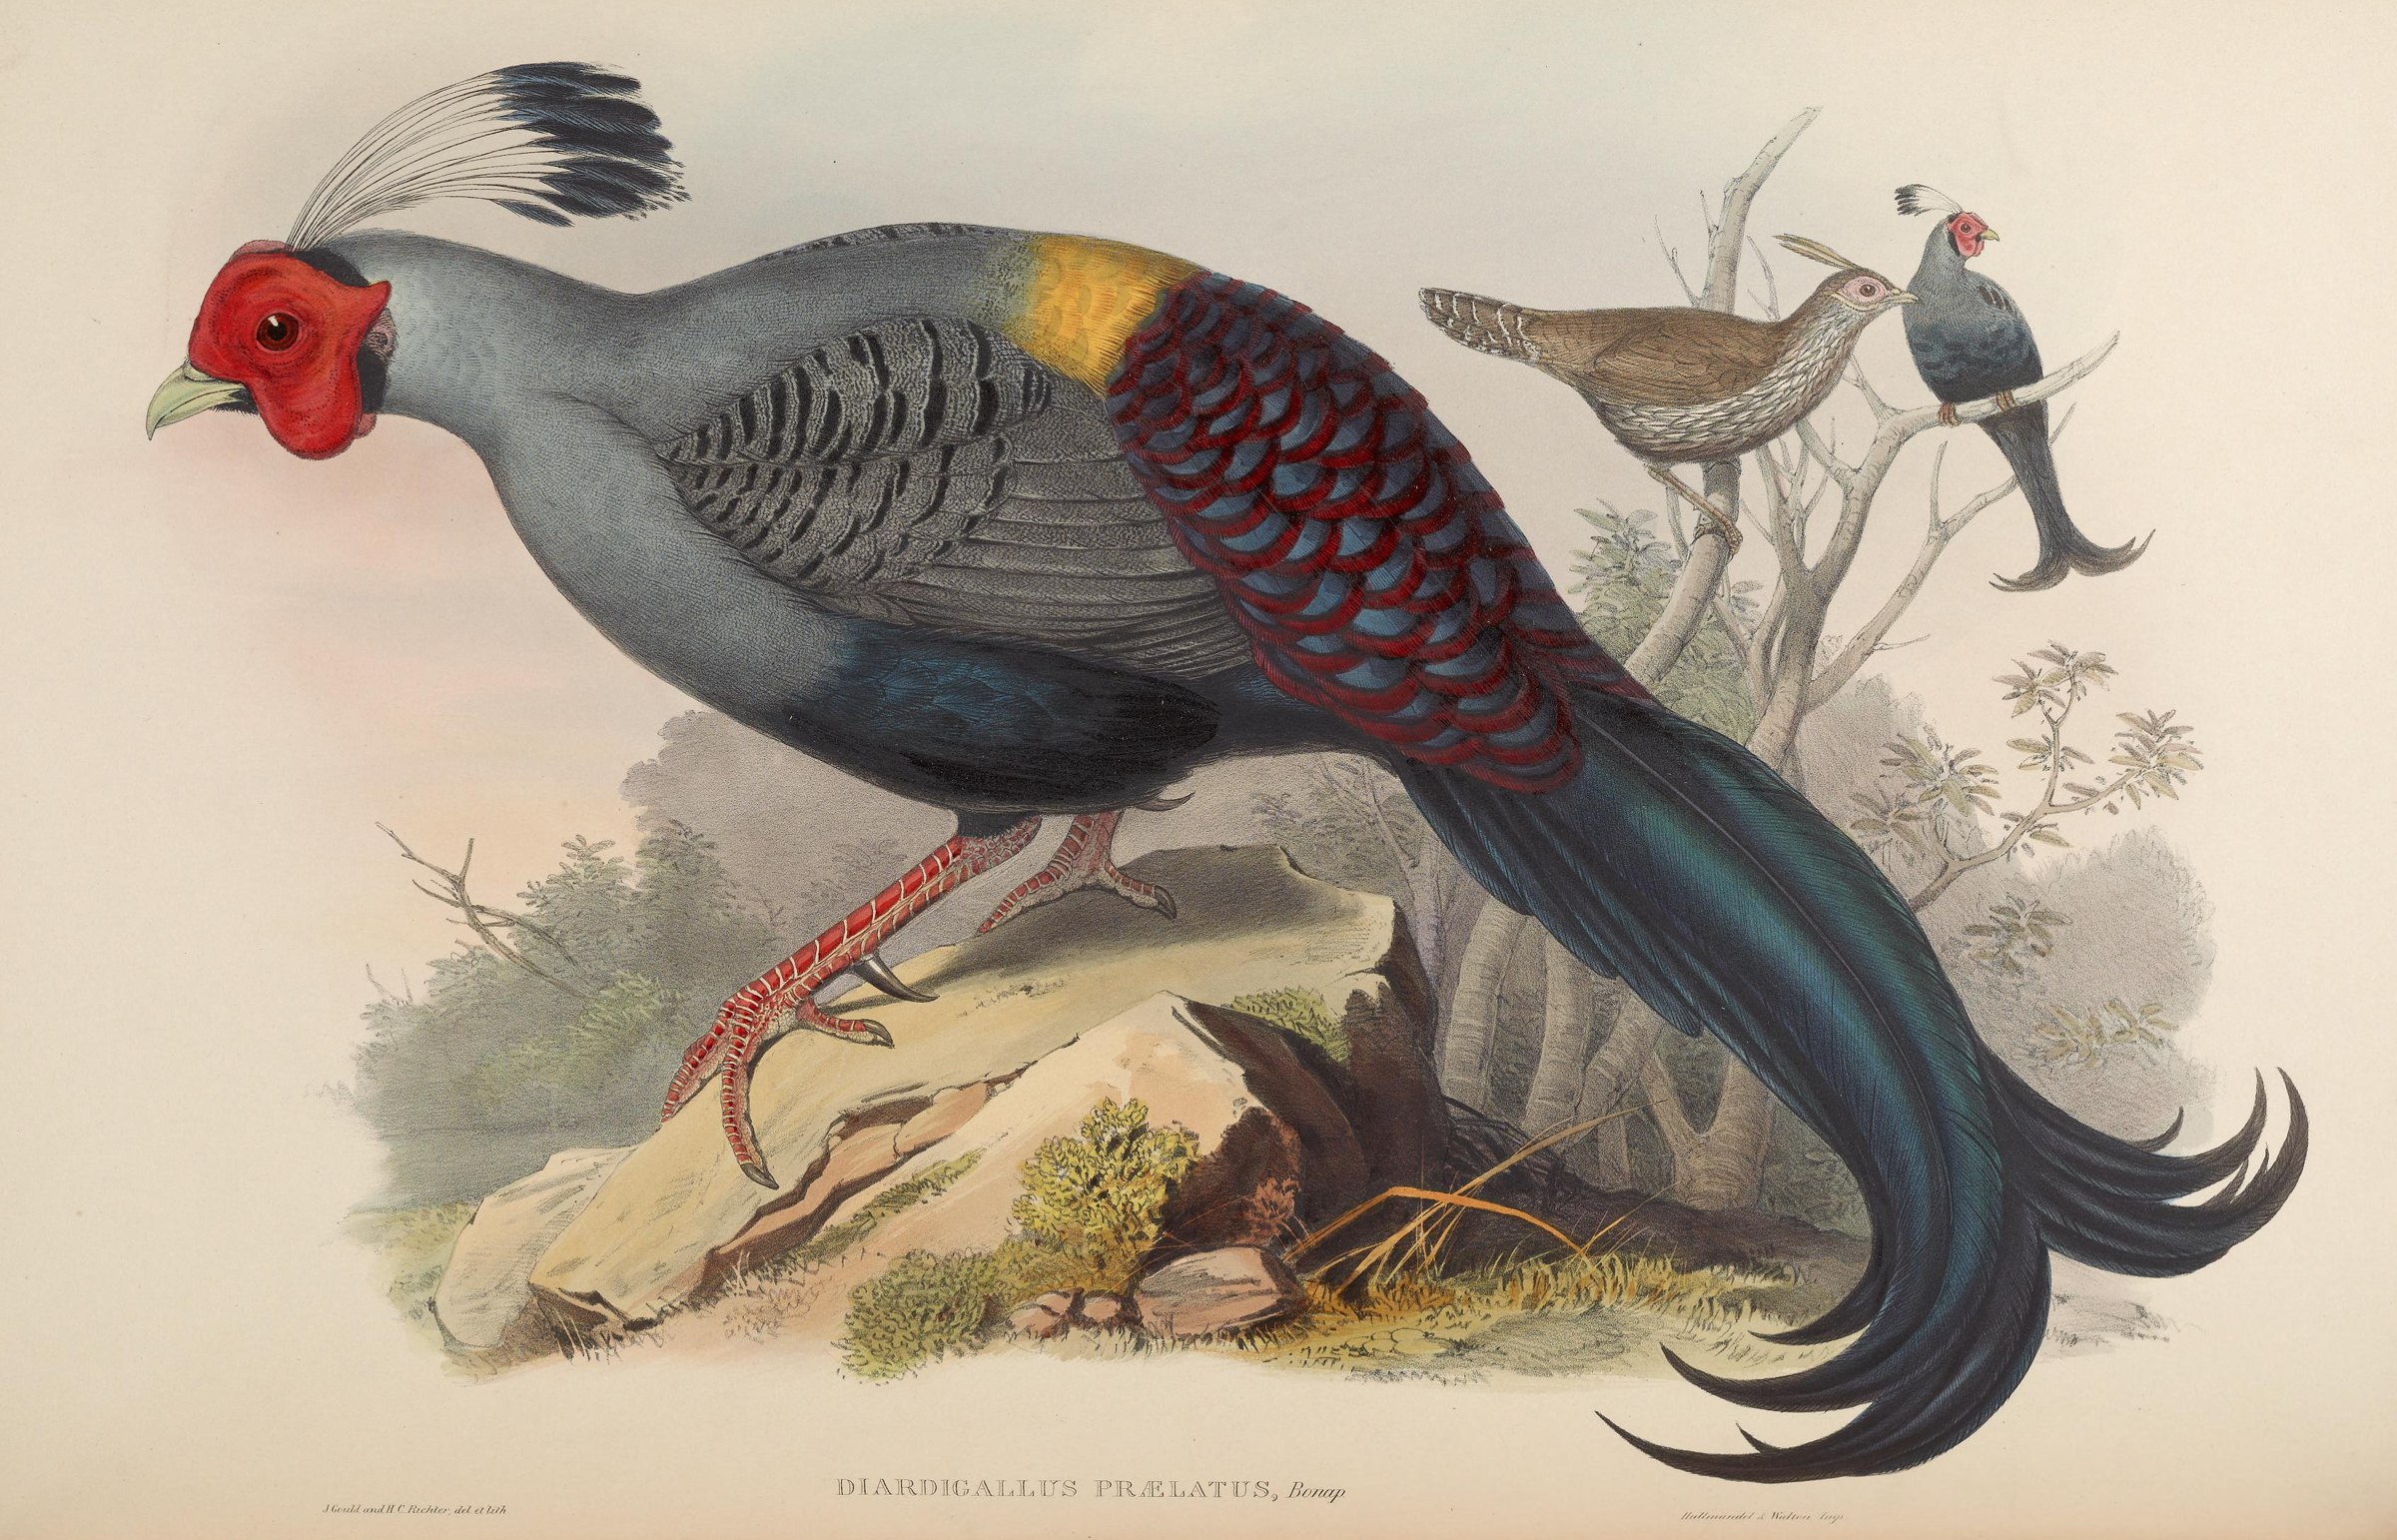
El plumaje de la lámina de Gould, con el macho posado sobre una roca y un fondo de ramas con dos pequeñas aves a lo lejos, es el de la lámina 21 del volumen VII de The Birds of Asia, dibujada y litografiada por Gould y H. C. Richter (Gould, 1860). Beebe critica que los primeros dibujos del macho erraron en la cola: Gould la dibuja vuelta hacia fuera, como en el gallo lira, y Elliot, en cambio, la hace corta y poco curvada, cuando en realidad las plumas están muy juntas y describen una curva elegante hacia abajo (Beebe, 1921). Elliot repite lo mismo de la lámina de Gould: el macho, en su estado natural, lleva la cola caída, como los otros faisanes, y no abierta hacia los lados (Elliot, 1872). Blyth había dicho, con el ave viva, que las plumas de la cola se vuelven hacia fuera; Gould comenta que, si fuese así, el ave se distinguiría de los Euplocomus, cuya cola se lleva vertical (Gould, 1860).
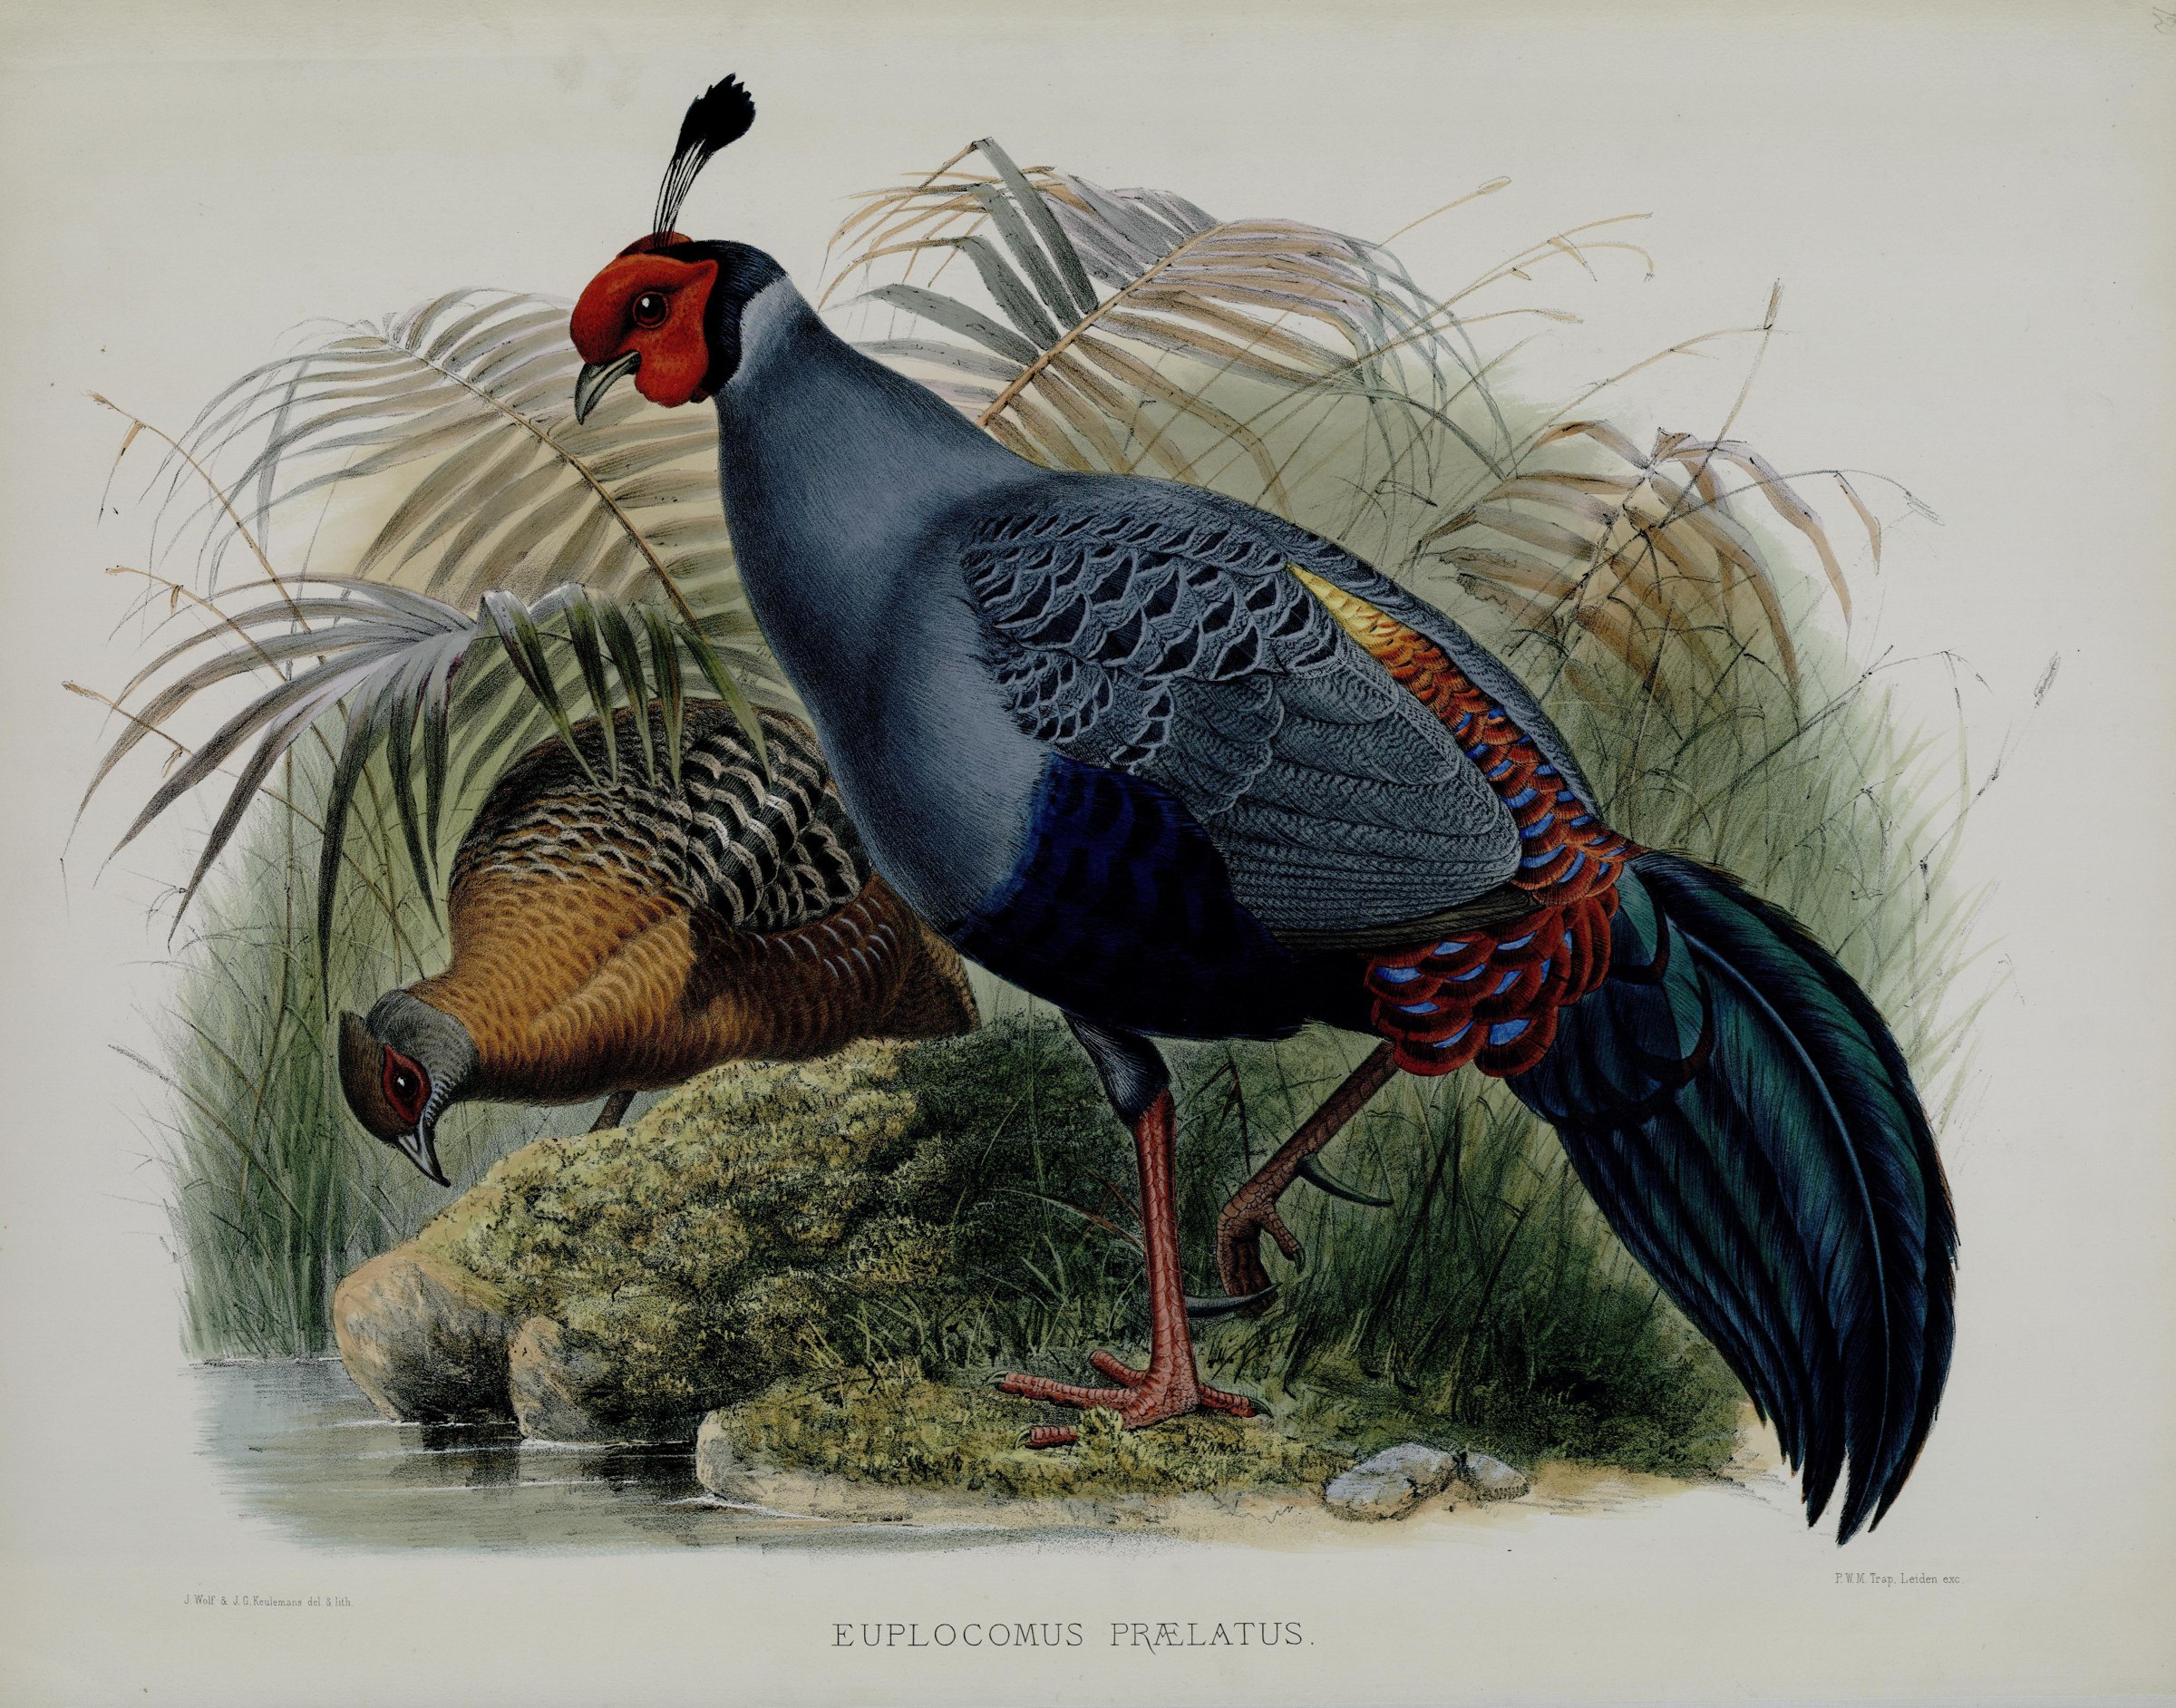
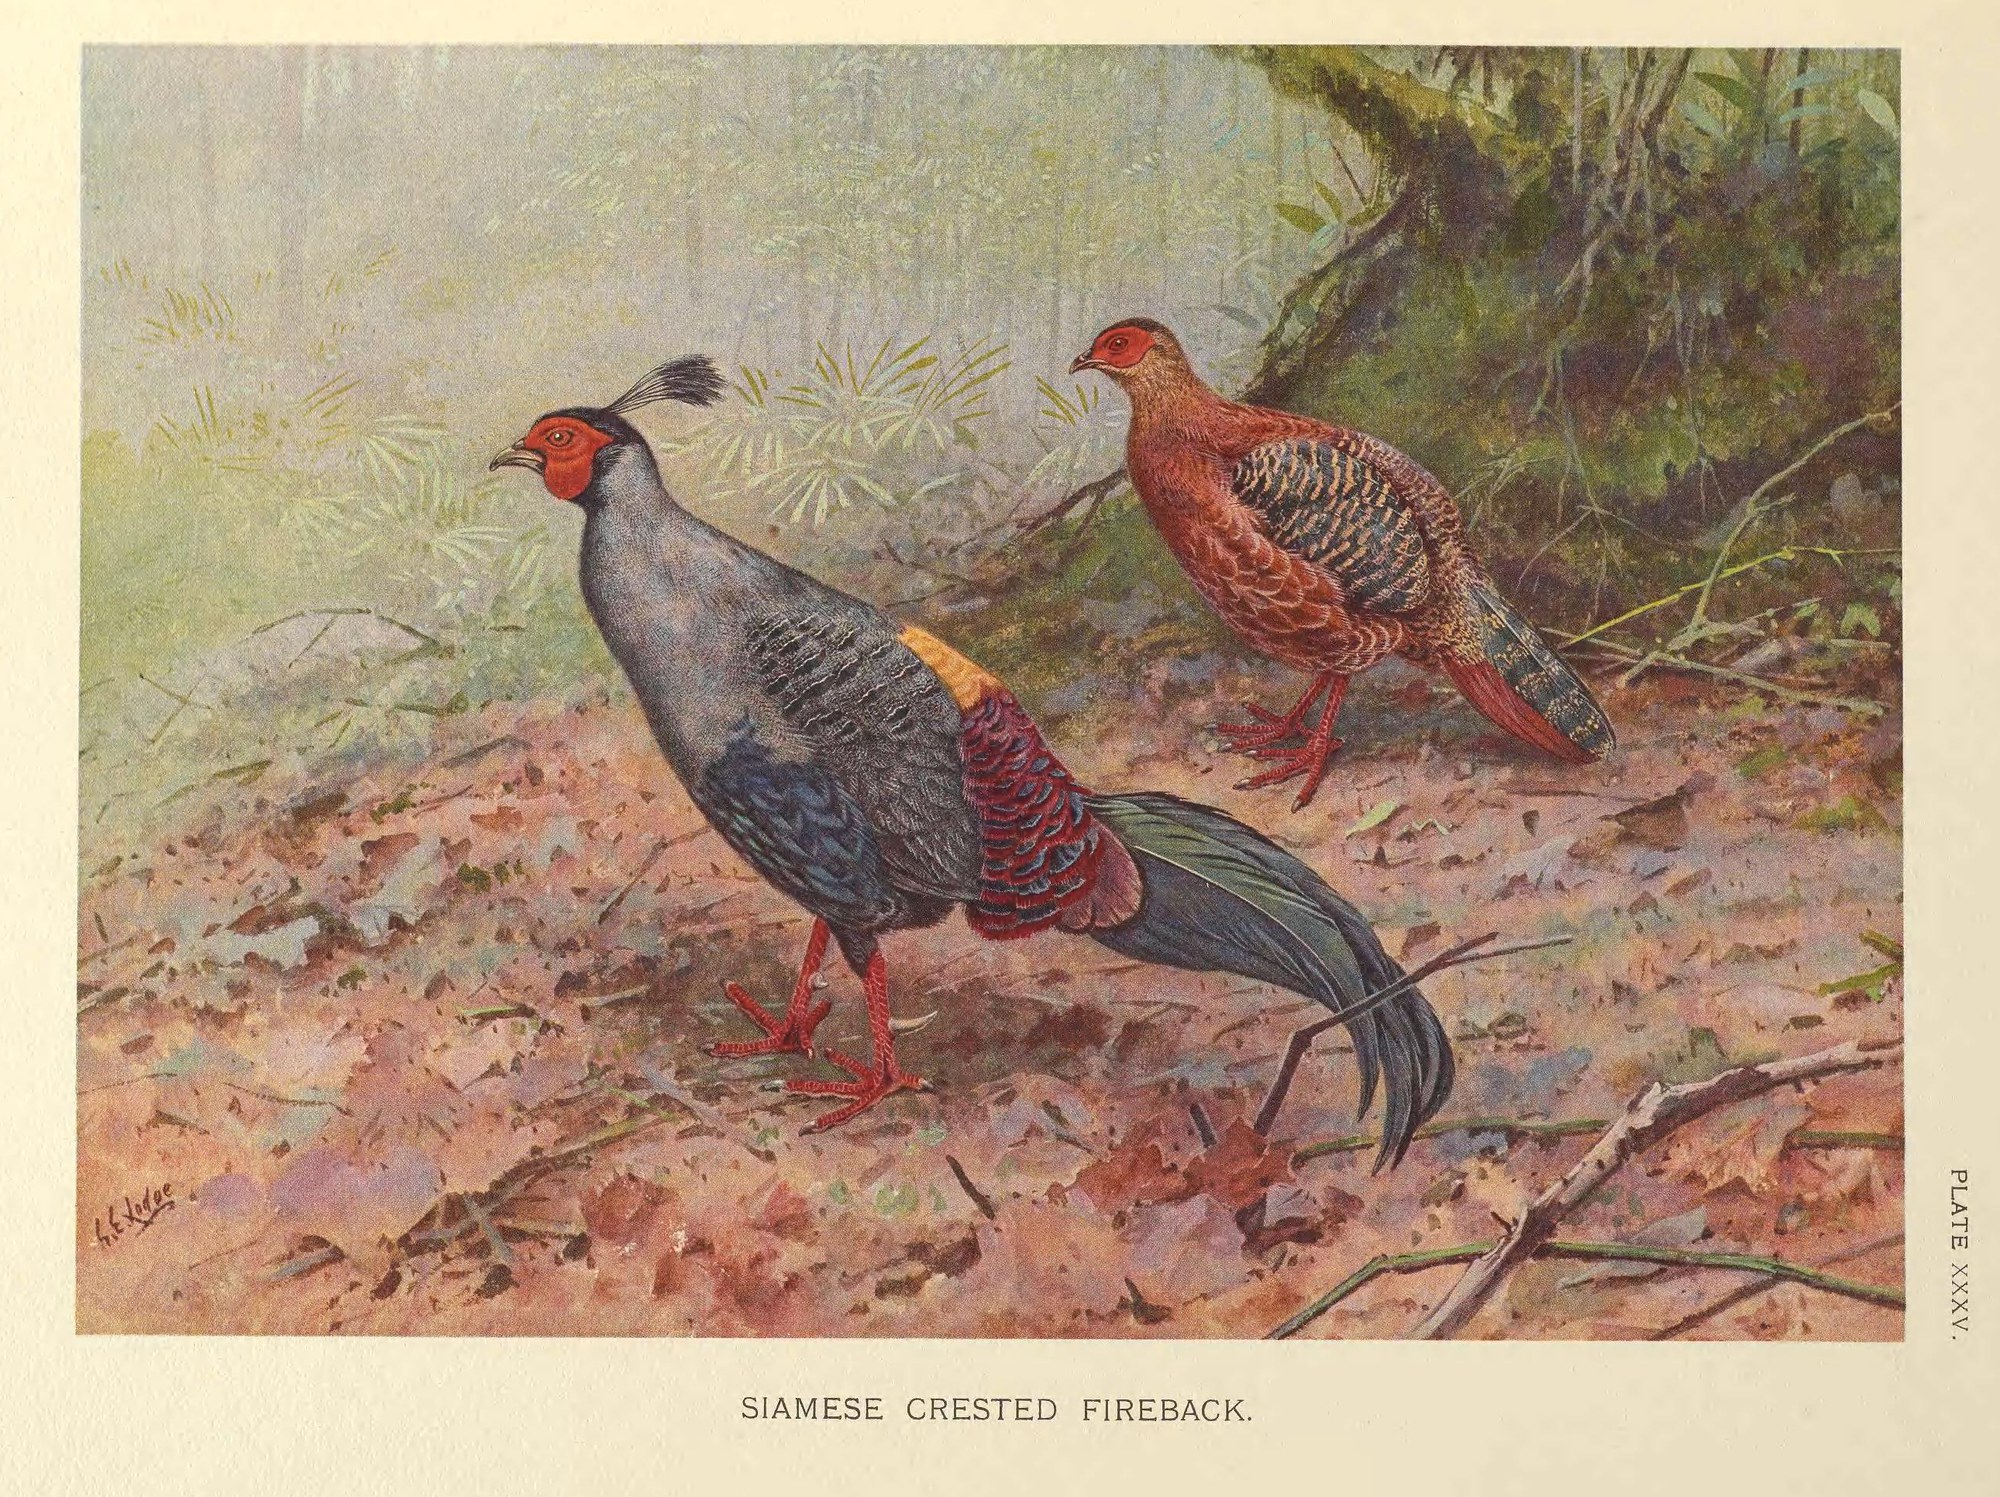
La lámina XXIV de Elliot (1872), dibujada por Joseph Wolf y J. G. Keulemans, muestra al macho, de pie sobre una roca musgosa junto al agua, y a la hembra agachada a su lado, entre palmas y hierbas (Elliot, 1872). Beebe corrige a Elliot: su macho tiene las plumas de la cola cortas y poco curvadas; su hembra es reconocible, pero con el cuello leonado pálido, no castaño, y buena parte del manto barrado en lugar de liso (Beebe, 1921). La lámina XXXV del volumen II de Beebe (1921), de George Edward Lodge, ofrece una pareja caminando entre la hojarasca (Beebe, 1921).
El primer prelado en Europa y las primeras crías
Las fuentes no coinciden en qué fue lo primero. Jean Delacour escribe que el primer prelado que llegó a Europa se envió al Museo de París como regalo del rey de Siam en 1862; Howman lo repite, con «una pareja» enviada por el rey de Siam al Museo de París en 1862, y Green-Armytage dice que el rey de Siam regaló prelados al Museo de París en 1862, marcando la primera aparición de la especie en Europa (Delacour, 1977; Green-Armytage, 2002; Howman, 1993; Howman, 1996). Elliot dice que el primer ejemplar fue el enviado a Temminck, en Leiden, y Gould tenía ya un ejemplar de Schomburgk en 1860 (Elliot, 1872; Gould, 1860).
Según Delacour, el Jardín de Aclimatación de París recibió un macho en 1863 y una pareja de Saigón en 1864, siguieron más en los años siguientes, y las primeras crías llegaron en 1866 (tres machos y cinco hembras) y 1867 (cinco machos y dos hembras); la especie se distribuyó pronto por Europa y, por ser prolífica, fácil de criar y muy bella, se asentó bien (Delacour, 1977). Howman repite que se criaron por primera vez en cautividad en Francia en 1866 (Howman, 1979; Howman, 1993; Howman, 1996). Delacour menciona un macho nacido en Villers en 1913 que acabó viviendo años en libertad en el parque de Clères, y que dio al autor «recuerdos amargos» por sus espolones, y dice que hasta 1940 se trajeron regularmente aves de Indochina capturadas en libertad (Delacour, 1977). Beebe, en 1921, dice que muchos prelados capturados por los siameses se llevaban al mercado de Bangkok, de donde llegaban a numerosos zoológicos y pajareras del mundo, y que la Sociedad Zoológica de Londres los había criado varias veces (Beebe, 1921).
Un prelado en una granja de Birmania
Elliot reproduce una carta a The Field firmada «Ornithognomon» sobre un prelado que su autor conservó cerca de un año (hasta julio de 1860) y que había recibido de una aldea siamesa o shan cerca de las fuentes del Houngthrau (unos 99° E, 15° 40′ N). Era tan manso que vagaba por el corral y se enfrentaba a todos los gallos, incluso a los de pelea birmanos, con los que salía siempre vencedor «incluso contra rivales de casi el doble de su peso»; por esas peleas, los criados del vecino le cortaron los espolones a ras, pero el ave no perdió el ánimo y, cuando los gallos lo vieron desarmado, «le pagaron con intereses los agravios anteriores», de modo que en una semana o dos casi no le quedaban plumas; en julio de 1860, entre palizas y muda, «se había convertido en una caricatura de sí mismo» y apareció ahogado en un pozo (Elliot, 1872). Su dueño lo describe, antes de la muda, como «el ave más perfectamente elegante que he visto jamás», que arrullaba y cloqueaba constantemente con voz dulce y melodiosa (Elliot, 1872). Es el origen del pasaje de Beebe citado en las secciones de reproducción y cautividad: Beebe lo atribuye a «un escritor de The Field» (Beebe, 1921; Elliot, 1872).
Historia reciente
En 1988 la UICN la incluyó entre las especies amenazadas (T); en 1994 y 1996, vulnerable; en 2000, de riesgo menor y casi amenazada; entre 2002 y 2008, casi amenazada; en 2011, 2012 y 2016, de preocupación menor; y en 2025, otra vez casi amenazada (BirdLife, 2025). La nota de Harrison de 1968 y las observaciones de campo de Deignan (1945), Riley (1938) y Baker (1928) son las que HBW y Johnsgard citan para la biología de la especie (del Hoyo et al., 1994; Johnsgard, 1986). Entre las investigaciones del siglo XXI, destacan las de Round y Gale (2008) en Khao Yai y las de Suwanrat y colaboradores (2014, 2019) en Sakaerat (Round y Gale, 2008; Suwanrat et al., 2014; Suwanrat et al., 2019).
Morfología y plumajes
Un macho gris perla con la espalda de fuego escondida bajo las alas, y una hembra de alas barradas que no se parece a ninguna otra del género.
El faisán prelado es un faisán grande y esbelto, de patas largas y cola larga curvada en el macho, con la cara de piel roja muy extensa, barbillas y un copete que cae hacia atrás. El macho es gris casi uniforme, con el vientre negro ribeteado de azul, un parche de oro en mitad de la espalda y una rabadilla azul con borde carmesí; la hembra es castaña con alas y cola central barradas de blanco amarillento (Delacour, 1977; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)).
El macho
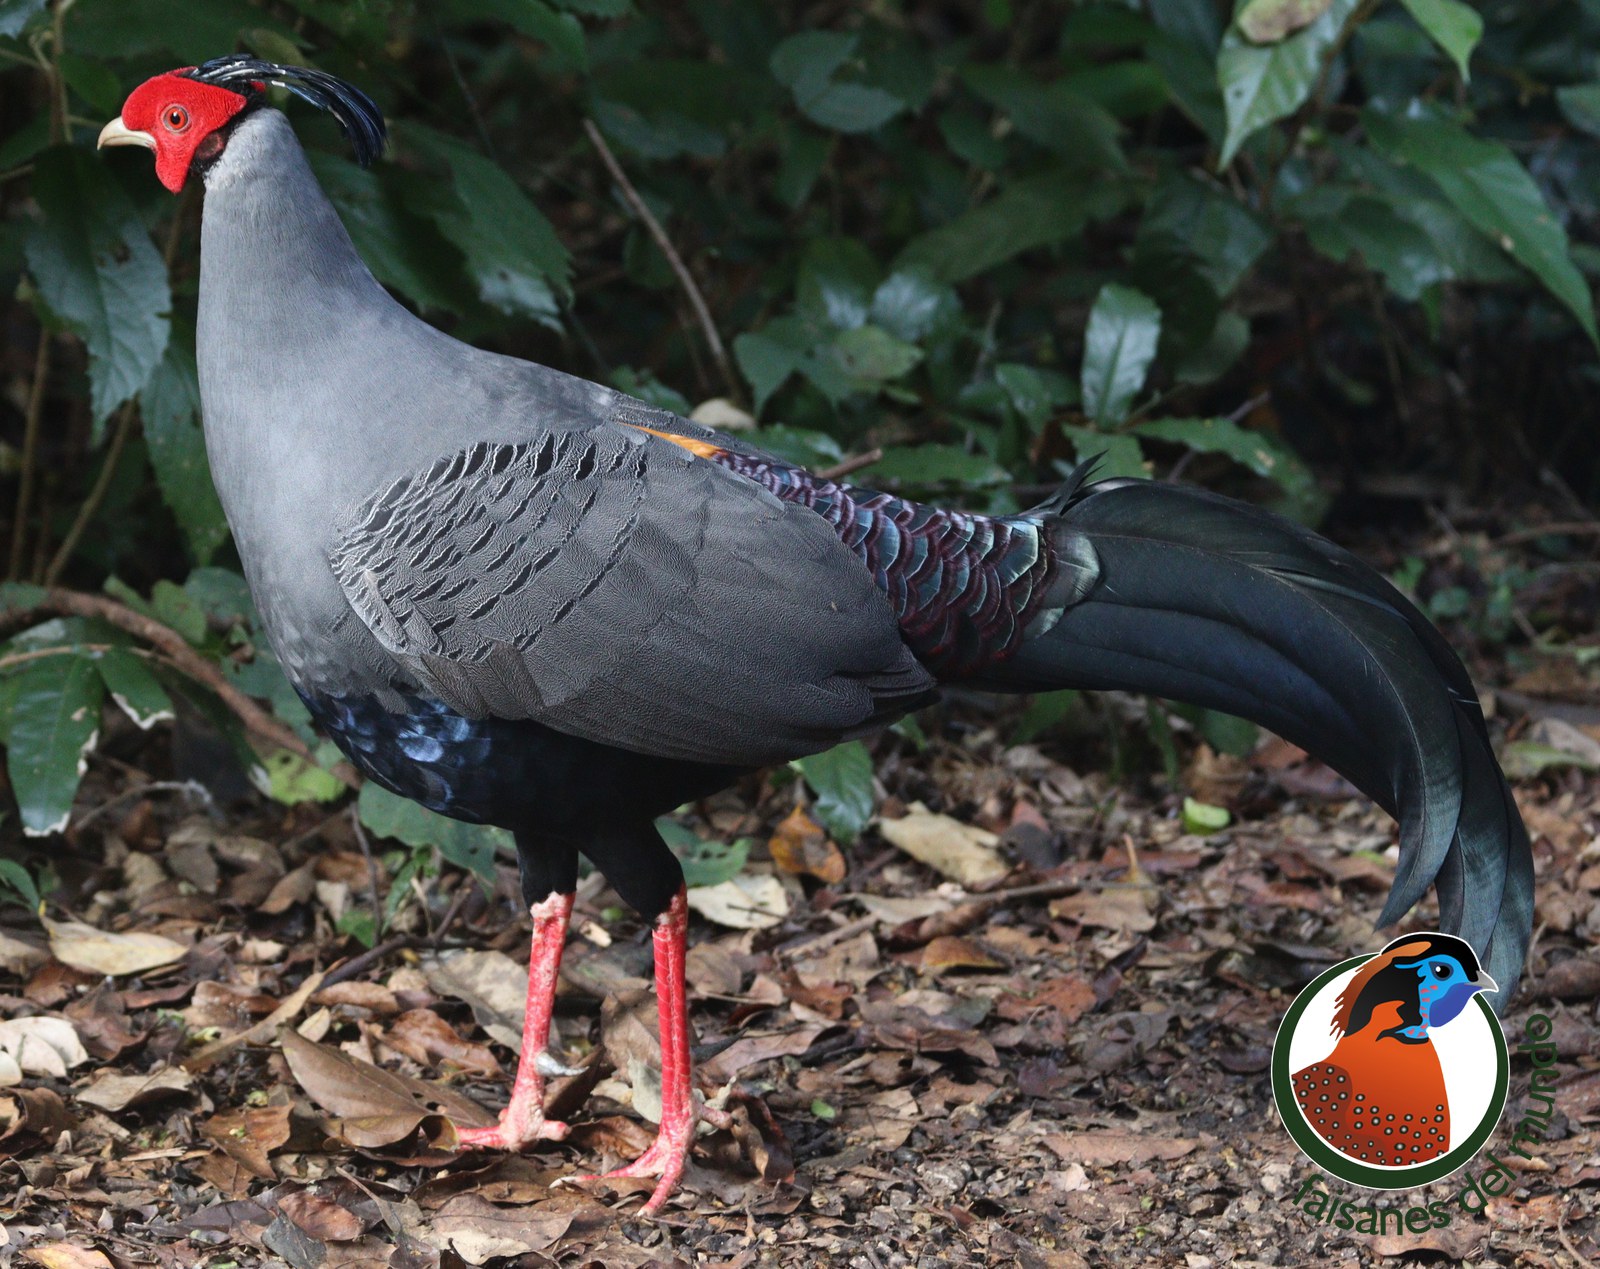
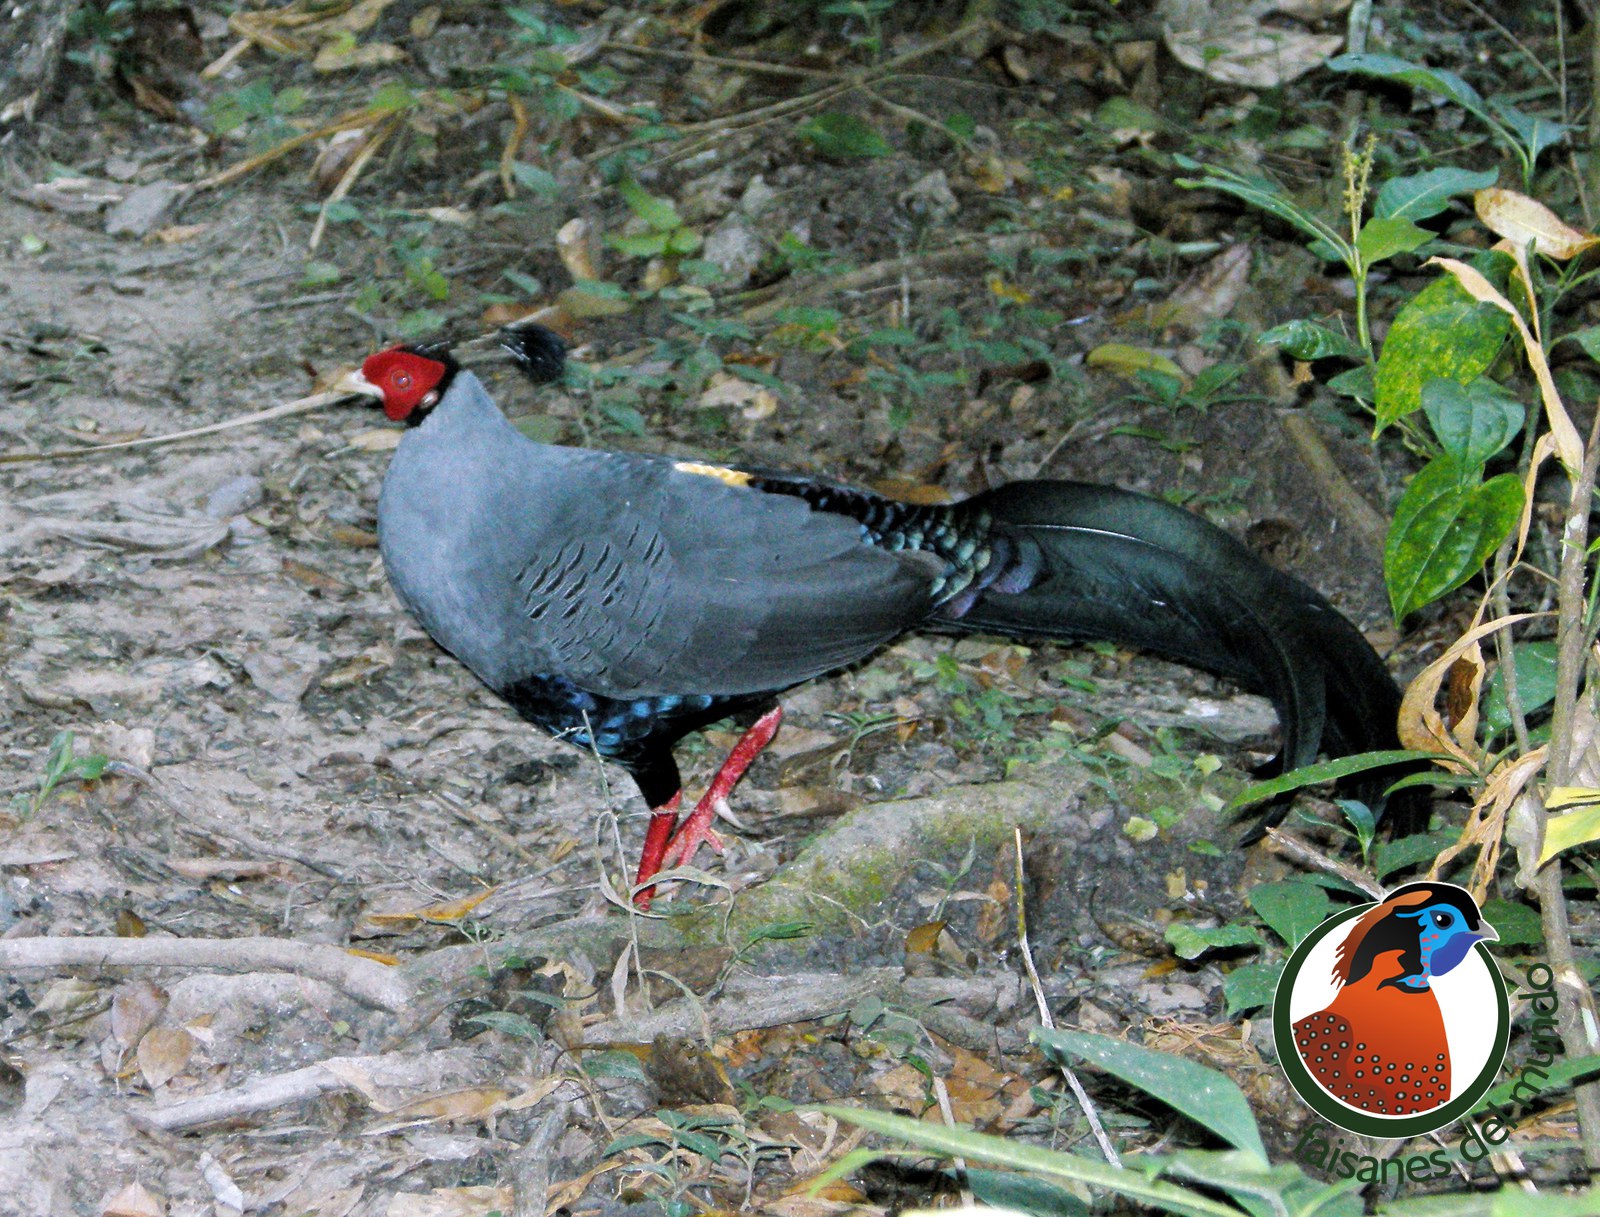
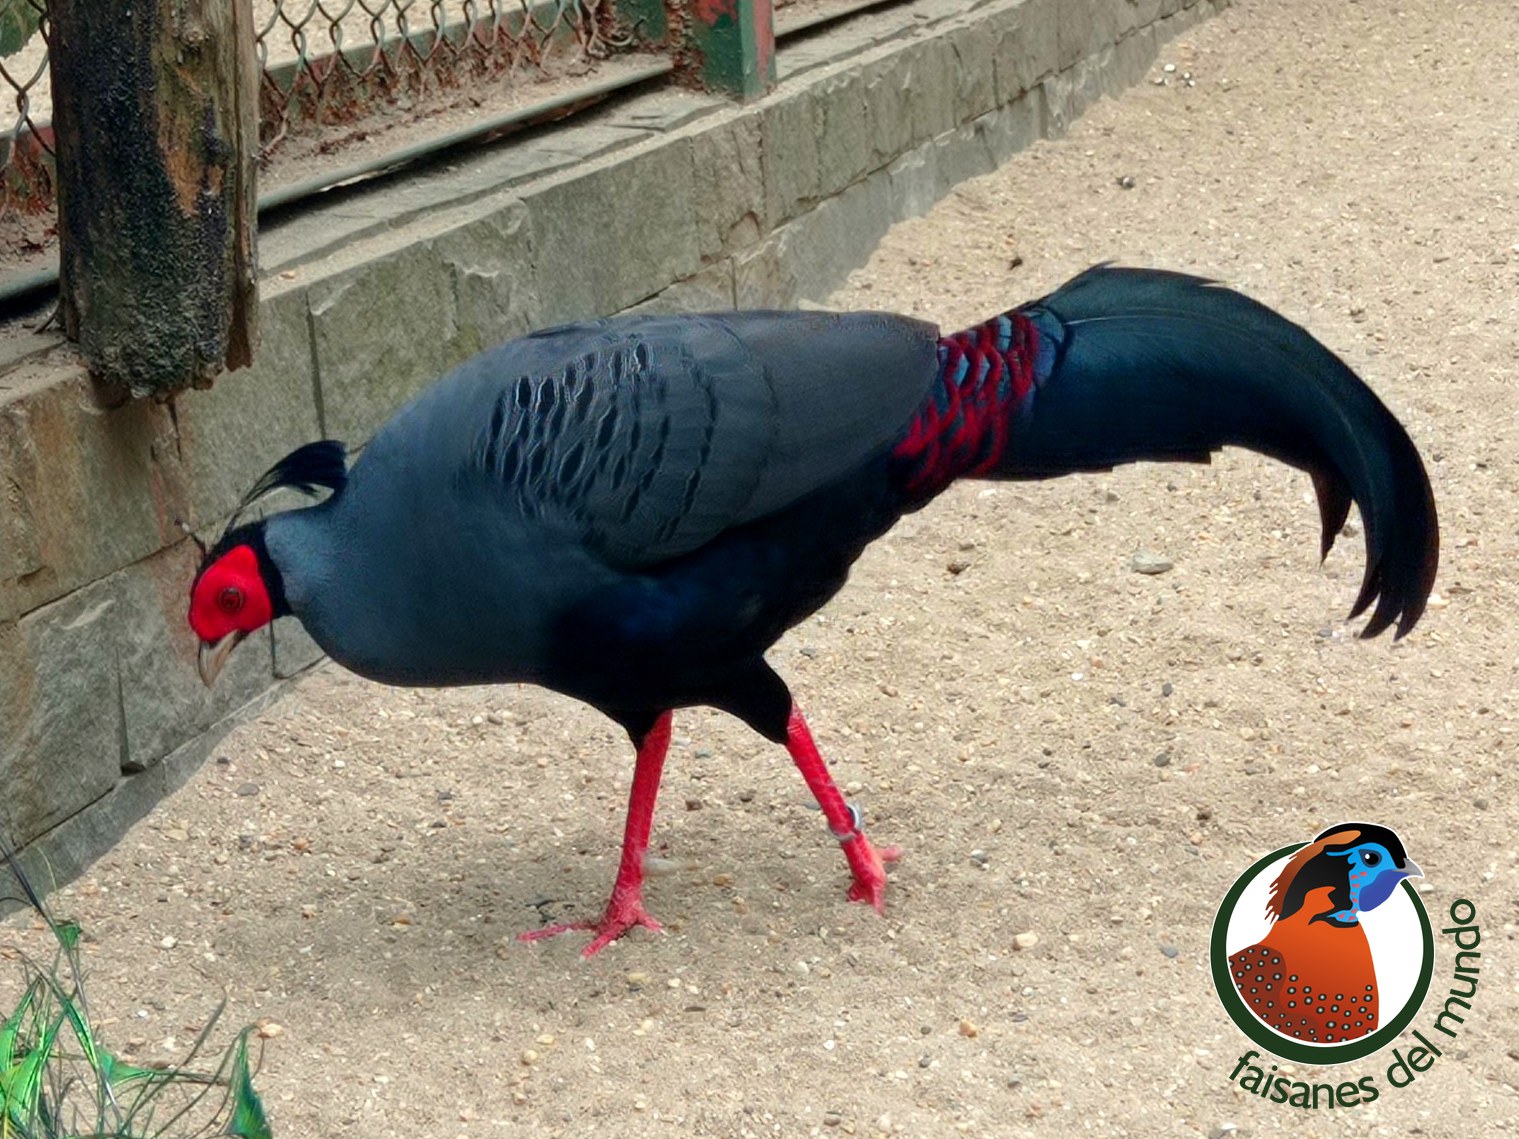
♂ El macho es un ave elegante y de gran tamaño: alcanza unos 80 cm de longitud total, con una cola de 33 a 36 cm, y pesa en torno a 1420 g (dato de un único ejemplar), lo que lo sitúa entre los faisanes más grandes del género Lophura. Tiene las patas rosadas (carmesí según otras descripciones) y unos espolones largos y fuertes. Se caracteriza por su plumaje básicamente gris azulado, en el que destacan las plumas metalizadas del vientre. La cola es curvada y de color negro (verde oscuro según otras fuentes), con el eje de las plumas desnudo y terminadas en forma de raqueta, y en la base de la espalda presenta un manchón de plumas amarillas. En la cara destacan la piel desnuda de color rojo, muy extensa, unas grandes barbillas y un vistoso copete caído. El pico es verde blanquecino y el iris, pardo rojizo (rojo o marrón, según los ejemplares). (Beebe, 1921; Delacour, 1977; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW))


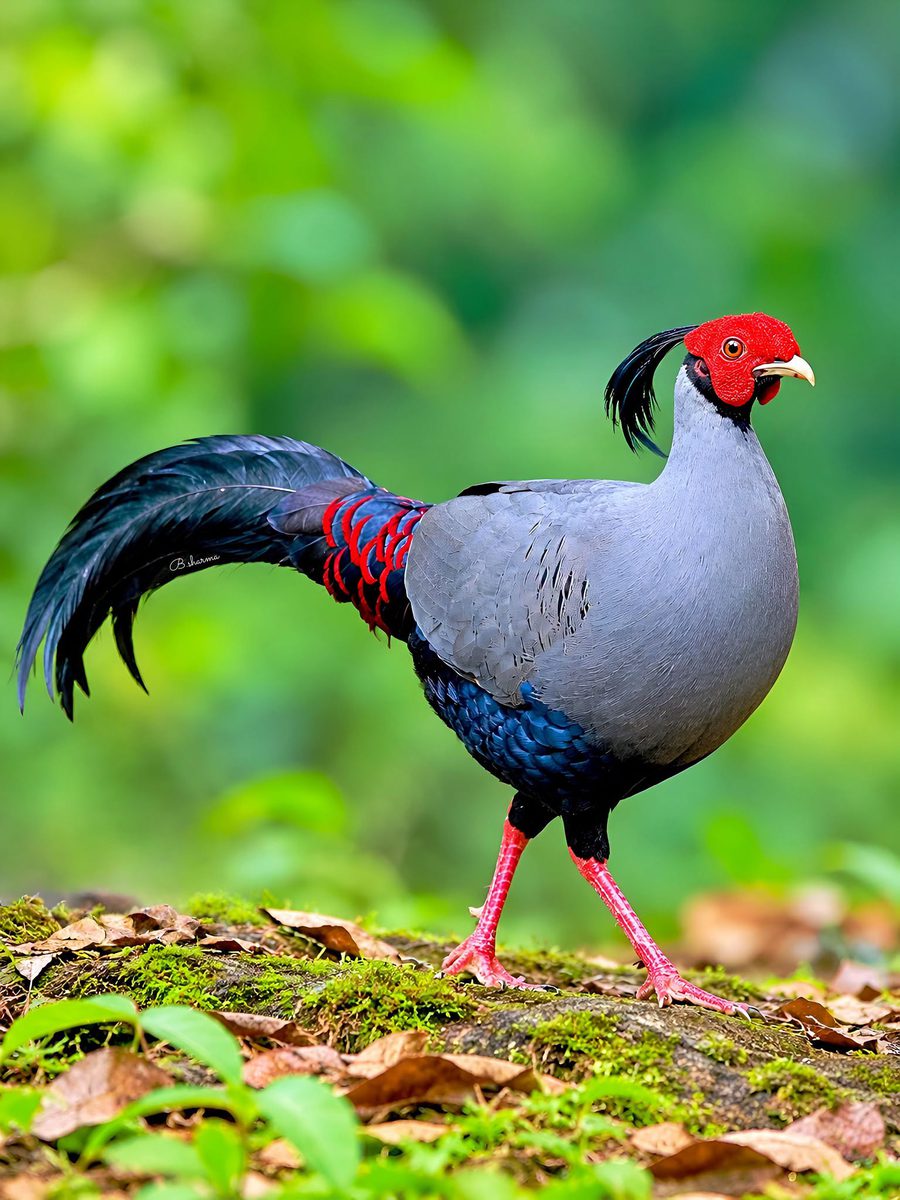
A comienzos del siglo XX, el naturalista William Beebe describió con detalle este plumaje de fuertes contrastes. La cabeza, la barbilla y la garganta son negras, y el copete, de diez o más plumas de brillo azul acero y unos 85 mm de longitud, tiene el eje grueso y desnudo en sus dos tercios basales y el extremo formado por un mechón de barbas desflecadas. El cuello, el manto, el pecho y las escapulares están finamente vermiculados de blanco y negro, lo que produce un gris casi uniforme. La zona media del dorso es de un dorado brillante, mientras que la parte baja del dorso, la rabadilla y las cobertoras caudales cortas muestran un ribete carmesí oscuro sobre un fondo azul acero. El vientre, los flancos y las infracaudales son negros con ribete azul acero, y las plumas de la cola brillan en azul purpúreo por fuera y en verdoso por dentro. Las tres parejas centrales de timoneras, muy largas y puntiagudas, se curvan con fuerza. Ese autor lo consideraba uno de los faisanes más hermosos, por el contraste del oro y del rojo bronce con el gris frío del resto del cuerpo. (Beebe, 1921)
Delacour da un copete largo, de 70–90 mm, de plumas negro-púrpura con barbas desflecadas, muy cortas en los dos tercios inferiores, donde el eje está casi desnudo; normalmente cae hacia atrás y solo se levanta cuando el ave se excita (Delacour, 1977). Madge y McGowan lo describen de plumas de eje desnudo y punta en raqueta, que puede erguirse cuando el ave se alarma (Madge y McGowan, 2002). Johnsgard añade que el macho es único por la combinación de piel facial escarlata y un copete orientado hacia atrás que se ensancha en forma de coma, y que tiene, además, en la espalda una pequeña zona granate menos extensa que la de otros faisanes de espalda de fuego (Johnsgard, 1986).
Los parches de color de la espalda están, en gran parte, ocultos cuando el ave está en reposo: el amarillo dorado queda bajo las cobertoras de las alas, y solo se ve plenamente cuando el macho abre y bate las alas, y Howman dice que ese amarillo vivo, normalmente oculto bajo las cobertoras de las alas, aparece cuando el macho bate las alas y de él procede el nombre de «espalda de fuego»; el criadero Chintaguay añade que su apariencia, de un gris perla, cambia radicalmente cuando abre las alas (del Campo, 2006; Howman, 1979; Howman, 1993). Gould describe el centro de la espalda con plumas gris pizarra, con base moteada de blanco y punta de un amarillo dorado «lustroso», de las que solo se ve este color, como una mancha muy visible; las de la parte baja de la espalda y las supracaudales, negras en la base, con una banda azul acero brillante cerca de la punta y otra, más ancha, en el extremo, de un rojo carmesí «profundo y ardiente», que cambia de matiz con la posición (Gould, 1860).
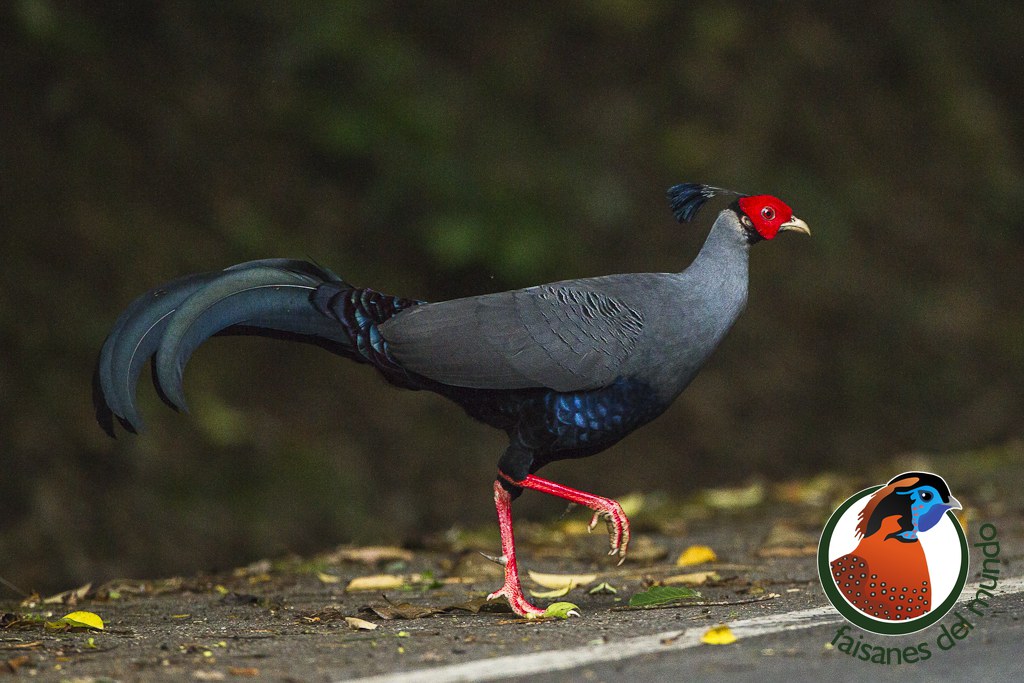
En el campo, Madge y McGowan resumen el macho como un faisán de patas largas, esbelto y gris, de cola larga y negruzca, patas largas y rojas y piel facial muy extensa, con un mechón coronal prominente; Roles, como «tal vez el miembro más elegante del género» (Madge y McGowan, 2002; Roles, 1976). La cola está formada por plumas anchas, falcadas y muy curvadas, con las puntas ligeramente vueltas hacia fuera, de modo que suele verse de lado, y el par central es más corto que el tercero (Delacour) (Delacour, 1977). Beebe dice que las tres parejas internas de timoneras son notablemente largas y puntiagudas, y, para el género, que el tercer par es algo más largo que los dos centrales y más del doble que el externo (Beebe, 1921).
En la mano, dice Johnsgard, el macho se identifica por el dorso granate, la piel facial roja y el copete en forma de coma (Johnsgard, 1986).
La hembra
♀ La hembra, de unos 60 cm de longitud (cola de 22 a 26 cm) y entre 680 y 1025 g de peso, tiene un colorido principalmente marrón, en el que destacan las alas, formadas por mechones negros y blancos. La cola es corta y de tonalidad similar a la de las alas. La cara es roja, con una piel desnuda muy extensa, y las patas son fuertes y rosadas (carmesí según otras fuentes). El pico es oscuro; carece de cresta evidente y, a diferencia del macho, no suele tener espolones. (Delacour, 1977; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW))


La hembra se distingue de sus congéneres porque las plumas de la parte superior de las alas y del centro de la cola son negras con un marcado barrado blanco amarillento; su cola, además, es más corta que la del macho. Según Beebe, la cabeza y el cuello son pardos, y se aclaran hasta un gris ahumado en la barbilla y la garganta; el manto es de un castaño apagado que, hacia atrás, se va moteando de negro, y las partes inferiores son castaño rojizas, con un ribete blanco que aparece en el pecho inferior y se extiende por el resto del vientre. El iris es pardo avellana. Ese plumaje se consideraba tan singular que, aunque Beebe mantuvo la especie dentro de Lophura, la juzgaba merecedora de una separación subgenérica. (Beebe, 1921; Delacour, 1977; McGowan y Kirwan, 2020 (BOW))
La hembra, según Delacour, no tiene cresta visible (las plumas de la corona están apenas alargadas); la cabeza, la garganta y el cuello son pardo apagado, más claros en el mentón; la parte superior de la espalda y las inferiores son de un rojo castaño vivo, que se vermicula de negro en la espalda y se bordea de blanco en el pecho inferior y los flancos; las alas, la parte baja de la espalda, la rabadilla, las supracaudales y los dos pares centrales de timoneras son negros, con barras de blanco ante moteado de negro, con un matiz castaño; las demás timoneras, castaño liso; el abdomen, gris pálido. El iris es rojo a pardo, el pico negro córneo y las patas carmesí (Delacour, 1977). Beebe da detalles de las barras: sobre las primarias son leonadas o rufas y muy interrumpidas; en el par central de timoneras, de ocho o más barras muy difuminadas; el tercer par es castaño con mucha barra y moteado negro en las barbas internas, y el resto, castaño claro (Beebe, 1921). En escapulares, coberteras y secundarias las barras blancas son muy vistosas y tienen el centro con bastante moteado negro, y las partes expuestas de las coberteras mayores y las secundarias tienen mucho brillo verdoso (Beebe, 1921).
Beebe subraya que la hembra del prelado tiene en la cola el mismo diseño diferenciado que muestran los machos de Acomus y de las otras Lophura, y que por eso le parecía especialmente interesante (Beebe, 1921). Johnsgard compara a las hembras de otras especies de Lophura con las de esta: ninguna tiene tantas barras en alas, coberteras y cola ni el manto superior y el pecho tan uniformemente rufos (Johnsgard, 1986). Madge y McGowan la comparan con la hembra del faisán de Swinhoe, que tiene patas más cortas y la parte superior moteada (Madge y McGowan, 2002).
Jóvenes
El macho joven alcanza el plumaje adulto en el primer año. En el plumaje juvenil, descrito por Beebe, la corona carece de cresta y, junto con los lados de la cabeza y la nuca, es de un pardo ahumado oscuro; el manto es rufo y está ligeramente moteado, las plumas de la cola son castañas con barras negruzcas y las partes inferiores son de un pardo apagado, finamente pecoso de blanquecino. La «espalda de fuego» apenas se insinúa, con un ligero ribete dorado deslucido y una rabadilla de rojo bronce solo sugerida. En un ala de macho joven en plena transición hacia el plumaje del primer año, la muda escalonada de las primarias mostraba a la vez plumas juveniles y adultas, lo que permite reconstruir en una sola ala los cambios de dibujo por los que pasa el ave. A comienzos del siglo XX no se conocían pollos de plumón ni plumajes juveniles completos en las colecciones, y apenas dos o tres machos inmaduros en algún museo. (Beebe, 1921; Delacour, 1977; McGowan y Kirwan, 2020 (BOW))
Delacour dice que el polluelo de plumón se parece al del noble (ignita), pero más pequeño y claro, con el plumón muy corto y plano y una pequeña mancha desnuda en el occipucio; las patas son muy cortas (Delacour, 1977). BOW: pollitos de plumón en su mayor parte marrones por encima y blanco leonado por debajo (McGowan y Kirwan, 2020 (BOW)). Los inmaduros son parecidos a la hembra, pero más apagados, y en el macho pronto aparecen plumas grises (Delacour, Johnsgard) (Delacour, 1977; Johnsgard, 1986); BOW dice que el macho joven adopta pronto el plumaje gris parcheado de las partes superiores (McGowan y Kirwan, 2020 (BOW)).

Plumajes por edades
| Edad | Descripción | Fuente |
|---|---|---|
| Polluelo | plumón marrón por encima y blanco leonado por debajo; corto y plano; patas muy cortas; mancha desnuda en el occipucio; no se conocían en las colecciones hacia 1921 | BOW; Delacour; Beebe (Beebe, 1921; Delacour, 1977; McGowan y Kirwan, 2020 (BOW)) |
| Juvenil | sin cresta; corona, lados de la cabeza y nuca pardo ahumado oscuro; manto rufo ligeramente moteado; timoneras castañas con barras negruzcas; partes inferiores pardo apagado, finamente pecoso de blanquecino; en las secundarias internas, seis o más barras finas sobre fondo negro | Beebe (Beebe, 1921) |
| Inmaduro | como la hembra, pero más apagado; el macho pronto muestra plumas grises | Delacour; Johnsgard (Delacour, 1977; Johnsgard, 1986) |
| Macho de primer año | plumaje adulto en el primer año, algo más apagado y con la cola más corta; la cola, castaño con barras negras en las plumas juveniles y negra con brillo verdoso en las nuevas | Delacour; BOW; Beebe (Beebe, 1921; Delacour, 1977; McGowan y Kirwan, 2020 (BOW)) |
| Macho adulto | copete, grises vermiculados, oro y carmesí en la espalda, cola larga y verde oscura | véase arriba (Beebe, 1921; Delacour, 1977; McGowan y Kirwan, 2020 (BOW)) |
| Hembra adulta | castaña con alas y cola central barradas; abdomen gris pálido; sin cresta | véase arriba (Beebe, 1921; Delacour, 1977) |
La muda del ala de un macho joven
Beebe estudió el ala de un macho joven en plena transición entre el plumaje juvenil y el del primer año (Beebe, 1921). Las primarias n.º 9 y 10 estaban completamente crecidas, pero con la vaina aún pegada a su base; las 1 a 6 eran nuevas, las 1 a 3 totalmente crecidas y las 4, 5 y 6 en crecimiento activo (149, 124 y 99 mm fuera de su vaina); las 7 y 8 no se habían mudado (Beebe, 1921). La primaria n.º 7 sería la típica del plumaje juvenil: marrón oscuro, con un moteado rufo apagado e irregular en la barba externa; la n.º 8 tiene unas nueve bandas leonadas oblicuas al raquis; las n.º 9 y 10 aparecen a la vez y casi idénticas, con bandas leonadas en la parte interna de la barba interna y, en el resto, una nube difusa azul grisácea que reduce los espacios a manchas redondas pardas, muy regulares, de seis o siete por barba; en la n.º 6 hay, en los 38 últimos milímetros, tres pares de marcas, mitad barras oblicuas, mitad ocelos marginales (Beebe, 1921).
En un segundo macho inmaduro, con la muda del ala algo más avanzada, la primera secundaria, muy retrasada, ya se había mudado y la pluma nueva, a medio crecer, era adulta, de color moteado de blanco azulado; las cuatro siguientes tenían bandas u ocelos en las barbas externas y la sexta estaba moteada de forma típica (Beebe, 1921). La muda de la cola, que avanza de fuera hacia dentro, se sigue por el cambio de color: las timoneras juveniles son castaño rico con barras negras, sobre todo en las barbas internas, y las nuevas, negro azabache con un ligero brillo verdoso (Beebe, 1921). Beebe resume que las alas de los adultos, con primarias pardo negruzcas apenas moteadas de gris y secundarias vermiculadas de blanco, no muestran dibujos complejos, y que las barras y ocelos de las plumas de crecimiento intermedio «no son comparables ni a las marcas leonadas del plumaje juvenil ni al diseño continuo del plumaje adulto»; las coberteras conservan en el adulto una banda negra terminal (Beebe, 1921). La lámina XXXVI de su monografía (de Grønvold) reproduce esa ala (Beebe, 1921).
Partes blandas, espolones y detalles
| Parte | Descripción | Fuente |
|---|---|---|
| Piel facial y barbillas | rojas (escarlata), muy extensas en el macho, que forman pequeñas barbillas carnosas a los lados de la garganta; menos extensas en la hembra, sin barbillas | Delacour; Madge y McGowan; BOW; Beebe (Beebe, 1921; Delacour, 1977; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)) |
| Iris | macho: rojo a pardo avellana (Delacour); rojo o marrón (BOW); pardo rojizo (ficha original); naranja-rojizo (Roles); hembra: pardo avellana (Beebe); rojo a pardo (Delacour) | varias fuentes (Beebe, 1921; Delacour, 1977; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW); Roles, 1976) |
| Pico | macho: córneo verdoso pálido (Delacour); verde blanquecino (BOW, ficha original); amarillento más oscuro hacia la base (Beebe); «verde córneo» (Gould); amarillo córneo (Roles); hembra: negro córneo (Delacour); oscuro, con la mandíbula inferior sobre todo córnea amarillenta (Beebe) | varias fuentes (Beebe, 1921; Delacour, 1977; Gould, 1860; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW); Roles, 1976) |
| Patas | carmesí (Delacour, BOW); rojo escarlata (Beebe); «rojo intenso» (Gould); rosadas (ficha original y libro del autor); en ambos sexos | varias fuentes (Beebe, 1921; Delacour, 1977; Gould, 1860; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW)) |
| Espolones y uñas | macho: espolones largos, afilados, blancos o córneos claros; el de uno medido por Beebe, de 20 mm; hembra: no suele tener, solo pequeñas escamas afiladas (Beebe) | Delacour; BOW; Beebe (Beebe, 1921; Delacour, 1977; McGowan y Kirwan, 2020 (BOW)) |
| Cola | dieciséis timoneras en el género Lophura, comprimidas lateralmente; macho: anchas, falcadas, curvadas, con eje desnudo y punta en raqueta; hembra: cortas y de punta ancha | Beebe; BOW; Delacour (Beebe, 1921; Delacour, 1977; McGowan y Kirwan, 2020 (BOW)) |
El libro del autor dice «patas rosadas»; todas las demás fuentes dan rojo o carmesí. Véase la nota de las medidas.
Cómo distinguirlo de especies parecidas
| Especie parecida | Cómo se distingue | Fuente |
|---|---|---|
| Faisán plateado (L. nycthemera) | comparten territorio en Tailandia (BOW): el prelado prefiere los bosques en terreno llano y el plateado, las laderas; se han visto prelados unirse a grupos de plateados | BOW (McGowan y Kirwan, 2020 (BOW)) |
| Faisán de Swinhoe (L. swinhoii) | su hembra es parecida a la del prelado, pero con menos blanco en las partes inferiores y menos rufo en pecho y manto; el prelado tiene patas más largas y la parte superior barrada, no moteada | Johnsgard; Madge y McGowan (Johnsgard, 1986; Madge y McGowan, 2002) |
| Faisán noble (L. ignita) y noble malayo (L. rufa) | tienen la piel facial y las barbillas azules (no rojas); el noble malayo, patas rojas, y el macho es negro con la rabadilla rojo bronce; su hembra es castaña, con la garganta blanca | Beebe; Delacour; Madge y McGowan (Beebe, 1921; Delacour, 1977; Madge y McGowan, 2002) |
En la clave del género de Beebe, entre las hembras de manto rojizo o castaño, la de diardi es la de alas negras barradas de blanco leonado (Beebe, 1921).
Medidas y peso
Las cifras de la ficha original coinciden con las de Delacour en la longitud y la cola, pero difieren en el peso y las alas.
El macho del faisán prelado mide unos 80 cm de longitud total y pesa de 900 a 1000 g; la hembra, menor, mide unos 60 cm y pesa de 600 a 700 g. Con esas dimensiones, el macho se cuenta entre los faisanes de mayor tamaño del género Lophura. (Delacour, 1977; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW))
Las alas miden de 20 a 24 cm en el macho y de 20 a 22 cm en la hembra; la cola, de 33 a 36 cm y de 22 a 26 cm, respectivamente; y el tarso, de 7 a 8 cm y de 6 a 7 cm. (Hernández García, 2013)
Otras fuentes ofrecen cifras algo distintas en el peso: en el macho se cita un único ejemplar de 1420 g y en la hembra un intervalo de 680 a 1025 g. Los ejemplares medidos por Beebe a comienzos del siglo XX dieron, en el macho, 233 mm de ala, 322 mm de cola, 101 mm de tarso, 58 mm de dedo medio con uña, 20 mm de espolón y 18 mm de pico (desde la narina); y en la hembra, 223 mm de ala, 202 mm de cola y 81 mm de tarso, con 46 mm de dedo medio con uña y 16 mm de pico. Estas variaciones entre fuentes son habituales y reflejan la diversidad natural de los ejemplares medidos y los distintos métodos de medición. (Beebe, 1921; Johnsgard, 1986; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW))
Medidas según distintas fuentes
| Fuente | Longitud ♂ / ♀ | Ala ♂ / ♀ | Cola ♂ / ♀ | Tarso ♂ / ♀ | Peso ♂ / ♀ |
|---|---|---|---|---|---|
| Libro del autor, vol. I, y ficha original | 80 / 60 cm | 20–24 / 20–22 cm | 33–36 / 22–26 cm | 7–8 / 6–7 cm | 900–1.000 / 600–700 g (Hernández García, 2013) |
| Beebe (1921; ejemplares medidos) | — | 233 / 223 mm | 322 / 202 mm | 101 / 81 mm | sin dato; dedo medio con uña 58 / 46 mm; espolón 20 mm; pico desde la narina 18 / 16 mm (Beebe, 1921) |
| Delacour (1977) | 800 / 600 mm | 220–240 / 220–240 mm | 330–360 / 220–260 mm | 90–105 / 75–85 mm (culmen 25–30 / 20 mm) | sin dato (Delacour, 1977) |
| Johnsgard (1986) | 24–32 pulgadas (en el campo) | 220–240 / 220–240 mm (Delacour) | 330–360 / 220–260 mm (Delacour) | — | 1.420 g (macho adulto, zoo de Berlín Este) / 1.025 g (hembra); otras dos hembras del zoo de San Diego, 680 y 800 g (Johnsgard, 1986) |
| Madge y McGowan (2002) | c. 80 / c. 60 cm | 220–240 / 220–240 mm | 330–360 / 220–260 mm | 75–85 / 75–85 mm | 1.420 g (n = 1) / 680–1.025 g (n = 3) (Madge y McGowan, 2002) |
| HBW (1994) y BOW | c. 80 / c. 60 cm | — | 33–36 / 22–26 cm | — | 1.420 g (un ave) / 680–1.025 g (del Hoyo et al., 1994; McGowan y Kirwan, 2020 (BOW)) |
| Roles (1976) | 30 pulgadas (unos 76 cm) | — | — | — | — (Roles, 1976) |
| Wikipedia en francés | 75–85 / 55–65 cm | — | — | — | 900–1.200 / 600–900 g (Wikipedia (fr)) |
| Wikipedia en alemán | — | 220–240 / 220–240 mm | 33–63 (sic) / 22–26 cm | — | c. 1.180 / 890 g (Wikipedia (de)) |
| Wikipedia en inglés | c. 80 cm (31 pulgadas) | — | — | — | — (Wikipedia (en)) |
Los pesos de HBW, BOW y Madge y McGowan coinciden con los de Johnsgard (1986): el macho de 1.420 g es el ave del zoo de Berlín Este y los 680–1.025 g de «hembra» son tres hembras (680 y 800 g del zoo de San Diego y 1.025 g de Berlín Este) (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002). La cifra de 33–63 cm de Wikipedia en alemán parece una errata de 33–36 cm; las demás fuentes dan 33–36 cm.
Huevos y pollos
Beebe describe un huevo recogido en Siam, blanco azulado con un leve matiz rojizo, de 48 por 38 mm (Beebe, 1921). Delacour dice que los huevos son cortos y redondeados, de color rosa leonado pálido, de 48 × 38 mm de media (Delacour, 1977); Johnsgard estima su peso fresco en 38,2 g (Johnsgard, 1986); BOW, de color rosa pálido (McGowan y Kirwan, 2020 (BOW)). Wikipedia en alemán da huevos de color beige rojizo, cortos y redondeados, de 48 × 38 mm (Wikipedia (de)).
Distribución y hábitat
Las selvas de tierras bajas de Indochina: de Tailandia a Vietnam, entre el nivel del mar y unos 800 m, casi siempre junto a caminos y claros.

El faisán prelado vive en Tailandia, Camboya y Vietnam, entre otros países: su área de distribución se extiende desde el este de Myanmar, a través del norte, centro y este de Tailandia, el centro y sur de Laos y el norte y centro de Camboya, hasta el centro y sur de Vietnam. Beebe, a comienzos del siglo XX, lo situaba en los estados shan meridionales, Siam, Camboya y Cochinchina. Habita en bosques secundarios con bambú situados a unos 600-700 m de altitud, aunque otras descripciones lo presentan como residente de bosques de tierras bajas, primarios o secundarios, siempreverdes y semisiempreverdes, secos, caducifolios mixtos, dominados por bambú o de dipterocarpáceas, desde las llanuras hasta unos 800 m, y a veces incluso en bosques muy degradados. Algunos estudios de campo en el Parque Nacional de Khao Yai (Tailandia) lo han registrado hasta cotas submontanas de 1.000-1.150 m. Es, además, el ave nacional de Tailandia, un estatus de facto propuesto por la Oficina de Conservación de Vida Silvestre y refrendado por el Consejo de Ministros en 1985. (BirdLife, 2025; Hernández García, 2013; McGowan y Kirwan, 2020 (BOW); Round y Gale, 2008; Wikipedia (símbolos de Tailandia))
Área de distribución
BirdLife da una extensión de presencia de 1.040.000 km² (residente), con una área de ocupación desconocida pero en disminución continua; la especie vive en el noreste y el sureste de Tailandia, Laos, Camboya y Vietnam, y, «al menos históricamente», en el este de Myanmar; no es migratoria y no es endémica de ningún país (BirdLife, 2025). BOW la sitúa desde el este de Myanmar, a través del norte, el centro y el este de Tailandia, el centro y el sur de Laos y el norte y el centro de Camboya, hasta el centro y el sur de Vietnam (McGowan y Kirwan, 2020 (BOW)). Delacour la da en Indochina francesa, al norte hasta el centro de Annam, en el mar de la China, y hasta Luang Prabang (norte de Laos), en el Mekong; el este de Siam hasta el río Me-Yom y las montañas de Klum-Tan; y, según algunos autores, el suroeste de los estados shan y Karenni, donde su presencia es, sin embargo, improbable (Delacour, 1977; Johnsgard, 1986). Beebe, en 1921, la da en los estados shan meridionales, Siam, Camboya y Cochinchina (Beebe, 1921).
| País | Presencia | Fuente |
|---|---|---|
| Tailandia | noreste y sureste (BirdLife); norte, centro y este (BOW); este hasta el río Yom (Delacour); en Wikipedia en tailandés, norte, noreste y sureste; unas 5.000 aves, según BOW y Madge y McGowan; «poco común a bastante común» (Treesucon y Limparungpatthanakij 2018, vía BirdLife) | BirdLife; BOW; Delacour; Madge y McGowan (BirdLife, 2025; Delacour, 1977; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW); Wikipedia (th)) |
| Laos | centro y sur (BOW); localmente común, y quizá con la mayor población nacional (BirdLife); «extirpada de zonas accesibles y fragmentadas» (Timmins y colaboradores 2024, vía BirdLife); norte hasta Luang Prabang (Delacour) | BirdLife; BOW; Delacour (BirdLife, 2025; Delacour, 1977; McGowan y Kirwan, 2020 (BOW)) |
| Camboya | norte y centro (BOW); «escasa» en el suroeste y el noroeste y «localmente bastante común» en el norte y el noreste (CBGA 2019, vía BirdLife); quizá unos 2.000 individuos (BOW) | BirdLife; BOW (BirdLife, 2025; McGowan y Kirwan, 2020 (BOW)) |
| Vietnam | centro y sur (BOW); hasta el centro de Annam (Delacour); registros recientes en Buon Luo (centro de Annam), Son Tung (norte de Annam), Kon Cha Rang, Gia Lai y el parque nacional de Nam Bai Cat Tien (Cochinchina); en Bach Ma, entre 300 y 900 m (Wikipedia en francés) | BOW; Delacour; Wikipedia (Delacour, 1977; McGowan y Kirwan, 2020 (BOW); Wikipedia (fr)) |
| Myanmar | este de Myanmar, históricamente; considerada escasa en los estados shan meridionales, en el este de Birmania, a finales de los años cuarenta; BirdLife da la presencia como «extant» (actual) en su tabla de países | BOW; Madge y McGowan; BirdLife (BirdLife, 2025; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)) |
Roles (1976) la da en «Laos, Vietnam y el suroeste de China» (Roles, 1976); ninguna otra de las fuentes consultadas menciona China, y las actuales (BirdLife, BOW) no la incluyen entre los países de presencia.
Localidades y áreas protegidas
| Lugar | Dato | Fuente |
|---|---|---|
| Parque Nacional de Khao Yai (Tailandia) | zona protegida importante (BOW); IBA según BirdLife; registros de la especie hacia 600–890 m de altitud en los últimos decenios, con aumento significativo de las observaciones entre 1978 y 2004 (Round y Gale, 2008) | BOW; BirdLife; Round y Gale (BirdLife, 2025; McGowan y Kirwan, 2020 (BOW); Round y Gale, 2008) |
| Reserva de la Biosfera de Sakaerat (noreste de Tailandia) | reserva de la UNESCO desde 1967, de 78,09 km², entre 280 y 762 m; bosque siempreverde seco (60 %), dipterocarpáceas secas (18 %) y plantaciones de acacia y eucalipto (18 %); allí se siguieron 21 nidos entre 2010 y 2012 | Suwanrat y colaboradores, 2014 (Suwanrat et al., 2014) |
| Santuario de Panom Dongrek (provincia de Srisaket, Tailandia) | santuario de vida silvestre donde Johnsgard sabía que la especie existía, y casi con seguridad otros, según Boonlerd (1981) | Johnsgard, citando a Boonlerd, 1981 (Johnsgard, 1986) |
| Doi Pha Chang, Khao Soi Dao (Tailandia) | IBA/KBA con la especie | BirdLife (BirdLife, 2025) |
| Xe Pian (Laos) | Área Nacional de Biodiversidad; zona protegida importante; capturas probables de 100 ejemplares al año (BOW; «cientos» según Madge y McGowan) | BOW; Madge y McGowan (Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)) |
| Phou Xang He (Laos) | Área Nacional de Biodiversidad; zona protegida importante | BOW; Madge y McGowan (Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)) |
| Nam Bai Cat Tien / Nam Cat Tien (Vietnam) | parque nacional de 350 km²; una de las únicas dos áreas protegidas conocidas en el HBW de 1994; hoy IBA/KBA | HBW; BOW; BirdLife (BirdLife, 2025; del Hoyo et al., 1994; McGowan y Kirwan, 2020 (BOW)) |
| Mom Ray (Vietnam) | reserva natural | BOW; Madge y McGowan (Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)) |
| Bach Ma (Vietnam) | parque nacional; entre 300 y 900 m, en bosques de llanura y de colinas | Wikipedia en francés; BirdLife (BirdLife, 2025; Wikipedia (fr)) |
| Otras IBA/KBA | BirdLife enumera 32 en total (36.013 km²; cobertura media protegida del 71,06 %): en Camboya, Virachey, Phnom Aural, las tierras bajas de Mondulkiri y Kratie y Snoul/Keo Sema/O Reang; en Laos, Dong Khanthung, Upper Xe Kaman, Phou Xiang Thong, la meseta de Dakchung, Upper Xe Bangfai, Hin Namno, Xe Khampho/Xe Pian, llanuras de Xe Kong, meseta de Nakai y Nakai-Nam Theun; en Vietnam, Ke Go, Kon Ka Kinh, Phong Dien, Vu Quang, A Yun Pa, Dakrong, Khe Net, Phong Nha, Yok Don, Dak Dam, Cat Loc, Lo Go-Xa Mat y Truong Son | BirdLife (BirdLife, 2025) |
BirdLife precisa que en el 25 % de esas áreas la protección es completa, en el 59,4 % parcial y en el 15,6 % nula (BirdLife, 2025); también que las áreas protegidas suelen ofrecer solo una protección limitada frente a la caza y la tala (BirdLife, 2025).
Altitud
| Fuente | Altitud | Observaciones |
|---|---|---|
| Delacour (1977) y Johnsgard (1986) | del nivel del mar a unos 2.000 pies (c. 600 m) | bosque, bambú y vegetación secundaria densa (Delacour, 1977; Johnsgard, 1986) |
| Howman (1979, 1993, 1996) | del nivel del mar a unos 2.000 pies (600 m) | bosque de bambú y bosque secundario espeso (Howman, 1979; Howman, 1993; Howman, 1996) |
| Ficha original | unos 600–700 m (bosques secundarios con bambú); hasta unos 800 m (otras descripciones); 1.000–1.150 m en Khao Yai | texto original (Hernández García, 2013) |
| HBW (1994) | llanuras hasta c. 800 m en Tailandia | McGowan (del Hoyo et al., 1994) |
| Madge y McGowan (2002) | sobre todo llanuras, hasta c. 800 m | «Considerada residente de tierras bajas en Camboya» (Madge y McGowan, 2002) |
| BOW | llanuras hasta c. 800 m | a veces en bosques muy degradados (McGowan y Kirwan, 2020 (BOW)) |
| BirdLife (2025) | 0–800 m; sobre todo llanuras y colinas hasta 300 m; excepcionalmente 1.150 m | rango de elevación 0–800 m; límite ocasional 1.150 m (BirdLife, 2025) |
| Round y Gale (2008) | registros hacia 600–890 m en Khao Yai; la especie es de tierras bajas, sobre todo hasta 700–800 m en Tailandia | el prelado aumenta en el parque, y el plateado, no (Round y Gale, 2008) |
| Suwanrat y colaboradores (2014) | Sakaerat, 350–580 m (área de estudio) | los números registrados por encima de 800 m en Khao Yai habían aumentado significativamente (Suwanrat et al., 2014) |
| Wikipedia en francés y tailandés | máximo 800 m; en Bach Ma, 300–900 m | sobre todo por debajo de 500 m (fr) (Wikipedia (fr); Wikipedia (th)) |
Hábitat
BirdLife dice que es una especie del bosque siempreverde, semisiempreverde y de bambú, de vegetación secundaria y matorral, a menudo cerca de caminos y pistas, sobre todo en las llanuras y las colinas hasta 300 m, y que parece tolerar una degradación considerable de su hábitat, aunque puede desaparecer de fragmentos pequeños y aislados; en plantaciones se encuentra de forma marginal (BirdLife, 2025). Según BOW, es un residente de bosques de tierras bajas: en Tailandia y Laos, bosques primarios y secundarios siempreverdes, secos siempreverdes, caducifolios mixtos, dominados por bambú y de dipterocarpáceas secas, desde las llanuras hasta c. 800 m, a veces en bosques muy degradados (McGowan y Kirwan, 2020 (BOW)). Johnsgard cita a Deignan (1945): se asocia con la cubierta más densa, que incluye el bosque siempreverde de tierras bajas, los bambúes y las áreas de antiguo cultivo cubiertas de Eupatorium y espinos, y se ve con más frecuencia en los caminos abiertos en la selva (Delacour) (Delacour, 1977; Johnsgard, 1986). Beebe lo sitúa en bosques de bambú espeso y en el bosque más abierto junto a los ríos (Beebe, 1921).
En Sakaerat, la mayor parte del área de estudio era bosque siempreverde seco, de Hopea ferrea, Hopea odorata e Hydnocarpus ilicifolia, con una precipitación media anual de 1.200 mm y una estación seca de noviembre a abril (Suwanrat et al., 2014). BirdLife clasifica el bosque húmedo tropical de tierras bajas como su hábitat principal (importancia «mayor»), el bosque tropical muy degradado como «adecuado» y las plantaciones como «marginal»; la dependencia del bosque es media (BirdLife, 2025). BOW añade que, donde convive con L. nycthemera en Tailandia, el prelado favorece los bosques en terreno llano y el plateado, las laderas; antes el prelado se encontraba normalmente en elevaciones más bajas, pero esto parece estar cambiando (McGowan y Kirwan, 2020 (BOW)).
Densidad de población y movimientos
| Dato | Valor | Fuente |
|---|---|---|
| Densidad en bosque seco siempreverde (Tailandia) | 5,6 aves/km² (con cámaras y muestreo de distancias) | Suwanrat y colaboradores, 2015, según BirdLife (BirdLife, 2025) |
| Densidad en plantaciones forestales viejas | 0,2 aves/km² | ídem (BirdLife, 2025) |
| Densidad en Khao Yai (transectos de 2003–2005, parcela de Mo-Singto) | unos 22,8 individuos/km² (10,0 grupos); intervalos de confianza amplios | Round y Gale, 2008 (Round y Gale, 2008) |
| Área de campeo de hembras (Sakaerat) | 20,8 ± 2,3 ha en época de cría; 26,4 ± 3,9 ha fuera de ella | Suwanrat y colaboradores, 2019 (Suwanrat et al., 2019) |
| Anchura aproximada de un área de campeo | unos 300 m | Sukumal y colaboradores (2010), citado por Suwanrat y colaboradores, 2014 (Suwanrat et al., 2014) |
| Movimientos | no hay información (BOW); no hay razón para suponer movimientos de importancia (Johnsgard) | BOW; Johnsgard (Johnsgard, 1986; McGowan y Kirwan, 2020 (BOW)) |
Johnsgard (1986) decía que no había estimas de densidad; las cifras de arriba son posteriores (Johnsgard, 1986).
Otros países y poblaciones introducidas
Ninguna de las fuentes consultadas (BirdLife, BOW, HBW, Madge y McGowan, Delacour, Johnsgard) habla de poblaciones introducidas o asilvestradas de esta especie; BirdLife da todos los países como de origen «nativo» y de presencia actual (BirdLife, 2025; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)). La única mención de un ave fuera de su área es el registro de Ranikhet (India) de Wikipedia, que no se ha podido comprobar.
Comportamiento y voz
Un ave esquiva que sale de los bambúes al amanecer, silba, bate las alas y se enfrenta sin miedo a los gallos.
El prelado es difícil de observar, salvo cuando sale al borde de caminos y pistas para comer; aparece solo o en grupos presuntamente familiares, de tres o cuatro aves y a veces hasta diez, y se oye sobre todo por el silbido del macho y por el ruido de las alas (Beebe, 1921; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)).
Costumbres
Los bosquetes espesos de bambú parecen ser su refugio preferido. Al amanecer sale de esas marañas impenetrables hacia la selva más abierta, de preferencia junto a las orillas de los ríos, para alimentarse y beber. Los cazadores que esperan tigres al acecho de noche han visto en más de una ocasión pasar con calma a una pareja, con el dorso dorado destellando incluso a la luz de la luna. En Tailandia convive con el faisán plateado: el prelado prefiere el terreno llano y el plateado las laderas. Pese a su vistosidad es esquivo y muy difícil de observar, aunque no de capturar: los lugareños lo tenían por un ave torpe y fácil de atrapar con lazos sencillos. Si se instala un campamento en un lugar que frecuentaba, las aves no lo abandonan del todo y, pasado el primer susto, regresan, sobre todo si hay ganado. En cautividad, un macho sano emite sin cesar un arrullo y un cloqueo suaves y melodiosos. (Beebe, 1921; McGowan y Kirwan, 2020 (BOW))
Madge y McGowan dicen que no es una especie especialmente bien conocida, que es difícil de ver salvo cuando sale a campo abierto para comer o cruzar caminos y pistas, y que es bastante confiada donde no se la caza (Madge y McGowan, 2002). Se la encuentra sola o en grupos, que se presumen familiares, y forrajea por la mañana y a última hora de la tarde en los caminos del bosque (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Delacour dice que es abundante en todas las zonas adecuadas de su área y que «no es salvaje»: se encuentran machos aislados o grandes grupos familiares, sobre todo por la mañana y a última hora de la tarde, y los ejemplares mansos andan sueltos por los patios con las gallinas, comiendo de la mano de sus dueños, en Indochina y Siam (Delacour, 1977). Según Wikipedia en tailandés, es un ave territorial; el macho vive solo o en pareja en la época de cría, sale a comer de día y duerme sobre árboles altos; es el faisán que se cría con mayor facilidad, no es tímido y suele verse en las carreteras que atraviesan el bosque (Wikipedia (th)).
Organización social
BOW lo describe en grupos de tres o cuatro aves, hasta diez, incluidos grupos mixtos, de solo machos y de solo hembras, a los que se unen de vez en cuando individuos de L. nycthemera y de Gallus gallus; añade que el sistema de apareamiento es «aparentemente polígamo», con el macho dominante monopolizando el acceso a todas las hembras del grupo, y que también se han visto machos que se unen a grupos de L. nycthemera (McGowan y Kirwan, 2020 (BOW)). Suwanrat y colaboradores citan a Savini y Sukumal (2009) para decir que la especie es polígina en libertad, con machos solitarios «flotantes» y grupos con varios machos, y que sus propios datos de radioseguimiento cubrieron ocho áreas de campeo de ocho grupos (Suwanrat et al., 2014).
En cautividad, Delacour dice que son monógamos y bastante pendencieros; Gerrits y Roles también hablan de monogamia, y Roles, de machos con fama de rencorosos con las hembras (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986; Roles, 1976). Johnsgard dice que en libertad quizá sea igual, aunque no hay información, y que no se sabe nada de su territorialidad; menciona una observación de Baker (1928): un nido en el suelo, en un hueco de un árbol, del que se capturaron los dos adultos, lo que apuntaría a monogamia (Johnsgard, 1986). Wikipedia en francés dice que el conjunto de los datos de libertad y cautividad sugiere monogamia (Wikipedia (fr)). Madge y McGowan dicen «pauta de apareamiento desconocida» (Madge y McGowan, 2002).
La voz
El macho da fuertes silbidos de reclamo y repite un «pee-yu pee-yu» fuerte; con frecuencia el macho zumba las alas en exhibición, durante 2 a 5 segundos, solo o en grupo (las hembras solo rara vez) (Johnsgard, 1986; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)). Delacour lo transcribe «pee-yu, pee-yu»; la edición alemana de Wikipedia dice que el reclamo de territorio es un silbido seguido del zumbido de alas, y que a veces se oye un cloqueo suave (Delacour, 1977; Wikipedia (de)). Johnsgard cree que el silbido es probablemente un reclamo de desafío territorial o de atracción de pareja, y compara el «pee-yu» con la llamada de comida estudiada por Stokes y Williams (1972), una serie de notas igualmente espaciadas, unas tres por segundo, asociada al comportamiento de ofrecer comida (Johnsgard, 1986). En cautividad, un macho sano emite sin cesar un arrullo y un cloqueo suaves y melodiosos (Beebe, 1921; Elliot, 1872). Schomburgk, con un macho en una casa, anotó un sonido débil y frecuente, áspero si se asustaba, y un vuelo con zumbido como el de las perdices, pero más fuerte (Elliot, 1872).
Sonidos y llamadas de la especie
Grabaciones de voz en xeno-canto
xeno-canto tiene 29 grabaciones en primer plano de la especie y ninguna de fondo (17 de noviembre de 2026), con una duración total de 16 minutos y 40 segundos; el sitio indica que están «restringidas actualmente» y no permitió ver el detalle (xeno-canto). BOW registra en el archivo Macaulay 70 grabaciones y 39 vídeos (McGowan y Kirwan, 2020 (BOW)).
Enfrentamientos con otras aves
En cautividad son muy fuertes y con sus espolones pueden causar graves daños a otras aves: si se dejan sueltos con gallinas, desafían a todos los gallos, y ningún gallo de pelea, por hábil y fuerte que fuese, tenía opción (Beebe, 1921; Elliot, 1872). Green-Armytage cuenta que en Tailandia se han domesticado algunos y que hay que mantenerlos lejos de los gallos domésticos, porque derrotan fácilmente a aves mucho mayores (Green-Armytage, 2002). Roles dice que el macho es agresivo a veces con la hembra y que los ejemplares mansos dirigen sus ataques contra el cuidador, y que conviene dar a la hembra lugares donde esconderse (Roles, 1976).
Alimentación
Frutos, insectos, gusanos y pequeños cangrejos terrestres; en cautividad, pienso con fruta y gusanos.
En la naturaleza, la dieta del faisán prelado es omnívora y rica en proteínas: consiste principalmente en frutos, insectos, bayas y otros alimentos similares, que busca removiendo las hojas del bosque. Come variedad de frutos y bayas caídos, además de insectos, gusanos y pequeños cangrejos terrestres. (Beebe, 1921; del Hoyo et al., 1994; McGowan y Kirwan, 2020 (BOW))
Se le ha visto rascar en la hojarasca y buscar insectos cerca del ganado, y de forma ocasional forrajea en las pistas y los bordes de las carreteras, sobre todo a primera hora de la mañana y al atardecer. Los cazadores locales lo capturan con lazos sencillos de pelo o de alambre, colocados en sus sendas o junto a comida esparcida sobre la hojarasca. Los grupos suelen ser de tres o cuatro aves, aunque se han registrado hasta diez, incluidos grupos mixtos y de un solo sexo, a los que se unen de vez en cuando ejemplares de faisán plateado y de gallo rojo (Gallus gallus). (Beebe, 1921; McGowan y Kirwan, 2020 (BOW))
En libertad
Johnsgard (1986) lo describe como omnívoro: se cree que se alimenta de todo tipo de frutos, bayas, insectos, gusanos y pequeños cangrejos terrestres, según Baker (1928), y que, según Beebe, busca insectos cerca del ganado o de los búfalos y escarba en el mantillo del bosque; forrajea por la mañana y a última hora de la tarde, solo o en grupos familiares (Beebe, 1921; Delacour, 1977; Johnsgard, 1986). HBW lo resume igual: se cree omnívoro, con frutos y bayas caídos, insectos, gusanos y pequeños cangrejos terrestres (del Hoyo et al., 1994). Wikipedia en francés añade que las hojarascas gruesas y húmedas deben de proporcionar muchos invertebrados, con alto contenido proteico, y que acecha a los insectos cerca del ganado o de los gaures (Wikipedia (fr)). La edición tailandesa de Wikipedia da una lista más larga: gusanos de tierra, insectos, pequeños animales, semillas de hierbas y de plantas, granos de arroz, frutos maduros caídos, como los de higuera, y semillas de bambú (khui phai); dice que prefiere los animales a las plantas (Wikipedia (th)).
En cautividad
En cautividad puede resultar adecuada una dieta basada en un buen pienso para faisanes, acompañado de frutas, verduras, gusanos de harina y otros complementos similares. Los machos amansados llegan a tomar los gusanos directamente de los dedos de su cuidador. (Delacour, 1977; Hernández García, 2013; Howman, 1993)
Schomburgk contó que un ave de un templo siamés se había alimentado con alevines de pescado, gambas y camarones, en lugar de cereales; otro macho que tuvo en casa cazaba arañas y hormigas que trepaban por las paredes, volando a varios pies de altura para atraparlas, se mostraba aficionado a los plátanos y bananas, y comía también arroz con cáscara (Elliot, 1872; Gould, 1860). Delacour dice que los polluelos son delicados para comer, necesitan insectos y comida escogida y no deben asociarse con especies más voraces, y Gerrits insiste en que los insectos vivos son un ingrediente vital (Delacour, 1977; Gerrits, 1974). Howman recomienda una dieta de faisán normal; Roles, el pienso proteico de faisanes o pavos, bien suplementado con grano, fruta y algunos insectos (Howman, 1993; Roles, 1976). Johnsgard cita a Howman (1979) para decir que en cautividad favorecen los alimentos de origen animal, como los insectos, pero pueden vivir con la dieta normal de los faisanes (Johnsgard, 1986). La edición tailandesa de Wikipedia da, para cautividad, el pienso comercial para pollos de engorde o ponedoras según la edad, complementado con gusanos de pájaros, termitas, fruta y vitaminas; un adulto come unos 35 g de pienso al día (Wikipedia (th)).
Cortejo y exhibición
El macho corretea alrededor de la hembra, abanica la cola de lado y, por último, se coloca delante de ella y le picotea el cuello y la piel de la cara.
El cortejo del prelado solo se conoce por BOW, por la exhibición de zumbido de alas que Johnsgard describe como típica del género y por algunas observaciones en cautividad; en la exhibición de las alas el macho muestra el amarillo del dorso, que normalmente queda oculto (Howman, 1993; Johnsgard, 1986; McGowan y Kirwan, 2020 (BOW)).
La exhibición según BOW y Johnsgard
En el cortejo, el macho corretea alrededor de la hembra, que permanece quieta; luego se coloca a su lado abanicando la cola y, por último, delante de ella, picoteándole el cuello y la piel roja de la cara. Se cree que la estación de cría va de marzo a junio en el centro de Tailandia. En un estudio de 21 nidos en Sakaerat (noreste de Tailandia), las puestas se produjeron de abril a principios de agosto, y los nidos se situaban en zonas de cobertura densa, a menudo entre los contrafuertes de grandes árboles. (McGowan y Kirwan, 2020 (BOW))
Johnsgard describe como «posturas del macho» (figura 23) la normal, el batir de alas con la cara congestionada y la llamada; piensa que el zumbido de alas es probablemente la principal exhibición sexual del macho, pero que también es probable que la exhibición lateral, que mostraría los parches de color de la rabadilla, sea parte importante del cortejo (Johnsgard, 1986). Howman describe al macho con las barbillas «encendidas», zumbando las alas para mostrar el amarillo vivo del dorso, normalmente oculto bajo las cobertoras (Howman, 1979; Howman, 1993). Wikipedia en alemán, que cita a Raethel (1988), dice que en la exhibición lateral, típica de muchos faisanes, el macho abre la cola, vuelve el cuerpo con el ala caída hacia la hembra y le presenta las partes coloreadas de la espalda baja (Wikipedia (de)). Wikipedia en francés dice que el cortejo solo se conoce por observaciones en cautividad pero parece típico de otras Lophura, con batidos de alas audibles a distancia al comienzo de la cría (Wikipedia (fr)). HBW cita una nota de Harrison (1968) sobre la exhibición del prelado (del Hoyo et al., 1994).
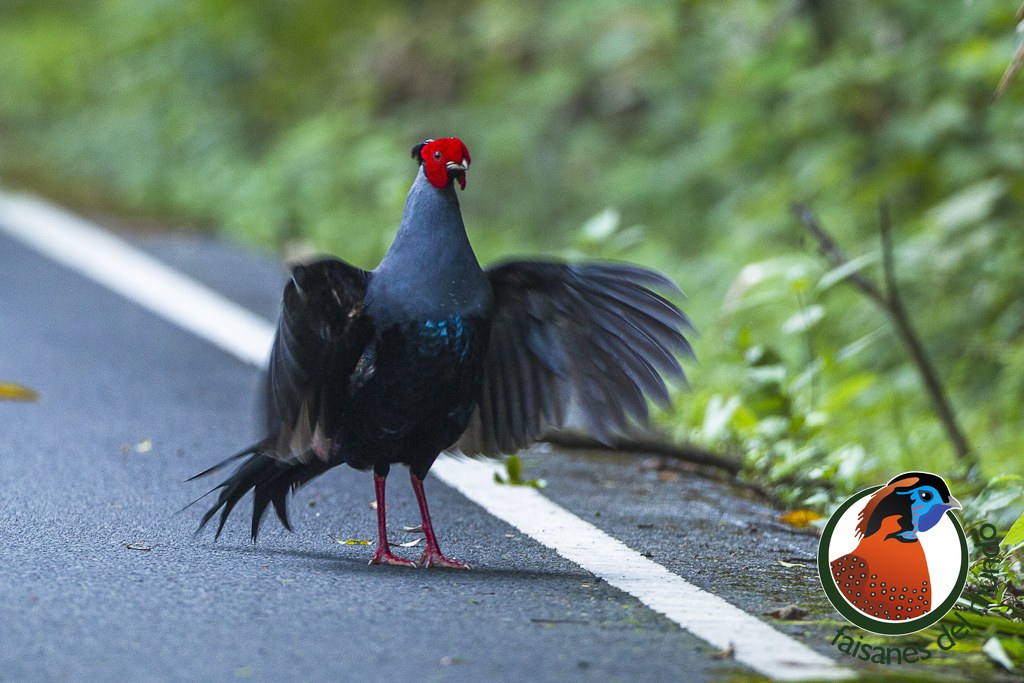
La edición tailandesa de Wikipedia describe el cortejo: el macho saca el pecho, extiende las alas y las bate muy rápido; en la cópula, la hembra se agacha, el macho se sube a su espalda, le pica la cabeza y la cubre rápidamente (Wikipedia (th)).
Cortejo en cautividad
En cautividad, el macho es muy ardiente con la hembra: Delacour dice que persigue con violencia a la hembra en primavera, por lo que conviene alojarlos en un recinto amplio, y Roles, que algunos machos tienen fama de rencorosos e incluso homicidas con las hembras, de modo que el recinto y el refugio deben ser lo más grandes posible y con muchos escondites (Delacour, 1977; Roles, 1976). Schomburgk, con un macho y dos hembras en casa, vio que el macho picoteaba a la hembra que se puso en su jaula y que hubo que retirarla; cuando ambos andaban por la veranda, se mantenían a respetuosa distancia, y dice que el prelado solo se asocia con la hembra en ciertas épocas (Elliot, 1872).
Reproducción en la naturaleza
Nidos en el suelo, entre los contrafuertes de los grandes árboles; seis huevos rosados, incubación de 23–24 días y un éxito de nidada muy bajo.
La reproducción en libertad es, para un faisán tan conocido en cautividad, escasamente conocida: hasta el siglo XXI casi todo se reducía a unas pocas fechas de huevos recogidos, hasta que Suwanrat y sus colegas siguieron 21 nidos en Sakaerat entre 2010 y 2012 (del Hoyo et al., 1994; Madge y McGowan, 2002; Suwanrat et al., 2014).
Madurez
| Fuente | Madurez sexual / plumaje adulto |
|---|---|
| Delacour (1977) | el macho joven adopta el plumaje adulto el primer año, algo más apagado; las hembras no suelen poner hasta los tres años; el macho no suele criar hasta el tercer año (Delacour, 1977) |
| Johnsgard (1986) | la cría no suele ocurrir hasta el tercer año, aunque las aves de segundo año también pueden ser fértiles; los machos están totalmente coloreados antes del año, pero la cola crece en el segundo (Johnsgard, 1986) |
| Howman (1979, 1993, 1996) | plumaje adulto en el primer año, algo más apagado; suelen tardar tres años en madurar (Howman, 1979; Howman, 1993; Howman, 1996) |
| Roles (1976) | suelen criar en el tercer año pese a adquirir el plumaje adulto en el primero (Roles, 1976) |
| Libro del autor, vol. II (2014) | madurez sexual de 2 años (tabla de la ficha técnica de incubación) (Hernández García, 2014) |
| Criadero Chintaguay (2006) | los machos son maduros sexualmente al segundo año; las hembras suelen serlo al tercero (del Campo, 2006) |
| Ficha original | segundo año de vida; los mejores resultados, a partir del tercero (Hernández García, 2013) |
| Wikipedia en tailandés | pueden criar y poner a los 2 años (Wikipedia (th)) |
Calendario
Las fuentes de libertad no coinciden en el inicio ni el fin: BOW habla de marzo a junio para Tailandia central, y el estudio de Sakaerat, de abril a principios de agosto, puesta que empieza aproximadamente un mes antes del comienzo de la estación de lluvias, en mayo (McGowan y Kirwan, 2020 (BOW); Suwanrat et al., 2014).
El nido
En el estudio de Sakaerat, todos los nidos tenían una estructura a un lado, como el tronco de un árbol, una pared rocosa o un arbusto denso; de los 16 nidos de las ocho hembras con radiotransmisor, 10 (62,5 %) estaban entre los contrafuertes de grandes árboles, cuatro (25 %) en el suelo con arbustos densos o hierba, uno (6,25 %) en un grupo de ratán y otro (6,25 %) entre rocas; los tres nidos hallados al azar estaban entre contrafuertes (Suwanrat et al., 2014). El diámetro medio a la altura del pecho de los árboles con nido (de los géneros Hopea, Irvingia, Parkia y Ficus) era de 185,4 ± 24,7 cm (n = 15 árboles; entre 63,5 y 359,0 cm) (Suwanrat et al., 2014). Estadísticamente, los nidos se hallaban en zonas con una cubierta vegetal densa por debajo de 0,5 m (33,9 % frente al 12,2 % de los puntos de control), en pendientes algo más pronunciadas (10,9° frente a 8,3°; diferencia no significativa por sí sola), con una gran área basal de árboles de más de 10 cm de diámetro y una presión de depredación menor (Suwanrat et al., 2014). Los autores lo interpretan como una estrategia para que el nido sea menos visible y para facilitar la huida volando cuando un depredador ataca (Suwanrat et al., 2014). Madge y McGowan citan un nido en el suelo, en un hueco de un árbol (el de Baker, 1928, según Johnsgard) (Johnsgard, 1986; Madge y McGowan, 2002). Un estudio anterior de una población submontana (Sukumal y colaboradores, 2010; Khao Yai) halló la misma preferencia por los contrafuertes y las pendientes de más de 10° y un éxito de nidada del 45 % (cinco de 11 nidos) (Suwanrat et al., 2014).
Puesta e incubación
Según estudios de campo realizados en Tailandia (Suwanrat y colaboradores, 2014), la puesta silvestre se sitúa en torno a 4-8 huevos de tono rosa pálido, con una media próxima a 6, y una incubación de 23 a 24 días (hasta 25 según otras fuentes). El éxito de los nidos es muy bajo, de apenas un 8 % estimado, a causa de la depredación. Son cifras orientativas obtenidas en libertad que pueden servir de referencia junto a la experiencia de cría en cautividad descrita más arriba. Un huevo recogido en Siam y descrito a comienzos del siglo XX era de un blanco azulado con un leve matiz rojizo y medía 48 por 38 mm. Los pollos de plumón son marrones por encima y blanco leonado por debajo. (McGowan y Kirwan, 2020 (BOW); Suwanrat et al., 2014)

| Fuente | Huevos | Incubación (días) | Observaciones |
|---|---|---|---|
| Suwanrat y colaboradores (2014; libertad, Sakaerat) | 6,4 ± 0,3 (n = 18 nidos; 4–8); primeras puestas 6,6 ± 0,3 (n = 12); segundas 6,0 ± 0,6 (n = 3); tercera, 4 huevos | 23–24 (dos nidos con éxito; 23,5 días de media) | media de 35,5 ± 3,8 días (25–43) entre el fracaso de un nido y la repetición de la puesta (Suwanrat et al., 2014) |
| Sukumal y colaboradores (2010; libertad, Khao Yai) | media similar | 23,5 | citado por Suwanrat y colaboradores (Suwanrat et al., 2014) |
| BOW | media de 6,4 ± 0,3 (4–8) | 23–24 | huevos de color rosa pálido (McGowan y Kirwan, 2020 (BOW)) |
| Madge y McGowan; HBW | 4–8 huevos de color rosa leonado pálido, bastante redondos | 24–25 (en cautividad) | un nido en un hueco de un árbol, en el suelo (del Hoyo et al., 1994; Madge y McGowan, 2002) |
| Delacour (1977) | 5–8, de 48 × 38 mm de media | 24–25 | cortos y redondeados (Delacour, 1977) |
| Johnsgard (1986) | 5–8 en cautividad, que se supone normal para la libertad | 24–25 (cautividad) | una nidada de 8 el 19 de abril (Johnsgard, 1986) |
| Libro del autor (vol. II) y ficha de la Chintaguay | 4–8; en libertad, 5–8 por temporada | 24–25 | época de puesta: N, abril; S, octubre (del Campo, 2006; Hernández García, 2014) |
| Howman (1979, 1993, 1996) | 5–8 | 24–25 | aviario mínimo de 150–200 pies cuadrados (14–18,6 m²) (Howman, 1979; Howman, 1993; Howman, 1996) |
| Wikipedia (fr, de, th) | fr: 1 a 8, recogidos episódicamente; de: 5–8 de 48 × 38 mm; th: — | fr: 24–25; de: unos 23; th: 23–25 | fr: solo se ven machos de marzo a junio, lo que sugiere que las hembras incuban o están ocultas con las crías (Wikipedia (de); Wikipedia (fr); Wikipedia (th)) |
Las cifras aproximadas de varias fuentes se aceptan como correctas y no se tratan aquí como una discrepancia.
La hembra incuba sola (BOW, Suwanrat y colaboradores); los pollitos de plumón son marrones por encima y blanco leonado por debajo (McGowan y Kirwan, 2020 (BOW); Suwanrat et al., 2014). BOW dice que en libertad el éxito global del nido fue de un 8 % y que la depredación fue la principal causa del fracaso (McGowan y Kirwan, 2020 (BOW)).
Éxito de nidada y depredadores
La supervivencia diaria del nido fue de 0,90 ± 0,02 (intervalo de confianza del 95 %: 0,85–0,94), lo que da un éxito global de 0,08 ± 0,04: solo dos de los 18 nidos controlados eclosionaron; los demás fracasaron por depredación de la nidada o de la hembra (Suwanrat et al., 2014). Se halló una pitón reticulada (Malayopython reticulatus) en un nido con dos huevos intactos, y se cree que la hembra ya había sido devorada mientras incubaba (Suwanrat et al., 2014). Las cámaras trampa fotografiaron, en 1.965 noches-trampa, 116 detecciones independientes de diez posibles depredadores: chacal dorado asiático, civeta de las palmeras, tejón porcino (Arctonyx collaris), civeta india grande, civeta de manchas grandes, civeta india pequeña, gato leopardo, mangosta pequeña asiática, macaco de cola de cerdo y varano de Bengala; los más frecuentes fueron la civeta de las palmeras (60,3 %) y el macaco de cola de cerdo (12,1 %) (Suwanrat et al., 2014). Los autores avisan de que la cifra de éxito debe tomarse con cautela por la muestra pequeña (dos nidos con éxito) (Suwanrat et al., 2014).
Las crías
No hay observaciones de la crianza de los pollos en libertad: la edición francesa de Wikipedia deduce, de que solo se vean machos entre marzo y junio, que las hembras incuban o están ocultas con sus crías en el sotobosque (Wikipedia (fr)). La edición tailandesa de Wikipedia dice, para las crías en cautividad, que el sexo puede reconocerse desde el nacimiento porque el borde de piel de la cara es más marcado en el macho, y con seguridad a las 4–5 semanas, por la forma y el color de las plumas (Wikipedia (th)). Sobre el plumón, véase el capítulo de morfología (Delacour, 1977; McGowan y Kirwan, 2020 (BOW)).
Cría en cautividad
Relativamente común, resistente y fácil de mostrar, pero con un macho que puede ser agresivo y unos polluelos delicados.
En cautividad es una especie relativamente común, que puede encontrarse en muchas colecciones privadas. Ya a comienzos del siglo XX, muchos ejemplares capturados por los siameses se llevaban al mercado de Bangkok, desde donde llegaban a numerosos zoológicos y pajareras particulares de todo el mundo; la Sociedad Zoológica de Londres llegó a criarlos varias veces en sus jardines. (Beebe, 1921; Delacour, 1977; Hernández García, 2014; Howman, 1993)
Los faisanes prelado se consideran monógamos y se mantienen en pareja, aunque en libertad el sistema de apareamiento descrito es aparentemente polígamo, con un macho dominante que monopoliza en gran medida el acceso a todas las hembras del grupo. Pese a que se reproducen relativamente bien, no es una especie recomendable para criadores noveles: es sensible al frío, sobre todo por el riesgo de congelación de los dedos, y sus polluelos, muy delicados, deben alojarse en un lugar seco, limpio y caliente. Además, los polluelos comen muy mal al principio y es preciso estimularlos; una buena idea sería incluir un polluelo de otra especie, como el faisán Swinhoe o el plateado. Su alimentación consiste en un buen pienso para faisanes rico en proteínas, al que pueden añadirse algunos gusanos de harina como complemento, que además sirven de estímulo para que coman. (Delacour, 1977; Gerrits, 1974; Hernández García, 2013; Howman, 1993)
Programas de cría y población cautiva
El libro del autor (vol. II) recoge a la especie, en la lista de «programas regionales», en la categoría «seguimiento de población» de la EAZA (Hernández García, 2014). Delacour dice que la especie se asentó pronto en las colecciones de toda Europa por ser prolífica, fácil de criar y muy bella (Delacour, 1977); Howman la sitúa en una situación «aceptable» (fair) en cautividad en 1993 (Howman, 1993). Johnsgard cuenta que se había intentado criarla en un centro de cría de Bangpra (Tailandia) con aves obtenidas de Inglaterra (Johnsgard, 1986); la edición francesa de Wikipedia dice que hubo un programa de cría in situ con vistas a una reintroducción, y que Bangpra era a mediados de los años ochenta uno de los mejores centros de cría de faisanes del sudeste asiático (Wikipedia (fr)). En Tailandia, según la edición tailandesa de Wikipedia, las autoridades fomentan hoy la cría en cautividad por personas con licencia, y los ejemplares importados de otros países cuestan mucho (Wikipedia (th)).
| Año | Sección WPA | Machos / hembras | Jóvenes del año | Observaciones |
|---|---|---|---|---|
| 2010 | Alemania (BRD) | 11 / 11 | 8 | criadores: 9 (Censo WPA) |
| 2010 | Francia (F) | 11 / 11 | 8 | (Censo WPA) |
| 2010 | Reino Unido (UK) | no declarado | 19 | (Censo WPA) |
| 2015 | Alemania | 12 / 12 | 28 | criadores: 10 (Censo WPA) |
| 2015 | Francia | 12 / 20 | 0 | (Censo WPA) |
| 2015 | Reino Unido | 13 / 12 | 32 | (Censo WPA) |
| 2020 | Alemania | 10 / 10 | 39 | criadores: 7 (Censo WPA) |
| 2020 | Francia | 9 / 9 | 15 | (Censo WPA) |
| 2020 | Reino Unido | 11 / 11 | 38 | (Censo WPA) |
| 2025 | Alemania | 14 / 14 | 31 | criadores: 14 (Censo WPA) |
| 2025 | Francia | 8 / 8 | 4 | (Censo WPA) |
| 2025 | Reino Unido | 2 / 2 | 0 | (Censo WPA) |
| 2025 | Austria (A) | 6 / 5 | 9 | (Censo WPA) |
| 2025 | Benelux (B) | 18 / 18 | 8 | (Censo WPA) |
Datos del censo de la WPA descargados por el autor del sitio; un cero significa «no declarado», el número de criadores solo se declara en Alemania, y los años solo se comparan entre las secciones que declaran en todos ellos (Alemania, Francia y Reino Unido). Otros años han declarado también Austria, Benelux, Chequia y Eslovaquia, Hungría, Polonia y España (Censo WPA).
La nota de esta sección con los datos de la WPA y de los zoológicos de ZIMS (Species360), generada a partir de los censos, se añade al final del capítulo.
Instalaciones y manejo
Howman da como aviario mínimo 150–200 pies cuadrados (14–18,6 m²), con un buen refugio sin corrientes de aire y, en invierno, un poco de calor (Howman, 1979; Howman, 1993; Howman, 1996). Delacour prefiere un recinto amplio, porque en primavera el macho persigue a la hembra con violencia; en invierno muy severo conviene encerrarlos en un cobertizo sin calefacción sobre una cama gruesa de paja, porque el frío y la humedad deforman los dedos (Delacour, 1977; Gerrits, 1974). Roles dice que tanto el aviario como el refugio deben ser lo más grandes posible, con muchos escondites para la hembra, y que los machos tienen fama de rencorosos (Roles, 1976). El criadero Chintaguay dice que no soportan climas muy fríos (del Campo, 2006).
Los faisanes prelado alcanzan la madurez sexual al segundo año de vida, aunque los mejores resultados se obtienen a partir del tercero. Se anillan con anillas de 12 mm de diámetro. Para obtener buenos resultados es preciso alojar a la pareja en una instalación amplia, con vegetación considerable. Aunque se aconseja calor en invierno, los ejemplares pueden conformarse con un refugio. (Corder; del Campo, 2006; Delacour, 1977; Hernández García, 2013; Hernández García, 2014; Howman, 1993)
Temperamento y longevidad en cautividad
En cautividad estas aves se amansan pronto: a comienzos del siglo XX se decía que no había macho que no acabase acercándose a su cuidador para tomar gusanos de harina de sus dedos. Son, sin embargo, muy fuertes, y con sus espolones pueden causar graves daños a otras aves. Si se dejan sueltos con gallinas, desafían a todos los gallos, y un testimonio publicado en The Field recogido por Beebe aseguraba que ni siquiera un gallo de pelea hábil y fuerte, con el doble de peso, tenía opción frente a un prelado. Al parecer, recortarle los espolones no le hizo perder el ánimo, aunque los gallos, al verlo desarmado, se desquitaron de agravios anteriores. (Beebe, 1921; Elliot, 1872)
De ocho ejemplares que vivieron en los jardines de la Sociedad Zoológica de Londres, la vida media fue de tres años y cuatro meses, y uno de ellos llegó a vivir nueve años y tres meses. (Beebe, 1921)

Cría natural y artificial
Delacour y Gerrits dicen que los polluelos son fáciles de criar, pero que deben protegerse del sol, que son delicados para comer y que no deben asociarse con especies más voraces; Delacour añade que son bastante sensibles a los gérmenes y recomienda inocularlos a los tres meses contra la paratifoidea (Delacour, 1977; Gerrits, 1974). Roles dice que son susceptibles a la tuberculosis y la paratifoidea (Roles, 1976). Roles, Howman y Johnsgard dan una incubación de 24–25 días (Howman, 1993; Johnsgard, 1986; Roles, 1976); el libro del autor, 24–25 y una puesta de 4–8 huevos en el hemisferio norte en abril y en el sur en octubre (Hernández García, 2014). Los parámetros generales de incubación artificial y de crianza de los faisanes, con sus temperaturas y humedades, figuran en el capítulo de cautividad de la ficha del faisán dorado; ninguna de las fuentes leídas da un valor propio de esta especie.
Híbridos en la pajarera
La tabla de hibridación del criadero Chintaguay, que adapta la de Johnsgard (1999), da, para el prelado: cruces comunicados en cautividad con el kalij, el faisán de Swinhoe y el espalda de fuego crestado (L. ignita); con el faisán plateado, híbridos con machos fértiles o a veces fértiles; y un cruce cuestionable con el gallo rojo (del Campo, 2006; Johnsgard, 1999). Avibase enumera híbridos de Lophura diardi con Gallus gallus, L. ignita, L. leucomelanos, L. nycthemera (también con la subespecie lineata), L. swinhoii y Syrmaticus soemmerringii (Avibase). El cruce con el faisán cobrizo no figura en la tabla de la Chintaguay (Avibase; del Campo, 2006).
Cría para la conservación
BirdLife dice que la especie no es objeto de conservación ex situ y que existe cierta demanda en cautividad, considerada una amenaza insignificante (BirdLife, 2025). En la lista de programas regionales del libro del autor figura como «seguimiento de población» (y no con la etiqueta «EEP», «ESB europeo» o «no recomendado») (Hernández García, 2014).
Estado de conservación
Casi amenazado: de «preocupación menor» entre 2011 y 2016 a casi amenazado de nuevo en 2025, con una población sin estimar y en descenso por la pérdida de bosque y los lazos.
Cerca de cumplir los criterios de amenaza; población en descenso inferido por la pérdida de bosque y la caza con lazos (BirdLife, 2025). Región: Sudeste asiático.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La UICN califica al faisán prelado como casi amenazado (NT; evaluación de 2025, criterios A2cd+3cd+4cd); BirdLife dice que, aunque la especie se ha mostrado adaptable a la degradación del bosque y a cierta caza, la extensa pérdida de bosque, junto con una caza local a escala industrial, probablemente provoca ya un descenso moderadamente rápido de la población, y que la especie se acerca a los umbrales para ser considerada amenazada (BirdLife, 2025).
- NTcasi amenazadasegún la UICN (BirdLife, 2025), A2cd+3cd+4cd
- 1.040.000km²de extensión de presencia
- 7,0añosde longitud de generación (BirdLife)
La justificación de la categoría
BirdLife sospecha un descenso del 15–29 % en tres generaciones (21 años, con una generación de 7,0 años); en ese tiempo la cobertura forestal ha disminuido un 23–26 % en el área de distribución (Global Forest Watch, 2025, con datos de Hansen y colaboradores, 2013), y mucha de la pérdida es una tala rasa para infraestructuras y agricultura, sin hábitat adecuado remanente (BirdLife, 2025). Aunque la especie ha sido considerada «de baja prioridad» (Brickle y colaboradores, 2008) y varios textos recientes dicen que sigue siendo localmente común o abundante, BirdLife entiende que es «muy probable» que haya disminuido moderadamente rápido durante las tres últimas generaciones; la relación entre la pérdida de bosque y la tendencia puede no ser lineal (BirdLife, 2025). La caza es muy intensa en todo el área (Harrison y colaboradores, 2016); la especie tolera extraordinariamente bien la caza, pero menos el lazo intensivo, que en Laos la ha extirpado de zonas accesibles y fragmentadas (Timmins y colaboradores, 2024) (BirdLife, 2025).
Evolución de su estado de conservación según la UICN: 1988, Threatened (T); 1994 y 1996, Vulnerable (VU); 2000, Lower Risk/near threatened (LR/nt); 2002, 2004, 2007 y 2008, Near Threatened (NT); 2011 y 2012, Least Concern (LC). (BirdLife, 2025)
La categoría vigente de la especie es la de casi amenazada (NT).
Cómo ha cambiado la valoración
| Año | Fuente | Valoración |
|---|---|---|
| 1988 | UICN (BirdLife) | amenazada (Threatened) (BirdLife, 2025) |
| 1994 | UICN (BirdLife); HBW | vulnerable; HBW: «rara»; Mace-Lande: vulnerable (5.000–10.000 aves) (BirdLife, 2025; del Hoyo et al., 1994) |
| 1996 | UICN; Howman | vulnerable (también «threat category vulnerable» en Howman, 1996) (BirdLife, 2025; Howman, 1996) |
| 2000 | UICN; Fuller y Garson | riesgo menor / casi amenazada; Fuller y Garson: casi amenazada, con una población que puede ser de solo 10.000 aves (BirdLife, 2025; Fuller y Garson, 2000) |
| 2002–2008 | UICN | casi amenazada (2002; 2004, A2cd+3cd;C1; 2007, A2cd+3cd; 2008, A2c,d; A3c,d; A4c,d) (BirdLife, 2025) |
| 2011, 2012, 2016 | UICN | preocupación menor (BirdLife, 2025) |
| 2025 | UICN (BirdLife) | casi amenazada, A2cd+3cd+4cd (BirdLife, 2025) |
Población silvestre: todas las estimas
| Año | Fuente | Estima | Base |
|---|---|---|---|
| 1986 | Johnsgard | sin cifras; «poco se sabe del estado de la especie» | deforestación de Tailandia: del 56 % de bosque en 1960 al 25 % en 1978 (Johnsgard, 1986) |
| 1994 | HBW (McGowan) | 5.000–10.000 aves | unos 5.000 en Tailandia (estima reciente) y el hábitat adecuado en el resto (del Hoyo et al., 1994) |
| 2000 | Fuller y Garson | quizá solo 10.000 | situación de «casi amenazada»: gran área de distribución, pero con una población que puede ser de solo 10.000 aves, de modo que se debe vigilar (Fuller y Garson, 2000) |
| 2002 | Madge y McGowan | unas 5.000 en Tailandia; unas 10.000 en total | estima basada en el hábitat disponible (Madge y McGowan, 2002) |
| 2016 (texto) | BOW | 5.000–10.000; unas 5.000 en Tailandia; quizá 2.000 en Camboya | área de distribución citada de 511.000 km² (McGowan y Kirwan, 2020 (BOW)) |
| 2025 | BirdLife | «probablemente decenas de miles»; sin estima robusta; individuos maduros sin estimar | densidades de Suwanrat y colaboradores y variación de la caza (BirdLife, 2025) |
| — | Wikipedia (fr, de) | 10.000 en el sudeste asiático, 5.000 en Tailandia (fr); mundial 5.000–10.000 (de) | no se cita la procedencia (Wikipedia (de); Wikipedia (fr)) |
La edición alemana de Wikipedia añade que las poblaciones habrían disminuido un 30 % en los diez años anteriores; el dato no se ha podido comprobar en otra fuente (Wikipedia (de)). Las cifras de 5.000–10.000 aves de las fuentes de 1994 a 2016 no coinciden con la estima actual de «decenas de miles».
Se considera una especie bastante común en su estado natural. No obstante, como ocurre con muchas otras, la destrucción del hábitat y la caza mantienen la población en un número estable y no permiten su aumento. Se estima que hay entre 5000 y 10.000 aves, con unas 5000 solo en Tailandia y quizá unas 2000 en Camboya. La amenazan la degradación del hábitat y la caza, tanto para consumo como deportiva: en el Área Nacional de Biodiversidad de Xe Pian, en Laos, probablemente se capturan unos 100 ejemplares al año. Al ser una especialista de los bosques de tierras bajas, es muy vulnerable a su alteración. (del Hoyo et al., 1994; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW))
Tendencia
BirdLife infiere un descenso de la población en respuesta a la pérdida continua de la cobertura forestal y a la caza; no hay fluctuaciones extremas, y se da por continua la disminución de los individuos maduros (BirdLife, 2025). Round y Gale (2008) vieron aumentar en Khao Yai el número y la proporción de registros del prelado frente al faisán plateado: 18,6 % del total de ambos en 1979–1993 y 60,1 % en 1994–2004; en la parcela de Mo-Singto no se registró el prelado en 1982–1985 y en 2001–2004 hubo 49 observaciones (84 aves), frente a 23 de plateados (48 aves) (Round y Gale, 2008). Atribuyen el aumento, probablemente, a un cambio ambiental mediado por el clima, sin poder probarlo (Round y Gale, 2008).
Medidas de conservación
BirdLife dice que la especie está en varias áreas protegidas, que a menudo dan solo una protección limitada contra la caza y la tala; propone ampliar la red de áreas protegidas, apoyar a los gobiernos para controlar la tala ilegal en el sudeste asiático, determinar el tamaño y la tendencia de la población y apoyar las medidas contra la caza dentro de las áreas protegidas (BirdLife, 2025).
| Medida | Estado | Fuente |
|---|---|---|
| Plan de recuperación | no | BirdLife (BirdLife, 2025) |
| Seguimiento sistemático | no | BirdLife (BirdLife, 2025) |
| Sitios de conservación identificados | sí, en todo el área de distribución (32 IBA/KBA) | BirdLife (BirdLife, 2025) |
| Conservación ex situ | no (BirdLife); «seguimiento de población» en el programa europeo (libro del autor) | BirdLife; libro (BirdLife, 2025; Hernández García, 2014) |
| Legislación internacional / controles comerciales internacionales | no; no figura en CITES | BirdLife; CITES (BirdLife, 2025; CITES (Species+)) |
| Programas de educación y sensibilización | no | BirdLife (BirdLife, 2025) |
| Protección legal en Tailandia | especie silvestre protegida (Wikipedia en tailandés); ave nacional «de facto» desde 1985 (Wikipedia en inglés) | Wikipedia (Wikipedia (símbolos de Tailandia); Wikipedia (th)) |
Protección legal y CITES
La especie no figura en los apéndices de CITES: la búsqueda del género «Lophura» en el Checklist de CITES (17 de noviembre de 2026) devolvió solo L. edwardsi (apéndice I, Vietnam), L. leucomelanos (apéndice III) y L. swinhoii (apéndice I, Taiwán) (CITES (Species+)). BirdLife confirma que no está incluida en ninguna legislación ni control internacional (BirdLife, 2025). La edición tailandesa de Wikipedia dice que la ley tailandesa la cataloga como animal silvestre protegido y que está en peligro de extinción en la naturaleza (Wikipedia (th)).
Poblaciones introducidas y asilvestradas
Ninguna de las fuentes consultadas menciona poblaciones introducidas o asilvestradas de esta especie. La única mención fuera de su área es el supuesto registro de Ranikhet (India) de la edición inglesa de Wikipedia, de junio de 2025, sin confirmar (POR VERIFICAR) (Wikipedia (en)).
Población en cautividad
Véase el capítulo de cría en cautividad (tabla de población cautiva por años, según el censo de la WPA).
Amenazas y protección
Pérdida de bosque de tierras bajas, y sobre todo la caza con lazos, que BirdLife considera más grave que la caza con armas.
Las amenazas principales, para BirdLife, son la continua destrucción extensa del bosque de tierras bajas del área de distribución y, quizá con más gravedad, la caza y los lazos; aun así, la especie es resistente a la degradación del hábitat y puede tolerar una fuerte presión de caza, aunque menos el lazo (BirdLife, 2025).
Pérdida y degradación del hábitat
Según BirdLife, la tasa de pérdida de cobertura forestal, por la tala y la conversión a plantaciones, es lo bastante rápida como para que sea muy probable que provoque ya descensos moderadamente rápidos; en Laos el bosque se convierte en plantaciones de eucalipto, acacia, caucho, árboles frutales y mandioca; en Tailandia hay indicios de que la especie vive en plantaciones a una densidad muy inferior a la del bosque nativo (BirdLife, 2025). Al ser una especialista de los bosques de tierras bajas, es muy vulnerable a su alteración generalizada (HBW, BOW, Madge y McGowan), aunque Madge y McGowan dicen que hay incertidumbre sobre la especificidad del hábitat (del Hoyo et al., 1994; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)). Johnsgard cita la deforestación de Tailandia: del 56 % de superficie forestal en 1960 al 25 % en 1978; hacia 1981, un 15 % de los bosques restantes, unos 8 millones de acres, estaban protegidos como parques nacionales y santuarios, y el 85 % eran bosques de reserva nacional gestionados para madera (Johnsgard, 1986).
La caza y la captura
La caza es muy intensa en todo el área, con la mayor presión en Laos, Vietnam y Camboya, y la especie es muy resistente a ella, con densidades apenas inferiores en bosque muy cazado en Laos (Brickle y colaboradores, 2008), pero menos al lazo intensivo, una amenaza considerable en Laos, Vietnam y Camboya (Gray y colaboradores, 2018) (BirdLife, 2025). Se caza para alimento humano (subsistencia y nacional), para mascotas y exhibición (internacional) y como caza deportiva o coleccionismo (subsistencia y nacional) (BirdLife, 2025). BOW da la sobreexplotación con fines alimentarios y deportivos y estima que en Xe Pian (Laos) se capturan, probablemente, 100 ejemplares al año; Madge y McGowan hablan de «cientos» capturados con lazo cada año en el sur del área de Xe Pian (Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)). Beebe dice que los siameses los capturan con lazos de pelo o de alambre en las sendas y los llevan al mercado de Bangkok (Beebe, 1921). La edición tailandesa de Wikipedia dice que hoy es muy raro en la naturaleza (Wikipedia (th)).
Depredación y enfermedad
En Sakaerat, los depredadores de nidos y de hembras incubando son sobre todo la civeta de las palmeras y el macaco de cola de cerdo, con una pitón reticulada documentada; la depredación fue la principal causa de fracaso de los nidos (Suwanrat et al., 2014). Delacour y Roles señalan que los polluelos criados en cautividad son sensibles a la paratifoidea (Roles añade la tuberculosis); ninguna fuente describe enfermedades en libertad (Delacour, 1977; Roles, 1976).
| Amenaza | Alcance y gravedad | Fuente |
|---|---|---|
| Agricultura agroindustrial y de pequeños propietarios | en curso; minoría (<50 %); declives lentos y significativos; impacto bajo | BirdLife (BirdLife, 2025) |
| Plantaciones de madera y pulpa | en curso; minoría (<50 %); declives lentos y significativos; impacto bajo | BirdLife (BirdLife, 2025) |
| Caza y trampeo intencionados | en curso; mayoría (50–90 %); declives lentos y significativos; impacto bajo | BirdLife (BirdLife, 2025) |
| Tala de subsistencia o a pequeña escala | en curso; minoría (<50 %); declives lentos y significativos; impacto bajo | BirdLife (BirdLife, 2025) |
| Lazos (caza no discriminada) | amenaza considerable en Laos, Vietnam y Camboya; extirpación de zonas accesibles y fragmentadas en Laos | BirdLife (BirdLife, 2025) |
| Depredación de nidos | éxito de nido del 8 % en Sakaerat; principal causa de fracaso | Suwanrat y colaboradores (Suwanrat et al., 2014) |
| Comercio de aves vivas | cierta demanda en cautividad; amenaza considerada insignificante | BirdLife (BirdLife, 2025) |
Subespecies y variación
Especie monotípica: no hay subespecies reconocidas ni mutaciones de color descritas; sí se conocen híbridos en cautividad.
No se reconocen subespecies de faisán prelado; se trata, por tanto, de una especie monotípica. (BirdLife, 2025; Hernández García, 2013; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW))
Su situación taxonómica ha sido más debatida a nivel de género que de subespecie: el prelado fue incluido en un género propio (Diardigallus) y, a comienzos del siglo XX, Beebe lo mantuvo en Lophura con reservas, por la singularidad del plumaje de la hembra. (Beebe, 1921; Elliot, 1872)
Johnsgard (1986) titula la sección «distribución de subespecies: ninguna reconocida»; Madge y McGowan, «variación geográfica: monotípica»; HBW y BOW, «monotípica»; Howman: «no se conocen subespecies» (del Hoyo et al., 1994; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002; McGowan y Kirwan, 2020 (BOW)). Ninguna de las fuentes consultadas describe variación geográfica, formas locales o mutaciones de color del prelado.
Híbridos y variedades en cautividad
Véanse los híbridos en cautividad del capítulo de cría: según la tabla de Johnsgard (1999) adaptada por el criadero Chintaguay, el prelado se ha cruzado con el kalij, el faisán de Swinhoe y el espalda de fuego crestado, y con el faisán plateado (con machos híbridos fértiles o a veces fértiles); Avibase lista además híbridos con el gallo rojo y con el faisán cobrizo (Avibase; del Campo, 2006; Johnsgard, 1999). Ninguna de las fuentes consultadas describe variedades de color en cautividad.
Cultura y curiosidades
El ave nacional de Tailandia, protagonista de un cuento popular, y el homenaje de un príncipe francés a un naturalista viajero.
El ave nacional de Tailandia
El faisán prelado es el ave nacional «de facto» de Tailandia: según la edición inglesa de Wikipedia, fue propuesto por la Oficina de Conservación de Vida Silvestre y refrendado por el Consejo de Ministros en 1985 (con fuente en un artículo de Culture Trip de 2018) (Wikipedia (símbolos de Tailandia)). La tabla de Wikipedia lo incluye entre los símbolos nacionales «de facto»; no se ha comprobado la fecha de 1985 con una fuente oficial tailandesa (POR VERIFICAR) (Wikipedia (símbolos de Tailandia)).
Su nombre en tailandés es kai fa phaya lo (ไก่ฟ้าพญาลอ), que la edición inglesa de Wikipedia traduce como «faisán del señor Lo»: según la literatura popular tailandesa del Lilit Phra Lo, el protagonista, Phra Lo, queda hechizado al seguir al faisán hasta que encuentra a Phra Phuean y Phra Phaeng, las dos hermanas que después serán sus amantes (Wikipedia (en)). Ni BOW ni BirdLife mencionan el cuento.
El nombre y el naturalista
El nombre honra a Pierre-Médard Diard, nacido el 19 de marzo de 1794 (según Wikipedia en inglés; Jobling pone 1795) y muerto el 16 de febrero de 1863, naturalista francés que estudió zoología y anatomía con Georges Cuvier y viajó a las Indias Orientales desde 1816 (o 1817, según la edición francesa) (Jobling, 2010; Wikipedia (P.-M. Diard)). Con Alfred Duvaucel recogió animales y plantas para el Museo de París en Chandernagor, acompañó a Raffles en 1818 y, desde Java, envió a París un gran cargamento; trabajó para los holandeses (en 1829 se unió a la Comisión de Historia Natural de las Indias Holandesas y la dirigió desde 1832), y parte de sus ejemplares fueron a Leiden, a Temminck (Wikipedia (P.-M. Diard)). Estuvo en Cochinchina y Camboya, y la edición francesa lo cuenta entre los primeros europeos en visitar Angkor (Wikipedia (P.-M. Diard)). Entre las especies que llevan su nombre, además del faisán prelado, están el leopardo nublado de Borneo (Neofelis diardi), el trogón de Diard (Harpactes diardii) y el malcoha de vientre negro (Phaenicophaeus diardi, que la edición francesa llama Rhopodytes diardi) (Jobling, 2010; Wikipedia (P.-M. Diard)). Jobling cita diardi para Lophura y Rhopodytes, y diardii para Harpactes (Jobling, 2010).
Sellos
Algunos sellos postales del mundo dedicados a esta especie.


Los catálogos filatélicos consultados recogen para esta especie un sello de la República Democrática de Vietnam de 1963 (20 xu, con el nombre Diardigallus diardi), otro de Vietnam de 1979 (12 xu, serie de faisanes), otro de Vietnam de 1997 (3.000 d, serie de faisanes), y dos de Tailandia: uno de 1967 (serie de aves tailandesas) y otro de 2015 (relaciones diplomáticas con Corea del Norte) (Catálogos de sellos). No se ha podido comprobar a cuál de los dos tailandeses corresponde el sello de la imagen (POR VERIFICAR).
Láminas históricas
Esta ficha reproduce las láminas del prelado de Gould (1860), de Elliot (1872) y de G. E. Lodge (Beebe, 1921); véase el capítulo de historia. Sobre los autores: John Gould y Daniel Giraud Elliot tienen ficha propia en el gabinete de autores de esta web; Edward Blyth, que nombró la especie fasciolatus, también (Elliot, 1872; Gould, 1860).
Observaciones y fotografías
Las fotografías de la ficha original son de Dalmiro Coello (macho, hembra, huevos y pollo) y de Isidro (pluma); las de Wikimedia Commons de noviembre de 2026 son de Francesco Veronesi (Khao Yai, licencia CC BY-SA 2.0), Jan Ebr e Ivana Ebrová (Tailandia, CC BY 4.0), Len Worthington (Phu Kieow, CC BY-SA 2.0) y Tientq64 (Hanói, CC BY-SA 4.0); la de B. Sharma está retocada con IA.
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Avibase: la base de datos de aves del mundo (Lepage, D., Bird Studies Canada). Lophura diardi (Bonaparte, CL 1856), identificador 6805AC5A7415198C. avibase.bsc-eoc.org. Consultada el 17 de noviembre de 2026 (referencia original, protónimo, localidad tipo, enlace a la Biodiversity Heritage Library, nombres en varios idiomas, conceptos taxonómicos y lista de híbridos).
- Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
- BirdLife International (2025). Lophura diardi. The IUCN Red List of Threatened Species 2025: e.T22679274A274693356. doi:10.2305/IUCN.UK.2025-2.RLTS.T22679274A274693356.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
- BirdLife International (2025). Species factsheet: Siamese Fireback Lophura diardi. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2025). datazone.birdlife.org. Leída íntegramente el 17 de noviembre de 2026 con el navegador integrado (casi amenazada, criterios A2cd+3cd+4cd; extensión de presencia de 1.040.000 km²; individuos maduros sin estimar; tendencia decreciente inferida; historial desde 1988; amenazas, comercio, acciones y 32 IBA/KBA).
- Bonaparte, C. L. (1856). Excursions dans les divers musées d’Allemagne, de Hollande et de Belgique, et tableaux paralléliques de l’ordre des Échassiers [y de los Gallináceos]. Comptes rendus hebdomadaires des séances de l’Académie des sciences, 43 (sesión del 25 de agosto de 1856): 410–421; Diardigallus y Diardigallus prelatus, pp. 414–415. Leído el 17 de noviembre de 2026 en el volumen digitalizado de Internet Archive (archive.org/details/comptesrendusheb43acad; Avibase enlaza la Biodiversity Heritage Library, ítem 16553). El texto es francés; las traducciones de esta ficha son del autor del sitio. Obra de dominio público.
- Catálogos filatélicos en línea consultados el 17 de noviembre de 2026: birdtheme.org (Vietnam; Tailandia) y Stampworld (Vietnam del Norte, serie de aves de 1963; Vietnam, serie de faisanes de 1979 y de 1997). La lectura de los catálogos se hizo con una herramienta de lectura de páginas: los años y valores deben contrastarse con un catálogo impreso.
- Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan; ficha 129, Siamese Fireback, lámina 55).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas). Euplocomus prælatus, «Siamese Fireback», lámina XXIV del volumen 2, con su texto.
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Gould, J. (1850–1883). The Birds of Asia, vol. VII. Londres: el autor. Lámina 21 y texto de Diardigallus prælatus, «Siamese Fire-back» (parte XII, junio de 1860); ejemplar digitalizado en Internet Archive (BirdsAsiaJohnGoVIIGoul), leído el 17 de noviembre de 2026. Obra de dominio público.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- McGowan, P. J. K. y Kirwan, G. M. (2020). Siamese Fireback (Lophura diardi), versión 1.0 (publicada el 4 de marzo de 2020; texto actualizado el 30 de diciembre de 2016). En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). doi:10.2173/bow.siafir1.01. Ficha completa leída el 18 de noviembre de 2026 con la sesión del autor del sitio (texto en español, traducción automática de BOW). El propio texto dice a la vez «Casi Amenazada» y «No está globalmente amenazada (Preocupación Menor)».
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- Round, P. D. y Gale, G. A. (2008). Changes in the status of Lophura pheasants in Khao Yai National Park, Thailand: a response to warming climate? Biotropica, 40 (2): 225–230. Leído el 17 de noviembre de 2026 en la reproducción del artículo que ofrece thaibirding.com (resumen elaborado con una herramienta de lectura de páginas; las cifras de esta ficha deben contrastarse con el original).
- Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
- Suwanrat, J., Ngoprasert, D., Sukumal, N., Suwanwaree, P. y Savini, T. (2014). Reproductive ecology and nest-site selection of Siamese fireback in lowland forest. The Raffles Bulletin of Zoology, 62: 581–590. Leído íntegro el 17 de noviembre de 2026 (PDF abierto del Lee Kong Chian Natural History Museum / Universidad Nacional de Singapur). Estudio de 2010–2012 en la Reserva de la Biosfera de Sakaerat (Tailandia).
- Suwanrat, S., Ngoprasert, D., Sukumal, N. y Savini, T. (2019). Home range, habitat use and roost-site selection by lowland female Siamese fireback Lophura diardi in northeastern Thailand. The Raffles Bulletin of Zoology, 67: 498–509, doi:10.26107/RBZ-2019-0039. Leído el 17 de noviembre de 2026 (resumen y partes del texto del PDF abierto).
- UNEP-WCMC. Checklist of CITES Species (Species+). checklist.cites.org. Consultada el 17 de noviembre de 2026: la búsqueda del género «Lophura» en todos los apéndices devolvió solo L. edwardsi (apéndice I, Vietnam), L. leucomelanos (apéndice III, varios países) y L. swinhoii (apéndice I, Taiwán); L. diardi no figura.
- Wikipedia (en alemán). Prälatfasan. de.wikipedia.org/wiki/Prälatfasan (consultada el 17 de noviembre de 2026 mediante la API pública). Cita a Raethel (1988) y a Madge y McGowan (2002); no se ha podido comprobar la procedencia de sus pesos (1.180 y 890 g).
- Wikipedia (en español). Lophura diardi. es.wikipedia.org/wiki/Lophura_diardi (consultada el 17 de noviembre de 2026 mediante la API pública).
- Wikipedia (en francés). Faisan prélat. fr.wikipedia.org/wiki/Faisan_prélat (consultada el 17 de noviembre de 2026 mediante la API pública). Se apoya en Hennache y Ottaviani (2005), obra que no se ha consultado directamente.
- Wikipedia (en inglés y en francés). Pierre-Médard Diard. en.wikipedia.org/wiki/Pierre-Médard_Diard (consultadas el 17 de noviembre de 2026 mediante la API pública). La edición francesa cita a Broc (1992) y a Peyssonnaux (1935), obras que no se han consultado.
- Wikipedia (en inglés). National symbols of Thailand. en.wikipedia.org/wiki/National_symbols_of_Thailand (consultada el 17 de noviembre de 2026 mediante la API pública). Da el faisán prelado como ave nacional «de facto», propuesto por la Oficina de Conservación de Vida Silvestre y refrendado por el Consejo de Ministros en 1985, con Culture Trip (Hulme, 2018) como fuente. POR VERIFICAR: no se ha comprobado con una fuente oficial tailandesa.
- Wikipedia (en inglés). Siamese fireback. en.wikipedia.org/wiki/Siamese_fireback (consultada el 17 de noviembre de 2026 mediante la API pública).
- Wikipedia (en tailandés). ไก่ฟ้าพญาลอ. th.wikipedia.org (consultada el 17 de noviembre de 2026 mediante la API pública; leída en tailandés; las traducciones de esta ficha son del autor del sitio).
- World Pheasant Association, censo de faisanes en cautividad (Serena Mueller). wpa.serena-mueller.ch. Datos de Lophura diardi descargados y procesados por el autor del sitio (1999–2025).
- xeno-canto. Faisán siamés (Lophura diardi). xeno-canto.org/species/Lophura-diardi. Consultada el 17 de noviembre de 2026: 29 grabaciones en primer plano y ninguna de fondo, con una duración total de 16 minutos y 40 segundos; el sitio dice que las grabaciones están «restringidas actualmente» (no se pudo ver el detalle).
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán Prelado — Lophura diardi. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/prelado.php.


