Lophura inornata (Salvadori, 1879)NT — Casi amenazado
Salvadori hace referencia al ornitólogo italiano Tommaso Salvadori. Es un faisán misterioso, peculiar y, sobre todo, muy poco representado en cautividad. El nombre «inornata» significa «sin ornamento». Fue clasificado inicialmente como Acomus inornatus, donde «Acomus» significa «sin cresta».
🇪🇸 Faisán de Salvadori🇬🇧 Salvadori pheasant🇫🇷 Faisan de Salvadori🇩🇪 Salvadori-Fasan🇮🇹 Fagiano di Salvadori🇵🇹 Faisão-simplório
El faisán de Salvadori (Lophura inornata) es una especie del género Lophura propia del sudeste asiático, concretamente de los bosques húmedos de montaña de Sumatra, y figura en la lista de la UICN como casi amenazada (NT). Su plumaje, sobrio y poco vistoso, es la clave de su nombre científico. (BirdLife, 2023; BOW, 2020; Hernández García, 2013)
Es un faisán mediano, de unos 46–55 cm, sin cresta y de cola corta y redondeada. El macho es de un negro azulado, con las plumas del cuerpo ribeteadas de azul metálico, la piel desnuda de la cara roja escarlata, el pico blanquecino, las patas grisáceas y el iris rojo anaranjado; tiene además una pequeña mancha amarilla tras el ojo. La hembra es de un castaño rojizo, moteado por unas estrías ante en cada pluma, con la garganta más clara y la cola negruzca (Delacour, 1977; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002).
La descripción original es de Tommaso Salvadori (1879), que la publicó como Acomus inornatus, es decir, como un faisán «sin cresta» y «sin adorno», a partir de un macho cazado con lazo por Odoardo Beccari en el monte Singalan (Sumatra) el 8 de julio de 1878 (Avibase; Jobling, 2010; Salvadori, 1879). Beebe la consideró primero una simple variación del faisán de cola rosa malayo y después una subespecie suya; hoy se la trata como especie propia dentro de Lophura(Beebe, 1921; Beebe, 1922; BirdLife, 2023). Una segunda forma, hoogerwerfi, del norte de Sumatra, se describió en 1939 a partir de una sola hembra recogida en 1937; durante décadas fue tratada como especie aparte y hoy se considera una subespecie (Avibase; BirdLife, 2023; Chasen, 1939; Sözer et al., 2006).
Vive solo en Sumatra (Indonesia), en bosques húmedos de montaña, de unos 600 a 2.200 m según BirdLife; la forma nominal ocupa el centro y el sur de la cordillera de Barisan, y hoogerwerfi, las provincias de Aceh y Sumatra del Norte (BirdLife, 2023; BOW, 2020; Hernández García, 2013). La extensión de presencia es de 229.000 km² (BirdLife, 2023). De su vida en libertad se sabe muy poco: no se ha descrito ningún nido de la forma nominal y casi todo lo que se cuenta de la cría procede de aves cautivas (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002).
La UICN la califica como casi amenazada (NT, evaluación de 2023, criterios A2cd+3cd+4cd): su población, que no se ha estimado, se sospecha en descenso moderado por la pérdida de bosque de montaña y la caza (BirdLife, 2023). A comienzos de los años 2000 se la consideraba vulnerable, con 2.500–10.000 individuos (Fuller y Garson, 2000; Madge y McGowan, 2002). No figura en los apéndices de CITES (BirdLife, 2023; CITES (Species+)).
En cautividad es una especie rara, conocida desde 1939 (un macho y tres hembras llegaron a Clères y se perdieron en 1940); se crió por primera vez en 1976 en Francia y en Japón, y el libro del autor la incluye, en la lista de programas regionales de la TAG de galliformes de la EAZA (2000), como especie de «seguimiento de población»; el censo de la WPA de 2025 recoge aves en Bélgica, Alemania, Francia y el Reino Unido, y ZIMS, tres aves en dos instituciones europeas (Delacour, 1977; Hernández García, 2014; Howman, 1993; Roles, 1976). No hay poblaciones introducidas ni asilvestradas conocidas (BirdLife, 2023; BOW, 2020; Madge y McGowan, 2002).
46–55cm
de longitud total (Madge y McGowan, Delacour); la ficha original da 44–58 cm
600–2.200m
de altitud según BirdLife; la ficha original dice 800–2.200 m
229.000km²
de extensión de presencia (BirdLife, 2023); población sin estimar
ES faisán de Salvadori · faisán sencillo · EN Salvadori’s Pheasant (también Sumatran Pheasant) · FR faisan de Salvadori · DE Salvadorifasan · IT fagiano di Salvadori · PT faisão-simplório (en Portugal, faisão-desornado) (Avibase; Hernández García, 2013; Wikipedia (en); Wikipedia (es))
Una especie descrita con un solo macho en 1879, degradada a subespecie por Beebe, recuperada como especie y acompañada de una forma norteña que ha cambiado varias veces de rango.
El faisán de Salvadori pertenece al género Lophura, el de los faisanes de espalda de fuego, plateados y afines; se describió en 1879 como Acomus inornatus y se le reconocen dos subespecies, una de las cuales, hoogerwerfi, se ha considerado y se sigue considerando por algunos autores una especie aparte (BirdLife, 2023; Fuller y Garson, 2000; Hernández García, 2013; Salvadori, 1879).
Posición taxonómica
Rango
Taxón
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Género
Lophura Fleming, 1822
Especie
Lophura inornata (Salvadori, 1879)
Subespecie
Lophura inornata inornata (Salvadori, 1879)
Subespecie
Lophura inornata hoogerwerfi (Chasen, 1939)
El autor de la especie va entre paréntesis porque Salvadori la describió en otro género, Acomus; el de hoogerwerfi, porque Chasen la describió en Houppifer(Avibase; Chasen, 1939; Salvadori, 1879). La taxonomía de esta guía, los dos volúmenes del libro del autor, Avibase y BirdLife dan esas autorías (Avibase; BirdLife, 2023; Hernández García, 2013).
Origen del nombre
El epíteto inornata viene del latín inornatus, «sin adornos, sencillo» (Jobling, 2010; Wikipedia (en)). Salvadori no explica el nombre, pero escribe que la especie es notable «no solo por sus plumas negras sin otro color, sino también por la brevedad de su cola», y que «por la falta de penacho» (cresta) pertenece al género Acomus(Salvadori, 1879). El nombre del género Acomus viene del griego akomos, «sin cabellos, sin cresta» (Jobling, 2010); el nombre del género Lophura, del griego lophos, «cresta», y oura, «cola» (Jobling, 2010). El nombre vernáculo «de Salvadori» recuerda al autor de la especie: Tommaso Salvadori, que Jobling anota, bajo los epítetos salvadorii, como Adelardo Tommaso Conte Salvadori Paleotti (1835–1923), ornitólogo italiano (Hernández García, 2013; Jobling, 2010). El nombre español «faisán sencillo» (Avibase, Wikipedia en español) traduce el epíteto latino (Avibase; Wikipedia (es)). El nombre de la subespecie hoogerwerfi honra a Andries Hoogerwerf, que recogió el ejemplar tipo; Jobling lo da como holandés (1907–1977), zoólogo y botánico, colector en las Indias Orientales entre 1931 y 1958 y en Nueva Guinea entre 1959 y 1963 (Chasen, 1939; Jobling, 2010). El nombre del género de la combinación original de hoogerwerfi, Houppifer, viene del francés houppe, «penacho», y del latín -fer, «que lleva» (Jobling, 2010). Chasen (hoogerwerfi) fue Frederick Nutter Chasen (1897–1942), ornitólogo británico del Museo Raffles de Singapur (Jobling, 2010). Odoardo Beccari (1843–1920) fue el botánico, explorador y colector italiano que recogió el tipo de la especie (Jobling, 2010; Salvadori, 1879).
Delacour, Johnsgard, Wikipedia y Avibase; para hoogerwerfi como especie, «Faisan de Sumatra» (Commission internationale pour les noms français des oiseaux) (Avibase; Delacour, 1977; Johnsgard, 1986; Wikipedia (fr))
Avibase (el mismo nombre en chino tradicional: 黑尾鷴) (Avibase)
El libro del autor escribe «Salvadoris’s pheasant» en inglés y da, además, «Faisan de Salvadori», «Salvadorifasan» y «Fagiano di Salvadori» (Hernández García, 2013). Avibase recoge nombres en otros veinte idiomas más (afrikáans, búlgaro, catalán, checo, danés, esperanto, estonio, finés, croata, húngaro, lituano, noruego, polaco, ruso, eslovaco, serbio, turco y ucraniano) (Avibase).
La descripción original (1879)
Salvadori describió la especie en el volumen 14 (1879) de los Annali del Museo Civico di Storia Naturale di Genova, en su «Catalogo di una collezione di uccelli fatta nella parte occidentale di Sumatra dal Prof. Odoardo Beccari», con el número de especie 172 y la página 250, como Acomus inornatus, «nov. sp.» (Avibase; Salvadori, 1879). La colección la reunió Beccari entre junio y septiembre de 1878 en el monte Singalan, en Ajer Mantcior, en Kaju tanam y en Sungei Bulu (Salvadori, 1879). El único ejemplar de inornatus es un macho adulto, con el número 122, «preso al laccio» (cazado con lazo) en el monte Singalan el 8 de julio; Salvadori anota que mide 470 mm de longitud total, 239 de ala, 150 de cola, 29 de pico y 70 de tarso, y que el iris era «color avellana rojizo», las papilas alrededor de los ojos «rojo cinabrio» y las patas grises (Salvadori, 1879). Beccari le escribió que la hembra es «de color pardo rojizo» y que se decía que carecía de espolones, y Salvadori añade que no duda de que el ejemplar sea un macho adulto, porque los bellos ribetes azul acero de las plumas son señal segura de plumaje perfecto (Salvadori, 1879). Beebe, en su sinonimia, da como lugar de la descripción los Annali y los Proceedings of the Zoological Society of London de 1879 (p. 651, lám. XLVIII) y como localidad tipo el monte Singalan, en la costa occidental de Sumatra (Beebe, 1921; Beebe, 1922). Avibase da la misma referencia original, el protónimo Acomus inornatus y la localidad «Mt. Singalan, Sumatra» (Avibase).
El monte Singalan
Beccari, citado por Salvadori, describe el Singalan como un cono volcánico cuya cima mediría, según sus propias mediciones, 2.888 m, a no más de 36 km en línea recta de la costa occidental de Sumatra y a un cuarto de grado al sur del ecuador; la mayoría de las aves se mataron cerca de su cabaña, a unos 1.667 m, donde empezaba el bosque virgen (más abajo había cultivos de coles, caña de azúcar y café); la cima está cubierta de vegetación, con abundantes Vaccinieae, rododendros, Nepenthes y un Leptospermum, y tiene dos pequeños lagos; la temperatura mínima que midió fue de 7 °C la noche del 18 de junio de 1878 (Salvadori, 1879). La grafía actual es Singgalang: Sözer y colaboradores lo citan como Mt. Singgalang, en Sumatra Occidental, y como el registro más septentrional de inornata(Sözer et al., 2006). Fuller y Garson hablan de «Gunung Singgalang» como bosque de protección propuesto para reserva (Fuller y Garson, 2000).
Cómo ha cambiado su rango: de especie a variación y de nuevo a especie
Beebe (volumen II, 1921) escribió que no podía aceptar inornatus ni siquiera como subespecie de erythrophthalmus, el faisán de cola rosa malayo, porque la variación de las aves de todo el área le parecía indeterminada; admitía que el macho de inornatus es casi idéntico en color a las hembras de las otras especies de Acomus y que había visto machos de erythrophthalmus con plumaje de hembra (Beebe, 1921). En una nota del volumen IV (1922) rectificó: tras examinar las pieles reunidas por Robinson y Kloss en Sumatra en 1914, diez de ellas con los caracteres de inornatus y, según el informe de Wells, «un buen número» más, concluyó que había un «foco subespecífico» y la reconoció como Acomus erythrophthalmus inornatus(Beebe, 1921; Beebe, 1922). Chasen (1939), al describir hoogerwerfi, compara su hembra con la de inornatus como con una forma de rango equivalente (Chasen, 1939). Delacour (1977) la trata como Lophura inornata inornata, con hoogerwerfi como subespecie, y la ve como una especie sin especializar que parece un eslabón entre edwardsi y erythrophthalma(Delacour, 1977).
Fuente
Rango y observaciones
Salvadori (1879)
Acomus inornatus, especie nueva (un macho del monte Singalan) (Salvadori, 1879)
Beebe (1921, vol. II)
no la acepta ni como subespecie: variación de Acomus erythrophthalmus(Beebe, 1921)
Beebe (1922, vol. IV)
Acomus erythrophthalmus inornatus, subespecie de Sumatra (Beebe, 1922)
Chasen (1939)
Houppifer hoogerwerfi, especie nueva, comparada con H. inornatus(Chasen, 1939)
Delacour (1977)
Lophura inornata, con L. i. inornata y L. i. hoogerwerfi («Atjeh pheasant»); la hembra de hoogerwerfi se parece más a edwardsi que inornata(Delacour, 1977)
Roles (1976)
Lophura i. inornatus; una sola subespecie, L. i. hoogwerfi (sic), Chasen 1939 (Roles, 1976)
Johnsgard (1986)
especie, con dos subespecies; el macho de hoogerwerfi no se conoce (Johnsgard, 1986)
Sibley y Monroe (1990, 1993)
dos especies: L. inornata y L. hoogerwerfi (según BirdLife) (BirdLife, 2023)
Fuller y Garson (2000)
dos especies, Lophura inornata (vulnerable, C1; C2a) y Lophura hoogerwerfi, el «Sumatran pheasant» (vulnerable, C2b); anotan que a veces se consideran la misma especie y piden aclarar su relación con ADN (Fuller y Garson, 2000)
Criadero Chintaguay (2005–2006)
la tabla de postura lista aparte Lophura hoogerwerfi (sin datos) y Lophura inornata; la lista de variedades da L. inornata con dos subespecies, L. i. inornata y L. i. hoogerwerfi(del Campo, 2006)
Madge y McGowan (2002)
Lophura (inornata) inornata y Lophura (inornata) hoogerwerfi, tratadas por separado «de forma provisional» pero casi con seguridad de la misma especie (Madge y McGowan, 2002)
Sözer, Shepherd y Darjono (2006)
«Lophura (inornata) hoogerwerfi»: la taxonomía de las dos formas «no está resuelta» (Sözer et al., 2006)
Clements 4.ª ed.; Comisión internacional de nombres franceses (1993, rev. 2009)
Lophura hoogerwerfi, especie («Sumatran Pheasant», «Faisan de Sumatra») (Avibase)
Clements (5.ª ed., con las revisiones de 2000 y 2001, y 2021–2025); Howard y Moore, 3.ª ed.; IOC (v. 15.1, 2025, según Wikipedia en francés); AviList 2025–2026
una sola especie, Lophura inornata; antes dividida en dos «siguiendo a Sibley y Monroe» (Avibase; BirdLife, 2023)
BOW (McGowan, Kirwan y Boesman; texto de 2017)
una especie con dos subespecies; hoogerwerfi «se considera a veces una especie distinta», pero debe considerarse «claramente» coespecífica (BOW, 2020)
Avibase (conceptos de 2023 y 2024; de 2025 y 2026)
2023 y 2024: «Salvadori’s or Sumatran Pheasant (Lophura [inornata or hoogerwerfi])»; 2025 y 2026: Lophura inornata, con hoogerwerfi como subespecie (Avibase)
Wikipedia (en, fr, de)
la edición inglesa la tiene por especie con hoogerwerfi como subespecie «usualmente»; la francesa dice que hoogerwerfi «podría ser una subespecie»; la alemana, que algunos autores consideran al «Sumatrafasan» subespecie del Salvadorifasan (Wikipedia (de); Wikipedia (en); Wikipedia (fr))
El orden cronológico muestra que hoogerwerfi ha pasado de especie (Chasen, 1939) a subespecie (Delacour, 1977), otra vez a especie (Sibley y Monroe; Fuller y Garson) y de nuevo a subespecie (del Hoyo y Collar, 2014, y las listas posteriores) (BirdLife, 2023; Chasen, 1939; Delacour, 1977; Fuller y Garson, 2000).
Localidades tipo
Para inornata, el monte Singalan (Sumatra Occidental) según Salvadori, Beebe y Avibase (Avibase; Beebe, 1922; Salvadori, 1879). Para hoogerwerfi, el tipo se obtuvo en el Telaga Meloewak (lago Meluwak), en Atjeh (Aceh), al norte de Sumatra, a unos 1.400 m, el 24 de abril de 1937, y se conserva en el Museo de Buitenzorg con el número 11744; Chasen lo describe como «sexado por el colector como hembra, pero con una interrogación» (Avibase; Chasen, 1939; Sözer et al., 2006). Delacour la sitúa en «Meloewak, Atjeh, Sumatra», y da 2.100 pies (c. 640 m) de altitud para el segundo ejemplar (Delacour, 1977).
Parientes próximos
Johnsgard la describe como una especie muy generalizada de Lophura y recuerda que Delacour se fijó en su «aspecto primitivo»; cree que es un pariente bastante próximo de los faisanes imperial y de Edwards y también del faisán de cola rosa malayo; Delacour la consideraba una forma de transición entre edwardsi y erythrophthalma, lo que tiene más sentido zoogeográfico, aunque los dibujos de la hembra recuerdan más a los de las hembras de Edwards e imperial (Delacour, 1977; Johnsgard, 1986). Beebe (1921) incluye el género Acomus en la subfamilia Phasianinae, cree que está bastante emparentado con Lophura (los «faisanes de espalda de fuego con cresta») y más lejos con Gennaeus (los plateados), y lo separa de Lophura por el plumaje «muy masculino» de las hembras, la ausencia total de cresta en ambos sexos y el tamaño muy pequeño (Beebe, 1921). El criadero Chintaguay ordena la especie entre los faisanes del género Lophura(del Campo, 2006). BOW añade que la especie se ha colocado alternativamente en los géneros Chalcocomus o Houppifer, que un estudio genético reciente no halló pruebas de que Lophura, tal como está constituido, sea polifilético, y que la misma investigación identificó cinco clados dentro del género, formando esta especie un clado con L. erythrophthalma y L. pyronota (BOW trata como especie al faisán de cola rosa de Borneo; esta guía, como subespecie) (BOW, 2020; Jobling, 2010).
Dato
Fuente
Su macho se parece a la hembra de Lophura erythrophthalma (faisán de cola rosa malayo), de la que Delacour y Johnsgard lo distinguen por los ribetes azules, el menor tamaño del cuerpo y el pico claro
BOW cita el estudio genético sin que se haya podido identificar en la parte leída; Chalcocomus («pelo de cobre») y Houppifer («penacho») son nombres de género aplicados a especies de Lophura, según Jobling (BOW, 2020; Jobling, 2010).
Sinonimia y combinaciones
Nombre
Autor y año
Observaciones
Acomus inornatus
Salvadori, 1879
combinación original; Beebe: Ann. Mus. Civ. Genova 14, p. 250, y P.Z.S. 1879, p. 651, lám. XLVIII; localidad tipo, monte Singalan (Avibase; Beebe, 1922; Salvadori, 1879)
Acomus erythrophthalmus inornatus
Beebe, 1922
como subespecie de erythrophthalmus; Delacour cita Beebe, Monogr. Pheasants IV, p. 217 (Beebe, 1922; Delacour, 1977)
Lophura inornata hoogewerfi, hoogwerfi y hoogewerfi
varios
grafías erróneas recogidas por Avibase (Howard y Moore, 2.ª ed.), Roles y otras fuentes (Avibase; Roles, 1976)
Avibase asigna el TSN 176081 a la especie y 678030 a la subespecie hoogerwerfi(Avibase). En la sinonimia de Beebe constan además citas de Büttikofer (Notes Leyden Museum 9, p. 77, 1887, Padang), Vorderman (1889), Ogilvie-Grant (Cat. Birds Brit. Mus. 22, p. 285, 1893) y Robinson y Kloss (1918, pico Korinchi) (Beebe, 1922).
03
Historia
Un macho cazado con lazo en 1878, setenta años de silencio, un puñado de aves en Clères en 1939 y la primera cría en 1976.
La historia del faisán de Salvadori es corta y llena de huecos: una descripción hecha sobre un solo macho, un puñado de pieles de museo, unas pocas aves vivas que se perdieron en la guerra, un redescubrimiento tardío y una cría en cautividad que no se logró hasta 1976. (Delacour, 1977; Howman, 1979; Madge y McGowan, 2002; Salvadori, 1879)
Cronología
Odoardo Beccari reúne entre junio y septiembre una colección de aves en el oeste de Sumatra; el 8 de julio, en el monte Singalan, se caza con lazo un macho negro de cola corta (Salvadori, 1879).
Tommaso Salvadori describe Acomus inornatus en los Annali del Museo Civico di Storia Naturale di Genova (p. 250) (Avibase; Salvadori, 1879).
Büttikofer (Padang, 1887), Vorderman (1889) y Ogilvie-Grant (catálogo del Museo Británico, 1893) citan la especie; Beebe sabe de un segundo ejemplar parecido (Beebe, 1921; Beebe, 1922).
Se recogen 34 ejemplares, según la ficha original (que sigue a BOW); Beebe menciona, de 1914, las pieles de Robinson y Kloss en Sumatra, con una publicación de 1918 sobre el pico Korinchi (Beebe, 1922; BOW, 2020; Hernández García, 2013).
Beebe rechaza inornatus en el volumen II y lo acepta como subespecie del faisán de cola rosa malayo en el IV (Beebe, 1921; Beebe, 1922).
El 24 de abril, Andries Hoogerwerf obtiene una hembra de aspecto distinto junto al lago Meluwak, en Aceh (tipo de hoogerwerfi) (Chasen, 1939; Sözer et al., 2006).
Chasen describe Houppifer hoogerwerfi (Treubia 17: 184); Dillon Ripley recoge una segunda hembra en marzo; en junio, W. Frost lleva a Clères un macho y tres hembras vivos de inornata(Chasen, 1939; Delacour, 1977; Sözer et al., 2006).
Se publica la primera descripción completa del macho de hoogerwerfi(Sözer et al., 2006).
HBW y BirdLife (del Hoyo y Collar) reúnen hoogerwerfi con inornata; la UICN la califica de casi amenazada (NT) (BirdLife, 2023).
Nueva evaluación de la UICN: casi amenazada, con población sin estimar y en descenso sospechado (BirdLife, 2023).
Descubrimiento y descripción
La especie fue descrita por Tommaso Salvadori en 1879 en los Annali del Museo Civico di Storia Naturale di Genova (vol. 14, pág. 250), a partir de un macho recolectado en el monte Singalan, en la parte occidental de Sumatra, por el naturalista italiano Odoardo Beccari. (BOW, 2020; Hernández García, 2013; Salvadori, 1879)
Los detalles de la descripción —un único macho, cazado con lazo, y las anotaciones de Beccari— están en el capítulo de sistemática (Salvadori, 1879). La ficha original no da más historia del descubrimiento; la especie quedó durante décadas representada solo en museos, y Beebe, que revisó pieles de varios museos, dice en 1921 que de su vida «no se conoce nada» y que inornatus no merecía siquiera rango de subespecie (Beebe, 1921).
Las pieles de Robinson y Kloss y el rango subespecífico
En 1914, H. C. Robinson y C. B. Kloss reunieron en Sumatra pieles que en 1918, cuando Beebe trabajaba en el Museo Británico, aún no habían llegado; T. Wells le llamó después la atención sobre ellas: eran diez con los caracteres de inornatus, todas de Sumatra, y había «un buen número» más, y Beebe cambió de opinión en una nota del volumen IV (Beebe, 1922). Beebe cita de Robinson y Kloss una publicación de 1918 sobre una expedición al pico Korinchi (Journal of the Federated Malay States Museums 8, p. 101, lám. IV) (Beebe, 1922). La edición francesa de Wikipedia cita de los mismos autores una publicación de 1924 sobre una gran colección de aves del oeste de Sumatra reunida por E. Jacobson, en la que se citan los contenidos estomacales (véase el capítulo de alimentación) (Wikipedia (fr)). No se han podido consultar estas dos obras originales (Beebe, 1922; Wikipedia (fr)).
La historia de hoogerwerfi
Hoogerwerf recogió en Aceh, el 24 de abril de 1937, un ave sexada en el campo como hembra, «con una interrogación», junto al Telaga Meloewak, a unos 1.400 m; Chasen, para quien se diferenciaba tanto de cualquier hembra de inornatus que conocía que se atrevió a describirla como nueva, la publicó en 1939 aunque Hoogerwerf solo había obtenido ese ejemplar (Chasen, 1939; Sözer et al., 2006). Una segunda hembra la recogió Dillon Ripley en marzo de 1939 en las proximidades del lago (a 650 m según Meyer de Schauensee y Ripley, aunque Sözer y colaboradores creen que fue c. 950 m, porque Ripley escribió primero 3.160 pies en la etiqueta y luego 2.100) (Sözer et al., 2006). Chasen y Hoogerwerf (1941) publicaron una descripción completa de esa hembra; Hoogerwerf dudaba si era una especie nueva o una forma subadulta de inornata(Sözer et al., 2006). En los años setenta, N. van Strien observó con regularidad aves en el valle de Mamas, entre ellas un nido con dos huevos, y obtuvo fotografías que mostraban que las hembras son pardas uniformes y los machos, negro azulado, como en inornata(Fuller y Garson, 2000; Madge y McGowan, 2002; Sözer et al., 2006). El macho no se había recogido nunca hasta que, el 25 de septiembre de 1998, Sözer y Shepherd compraron tres machos en un mercado de Medan (Sözer et al., 2006).
Aves vivas en Europa y primeras crías
Delacour cuenta que W. Frost llevó vivos a Clères, en junio de 1939, un macho y tres hembras; que los tuvo por «primitivos» y los vio intermedios en forma entre el faisán de cola rosa malayo y el faisán de Edwards, y parecidos a este último en el color de los dos sexos; que eran menos fornidos que erythrophthalma y llevaban la cola baja, como edwardsi; que no eran asustadizos y que se comportaban como los demás faisanes del grupo; y que la guerra impidió observarlos con detalle y los perdió en la invasión de 1940 (Delacour, 1977). Roles (1976) añade que, hasta entonces, solo había una importación en los registros, la de Delacour a Clères en 1939, y que el Dr. Vallen, de Holanda, le había informado de que en 1975 había conseguido importar dos machos y tres hembras de Sumatra; menciona también una importación de dos parejas por Houpert y Lastère, en Francia, ese mismo año (Roles, 1976).
Houpert y Lastère obtuvieron la primera cría en 1976, y Yamashita, en Japón, ese mismo año, según Howman; Charles Sivelle criaría después la especie en Estados Unidos (Hernández García, 2013; Howman, 1979; Howman, 1993). Johnsgard, que cita a Houpert y Lastère (1977) y a Sivelle (Delacour, 1977), dice que Sivelle la crió por primera vez en marzo de 1977 (Delacour, 1977; Johnsgard, 1986). Howman (1993) dice de ella: «todavía rara» en cautividad (Howman, 1993).
El redescubrimiento y la historia reciente
Tras el periodo de 1913-1917, en el que se recogieron 34 ejemplares, la especie no volvió a ser observada hasta su redescubrimiento en el monte Kerinci en 1986, donde después se ha avistado en varias ocasiones (BOW, 2020; Hernández García, 2013). Madge y McGowan escriben que solo se «redescubrió tras casi setenta años, en 1986» (Madge y McGowan, 2002). Johnsgard (1986) resume que no hay información sobre su estado en libertad (Johnsgard, 1986). En abril de 1989 se vio una pareja en el monte Kaba; en 1998–1999 empieza a aparecer en mercados de Medan; en octubre de 2008 se halla una hembra incubando en el bosque de Batang Turu, y en 2010 se ofrecen a la venta dos aves en Sumatra del Norte (BirdLife, 2023; BOW, 2020; Hernández García, 2013).
Láminas, fotografías y libros
La sinonimia de Beebe cita, de Salvadori, los Proceedings of the Zoological Society of London de 1879 (p. 651, lám. XLVIII), obra que no se ha consultado (Beebe, 1922). Delacour la ilustra en su lámina XVI («Salvadori’s Pheasant, male and female») (Delacour, 1977). Roles incluye una fotografía rotulada «Salvadori’s Pheasant (male)», y Howman (1993), fotografías de Kenneth W. Fink de un macho, de un macho exhibiéndose y de una hembra (Howman, 1993; Roles, 1976). Johnsgard incluye un dibujo de las posturas de un macho (comprimiendo la piel de la cara y batiendo las alas), según fotografías de Ken Fink (Johnsgard, 1986). En esta ficha se reproducen las fotografías de Mehd Halaouate, Jonathan Pointer y Hugo Barbosa, entre otras (véase el capítulo de cultura) (Hernández García, 2013).
04
Morfología y plumajes
Un macho negro azulado, sin cresta, de cola corta y cara roja; una hembra castaña moteada de ante; y una subespecie norteña de hembra parda y lisa.
El faisán de Salvadori es un faisán mediano, sin cresta y de cola corta y redondeada, con los sexos muy distintos: el macho es casi negro, con el borde de las plumas de un azul metálico, y la hembra es castaña y moteada. En los dos, la piel desnuda de la cara es roja. (Delacour, 1977; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002)
El macho
El macho es de color negro azulado brillante, algo más apagado en el vientre, la cloaca, las plumas de vuelo y la cola. Carece de cresta y la cola es corta y ligeramente redondeada. La piel desnuda de la cara es de color rojo pálido (escarlata según otras descripciones), las patas y los pies son grises, de un tono pálido o verdoso, y el iris es rojo. Una pequeña mancha de color amarillo pálido tras el ojo y la piel facial vistosa lo distinguen de otros faisanes oscuros, por lo demás de aspecto parecido. (BOW, 2020; Hernández García, 2013)
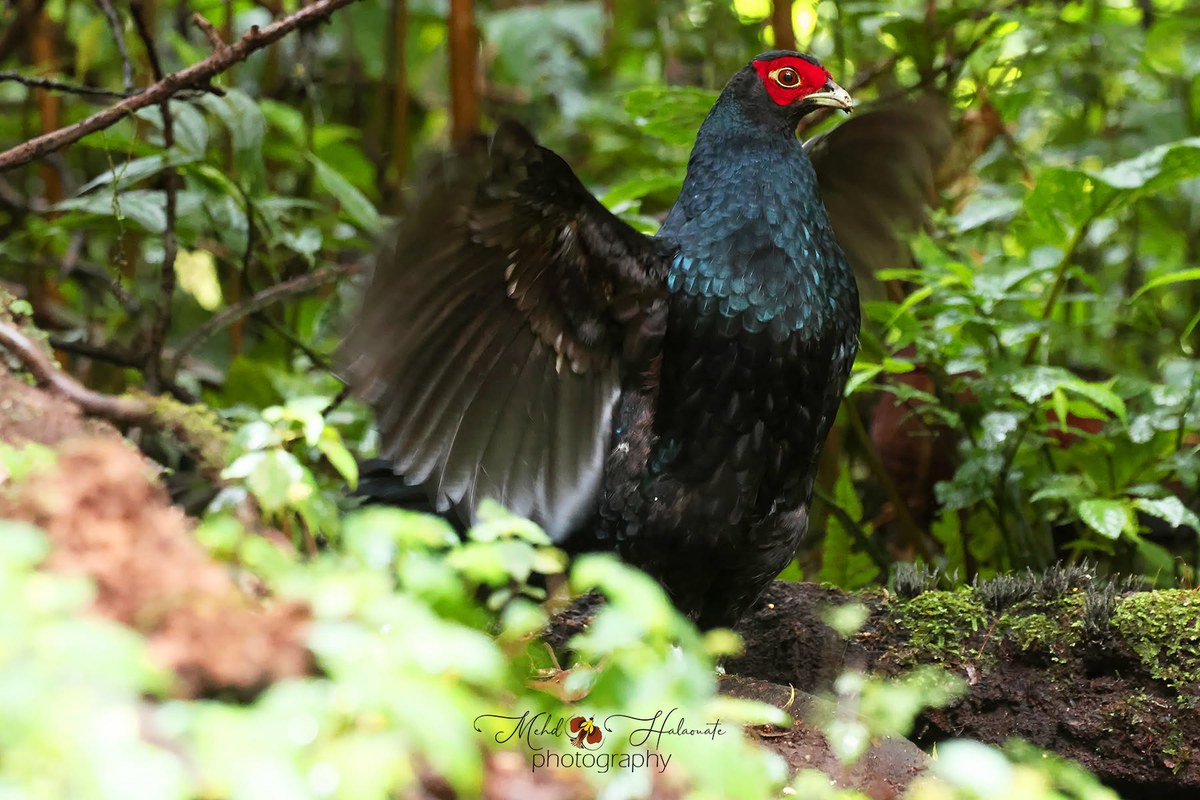
La primera fotografía, de Mehd Halaouate, muestra un macho con las alas abiertas: se ve la cabeza negra con la piel de la cara roja, el iris naranja y el pico claro, el borde azul metálico de las plumas del pecho y de las cobertoras, que les da un aspecto de escamas, y las plumas de vuelo mate, sin brillo; la segunda, de Jonathan Pointer, un macho de pie, y la tercera, de Hugo Barbosa, un macho del zoo de Amberes (Bélgica). (Delacour, 1977; Madge y McGowan, 2002)
Delacour describe el macho con la cabeza sin cresta y las carúnculas de la cara escarlatas, con un anillo verde amarillento pálido alrededor del ojo y una mancha amarilla detrás; todo el plumaje es negro, y las plumas desde el occipucio hasta las cobertoras de la cola, y las del cuello, el pecho y los costados, llevan un ancho ribete azul metálico; las primarias, las secundarias, las timoneras, el abdomen y los muslos son de un negro mate. La cola es corta y redondeada, de 14 plumas, con las dos centrales algo más largas que la segunda y la tercera. El iris es naranja rojizo, el pico blanco verdoso córneo y las patas gris verdoso (Delacour, 1977; Johnsgard, 1986). Madge y McGowan dan el pico blanco verdoso pálido, el iris naranja rojizo, la piel alrededor del ojo amarillo verdosa o gris verdosa con una pequeña mancha amarilla detrás del ojo, la piel de la cara escarlata, las patas gris verdoso y, en el macho, un espolón prominente (Madge y McGowan, 2002).
Salvadori (1879) describió el ejemplar tipo como un macho «todo negro», con los bordes de las plumas del dorso, de las cobertoras de las alas y del pecho «de un bello negro azul acero que, bajo ciertas incidencias de la luz, tira a verde»; el abdomen, las remeras y las timoneras, negros sin brillo; los lados de la cabeza desnudos y rojos; el pico pardo, amarillento hacia la punta (en la piel seca); las patas grises y los tarsos con un gran espolón (Salvadori, 1879). Beebe (1922) lo describe con la cabeza, el cuello, el manto, la parte alta de la espalda, las secundarias, la rabadilla, las supracaudales, el pecho y la parte alta del vientre con un brillo azul bronceado, cada pluma bordeada de negro aterciopelado, y la cola y el vientre sin brillo; el iris rojo o naranja, la piel orbital «carmín» y un estrecho anillo verdoso alrededor del ojo, con una mancha cuadrada de amarillo limón en el ángulo posterior; el pico verde córneo y los pies de un pizarra blanquecino teñido de verde (Beebe, 1922).
La hembra
La hembra es de color marrón castaño, con un brillo uniforme e irregular. Las plumas son punteadas, con una marca central más oscura en la parte superior y más clara en la parte inferior, y presentan además estrías más claras a lo largo del eje de cada pluma. La garganta es más clara, la cola es corta y de color marrón negruzco, la piel de la cara es de color rojo pálido, los ojos son pálidos y las patas son de color gris. (BOW, 2020; Hernández García, 2013)
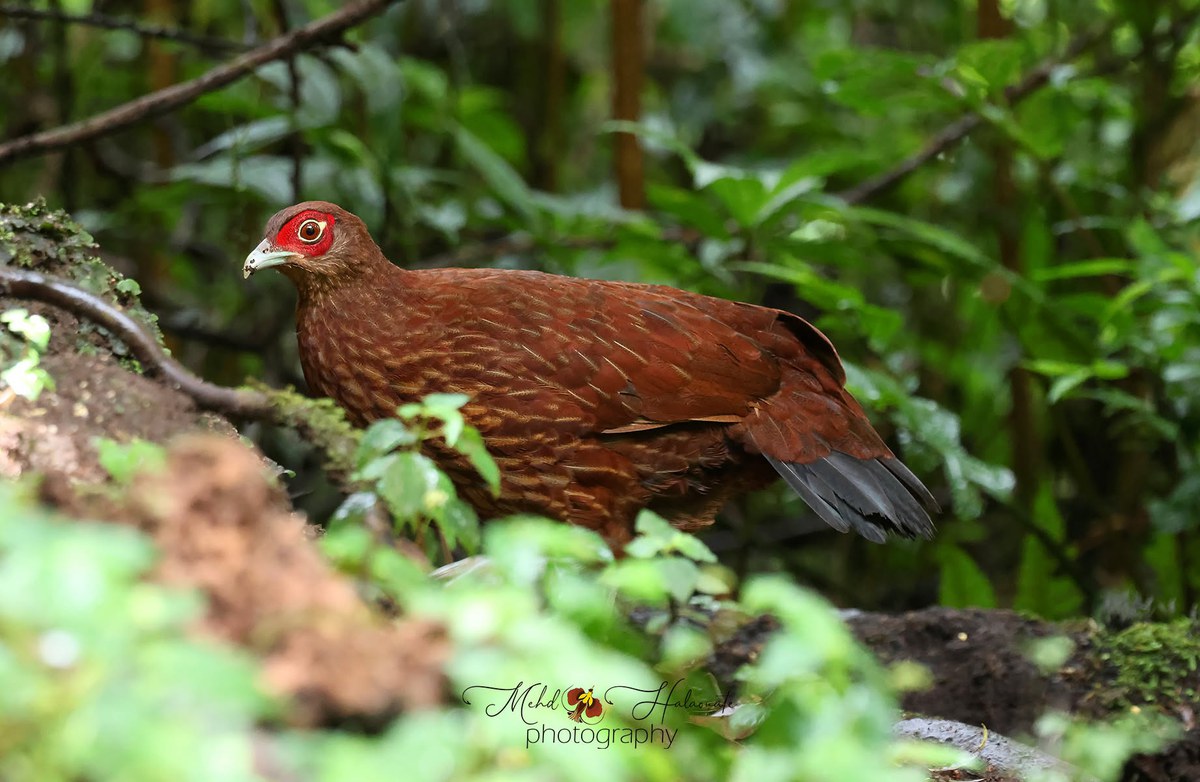
La fotografía de Mehd Halaouate muestra una hembra de perfil: el cuerpo castaño rojizo, con un fino barrado ante en el pecho, los costados y las alas, la cola gris oscura, casi negra, y la cara roja con un anillo claro y el iris pardo anaranjado. (Delacour, 1977; Madge y McGowan, 2002)
Delacour describe la hembra de un castaño rojizo vivo, con las plumas con una ancha raya central ante, finamente moteada de negro, y un raquis claro, lo que da un aspecto moteado; la garganta es pardo pálido y las timoneras, pardo negruzco; el iris, pardo o naranja, y las carúnculas de la cara, las patas, el pico y las medidas, como en el macho (Delacour, 1977). Madge y McGowan: plumaje casi todo castaño rojizo, con cada pluma finamente moteada de negro y con un raquis claro y una raya ante; garganta más pardo claro; cola pardo negruzca; iris más pardo que en el macho; y la cara con la piel roja y la mancha amarilla detrás del ojo, como en el macho (Madge y McGowan, 2002). Johnsgard anota, para distinguirla de otras hembras del género, que tiene la parte inferior moteada de ante, las patas gris verdoso y la cola corta, redondeada y pardo negruzca (Johnsgard, 1986). Beebe (1922): plumas de todo el cuerpo de color pardo ante que tira a ocráceo por arriba, vermiculadas de negro, cada una con un ancho borde castaño rojizo, lo que da a las partes superiores un rico aspecto castaño; la rabadilla y las supracaudales, castaño más profundo; las partes inferiores, más ocráceas; la cola, pardo negruzca; el iris naranja o naranja pardo, la piel orbital carmín, el anillo verdoso y la mancha amarilla limón en el ángulo posterior del ojo; el pico verde córneo; y los pies pizarra verdoso pálido (Beebe, 1922).
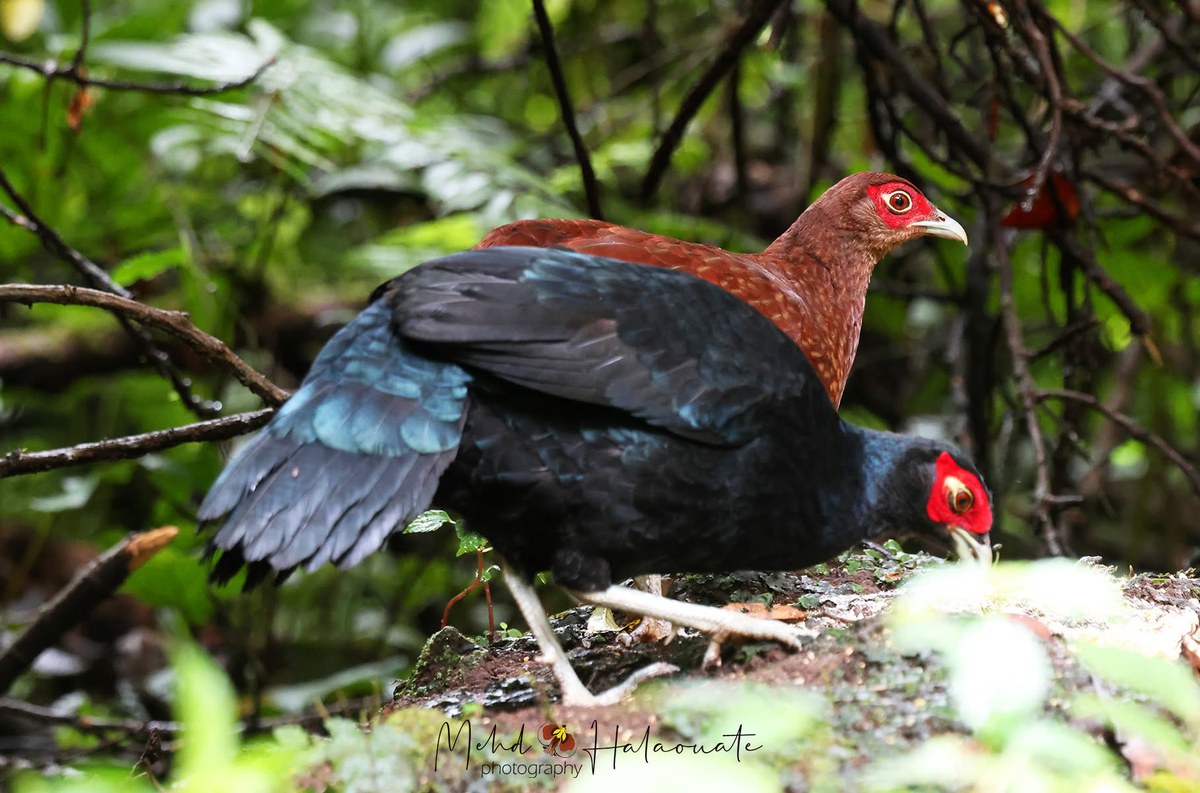
En la fotografía de Mehd Halaouate, tomada en el bosque, se ve la pareja junta: delante, el macho, negro azulado, con un ala caída que deja ver el azul metálico de las cobertoras y las patas claras, y detrás, la hembra castaña con las plumas del cuerpo bordeadas de ante; en los dos la piel de la cara es roja y el pico, claro. La otra imagen, de autor desconocido, muestra también a los dos sexos juntos en cautividad. (Delacour, 1977; Madge y McGowan, 2002)
Juveniles y variación geográfica
Los juveniles se parecen a la hembra, pero con las plumas bordeadas de beige, lo que les da un aspecto escamado. Entre las dos subespecies, la hembra de hoogerwerfi se distingue de la de la forma nominal por tener las patas de un gris más oscuro y un plumaje más uniforme, casi sin manchas, mientras que el macho resulta aparentemente indistinguible del de la forma nominal. (BOW, 2020; Hernández García, 2013)
Plumajes por edades
Edad
Descripción
Fuente
Polluelo
no descrito por Delacour («inmaduros, polluelos y huevos desconocidos»); Johnsgard cita un pollo de cuatro semanas ilustrado en el WPA Journal II: castaño en las alas, escapularias, flancos, parte alta del pecho y dorso, más ante en la garganta y el bajo vientre, con las plumas castañas con rayas ante en el raquis y ribetes ante en la punta, más marcados en las puntas de las secundarias
Madurez sexual: de uno a dos años según el criadero Chintaguay y el libro del autor (ficha técnica de incubación); véase el capítulo de reproducción (del Campo, 2006; Hernández García, 2014).
anillo verde amarillento pálido, o amarillo verdoso o gris verdoso (Delacour, Madge y McGowan, Beebe), y mancha amarilla (amarilla limón en Beebe) detrás del ojo; muy visibles durante la exhibición (Johnsgard) (Beebe, 1922; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
el macho lleva un espolón grande («grande sprone», Salvadori, 1879; «prominente», Madge y McGowan); Beccari anotó que la hembra, según se decía, no tenía espolones; la edición inglesa de Wikipedia dice que no tiene (Madge y McGowan, 2002; Salvadori, 1879; Wikipedia (en))
varias
Johnsgard señala, para distinguirlas, que la hembra tiene las patas gris verdoso y una mancha amarilla detrás del ojo (Johnsgard, 1986).
La cola y las alas
La cola es corta, redondeada y ligeramente graduada, de 14 plumas, con las dos centrales algo más largas que las laterales (Delacour, 1977; Madge y McGowan, 2002; Wikipedia (fr)). Johnsgard dice, del género, que la cola suele ser de 16 plumas (14 en dos especies), que las alas son redondeadas, con la décima primaria más corta y la quinta y la sexta más largas, y que en dos especies la cola es inusualmente corta, redondeada y aplanada; las aves de Clères que vio Delacour llevaban la cola baja, como el faisán de Edwards, y Madge y McGowan dicen que la especie la lleva «deprimida», en contraste con el faisán de cola rosa malayo, que la lleva levantada (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Cómo distinguirla de especies parecidas
Especie parecida
Cómo se distingue
Fuente
Hembra del faisán de cola rosa malayo (Lophura erythrophthalma)
es de aspecto casi igual al macho de Salvadori, pero tiene un pico negro (no claro), un plumaje menos brillante y una cabeza más gris; es más fornida y lleva la cola levantada, y vive en tierras bajas
Las cifras de la ficha original coinciden en lo esencial con las de Delacour y Madge y McGowan; el peso, en cambio, no figura en ninguna fuente técnica para la forma nominal.
Macho ♂Hembra ♀
Longitud
♂44–58 cm.
♀44–50 cm
Alas
♂20–24 cm
♀20–22 cm
Cola
♂16–18 cm
♀15–16 cm
Tarso
♂7–8 cm
♀7 cm
Peso
♂0,5–0,6 kg
♀0,5 kg
Tamaño frente al resto de la colecciónlongitud total del macho · 51 especies
Faisán de Salvadori · 58 cm
050100150200 cm
Las dimensiones del faisán de Salvadori son similares en ambos sexos, aunque el macho es algo mayor: mide entre 44 y 58 cm de longitud total y pesa entre 0,5 y 0,6 kg, mientras que la hembra mide entre 44 y 50 cm y pesa 0,5 kg. (BOW, 2020; Hernández García, 2013)
En el macho, las alas miden de 20 a 24 cm, la cola de 16 a 18 cm y el tarso de 7 a 8 cm; en la hembra, las alas miden de 20 a 22 cm, la cola de 15 a 16 cm y el tarso 7 cm. (BOW, 2020; Hernández García, 2013)
Otras fuentes ajustan la longitud total de la especie a entre 46 y 55 cm, con una cola de unos 15 a 17 cm en el macho y de unos 14,5 a 15 cm en la hembra, cifras muy próximas a las de la tabla. En cuanto al peso, solo se han registrado dos ejemplares de la subespecie hoogerwerfi, de 670 y 700 g (datos del CRC Handbook of Avian Body Masses), valores algo superiores al intervalo de 0,5 a 0,6 kg de la tabla. (BOW, 2020; Madge y McGowan, 2002; Sözer et al., 2006)
Medidas según distintas fuentes
Fuente
Longitud ♂ / ♀
Ala ♂ / ♀
Cola ♂ / ♀
Tarso ♂ / ♀
Peso ♂ / ♀
Tabla de la ficha original y libro del autor (2013)
44–58 / 44–50 cm
20–24 / 20–22 cm
16–18 / 15–16 cm
7–8 / 7 cm
0,5–0,6 kg / 0,5 kg
Salvadori (1879), macho tipo
470 mm
239 mm
150 mm
70 mm
—
Beebe (1922), 7 machos y 3 hembras
—
213–227 / 208–228 mm
152–170 / 145–150 mm
69–77 / 65–69 mm
—
Delacour (1977)
460–550 mm (♀ como el macho)
220–230 mm
160–165 mm
70–75 mm
—
Johnsgard (1986)
18–23 pulgadas (campo)
213–227 / 208–228 mm (Beebe)
152–170 / 145–150 mm (Beebe)
—
sin datos
Madge y McGowan (2002)
46–55 cm (♂ algo mayor)
213–230 / 208–228 mm
152–170 / 145–150 mm
70–75 mm / —
sin datos
BOW (texto de 2017)
46–55 cm
—
15,2–17 / 14,5–15 cm
—
sin datos de la nominal; 670–700 g (dos aves de hoogerwerfi)
Wikipedia (en, de)
46–55 cm (♀ algo menor)
de: 220–230 mm
de: 16–16,5 cm
—
—
hoogerwerfi: Sözer et al. (2006), medias de las aves medidas (3 machos y 5 hembras)
493 / 398 mm
221 / 213 mm
154 / 148 mm
78 / 65 mm
700 g (un ♂) / 670 g (una ♀)
Los datos de Johnsgard proceden de Beebe (1918–1922). Salvadori da las medidas del ejemplar seco en metros, 0,470; 0,239; 0,150; 0,029 (pico) y 0,070 (Beebe, 1922; Johnsgard, 1986; Salvadori, 1879). Las medias de hoogerwerfi son las de la tabla 1 de Sözer y colaboradores (texto reconocido con OCR: POR VERIFICAR las cifras con la tabla original); incluyen aves vivas de un centro de cría y pieles (Sözer et al., 2006). Delacour da el culmen en 25 mm; Beebe, el pico desde la narina en 19 mm (Beebe, 1922; Delacour, 1977).
Huevos y pollos
Johnsgard da para los huevos de cautividad un promedio de 2 × 1,45 pulgadas (50,8 × 36,2 mm, según el propio autor) y un peso fresco estimado de 36,7 g; la edición alemana de Wikipedia, 51 × 37 mm y color chocolate mate (Johnsgard, 1986; Wikipedia (de)). Delacour (1977) los daba como desconocidos (Delacour, 1977). De los pollos, Johnsgard cita un pollo de cuatro semanas, ilustrado en el WPA Journal II, y no da pesos (Johnsgard, 1986).
06
Distribución y hábitat
Endémica de Sumatra: los bosques de montaña de la cordillera de Barisan, de Aceh a Bengkulu y Sumatra del Sur, con una extensión de presencia de 229.000 km² y poblaciones conocidas de pocas localidades.
Mapa de distribución. Pulsa para ampliar.
El faisán de Salvadori vive en los bosques húmedos de Sumatra, en zonas montañosas situadas aproximadamente entre los 800 y los 2200 m de altitud, aunque la mayoría de los registros proceden de cotas superiores a 1000 m; otras fuentes limitan su hábitat al bosque de montaña situado entre 1000 y 2200 m. Un registro reciente procede de un bosque algo degradado, aunque con bosque intacto en las cercanías. (BirdLife, 2023; BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013; Madge y McGowan, 2002)
Es una especie endémica de la isla de Sumatra (Indonesia) y no vive en ningún otro país; BirdLife da una extensión de presencia de 229.000 km² y calcula que quedan en ella unos 55.000 km² de bosque, aunque no se conoce el área realmente ocupada (BirdLife, 2023). BOW añade que se encuentra en una zona de aves endémicas (Sumatra y Malasia peninsular, por encima de los 600 m) (BOW, 2020). El mapa de distribución de la ficha original muestra la zona de montaña desde el extremo noroeste de la isla hasta el sur; la fuente del mapa no se indica en la ficha (Hernández García, 2013).
Área de distribución
La forma nominal (inornata) ocupa el centro y el sur de la cordillera de Barisan, en Sumatra, y se conoce con certeza del monte Kerinci y del monte Kaba (Bengkulu), sin datos recientes del monte Dempu, en el sur de la isla. La subespecie hoogerwerfi se distribuye por las provincias de Aceh y Sumatra del Norte. (Avibase; BOW, 2020; Hernández García, 2013)
La subespecie hoogerwerfi ha sido observada entre 600 y 2000 m, en pendientes boscosas bastante secas dentro del mismo rango altitudinal. Más recientemente, según la población local, también se ha visto en bosques de Eucalyptus y en tierras agrícolas. (BirdLife, 2023; BOW, 2020; Hernández García, 2013)
La especie figura actualmente como casi amenazada (NT), y no existe información reciente del sur de Sumatra. Durante décadas no se registró en la naturaleza: tras el periodo de 1913-1917, en el que se recogieron 34 ejemplares, no volvió a ser observada hasta su redescubrimiento en el monte Kerinci en 1986, donde después se ha avistado en varias ocasiones. En abril de 1989 se vio una pareja en el monte Kaba (Mt Kaba). (BOW, 2020; Hernández García, 2013; Madge y McGowan, 2002)
Localidades y áreas protegidas
Lugar
Dato
Fuente
Monte Singalan o Singgalang (Sumatra Occidental)
localidad tipo: macho cazado con lazo el 8 de julio de 1878; cabaña de Beccari a unos 1.667 m; hoy, bosque de protección propuesto como reserva (Gunung Singgalang) y el registro más septentrional de inornata
pieles de Robinson y Kloss (1914); redescubrimiento en 1986; avistamientos posteriores y cámaras trampa; Parque Nacional Kerinci-Seblat (15.000 km² según la ficha original)
según los habitantes locales, común en hábitats degradados al norte del lago Toba; una posible observación en una plantación de eucaliptos a unos 1.500 m; capturas con lazo en el borde del bosque
Fuller y Garson dicen que se la conoce de al menos 10 localidades en las cordilleras centro y sur de Barisan, con registros recientes de al menos dos (Kaba y Kerinci); la edición alemana de Wikipedia dice «al menos diez», con registros recientes de tres (Fuller y Garson, 2000; Wikipedia (de)).
Parque Nacional Kerinci-Seblat y la población de la forma nominal
Se conoce en el área protegida del Parque Nacional Kerinci-Seblat (15.000 km²), donde es visto con relativa frecuencia por observadores de aves y registrado regularmente por cámaras trampa. No obstante, este parque sufre fuertes presiones humanas, con constantes daños al hábitat, algo evidente en la misma zona donde se encuentra la especie. Los datos recientes son escasos, pero se calcula que la población total puede ser de menos de 20.000 individuos, con una tendencia a la baja ligada a la pérdida continuada de bosque de montaña. En la actualidad, los números pueden ser estables en el bosque de montaña situado por encima de las áreas de tala actuales. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013)
La subespecie hoogerwerfi
Existe menos información sobre hoogerwerfi, que antes se pensaba que estaba confinada al Parque Nacional Gunung Leuser (7927 km²), en las montañas de la provincia de Aceh, donde se recolectaron hembras solitarias en 1937 y 1939. Entre los registros recientes figura el hallazgo de un nido en febrero de 1979 en el valle de Mamas (Mamas Valley), a 1800 m. Un censo realizado en 1999-2000 en Medan registró 19 individuos de ambos sexos que, según se dice, habían sido capturados dentro de los límites del parque. En octubre de 2008 se encontró una hembra incubando en el bosque de Batang Turu, en la provincia de Sumatra del Norte, a unos 280 km de Gunung Leuser, y en 2010 dos ejemplares (un macho y una hembra) fueron atrapados y ofrecidos a la venta en la misma provincia. (BOW, 2020; Hernández García, 2013)
Los habitantes locales informan de que la especie es común en Toba (Humban Hasundutan Regency), en hábitats degradados al norte del lago Toba. Entre las amenazas figuran la extracción de madera a gran escala y la pérdida de hábitat. (BirdLife, 2023; BOW, 2020; Hernández García, 2013)
Fecha
Aves de hoogerwerfi en los mercados de Medan (Sözer et al., 2006)
Total
14 de septiembre de 1998
2 hembras; compradas y alojadas en el zoo de Medan
2
25 de septiembre de 1998
1 hembra y 3 machos; también para el zoo; de las seis aves de 1998 solo sobrevivieron una hembra y un macho
4
6 de octubre de 1999
2 machos y 2 hembras, recién capturados en Aceh y, según los vendedores, vendidos después a un zoo del norte de Sumatra
4
19 de octubre de 1999
2 hembras, enviadas vivas al mercado de Pramuka (Yakarta)
2
26 de octubre de 1999
5 parejas, enviadas vivas al mercado de Pramuka (Yakarta)
10
Suma, con las cifras del artículo, 22 aves en cinco ocasiones durante las inspecciones regulares de 1996–2004, en las que nunca se encontró inornata; cuatro ejemplares (una piel y tres congelados) fueron al Museo Zoológico de Bogor (Sözer et al., 2006).
Altitud
Fuente
Altitud
Observaciones
Delacour (1977), Johnsgard (1986)
2.000–8.000 pies (c. 610–2.440 m)
bosques profundos de montaña; Johnsgard: «probablemente» entre 2.000 y 8.000 pies, al menos en la subespecie del sur (Delacour, 1977; Johnsgard, 1986)
Fuller y Garson (2000)
800–2.200 m, la mayoría de las observaciones por encima de 1.000 m
600–2.000 m (ficha original, Madge y McGowan); tipo a 1.400 m; segundo ejemplar a 650 m o, según Sözer et al., c. 950 m; valle de Mamas, 1.200–2.000 m; Fuller y Garson: el hábitat adecuado se ha reducido y fragmentado por debajo de c. 1.000–1.500 m; Sözer et al.: lo más probable, 950–2.000 m
La altitud de Delacour y de Johnsgard, expresada en pies, equivale aproximadamente a 610–2.440 m (Delacour, 1977; Johnsgard, 1986).
Hábitat
BirdLife dice que es una especie del bosque húmedo de montaña; que parece preferir el bosque primario sin talar, pero que también frecuenta hábitats alterados y degradados cercanos al bosque primario; y que las observaciones del valle de Mamas fueron de aves que se alimentaban en el suelo poco vegetado de un bosque abierto, en laderas de montaña relativamente secas, a 1.200–2.000 m (BirdLife, 2023). Fuller y Garson hablan de un habitante del bosque lluvioso montano inferior y quizá superior (Fuller y Garson, 2000). Delacour dice que vive en bosques profundos de montaña, que parece ser bastante común en los lugares adecuados, en especial en el terreno más llano alrededor de las cumbres, y que se dice que habita en suelo más llano cerca de los picos (Delacour, 1977; Johnsgard, 1986). Madge y McGowan: bosque montano, a menudo con sotobosque denso (Madge y McGowan, 2002). El primer ejemplar de hoogerwerfi se mató en un bosque de colinas (selva primaria pesada con poco sotobosque, junto a un lago de montaña) y otra hembra, a 600 m (Fuller y Garson, que citan a Meyer de Schauensee y Ripley) (Fuller y Garson, 2000). Para la edición francesa de Wikipedia, se ha adaptado también a bosques en parte explotados y transformados por el hombre (Wikipedia (fr)).
Densidad de población y movimientos
No hay estimas de densidad de población (Johnsgard, 1986). Johnsgard (1986) dice que se ignora si hay migraciones, aunque los movimientos probablemente son pequeños o nulos en una especie tropical (Johnsgard, 1986). BirdLife la considera una especie sedentaria y con una dependencia alta del bosque (BirdLife, 2023).
Otros países y poblaciones introducidas
La especie solo vive en Sumatra (Indonesia); ninguna de las fuentes consultadas menciona poblaciones introducidas, asilvestradas ni presencia fuera de su área (BirdLife, 2023; BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002). BirdLife indica Indonesia como único país, con presencia actual, origen nativo y residente todo el año (BirdLife, 2023).
07
Comportamiento y voz
Casi nada se sabe de su vida en libertad: parejas, un macho con dos hembras, cacareos al amanecer y un batir de alas que forma parte de la exhibición.
De la vida del faisán de Salvadori en libertad se sabe casi nada: las fuentes hablan de aves que se ven en pareja, de cacareos de los machos al amanecer en la época de cría y de un batir de alas en la exhibición. (BOW, 2020; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002)
Costumbres
Madge y McGowan escriben que sus costumbres son «extremadamente poco conocidas» y que prácticamente solo se sabe de una observación relativamente reciente de una pareja que caminaba por un sendero antes de desaparecer en el sotobosque (Madge y McGowan, 2002). Johnsgard (1986) dice que no hay información sobre las actividades diarias ni la sociabilidad, y que es un faisán que, según se dice, vive en el terreno más llano de las cercanías de las cumbres (Johnsgard, 1986). Delacour cuenta que las aves vivas de Clères no eran asustadizas y que su comportamiento era parecido al de los demás faisanes de su grupo, con la cola baja, como el de Edwards (Delacour, 1977). BirdLife anota que parece encontrarse con regularidad (Radinal et al., 2019; eBird, 2022) (BirdLife, 2023); la ficha original dice que en el Parque Nacional Kerinci-Seblat es visto con frecuencia por observadores de aves y registrado por cámaras trampa (BOW, 2020; Hernández García, 2013).
Organización social
En la naturaleza se han observado parejas normalmente juntas, lo que quizá sugiere que el sistema de apareamiento es monogámico. También se ha visto una pareja con un juvenil a finales de diciembre, mientras que un macho de hoogerwerfi se ha observado con dos hembras. No hay información adicional sobre la subespecie nominal en la naturaleza. (BOW, 2020; Hernández García, 2013)
Johnsgard (1986) supone que el sistema de apareamiento es poligínico, como el de sus parientes próximos, aunque aclara que es solo una conjetura (Johnsgard, 1986). El libro del autor dice, de la época de cría, que «en la naturaleza se han observado grupos que permanecen unidos hasta diciembre» (Hernández García, 2013).
La voz
Las vocalizaciones de la especie son poco conocidas y parece cantar con poca frecuencia. En la temporada reproductiva, los machos emiten cacareos al amanecer y el batir de alas forma parte de la exhibición; existe además una llamada de alarma silenciosa. Las voces de hoogerwerfi no se han descrito. (BOW, 2020; Hernández García, 2013)
Madge y McGowan escriben que, en la época de cría, los machos «cloquean» de madrugada y que el batir de alas forma parte de la exhibición; Johnsgard, que la voz no se ha descrito pero que probablemente se parece a la de las demás Lophura, con el canto y el batir de alas del macho como señales acústicas principales, y que, según Kenneth Fink, en primavera los machos emiten una serie de cacareos de madrugada, pero no antes ni después del batir de alas de la exhibición (Johnsgard, 1986; Madge y McGowan, 2002). La edición alemana de Wikipedia da «series de cacareos» (Wikipedia (de)). De hoogerwerfi, Madge y McGowan dicen que la voz no se ha descrito, pero que probablemente es parecida (Madge y McGowan, 2002).
BOW registra en el archivo Macaulay una grabación de la forma nominal y ninguna de hoogerwerfi (17 de noviembre de 2026), y dice que la voz de hoogerwerfi aparentemente no se ha descrito; xeno-canto no permitió la lectura automática y solo se enlaza (BOW, 2020; xeno-canto).
08
Alimentación
En libertad, una de las grandes incógnitas: frutas, quizá frutos secos y migas de galleta; en cautividad, pienso para faisanes con fruta y verdura.
La dieta en la naturaleza es una de las grandes incógnitas, aunque algunos estudios han informado de que se alimentan de frutas. Se han observado algunos ejemplares alimentándose de las migas de galletas dejadas por los excursionistas, pero se sabe muy poco más. (BOW, 2020; Hernández García, 2013)
En cautividad, un buen pienso para faisanes acompañado de frutas y verduras puede resultar adecuado. (Hernández García, 2013; Howman, 1979)
En libertad
Al no existir observaciones directas suficientes sobre la dieta de la especie en libertad, parte de lo que puede deducirse procede de otras especies emparentadas del género Lophura, que en conjunto se comportan como omnívoras oportunistas: escarban con fuerza la hojarasca del suelo del bosque para descubrir frutos caídos, semillas e invertebrados (insectos, lombrices, larvas), un comportamiento de «escarbar y picotear» típico de los galliformes. No hay, sin embargo, observación directa de este comportamiento en Lophura inornata. (BioDB (POR VERIFICAR))
Johnsgard (1986) dice que no se conoce nada de la dieta en libertad (Johnsgard, 1986). La edición francesa de Wikipedia dice que parece más bien vegetariano, con almendras, semillas, bayas y vegetales de la capa herbácea o baja del bosque, y que unos contenidos estomacales revelaron almendras de distintos frutos de cáscara dura (Robinson y Kloss, 1924, obra que no se ha podido consultar) (Wikipedia (fr)). Las observaciones de aves que se alimentaban en el suelo del valle de Mamas, en laderas relativamente secas, son de hoogerwerfi(BirdLife, 2023; Fuller y Garson, 2000).
En cautividad
Johnsgard dice que, en cautividad, la especie tiene los mismos hábitos de alimentación que los faisanes de espalda de fuego (Howman, 1979); Howman escribe «como los faisanes de espalda de fuego» y añade que conviene algo de calor en invierno (Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986). En la cría de Houpert y Lastère (1976), el pollo comió desde el primer momento migas de iniciación de pavo con gusanos de la harina y yema de huevo duro picada; a los dos meses comía pellets de cría comerciales, y a los cuatro, la ración de adulto, de granos variados y pellets de cría (Johnsgard, 1986). Sivelle anotó que los pollos necesitaron que se les diese el alimento de pico a pico y que al principio tomaban gusanos de la harina pequeños; más tarde, una mezcla de migas para caza, carne de girasol, sorgo y mijo, con gusanos de la harina como complemento (Johnsgard, 1986).
09
Cortejo y exhibición
Un batir de alas con el cuerpo erguido sobre las puntas de las patas, con la piel de la cara hinchada y la mancha amarilla del ojo muy visible: casi lo único que se sabe.
Del cortejo del faisán de Salvadori solo se conoce la exhibición de batir de alas descrita por criadores: el macho se yergue rígido sobre las puntas de las patas, hincha la piel de la cara y bate las alas. (Johnsgard, 1986; Wikipedia (fr))
La exhibición según Johnsgard
Según Kenneth Fink (comunicación personal citada por Johnsgard), la exhibición del macho consiste en un sencillo batir de alas ejecutado de pie, en una postura rígida y erguida, sobre las puntas de las patas (figura 19 de Johnsgard, dibujada a partir de fotografías de Ken Fink); en ese momento el anillo amarillo del ojo y la mancha amarilla detrás del ojo se hacen muy llamativos y la carúncula se hincha algo (Johnsgard, 1986). En primavera los machos emiten, de madrugada, una serie de cacareos, pero no antes ni después del batir de alas (Johnsgard, 1986). Johnsgard supone que los machos probablemente hacen también la exhibición de ofrecimiento de bocados («tidbitting») y quizá un vals lateral, como el resto del género, pero no hay descripciones (Johnsgard, 1986).
La exhibición según Hennache y Ottaviani
La edición francesa de Wikipedia, que se apoya en la monografía de Hennache y Ottaviani, dice que en el periodo nupcial el macho emite cacareos desde el amanecer, que el anillo y la mancha amarilla anaranjada del ojo se marcan mucho, y que en la parada el macho despliega las carúnculas rojas, bate las alas con frenesí poniéndose de puntillas y persigue a la hembra en sus desplazamientos (Wikipedia (fr)). Howman (1993) incluye fotografías de Kenneth W. Fink de un macho «exhibiéndose» (Howman, 1993).
La fotografía de Jonathan Pointer muestra un macho visto desde atrás con las alas extendidas; no consta si es una postura de cortejo, aunque Johnsgard describe como exhibición un batir de alas (Hernández García, 2013; Johnsgard, 1986).
Cortejo en cautividad
En cautividad no se ha descrito más cortejo que el de la exhibición de batir de alas (Howman, 1979; Johnsgard, 1986). Houpert y Lastère obtuvieron su primera puesta con una pareja soltada en una pajarera a principios de mayo (un huevo había caído en abril, desde la percha, mientras las aves seguían en el alojamiento de invierno) (Johnsgard, 1986). No hay descripciones del cortejo de hoogerwerfi(Madge y McGowan, 2002).
10
Reproducción en la naturaleza
Sin nidos de la forma nominal descritos: de hoogerwerfi solo se conocen un nido con dos huevos en 1979 y una hembra incubando en 2008; lo demás procede de aves cautivas.
El faisán de Salvadori es una especie de la que se conocen pocos datos en la naturaleza y que tampoco es muy conocida en cautividad. El primer éxito de cría se logró en 1976, por R. Houpert y R. Lastère. Actualmente existen varios zoos que mantienen esta especie. (Hernández García, 2013; Howman, 1979; Howman, 1993)
La madurez sexual y la del plumaje coinciden en las fuentes: hacia el primer o segundo año.
Calendario
EFMAMJJASOND
Libro del autor (vol. I) y ficha originalla época de cría va de abril a julio
Libro del autor (vol. II) y criadero Chintaguay: puestaépoca de puesta: N, febrero; S, agosto
Cautividad: Houpert y Lastère (Francia, 1976 según Howman)un huevo soltado desde la percha en abril, sin incubar; la pareja a la pajarera a principios de mayo; dos huevos hallados el 20 de junio; eclosión el 12 de julio
Cautividad: Sivelle (Estados Unidos, 1977)primera cría en marzo de 1977
Libertad: hoogerwerfinido con dos huevos en febrero de 1979 (valle de Mamas); la ficha original cita otro nido, hallado en octubre; hembra incubando en octubre de 2008 (Batang Turu)
Libertad: pareja con un juvenila finales de diciembre (ficha original)
No se ha descrito ningún nido en libertad de la forma nominal (Madge y McGowan, 2002). De hoogerwerfi, Madge y McGowan dicen que solo se conoce un nido con dos huevos hallado en febrero de 1979 a 1.800 m, del que no se describieron ni el nido ni los huevos (Madge y McGowan, 2002). La ficha original, en cambio, habla de dos nidos (véase el párrafo siguiente) (BOW, 2020; Hernández García, 2013). En cautividad, Houpert y Lastère observaron que la hembra anidó en una cesta de nidificación elevada, puesta cerca de su lugar de descanso, sin usar los nidos artificiales a ras de suelo que se le ofrecían (Johnsgard, 1986). El libro del autor recomienda nidos a unos 80 cm del suelo, que pueden ser una simple caja (Hernández García, 2013).
En cuanto a hoogerwerfi, se han encontrado dos nidos (a 1000 y a 1800 m; otras fuentes dan 1020 y 1800 m), ambos con dos huevos de color café, hallados en febrero y en octubre, respectivamente; en este último había un huevo aparentemente eclosionado. (BOW, 2020; Hernández García, 2013)
Puesta e incubación
La época de cría va de abril a julio, normalmente en parejas. La puesta consta de dos huevos de color marrón chocolate, que incuba únicamente la hembra durante 22 días (a 37,6 °C y con una humedad del 56-61 %). Los polluelos son muy fuertes y se alimentan bien con un pienso comercial. (BOW, 2020; Hernández García, 2013; Johnsgard, 1986)
Fuente
Huevos
Incubación (días)
Observaciones
Ficha original y libro del autor, vol. I (2013)
2, marrón chocolate
22
a 37,6 °C y 56–61 % de humedad; incuba solo la hembra; abril–julio (Hernández García, 2013)
Libro del autor, vol. II (2014)
2
22
ficha técnica de incubación; época de puesta N: febrero; madurez 1–2 años (Hernández García, 2014)
Criadero Chintaguay (2005)
2
21–22
época de puesta (N) febrero, (S) agosto; madurez 1–2 años (del Campo, 2006)
Johnsgard (1986): Houpert y Lastère (1976)
2
22
incubación artificial: dos huevos sin incubar hallados el 20 de junio, uno eclosionó el 12 de julio (Johnsgard, 1986)
Los 22 días de Johnsgard y de la ficha original corresponden a incubación artificial; BOW atribuye a la hembra sola la incubación, en cautividad (BOW, 2020; Hernández García, 2013; Johnsgard, 1986).
Los polluelos
Houpert y Lastère (1977) informaron de que criar el pollo que obtuvieron no dio problemas: comió enseguida migas de iniciación de pavo con gusanos de la harina y, de vez en cuando, yema de huevo duro picada; a los dos meses comía pellets de cría comerciales y a los cuatro, la ración de adulto (granos variados y pellets de cría) (Johnsgard, 1986). Sivelle anotó que los pollos necesitaban que se les diese el alimento de pico a pico y que, al principio, tomaban gusanos de la harina pequeños; después, una mezcla de migas para caza, carne de girasol, sorgo y mijo, con gusanos de la harina de complemento (Delacour, 1977; Johnsgard, 1986). Johnsgard cita un pollo de cuatro semanas, ilustrado en el WPA Journal (II, p. 103), de color castaño en las alas, escapularias, flancos, parte alta del pecho y dorso (Johnsgard, 1986). De hoogerwerfi no se ha descrito la cría ni los polluelos (Madge y McGowan, 2002).
11
Cría en cautividad
Una especie rara, conocida desde 1939 y criada por primera vez en 1976, con una población pequeña repartida en unos pocos zoos y criadores de Europa.
En cautividad el faisán de Salvadori es una especie rara: la primera cría se logró en 1976 y hoy la mantienen unos pocos zoos y criadores, sobre todo en Europa; el libro del autor la incluye entre las especies de «seguimiento de población» del programa regional de la TAG de galliformes de la EAZA. (Hernández García, 2013; Hernández García, 2014; Howman, 1993)
Programas de cría y población cautiva
El libro del autor (vol. II) recoge en la lista de «programas regionales de conservación (TAG Galliformes EAZA) – 2000» a la especie, Lophura inornata, con el programa «seguimiento de población» (no EEP ni ESB); en esa misma lista están como ESB europeo el faisán de cola rosa malayo (L. erythrophthalma erythrophthalma), el faisán pavo malayo y el de Rothschild, entre otros, y como EEP el faisán de Edwards y el faisán pavo Palawan (Hernández García, 2014). BirdLife dice que no hay ningún plan de recuperación ni seguimiento sistemático, que «las aves se mantienen en cautividad en numerosas instituciones» y que no se aplica la conservación ex situ en sentido estricto (BirdLife, 2023).
el Dr. Vallen (Países Bajos) importa dos machos y tres hembras de Sumatra; Houpert y Lastère, dos parejas; son las nueve aves que Roles conoce en cautividad (Roles, 1976)
Las cifras actuales de aves cautivas (censo de la WPA y registro ZIMS) se recogen al final de este capítulo.
Instalaciones
Según los datos disponibles, precisan una instalación de unos 20-25 m² para tener éxito de cría. Los nidos han de colocarse a una altura de unos 80 cm del suelo y pueden consistir en una simple caja. (Hernández García, 2013; Howman, 1979)
Howman recomienda una instalación mínima de 150–200 pies cuadrados (14–18,5 m²), con algo de calor en invierno, y no menciona el nido (Howman, 1979; Howman, 1993; Howman, 1996). Houpert y Lastère obtuvieron sus huevos con una pareja que pasó el invierno en una instalación cubierta y a principios de mayo se soltó en una pajarera, donde la hembra usó una cesta de nidificación elevada (Johnsgard, 1986).
Cría natural y artificial
Johnsgard describe una cría con incubación artificial: los dos huevos de Houpert y Lastère se hallaron sin incubar el 20 de junio, y uno de ellos eclosionó el 12 de julio, tras 22 días de incubación artificial; Sivelle confirmó los 22 días a 99,5 °F (Johnsgard, 1986). No hay descripciones de cría natural con éxito en las fuentes consultadas, y la ficha original afirma que incuba únicamente la hembra (Hernández García, 2013; Johnsgard, 1986).
Incubación artificial y crianza
La pauta general de incubación artificial de del Campo, medida siempre «a la altura media del huevo», es la siguiente (del Campo, 2006):
Fase
Valor recomendado
Conservación de los huevos antes de incubar
13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo
Cuándo empezar a incubar
Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo
Precalentamiento
6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación
Temperatura
37,5 °C durante toda la incubación, hasta que el pollo se seca
Humedad relativa
55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo
Volteo
3 o 4 veces al día, hasta tres días antes de la eclosión
Últimos tres días
Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora
Duración (faisán de Salvadori)
22 días según el libro del autor (37,6 °C y 56–61 % de humedad), Johnsgard y Howman; 21–22 en la tabla de postura del criadero Chintaguay
Después de nacer
24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días)
Los polluelos de Houpert y Lastère y los de Sivelle comieron bien pienso de iniciación con gusanos de la harina, y Sivelle tuvo que darles el alimento de pico a pico al principio; los pollos son «muy fuertes» según la ficha original (Hernández García, 2013; Johnsgard, 1986).
Semana
Días
Temperatura
Dónde
1
1–2
36 °C
Nacedora
1
2–7
32 °C
Criadora
2
8–14
30 °C
Criadora
3
15–21
28 °C
Criadora
4
22–28
26 °C
Criadora
5
29–35
24 °C
Jaula de recría (calor solo de noche durante la primera semana)
6–8
36–56
sin aporte
Jaula de recría
Pauta general de calor suplementario del criadero Chintaguay para faisanes; lo decisivo es observar a las aves (del Campo, 2006).
La anilla
El libro del autor (vol. II), en su tabla de diámetros de anilla para faisanes, da para el faisán de Salvadori 12 mm, igual que para los faisanes de Edwards y kalij (12 mm); el plateado lleva 12–14 mm (Hernández García, 2014).
Híbridos en la pajarera
Ninguna de las fuentes consultadas menciona híbridos del faisán de Salvadori; la tabla de hibridación del criadero Chintaguay, adaptada de Johnsgard (1999), no incluye a esta especie (del Campo, 2006; Johnsgard, 1999).
Cría para la conservación
La especie figura en la lista de la TAG de galliformes de la EAZA, como especie de «seguimiento de población», y no tiene EEP ni ESB (Hernández García, 2014). Fuller y Garson proponen, como objetivos, aclarar con ADN su relación con hoogerwerfi, y la UICN indica que no hay acciones específicas de conservación en curso (BirdLife, 2023; Fuller y Garson, 2000). Las cifras actuales de aves cautivas (censo de la WPA y registro ZIMS) se recogen al final de este capítulo.
12
Estado de conservación
Casi amenazado: una población sin estimar, que se sospecha en descenso moderado por la pérdida de bosque de montaña y la caza, tras una etapa de vulnerable en los años 2000.
NT
Casi amenazado
Cerca de cumplir los criterios de amenaza; población sin estimar, con un descenso moderado sospechado (BirdLife, 2023). Región: Sudeste asiático.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La justificación de la categoría
BirdLife (2023) dice que se sospecha que la especie está sufriendo descensos de población moderadamente rápidos por la pérdida y degradación del hábitat y por la caza, y que por eso se la clasifica como casi amenazada (NT, criterios A2cd+3cd+4cd) (BirdLife, 2023). Sus criterios se basan en un descenso sospechado del 15–25 % en tres generaciones (23 años, con una longitud de generación de 7,7 años), a partir de una pérdida de bosque del 10–15 % en su área (datos de Global Forest Watch) y de la caza, cuyo efecto no se ha podido medir (BirdLife, 2023). El plan de acción de los faisanes (Fuller y Garson, 2000) la clasificó como vulnerable (C1; C2a), por tener pocos registros, una población pequeña y en descenso y un bosque de media montaña que se despeja (Fuller y Garson, 2000). Madge y McGowan (2002) la califican de vulnerable, «poco común a rara», con 2.500–10.000 individuos, y la categoría se debe a la presión humana prevista sobre las cotas más altas (Madge y McGowan, 2002).
casi amenazada, A2cd+3cd+4cd; población sin estimar (BirdLife, 2023)
En el historial de BirdLife, las valoraciones de 1988, 1994, 2000, 2004, 2008 y 2012 figuran como «no reconocidas» para el concepto actual de especie, es decir, antes de que se uniera hoogerwerfi a inornata(BirdLife, 2023).
NTcasi amenazada
según la UICN (BirdLife, 2023), A2cd+3cd+4cd
229.000km²
de extensión de presencia
7,7años
de longitud de generación (BirdLife)
Población silvestre: todas las estimas
Año
Fuente
Estima
Base
1986
Johnsgard
no hay información sobre el estado en libertad ni estimas de densidad
sin cifra; «pocos registros, que indican una población pequeña, en descenso y cada vez más fragmentada»; al menos 10 localidades (Fuller y Garson, 2000)
localidades
2002
Madge y McGowan
2.500–10.000 individuos; «quizá por su carácter esquivo y la falta de prospecciones» (Madge y McGowan, 2002)
la población total «puede ser < 20.000 individuos»; pocos datos recientes (BOW, 2020)
estima
2013–2020
Ficha original y Wikipedia (en)
5.000–20.000 ejemplares maduros (en Wikipedia, «individuos en total»); cifra eliminada de esta ficha por no figurar en BOW ni en BirdLife (Hernández García, 2013; Wikipedia (en))
resumen
2023
BirdLife
número de ejemplares maduros sin estimar; calidad de los datos «pobre»; una sola subpoblación; probablemente no pequeña: quedan unos 55.000 km² de bosque en su área y se encuentra con regularidad (BirdLife, 2023)
BirdLife califica la tendencia de decreciente (sospechada) y estima el descenso en un 15–25 % en tres generaciones, en el pasado y en el futuro (2010–2033), por la pérdida de bosque (10–15 % en 23 años), la caza y la captura; considera que no hay fluctuaciones extremas y que sigue disminuyendo el área de ocupación y el número de localidades, y no considera gravemente fragmentada a la especie (BirdLife, 2023). La ficha original dice que la población tiene una tendencia a la baja ligada a la pérdida continuada de bosque de montaña, aunque «los números pueden ser estables en el bosque de montaña situado por encima de las áreas de tala actuales» (BOW, 2020; Hernández García, 2013). Wikipedia (en) dice que se cree que la población total tiende a la baja (Wikipedia (en)).
Medidas de conservación
Actualmente no se está llevando a cabo ninguna acción específica de conservación. Se requieren censos en profundidad para establecer los límites de distribución, especialmente en las áreas protegidas, y para que el hábitat adecuado pueda conservarse de forma efectiva. La subespecie hoogerwerfi requiere una atención diferente. Confinada a las montañas del norte de Sumatra, se consideró una especie plena y diferenciada, el faisán de Hoogerwerf (Lophura hoogerwerfi), hasta 2014; hoy se la trata como subespecie, y BOW la da por coespecífica de inornata. (BirdLife, 2023; BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013)
Parque Nacional Kerinci-Seblat (nominal); Parque Nacional Gunung Leuser (hoogerwerfi); dos bosques de protección, Gunung Singgalang y Bukit Dingin/Gunung Dempu, propuestos como reservas
BirdLife propone cuantificar la amenaza de la caza, evaluar las amenazas en Gunung Leuser y defender el control de la tala y de la captura ilegales, y revisar la eficacia del sistema de áreas protegidas (BirdLife, 2023).
Fuller y Garson proponen, como objetivos, hacer prospecciones para establecer el área, la distribución y las necesidades de hábitat de las dos especies (sobre todo en Kerinci-Seblat y Gunung Leuser); revisar la eficacia del sistema de áreas protegidas y apoyar nuevas áreas; aclarar su relación taxonómica con la otra especie mediante secuenciación de ADN, y pedir su protección plena según la ley indonesia (Fuller y Garson, 2000).
Véase el capítulo de cría en cautividad (tabla de población cautiva por fecha y, al final, el censo de la WPA y el registro ZIMS) (Hernández García, 2014; Howman, 1993).
Protección legal y CITES
La especie no figura en los apéndices de CITES: la búsqueda de «Lophura inornata» en la Checklist de CITES (Species+) el 17 de noviembre de 2026 no devolvió ningún taxón, y BirdLife indica que no está incluida en legislación internacional ni sujeta a controles comerciales internacionales (BirdLife, 2023; CITES (Species+)). Fuller y Garson, al enumerar las medidas, no mencionan CITES para esta especie, aunque sí lo hacen para otros faisanes (Apéndice I) (Fuller y Garson, 2000). En Indonesia, la ficha original dice que no está protegida por la ley (Hernández García, 2013).
13
Amenazas y protección
La pérdida de bosque de montaña por la agricultura itinerante y la tala, y la caza con lazos y el comercio de aves de jaula, sobre una población que casi no se conoce.
BirdLife indica como principales amenazas la pérdida de hábitat y la caza; el impacto de cada una es «bajo» y el alcance, «minoritario» (menos del 50 % de la población), con un descenso lento pero significativo (BirdLife, 2023).
Pérdida y degradación del hábitat
BirdLife calcula, con datos de Global Forest Watch (2022) y de Hansen y colaboradores (2013), que la pérdida de bosque en el área de la especie durante las últimas tres generaciones (23 años) equivale a un 10–15 %, según el umbral que se use, y la atribuye a la tala y la invasión agrícola (BirdLife, 2023). Fuller y Garson señalan que, en el Parque Nacional Kerinci-Seblat, gran parte del bosque de la parte baja de su banda altitudinal ya se ha despejado para cultivos itinerantes y que es vulnerable a nuevas invasiones agrícolas ilegales y a incendios de sequía cada vez más frecuentes; Madge y McGowan, que ya hay una invasión de tala en la parte baja de su banda altitudinal y que el parque grande está bajo una presión humana considerable, con la perspectiva de que las actividades humanas se extiendan a cotas más altas (Fuller y Garson, 2000; Madge y McGowan, 2002). La ficha original (BOW) dice que el parque sufre fuertes presiones, con constantes daños al hábitat (BOW, 2020; Hernández García, 2013). La edición francesa de Wikipedia, que resume a Fuller y Garson (2000), dice que la deforestación ilegal y el cultivo sobre quemas, incluso en parques nacionales y sobre todo a baja altitud, son una amenaza seria (Fuller y Garson, 2000; Wikipedia (fr)). Para hoogerwerfi, Fuller y Garson dicen que el hábitat adecuado se ha reducido y fragmentado por debajo de c. 1.000–1.500 m por la invasión agrícola, la extracción maderera a gran escala y el riesgo de incendios, incluso dentro del Parque Nacional Gunung Leuser (Fuller y Garson, 2000).
La caza y la captura
En el Parque Nacional Kerinci-Seblat, Fuller y Garson (que citan a Holden, 1997) dicen que la especie disminuye por las capturas de la población local para alimentarse (Fuller y Garson, 2000). BirdLife dice que se la caza, incluso dentro de áreas protegidas, y que se captura con lazos en el altiplano de Toba; que se la caza localmente para comer y se comercia con ella internacionalmente como ave de jaula; y que se registró por primera vez en un mercado de aves de Medan en 1999 y de nuevo en años siguientes, con un total de 20 aves observadas, que los vendedores decían que procedían del Parque Nacional Gunung Leuser por carreteras madereras ilegales (BirdLife, 2023). Sözer y colaboradores describen cinco ocasiones con aves de hoogerwerfi en los mercados de Medan entre 1998 y 1999 (22 aves en total), y Fuller y Garson, que el hallazgo en un mercado urbano de Sumatra del Norte indica que la caza es presumiblemente también una amenaza (Fuller y Garson, 2000; Sözer et al., 2006). La ficha original dice que en 2010 se ofrecieron a la venta en Sumatra del Norte dos ejemplares de hoogerwerfi, un macho y una hembra (BOW, 2020; Hernández García, 2013). BirdLife recomienda que las autoridades indonesias vigilen y sancionen a los vendedores (BirdLife, 2023).
Población pequeña y poco conocida
Fuller y Garson basan su valoración de 2000 en que los registros son pocos y la población, pequeña y fragmentada (Fuller y Garson, 2000). BirdLife apunta, en cambio, que es poco probable que la población sea pequeña y que se trata de una sola subpoblación, no gravemente fragmentada (BirdLife, 2023). La especie sigue siendo, no obstante, muy poco conocida: las prospecciones son pocas, y Madge y McGowan señalan que la escasez de registros puede deberse a su carácter esquivo y a la falta de prospecciones (Madge y McGowan, 2002).
Otras amenazas
Ninguna de las fuentes consultadas menciona depredadores ni enfermedades de la especie en libertad. Fuller y Garson mencionan los incendios de sequía, cada vez más frecuentes, como riesgo para el bosque de las cotas bajas de su banda altitudinal (Fuller y Garson, 2000).
Amenaza
Alcance y gravedad
Fuente
Agricultura de pequeña escala
en curso; minoría de la población; descenso lento pero significativo; impacto bajo; degradación y conversión del ecosistema
Usos: comida (de subsistencia y nacional) y animales de exhibición (internacional) (BirdLife, 2023).
14
Subespecies y variación
Dos subespecies: la forma nominal del centro y el sur de Barisan y hoogerwerfi, del norte de Sumatra, descrita con una sola hembra y considerada a veces especie aparte.
Se reconocen dos subespecies de faisán de Salvadori: la forma nominal, Lophura inornata inornata, que habita en el centro y el sur de la cordillera de Barisan, en Sumatra, y Lophura inornata hoogerwerfi, que ocupa las provincias de Aceh y Sumatra del Norte. Se presentan a continuación junto con los datos disponibles sobre cada una. (Avibase; BOW, 2020; Hernández García, 2013)
La hembra de hoogerwerfi se distingue de la nominal por las patas de gris más oscuro y por un plumaje más uniforme, casi sin manchas, mientras que el macho es aparentemente idéntico al de la forma nominal. Esta subespecie requiere atención especial, pues se consideró una especie distinta, el faisán de Hoogerwerf (Lophura hoogerwerfi), hasta 2014, y hoy se la trata como subespecie. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013; Madge y McGowan, 2002)
Macho negro azulado con ribetes metálicos; hembra de un castaño rojizo con cada pluma moteada de ante y raquis claro; patas gris verdoso o grises pálidas en ambos sexos (Delacour, 1977; Hernández García, 2013; Madge y McGowan, 2002).
Tamaño
Longitud 46–55 cm; ala ♂ 213–230 mm y ♀ 208–228 mm; cola ♂ 152–170 mm y ♀ 145–150 mm; tarso ♂ 70–75 mm (Beebe, 1922; Madge y McGowan, 2002).
(Salvadori, 1879), Acomus inornatus; Ann. Mus. Civ. Stor. Nat. Genova 14, p. 250; monte Singalan, Sumatra (Avibase; Salvadori, 1879).
Es la forma de la descripción original y la mejor conocida; casi todo lo que se sabe de la especie procede de ella (Johnsgard, 1986; Madge y McGowan, 2002; Salvadori, 1879). La fotografía es la que la tarjeta original asigna a esta forma; no se indica la procedencia del ave ni el autor (Hernández García, 2013). Las fotografías de Mehd Halaouate, tomadas en un bosque, no indican la localidad, de modo que no se asignan a una subespecie.
Faisán de Sumatra (Hoogerwerf)
Lophura inornata hoogerwerfi(Chasen, 1939)
Distribución
Provincias de Aceh y Sumatra del Norte, en el extremo norte de Sumatra; solo se conoce con certeza del Parque Nacional Gunung Leuser (montañas de Gayo) (BOW, 2020; Hernández García, 2013; Sözer et al., 2006).
Rasgos distintivos
Hembra más lisa, más oscura y más apagada, de un pardo menos castaño y sin estrías ante, finamente vermiculada de negro; garganta blanquecina; cola negra; patas gris azulado oscuro; el macho, indistinguible en el campo del de la forma nominal (Chasen, 1939; Delacour, 1977; Madge y McGowan, 2002; Sözer et al., 2006).
Tamaño
Longitud c. 40–50 cm (Madge y McGowan); machos de 450–518 mm y hembras de 357–422 mm (con alguna piel, más corta); 670 g (♀) y 700 g (♂) (Madge y McGowan, 2002; Sözer et al., 2006).
Para Fuller y Garson (2000), especie vulnerable (C2b); para BirdLife, parte de L. inornata (NT); casi desconocida: dos hembras recogidas, un nido (1979) y aves en mercados (BirdLife, 2023; Fuller y Garson, 2000; Sözer et al., 2006).
Autor y localidad tipo
(Chasen, 1939), Houppifer hoogerwerfi; Treubia 17, p. 184; Telaga Meloewak, Atjeh, Sumatra del Norte, c. 1.400 m, 24 de abril de 1937 (Avibase; Chasen, 1939; Sözer et al., 2006).
Faisán de Sumatra (Hoogerwerf). Vive en el Parque Nacional Leuser (norte de Sumatra). Esta subespecie fue descrita a partir de una hembra obtenida en 1937. En febrero de 1979 se encontró el primer nido conocido de esta subespecie (con 2 huevos). R. Sozer informó de varias parejas vistas en un mercado del norte de Sumatra, que al parecer procedían del Parque Nacional Gunung Leuser. Algunos autores la consideran una especie separada. En noviembre de 2013 el trabajo de captura de cámara realizada por Fauna & Flora International en las selvas tropicales de Sumatra dio como resultado la observación de una pareja (BOW, 2020; Hernández García, 2013; Hernández García, 2014).
Carácter
inornata
hoogerwerfi
Fuente
Hembra: color
castaño rojizo, moteado de ante, con raquis claro
pardo grisáceo o pardo, liso, finamente vermiculado de negro, sin estrías ante; castaño solo en los bordes de las plumas de las alas, la rabadilla y los flancos
Las dos fotografías de arriba están en la carpeta del sitio con los nombres «hooger» y «hoogerw», y no llevan autor ni procedencia en la ficha original (que decía «sin foto disponible» para hoogerwerfi). La hembra de la segunda, de un pardo oliváceo liso y sin estrías ante, se parece a la descripción de las hembras de hoogerwerfi (lisas, apagadas, sin estrías), y la primera muestra la cara de una hembra parda y la de un macho negro azulado; pero la identificación como hoogerwerfi procede solo del nombre del archivo y no está confirmada: POR VERIFICAR con el autor del sitio (Chasen, 1939; Hernández García, 2013; Madge y McGowan, 2002; Sözer et al., 2006).
Clave dicotómica · Clave de Johnsgard (1986), tramos que llevan al faisán de Salvadori
Machos: parte superior de un azul iridiscente, con las plumas de ribete brillante, y parte baja de la espalda azul
Sin cresta
Cola negra y patas gris verdoso: macho del faisán de SalvadoriLophura inornata
Cola blanca y patas rojas: macho del faisán de BulwerLophura bulweri
Con cresta: machos de los faisanes imperial (cresta negra), de Swinhoe y de Edwards (cresta blanca)otras Lophura
Hembras: parte superior parda, sin cresta y sin barrado
Piel orbital roja
Patas grises y una mancha amarillenta detrás del ojo: hembra del faisán de SalvadoriLophura inornata
Patas rojas y sin mancha amarillenta detrás del ojo: hembras de los faisanes de Edwards o imperialLophura edwardsi / L. imperialis
Piel orbital azul: hembra del faisán de BulwerLophura bulweri
Sistemática según BOW y otros
Birds of the World agrupa las dos subespecies en una especie, con la distribución «C y S Barisan Mts de Sumatra» para inornata y «las provincias de Aceh y Sumatra del Norte» para hoogerwerfi; en eBird son dos grupos monotípicos, «Salvadori’s» y «Hoogerwerf’s» (BOW, 2020). Madge y McGowan las tratan por separado de forma provisional; Fuller y Garson y Sibley y Monroe, como especies, y HBW y BirdLife (2014), IOC, Clements y AviList, como subespecies (véase el capítulo de sistemática) (Avibase; BirdLife, 2023; Fuller y Garson, 2000; Madge y McGowan, 2002; Wikipedia (fr)).
Híbridos y variedades en cautividad
Ninguna de las fuentes consultadas describe híbridos de esta especie ni variedades de color (mutaciones) (del Campo, 2006; Delacour, 1977; Johnsgard, 1999). La tabla de hibridación del criadero Chintaguay no incluye a la especie (del Campo, 2006).
15
Cultura y curiosidades
Un faisán con nombre de ornitólogo, descrito por un italiano sobre un macho cazado con lazo, y una subespecie que recuerda a un naturalista holandés y a su rinoceronte.
El nombre y el ornitólogo
El nombre vernáculo hace referencia al ornitólogo italiano Tommaso Salvadori (1835–1923), que describió la especie en 1879 (Hernández García, 2013; Jobling, 2010; Salvadori, 1879). «Inornata» significa «sin ornamento»; y «Acomus», el género en el que se describió, «sin cresta» (Hernández García, 2013; Jobling, 2010). La colección en la que estaba el ejemplar la hizo Odoardo Beccari, botánico, explorador y colector italiano (1843–1920) (Jobling, 2010; Salvadori, 1879).
El nombre de la subespecie
El nombre hoogerwerfi honra a Andries Hoogerwerf (1906-1977), naturalista neerlandés que en 1935 fue nombrado responsable de la protección de las reservas naturales de las entonces Indias Orientales Holandesas (actual Indonesia). Dedicó buena parte de su carrera a la conservación de la fauna de Java y Sumatra —entre ella el rinoceronte de Java del Parque Nacional de Ujung Kulon— y llegó a publicar alrededor de 250 trabajos científicos sobre la avifauna del archipiélago. (Hernández García, 2013; Jobling, 2010; Wikipedia (en, Hoogerwerf))
Un nombre popular: «faisán sencillo»
El nombre español «faisán sencillo» (Avibase, Wikipedia en español) traduce el sentido de inornata; el nombre portugués «faisão-simplório» (o «faisão-desornado» en Portugal) tiene el mismo sentido (Avibase). Avibase da también el nombre japonés «kurouchiwakiji» y el chino 黑尾鹇 (Avibase). En las fuentes consultadas no se recoge ningún nombre local en las lenguas de Sumatra más allá del indonesio «sempidan Sumatera» (Avibase).
Observaciones y fotografías
Las fotografías de esta ficha son de Mehd Halaouate (tres imágenes tomadas en un bosque, con su propia marca de agua), Jonathan Pointer y Hugo Barbosa (zoo de Amberes), y cuatro más de autor desconocido (Hernández García, 2013). Howman (1993) reproduce fotografías de Kenneth W. Fink, y Johnsgard, un dibujo de posturas basado en otras del mismo fotógrafo (Howman, 1993; Johnsgard, 1986).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Avibase: la base de datos de aves del mundo (Lepage, D., Bird Studies Canada). Lophura inornata (Salvadori, 1879), identificador 0C6585C7C010AE51, y Lophura inornata hoogerwerfi (Chasen, 1939), identificador 6DCC3F62CD2938E6. avibase.bsc-eoc.org. Consultada el 17 de noviembre de 2026 (referencia original, protónimos, localidades tipo, nombres en varios idiomas y conceptos taxonómicos de cada lista).
Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
BioDB. Lophura: facts, distribution & population. biodb.com/taxa/lophura. Citada en la ficha original de la web (apartado de alimentación). POR VERIFICAR: el sitio bloqueó la consulta (Cloudflare) el 17 de noviembre de 2026.
BirdLife International (2023). Lophura inornata. The IUCN Red List of Threatened Species 2023: e.T45355372A225163175. doi:10.2305/IUCN.UK.2023-1.RLTS.T45355372A225163175.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
BirdLife International (2023). Species factsheet: Salvadori’s Pheasant Lophura inornata. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2023). datazone.birdlife.org. Leída íntegramente el 17 de noviembre de 2026 con el navegador integrado (casi amenazado, criterios A2cd+3cd+4cd; extensión de presencia de 229.000 km²; número de ejemplares maduros sin estimar; tendencia decreciente sospechada; historial desde 1988; amenazas, comercio y acciones).
Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
Chasen, F. N. (1939). Preliminary diagnoses of new birds from north Sumatra II. Treubia, 17 (2): 183–184 (descripción de Houppifer hoogerwerfi, p. 184). doi:10.14203/treubia.v17i2.2564. Leído el 17 de noviembre de 2026 en el sitio de la revista (PDF digitalizado, texto reconocido con OCR).
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
McGowan, P. J. K., Kirwan, G. M. y Boesman, P. F. D. (2020). Salvadori’s Pheasant (Lophura inornata), versión 1.0 (texto actualizado el 16 de enero de 2017). En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). doi:10.2173/bow.salphe1.01. Ficha completa leída el 17 de noviembre de 2026 con la sesión del autor del sitio (texto en español, traducción automática de BOW; los apartados de dieta y movimientos dicen que no hay información).
Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
Salvadori, T. (1879). Catalogo di una collezione di uccelli fatta nella parte occidentale di Sumatra dal Prof. Odoardo Beccari, e descritta da Tommaso Salvadori. Annali del Museo Civico di Storia Naturale di Genova, 14: 169 y ss. (descripción de Acomus inornatus, especie n.º 172, p. 250). Leído el 17 de noviembre de 2026 en el ejemplar digitalizado del volumen XIV (1879) de Internet Archive (archive.org/details/annalidelmuseoci00muse); Avibase da también el enlace de la Biodiversity Heritage Library (item 36347). El texto es italiano; las traducciones de esta ficha son del autor del sitio. Beebe cita además P.Z.S. 1879, p. 651, lám. XLVIII, que no se ha consultado.
Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
Sözer, R., Shepherd, C. R. y Darjono (2006). First description of male Hoogerwerf’s Pheasant Lophura (inornata) hoogerwerfi (Chasen, 1939), with notes on distribution. Bulletin of the British Ornithologists’ Club, 126 (3): 207–211. archive.org/details/biostor-111750 (BioStor). Leído el 17 de noviembre de 2026.
UNEP-WCMC. Checklist of CITES Species (Species+). checklist.cites.org. Consultada el 17 de noviembre de 2026: la búsqueda de «Lophura inornata» en todos los apéndices no devolvió ningún taxón.
Wikipedia (en alemán). Salvadorifasan. de.wikipedia.org/wiki/Salvadorifasan (consultada el 17 de noviembre de 2026 mediante la API pública). Cita a Raethel (1988), obra que no se ha consultado.
Wikipedia (en francés). Faisan de Salvadori. fr.wikipedia.org/wiki/Faisan_de_Salvadori (consultada el 17 de noviembre de 2026 mediante la API pública). Cita a Fuller y Garson (2000), Hennache y Ottaviani (2005), Madge y McGowan (2002) y Robinson y Kloss (1924); obras que no se han consultado directamente.
xeno-canto. Lophura inornata. xeno-canto.org/species/Lophura-inornata. Solo se enlaza: el sitio no permitió la consulta automática (protección contra bots) el 17 de noviembre de 2026.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán de Salvadori — Lophura inornata. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/salvadori.php.