Resumen
La especie de un vistazo.
El faisán dorado (Chrysolophus pictus) es una especie de la familia Phasianidae, del género Chrysolophus, originaria del centro de China y catalogada por la UICN como de preocupación menor.
Es un faisán pequeño, esbelto y esquivo de las montañas del interior de China. El macho, de unos 100 a 115 cm de longitud total, debe más de la mitad de su tamaño a una cola larguísima de entre 63 y 79 cm; la hembra, parda y moteada, mide de 61 a 70 cm (Madge y McGowan, 2002). La especie reúne en un solo animal tres rarezas poco frecuentes: un copete de hilos dorados, una esclavina (golilla) naranja y negra que el macho despliega como un abanico alrededor del ojo durante el cortejo, y un vientre escarlata que contrasta con la espalda amarilla (Beebe, 1922; Delacour, 1977).
Su historia es una paradoja. Se conoce en Europa desde al menos 1740, se cría con enorme facilidad y ha sido durante más de dos siglos uno de los faisanes ornamentales más extendidos del mundo; sin embargo, su vida en libertad ha sido muy poco estudiada, hasta el punto de que los autores clásicos se quejaban de no disponer siquiera de una descripción de su nido (Beebe, 1922; Delacour, 1977; Gerrits, 1974). Los datos modernos, procedentes sobre todo de estudios de radioseguimiento, solo empiezan a llenar ese vacío (BOW, 2020).
- 100–115cmlongitud total del macho
- 22–23díasde incubación, solo la hembra
- 800–1.600mde altitud habitual
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoLCPreocupación menor
Ficha técnica
- Nombre científico
- Chrysolophus pictus (Linnaeus, 1758)
- Clasificación
- Orden Galliformes · familia Phasianidae · subfamilia Phasianinae · género Chrysolophus J. E. Gray, 1834
- Subespecies
- Ninguna: especie monotípica (BOW, 2020; Madge y McGowan, 2002)
- Nombres comunes
- ES faisán dorado · EN golden pheasant (también painted pheasant) · FR faisan doré · DE Goldfasan · IT fagiano dorato · PT faisão-dourado · chino kin-ky o ching-chi (transcripciones antiguas) (Beebe, 1922; Johnsgard, 1986)
- Longitud total
- ♂ 100–115 cm (cola de 63 a 79 cm) · ♀ 61–70 cm (BOW, 2020; Madge y McGowan, 2002)
- Peso
- ♂ 575–875 g · ♀ 350–700 g (BOW, 2020)
- Hábitat
- Laderas rocosas con bambú y matorral denso, de 800 a 1.600 m (Madge y McGowan, 2002)
- Distribución
- Centro y sur de China (BOW, 2020; Madge y McGowan, 2002)
- Puesta
- 5–12 huevos (hasta 13 en cautividad); incubación de 22–23 días, solo la hembra (BOW, 2020; Madge y McGowan, 2002)
- Madurez
- Plumaje adulto del macho en el segundo año (Delacour, 1977; Gerrits, 1974)
- Estado de conservación
- Preocupación menor (LC) (BOW, 2020)
- Anilla
- 10–12 en la tabla de diámetros del libro del autor, que no expresa la unidad (Hernández García, 2014)
- Conservación ex situ
- Sin programa EEP ni ESB («no recomendado» en el reparto de la EAZA del año 2000); proyecto de criadores Dorados 5000 (EP5000) para mantener líneas puras (Hernández García, 2014)
Sistemática y nomenclatura
Un nombre con tres siglos de historia y una posición taxonómica bien delimitada.
El género Chrysolophus reúne solo dos especies, ambas de las montañas de China: el faisán dorado y el faisán de Lady Amherst. Beebe lo consideraba un grupo «muy natural», bien aislado de los demás faisanes (Beebe, 1922).
Posición taxonómica
| Rango | Taxón |
|---|---|
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Subfamilia | Phasianinae |
| Género | Chrysolophus J. E. Gray, 1834 |
| Especie | Chrysolophus pictus (Linnaeus, 1758) |
| Subespecies | Ninguna |
Clasificación tradicional que sigue esta guía; la ubicación de los géneros dentro de la familia varía según los autores (Beebe, 1922; Madge y McGowan, 2002).
Origen del nombre
El nombre del género procede del griego: chryseos («dorado») y lophos («cresta»); Beebe da la forma equivalente chrysos («oro»), de modo que el conjunto significa literalmente «el de la cresta de oro». El epíteto pictus es latino y significa «pintado» o «adornado» (Beebe, 1922). En inglés se le llama golden pheasant o painted pheasant; los nombres chinos antiguos que recogen los naturalistas, kin-ky y ching-chi, significan «gallo de oro» (Beebe, 1922; Johnsgard, 1986).
El diccionario de Jobling trata Chrysolophus como un adjetivo griego ya formado, khrusolophos, «de cresta dorada», y descompone el mismo compuesto, cuando lo registra como epíteto de otras especies, en khrusos («oro») y lophos («cresta») (Jobling, 2010).
Para pictus da el participio latino que significa «pintado», derivado del verbo pingere, «pintar». Bajo esa entrada enumera tres denominaciones anteriores a Linneo que se refieren a esta ave: el «Phasianus ruber ex China» de Albin (1740), el «Phasianus variis coloribus splendidus», con su equivalente inglés «Painted Pheasant from China», de Edwards (1747), y la frase descriptiva de Linneo de 1749, «Phasianus crista flava, pectore coccineo, remigibus secundariis caeruleis», es decir, faisán de cresta amarilla, pecho escarlata y secundarias azules (Jobling, 2010).
Jobling explica además dos nombres genéricos que hoy son sinónimos. Thaumalea, el de Wagler que figura en la sinonimia de la ficha, viene del griego thauma, «prodigio» o «maravilla». Epomia viene de epomios, «sobre el hombro» (de un arnés o de un atalaje); el diccionario no precisa a qué rasgo del ave alude (Jobling, 2010).
Historia nomenclatural
La primera mención importante es la de Albin (1740) y, desde entonces, el nombre científico ha pasado por varias manos. Beebe resume la secuencia con detalle (Beebe, 1922):
- Albin, en su Natural History of Birds, lo llama «Red Pheasant Cock from China» y publica un dibujo muy fantasioso.
- Edwards critica la lámina de Albin y publica otra, «Painted Pheasant from China», con el vientre de un rosa tenue. Ya ha visto varios ejemplares en poder de la nobleza; uno de ellos, propiedad de Sir Hans Sloane, llevaba unos quince años en cautividad.
- Linneo describe la especie como Phasianus pictus (10.ª edición del Systema Naturae). Beebe cita la 12.ª edición (1766), pero la autoridad aceptada hoy es la de 1758 (Delacour, 1977; Madge y McGowan, 2002).
- Brisson propone Phasianus aureus sinensis, un nombre descriptivo que no prevalece frente al de Linneo.
- Wagler separa la especie de Phasianus con el nombre Thaumalea, que resulta inválido: un año antes, el entomólogo Ruthe había usado ese mismo nombre para un grupo de dípteros.
- J. E. Gray propone Chrysolophus, el nombre genérico válido desde entonces.
- Schlegel describe Phasianus pictus obscurus para la variedad de garganta oscura, que durante años se tomó por una especie válida de origen desconocido.
Sinonimia principal
| Nombre | Autor y fecha |
|---|---|
| Red Pheasant Cock from China | Albin, 1740 |
| Painted Pheasant from China | Edwards, 1747 |
| Phasianus aureus sinensis | Brisson, 1760 |
| Phasianus pictus | Linnaeus, 1758 |
| Thaumalea picta | Wagler, 1832 (nombre preocupado) |
| Epornia picta | Hodgson, 1844 |
| Phasianus pictus obscurus / Chrysolophus obscurus / Thaumalea obscura | Schlegel, 1865; Gray, 1867; Elliot, 1872 (variedad de garganta oscura) |
Selección de la sinonimia que recoge Beebe (Beebe, 1922).
El género y sus parientes
Los dos Chrysolophus comparten rasgos tan peculiares que casi nadie ha dudado de su afinidad: cuerpo pequeño con cola muy larga, una esclavina de grandes plumas de punta cuadrada a los lados de la cabeza, plumas del cuerpo «deshilachadas» y de textura pilosa, y espolones débiles (Madge y McGowan, 2002). Entre ambas especies casi la única diferencia estructural es el emplumado de la cara: completo en la hembra del dorado, parcialmente desnudo en la de Lady Amherst (Beebe, 1922). Beebe pensaba que la forma ancestral común estaría a medio camino entre las dos, y que cada descendiente habría especializado partes distintas del plumaje (Beebe, 1922).
En cuanto a sus parientes más próximos hay opiniones distintas. Delacour veía afinidades tanto con Phasianus (por el modo de cantar) como con Polyplectron (por las notas de llamada); Johnsgard no considera a los Chrysolophus transicionales entre ambos y, por sus pollos y por el comportamiento, cree que los grupos más próximos son Lophura y el conjunto Syrmaticus–Phasianus (Delacour, 1977; Johnsgard, 1986). Un análisis de proteínas de la clara del huevo no logró separar ambas especies, aunque sí detectó un polimorfismo de la albúmina: el dorado parece haber perdido uno de los tres tipos (Johnsgard, 1986). Con esos datos, Johnsgard propone tratarlas como una superespecie (Johnsgard, 1986).
Cómo distinguir al dorado de su pariente, el faisán de Lady Amherst
| Rasgo | Faisán dorado | Faisán de Lady Amherst |
|---|---|---|
| Esclavina del macho | Naranja, con dos barras negro azuladas | Blanca, con borde negro |
| Vientre del macho | Escarlata | Blanco puro |
| Cola del macho | Parda moteada; 63–79 cm | Blanca, con barras negras; 83–115 cm |
| Copete del macho | Dorado, sedoso | Rojo carmesí, pequeño; corona verde metálico |
| Patas y piel orbital de la hembra | Amarillentas | Gris azuladas |
| Garganta y vientre de la hembra | Uniformes, sin contraste | Claros (garganta blanca) |
| Cola de la hembra | Barrado más fino, punta aguda | Barras más anchas y marcadas, punta roma |
| Altitud | Principalmente 800–1.600 m | Principalmente 1.800–4.600 m |
| Voz del macho | «ka-cheek», dos notas, acento en la segunda | «cheek ker-chek», tres notas, acento en la primera |
| Longitud del macho | 100–115 cm | 130–173 cm |
| Incubación | 22–23 días | 23–24 días |
Las áreas de las dos especies casi se tocan en China, pero no se conoce que se solapen (Madge y McGowan, 2002). Comparación elaborada con (Delacour, 1977; Gerrits, 1974; Johnsgard, 1986; Madge y McGowan, 2002).
El dorado en los libros del autor del sitio
El primer volumen de la obra de Hernández García desglosa la taxonomía de todos los faisanes en un cuadro jerárquico. Para este género recoge a J. E. Gray (1834) con dos especies, Chrysolophus pictus (Linnaeus, 1758) y Chrysolophus amherstiae (Leadbeater, 1829), y no anota subespecie alguna para el dorado; en esa misma jerarquía atribuye el orden Galliformes a Temminck (1820) y sitúa la familia Phasianidae en la superfamilia Phasianoidea, dentro del parvorden Phasianida (Hernández García, 2013). El segundo volumen presenta el género como propio del Tíbet y de China, con machos espectaculares que, sin embargo, resultan muy difíciles de ver en su hábitat de bosque denso y oscuro, de ahí que se sepa tan poco de su conducta en libertad (Hernández García, 2014). Aunque el encabezado de la ficha del dorado usa el trinomio Chrysolophus pictus pictus, el texto aclara que no hay ninguna subespecie descrita y que lo que existe son variedades según el tono del plumaje (Hernández García, 2014).
Ese mismo volumen permite comparar las dos especies con los mismos criterios, los del propio autor (Hernández García, 2014):
| Dato | Faisán dorado | Faisán de Lady Amherst |
|---|---|---|
| Longitud (macho / hembra) | 100–115 cm / 61–70 cm | 130 cm / 66 cm |
| Ala | 19–20 cm en ambos sexos | 20–23 cm / 18–20 cm |
| Cola (macho / hembra) | 65–70 cm / 30 cm | 83–115 cm / 28–37 cm |
| Tarso | 7 cm en ambos sexos | 75–80 mm / 66–73 mm |
| Peso (macho / hembra) | 600 g / 500 g | 600–800 g en ambos sexos |
| Altitud | 800–1.600 m | 2.000–4.000 m |
| Puesta | 5–7 huevos | 12–15 huevos de 45 × 34 mm, blancos |
| Incubación | 23 días | 24–25 días |
| Madurez | Adulto en el segundo año; algunos ejemplares ya son fértiles en el primero | Plumaje completo a los dos años, pero fértil mucho antes |
Datos de los capítulos de cada especie del segundo volumen. La ficha técnica de incubación del apéndice del mismo libro da otras cifras de puesta e incubación (dorado: 5–12 huevos y 22 días; Lady: 6–7 huevos y 22–23 días); véase el capítulo de cría en cautividad (Hernández García, 2014).
El libro añade que el cortejo de la Lady es muy parecido al del dorado: el macho encadena saltos, lanza un chillido sonoro y se ayuda de la golilla para cubrirse la cara, y repite esos movimientos durante toda la época de cría e incluso fuera de ella (Hernández García, 2014). Para la alimentación remite a la del dorado: la Lady acepta cualquier alimento para faisanes, ya sean piensos, semillas, bayas o insectos (Hernández García, 2014). Según el libro, los Lady puros se reconocen, entre otros rasgos, por el blanco limpio del pecho, la cola larga y el collar plateado (Hernández García, 2014).
La identificación de las hembras de ambas especies, que son las más difíciles de distinguir, se resume en una clave dicotómica de un solo paso. Las claves dicotómicas ofrecen en cada paso dos opciones contrastadas, de las que solo una puede aceptarse, y cada par de alternativas recibe el nombre de «copla» o «dilema» (Hernández García, 2013). La que recoge el segundo volumen, atribuida a Johnsgard, es la siguiente (Hernández García, 2014):
- Patas grises y anillo ocular azuladoFaisán de Lady Amherst (amherstiae)
- Patas amarillas y anillo ocular amarillentoFaisán dorado (pictus)

Historia
De los jardines imperiales de China a las pajareras de medio mundo.
Linneo clasificó esta especie en 1758 como Phasianus pictus, aunque ya se mantenía en cautividad desde el año 1740 (Inglaterra) y fue quizás el primer faisán ornamental traído a Europa o a América. Existen pruebas de que George Washington pudo haber mantenido esta especie en Mount Vernon. Incluso se citan textos griegos anteriores a Cristo que la describen.
En China: arte, literatura y cautiverio
Los chinos criaban y representaban esta ave desde hacía siglos, mucho antes de que ningún ornitólogo occidental la viera (Beebe, 1922). Delacour la describe como un ave famosa en el arte y la literatura de China durante muchos siglos (Delacour, 1977), y Gerrits insiste en que ese papel cultural contrasta con lo poco que se sabía de su vida salvaje (Gerrits, 1974). Howman añade un dato práctico: los chinos la apreciaban por su belleza, y las plumas se han usado para montar moscas de pesca (truchas y salmones) y para adornar sombreros de señora (Howman, 1996).
Beebe, que la estudió en Hubei, ofrece una explicación de por qué se sabía tan poco de ella: el suministro de aves vivas y de pieles en China era tan amplio y constante que nadie tenía incentivo para enviar recolectores a sus montañas; además, es un ave de caza muy pobre, que prefiere correr antes que volar, de modo que los cazadores deportivos que llegaron a su hábitat la ignoraron (Beebe, 1922).
Llegada a Europa y América
La primera mención relevante en Europa es la de Albin (1740). Poco después, Edwards ya la conocía en manos de la nobleza y de «caballeros curiosos» británicos y opinaba que, traída con sus hembras, podría criarse con un poco de cuidado: el cuidado, en efecto, resultó mínimo (Beebe, 1922). Delacour cuenta que Washington tuvo en Mount Vernon faisanes dorados enviados desde Francia, regalo de La Fayette (Delacour, 1977). Desde el siglo XVIII son habituales en Europa; ya Beebe observaba que, por la enorme cantidad de aves criadas en pajarera, solo exportaban unos cientos al año desde China (se ofrecían en otoño en Hankow, hacinados en cestos de mimbre, a unos cincuenta centavos de dólar la pareja) (Beebe, 1922).
- Primera mención importante: Albin, Red Pheasant Cock from China (Beebe, 1922).
- Edwards publica su lámina del «faisán pintado de China» y comenta que los ejemplares eran frecuentes entre la nobleza británica (Beebe, 1922).
- Linneo lo describe como Phasianus pictus (Delacour, 1977).
- J. E. Gray crea el género Chrysolophus (Beebe, 1922).
- Schlegel describe la variedad de garganta oscura (obscurus) (Beebe, 1922).
- Beebe estudia a la especie en libertad en el oeste de Hubei y publica su monografía (Beebe, 1922).
- Goodwin documenta que la hembra casi nunca deja el nido para comer o beber durante la incubación, un hecho que no se había registrado hasta entonces en una especie tan común (Delacour, 1977).
- El profesor Alessandro Ghigi establece la mutación amarilla o «Ghigi» (luteus).
- El censo de la World Pheasant Association registra más de 2.000 faisanes dorados en cautividad que de cualquier otro faisán ornamental (Howman, 1996).
- El plan de acción de la UICN y la WPA la sitúa entre los faisanes de «riesgo menor» (Fuller y Garson, 2000).
Un ave de pajarera por antonomasia
A lo largo del siglo XX el dorado se convirtió en el faisán ornamental más frecuente en colecciones. Howman cifraba en 6.400 los ejemplares en cautividad en el censo que manejaba, frente a los 3.177 del faisán de Lady Amherst, su competidor más cercano si se excluye el pavo real común (Howman, 1979). Delacour llegó a afirmar que había más dorados en las pajareras que en estado salvaje (Delacour, 1977), una frase que repiten Gerrits y otros autores del momento (Gerrits, 1974).
Morfología y plumajes
Un plumaje de especialización extrema, desde el polluelo hasta el macho adulto de segundo año.
♂ El macho es de color rojo en su mayor parte, con la espalda amarilla, las alas azules y un copete de color anaranjado. Otra de sus características es la espectacular golilla de color naranja, que utiliza durante el cortejo para cubrirse la cara; bajo ella tiene unas plumas de color verde metálico.
Macho adulto
La cola es larga y adopta forma de V invertida; en su arranque se encuentran unas finas plumas de color rojo. Las patas son delgadas y amarillas, con dedos fuertes. Con más detalle: la corona lleva un copete de plumas largas, rígidas y sedosas, de un amarillo dorado brillante; las plumas largas llegan a los 100 mm (Beebe, 1922; Delacour, 1977). La cara, la barbilla, la garganta y los lados del cuello son de un pardo rojizo (más pálidos y amarillentos según algunos autores) y las coberteras auriculares, gris fulvo (Delacour, 1977; Madge y McGowan, 2002). La esclavina que arranca de la nuca está formada por plumas anchas y cuadradas, de un naranja claro en su parte visible, bordeadas por dos líneas transversales negro azuladas (Delacour, 1977). La parte alta de la espalda es de un verde oscuro, con cada pluma orlada de negro aterciopelado; el resto de la espalda y el obispillo son amarillo dorado, con los bordes deshilachados que se vuelven escarlata en los costados (Delacour, 1977). Las escapulares son de un rojo oscuro; las terciarias y sus cubiertas, de un azul profundo; las secundarias, barradas de castaño y negro; y las primarias, pardas con manchas color ante (Delacour, 1977). Toda la parte inferior es escarlata (castaño claro en el centro del abdomen y en los muslos) (Delacour, 1977).
La cola, de 18 plumas, es larga, abovedada y termina en punta. Las dos centrales son negras, densamente moteadas y rematadas de canela; el resto, con barras oblicuas negras y canela. Las coberteras supracaudales son similares en la base, pero rematan en largas puntas escarlata, rígidas y casi desprovistas de barbillas (Beebe, 1922; Delacour, 1977; Madge y McGowan, 2002). Las partes blandas son amarillas: iris claro, piel alrededor del ojo y pequeña carúncula de un amarillo vivo, pico y patas color cuerno amarillento (Delacour, 1977; Madge y McGowan, 2002). El macho tiene un espolón diminuto, casi invisible, de crecimiento lento: muy agudo pero nunca largo, y de no más de 4 mm en el macho de primer año (Beebe, 1922; Madge y McGowan, 2002).


Hembra
♀ La hembra tiene una estructura similar a la del macho, pero es de menor tamaño y carece de colores vivos: en su lugar, está cubierta de plumas marrones. La cola mide aproximadamente 30 cm.
En detalle, la corona y el cuello son pardo negruzcos, moteados de canela; la cara y la garganta, de color ante; las coberteras auriculares, gris plateado rayado de negro; el manto, barrado de pardo negruzco y rufo claro; la espalda, el obispillo y las supracaudales, rufos finamente moteados de negro; y la cola, pardo rufa con barras y vermiculaciones negras, más clara hacia la punta, que es aguda (Delacour, 1977; Johnsgard, 1986). Tiene un ligero abultamiento en la parte posterior de la corona (plumas algo alargadas) y carece de espolón (Madge y McGowan, 2002). El iris es pardo, y la piel orbital, las patas y el pico son amarillentos (Delacour, 1977). Existe variación individual en la profundidad del tono ocre (Delacour, 1977).


Plumajes según la edad
Los machos del primer año presentan un plumaje intermedio, que es una mezcla del plumaje del macho y del de la hembra.
| Etapa | Descripción |
|---|---|
| Polluelo (plumón) | Sin marcas faciales. Corona y nuca de un ante dorado cálido que se oscurece hacia el centro; cara crema; partes inferiores blanco cremoso; espalda, alas y cola pardo chocolate con una ancha banda amarillenta a cada lado del cuerpo. Iris oliváceo, pico y patas amarillos. Muy parecido al del faisán de Lady Amherst (Beebe, 1922; Delacour, 1977; Madge y McGowan, 2002). |
| Juvenil | Se parece, en miniatura, a la hembra: corona y nuca pardo ahumado uniforme, cara más pálida, garganta blanca; dorso con bandas anchas de pardo y negro. En la cola hay 16 plumas. De un tono más cálido y menos barrado que la hembra adulta (Beebe, 1922; Madge y McGowan, 2002). |
| Macho de primer año | Plumaje intermedio entre el de la hembra y el del macho: cabeza, espalda y obispillo rojo apagado, cuerpo barrado de ante y negro como el de la hembra, y cola ya casi como la del adulto. La esclavina es apenas un rudimento gris pálido con una banda negra. Longitud cercana a 700 mm, ala 185 mm, cola 400 mm (Beebe, 1922; Delacour, 1977). |
| Macho de segundo año y adulto | Alcanza el plumaje completo en el segundo año; la esclavina completa solo aparece con este plumaje y, aun entonces, plegada parece imperfecta. En el macho de segundo año las plumas de la esclavina son todavía algo más redondeadas y las cubiertas alares más moteadas (Beebe, 1922; Madge y McGowan, 2002). |
Beebe comprobó con dos machos de siete semanas, aún con plumaje juvenil, que la muda podía retrasarse diez o doce días con una alimentación abundante y reposo en la oscuridad; el ave de muda tardía llegó al plumaje intermedio con un avance de entre el diez y el quince por ciento menor hacia el color adulto. Si se arrancan las plumas rojas de la corona cuando apenas están saliendo del cañón, son sustituidas por el copete amarillo del adulto, lo que da idea de la rapidez con que se sintetizan los pigmentos (Beebe, 1922). La muda de la cola avanza de fuera hacia dentro, como en los demás Phasianinae (Beebe, 1922; Johnsgard, 1986).
Sexar al pollo por el color del iris
El libro del autor propone un método sencillo para distinguir el sexo de los pollos de esta familia de faisanes: el color del iris. En las hembras el iris se mantiene castaño; en los machos se va aclarando hasta hacerse casi amarillo (Hernández García, 2014). Lo ilustra con la serie fotográfica de pollos criados en España: un detalle de la cara a los 15 días, un ejemplar de 21 días en el que el iris delata a un macho y detalles del ojo a los 60 y a los 90 días (Hernández García, 2014). El resultado concuerda con el contraste del adulto, de iris claro y amarillento en el macho y pardo en la hembra (Delacour, 1977; Madge y McGowan, 2002).
Por dentro de una pluma: el abanico de la esclavina
La esclavina del macho es uno de los caracteres sexuales secundarios más especializados que se conocen entre los faisanes (Beebe, 1922). Cada pluma es blancuzca en la base, luego de un naranja pálido, y está cruzada cerca del extremo por una banda negra con un ligero reflejo azul metálico; el extremo lleva una segunda banda similar; entre ambas, las barbas están desnudas y son de un naranja limpio. La banda terminal está formada por barbillas oscuras que quedan como un penacho. La clave del diseño está en la segunda banda negra, oculta cuando la esclavina está plegada: al desplegarse la pluma, esa banda cierra los huecos de la línea terminal, de modo que el dibujo resulta simétrico (Beebe, 1922). Plegada durante todo el año, la esclavina parece un revoltijo de plumas rayadas; extendida, forma un halo semicircular de anillos concéntricos naranja y negro alrededor del ojo (Beebe, 1922; Beebe, 1926).
Hembras que adoptan el plumaje del macho
Es un fenómeno que se da en muchas especies de faisanes, pero que en el dorado es especialmente notable. Con la edad, o tras la atrofia del ovario, algunas hembras estériles mudan gradualmente hacia un plumaje de macho (Beebe, 1922). Beebe reproduce el caso que publicó en 1905 un aficionado inglés: una hembra de trece años que, muda tras muda, fue ganando el copete dorado, el pecho amarillo con estrías escarlata, el collar naranja barrado de negro, el manto metálico verde y las alas azules barradas, hasta casi igualar al macho (Beebe, 1922). La secuencia de colores sigue siempre el orden pardo y ante → amarillo → naranja → escarlata, y el copete sedoso es la primera estructura que se adquiere, seguido de las plumas centrales moteadas de la cola y de la esclavina (Beebe, 1922). En esas hembras el iris se aclara hacia el amarillo (Beebe, 1922).
Variación, pureza y color
Beebe no observó variaciones importantes en aves silvestres, salvo en el color de las escapulares, que va del escarlata al rojo muy oscuro (Beebe, 1922). En cautividad aparecen a veces ejemplares con el amarillo más pálido y el manto de color paja, una alteración que persiste en cada muda (Beebe, 1922). Según Delacour, los buenos dorados son pequeños, esbeltos y de patas altas, con cara y garganta de un rojo oxidado uniforme y la cola moteada sin rastro de barras; la hibridación con el Lady Amherst y las muchas generaciones criadas en pajarera han deteriorado una parte de las líneas (Delacour, 1977). Los machos son además muy sensibles al sol: expuestos a pleno verano pierden el brillo del amarillo y de la esclavina, que se recupera en la muda siguiente pero se desvanece de nuevo, de modo que conviene mantenerlos a la sombra en los meses cálidos (Delacour, 1977; Gerrits, 1974).
Medidas y peso
Los datos de la guía original, contrastados con la literatura.
Según la tabla, el macho alcanza una longitud de entre 100 y 115 cm y un peso de 600 g, mientras que la hembra mide entre 61 y 70 cm y pesa 500 g. Las alas, de 19 a 20 cm, y el tarso, de 7 cm, tienen la misma medida en ambos sexos. La mayor diferencia se da en la cola, que mide entre 65 y 70 cm en el macho y 30 cm en la hembra.
Medidas según distintas fuentes
Las cifras que publican los distintos autores no coinciden del todo, en parte porque proceden de muestras pequeñas (por ejemplo, cinco machos y cinco hembras en el caso de los pesos de Cheng y colaboradores) y en parte porque la cola, la medida más variable, depende de la muda y del desgaste. Se recogen todas para que cada lector juzgue (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
| Fuente | Longitud ♂ | Longitud ♀ | Cola ♂ | Cola ♀ | Peso ♂ | Peso ♀ |
|---|---|---|---|---|---|---|
| Tabla original de esta guía | 100–115 cm | 61–70 cm | 65–70 cm | 30 cm | 600 g | 500 g |
| Delacour (1977) | 100–110 cm | 64–67 cm | 77,5–79 cm | 35–37,5 cm | — | — |
| Johnsgard (1986), sobre Cramp y Simmons (1980) y Cheng et al. (1978) | — | — | 63–76,5 cm | 34–37,2 cm | 575–710 g | 550–665 g |
| Madge y McGowan (2002) | 100–115 cm | 61–70 cm | 63–79 cm | 34–37,5 cm | 575–710 g | 550–665 g |
| Birds of the World (2020) | 100–115 cm | 61–70 cm | 63–79 cm | 34–37,5 cm | 575–875 g | 350–700 g |
| Wikipedia | 90–105 cm | 60–80 cm | ≈ 2/3 del total | ≈ 1/2 del total | 550–700 g | — |
Birds of the World da rangos de peso más amplios que Cheng et al. Delacour da el largo en milímetros (1.000–1.100 y 640–670). (BOW, 2020; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia)
| Medida | Macho | Hembra | Fuente |
|---|---|---|---|
| Ala | 190–209 mm | 165–193 mm | Madge y McGowan |
| Tarso | 75 mm | 70 mm | Delacour; Madge y McGowan |
| Culmen | 20 mm | 20 mm | Delacour |
| Envergadura | 65–75 cm (sin distinguir sexos) | Birds of the World | |
| Huevo (medio) | 44 × 34 mm; 28,1 g (peso fresco estimado) | Johnsgard | |
| Huevo (rango) | 42–46 × 33–35 mm | Delacour | |
| Polluelo al nacer | pico 7 mm · ala 40 mm · tarso 20 mm | Beebe | |
| Macho de primer año | longitud ≈ 700 mm · ala 185 mm · cola 400 mm | Beebe; Delacour |
(Beebe, 1922; BOW, 2020; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
Peso del pollo según la edad
El libro del autor acompaña su serie fotográfica de pollos nacidos en cautividad en España con algunos pesos, que dan idea del ritmo de crecimiento hasta los tres meses (Hernández García, 2014):
| Edad | Peso |
|---|---|
| Recién nacido (minutos de vida) | 19 g |
| 10 días | 38 g |
| 21 días | 89 g |
| 45 días | 237 g |
| 90 días | 460 g |
Pesos que figuran en los pies de las fotografías de Luís Ávila. El pollo de 19 g pertenece a la línea Dorado 5000 (véase el capítulo de conservación) (Hernández García, 2014).
A los 90 días el ejemplar de la serie pesaba 460 g, una cifra no muy lejana de los 500 y 600 g que el mismo libro da como peso de la hembra y del macho adultos (Hernández García, 2014).
Distribución y hábitat
Montañas y valles con bambú y matorral, en el centro y el sur de China.
El faisán dorado vive en el centro de China, a una altitud que oscila entre los 800 y los 1.600 m, en un área muy extensa de 970.000 km².

Área de distribución
El dorado ocupa montañas y valles del centro y del sur de China: desde el sureste de Qinghai y el sur de Gansu hacia el este, por el sur de Shaanxi hasta el oeste de Henan y de Hubei, y hacia el sur, por Sichuan, el noroeste de Yunnan y Guizhou hasta el norte de Guangxi (BOW, 2020; Johnsgard, 1986). Delacour la sitúa en las montañas de China central (del sureste de Kokonor y el sur de Gansu a los montes Tsinling, en Shaanxi, y de allí al norte de Sichuan y al centro de Hubei), califica de muy dudoso un registro de Wuzhou, al este de Guangxi, y subraya que el límite exacto de la especie está lejos de conocerse bien; Madge y McGowan, en cambio, incluyen Wuzhou entre los límites del área (Delacour, 1977; Madge y McGowan, 2002). Beebe resumía la situación en 1922 diciendo que solo se tenía una idea vaga de los límites de la especie (Beebe, 1922).
El hábitat que describió Beebe en Hubei
Beebe la encontró abundante en el oeste de Hubei, siempre donde una cresta empinada, rocosa y árida, solo cubierta por un denso matorral de bambú enano, hacía imposible cultivar siquiera un palmo de terreno. En las cimas dominan las rocas, con pequeñas matas de hierba en las grietas; a media ladera suele haber una falla que forma una terraza de pocos metros de ancho y, más abajo, la pendiente se suaviza y el bambú arraiga con firmeza. En esas terrazas montó Beebe su tienda y desde allí pudo observar a las aves (Beebe, 1922).
Hábitat según la literatura moderna
La especie habita en bambú y matorral sobre laderas rocosas de media montaña (800–1.600 m), a veces en el borde de cultivos en terrazas o de plantaciones de té, y evita los bosques cerrados, los terrenos abiertos y los humedales (Johnsgard, 1986; Madge y McGowan, 2002). Su altitud rara vez supera los 2.000 m (6.500 pies), aunque en las montañas de Xiaoshennongjia (Hubei) se ha registrado entre 960 y 2.700 m (BOW, 2020; Johnsgard, 1986). El uso del hábitat varía con la estación: para alimentarse frecuenta en invierno el bosque caducifolio, los bordes de cultivo y el matorral herboso; en primavera, el bosque caducifolio; y en verano, el bosque caducifolio y el mixto de coníferas y frondosas, sobre todo si es relativamente abierto (Madge y McGowan, 2002).
Conviene no confundir ese hábitat nativo con el de las poblaciones introducidas. En Gran Bretaña, según Johnsgard, que sintetiza a Cramp y Simmons (1980), los dorados introducidos prefieren plantaciones densas de pino silvestre y de alerce, sobre todo de unos 15 a 30 años, y en menor medida los bosques mixtos, en tierras bajas con abundante cobertura sin perturbar (Johnsgard, 1986). Es un dato histórico y local, de un medio introducido: no describe las laderas de bambú del área china, no permite inferir la situación actual de esas poblaciones ni convertir los 15–30 años en una regla universal (Johnsgard, 1986).
El hábitat del género según el libro del autor
El segundo volumen describe el hábitat de los Chrysolophus en conjunto como bosques densos y oscuros de coníferas con maleza dispersa y, para el dorado en particular, repite la altitud de 800 a 1.600 m y el área de 970.000 km² (Hernández García, 2014). Esa imagen de bosque umbrío no coincide con la de las laderas rocosas cubiertas de bambú y matorral que describen Beebe y la literatura moderna; se recoge aquí tal como aparece en el libro, como descripción general del género, para que el lector pueda contrastarla (Beebe, 1922; Hernández García, 2014; Madge y McGowan, 2002). Para el Lady Amherst el mismo libro da otro ambiente: espacios con bambú y arbustos espinosos, en colinas rocosas, de 2.000 a 4.000 m (Hernández García, 2014).


Más información en otras fuentes
Birds of the World · Wikipedia · estudio de fragmentación del hábitat (2022)
Sonidos y llamadas de la especie
Comportamiento y voz
Un ave que se oye mucho más de lo que se ve.
Por ser tan conocido y familiar en cautividad, se sabe muy poco de sus hábitos en la naturaleza.
La frase resume el estado de la cuestión desde hace un siglo: Beebe afirmaba en 1922 que probablemente ninguna ave del mundo es tan conocida en cautividad y tan ignorada en libertad (Beebe, 1922), y Madge y McGowan, ochenta años después, la consideran «notablemente poco estudiada» (Madge y McGowan, 2002). Esa timidez y la espesura del hábitat explican en parte que se la oiga mucho más de lo que se la ve.
Locomoción y huida
El faisán dorado es eminentemente terrestre, más que la mayoría de los faisanes. Es muy difícil obligarlo a volar: prefiere escabullirse corriendo y, si lo sorprenden en terreno abierto, a veces abre un poco las alas y se ayuda con una especie de semiplaneo (Beebe, 1922). Beebe vio una sola vez a un macho saltar y cruzar una peña de unos tres metros, con aleteo rápido y las alas «curiosamente redondeadas y cóncavas»; luego planeó a favor de la pendiente hasta posarse entre el bambú, y el oro, el naranja y el escarlata brillaban con enorme intensidad bajo el sol (Beebe, 1922). Su paso es digno, con zancadas largas y altas (Beebe, 1922). Corre con rapidez entre la maleza, ayudado por un cuerpo esbelto y patas relativamente largas, y casi nunca vuela (Madge y McGowan, 2002).
Macho y hembra ante el peligro
Beebe señaló una diferencia sorprendente. Cuando el peligro llegaba y el macho estaba lejos de la espesura, zigzagueaba velozmente entre rocas y piedras hasta que la vegetación verde lo ocultaba; la hembra, en cambio, se agazapaba al instante y permanecía inmóvil mientras creyera que había sospecha de peligro; nunca la vio correr más de cinco metros hacia el refugio. Su plumaje se confunde tan bien con las rocas erosionadas que no la habría localizado de no tenerla ya marcada (Beebe, 1922). Aun así, los machos llaman la atención a primera vista incluso inmóviles, de modo que Beebe prefería «dejar la cuestión del color protector o no protector a las propias aves» (Beebe, 1922).
Una escena que contó con precisión: una pareja a la vista, al otro lado de un valle, se zambulló en el bambú en cuanto un ayudante se puso en pie y echó a andar por la cresta. Si no se movían más, cinco o diez minutos después asomaban por el lado contrario y seguían comiendo despacio, sin perder de vista a los observadores (Beebe, 1922). Concluyó que la vista, y en segundo lugar el oído, son los sentidos con que detectan el peligro (Beebe, 1922).
Vida social
Los datos son contradictorios. A principios de primavera Beebe vio machos solitarios y, en mayor número, machos con una sola hembra; creyó haber descubierto un harén de un macho con tres hembras, pero con los prismáticos comprobó que dos de las aves eran machos inmaduros, con algunas plumas adultas sueltas, que enseguida se separaron del grupo. No encontró bandos ni siquiera en invierno y creía que viven en parejas, o a veces en tríos, todo el año (Beebe, 1922; Johnsgard, 1986). Las referencias modernas, en cambio, dicen que se la ve en grupos buena parte del año y en bandos mayores durante el invierno, en que machos y hembras duermen juntos; los grupos se deshacen a partir de finales de marzo, cuando los machos empiezan a defender el territorio. La hembra tiene un área de campeo mucho mayor que la del macho (BOW, 2020; Madge y McGowan, 2002).
Dormideros y movimientos
Duerme en árboles y en grandes arbustos (Madge y McGowan, 2002). Beebe localizó dos dormideros, ambos en pinos y a no más de unos 3,5 m del suelo, sobre ramas horizontales hacia la mitad de su longitud: en uno, dos aves a ambos lados del tronco; en el otro, al menos una pareja posada una junto a otra. Los indicios mostraban que el último había sido usado durante muchas semanas, y que las aves se orientan unas veces hacia un lado y otras hacia otro, quizá según el viento (Beebe, 1922). En pajarera, los machos eligen siempre árboles de hoja perenne para dormir, y los pollos duermen en los extremos de las ramas, donde los depredadores trepadores no pueden alcanzarlos (Beebe, 1922).
No hay migraciones estacionales apreciables. Beebe pensó que, dada la naturaleza del terreno, apenas habría desplazamientos con las estaciones; Cheng (1963), en cambio, afirmaba que en invierno bajan cada día de las montañas a niveles más bajos en busca de comida y suben de nuevo por la tarde para dormir (Beebe, 1922; Johnsgard, 1986). En las últimas décadas el área de distribución parece haberse ampliado, quizá como respuesta al cambio climático (BOW, 2020).
Depredadores y competidores
Beebe no halló asociación con otras aves ni vio ataques de mamíferos o aves de presa, aunque dos veces encontró restos —plumas dispersas— de aves devoradas por búhos o águilas (Beebe, 1922). En China no hay contacto con el faisán de Lady Amherst, su competidor más probable, y es posible que haya contactos locales con el faisán de Reeves y el común (Johnsgard, 1986). Los cazadores chinos las capturaban con lazos (Beebe, 1922).
Rivalidad entre machos
Los machos son pendencieros, y Beebe sospechó que lo eran igualmente en estado salvaje: halló un lugar con numerosas plumas de macho, unas deshechas y ajadas, otras casi frescas, señal de muchos combates entre rivales. En cautividad la agresividad es notoria: varios machos pueden convivir si no ven a ninguna hembra, pero si se admite una sola, la reyerta puede prolongarse hasta que quede un único macho malherido (Beebe, 1922). El enfrentamiento comienza como la exhibición lateral y termina con picotazos y patadas con el espolón, aunque los espolones están tan poco desarrollados que a menudo solo se usa el pico (Beebe, 1922; Johnsgard, 1986).

La voz del macho
La llamada, que se oye sobre todo entre febrero y mayo, es un «ka-cheek» estridente, con la segunda nota más fuerte y aguda (Madge y McGowan, 2002). Beebe la transcribió como un chillido doble, áspero y metálico, «chac» o «chap-chák», y notó que un macho a unos 180 m era contestado por otro cercano y luego por otro lejano en la ladera opuesta, con la voz suavizada por la distancia, como la del cuervo o la del pavo real. Las aves cantaban desde las inmediaciones de su dormidero: durante varias mañanas seguidas, cuatro machos distintos ocuparon las mismas posiciones (Beebe, 1922). El sonido recuerda a una guadaña al afilarse y puede oírse a 500 yardas (unos 450 m); se repite cada pocos minutos durante la época de cortejo (Johnsgard, 1986). También emite un silbido fuerte, audible a 25 o 50 m, durante la exhibición (BOW, 2020; Madge y McGowan, 2002). Los campesinos chinos aseguraban a Beebe que esa llamada se oye solo en primavera (Beebe, 1922).
Johnsgard distingue además una «llamada de baile», una serie de chillidos, notas líquidas y agudas, muy excitadas, que el macho emite mientras corre hacia la hembra, y una llamada de alimentación que acompaña a la exhibición de «bocados» (Johnsgard, 1986). Delacour hace notar que el cortejo se acompaña de un silbido grave y áspero y de notas chasqueantes (Delacour, 1977). Fuera de esos sonidos, Beebe solo oyó cacareos bajos entre los sexos o entre aves jóvenes (Beebe, 1922). El carácter de la llamada recuerda, según Delacour, al de las notas de los Polyplectron (Delacour, 1977).
Alimentación
Brotes, hojas, flores, semillas e insectos.
En estado salvaje, el faisán dorado se alimenta de insectos y semillas. En cautividad, la alimentación no presenta demasiada dificultad, ya que puede adaptarse a cualquier tipo de pienso para faisanes.
En libertad
Beebe examinó lo que comían las aves en tres localidades distintas: en una, sobre todo hojas y yemas de un arbusto pequeño; en otra, brotes y yemas recién salidos del bambú enano; en la tercera, flores de una planta parecida a una azalea. En las dos últimas también halló restos de arañas e insectos, sobre todo pequeños coleópteros (Beebe, 1922). Cheng (1963) confirma esa dieta: hojas y brotes tiernos de arbustos, hojas y brotes de bambúes de porte bajo, flores de una especie de rododendro, arañas y varios insectos, en especial pequeños escarabajos (Johnsgard, 1986).
Las fuentes más recientes describen una dieta omnívora y oportunista: semillas, bayas, grano y brotes tiernos —incluidos los de rododendro y bambú—, además de insectos y arañas, que consume sobre todo al amanecer y al atardecer. En invierno muestra especial preferencia por las hojas y las semillas de trigo (Animalia.bio; Binocular Base). Un estudio invernal en Shaanxi registró 14 especies de plantas en la dieta, entre las cuales las más importantes fueron el trigo (Triticum aestivum) y la actinidia (Actinidia chinensis) (BOW, 2020). A veces se la ve alimentarse en pistas o claros a primera hora de la mañana y a última de la tarde; en invierno puede formar bandadas mixtas que también duermen juntas (BOW, 2020; Madge y McGowan, 2002).
A principios de primavera, cuando cada hoja y cada brizna de hierba rezumaban rocío, las aves no parecían bajar a beber a los arroyos del fondo del valle, y no había necesidad de hacerlo (Beebe, 1922). Picoteaban los tallos de bambú y rebuscaban entre la hojarasca (Beebe, 1922).
En cautividad
En pajarera le basta la dieta habitual de los faisanes (Howman, 1979; Howman, 1996). Beebe describe lo que se usaba hacia 1920 para criar a los pollos: alimento de origen animal (huevos de hormiga o larvas frescas de mosca, con las que crecen muy deprisa), lechuga picada, natillas de leche y huevo, patata, papilla de harina de maíz, queso picado y cáñamo y alpiste machacados; al hacerse mayores se pasaba al grano de adultos —cáñamo, trigo y cebada— (Beebe, 1922). Gerrits advierte de que la carencia de ciertos minerales en la dieta de los pollos y de los padres, junto con el hacinamiento, es la causa principal de los dedos torcidos, y que la falta de espacio, de proteína o de fibra provoca el picoteo de plumas (Gerrits, 1974).
Los criadores actuales insisten en la base de la dieta: un alimento balanceado, pensado para cada etapa (inicial, mantenimiento y cría), porque en cautividad las aves solo comen lo que se les da. El error más extendido es alimentarlas solo con maíz o trigo, que las engorda, las deja con carencias, acorta su vida y reduce su fertilidad. A falta de un pienso específico para faisanes, sirve el de gallinas o codornices complementado con cantidades moderadas de semillas, cacahuete, huevo cocido, fruta, hojas de verdura, alfalfa y, de vez en cuando, larvas de insectos; el agua, limpia y fresca, idealmente entre 15 y 25 °C (del Campo, 2006).
Cortejo y exhibición
Un abanico de oro y negro desplegado a un palmo del ojo.
La esclavina del dorado solo aparece con el plumaje adulto y, plegada, parece un amasijo de plumas rayadas. Cuando el macho la lanza hacia delante, cada barra de terciopelo encaja en su sitio y el conjunto se convierte en un sol de anillos concéntricos (Beebe, 1918; Beebe, 1922; Beebe, 1926).
La estación del cortejo
Beebe sitúa el comienzo de la época de cría hacia abril en el centro de China, aunque los desafíos y el cortejo de los machos empiezan con el primer indicio de primavera: su ardor es «un excelente termómetro», que decae en los días fríos y crece al sol de principios de primavera (Beebe, 1922). Presenció una sola vez el cortejo de un macho salvaje ante una hembra: en un día frío y nublado, una repentina abertura entre las nubes dejó pasar el sol y el macho dejó de comer, corrió hacia la hembra, giró ante ella para mostrar su costado y, tras el desplante, se sacudió y siguió comiendo. La hembra no cesó ni un momento su búsqueda de alimento (Beebe, 1922).
La exhibición lateral
El cortejo del dorado es íntegramente lateral (Beebe, 1922; Johnsgard, 1986). La secuencia, que han descrito Beebe, Delacour y Johnsgard con aves cautivas y salvajes, es la siguiente (Beebe, 1922; Delacour, 1977; Johnsgard, 1986):
- La hembra suele estar comiendo tranquilamente. El macho se acerca de costado o, más a menudo, corriendo en círculos o semicírculos amplios para colocarse delante de ella y bloquear sus movimientos.
- De pronto se detiene y adopta con un impulso la postura de exhibición, con el ojo lo más cerca posible de la cabeza de la hembra.
- La esclavina se tensa alrededor del cuello, del lado más cercano a la hembra, formando series concéntricas en torno al ojo, cuya pupila se contrae hasta un punto.
- El ala próxima a ella desciende ligeramente; el cuerpo se inclina hacia la hembra y deja a la vista la espalda y el obispillo; la cola se ladea y las supracaudales se abren al máximo.
- En ese momento el macho emite un silbido agudo, parecido al de una serpiente, con el pico abierto pero oculto tras la esclavina.
- Mantiene la postura inmóvil hasta que la hembra se mueve; entonces se relaja y repite el ataque visual con el lado contrario. Siempre busca ponerse en la línea de visión de ella, incluso retorciendo el cuerpo si la hembra gira la cabeza.
A diferencia de los Syrmaticus y los Phasianus, el dorado no tiene exhibición de aleteo ruidoso (Johnsgard, 1986). Casi no hay ingurgitación de la carúncula, lo que quizá se explique porque la esclavina oculta toda la cabeza por debajo de los ojos (Johnsgard, 1986). Lo que importa en la exhibición no es el vientre, sino la espalda y los motivos dorsales: el manto verde se aplana, la esclavina se manipula y la cola se inclina más que se abre (Beebe, 1922).
Cómo responde la hembra
La hembra, sobre todo la vieja, puede mostrarse absolutamente indiferente al principio de la temporada, mirando a través de los machos que se exhiben sin prestarles ninguna atención (Beebe, 1922). Tras una larga serie de exhibiciones, se aleja cada vez menos; el macho intenta ponerle un pie sobre el lomo y, a veces, la hembra se agacha e invita a la cópula. Durante la cópula, el macho picotea la cabeza de ella; en cuanto se produce el contacto cloacal, la hembra se libera y vuela a una percha (Johnsgard, 1986). El macho casi nunca ofrece bocados a la hembra (cortejo alimentario), un comportamiento que se ha descrito con claridad en la especie hermana (Johnsgard, 1986).


Una hipótesis antigua sobre el efecto del color
Beebe, que se confesaba incapaz de explicar el significado último de la exhibición, desarrolló una hipótesis personal: no creía que las hembras comparasen estéticamente a los machos, sino que la deslumbrante exhibición ejerce sobre ellas un efecto lento y calmante en los nervios, que estimula la secuencia de instintos que concluye en el nido, los huevos y el cuidado de los pollos. No restaba importancia a la selección sexual: se aparearía con la hembra el macho que venciera a sus rivales o exhibiera con más constancia, por cualquier mecanismo (Beebe, 1922; Beebe, 1926). Se trata de una interpretación de 1922, no de una conclusión actual, pero muestra cuánto fascinó este cortejo a quien lo observó a fondo (Beebe, 1922).
Cuándo cortejan
Los machos de segundo año y mayores pueden volver a cortejar brevemente a las hembras a finales del verano, hasta septiembre (Johnsgard, 1986). Las llamadas de territorio empiezan temprano por la mañana y se oyen a cientos de metros, donde otro macho residente puede responder (Beebe, 1922; Johnsgard, 1986).
Reproducción en la naturaleza
Lo poco que se sabe del nido, la puesta y la crianza en libertad.
En abril y mayo, la hembra pone entre 5 y 7 huevos (39-46 mm × 31-25 mm), que se incuban durante 23 días; solo la hembra incuba. En cautividad se dan casos de poligamia, aunque lo habitual es que un macho se asocie con una sola hembra.
Calendario anual
El calendario es orientativo: procede de poblaciones y fuentes distintas, y no hay un ciclo anual publicado para China.
Sistema de apareamiento
Beebe pensó que predominaba la monogamia, pero reconocía que su evidencia era escasa (Beebe, 1922). En cautividad, la poliginia es lo habitual (Johnsgard, 1986). Los datos modernos son ambiguos: la fuente más reciente la considera casi con seguridad poligínica en la población china, y otra se limita a señalar que hay indicios tanto de monogamia como de poligamia (BOW, 2020; Madge y McGowan, 2002). Los estudios de radioseguimiento indican que las hembras anidan a menudo cerca de las líneas de cresta y en zonas de mayor visibilidad (BOW, 2020).
El nido
Beebe afirmaba en 1922 que no existía ningún registro del nido ni de los huevos de un dorado salvaje; un chino inteligente le dijo haber hallado uno en el suelo, con ocho huevos (Beebe, 1922). Delacour, tiempo después, aún afirmaba que el nido no se había descrito (Delacour, 1977). Lo único registrado procede de un nido hallado en un bambusal de hierbas altas (más de 30 cm) y numerosos afloramientos rocosos (Johnsgard, 1986; Madge y McGowan, 2002). Las hembras salvajes incuban escondidas entre hojas muertas y hierba (Beebe, 1922).
Puesta y huevos
Los huevos son lisos, bastante brillantes y de forma ovalada ancha, de un ante pálido a crema, y sin manchas (Beebe, 1922; Delacour, 1977). Miden entre 42 y 46 mm de largo y entre 32 y 35 mm de ancho (media 44 × 34 mm; unos 28,1 g de peso fresco) (Delacour, 1977; Johnsgard, 1986). La puesta es de 5 a 12 huevos (Delacour, 1977; Madge y McGowan, 2002); la fuente más reciente da de 5 a 13 en cautividad y en las poblaciones introducidas, y de 6 a 8 en China (BOW, 2020). Se ponen a intervalos de unas 24 horas (Johnsgard, 1986).
Incubación y eclosión
La incubación dura entre 22 y 23 días, generalmente 22 (Johnsgard, 1986; Madge y McGowan, 2002), y la hace solo la hembra, que permanece casi inmóvil durante todo el período (Johnsgard, 1986; Madge y McGowan, 2002). Goodwin (1948) documentó que apenas deja el nido para comer o beber (Delacour, 1977). En un estudio chino la eclosión alcanzó el 90 % (BOW, 2020). El macho no defiende el nido ni cuida a los pollos; más bien tiende a distraer y acosar a las hembras (Johnsgard, 1986).
Crianza de los pollos
Tras la eclosión, la hembra apenas hace otra cosa que empollar a los pollos durante los primeros días. Más tarde los llama cuando encuentra comida y la ofrece de pico a pico o la deja caer delante de ellos (Johnsgard, 1986). Los pollos vuelan a los 12-14 días de nacer y la hembra los cuida hasta los cuatro meses, cuando están prácticamente crecidos (Johnsgard, 1986). En su primer año las hembras ya suelen poner huevos, pero los machos de esa edad aún no tienen el plumaje ni el vigor del adulto, de modo que pocos logran aparearse con éxito, aunque a veces fecundan huevos; la madurez completa se alcanza en la primavera siguiente (Delacour, 1977; Johnsgard, 1986). El pollo de dorado se parece mucho al del faisán de Lady Amherst: plumón pardo fulvo por encima y blanco leonado por debajo (BOW, 2020).
Cría en cautividad
Sencilla, económica y agradecida: la razón de su fama como ave de pajarera.
La hembra pone desde el comienzo de la primavera, a veces muy temprano. Se adapta a todo tipo de nidos y, en su ausencia, puede anidar al pie de un arbusto o en una simple depresión excavada en el suelo. Se trata de madres excelentes, y tanto la incubación artificial como la cría de los polluelos resultan sencillas: nadie que conozca o posea faisanes dorados se plantea la dificultad de criarlos. Es una especie muy fácil de reproducir en cautividad, pues basta con disponer de una pareja sana.
Instalaciones y carácter
El dorado se adapta bien a pajareras pequeñas: Howman recomienda 9,3 m² (100 pies cuadrados) y lo considera totalmente rústico, indiferente al frío y feliz en espacios reducidos (Howman, 1979; Howman, 1996). Beebe señalaba que se mantiene sano y cría con éxito en una pajarera sorprendentemente pequeña; que enseguida se vuelve manso, sobre todo en espacios reducidos, y que no suele molestar a las aves más pequeñas que él, con las que ha convivido años; pero también cuenta casos en que unos pollos mataron a toda una nidada de codornices californianas y en que un macho mató a su propia pareja (Beebe, 1922). Los machos que conviven sin hembras visibles pueden mantenerse juntos en una voladera grande (Delacour, 1977; Gerrits, 1974).
Para evitar el deterioro del plumaje, los machos deben tener sombra en verano (Delacour, 1977; Gerrits, 1974). Según Beebe, en recintos abiertos la valla de 3,6 m, con alambre de espino inclinado hacia fuera en la parte alta, evita a los gatos; en otros sitios hay que cubrir todo el recinto y colgar una tela en el lado de malla para que las aves no se asusten y choquen contra el techo al ver pasar un gato (Beebe, 1922). En libertad, cada pareja o trío se apropia de un territorio y expulsa a los intrusos —incluidos sus propios pollos, que pronto se dispersan— (Delacour, 1977; Gerrits, 1974).
Del Campo, que cría dorados en Chile, subraya otro rasgo: el dorado es de temperamento «nervioso» y, en las capturas y el manejo, algunos ejemplares se asfixian o sufren un fallo cardíaco, por lo que conviene manipularlos lo menos posible y con calma (del Campo, 2006). Para el alojamiento propone, como mínimo, entre 1 y 2 m² por ave adulta (cuanto más espacio, mejor se desarrollan) en jaulones completamente cerrados, lo que no contradice la pajarera de 9,3 m² para una pareja que recomienda Howman (del Campo, 2006; Howman, 1979). Considera además que es la especie ornamental más recomendable para empezar, por su belleza, su docilidad y su precio: basta con unas dos docenas de huevos, en dos tandas, o con un macho —mejor dos, para renovar la sangre a mitad de temporada— y de dos a cuatro hembras (del Campo, 2006).
Parejas, tríos y la separación de los jóvenes
Delacour y Gerrits aconsejan un macho con dos o tres hembras (Delacour, 1977; Gerrits, 1974); se citan hasta ocho hembras fecundadas por macho (Johnsgard, 1986). Beebe, en cambio, obtenía pollos más fuertes con parejas, y recomendaba cuantas menos hembras mejor; además, si un macho cobra antipatía a una hembra, hay que retirarla enseguida y sustituirla, porque la hostilidad acaba con la muerte de ella (Beebe, 1922). Los jóvenes pueden permanecer con sus padres hasta el comienzo del año siguiente a su nacimiento, pero conviene separarlos, porque el macho puede herir a los pollos cuando estos empiezan a ser adultos. Los machos jóvenes han de mantenerse aparte, pues maltratan a las hembras si se les deja con ellas (Beebe, 1922).
Madurez y primera cría
Aunque no alcanzan la madurez hasta el segundo año, se dan bastantes casos de ejemplares que ya han sido fértiles durante el primero. Gerrits desaconseja criar con aves de un año, y los mejores resultados se obtienen con aves de más edad (Gerrits, 1974). Una hembra de primer año pone solo la tercera parte de huevos que pondrá al año siguiente (Beebe, 1922). Los criadores actuales coinciden: la madurez sexual llega a los 2 años, aunque algunos ejemplares crían en el primero, con baja fertilidad, y la puesta empieza a fines de marzo en el hemisferio norte (a fines de septiembre en el sur) (del Campo, 2006).
Puesta y recogida de huevos
La puesta empieza en abril y los huevos deben retirarse lo antes posible (Beebe, 1922). En un recinto reducido, la hembra rara vez hace nido y deja caer los huevos por el suelo; es frecuente que el macho adquiera la costumbre de comérselos, y para desanimarlo basta con esparcir unos huevos artificiales (Beebe, 1922). Una hembra joven pone de 10 a 12 huevos por temporada; una de más de un año, de 30 a 40 (Gerrits, 1974). Beebe cifra el máximo en 45 huevos fértiles en una temporada (Beebe, 1922). Las puestas naturales son de 5 a 12 huevos (Johnsgard, 1986); el exceso en cautividad no es un índice de la puesta normal (Beebe, 1922). Del Campo estima que, si se retiran los huevos para incubarlos con madres sustitutas o en incubadora, una hembra puede poner de 20 a 30 por temporada, frente a los 8–12 que pondría e incubaría en libertad (del Campo, 2006).

Incubación
La incubación artificial resulta sencilla. Beebe recomienda gallinas bantam, mejor sedosas, porque las gallinas grandes aplastan con facilidad las cáscaras finas; da una incubación de 23 a 24 días, que se retrasa unas horas si los huevos se guardan una o dos semanas antes de ponerlos a incubar (Beebe, 1922). Howman, Delacour y Johnsgard dan 22 días, y los valores más repetidos son 22–23 (Delacour, 1977; Howman, 1979; Johnsgard, 1986). Gerrits asegura que da lo mismo criar con la madre, con una nodriza o en incubadora (Gerrits, 1974).
Incubación artificial: parámetros
Los criadores actuales trabajan con una pauta muy ajustada. El dorado es una de las especies de incubación más corta, 22 días, frente a los 28 del pavo real, un dato que importa cuando se incuban a la vez huevos de especies distintas (del Campo, 2006). La pauta de del Campo, medida siempre «a la altura media del huevo», es la siguiente (del Campo, 2006):
| Fase | Valor recomendado |
|---|---|
| Conservación de los huevos antes de incubar | 13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo |
| Cuándo empezar a incubar | Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo |
| Precalentamiento | 6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación |
| Temperatura | 37,5 °C durante toda la incubación, hasta que el pollo se seca |
| Humedad relativa | 55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo |
| Volteo | 3 o 4 veces al día, hasta tres días antes de la eclosión |
| Últimos tres días | Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora |
| Duración | 22 días |
| Después de nacer | 24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días) |
La hembra también incuba por sí misma, pero los dorados criados en cautividad pierden casi por completo esa capacidad. Con crianza natural solo se obtienen, en el mejor de los casos, de 4 a 8 pollos por hembra, porque en cuanto tiene suficientes huevos en el nido se pone a incubar y deja de poner; además hay que apartar al macho cuando ella empolla, tanto para que no la moleste como para que no mate a los recién nacidos (del Campo, 2006). Como nodrizas sirven las gallinas sedosas del Japón y las cochinchinas enanas, siempre en una jaula con malla de 1 cm como máximo, porque los pollos de faisán, muy precoces, escapan por la malla de un gallinero normal; aprenden a reconocer la llamada de la gallina al segundo o tercer día (del Campo, 2006).
Crianza de los pollos
A las veinticuatro horas de nacer conviene colocar a los pollos con la gallina en un pequeño gallinero de listones verticales, que dé a una pequeña corraleta de malla fina de unos 1 × 2 m y 45 cm de alto, sin fondo, sobre la hierba: así tienen ejercicio y sol sin quedar expuestos a gatos o ratas, y se mantienen cerca de la gallina y del comedero, lo que ayuda a que aprendan sus llamadas (Beebe, 1922). Durante los primeros días los pollos de una puesta criada por una gallina de otra especie parecen confusos y no responden bien al reclamo, hasta que aprenden el cloqueo de alimentación; si no se les confina, pueden dispersarse o morir de hambre (Beebe, 1922). A los treinta días empiezan a independizarse; los pollos que disponen de espacio abandonan a la gallina y duermen en arbustos bajos, subiendo a perchas más altas según aumenta su capacidad de vuelo (Beebe, 1922).
 Recién nacido
 1 día
 3 días
 10 días
 12 días
 15 días
 20 días
 25 días
 30 días
 35 días
 45 días
 60 días
 75 días
Desarrollo de un polluelo criado en cautividad en España, de recién nacido a los 75 días. © Luís Ávila
Calor, espacio y etapas de la crianza
En un criadero moderno la crianza se divide en tres etapas: cría (hasta el mes de vida, la más crítica, en una criadora con calor, con una mortalidad esperable del 5 al 10 %), recría (de los 30 a los 70 días, en jaulas bajas a la intemperie con un refugio con calor) y terminación (desde los dos meses, con el espacio de un adulto) (del Campo, 2006).
| Semana | Días | Temperatura | Dónde |
|---|---|---|---|
| 1 | 1–2 | 36 °C | Nacedora |
| 1 | 2–7 | 32 °C | Criadora |
| 2 | 8–14 | 30 °C | Criadora |
| 3 | 15–21 | 28 °C | Criadora |
| 4 | 22–28 | 26 °C | Criadora |
| 5 | 29–35 | 24 °C | Jaula de recría (calor solo de noche durante la primera semana) |
| 6–8 | 36–56 | sin aporte | Jaula de recría |
Pauta de calor suplementario del criadero Chintaguay; lo decisivo es observar a las aves: si se amontonan bajo la fuente de calor tienen frío, y si jadean y se alejan, calor (del Campo, 2006).
- 35–40aves por m² en la criadora
- 3–4aves por m² en la recría (30–70 días)
- 1–2m² por ave desde los dos meses
- 2bombillas rojas por criadora, por seguridad
Otros detalles prácticos: el agua se cambia dos veces al día y debe estar en un bebedero donde los pollos no puedan mojarse (basta un plato con canicas de vidrio), porque su plumaje no es impermeable y no regulan la temperatura hasta aproximadamente el mes y medio; la luz roja los calma y disimula la sangre de las heridas, lo que reduce el picaje; los pollos de distinto tamaño no deben criarse juntos; y la comida se reparte por el suelo y en varios puntos durante la primera semana (del Campo, 2006).
Problemas frecuentes en la cría de faisanes
Gerrits detalla dos problemas habituales en cualquier faisán de pajarera. Los dedos torcidos aparecen entre los pocos días y las seis semanas; se deben, según él, a carencias de minerales en la dieta de pollos y de padres, al hacinamiento y a veces a una temperatura demasiado alta en la incubadora, y no a la consanguinidad, como se creía antes (Gerrits, 1974). El picoteo de plumas puede llegar a matar a los pollos, y se debe a la falta de espacio, de proteínas o de fibra (Gerrits, 1974). Conviene trasladar cada día la corraleta a un lugar nuevo de césped o ponerle una capa fresca de arena, y no reutilizar el sitio donde estuvo otra nidada, para evitar infecciones (Gerrits, 1974).
Longevidad en cautividad
Beebe recoge que, de 75 aves que vivieron en el zoo de Londres, la vida media fue de casi dos años y la máxima de siete años y nueve meses; las condiciones eran las de recintos reducidos y sin hierba, muy inferiores a las de una buena pajarera privada (Beebe, 1922). Los criadores actuales dan para los faisanes en cautividad una vida de 10 a 15 años con buena alimentación y manejo (del Campo, 2006).
Pureza de las líneas
Muchos dorados de pajarera han perdido la pureza por cruces con el Lady Amherst (Delacour, 1977; Gerrits, 1974). Un reflejo verde metálico en la garganta delata sangre de Lady Amherst; los dorados puros tienen la cara y la garganta de un rojo uniforme y la cola moteada, sin barras (Delacour, 1977). Recomendación editorial: evitar los híbridos y mantener líneas de aves puras, tanto por razones de conservación como por la belleza propia del ave.
Ficha técnica de incubación: el dorado y otros faisanes
El apéndice práctico del segundo volumen reúne en una ficha técnica el número de huevos, los días de incubación, la época de puesta en cada hemisferio y la edad de madurez sexual de todos los faisanes tratados en la obra. Para el dorado figuran 5–12 huevos, 22 días de incubación, puesta a finales de marzo en el hemisferio norte y a finales de septiembre en el sur, y madurez sexual a los dos años (Hernández García, 2014). Para situar esos valores se reproducen aquí las filas de su pariente y de otros faisanes comunes en cautividad (Hernández García, 2014):
| Especie | Huevos | Incubación (días) | Época de puesta | Madurez (años) |
|---|---|---|---|---|
| Faisán dorado (Chrysolophus pictus) | 5–12 | 22 | N: finales de marzo · S: finales de septiembre | 2 |
| Lady Amherst (Chrysolophus amherstiae) | 6–7 | 22–23 | N: principios de abril · S: principios de octubre | 2 |
| Faisán común (Phasianus colchicus) | 8–14 | 22–25 | N: principios de marzo · S: principios de septiembre | 1 |
| Faisán verde (Phasianus versicolor) | 6–15 | 24–25 | N: principios de marzo · S: principios de septiembre | 1 |
| Faisán venerado (Syrmaticus reevesii) | 6–9 | 24–25 | N: principios de abril · S: principios de octubre | 1 |
N = hemisferio norte; S = hemisferio sur. La fila del dorado difiere de la del capítulo de la especie en el mismo libro (5–7 huevos y 23 días); véase la nota del capítulo de reproducción en la naturaleza. Según el primer volumen, los datos de reproducción en cautividad de la obra son para Europa salvo que se indique lo contrario (Hernández García, 2013; Hernández García, 2014).
En la ficha, el dorado y el Lady Amherst alcanzan la madurez sexual a los dos años, mientras que el faisán común, el verde y el venerado figuran con un año (Hernández García, 2014); la cifra concuerda con lo dicho más arriba sobre los machos de primer año, que aún no tienen el plumaje del adulto.
Cuando falla la incubación: causas probables
El apéndice recoge también una guía de causas probables de los fallos de eclosión. Es una lista general para faisanes, no específica del dorado, pero aplicable a la pauta de incubación descrita más arriba (Hernández García, 2014):
| Lo que se observa | Causas probables según el libro |
|---|---|
| Muchos huevos claros | Huevos guardados demasiado tiempo o en malas condiciones; mala temperatura, sobre todo sobrecalentamiento en los primeros días |
| Muchos embriones muertos | Temperatura demasiado alta o demasiado baja al comienzo de la incubación; volteo incorrecto; aireación defectuosa |
| Pollos formados que mueren antes de picar la cáscara | Mala humidificación (también en la nacedora); temperaturas demasiado altas o bajas en la incubadora; aireación defectuosa |
| Huevos picados con el pollo muerto dentro | Humedad insuficiente en la incubadora o la nacedora; desinfección incorrecta; aireación defectuosa; temperatura demasiado baja |
| Nacimientos tardíos | Temperatura muy baja en la incubadora; almacenamiento muy prolongado de los huevos |
| Pollos viscosos | Temperatura muy baja, o temperatura y humedad muy elevadas; aireación defectuosa |
| Pollos con patas y dedos torcidos | Temperatura elevada en la nacedora; humedad muy baja en la incubadora; volteo incorrecto |
| Pollos débiles | Temperatura elevada |
| Pollos pequeños | Huevos pequeños o humedad muy baja |
| Pollos blandos | Temperatura muy alta o muy baja; aireación insuficiente |
| Pollos poco emplumados | Temperatura muy alta en la incubadora, humedad baja o ventilación demasiado fuerte en la nacedora |
Sobre los dedos torcidos, esta tabla añade causas de incubación (temperatura elevada en la nacedora, humedad baja, volteo incorrecto) a las que daba Gerrits, centradas en las carencias minerales y el hacinamiento; ambas explicaciones no se excluyen (Gerrits, 1974; Hernández García, 2014).
La anilla
La tabla de diámetros de anilla para faisanes asigna al dorado y al Lady Amherst el mismo valor, de 10 a 12. En el mismo cuadro el faisán común se anilla con 12, los espoloneros (Polyplectron) con 10, el gran argus con 14 y los pavos reales con 18–20 (Hernández García, 2014). La tabla no expresa la unidad de medida. Los ejemplares de la línea Dorado 5000 llevan además una anilla específica del proyecto (véase el capítulo de conservación) (Hernández García, 2014).
Inseminación artificial
El libro del autor dedica un apartado a la inseminación artificial, redactado con la colaboración de Sushil Sood. La presenta como una técnica especial para superar los problemas reproductores de las especies que ponen muchos huevos infértiles: consiste en un masaje cooperativo en el macho para obtener el semen y un masaje sencillo, no cooperativo, en la hembra, y es arriesgada, por lo que solo debe hacerla quien tenga experiencia práctica (Hernández García, 2014). Sus ventajas son que permite tener muchos más pollos de los que se lograrían por vía natural, que los pollos así obtenidos se reproducen después de manera natural y que posibilita combinaciones genéticas más amplias en menos tiempo (Hernández García, 2014). El ejemplo que da es el tragopán de Cabot, reproducido con ella en Estados Unidos, China y Europa, y que a buen seguro no estaría hoy en las colecciones sin esta técnica (Hernández García, 2014). El libro no la menciona para el dorado, cuya reproducción describe como sencilla con una pareja sana (Hernández García, 2014); se recoge aquí como parte de las técnicas disponibles para faisanes en general.
Enfermedades frecuentes en los faisanes de pajarera
El apéndice sanitario del libro, redactado con la colaboración del veterinario Antonio García Montané, trata las enfermedades comunes de los faisanes en general, sin distinguir especies (solo la capilariosis se cita expresamente para el faisán común). Según el texto, dominan las de origen parasitario, a las que se suma el síndrome de enteritis transmisible (Hernández García, 2014). Se resumen a continuación.
| Enfermedad | Rasgos que destaca el libro | Prevención y tratamiento según el libro |
|---|---|---|
| Coccidiosis | La más frecuente, a cualquier edad y especialmente grave en el pollo. Se contagia por heces sobre la comida o el agua; los ooquistes resisten de 15 a 20 meses en el suelo y la receptividad aumenta con carencias vitamínicas y otros parásitos. La forma cecal (atribuida a Emeria phasiani) es la más grave: aparece entre los 10 días y las 5 semanas, tras 5–7 días de incubación, con diarrea amarillo verdosa, luego parda y a veces sanguinolenta, abatimiento, plumas erizadas, menos apetito y más sed; la muerte llega a los 2–4 días. Se ha observado transmisión desde codornices, aves de corral, palmípedas y palomas. | Suelo seco y limpio (removerlo, elevar comederos y bebederos, rotar los parques, desinfectar), lotes homogéneos, sin sobredensidad y con el menor estrés posible. Tratamiento clásico con sulfamidas, no de forma continuada por su toxicidad renal, en dos o tres periodos y con aporte de vitaminas. |
| Tricomoniasis | Protozoo a menudo asociado a la coccidiosis; posible a cualquier edad y grave sobre todo en el pollo débil. Contagio por el agua tibia de bebederos ensuciados; diarrea amarilla, líquida y espumosa y plumas revueltas. La mortalidad puede llegar al 40 % del lote. | Desparasitación preventiva; tratamiento con dimetridazol o ronidazol, completado con antibiótico y vitaminas si la mortalidad es alta. |
| Ascaridiasis y heterakidosis | Infecciones raras; provocan diarrea y debilidad con poca mortalidad, y hacen al ave más receptiva a otras enfermedades. La heterakidosis tiene poca importancia patógena por sí misma, pero el parásito actúa como portador de Histomonas meleagridis, causante de la histomonosis. | Desparasitaciones terapéuticas y protectoras. |
| Capilariosis | Verano y otoño, en animales de más de 6 semanas (descrita en el faisán común). Forma esofágica, con lotes flacos que pesan de 3 a 4 veces menos de lo normal, y forma ileocecal, con diarrea amarilla profusa. | Higiene del terreno o sulfato de hierro; mebendazol en el alimento; levamisol en el agua. |
| Teniasis (cestodos) | En animales de 3 a 6 semanas, asociada a la coccidiosis: adelgazamiento, diarrea, anorexia y sed intensa. | Mebendazol; tratar el suelo para eliminar los huéspedes intermediarios (caracoles, hormigas). |
| Singamosis (gusano de la horquilla) | También llamada del pico abierto: los gusanos obstruyen con facilidad la tráquea del pollo, con poco apetito, anemia y adelgazamiento. Favorecen la enfermedad la sobrepoblación y los suelos húmedos y ricos en materia orgánica. | Nitroxinil con mebendazol; en el terreno, sulfato de hierro, cal viva y reposición de la tierra. El libro la considera un peligro por la dificultad de esterilizar el suelo. |
| Síndrome de enteritis transmisible | Ligado a la cría intensiva: proliferación anormal de un colibacilo, postración y, tras 3–4 días de menor consumo, diarreas pardas y malolientes. Se transmite por agua sucia y aparece con sobredensidad y sucesión de lotes sin vacío sanitario. | Higiene, rotación de los parques de pollitos, limpieza del material, vitaminas y oligoelementos a los reproductores a mediados y finales de la puesta; antibioterapia elegida en laboratorio, con tres reglas: actuar con fuerza, rapidez y durante mucho tiempo. |
| Salmonelosis | Bacterias muy resistentes en el medio, presentes en el suelo, el alimento y los desechos y vehiculadas por roedores y gusanos. A los 2 días puede acabar con del 20 al 80 % de los afectados; diarrea abundante, amarillo verdosa, espumosa y maloliente. Muy grave también para otros animales y personas. | Antibióticos selectivos; desratizar, evitar introducir otras aves, higiene rigurosa de los huevos. |
| Pasteurelosis (cólera aviar) | Bacterias presentes de forma natural que se desarrollan con el estrés. La forma sobreaguda mata a la mitad en 4–5 horas, incluso a aves de buen aspecto; la crónica provoca inflamaciones locales, como en los senos perioculares. | Antibióticos; algunos, como las sulfonamidas, inhiben la puesta. |
| Micoplasmosis | Artrosinovitis (articulación tibiotarsiana caliente y dolorosa, cojera y adelgazamiento, sobre todo de la semana 8 a la 16) y complicaciones respiratorias crónicas (conjuntivitis, párpados hinchados, respiración ronca, tos). Los curados pueden seguir siendo portadores de 2 a 5 meses; afecta a la puesta, a los nacimientos y a la calidad de los jóvenes. | Antibióticos de la familia de los macrólidos; la prevención incluye la vacunación, evitar el hacinamiento, las temperaturas muy bajas y los locales húmedos. |
Resumen del apéndice «Enfermedades aviarias comunes del faisán» (Hernández García, 2014). El apéndice cita como fuente el atlas de enfermedades de las aves de Ivan Dinev (2010).
El libro añade un recordatorio general: usar bebederos limpios, vaciados dos horas antes y aclarados sin detergentes ni antisépticos; aplicar de forma sistemática a los pollitos un tratamiento preventivo antiparasitario; manipular a los animales lo menos posible, porque el estrés baja las defensas; y no vacunar nunca a los reproductores en época de cría (Hernández García, 2014). Según el mismo texto, el pollito de 4–5 semanas tiene defensas escasas salvo la inmunidad que le transmiten sus padres por el huevo, y hacia las 5–10 semanas ya ha adquirido inmunidad frente a la coccidiosis y la singamosis (Hernández García, 2014). Recomendación editorial: ante cualquier sospecha, un diagnóstico veterinario con análisis de laboratorio es preferible a tratar por cuenta propia, y el uso de antibióticos y antiparasitarios depende de la legislación de cada país.
Un pollo maestro para otras especies
En el primer volumen, al tratar el gallo verde, cuyos pollos tienden a comer mal, el autor recomienda colocar con ellos algunos pollos de faisán dorado o de gallina pequeña para que les enseñen a comer (Hernández García, 2013).
Estado de conservación
Una especie abundante en su hábitat natural, con vigilancia pendiente.
Población estable y extendida. Región: China.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La población está disminuyendo debido a la extracción de madera, la captura para el comercio y la caza para la alimentación (del Hoyo, 1994). El tamaño de la población no se ha cuantificado, aunque el número de parejas es bastante alto; por esta razón, la especie se evalúa como de preocupación menor.
Cómo ha ido cambiando la valoración
| Año | Fuente | Valoración |
|---|---|---|
| 1922 | Beebe | Mantiene su población a pesar del trampeo; ave muy cauta, de plumaje protector en la hembra y nido bien escondido (Beebe, 1922). |
| 1986 | Johnsgard | Nada se sabe de su estado en la naturaleza; los lazos son habituales, pero la especie es muy recelosa y parece sobrevivir a esa presión (Johnsgard, 1986). |
| 1994 | del Hoyo (citado en la guía) | Población en descenso por la tala, la captura y la caza; evaluada como de preocupación menor. |
| 2000 | Fuller et al. (UICN/WPA) | Gran área y «cientos de miles» de aves restantes; subcategoría «casi amenazada» dentro del antiguo riesgo menor (Fuller y Garson, 2000). |
| 2002 | Madge y McGowan | Población de «decenas de miles»; había sido considerada casi amenazada y fue retirada recientemente de la Lista Roja (Madge y McGowan, 2002). |
| 2020 | Birds of the World | Preocupación menor; población en declive local, pero con un área ampliada en las últimas décadas (BOW, 2020). |
El tamaño de la población no se conoce con precisión: la frecuencia de observación en algunas zonas, el tamaño del área y las estimas de densidad sugieren decenas de miles de aves (Madge y McGowan, 2002), mientras que otras fuentes hablan de cientos de miles en muchos lugares (BOW, 2020; Fuller y Garson, 2000). Aparece en varias áreas protegidas, entre ellas la reserva del panda de Foping y la reserva natural de Taibaishan (Madge y McGowan, 2002).
- 970.000km²de área de distribución
- +10.000avescomo mínimo, según las estimas más prudentes; otras hablan de cientos de miles
- 2reservasconocidas con la especie: Foping y Taibaishan
La conservación según el libro del autor
El segundo volumen dedica un capítulo propio a la conservación. Su punto de partida es que el esfuerzo debe dirigirse a conservar cada especie en su hábitat natural y que la reproducción en cautividad es un camino hacia ese fin, no un fin en sí misma. Quien quiera trabajar por una especie debe regirse por el respeto, la sostenibilidad y la implicación social y ambiental, y difundir tanto los éxitos como los fracasos para que la comunidad aprenda (Hernández García, 2014).
EEP y ESB: la conservación ex situ en Europa
La conservación ex situ es la que se hace fuera del hábitat natural; en el caso de los animales, en zoológicos y acuarios, cuya principal aportación a la biodiversidad es participar en programas de cría de especies amenazadas. En Europa la Asociación Europea de Zoos y Acuarios (EAZA) dirige y coordina dos niveles de programa (Hernández García, 2014):
| Programa | Grado de gestión | Qué hace |
|---|---|---|
| EEP (programa europeo de especies en peligro) | El más intensivo | Recoge el estado de todos los animales de la especie en los centros participantes, elabora su libro genealógico, hace análisis demográficos y genéticos y un plan de gestión (recomendaciones de cría, traslados). Gestiona las líneas de sangre para recomendar intercambios entre instituciones y procura conservar el repertorio de comportamientos naturales ante una eventual reintroducción, porque buena parte de ellos no se transmite por los genes. |
| ESB (libro de cría europeo) | Menos intensivo | Recopila datos de nacimientos, muertes, traslados y otros aspectos de la población de todas las instituciones que mantienen la especie, normalmente con un programa informático que permite analizar la población y valorar sus tendencias a largo plazo. |
El libro reproduce el reparto de programas del grupo de galliformes de la EAZA del año 2000, que clasifica los faisanes en cuatro niveles. «No recomendado»: especies que no precisan un plan ex situ porque los ejemplares son insuficientes o inexistentes, o bien muy abundantes. «Seguimiento de población»: especies ligeramente amenazadas, o con el hábitat alterado, cuyas poblaciones cautivas conviene vigilar por si en el futuro necesitan un plan más completo. «Studbook»: especies de situación preocupante, de las que hay que registrar los ejemplares cautivos. EEP: especies muy amenazadas en la naturaleza, para conservar poblaciones cautivas con la mayor variabilidad genética (Hernández García, 2014).
En ese reparto el faisán dorado y el faisán de Lady Amherst figuran como «no recomendado» (Hernández García, 2014). Con programa EEP aparecen solo el pavo del Congo, el faisán de Edwards y el faisán pavo de Palawan; con ESB europeo, entre otros, los tragopanes de Blyth y de Cabot, el faisán cola rosa malayo, los faisanes pavo de Rothschild y malayo y el gran argus (Hernández García, 2014). Como coordinadores de los programas citados en el libro figuran, por ejemplo, Mathieu Dorval para los dos tragopanes, Steven Vansteenkiste (Amberes) para el pavo del Congo y Tomas Kapic (Praga) para el faisán de Edwards (Hernández García, 2014).
Dorados 5000 (EP5000): un proyecto de pureza
El capítulo incluye una iniciativa concreta sobre el dorado, que el libro presenta como «un sueño para muchos criadores hecho realidad». No es un EEP ni un ESB, sino un proyecto de criadores: su propósito es reproducir dorados puros, en contraposición a los ejemplares de origen híbrido, que son los que han deteriorado muchas líneas de pajarera (Delacour, 1977; Gerrits, 1974; Hernández García, 2014). Esta es su historia tal como la cuenta el libro (Hernández García, 2014):
- Un grupo de criadores belgas, dentro del grupo belga de Aviornis, quiere reproducir dorados puros. Empiezan seleccionando aves, pero los datos de que partían no eran correctos.
- Algunos miembros se fijan en los ejemplares puros que hay en los museos. Con el apoyo de Aviornis Flandes visitan colecciones con muchas pieles de faisanes: el Museo de Historia Natural de París, el Museo de Historia Natural de Berlín (Naturkunde) y la colección de aves de Tring, en Inglaterra. El trabajo inicial consiste en tomar muchas fotografías para distinguir y definir un fenotipo puro.
- Trabajan con la World Pheasant Association (WPA), lo que permite hacer pruebas de ADN a las aves y comparar sus rasgos con la presunción de pureza genética. Los resultados se publican en la revista Aviornis Internacional.
- Se crían 72 aves «limpias», es decir, puras.
- Se crían 117.
- Se crían 220.
- Deciden vender parte de los ejemplares para crear un grupo de criadores. Desde entonces los ejemplares puros se anillan con una anilla «5000».
- Se completa la identificación y se publican en Aviornis cuatro tablas para distinguir puros e híbridos en ambos sexos. Como son los criadores quienes plantean los parámetros de pureza, empiezan a reproducir con 98 machos y 67 hembras de tres orígenes: la línea de Beijing y la del zoo de San Diego, ambas aportadas por Michel Klat, y la del zoo de Berlín, de Piet Kreeft.
- En marzo, Ludo Pinceel presenta el trabajo en la reunión de WPA-France. Se habían identificado cepas puras de dorado; del Lady Amherst, en cambio, solo un ejemplar quedó confirmado como puro por el control de ADN europeo: un macho en Bélgica, nacido de un huevo importado de China, emparejado con una hembra cedida por Michel Klat, que en 2006 no llegó a criar.
- Iñaki Hernández (Faisanesdelmundo.com) y varios criadores —Luís Ávila, Dalmiro Coello y Hugo Barbosa— se implican en el proyecto en España.
El objetivo del proyecto en España es crear una población viable a largo plazo de dorado de raza pura en aviarios españoles, y también informar al público en general sobre el dorado (Chrysolophus pictus) en su forma pura (Hernández García, 2014). Se organiza en tres fases:
- Adquisición de dorados de raza pura por los miembros del proyecto, en el extranjero o en España. Lo ideal, a futuro, es que esa adquisición se coordine y dirija según las recomendaciones de quien lleve el registro genealógico, y que solo se obtengan ejemplares puros que cumplan todos los requisitos del proyecto.
- Cada criador crea su propia base de datos (registro genealógico) con ayuda del coordinador, comprobando siempre las evidencias de todos los individuos y de la descendencia de los participantes. Los datos servirán, entre otras cosas, para recomendaciones de cría y para evitar la endogamia. Los miembros anillan sus ejemplares con una anilla específica que facilita el grupo.
- Difusión de los dorados puros entre criadores interesados.

Las categorías de la Lista Roja según el libro
El libro incluye un diagrama y una explicación de las categorías de la Lista Roja de la UICN que usa en toda la obra. El dorado figura en la de menor riesgo (Hernández García, 2014):
| Categoría | Cómo la resume el libro |
|---|---|
| Preocupación menor (LC o LR/lc) | La categoría de menor riesgo; no es calificable en otra superior. Incluye taxones ampliamente distribuidos. |
| Casi amenazada (NT o LR/nt) | Próxima a la amenaza o con posibilidad de pasar a una categoría de mayor amenaza en un futuro cercano. |
| Vulnerable (VU) | Especies con una reducción importante de población o con fragmentación o disminución de su distribución natural. |
| Amenazada (EN) | Especies cuya existencia está comprometida globalmente, por depredación directa o por la desaparición de un recurso del que dependen, ya sea por la acción humana, por cambios del hábitat, por hechos fortuitos o por cambios graduales del clima. |
| Seriamente amenazada (CR) | Caída fuerte, de entre el 80 y el 90 %, de la población en los últimos diez años o tres generaciones; fluctuaciones, disminución o fragmentación del rango; o población estimada siempre inferior a 250 individuos maduros. |
| Extinta en libertad (EW) | Especies de las que solo quedan ejemplares en cautividad o cultivados. |
| Extinta (EX) | Especies de las que no hay duda razonable de que murió el último ejemplar. |
Definiciones tal como las resume el libro del autor; el estado oficial del dorado es el que figura en la escala de esta ficha. La nomenclatura LR/lc y LR/nt corresponde a la antigua categoría de riesgo menor, que era la del plan de acción del año 2000 (Fuller y Garson, 2000; Hernández García, 2014).
CITES: el comercio internacional
El libro dedica otro apartado a la CITES, la Convención sobre el Comercio Internacional de Especies Amenazadas de Fauna y Flora Silvestres, un acuerdo entre gobiernos para que el comercio internacional de animales y plantas silvestres no amenace su supervivencia. Nació de una resolución adoptada en 1963 en una reunión de los miembros de la UICN; el texto se acordó en Washington D. C. el 3 de marzo de 1973 en una reunión de representantes de 80 países y entró en vigor el 1 de julio de 1975. El libro, que reproduce información de la propia CITES, cuenta 178 Partes, que se adhieren de forma voluntaria y deben aplicarla mediante su propia legislación nacional (Hernández García, 2014).
| Apéndice | Qué incluye | Documentos básicos para el comercio |
|---|---|---|
| I | Especies en peligro de extinción; su comercio solo se autoriza en circunstancias excepcionales. | Permiso de importación y permiso de exportación (o certificado de reexportación), expedidos por las autoridades administrativas de cada Estado. |
| II | Especies no necesariamente en peligro, cuyo comercio debe controlarse para evitar una utilización incompatible con su supervivencia. | Permiso de exportación o certificado de reexportación; no se exige permiso de importación salvo que lo disponga la legislación nacional. |
| III | Especies protegidas al menos en un país, que pide la ayuda de otras Partes para controlar su comercio. | Permiso de exportación del Estado que la incluyó o, desde otros Estados, certificado de origen. |
En todos los casos los animales vivos deben acondicionarse y transportarse de modo que se reduzca al mínimo el riesgo de heridas, deterioro de la salud o maltrato (Hernández García, 2014).
El libro no indica en qué apéndice, si es que figura en alguno, está el faisán dorado, por lo que esta ficha no se lo asigna. Sí recomienda que quien quiera importar o exportar ejemplares de una especie incluida en la CITES consulte a las autoridades administrativas nacionales de los países de origen y de destino, porque las legislaciones nacionales pueden ser más estrictas que la Convención (Hernández García, 2014). El comercio de aves vivas es precisamente una de las presiones que se atribuyen al dorado (véase el capítulo de amenazas) (BOW, 2020; Hernández García, 2014).
Amenazas y protección
Pérdida de bosque, captura y caza, y la erosión genética de las aves de pajarera.
La principal amenaza identificada es la pérdida del hábitat boscoso, aunque existe cierta explotación directa (Madge y McGowan, 2002).
Amenazas
| Amenaza | Detalle | Fuente |
|---|---|---|
| Pérdida y fragmentación del hábitat | Extracción de madera; hábitat nativo cada vez más fragmentado, con buena parte de las zonas adecuadas fuera de espacios protegidos. | del Hoyo; Madge; estudio de 2022 (estudio de 2022; Madge y McGowan, 2002) |
| Captura para el comercio de aves vivas | Tradicionalmente muy apreciada como ave de pajarera. | del Hoyo; BOW (BOW, 2020) |
| Caza para el consumo | Se la considera un manjar y es cara en los restaurantes cuando se encuentra; su fama en la cultura china puede jugar en su contra. | Madge y McGowan (Madge y McGowan, 2002) |
| Lazos y trampas | En el pasado, los cazadores chinos las capturaban con lazos que a menudo rompían o torcían las finas patas. | Beebe (Beebe, 1922) |
| Plumas | Demanda para sombrerería y para montar moscas de pesca. | Beebe; Howman (Beebe, 1922; Howman, 1996) |
| Hibridación y deterioro de las líneas cautivas | Cruces con el faisán de Lady Amherst y muchas generaciones de cría han deteriorado la calidad de las aves de pajarera. | Delacour; Madge (Delacour, 1977; Madge y McGowan, 2002) |
Beebe, que la conoció cuando era mucho más abundante, resumía así la situación: pese a ser capturada en todas partes por los chinos, la especie «se mantiene», y sin un incentivo económico nuevo, como una recompensa por su plumaje, seguirá existiendo en libertad durante muchos años; tres factores la protegen: el plumaje de la hembra, el nido muy escondido y el pequeño tamaño y extrema cautela de los pollos (Beebe, 1922).
Howman aporta un testimonio fechado y localizado de explotación alimentaria: en 1989 vio dorados a la venta, junto con tragopanes de Temminck, en un restaurante de animales vivos de Guilin, en China (Howman, 1993). Es un ejemplo histórico concreto, pero anecdótico: no demuestra el volumen del comercio, el origen silvestre de esas aves ni una tendencia de la población (Howman, 1993).
Protección
La literatura consultada no recoge programas de conservación específicos para la especie. Se sabe que vive en áreas protegidas, entre ellas la reserva del panda de Foping y la de Taibaishan (Madge y McGowan, 2002). Los autores señalan que haría falta mejor información sobre su distribución y su tamaño poblacional, y que hay estudios en curso (BOW, 2020; Madge y McGowan, 2002). Un estudio reciente advierte de que el hábitat natural está cada vez más fragmentado y de que buena parte de las zonas adecuadas queda fuera de espacios protegidos (estudio de 2022).
Frente a esa ausencia de programas de campo, el libro del autor documenta una iniciativa de conservación ex situ específica del dorado, el proyecto Dorados 5000 (EP5000), que busca mantener y difundir líneas puras en aviarios españoles, y señala que el reparto de programas de la EAZA no recomienda para la especie un plan ex situ formal (véase el capítulo de estado de conservación) (Hernández García, 2014).

Subespecies, mutaciones e híbridos
Ninguna subespecie natural; muchas variedades creadas por el hombre.
No existe ninguna subespecie reconocida de faisán dorado. No obstante, debido a su enorme popularidad en cautividad, existen numerosas variedades de color (mutaciones), que se documentan a continuación. Se trata de variantes surgidas y seleccionadas en cría, no de subespecies naturales.
La especie es monotípica para todos los autores consultados (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002). Gerrits y Delacour fueron tajantes al afirmar que fuera de las dos mutaciones bien establecidas, la de garganta oscura y la amarilla, las demás supuestas variedades eran híbridos con el faisán de Lady Amherst (Delacour, 1977; Gerrits, 1974); desde entonces han aparecido otras mutaciones, que se muestran más abajo.
La variedad de garganta oscura (obscurus)
Descrita en 1865 por Schlegel, tiene la cara, la garganta y la parte alta del pecho negro ahumado, sin rastro de verde metálico, que indicaría sangre de Lady Amherst; las rectrices centrales son barradas y no moteadas (Delacour, 1977; Gerrits, 1974). Beebe estudió el caso a fondo: los pollos con esta mutación aparecen de pronto en una puesta de padres y abuelos normales —a veces uno de doce, a veces cuatro de diez— y no hay forma de distinguir de antemano los huevos (Beebe, 1922). El plumón es muy distinto del normal: pardo oscuro, con la garganta y una media luna alrededor del cuello amarillo crema y una línea amarilla que rodea los ojos y cruza la frente, como unas gafas (Beebe, 1922). En el zoo de Ámsterdam se obtuvo la línea de cuello negro durante cuatro generaciones sin que reaparecieran rasgos intermedios con el dorado normal (Beebe, 1922). Delacour apunta que la mutación se reproduce fielmente desde que apareció (Delacour, 1977).
El debate sobre su origen es interesante. En 1911 Thomas obtuvo tres pollos de este tipo entre veinte en la F2 de un cruce entre hembras de Lady Amherst y un macho dorado, y al aparear a ese macho con dos hermanas salieron cuatro pollos oscuros de ocho, en proporciones compatibles con la herencia mendeliana; concluyó que podía tratarse de una mutación recesiva híbrida, quizá una reversión al antecesor común de ambas especies (Beebe, 1922). Beebe prefería interpretarla como una verdadera mutación inducida por las condiciones de cautiverio (Beebe, 1922).
El libro del autor la recoge como dorado de garganta negra o «carbonero» (Chrysolophus pictus obscurus, Schlegel, 1865): el macho es similar al dorado normal, pero más oscuro, y las hembras tienen un color tabaco oscuro; la describe como algo menor que la forma normal (Hernández García, 2014).


La variedad amarilla o «Ghigi» (luteus)
Gerrits cuenta su origen: años antes, de un huevo de dorado normal nació en Alemania un macho «inusual»; un aficionado alemán gestionó que lo adquiriera el profesor Ghigi, de la Universidad de Bolonia. Cruzado con una hembra normal solo produjo hijos normales, lo que demuestra que el factor es recesivo; los emparejamientos entre descendientes dieron, según el autor, un 50 % de la nueva mutación. A partir de esas aves Ghigi obtuvo el actual dorado amarillo, fruto íntegramente de una mutación y no de un cruce (Gerrits, 1974). Howman la considera la más conocida y la más llamativa (Howman, 1979; Howman, 1996).
Las variedades según el libro del autor
El segundo volumen de la obra de Hernández García no reconoce ninguna subespecie del dorado, pero enumera varias variedades según el tono del plumaje y les aplica nombres trinomiales de uso aficionado (Hernández García, 2014):
| Variedad | Nombre en el libro | Descripción |
|---|---|---|
| Garganta negra o carbonero | Chrysolophus pictus obscurus (Schlegel, 1865) | Macho similar al normal, pero más oscuro; hembras de color tabaco oscuro; ligeramente menor. |
| Ghigi o Isabela | Chrysolophus pictus luteus (A. Ghigi, 1957) | De color amarillo en su mayor parte; es una de las más conocidas. |
| Salmón | Chrysolophus pictus infuscatus (A. Ghigi, 1969) | En realidad es el cruce de las dos mutaciones anteriores, la Ghigi o Isabela y la carbonero. |
| Canela | Chrysolophus pictus ssp. (sin nombre formal) | Originada en América hacia 1971 y no estabilizada. El macho se distingue del normal por más verde en la espalda y más azul en las alas; las hembras y los pollos son de un canela rojizo. |
Híbridos
Los dos Chrysolophus se cruzan con facilidad y los híbridos de primera generación son plenamente fértiles; los cruces dan combinaciones infinitas, pero casi nunca igualan el esplendor de los progenitores (Gerrits, 1974; Johnsgard, 1986). Según Gerrits, los híbridos con Phasianus, Syrmaticus y Lophura producen machos fértiles y hembras estériles, que a menudo muestran plumaje masculino; con Lophophorus o con Gallus los híbridos son todos estériles (Gerrits, 1974). Johnsgard añade que los híbridos con el faisán cheer son estériles, que con el faisán plateado nacen hembras estériles pero machos fértiles, y que con los faisanes común, verde y de Reeves solo son fértiles algunos machos (según Rutgers y Norris 1970) (Johnsgard, 1986). Phillips (1921) comprobó que los híbridos de primera generación entre ambas especies son plenamente fértiles y que entre ellos hay menos segregación de caracteres del plumaje de lo que cabría esperar (Johnsgard, 1986).
| Cruce con el dorado | Resultado reportado |
|---|---|
| Faisán de Lady Amherst | Híbridos de ambos sexos fértiles; es un cruce conocido también en estado salvaje |
| Faisán plateado, faisán de Reeves (venerado), faisán común y faisán versicolor | Híbridos reportados; los machos son fértiles o lo son a veces |
| Faisán cobrizo y faisán cheer | Híbridos reportados como estériles |
| Gallo silvestre rojo | Híbridos reportados como estériles (cruce recíproco también reportado) |
| Faisán de Swinhoe | Hibridación reportada en cautividad |
Tabla de hibridación de Johnsgard (1999), traducida y adaptada por del Campo; el dorado y el Lady Amherst son, con diferencia, la pareja que mejor se cruza. Del Campo advierte de que no es una práctica recomendable y de que las «subespecies de fantasía» que han surgido de ella suelen ser infértiles (del Campo, 2006; Johnsgard, 1999).
El libro recuerda que las dos especies del género se cruzan y producen híbridos, y muestra una de las consecuencias de esa libertad de cruce: la «mutación en negro» del Lady Amherst, producto de una selección de cruces de Lady Amherst con dorados de garganta oscura (fotografía de Clifton L. Nicholson Jr.) (Hernández García, 2014). Se muestran a continuación dos fotografías de ejemplares de pajarera de aspecto intermedio, archivadas en el sitio como híbridos.


Variedades de pajarera
Las variedades actuales que se muestran a continuación se documentan con textos y fotografías de Giuliano Forni y de otros aficionados, y han sido seleccionadas únicamente en cautividad (Forni, GBP).

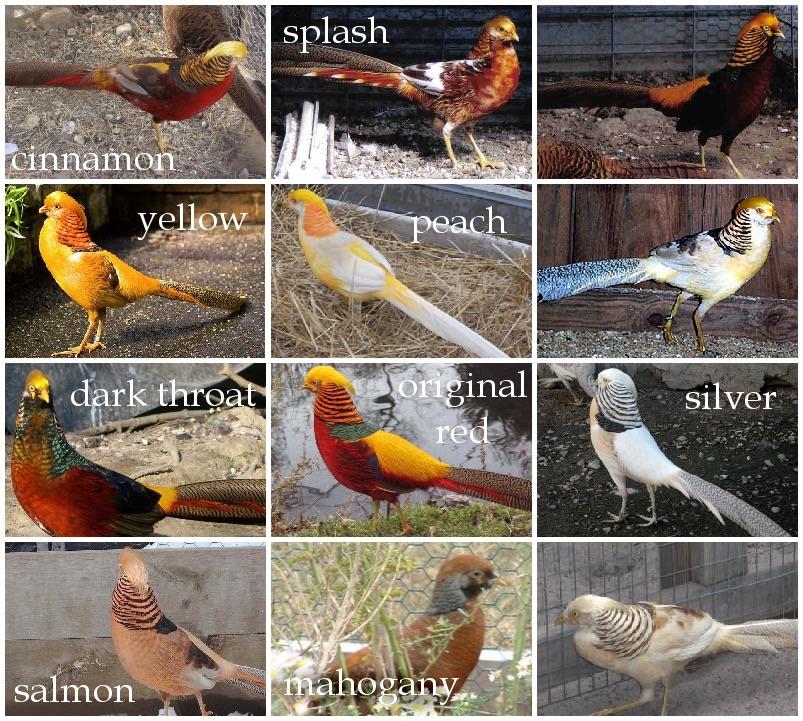


Cultura y curiosidades
Del ave fénix a los sellos de correos.
Desde las pinturas y la literatura de China hasta los sellos de correos, el faisán dorado ha sido durante siglos un motivo artístico de primer orden.
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.


¿Fue el ave fénix?
Se ha pensado que el relato de Plinio sobre el ave fénix (Historia natural, libro X) pudo basarse en el faisán dorado. Beebe, tras estudiar el asunto en la literatura y examinar cientos de representaciones de esa criatura en museos de tres continentes y en toda China y Japón, concluyó que se trataba de una criatura imaginaria, con rasgos de faisán o de pavo real pero obra de la mente humana (Beebe, 1922).
Un naturalista y una anécdota
Buffon, en su historia natural de las aves, cuenta la historia de una hembra inglesa que, en seis años, habría adoptado por completo el plumaje del macho (Beebe, 1922).
Una tradición popular, que recogen también algunos criaderos, atribuye a los antiguos griegos la identificación del dorado con el ave fénix, y a los romanos y a la antigua Grecia el gusto por los faisanes como ave de lujo (del Campo, 2006); Beebe, como se ha visto, no halló base para ello. Washington, por su parte, habría sido quizá el primer norteamericano en mantener y criar con éxito dorados en Mount Vernon (del Campo, 2006; Delacour, 1977).
Más información en otras fuentes
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Animalia.bio. Golden pheasant. animalia.bio/golden-pheasant
- Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
- Binocular Base. Golden Pheasant Diet and Size. binocularbase.com
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Estudio sobre la fragmentación del hábitat de Chrysolophus spp. (2022). PubMed Central, PMC9404440
- Forni, G. Global Bird Project (GBP.bio): textos y fotografías sobre las mutaciones del faisán dorado. gbp.bio/chrysolophuspictus-mutazioni
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- McGowan, P. J. K. y Kirwan, G. M. (2020). Golden Pheasant (Chrysolophus pictus), versión 1.0. En Birds of the World (J. del Hoyo et al., eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/golphe · doi:10.2173/bow.golphe.01
- Wikipedia (en inglés). Golden pheasant. en.wikipedia.org/wiki/Golden_pheasant
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán dorado — Chrysolophus pictus. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/dorado.php.


