Resumen
La especie de un vistazo.
El pavo del Congo (Afropavo congensis) es una especie africana de la familia Phasianidae, catalogada por la UICN como casi amenazada. Carece de subespecies.
Es el único faisán en sentido amplio nativo de África y el único miembro de su género; además, entre los pavos verdaderos (tribu Pavonini) es el único que vive fuera de Asia (Fuller y Garson, 2000; Wikipedia). El macho mide de 64 a 70 cm de longitud y la hembra de 60 a 63 cm; dos machos pesados midieron 1.361 y 1.475 g y dos hembras, 1.135 y 1.154 g (BOW; Madge y McGowan, 2002). No tiene la larga cola de coberteras con ocelos de los pavos asiáticos: su cola es de longitud moderada, plana y redondeada, y el macho se distingue por un mechón vertical de cerdas blancas en la coronilla, la piel roja del cuello y un plumaje negro con reflejos verdes, azules y violetas; la hembra es castaña, con el dorso de un verde metálico barrado de ante (Delacour, 1977; Madge y McGowan, 2002; Roles, 1976).
Vive solo en el centro y el este de la República Democrática del Congo (RDC), en la selva de tierras bajas hasta unos 1.200 m y en la selva algo más seca de las crestas y laderas de las tierras altas, y es tan esquivo que apenas se ha estudiado en libertad: una encuesta de 1993–1995 solo logró confirmarlo, en pequeñas cantidades, en 13 de 20 áreas de estudio (BOW; Fuller y Garson, 2000; Madge y McGowan, 2002). Es omnívoro (frutos de árboles del bosque, insectos acuáticos, hormigas y termitas), se cree monógamo y se delata sobre todo por sus dúos nocturnos, en los que el macho dice «gowe» y la hembra «gowah» (BOW; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Su descubrimiento para la ciencia es de los más tardíos de la ornitología: en 1913 James P. Chapin vio una pluma que no supo identificar y en 1936 la reconoció en dos aves montadas del museo de Tervuren, rotuladas como pavos reales jóvenes; Chapin describió la especie ese mismo año (Delacour, 1977; Howman, 1996). Los primeros ejemplares vivos llegaron a Nueva York en 1949 (Delacour, 1977) y el primer polluelo criado en Europa nació en 1960 en el zoo de Rotterdam (van Bemmel, 1961). El zoo de Amberes coordina el programa europeo de cría (EEP) y ha llevado el libro genealógico internacional de la especie (BOW; Hernández García, 2014).
En libertad, la población se estima por debajo de los 10.000 individuos y se supone en descenso por la caza con lazos y por la pérdida de bosque debida a la minería, la agricultura de subsistencia y la tala (BirdLife, 2022; Fuller y Garson, 2000; Madge y McGowan, 2002). Las valoraciones de las fuentes han cambiado con los años: vulnerable en el plan de acción de 2000 y en Madge y McGowan (2002), y casi amenazada (criterio C2a(i)) en la evaluación de BirdLife de 2022 (BirdLife, 2022; Fuller y Garson, 2000; Madge y McGowan, 2002).
- 64–70cmlongitud total del macho
- 26–28díasde incubación, solo la hembra
- 100–1.200mde altitud en la selva de tierras bajas
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoNTCasi amenazado
Ficha técnica
- Nombre científico
- Afropavo congensis Chapin, 1936 (Delacour, 1977; Hernández García, 2014; Johnsgard, 1986)
- Clasificación
- Orden Galliformes · familia Phasianidae · tribu Pavonini · género Afropavo Chapin, 1936 (monotípico) (Hernández García, 2014; Wikipedia)
- Subespecies
- Ninguna: especie monotípica (Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
- Nombres comunes
- ES pavo del Congo (en Chile, pavón del Congo) · EN Congo peafowl, Congo peacock · FR paon du Congo · DE Kongopfau · IT pavone del Congo · locales: ngowe (wabali), itundu (bakumu), mbulu (bakôngo) (del Campo, 2006; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Wikipedia)
- Longitud total
- ♂ 64–70 cm · ♀ 60–63 cm (BOW; Madge y McGowan, 2002); la tabla de la guía da 65–70 cm y 60–62 cm
- Peso
- ♂ 1.361 y 1.475 g · ♀ 1.135 y 1.154 g (dos ejemplares de cada sexo) (Johnsgard, 1986; Madge y McGowan, 2002); la tabla de la guía da 1,3–1,5 kg y 1–1,2 kg
- Hábitat
- Selva tropical primaria de tierras bajas, selva algo más seca de las crestas de las tierras altas y bosque secundario antiguo (BOW; Fuller y Garson, 2000)
- Altitud
- De 100 a 1.200 m (Johnsgard, 1986; Madge y McGowan, 2002)
- Distribución
- Endémico del centro y el este de la República Democrática del Congo (BOW; Fuller y Garson, 2000; Madge y McGowan, 2002)
- Puesta
- 2–3 huevos (1–4 en el libro del autor; hasta 6 según BOW y hasta 9 según Madge y McGowan); incubación de 26 a 28 días, solo la hembra (BOW; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; van Bemmel, 1961)
- Madurez
- Sexual a los 12–18 meses; plumaje adulto del macho en el segundo año (Delacour, 1977; Johnsgard, 1986)
- Estado de conservación
- Casi amenazado (NT) según la evaluación de BirdLife de 2022; vulnerable (VU) en el plan de acción de 2000 y en Madge y McGowan (2002) (BirdLife, 2022; Fuller y Garson, 2000; Madge y McGowan, 2002)
- Anilla
- 16–18 en la tabla de diámetros del libro del autor, que no expresa la unidad (Hernández García, 2014)
- Conservación ex situ
- Programa europeo de cría (EEP), con coordinación en el zoo de Amberes (BOW; Hernández García, 2014)
Sistemática y nomenclatura
Un género con una sola especie, descrito en 1936 y situado por todos los autores cerca de los pavos reales, aunque con dudas sobre su grado de parentesco.
El pavo del Congo es la única especie del género Afropavo, creado por Chapin en 1936 al describirla; es, además, el único «faisán» nativo del continente africano, pues el resto de la familia es asiático (Delacour, 1977; Fuller y Garson, 2000; Hernández García, 2014).
Posición taxonómica
| Rango | Taxón |
|---|---|
| Reino | Animalia |
| Filo | Chordata |
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Tribu | Pavonini (los pavos verdaderos) |
| Género | Afropavo Chapin, 1936 |
| Especie | Afropavo congensis Chapin, 1936 |
| Subespecies | Ninguna |
Clasificación según la ficha original de esta web y el libro del autor; la tribu Pavonini la recoge Wikipedia (Hernández García, 2014; Wikipedia). Las divisiones de la familia varían según el autor (véase más abajo) (del Campo, 2006; Johnsgard, 1986).
Origen del nombre
Johnsgard explica los dos términos del nombre científico: Afropavo es una palabra latina que significa «pavo africano» y congensis alude al río Congo, esto es, «del Congo» (Johnsgard, 1986). El nombre inglés, Congo peacock (hoy también Congo peafowl), lo propuso el propio Chapin porque las afinidades del ave apuntaban al género asiático Pavo, aunque su plumaje fuera mucho menos especializado (Delacour, 1977). En español se usa «pavo del Congo» en esta guía y en el libro del autor, y «pavón del Congo» en los documentos del criadero chileno Chintaguay (del Campo, 2006; Hernández García, 2014).
Jobling explica el género Afropavo como la unión del latín Afer, «africano», y pavo, «pavo real»: el «pavo real africano» (Jobling, 2010). Para el epíteto, el diccionario agrupa congensis, congica y congoensis en una sola entrada, con el significado «del Congo» o «del Congo Belga» (hoy Zaire o República Democrática del Congo) (Jobling, 2010). Es decir, las tres formas son variantes de un mismo tipo de nombre geográfico, que Jobling refiere al país y no al río.
Descripción original
La especie se describió en la Revue de Zoologie et de Botanique Africaines, vol. 29, n.º 1, con fecha del 20 de noviembre de 1936; el género aparece en la página 2 de esa misma publicación (Delacour, 1977; Wikipedia (fr)). Los ejemplares tipo eran las dos aves montadas del museo del Congo, en Tervuren (Bélgica), y Chapin supuso que procedían de las cercanías del curso alto del río Lukenie, en el distrito de Sankuru (Delacour, 1977).
Sinonimia
En las fuentes aquí revisadas no se recogen sinónimos científicos de la especie: el nombre Afropavo congensis se mantiene sin cambios desde 1936 (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Sí hubo, antes de su descubrimiento, una identificación errónea: los dos ejemplares montados del museo de Tervuren llegaron en 1914 rotulados como Pavo cristatus joven importado, es decir, como crías del pavo real común (Delacour, 1977).
Nombres comunes y vernáculos
| Lengua o pueblo | Nombre | Fuente |
|---|---|---|
| Español | Pavo del Congo (en Chile, pavón del Congo) | Hernández García, Chintaguay |
| Inglés | Congo peafowl; Congo peacock; también African peafowl | Fuller y Garson; Delacour; Wikipedia |
| Francés | Paon du Congo | Delacour; Johnsgard |
| Alemán | Kongopfau | Johnsgard; Hernández García |
| Italiano | Pavone del Congo | Hernández García |
| Wabali (Congo) | ngowe | Chapin, recogido por Delacour |
| Bakumu (Congo) | itundu | Chapin, recogido por Delacour |
| Bakôngo (Congo) | mbulu | Wikipedia (y recuadro de la ficha original) |
(del Campo, 2006; Delacour, 1977; Fuller y Garson, 2000; Hernández García, 2014; Johnsgard, 1986; Wikipedia)
El género y sus parientes
Es una especie de rasgos singulares: comparte con los pavos reales la cresta vertical, el plumaje iridiscente y los espolones en ambos sexos, pero casi nada más; aun así, los estudios coinciden en que sus orígenes están más cerca de los pavos que de cualquier otro grupo (Madge y McGowan, 2002). Madge y McGowan añaden que, junto con la perdiz de Udzungwa, parece un galliforme africano ancestral con vínculos con géneros que hoy son asiáticos (Madge y McGowan, 2002).
Delacour insiste en que no es un pavo real en sentido estricto: sus coberteras caudales superiores nunca son más largas que las timoneras y no tiene ocelos como los del género Pavo, aunque en las puntas de las coberteras más largas de algunos machos se distinguen manchas negras apagadas, un leve «esbozo» de los ocelos. Para él, salvo por la cresta de cerdas, el pavo del Congo equivale a una etapa temprana en la evolución de los pavos, cuando una conexión forestal unía la India con el África occidental (Delacour, 1977). Lowe, que estudió un ejemplar conservado en alcohol, halló una anatomía claramente de faisán y, en particular, de pavo real; la presencia de una apófisis ósea hacia atrás en el extremo del segundo metacarpiano excluye un parentesco próximo con las pintadas africanas (Delacour, 1977).
La propuesta de que se trataba de un nexo entre pavos y pintadas ha reaparecido con frecuencia. Johnsgard resume las posiciones sucesivas en la tabla siguiente (Johnsgard, 1986; Wikipedia (fr)):
| Autor y año | Posición propuesta |
|---|---|
| Chapin (1936–1938) | Afín a los pavos asiáticos; una forma primitiva del grupo (Delacour, 1977; Wikipedia (fr)) |
| Lowe (1938–1939) | Estudio anatómico (huesos, músculos y tractos de plumas): forma primitiva de pavo, sin parentesco próximo con las pintadas; el plumaje del macho es primitivo y conserva el «esbozo» de los ocelos (Delacour, 1977; Johnsgard, 1986) |
| von Boetticher (1939) | Subfamilia Pavoninae junto con Chalcurus, Polyplectron, Rheinartia, Argusianus y Pavo (Johnsgard, 1986) |
| Ghigi (1949) | Un francolín aberrante (Wikipedia (fr)) |
| Verheyen (1956) | Subfamilia propia, Afropavoninae (monotípica), posible nexo entre pavos y pintadas; Johnsgard considera dudosa una separación tan marcada de los demás faisanes (Johnsgard, 1986; Wikipedia (fr)) |
| Gysels y Rabaey (1962); Hulselmans (1962) | Forma relativamente aislada, con solo afinidades remotas con Pavo (Johnsgard, 1986) |
| Mainardi (1963) | Inmunología: tanto Pavo como Afropavo parecen próximos a un tronco primitivo de fasiánidos no muy distinto del de las pintadas actuales (Johnsgard, 1986) |
| de Boer y van Bocxstaele (1981) | Cariotipo: confirma la idea original de Chapin (Afropavo y Pavo más cercanos entre sí que a cualquier otro galliforme), aunque también sugiere una afinidad con las pintadas (Johnsgard, 1986) |
| Kimball, Braun y Ligon (1997) | ADN mitocondrial: parentesco estrecho con los pavos verdaderos; rechaza una subfamilia aparte; un estudio posterior con ADN nuclear llega a la misma conclusión (Wikipedia (fr)) |
Según Johnsgard (1986), que se inclina por considerar a Afropavo un pavo primitivo que nunca adquirió el ocelado elaborado del macho (Johnsgard, 1986); los estudios genéticos de 1997 los resume la Wikipedia francesa (Wikipedia (fr)).
Johnsgard completa el escenario biogeográfico siguiendo a Lowe: un antepasado parecido a Afropavo habría vivido en el sudoeste de Europa en el Mioceno y habría sido empujado hacia el sur, hasta África occidental, con los periodos fríos (Johnsgard, 1986). La Wikipedia recoge además que unos fósiles del Pleistoceno tardío del yacimiento de Plovers Lake (Gauteng, Sudáfrica), descritos por Stidham en 2008, sugieren que el área de la especie fue antes más amplia, o que hoy sobrevive como resto de una distribución mucho mayor (Wikipedia).
La clasificación de la familia también varía. Chintaguay, en su documento sobre variedades, sitúa Afropavo junto a Polyplectron, Rheinardia, Argusianus y Pavo en una subfamilia Argusianinae (del Campo, 2006); el primer volumen del libro del autor recoge el género Afropavo (Chapin, 1936) a continuación de Pavo y con una sola especie (Hernández García, 2013).
Cómo distinguir el género de Pavo
Entre los pavos de cola con coberteras iridiscentes y espolones, Johnsgard separa los dos géneros por el tamaño y por el número de plumas de la cola (Johnsgard, 1986):
| Rasgo | Pavo (pavos reales) | Afropavo (pavo del Congo) |
|---|---|---|
| Ala | Más de 400 mm | Menos de 350 mm (306–330 mm en el macho) |
| Timoneras | 20 | 14 según Delacour y la clave de Johnsgard; 18 según el texto de Johnsgard y según Madge y McGowan |
| Cola | Con larguísima cola de coberteras con ocelos en el macho | Sin cola larga ni ocelos; coberteras más cortas que las timoneras |
| Especies | 2 (el pavo real azul y el verde) | 1 |
La discrepancia sobre el número de timoneras se examina en el capítulo de morfología (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Historia
De una pluma en un sombrero a dos «pavos jóvenes» olvidados en un museo: el último faisán descubierto.
El pavo del Congo fue el último fasiánido en descubrirse (Roles, 1976). Delacour lo consideraba probablemente el hallazgo más interesante de la ornitología durante los veinte años anteriores a la redacción de su libro, porque hasta entonces los faisanes solo se conocían en Asia y la región malaya y nadie esperaba un pariente de los pavos reales en la región etiópica, donde solo había pintadas, perdices y codornices (Delacour, 1977).
Una pluma en un sombrero (1913)
La historia la contó el propio descubridor, James P. Chapin, en un trabajo de 1938 que Delacour reproduce en buena parte (Delacour, 1977). En 1913, en Avakubi, en el bosque de Ituri, Chapin vio en el sombrero de un hombre del lugar una pluma que no supo identificar: una secundaria de ala, rufa y con barras negruzcas regulares, cuya forma y textura recordaban a las de un ave gallinácea. La comparó con las de muchas aves de ese grupo y consultó a otros conocedores, sin resultado; la guardó y no la olvidó (Delacour, 1977). Howman resume el episodio diciendo que, de 1913 a 1936, la especie solo se conocía por esa pluma sin identificar (Howman, 1979; Howman, 1993; Howman, 1996).
Dos «pavos reales jóvenes» sobre un armario (1936)
En el verano de 1936, Chapin volvió al museo del Congo, en Tervuren (Bélgica), para seguir estudiando las aves africanas. Conocía las colecciones de estudio y la sala de exposición, pero un día entró en un pasillo del piso superior que nunca había visitado y vio, sobre un armario, dos aves grandes montadas: una negruzca y otra más rufa. Incluso de lejos le pareció que las remeras de la segunda tenían barras negras como la pluma que guardaba en Nueva York. Una secundaria de ese ejemplar, roída por las polillas en la base, se envió por correo a Frank M. Chapman, en el Museo Americano de Historia Natural, que la devolvió junto con la pluma antigua convencido de que ambas eran de la misma especie (Delacour, 1977).
Según el director del museo, el doctor Schouteden, las dos aves habían llegado en 1914 desde la Compañía del Kasai, rotuladas «Pavo cristatus, joven, importado»; formaban parte de una colección de unas sesenta aves que la empresa había tenido durante años en sus oficinas de Bruselas. Se ignora cuándo se cazaron, pero seguramente no mucho después de 1900. Como se las tomó por crías del pavo real común, nunca se expusieron y, por fortuna, tampoco se destruyeron (Delacour, 1977). El ave negruzca, con grandes espolones, era claramente un macho adulto, con una cresta erecta de plumas negras estrechas y, delante de ella, un curioso parche de cerdas blancas cortas; el ave rufa parecía una hembra adulta, con la espalda de un verde metálico brillante (Delacour, 1977).
La confirmación: mineros, médicos y misioneros
La especie estaba a punto de descubrirse por otra vía. El 12 de agosto de 1936, en un almuerzo en Bruselas, H. de Mathelin de Papigny le preguntó a Chapin por un ave sorprendente que había visto una sola vez, en 1930, en su mina de oro de Angumu, al este de Stanleyville: un cazador local la había matado y él y sus compañeros se la comieron; su descripción dejó claro que era un macho de la misma especie (Delacour, 1977; Wikipedia (fr)). Pocos meses después, con la autorización de Schouteden, Chapin describió la especie como Afropavo congensis (Delacour, 1977).
Llegaron entonces las confirmaciones. El doctor Pierre Dyleff, en Angumu, informó de que los nativos conocían bien el ave y de que no parecía rara; el reverendo T. H. Wilson, en Inkongo, cerca de Lusambo (distrito de Sankuru), creía haber reunido un ejemplar alguna vez; y R. Geldof había matado una hembra en 1930 a lo largo del ferrocarril, a 50 km al sur de Stanleyville, y la tenía disecada en casa de su hermana, en Bélgica, desde donde se llevó al museo de Tervuren. Wilson acabó consiguiendo un macho cerca de Inkongo y envió una fotografía de su cabeza: delante de la pequeña cresta de plumas negras se alzaba un mechón vertical de largas cerdas blancas, lo que permitió comprender que las del ejemplar tipo se habían roto o desgastado casi hasta la piel (Delacour, 1977). El éxito de Wilson confirmó la hipótesis de Chapin sobre el origen de los tipos, pero este nunca había sospechado que un ave de bosque llegara tan al sur como Inkongo (Delacour, 1977).
Chapin en el Ituri (1937)
Chapin viajó a Stanleyville en junio de 1937. Allí, el veterinario T. Els le mostró una pareja recién cazada en Ayena, entre Stanleyville y Angumu, y la conservó en formol-sal para estudios de anatomía; el doctor Dyleff había reunido en Angumu cuatro ejemplares, dos machos con buen mechón de cerdas y dos hembras sin rastro de ellas, y le entregó además la piel de un macho conseguido por V. Rafalovitch a unos 40 km al oeste-suroeste de Shabunda (Delacour, 1977). Los cazadores locales conocían el ave como ngowe (wabali) o itundu (bakumu) y coincidían en que vivía solo en el bosque primario, en parejas, y era muy difícil de encontrar (Delacour, 1977).
La búsqueda propia fue frustrante. Un cazador de aves cedido por un amigo de Chapin, procedente de Epulu, pasó cinco semanas en el bosque de Angumu sin cazar ningún «pavo», y el propio Chapin tampoco tuvo suerte hasta que, en Ayena, entre el 14 y el 23 de julio, vio correr un macho bajo la maleza, que se le escapó entre un batir ruidoso de alas, sin posarse. Con perros que levantaban a las aves y las obligaban a subirse a los árboles, el 18 de julio su cazador abatió un macho joven, sin espolones y con las cerdas de la coronilla aún muy cortas; tenía la piel desnuda del cuello escarlata, como en los ejemplares de Dyleff, y el buche lleno de drupas verdes de Celtis ituriensis, un árbol común del bosque (Delacour, 1977). La noche del 20 de julio oyó, a las 22:10 y de nuevo media hora después, el dúo «gowe-gowah» desde dos valles distintos (Delacour, 1977). Nadie con quien habló había encontrado un nido, y solo su cazador Anyasi había visto crías: una pareja con dos polluelos ya crecidos cruzando un arroyo (Delacour, 1977).
De vuelta de su viaje, Chapin obtuvo información de que en Banalia la especie era desconocida y no halló indicios de ella cerca de Avakubi, Irumu, Beni o Lutunguru, aunque supuso que su pluma de 1913 pudo traerse desde Makala u Opienge (Delacour, 1977). Una pluma suelta de cobertera caudal de hembra llegó después al museo, recogida en el bosque junto al ferrocarril, a 41 km al sur de Stanleyville (Delacour, 1977).
- Chapin ve en Avakubi (Ituri) una pluma que no logra identificar (Delacour, 1977).
- Llegan al museo de Tervuren dos aves montadas, rotuladas como pavos reales jóvenes importados (Delacour, 1977).
- Un macho se come en la mina de Angumu y una hembra se caza junto al ferrocarril, al sur de Stanleyville, sin que nadie sepa de qué ave se trata (Delacour, 1977).
- Chapin reconoce las dos aves en Tervuren (verano) y describe la especie, con fecha del 20 de noviembre (Delacour, 1977; Wikipedia (fr)).
- Chapin viaja a Angumu y Ayena, ve aves en libertad y oye su dúo nocturno (Delacour, 1977).
- T. Herrling, en Ikela, mantiene aves vivas y obtiene el primer polluelo nacido en cautividad, que muere a los cuatro días (las fuentes fechan la cría en 1938 o en 1940) (Delacour, 1977; Hernández García, 2014; van Bemmel, 1961).
- Charles Cordier lleva los primeros ejemplares vivos a Nueva York (Delacour, 1977).
- Llegan a Amberes las primeras aves vivas para Europa; en 1960 nace el primer polluelo criado en Europa, en Rotterdam (van Bemmel, 1961).
Los anatomistas y el nombre
Chapin propuso el nombre inglés Congo peacock porque las afinidades de la especie apuntaban al género Pavo, aunque su plumaje fuese mucho menos especializado (Delacour, 1977). En cambio, Lowe, del Museo Británico, estudió un ejemplar en alcohol y publicó sus resultados en las actas del congreso ornitológico de Rouen; su veredicto fue que las afinidades eran con los faisanes, y en especial con los pavos reales, y que el ave no está emparentada de cerca con las pintadas africanas (Delacour, 1977). Chapin y Delacour sostenían, además, que no era de esperar que se descubriesen otras especies del género ni variación geográfica dentro del área (Delacour, 1977).
Los primeros ejemplares vivos
Chapin recordaba, en un texto de 1942 que reproduce Delacour, que en el verano de 1939 este había pensado enviar a Charles Cordier al Congo a conseguir aves vivas, y que las normas de protección y el estallido de la guerra lo impidieron (Delacour, 1977). Fue la Sociedad Zoológica de Nueva York la que, en octubre de 1947, envió a Cordier a Stanleyville; en los meses siguientes consiguió varios ejemplares vivos atrapados por los nativos en las cercanías de Lubutu con lazos sujetos a un arbolillo y cubiertos de hojas secas, pero un accidente le impidió regresar en 1948 y esas aves no sobrevivieron (Delacour, 1977). El 15 de junio de 1949 desembarcó en Nueva York, en un avión especial, con una gran colección de mamíferos y aves que incluía seis machos y una hembra de pavo del Congo (Delacour, 1977).
Cordier, que enseñaba a los aldeanos láminas con el ave, relató que la reacción de unos hombres de una aldea de la carretera de Opala fue inmediata: murmullos y alguien que dijo «itundu», uno de los nombres locales; el rastro condujo a Yaolonga, unas 30 millas (unos 48 km) más al sur, donde, de camino, se cruzó con unos cazadores cuya carga de carne ahumada de antílope llevaba atadas las remeras de un macho caído en una trampa para antílopes (Delacour, 1977). Su impresión era que el ave es escasa y reservada y que su presencia en el bosque es irregular, con tramos de al menos cien millas sin ella aunque el bosque parezca idéntico, y que quizá requiere bosque semiseco, no inundado periódicamente, y favorece los lugares con ciertos frutos silvestres, aunque lo reconocía como conjetura (Delacour, 1977). En Yolombo, al suroeste de Stanleyville, sus cazadores acabaron reuniendo en cuatro semanas tres buenos machos y una hembra moribunda con tres polluelos de cinco días (Delacour, 1977).
Beebe y el pavo del Congo
La gran monografía de los faisanes de William Beebe (1918–1922) no trata esta especie, porque aún no se había descubierto. Johnsgard lo recuerda al comentar el estudio de la muda de las timoneras: Beebe describió el patrón de los pavos reales, pero Afropavo estaba aún por descubrir (Johnsgard, 1986). Las obras posteriores sí recogen la especie y la tratan como una rareza: Roles la considera la especie más exigente de mantener en cautividad, y Madge y McGowan, un ave tan esquiva que apenas la ven los ornitólogos (Madge y McGowan, 2002; Roles, 1976).
La ficha original, en breve
La página de esta web ya resumía su descubrimiento: la especie la describió James P. Chapin en 1936 a partir de ejemplares llegados al museo del Congo, en Bélgica, y el libro del autor atribuye el hallazgo a plumas de la cabeza de un indígena (Hernández García, 2014). Entre los datos que añade el recuadro de la ficha original sobre la historia está que el pueblo bakôngo ya conocía el ave con el nombre de mbulu y que fueron plumas de tocados ceremoniales congoleños las que pusieron a Chapin sobre la pista de una especie que las colecciones europeas habían confundido durante décadas con el pavo real asiático (Wikipedia). Las fuentes originales de Chapin recogidas por Delacour no mencionan ese nombre bakôngo; los cazadores de la región de Angumu la llamaban ngowe o itundu (Delacour, 1977).
Morfología y plumajes
Un macho negro de reflejos verdes, azules y violetas, con un mechón de cerdas blancas, y una hembra castaña de dorso verde: dos aves sin la cola de los pavos reales.
El pavo del Congo es un faisán de tamaño medio, de cabeza pequeña sobre un cuello delgado y algo redondeado y con una cola moderadamente larga, plana y redondeada, sin el tren ni los ocelos de los pavos asiáticos (BOW; Delacour, 1977; Madge y McGowan, 2002). Johnsgard destaca que el dimorfismo sexual es escaso para un faisán, y que ambos sexos son iridiscentes, con crestas y con grandes áreas de piel desnuda azulada o rojiza en la cara y el cuello (Johnsgard, 1986).
Macho adulto
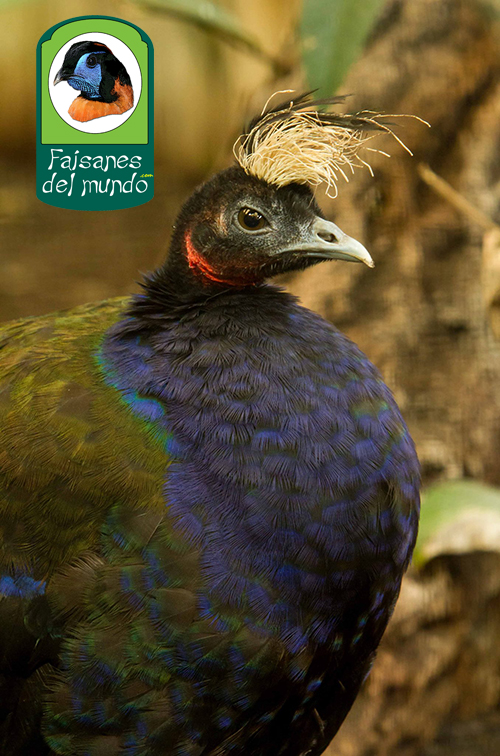
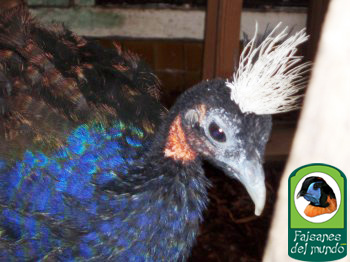
♂ El macho es de un azul profundo en el vientre, con verde metálico en la espalda. Tiene el cuello rojo y desnudo, la cola negra con dieciocho retrices y un adorno vertical blanco en forma de cresta. Las patas son grises y fuertes.
Delacour describe la cabeza cubierta de plumas negras aterciopeladas, con una estrecha cresta negra de unos 35 mm y, delante de ella, un mechón de cerdas blancas de unos 90 mm, a veces teñidas de ante por la suciedad. Las plumas de la parte alta de la espalda y del pecho son negras con anchos bordes azul violeta; el manto, el dorso y el obispillo, de un verde bronceado oscuro; algunas de las largas coberteras caudales superiores tienen un fleco azul violeta. Las coberteras menores del ala son verde oscuro con un ancho borde azul vivo y una banda verde brillante; el resto del ala es negro con brillo verde azulado y bordes estrechos verdes y azules en las terciarias. Las timoneras son negras con brillo verde azulado en la barba externa y un ancho fleco violeta azulado, deshilachado; el resto de las partes inferiores tiene la base de las plumas pardo negruzca, con borde azul en el pecho y verde en flancos y muslos, y el abdomen y las subcaudales son de un negro mate (Delacour, 1977).
Madge y McGowan coinciden en lo esencial: cabeza negra con el mechón de largas cerdas blancas en el centro de la coronilla, respaldado por otro algo más corto y grueso de plumas negras; garganta y parte superior del cuello delante escasamente emplumadas con plumón negro; cuello inferior y pecho negros con cada pluma ancha y terminada en azul o violeta iridiscente; el resto de las partes inferiores negro con anchos bordes verdes en flancos y muslos; las partes superiores verdes con reflejos de bronce, y las plumas de la parte alta son casi pilosas, con bordes que se deshilachan (Madge y McGowan, 2002). Roles añade una nota sobre la variabilidad individual: los machos difieren sobre todo en la forma de la cresta —el mechón blanco está muy reducido en algunos— y en la extensión y densidad de la iridiscencia (Roles, 1976).


La cabeza: cresta, cerdas y piel desnuda
Johnsgard resume las dos estructuras de la coronilla del macho: un mechón de cerdas blancas y unas plumas negras y blandas, a las que se suma una amplia zona de piel desnuda azulada o rojiza a los lados de la cara y en el cuello (Johnsgard, 1986). Las cerdas blancas pueden ser muy cortas en algunos ejemplares: las del macho tipo de Tervuren se habían roto o desgastado casi hasta la piel, y en el macho joven el mechón es muy corto al principio (Delacour, 1977). La cabeza es pequeña (Madge y McGowan, 2002) y, durante la exhibición, el macho infla ligeramente la piel desnuda de la garganta (Johnsgard, 1986; Roles, 1976).
| Parte | Macho | Hembra | Fuente |
|---|---|---|---|
| Iris | Pardo oscuro | Pardo | Delacour; Madge y McGowan; Roles |
| Piel desnuda de la cara | Gris azulada (Delacour); azul (Madge y McGowan); gris azulada (Roles) | Gris parduzca (Delacour); gris azulada apagada (Roles) | Delacour; Madge y McGowan; Roles |
| Piel desnuda del cuello | Rojo vivo (Delacour); rojo, más brillante en el macho (Madge y McGowan); naranja rosado (Roles); rosa (Johnsgard); escarlata en pieles frescas (Chapin) | Roja (Delacour); anaranjado rosada (Roles) | Delacour; Madge y McGowan; Roles |
| Pico | Gris azulado claro, con la cera parda (Delacour); azul grisáceo pálido (Madge y McGowan) | Gris apagado con matiz oliváceo (Delacour); gris oliváceo (Roles) | Delacour; Madge y McGowan; Roles |
| Patas | Gris azulado claro (Delacour); gris azulado pálido (Madge y McGowan); grises y fuertes (ficha original) | Grises, normalmente con espolones (Delacour; Roles) | Delacour; Madge y McGowan; Roles |
| Espolones | Blanquecinos, grandes y agudos; ausentes en el macho de primer año | Normalmente presentes (Delacour; Roles); pueden estar en ambos sexos (Madge y McGowan) | Delacour; Madge y McGowan; Roles |
La mayoría de los autores coincide en la piel roja del cuello; la tonalidad exacta cambia con el autor y con la técnica (piel fresca o ejemplar de museo) (Delacour, 1977; Madge y McGowan, 2002; Roles, 1976).
Cola, alas y timoneras
La cola es plana, redondeada y solo parcialmente cubierta por las coberteras superiores; el ala, redondeada (Johnsgard, 1986). En el macho, las coberteras caudales largas, iridiscentes, no sobrepasan la punta de la cola; en las más largas de algunos machos se perciben manchas negras apagadas que Delacour interpreta como un tenue «esbozo» de los ocelos de los verdaderos pavos (Delacour, 1977). En el cortejo el macho levanta y abre la cola en abanico, pero lo que abre son las timoneras, y no las coberteras como los pavos asiáticos (Johnsgard, 1986; Wikipedia).
Hembra
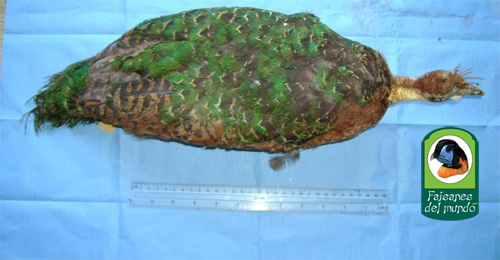
♀ La hembra es generalmente castaña, con el abdomen negro, la parte posterior de color verde metálico y la cresta castaña y muy corta.
Según Delacour y Madge y McGowan, la hembra no tiene el mechón de cerdas; la coronilla y la cresta son castaño rufo; las mejillas, la nuca y el cuello son castaño rufo y más emplumados que en el macho; el resto de las partes inferiores también es castaño, con barras y manchas pardas en los lados, flancos, pecho inferior, muslos y subcaudales, y el abdomen negro mate. El manto, la espalda, las escapulares, las coberteras y las terciarias parecen verde metálico claro, barrado de ante; las plumas son pardo negruzco con barras en U de ante y un ancho borde verde deshilachado. Las remeras son castaño rufo con grandes barras y manchas negras; las coberteras caudales largas son suaves, deshilachadas y negras con barras fulvas y una ancha punta verde; las timoneras son castaño rufo, con grandes barras y manchas negras y una ancha punta verde (Delacour, 1977; Madge y McGowan, 2002). Roles describe lo mismo, con el matiz de que algunas hembras llevan una pequeña cresta castaña con alguna pluma alargada de aspecto de cerda (Roles, 1976).

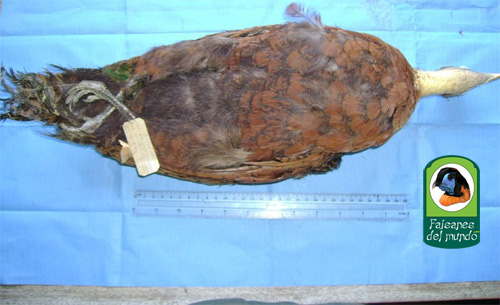
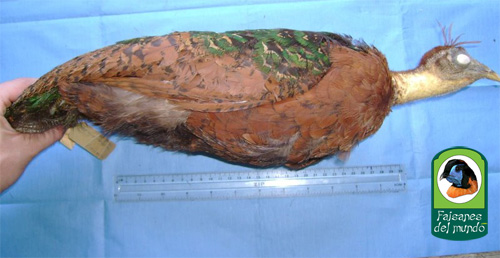
Macho de primer año
El macho joven es más apagado que el adulto: el dorso tiene un matiz pardo, el pecho, la parte alta de la espalda y las coberteras menores tienen bordes violeta azulados muy estrechos y el pecho inferior y los flancos son casi totalmente de un negro mate; las cerdas blancas de la cabeza son al principio muy cortas y no hay espolones. Delacour deduce que el plumaje completo se alcanza en el segundo año (Delacour, 1977), y Madge y McGowan y Johnsgard coinciden (Johnsgard, 1986; Madge y McGowan, 2002). La hembra joven es solo algo más apagada que la adulta (Delacour, 1977; Madge y McGowan, 2002).
Polluelo y juvenil
Según Delacour, el polluelo es muy peculiar y no se parece al de ninguna otra ave de caza por su color y su dibujo. La mitad de la coronilla, la nuca y el cuello son negros; los lados de la cabeza y del cuello, amarillo rojizo, con una pequeña línea negra en el borde del ojo, por delante y por encima, otra mancha negra detrás y pegada al ojo y otra en las coberteras auriculares; todas las partes inferiores y los lados, de la barbilla a las subcaudales y los muslos, son amarillo crema vivo, con matiz rojizo en el cuello y el pecho; el dorso es pardo negruzco oscuro y se aclara hacia el obispillo, y los lados del cuerpo carecen de rayas claras. Las alas son pardo canela, con las coberteras ya desarrolladas negras con borde canela y una ancha punta ante, y las primarias, secundarias y timoneras de un canela profundo con centro y barras negruzcos irregulares. El pico es oscuro por encima y ante carnoso por debajo, como las patas (Delacour, 1977).
En el juvenil, el primer plumaje es moteado de canela y negro; en la primera muda aparecen plumas verde bronceado en la parte alta de la espalda y en las coberteras del macho; la cabeza es gris negruzca en la coronilla y la nuca, con los lados y la garganta ante pardusco, y las últimas plumas moteadas en ser reemplazadas son las primarias y las secundarias (Delacour, 1977). Madge y McGowan precisan que el macho joven adquiere pronto algunas plumas verdes en el manto y las coberteras y puede sexarse ya a las siete semanas (Madge y McGowan, 2002); Johnsgard dice que los machos empiezan a adquirir su color hacia los tres meses (Johnsgard, 1986), y Roles que se pueden sexar con el primer plumaje, porque las diferencias son obvias (Roles, 1976). En el zoo de Rotterdam, una hembra criada en 1960 mostró las plumas de los hombros a los 14 días, un plumaje inmaduro moteado de canela, negro y grisáceo, con un leve brillo verde que apareció pronto, y a los seis meses lucía ya el plumaje adulto de la hembra, aunque aún sin los parches desnudos rojo cobrizo de los lados del cuello (van Bemmel, 1961).
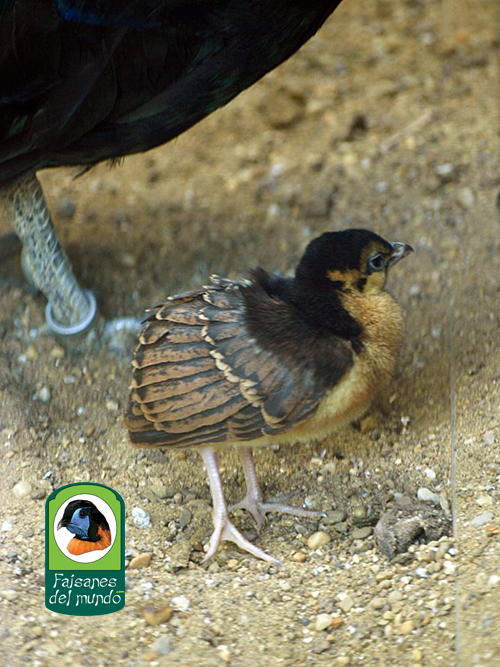
| Etapa | Macho | Hembra |
|---|---|---|
| Polluelo | Negro y pardo negruzco por encima, amarillo crema por debajo, alas canela (Delacour, 1977) | Sin diferencias descritas (Delacour, 1977) |
| Juvenil (primeras semanas y meses) | Moteado de canela y negro; a las 7 semanas ya muestra plumas verdes en manto y coberteras (Delacour, 1977; Madge y McGowan, 2002) | Moteado; a los 6 meses, plumaje parecido al adulto, sin los parches de piel desnuda del cuello (van Bemmel, 1961) |
| Primer año | Más apagado: dorso pardo, partes inferiores negro mate, bordes violeta estrechos, cerdas cortas y sin espolones (Delacour, 1977; Madge y McGowan, 2002) | Solo algo más apagada que la adulta (Delacour, 1977) |
| Adulto (segundo año) | Negro iridiscente, mechón de cerdas blancas de unos 90 mm y espolones grandes (Delacour, 1977; Madge y McGowan, 2002) | Castaña con dorso verde metálico barrado de ante; cresta corta y espolones normalmente presentes (Delacour, 1977; Roles, 1976) |
Etapas de desarrollo según Delacour, Madge y McGowan, Roles y van Bemmel.
Comparación de los sexos
| Rasgo | Macho | Hembra |
|---|---|---|
| Longitud total | 64–70 cm | 60–63 cm |
| Coronilla | Mechón de cerdas blancas de unos 90 mm y cresta negra de unos 35 mm | Sin cerdas; cresta castaña corta |
| Parte superior | Verde bronceado a verde metálico brillante | Verde metálico barrado de ante, sobre pardo negruzco |
| Partes inferiores | Negras, con bordes azul violeta en el pecho y verdes en flancos y muslos | Castaño rufo, con barras pardas en los lados y el abdomen negro mate |
| Cola | Negra, con brillo verde azulado y fleco violeta | Castaño rufo, con barras y manchas negras y punta verde |
| Espolones | Grandes, blanquecinos | Normalmente presentes |
| Peso conocido | 1.361 y 1.475 g (dos aves) | 1.135 y 1.154 g (dos aves) |
(Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976)
La muda
Las fuentes aquí revisadas describen la sucesión de plumajes del joven, pero no la muda de los adultos ni el orden en que se renuevan las plumas de la cola: Johnsgard recuerda que Beebe estudió la muda de las timoneras en los pavos reales y otros faisanes cuando Afropavo aún no se conocía, y no añade datos del pavo del Congo (Delacour, 1977; Johnsgard, 1986).
Medidas y peso
Un ave de tamaño medio, de 64 a 70 cm el macho y de 60 a 63 cm la hembra, con pesos conocidos de 1,3–1,5 kg en el macho y de 1–1,2 kg en la hembra.
Según la tabla de medidas, el macho del pavo del Congo mide entre 65 y 70 cm de longitud total, con alas de 30 a 36 cm, una cola de 22 a 27 cm, un tarso de 9 a 11 cm y un peso de entre 1,3 y 1,5 kg. La hembra, algo menor, mide de 60 a 62 cm, con alas de 27 a 29 cm, una cola de 16 a 20 cm, un tarso de 8 a 9 cm y un peso de entre 1 y 1,2 kg.
Birds of the World recoge para el macho una longitud total de 64 a 70 cm, con una cola de 20,6 a 26 cm, y para la hembra, de 60 a 63 cm, con una cola de 16,9 a 22,5 cm. Los pesos disponibles son escasos: dos machos pesaron 1.361 y 1.475 g, y dos hembras, 1.135 y 1.154 g, valores compatibles con los rangos de la tabla (1,3 a 1,5 kg en el macho y 1 a 1,2 kg en la hembra). La ficha no ofrece medidas de ala ni de tarso (BOW). En todas las fuentes aquí revisadas el macho pesa más que la hembra (BOW; Johnsgard, 1986; Madge y McGowan, 2002).
Medidas según distintas fuentes
Las cifras de los distintos autores se solapan en lo esencial. Johnsgard atribuye las medidas de ala y cola a Verheyen (1965) y los pesos a una comunicación personal de D. Rimlinger, y Madge y McGowan recogen unos rangos que parecen reunir los de Verheyen y los de Delacour (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
| Fuente | Longitud ♂ | Longitud ♀ | Peso ♂ | Peso ♀ |
|---|---|---|---|---|
| Tabla original de esta guía y libro del autor | 65–70 cm | 60–62 cm | 1,3–1,5 kg | 1–1,2 kg |
| Delacour (1977) | 640–700 mm | 600–630 mm | — | — |
| Madge y McGowan (2002) | 64–70 cm | 60–63 cm | 1.361 y 1.475 g (dos aves cautivas) | 1.135 y 1.154 g (dos aves cautivas) |
| Johnsgard (1986) | 23–28 pulgadas en campo (unos 58–71 cm), sin distinguir sexos | — | 1.361 y 1.475 g | 1.135 y 1.154 g |
| Birds of the World y Wikipedia | 64–70 cm | 60–63 cm | 1.361 y 1.475 g | 1.135 y 1.154 g |
(BOW; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia)
| Medida | Macho | Hembra | Fuente |
|---|---|---|---|
| Ala | 30–36 cm (tabla original); 310–330 mm (Delacour); 306–330 mm (Madge y McGowan); 306–315 mm (Verheyen, en Johnsgard) | 27–29 cm (tabla original); 270–290 mm (Delacour); 270–295 mm (Madge y McGowan; Johnsgard) | Tabla original; Delacour; Madge y McGowan; Johnsgard |
| Cola | 22–27 cm (tabla original); 230–260 mm (Delacour); 206–260 mm (Madge y McGowan); 206–240 mm (Verheyen, en Johnsgard); 20,6–26 cm (BOW) | 16–20 cm (tabla original); 195–225 mm (Delacour); 169–205 mm (Madge y McGowan; Johnsgard); 16,9–22,5 cm (BOW) | Tabla original; Delacour; Madge y McGowan; Johnsgard; BOW |
| Tarso | 9–11 cm (tabla original); 96–106 mm (Delacour; Madge y McGowan) | 8–9 cm (tabla original); 85–90 mm (Delacour; Madge y McGowan) | Tabla original; Delacour; Madge y McGowan |
| Culmen (pico) | 30–36 mm | 30–32 mm | Delacour |
| Cresta negra y cerdas blancas | Cresta de unos 35 mm; cerdas de unos 90 mm | — | Delacour |
(BOW; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
El huevo
Los autores dan tamaños y pesos de huevo próximos entre sí, pero con matices en la anchura y en el color (BOW; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002):
| Fuente | Dimensiones | Peso | Color |
|---|---|---|---|
| Ficha original de esta guía | 56–63 × 43–46 mm | 67–71 g | Crema oscuro |
| Delacour (según Becquet, 1942) | 58–60 × 45–49 mm | — | Rufo ante, sin manchas |
| Johnsgard (1986) | Media de 59 × 47 mm | Peso fresco estimado de 71,9 g | — |
| Madge y McGowan (2002) | — | — | Rufo ante, sin manchas |
| Birds of the World | — | — | Rufo beige o crema, sin manchas |
(BOW; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
La ficha original da una longitud más variable (56–63 mm) que la de Delacour (58–60 mm) y una anchura algo menor (43–46 mm frente a 45–49 mm); el peso de 67–71 g se acerca a la estima de 71,9 g de Johnsgard. Son diferencias de pocos milímetros, habituales en una especie de la que se han medido pocos huevos (Delacour, 1977; Johnsgard, 1986).
Distribución y hábitat
Endémico de la selva de la cuenca del Congo, en el centro y el este de la RDC: un área enorme, pero con presencia dispersa y muy difícil de comprobar.
Habita y es endémico del bosque de las tierras bajas de la República Democrática del Congo, en la cubeta congoleña (la cuenca del río Congo), a unos 1.200 m de altura
Se conoce poco sobre esta especie, que fue descrita como una especie en 1936 por el Dr. James Chapin a partir de dos especímenes llegados al Museo del Congo, en Bélgica.

Área de distribución
Madge y McGowan lo describen como endémico de la cuenca del río Congo, en el centro y el este de la RDC (antiguo Zaire). Su límite meridional sería el borde del bosque ecuatorial; al norte podría ser el río Aruwimi, en el este, y el Lopori, en el oeste; en el este llega hasta las altitudes medias de las montañas del Rift Albertino (Madge y McGowan, 2002). Delacour, siguiendo a Chapin, lo daba para los bosques vírgenes del centro-este de la cuenca: desde el este de Boende, en el río Tshuapa, por el oeste, hasta la base de la cadena montañosa al oeste de los lagos Eduardo y Kivu; por el norte alcanza el curso bajo del Aruwimi, entre Basoko y Banalia, y por el sur las cercanías de Lusambo, pues se había recogido en Inkongo (Delacour, 1977; Johnsgard, 1986).
La especie es tan difícil de detectar que su área real se conoce mal. Una campaña de campo de 1993–1995 la confirmó, en pequeñas cantidades, en 13 de 20 áreas de estudio de 50 × 50 km, y amplió el área conocida hacia el nordeste, en el bosque de Ituri; después se encontró también al norte del río Lomako y a lo largo del Yekokora (Dupain y Van Krunkelsven, 1996) y, más al sur, entre el Lukenie y el Sankuru (Thompson, 1996); el bosque entre el Lomami y el Congo podría albergar concentraciones importantes, pero la información de esa zona es escasa (BOW; Fuller y Garson, 2000). El plan de acción de 2000 añadía que las partes occidentales del área seguían sin explorar en tiempos recientes (Fuller y Garson, 2000).
| Fuente | Límites del área |
|---|---|
| Delacour (según Chapin) | Bosques vírgenes del centro-este de la cuenca: del este de Boende (río Tshuapa) a la base de las montañas al oeste de los lagos Eduardo y Kivu; al norte, Aruwimi bajo (Basoko–Banalia); al sur, Lusambo (Inkongo) |
| Johnsgard (1986) | Igual que Delacour; limitado a bosques vírgenes entre 1.200 y 5.000 pies, y 100–1.200 m en su apartado de ecología; mapa con las localidades conocidas y el límite del bosque ecuatorial |
| Madge y McGowan (2002) | Cuenca del Congo, centro y este de la RDC; límite sur en el borde del bosque ecuatorial; al norte, quizá el Aruwimi (este) y el Lopori (oeste); en el este llega al nivel medio de las montañas del Rift Albertino |
| Plan de acción de la UICN y la WPA (2000) | Este de la RDC; extensión al nordeste (Ituri), al norte del Lomako, entre Lukenie y Sankuru; región entre Lomami y Congo, poco conocida; oeste sin explorar |
| Hart y Upoki (1997) | Encuestas de 1993–1995 en unos 125.000 km² entre el Lomami (oeste), el Rift Albertino (este), el Aruwimi (norte) y el parque Kahuzi-Biega (sur) |
| BirdLife (2022) | Extensión de presencia de unos 788.000 km² |
| Animal Diversity Web | Entre 20 y 28° E y entre 2° N y 5° S |
(Animal Diversity Web; BirdLife, 2022; Delacour, 1977; Fuller y Garson, 2000; Hart y Upoki, 1997; Johnsgard, 1986; Madge y McGowan, 2002)
La Wikipedia lo define como endémico de las selvas de tierras bajas del centro del Congo, en la RDC, donde es el ave nacional (Wikipedia). En esa misma obra se recoge el hallazgo de fósiles del Pleistoceno tardío en Sudáfrica, que podrían indicar una distribución antigua mucho más amplia (Wikipedia).
Altitud y desplazamientos
| Fuente | Altitud |
|---|---|
| Ficha original de esta guía y libro del autor | A unos 1.200 m de altura |
| Delacour | 1.200–5.000 pies (unos 370–1.520 m) |
| Johnsgard (1986) | 100–1.200 m (ecología); 1.200–5.000 pies (distribución) |
| Madge y McGowan (2002) | Selva de tierras bajas hasta 1.200 m; en el este llega a altitudes medias del Rift Albertino |
| Birds of the World | Por debajo de 1.200 m, además de la selva algo más seca de las crestas de las tierras altas |
| Animal Diversity Web | 100–1.200 m |
(Animal Diversity Web; BOW; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
No hay datos sobre sus movimientos. Madge y McGowan señalan que se ha dicho que es bastante nómada, pero que se desconoce el origen de esa afirmación; Birds of the World dice que a veces se sospecha que es nómada (BOW; Madge y McGowan, 2002). Johnsgard apunta, por su parte, que no se sabe nada de sus migraciones en libertad (Johnsgard, 1986).
El hábitat
Birds of the World describe una especie de selva tropical primaria de tierras bajas por debajo de los 1.200 m y de la selva algo más seca de las crestas de las tierras altas, que usa también el bosque secundario antiguo al menos para alimentarse (BOW). El plan de acción de 2000 añade que se encuentra en muchos tipos de bosque, pero con frecuencia en laderas entre cuencas, de suelos poco profundos que sostienen bosque seco con sotobosque abierto, y que su distribución escasa e irregular puede corresponder, en parte, con la poca disponibilidad de ese tipo de hábitat (Fuller y Garson, 2000). La Wikipedia coincide en que en el parque nacional de Maiko, en los años noventa, se registró sobre todo en colinas bajas y crestas entre cuencas (Wikipedia).
Cordier, que capturó aves para el zoo de Nueva York, ya había conjeturado en 1949 que el ave necesita bosque semiseco, no inundado de forma periódica, y evita las zonas bajas, y que tiende a aparecer donde hay ciertos frutos silvestres favoritos y a faltar donde no los hay, aunque advertía de que era una suposición (Delacour, 1977; Johnsgard, 1986). Los cazadores de la región de Angumu coincidían en que vivía solo en el bosque primario, en parejas y muy difícil de encontrar (Delacour, 1977).
Presencia por zonas y áreas protegidas
| Zona | Datos | Fuente |
|---|---|---|
| Parque nacional de Maiko | Se considera el principal reducto de la especie; población importante, con potencial de conservación a largo plazo; la mejor opción para asegurarla en el este de la RDC | Madge y McGowan; plan de acción de 2000; Hart y Upoki |
| Reserva de Fauna de Okapi (bosque de Ituri) | Presente; en el plan de acción de 2000 se propone vigilar periódicamente sus poblaciones; las encuestas de 1993–1995 ampliaron el área conocida hacia el nordeste, en el bosque de Ituri | Plan de acción de 2000; Madge y McGowan |
| Parque nacional de Kahuzi-Biega | Conocido por la población local en el parque y en su extensión | Madge y McGowan; plan de acción de 2000 |
| Parque nacional de Salonga | Unos 3,6 millones de hectáreas, en medio del área de la especie; en 2004–2005 se registró un individuo por cada 9,03 km recorridos, una densidad baja; estudios de ecología (2010) y de cámaras trampa (2016–2018) en el bloque sur | Johnsgard; BOW; Mulotwa et al.; Bessone et al. |
| Norte del Lomako y río Yekokora | Localidades nuevas en el norte del área (provincia de Équateur) | Plan de acción de 2000 (Dupain y Van Krunkelsven, 1996) |
| Entre los ríos Lukenie y Sankuru | Localidades nuevas en el sur del área | Plan de acción de 2000 (Thompson, 1996) |
| Entre los ríos Lomami y Congo | Quizá albergue concentraciones importantes, pero con poca información | Plan de acción de 2000 (Hart y Upoki, 1997) |
(Bessone et al., 2020; BOW; Fuller y Garson, 2000; Hart y Upoki, 1997; Johnsgard, 1986; Madge y McGowan, 2002; Mulotwa et al., 2010)
El recuadro de la ficha original (basado en Wikipedia) añade que una parte relevante de la especie se concentra en el parque nacional de Salonga, donde mantendría poblaciones relativamente estables. Las fuentes anteriores lo ven de otro modo: en 1986 Johnsgard solo señalaba que Salonga está en medio del área y que eso da cierta protección, y el plan de acción de 2000 proponía explorarlo para valorar su posible papel en la conservación de la especie (Fuller y Garson, 2000; Johnsgard, 1986). Los estudios posteriores con cámaras trampa sí la han detectado en el bloque sur del parque; el resumen publicado no ofrece una densidad concreta, pero un artículo divulgativo asegura que solo el sur de Salonga albergaría tantos pavos del Congo como se creía que había en todo el país (Bessone et al., 2020; The Conversation, 2020).
Dónde se vio por primera vez
| Localidad | Registro | Fuente |
|---|---|---|
| Avakubi (Ituri) | Pluma sin identificar en un sombrero (1913) | Delacour (Chapin) |
| Angumu (este de Stanleyville) | Macho consumido por mineros en 1930; cuatro ejemplares reunidos por el doctor Dyleff (1937) | Delacour (Chapin) |
| Ayena (entre Stanleyville y Angumu) | Pareja cazada en 1937; macho joven abatido por Anyasi el 18 de julio de 1937 | Delacour (Chapin) |
| Ferrocarril al sur de Stanleyville | Hembra cazada por Geldof en 1930 a 50 km; pluma recogida a 41 km | Delacour (Chapin) |
| Inkongo (cerca de Lusambo, Sankuru) | Macho obtenido por el reverendo Wilson | Delacour (Chapin) |
| Unos 40 km al oeste-suroeste de Shabunda | Piel de macho de V. Rafalovitch | Delacour (Chapin) |
| Lubutu | Aves atrapadas con lazos por los nativos (1947–1948), que no sobrevivieron | Delacour (Cordier) |
| Yaolonga y Yolombo (suroeste de Stanleyville) | Pluma en carga de caza (Yaolonga); aves vivas, entre ellas una hembra con tres polluelos (Yolombo) | Delacour (Cordier) |
| Ikela (alto Tshuapa) | Aves vivas mantenidas por T. Herrling desde 1938 | Delacour (Chapin) |
Más información en otras fuentes
Birds of the World · Wikipedia
Sonidos y llamadas de la especie
Comportamiento y voz
Un ave de pareja, tímida y casi invisible en la selva, que se delata por sus dúos nocturnos.
Debido a la escasez y la inaccesibilidad de su hábitat, este tímido y reservado pavo ha sido poco estudiado en el medio silvestre. Se cree que los individuos viven en parejas y en pequeños grupos familiares que defienden un territorio compartido.
Casi todo lo que se sabe de su conducta viene de unas pocas observaciones de campo —las de Chapin en 1937 y las de los encuestadores de los años noventa— y, sobre todo, de las aves cautivas de zoos como los de Nueva York, Rotterdam, Amberes y Jersey (Delacour, 1977; Hart y Upoki, 1997; Roles, 1976; van Bemmel, 1961).
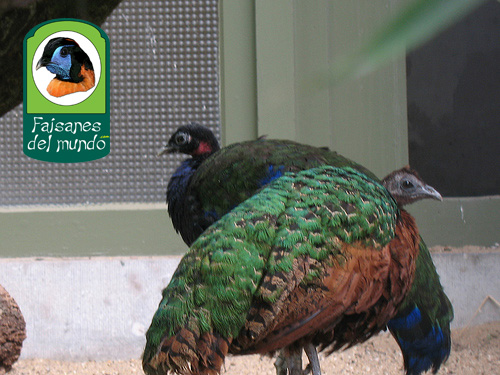
Vida social: parejas y grupos familiares
Madge y McGowan resumen que se suele encontrar en parejas o en pequeños grupos familiares, y que se delata más por la voz que por la vista (Madge y McGowan, 2002). Delacour, que recogía la experiencia de los cazadores locales y de Cordier, concluía que parece monógama porque se la encuentra siempre en parejas (Delacour, 1977). Johnsgard lo considera un ave no social, más propensa a vivir en pareja que en harenes o grandes agrupaciones (Johnsgard, 1986). El grado de territorialidad, si existe, es desconocido (Johnsgard, 1986).
A veces comparte espacio con otras aves de la selva. Madge y McGowan señalan que a veces se asocia con la pintada negra cuando ambas se alimentan bajo árboles en fruto (Madge y McGowan, 2002), y Birds of the World recoge que se ha visto, al parecer, junto a un grupo de francolines de Latham (Francolinus lathami) (BOW).
Un ave esquiva
Madge y McGowan la describen como muy recelosa y rara vez vista, por lo que el conocimiento de sus hábitos es muy fragmentario (Madge y McGowan, 2002). Las referencias de Chapin dan una imagen de ave que huye corriendo bajo la maleza y que, si se la levanta con perros, se sube a los árboles: el batir de sus alas es pesado y ruidoso y permite seguirla de oído, y una pareja que se había oído cantar de noche en Ayena se localizó al amanecer, posada aún a buena altura en los árboles (Delacour, 1977). Chapin pensó en capturarla con trampas, pero un cazador de aves experimentado pasó cinco semanas sin cazar ninguna (Delacour, 1977).
Johnsgard recuerda que no hay estimas de la densidad de población, que por todas las referencias debe de ser muy baja (Johnsgard, 1986). Las pocas cifras proceden de recuentos: en el parque nacional de Salonga, durante 2004 y 2005, se registró un individuo por cada 9,03 km recorridos, lo que indica una densidad baja (BOW).
Comportamiento en cautividad
En el zoo de Nueva York, Delacour describe a los pavos del Congo como tranquilos y de buen carácter, aunque algunos machos no pueden convivir con otros e incluso pueden intentar matar a las hembras; los adultos suelen estar callados, con algún murmullo bajo, mientras que los inmaduros trinan casi sin parar, y pasan mucho tiempo acicalándose de un modo nervioso, como los pavos reales (Delacour, 1977). Roles los encuentra comparativamente mansos y estables en cautividad, aunque adoptan fácilmente una postura de amenaza: muy erguidos, con la cabeza alta y la cola alzada y abierta; en la amenaza extrema, con crías, bajan el pecho casi hasta el suelo y mantienen alas y cola casi verticales, y a menudo atacan (Roles, 1976). Cuando están inquietos, mantienen la cabeza alta y cloquean; si se alarman, corren a cubierto con la cabeza baja y la cola alta (Roles, 1976). Johnsgard cita un comportamiento parecido: ante una alarma estiran el cuello y emiten una nota de cloqueo (Johnsgard, 1986). En Rotterdam, en 1960, las aves se ocultaban en la cobertura de coníferas durante el día, pasaban horas posadas en ramas bajas dentro de ella y de noche dormían en los tocones de sauce; eran muy lentas, incluso perezosas, y casi no les molestaban los grupos de visitantes (van Bemmel, 1961).
La voz
El pavo del Congo es, sobre todo, una voz del bosque nocturno. La llamada más típica es un dúo: según el relato de Chapin, empieza con un sonoro «rro-ho-ho-o-a» y continúa con un «gowe» del macho y un «gowah» más grave de la hembra, repetidos muchas veces; la segunda sílaba de «gowe» es más aguda que la de «gowah», y la irregularidad de los intervalos le hizo pensar que dos aves de la pareja se respondían (Delacour, 1977; Johnsgard, 1986). Esas notas pueden repetirse de 20 a 30 veces, a veces con breves interrupciones (Delacour, 1977; Madge y McGowan, 2002). El recuadro de la ficha original, basado en Wikipedia, resume el reclamo agudo del macho como «gowe», la respuesta grave de la hembra como «gowah» y un contacto gutural «kuw-kuw» cuando la pareja se desplaza por la espesura (Wikipedia).
| Llamada | Descripción | Fuente |
|---|---|---|
| Dúo principal | «Rro-ho-ho-o-a» creciente y después «gowe» (macho) y «gowah» (hembra), de 20 a 30 repeticiones | Chapin, en Delacour; Johnsgard; Madge y McGowan |
| Segundo dúo | El macho dice «ko-ko-wa» y la hembra responde más aguda: «hi-ho-hi-ho» (Madge y McGowan) o «hej-hoh, hej-hoh» (Cordier, en Johnsgard) | Madge y McGowan; Johnsgard |
| Interpretación local | «Wai-wai-ekalu-eko-pawola», según un nativo | Verheyen (1965), en Johnsgard |
| Cloqueo y contacto | Cloqueo corto y gutural como el de los pavos reales; muchos sonidos bajos al comer, exhibir o caminar, parecidos a los del pavo real indio | Delacour; Johnsgard |
| Alarma | Cloqueo con el cuello estirado | Johnsgard (Jeggo, 1972); Roles |
| Ronquido | Un sonido como de ronquido que emiten los machos cuando se los molesta cerca del nido | Madge y McGowan |
| Inmaduros | Trinos casi continuos (aves cautivas) | Delacour |
| Machos cautivos | Llamada de gorgoteo y ululato, a primera hora de la mañana, con el pico abierto y la cabeza echada hacia la parte baja de la espalda; otros machos se unen y se alternan | Roles; Johnsgard |
(Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976; Wikipedia)
En cuanto al momento del canto, Chapin oyó el dúo a las 22:10 y de nuevo media hora más tarde (Delacour, 1977), y Birds of the World dice que los dúos son más frecuentes entre las 19:00 y las 22:00 h y que se oyen unas tres noches por semana (BOW). Madge y McGowan precisan que el canto suele oírse durante toda la noche, sobre todo con luna llena, y que no se da más de unas tres noches por semana (Madge y McGowan, 2002).
Defensa y agresión
Ambos sexos muestran agresión con una postura parecida a la del pavoneo, con más o menos descenso y apertura de las alas; la hembra, al defender el nido o a las crías, puede bajar tanto las alas que las muñecas casi tocan el suelo (Jeggo, 1972) (Johnsgard, 1986). David Rimlinger, en una comunicación personal citada por Johnsgard, considera que el cortejo y la amenaza son muy parecidos, y que el macho solo abre las alas ante la hembra o ante una persona en el momento más intenso (Johnsgard, 1986). De los depredadores no se sabe nada seguro (Johnsgard, 1986); en las fuentes aquí revisadas, la única amenaza documentada en libertad es la humana (véase el capítulo de amenazas).
Alimentación
Un omnívoro de sotobosque: frutos del suelo, insectos acuáticos, hormigas y termitas.
La dieta consiste principalmente en semillas, frutas (su favorita es la del árbol Bokwa) e invertebrados (termitas, hormigas, coleópteros y otros).
En libertad
Se cree que es omnívoro. Entre los elementos identificados figuran las drupas de Celtis ituriensis y C. adolfi-friedericii (Cannabaceae), árboles frondosos comunes, así como insectos acuáticos (por ejemplo, Orectopyrus spp.), hormigas (por ejemplo, Tallothryeus tarsatus) y termitas, que obtiene picoteando en el suelo o rascando en la hojarasca. La presencia de larvas de termitas en los contenidos intestinales sugiere que las aves pueden cavar en los montículos de termitas.
Según informan las poblaciones locales, la especie visita los árboles frutales Musanga cecropioides (Urticaceae) y Margaritaria discoidea (Phyllanthaceae). Entre otras semillas y frutos citados en la dieta figuran Sapium ellipticum (Euphorbiaceae), Ficus spp. (Moraceae), Strombosia grandifolia (Olacaceae), Xymalos monospora (Monimiaceae) y Caesalpinia decapetala (Fabaceae). Por lo general se ve sola o en pequeños grupos familiares de hasta seis aves.
Las observaciones de la dieta son pocas. Chapin comprobó, en 1937, que el buche de un macho joven abatido en Ayena estaba lleno de drupas verdes de Celtis ituriensis, que el ave había recogido del suelo (Delacour, 1977). Johnsgard añade que en buches y mollejas se han encontrado además insectos acuáticos y termitas, y que las larvas de termita sugieren que excava los termiteros como muchos faisanes tropicales (Verheyen, 1965) (Johnsgard, 1986). Madge y McGowan citan el fruto de Celtis adolfi-fridericii y, al parecer, el de otros árboles en fruto, y suponen que los invertebrados se obtienen picoteando el suelo y quizá escarbando en la hojarasca (Madge y McGowan, 2002). El plan de acción de 2000 resume que no parece tener una dieta especializada y que se han registrado frutos de especies arbóreas comunes de toda la región, además de insectos acuáticos y termitas (Fuller y Garson, 2000). Birds of the World coincide con lo anterior, y añade que visita los frutales Musanga cecropioides y Margaritaria discoidea según la población local (BOW).
| Alimento | Ejemplos | Fuente |
|---|---|---|
| Drupas de árboles frondosos | Celtis ituriensis y C. adolfi-friedericii (Cannabaceae) | Chapin, en Delacour; Johnsgard; Madge y McGowan; BOW |
| Frutos de árboles que visita, según la población local | Musanga cecropioides (Urticaceae) y Margaritaria discoidea (Phyllanthaceae) | Ficha original; BOW |
| Otras semillas y frutos | Sapium ellipticum, Ficus spp., Strombosia grandifolia, Xymalos monospora, Caesalpinia decapetala; el fruto del árbol Bokwa, su favorito | Ficha original; libro del autor |
| Frutos del parque de Salonga | Frutos de Allanblackia floribunda, Canarium schweinfurthii, Klainedoxa gabonensis y Xylopia aethiopica, y de la palma de aceite, entre otros | Wikipedia |
| Insectos acuáticos | Orectopyrus spp. | Ficha original; Johnsgard; plan de acción de 2000 |
| Hormigas y termitas | Hormigas (Tallothryeus tarsatus), termitas y sus larvas, quizá excavando los termiteros | Ficha original; Johnsgard; plan de acción de 2000 |
| Otros invertebrados | Escarabajos y otros coleópteros, arañas, moluscos y gusanos | Ficha original; Wikipedia |
(BOW; Delacour, 1977; Fuller y Garson, 2000; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia)
La Wikipedia añade que en Salonga la dieta es taxonómicamente más estrecha en el bosque secundario que en el primario (Wikipedia). Cordier, que atrapó a las primeras aves vivas, creía que el ave aparece donde se dan ciertos frutos silvestres favoritos y falta donde no los hay, y lo daba como una conjetura (Delacour, 1977).
En cautividad
Los primeros pavos del Congo que Cordier atrapó se alimentaron al principio de termitas molidas y pronto aprendieron a comer una mezcla de huevo y arroz, carne cocida, fruta y grano; Delacour dice que comen con facilidad grano, fruta y comida blanda, como el argus y otros faisanes de bosque (Delacour, 1977). Howman remite, para su alimentación, a la de los faisanes pavo (Polyplectron) (Howman, 1979; Howman, 1993; Howman, 1996). En Rotterdam, en 1960, recibían una mezcla de granos, fruta, un pienso universal, pupas de hormiga y gusanos de la harina (van Bemmel, 1961). Roles describe una dieta a base de un alimento insectívoro con vitaminas y huevos de hormiga, y siempre a disposición una mezcla de grano y pienso de cinco partes de trigo, dos de semillas de alpiste mezcladas, dos de pienso para faisanes y una de maíz; verdura (berro, lechuga o zanahoria muy picada) dos veces al día y un animal vivo (grillos o gusanos de la harina) una vez al día (Roles, 1976). Se trata de experiencias de mediados del siglo XX, no de una pauta actual.
Cortejo y exhibición
Dos posturas del macho, una frontal y otra lateral, y un ofrecimiento de comida que los pavos reales han perdido.
El apareamiento y el comportamiento reproductor son elaborados; aunque aún no se han observado en la naturaleza, se ha aprendido mucho de las observaciones en cautividad. Lo más notable del apareamiento es la hermosa exhibición de cortejo del macho, que muestra su cola y las plumas de las alas mientras ofrece alimento a la hembra.
Las dos posturas del macho
La descripción más completa es la de Jeggo (1972), que Johnsgard resume: el macho tiene dos posturas principales de cortejo, una frontal y otra lateral (Johnsgard, 1986). En la frontal levanta la cabeza, emite una nota baja y larga, infla ligeramente la piel desnuda de la garganta y luego se inclina mientras lanza una serie de notas más cortas y rápidas; la cola se alza y se abre en abanico, y las alas se dejan caer y se inclinan un poco hacia fuera, de modo que desde delante se ven las primarias. La postura recuerda algo a la frontal del pavo real indio, sin el tren. Puede adoptarse sobre una percha o en el suelo, de frente a la hembra, y esta responde a veces con una exhibición de amenaza: cabeza alta, cola alzada y abierta y alas caídas, avanzando con pavoneo hacia el macho (Johnsgard, 1986).
En la lateral, el macho empieza con la misma llamada, pero con la cabeza baja y extendida hacia delante, en línea con el dorso, y la cola abierta hacia el lado más cercano a la hembra; el ala de ese lado se abre y se baja y la otra se mantiene plegada y arqueada, de modo que el ave parece inclinada hacia un lado, y mientras tanto rodea a la hembra (Johnsgard, 1986). También hay «tidbitting»: el macho sostiene un bocado en el pico, con la cabeza baja, y llama a la hembra para que lo tome; ambos sexos hacen lo mismo con las crías (Johnsgard, 1986). Johnsgard destaca que esta conducta y la exhibición lateral se han perdido en Pavo, lo que sugiere que los pavos reales son el grupo más especializado, tanto en comportamiento como en estructura (Johnsgard, 1986).
| Autor | Descripción de la exhibición |
|---|---|
| Delacour (zoo de Nueva York) | El macho hincha el cuello, abre a medias la cola, las alas y la cresta de cerdas, que adelanta, y emite gruñidos; vuelve su plumaje hacia la hembra o hacia otro macho, como hacen los demás faisanes en una exhibición lateral. El conjunto recuerda mucho a los pavos reales (Delacour, 1977) |
| Roles (1976) | Empieza con un «canto» ronco; el macho rodea a la hembra en exhibición lateral, con la cola abierta y vuelta hacia ella, el ala más próxima caída y el hombro opuesto alzado. En la frontal da una nota larga, infla un poco la bolsa de la garganta, cabecea mientras emite notas cortas y rápidas, con la cola alzada y abierta y las alas medio abiertas, con el dorso inclinado hacia la hembra. Puede pasar directamente a la frontal, a veces desde una percha, y también exhibe tras llamar a la hembra para ofrecerle un bocado. La hembra a veces responde con una postura parecida (Roles, 1976) |
| van Bemmel (Rotterdam, 1960) | Macho y hembra inclinaban la cabeza, el cuello, el dorso y la cola abierta, a 45° con la horizontal, algo muy parecido a la exhibición de los faisanes pavo (Polyplectron); no se vio la cópula, pero la hembra se presentaba aplastada contra el suelo (van Bemmel, 1961) |
| Rimlinger, en Johnsgard | Cortejo y amenaza son casi iguales; el macho solo abre las alas, mostrando un semicírculo de color iridiscente, ante la hembra o una persona en el momento de mayor intensidad (Johnsgard, 1986) |
(Delacour, 1977; Johnsgard, 1986; Roles, 1976; van Bemmel, 1961)
La Wikipedia añade un detalle sobre la cola: los machos abren las timoneras, mientras que los demás pavos abren las coberteras superiores (Wikipedia). Las fuentes revisadas no recogen observaciones de cortejo en libertad (Johnsgard, 1986).
Sistema de apareamiento
Las fuentes coinciden en que es monógamo, aunque con distintos grados de certeza. Johnsgard indica que, a diferencia de los demás pavos reales, el macho forma al parecer un vínculo monógamo con una hembra y permanece con ella durante todo el periodo reproductor (Ridley, 1984); David Rimlinger opinaba que el vínculo es más fuerte que en cualquier otro faisán, con la excepción de los orejudos, y que el escaso dimorfismo sexual en el peso y el plumaje avala esa conclusión (Johnsgard, 1986). En su cuadro comparativo, Johnsgard lo coloca entre los faisanes monógamos de bosque, con dimorfismo de color escaso, aunque en otro apartado reconoce que la duración del vínculo en la especie sigue siendo incierta (Johnsgard, 1986).
| Fuente | Sistema de apareamiento |
|---|---|
| Delacour | Probablemente monógamo: siempre se le encuentra en pareja |
| Roles (1976) | Monógamo |
| Johnsgard (1986) | Monógamo; vínculo muy fuerte según Rimlinger; duración incierta |
| Madge y McGowan (2002) | Se cree monógamo, pero faltan datos de la naturaleza |
| Birds of the World | Se cree monógamo |
| Ficha original de esta guía | Se cree monógamo; el macho permanece cerca del nido durante la incubación |
| Chintaguay | Monógamo, forma parejas por largo tiempo |
(BOW; del Campo, 2006; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976)
En cautividad, según Van den Bergh (1975, citado por Johnsgard), un macho puede alojarse con más de una hembra, pero parece interesarse solo por una de ellas, mientras que la otra es perseguida por la hembra elegida (Johnsgard, 1986).
Reproducción en la naturaleza
Casi nada se sabe de su cría en libertad: un nido que nadie describía y una puesta pequeña que se conoce, sobre todo, por las aves cautivas.
Hay poca información sobre la reproducción en la naturaleza, aunque se ha observado que puede producirse en cualquier momento, dependiendo de las condiciones locales de lluvia; a 300 km al sur del ecuador se han encontrado aves jóvenes en los meses de enero-febrero. Se cree que es monógamo y el macho aparentemente permanece cerca del nido durante el período de incubación.
Delacour recoge, citando a Chapin y a Cordier, que ningún blanco sabía con seguridad dónde construye el nido el pavo del Congo ni cuál es la extensión total de su área (Delacour, 1977). Los datos posteriores solo han avanzado un poco: el plan de acción de 2000 resume que la época de cría puede depender de las lluvias locales (Fuller y Garson, 2000), y Birds of the World habla de pocos datos fiables en libertad (BOW).
Calendario
Datos puntuales, no una estación reproductora: en libertad la cría parece depender de las lluvias locales y puede darse en cualquier época (Fuller y Garson, 2000; Birds of the World).
El nido
Ninguna de las fuentes aquí revisadas describe con detalle un nido silvestre. Madge y McGowan lo suponen entre las raíces tabulares de los grandes árboles o cerca de árboles caídos (Madge y McGowan, 2002); Birds of the World dice que se sospecha que anida entre raíces tabulares y que se halló un nido bajo un árbol caído (BOW); y el resumen de la encuesta de Hart y Upoki (1993–1995) menciona un nido con dos huevos (Hart y Upoki, 1997). Cordier, en 1949, especulaba con tres posibilidades: entre las raíces tabulares de algún gran árbol, en un tocón roto a unos dos o tres metros del suelo (de siete a diez pies), o muy alto en un árbol (Delacour, 1977).
| Fuente | Dónde pone o anida | Observaciones |
|---|---|---|
| Herrling (Ikela) | En el suelo, en un rincón oscuro del aviario | Tres huevos de un pardo rufo claro; un pollo eclosionó a los 26 días (Delacour, 1977) |
| Rotterdam (1960) | En un tocón de sauce, a unos 3 pies (0,9 m) del suelo; los primeros huevos cayeron y se rompieron | Se improvisó un nido con una cesta plana y la hembra lo usó; el autor cree que anidar en árboles es lo normal (van Bemmel, 1961) |
| Planckendael (1960) | En el suelo | Huevos fértiles; el único que quedaba tras ocho días de incubación artificial se confió a una gallina bantam (van Bemmel, 1961) |
| Roles (1976) | La puesta se suele depositar a cierta altura; se usan cestas de mimbre | En el zoo de Jersey, cestas de unas 16 pulgadas (41 cm) de diámetro y 12 (30 cm) de fondo, llenas casi hasta el borde de turba y serrín húmedos y esterilizados, a unos 3 pies (0,9 m) del suelo (Roles, 1976) |
| Johnsgard (1986) | Probablemente en árboles, en una plataforma ligeramente cóncava en una rama grande, preferiblemente a menos de 1,5 m; también ha puesto en el suelo | No construye un nido propiamente dicho (Johnsgard, 1986) |
| Madge y McGowan (2002) | En libertad, entre raíces tabulares o junto a árboles caídos; en cautividad, en una plataforma cóncava de hasta 3 m del suelo | No hace un nido típico (Madge y McGowan, 2002) |
| Ficha original de esta guía | En cautividad, en árboles, a unos 1,5 m del suelo, en una plataforma cóncava | No construye un nido (Hernández García, 2014) |
| Libro del autor (2014) | Un hueco en el suelo | Puesta de uno a cuatro huevos oscuros; el macho permanece cerca (Hernández García, 2014) |
(BOW; Delacour, 1977; Hart y Upoki, 1997; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976; van Bemmel, 1961)
La puesta y los huevos
En cautividad suele nidificar en árboles, a unos 1,5 m del suelo, y pone los huevos en una plataforma cóncava en lugar de construir un nido. La puesta es normalmente de 2-3 huevos de color crema oscuro (56-63 mm × 43-46 mm; 67-71 g), puestos a intervalos de 1-3 días. La incubación dura de 25 a 28 días, corre a cargo únicamente de la hembra y comienza cuando se ha puesto el segundo o el tercer huevo.
La cifra de la puesta es pequeña y coincide, con matices, en todas las fuentes. Delacour, que cita a Becquet (1942) para el huevo, habla de pequeñas puestas de probablemente tres a cuatro huevos, rufo ante y sin manchas, de 58–60 × 45–49 mm (Delacour, 1977); Madge y McGowan hablan de 2 a 3 huevos, aunque se han citado hasta 9 (Madge y McGowan, 2002); Birds of the World, de 2 o 3, rufo beige o crema, a veces hasta 6 (BOW); Johnsgard, de dos o tres, y en al menos dos ocasiones de cuatro (Verheyen, 1965), con huevos que parecen ponerse cada tres días (Johnsgard, 1986). En el zoo de Amberes, entre 1964 y 1973 se pusieron 554 huevos en 179 puestas, lo que da una media de 3,09 huevos por puesta y 2,2 puestas por pareja y año (Lovel, 1976); algunas hembras llegaron a poner de cinco a seis puestas en un solo año (Van den Bergh, 1975) (Johnsgard, 1986).
| Fuente | Huevos | Incubación (días) | Observaciones |
|---|---|---|---|
| Delacour (1977) | 3–4 (probablemente) | 26 | Datos de Herrling, un solo pollo (Delacour, 1977) |
| Howman (1979, 1993, 1996) | 3–4 | 26 | Ficha de «notas avícolas» (Howman, 1979; Howman, 1993; Howman, 1996) |
| Roles (1976) | 2–5 | 26–28 | Puesta casi siempre en alto (Roles, 1976) |
| Johnsgard (1986) | 2–3 (a veces 4) | 27–28 en Rotterdam; 25–27 en otros zoos; 26–28 en su cuadro de cautividad | Media de 3,09 huevos por puesta en Amberes (Johnsgard, 1986) |
| Madge y McGowan (2002) | 2–3 (hasta 9) | 27–28 | Huevos sin manchas (Madge y McGowan, 2002) |
| Birds of the World | 2–3 (hasta 6) | 25–28 | Solo la hembra incuba (BOW) |
| Ficha original de esta guía | 2–3 | 25–28 | Intervalos de 1–3 días (Hernández García, 2014) |
| van Bemmel (1961) | 2–3 (normal) | 27–28 («más probable que 26») | Un pollo eclosionado el 23 de agosto de 1960 (van Bemmel, 1961) |
| Libro del autor (2014) | 1–4 | 27–28 (unos 28 en el capítulo de la especie) | Ficha técnica de incubación (Hernández García, 2014) |
| Chintaguay | 2–3 | 26–28 | Tabla de postura (del Campo, 2006) |
Las cifras de puesta e incubación de las distintas fuentes son aproximadas y compatibles entre sí (BOW; del Campo, 2006; Delacour, 1977; Hernández García, 2014; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976; van Bemmel, 1961).
La incubación: solo la hembra
Las fuentes coinciden en que incuba únicamente la hembra (BOW; Delacour, 1977; Johnsgard, 1986; Roles, 1976). Johnsgard describe que permanece totalmente inmóvil sobre la puesta, con la cabeza echada sobre el dorso, de modo que pasa muy inadvertida; el macho puede pasar largos ratos sentado junto al nido, pero nunca intenta incubar, y la hembra solo sale un rato para comer y beber (Johnsgard, 1986; Roles, 1976). En Rotterdam, la hembra pasaba casi todo el día pegada al nido, inmóvil y con los ojos cerrados, hasta el punto de que un cuidador llegó a creer que había muerto; solo bajaba al anochecer a comer y beber, y el macho se quedaba cerca durante todo el periodo (van Bemmel, 1961). Madge y McGowan señalan que, cuando se molesta a un macho cerca del nido, emite un sonido parecido a un ronquido (Madge y McGowan, 2002).
Polluelos y crianza
Los polluelos son negros y negro-marrón, con la parte inferior de color amarillo cremoso brillante y las alas pardas; inicialmente descansan en el árbol con la hembra. En cautividad el éxito reproductivo es bajo, ya que solo el 22 % de los huevos eclosiona.
Hay muy pocos datos sobre sus costumbres, aunque se ha observado a machos acompañar a los polluelos e incluso alimentarlos. Los polluelos son independientes al cabo de un mes.
La observación de Rotterdam confirmó el papel del padre: cuando uno de los dos polluelos cayó del nido, el macho, que estaba sentado cerca, lo recogió con voz aguda y lo llevó a cubierto bajo las coníferas, donde el pollo desapareció bajo las plumas de su pecho; al día siguiente bajó también el otro, y ambos padres los cuidaron, los cubrieron con sus plumas, les pusieron comida delante o dejaron que la picaran de sus picos (van Bemmel, 1961). Si se acercaba un extraño, el macho se exhibía con fiereza y llegaba a atacar. A los tres días las crías ya subían a ramas a un pie del suelo, y en una semana volaban hasta los tocones de sauce y pasaban la noche allí, mayormente cubiertas por la hembra (van Bemmel, 1961). Herrling vio algo parecido en el Congo: el pollo, de pelaje ante pardo, pasaba la noche bajo el ala del macho antes de morir a los cuatro días (Delacour, 1977).
Según Johnsgard, las crías permanecen en el nido con su madre hasta dos días y luego se dejan caer al suelo; ambos sexos las empollan y las llaman para que tomen bocados de sus picos; durante la primera semana comen casi solo insectos y otros alimentos animales; la primera noche fuera del nido puede cobijarlas el macho en el suelo, mientras la hembra duerme en el nido, y después van bajo las alas de la madre en una percha baja; pronto llegan a perchas a 2 m o más, medio volando y medio corriendo, a los seis días vuelan hasta 5 m y a un mes se posan junto a la madre, pero ya no debajo de sus alas (Verheyen, 1965) (Johnsgard, 1986). Birds of the World coincide en lo esencial: los pollos se posan primero en un árbol con la hembra, después bajan al suelo, donde los cría el macho, y son independientes al cabo de un mes (BOW). Roles añade que las crías pueden subir a dormir a las perchas a la semana de edad, y que en Jersey un macho se mostró algo agresivo con su pollo y lo picó con fuerza en la cera, haciéndole sangrar (Roles, 1976). Cordier, en el Congo, recibió una hembra moribunda con tres polluelos de cinco días (Delacour, 1977).
Madurez
La madurez sexual se alcanza a los 12 meses en la hembra y a los 18 meses en el macho.
| Fuente | Madurez sexual | Plumaje adulto |
|---|---|---|
| Ficha original; Johnsgard | Hembra a los 12 meses; macho a los 18 | Segundo año (Johnsgard, 1986) |
| Johnsgard (cuadro de cautividad) | 1–2 años | — |
| Chintaguay (tabla de postura) | 1–2 años | — |
| Libro del autor (ficha técnica) | 2 años | — |
| Delacour; Madge y McGowan; Roles; Howman (1979, 1993, 1996) | — | Segundo año (Delacour, 1977; Howman, 1979; Howman, 1993; Howman, 1996; Madge y McGowan, 2002; Roles, 1976) |
(del Campo, 2006; Delacour, 1977; Hernández García, 2014; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976)
Cría en cautividad
La especie más exigente de los faisanes en cautividad: salas caldeadas, mucha cobertura, higiene y un programa europeo de cría.
El primer éxito de cría se obtuvo en 1940, a cargo de Herrling, en el Congo Belga; en Europa no llegó hasta 1960. En la actualidad, el zoo de Amberes coordina el proyecto de cría y ha distribuido pavos del Congo por otros zoos, lo que está causando numerosos problemas de consanguinidad entre las poblaciones en cautividad.
Roles lo califica de la especie más exigente de todas las que se mantienen en cautividad: delicada y sensible a muchas infecciones, por lo que solo se encuentra en los mayores parques zoológicos y en instituciones especializadas (Roles, 1976). Howman, en las tres ediciones consultadas, advertía de que había pocas probabilidades de que el aficionado medio lograra algún ejemplar, y que el principal núcleo cautivo estaba en el zoo de Amberes (Howman, 1979; Howman, 1993; Howman, 1996); se trata de afirmaciones de su época y no describen la situación actual.
Cómo se formó la población cautiva
| Año | Hecho | Fuente |
|---|---|---|
| 1938 | T. Herrling, agente territorial en Ikela (alto Tshuapa), consigue aves vivas y un trío cría: de tres huevos eclosiona uno a los 26 días; el polluelo, cuidado por el macho, muere a los cuatro días (fecha según van Bemmel; la ficha original dice 1940) | Delacour; van Bemmel |
| 1949 (15 de junio) | Cordier desembarca en Nueva York con seis machos y una hembra; la hembra muere a los ocho meses, de modo que se pierde la posibilidad de criar en América | Delacour |
| 1957 | Los primeros pavos del Congo vivos llegan a Europa, de nuevo conseguidos por Cordier, para la Real Sociedad Zoológica de Amberes | van Bemmel |
| 1959 | Llegan a Amberes tres parejas; para repartir el riesgo, una pareja se envía a Clères (el parque de Delacour) y otra a Rotterdam, adonde llega el 8 de octubre | van Bemmel |
| 1960 | Llegan tres machos y cuatro hembras más, que se reparten entre Amberes y su otro parque, Planckendael; un macho en Copenhague, otro en Fráncfort y algunos machos sueltos en Estados Unidos completaban todo lo que había fuera del Congo; en agosto nacen en Rotterdam los primeros polluelos criados en Europa | van Bemmel |
| 1964–1973 | En el zoo de Amberes se ponen 554 huevos en 179 puestas | Johnsgard (Lovel, 1976) |
| 1976 | Lovel resume el estado de la especie en cautividad; Roles cita colonias en Amberes y en Jersey | Johnsgard; Roles |
| 1982 | Censo de la World Pheasant Association: 67 aves en cautividad | Johnsgard |
| Diciembre de 1991 | Libro genealógico internacional de Amberes: 64 machos, 30 hembras y tres crías sin sexar | BOW |
| 1998 | Libro genealógico internacional: 118 aves | Fuller y Garson |
| Libro de 2014 | Programa europeo de cría (EEP), con coordinación en el zoo de Amberes | Hernández García |
(BOW; Delacour, 1977; Fuller y Garson, 2000; Hernández García, 2014; Johnsgard, 1986; Roles, 1976; van Bemmel, 1961)
Instalaciones y clima
Howman recomienda un aviario mínimo de 200 pies cuadrados, es decir, 18,6 m² en las ediciones de 1979 y 1996 y 18,5 m² en la de 1993, y subraya que el éxito parece depender de disponer de alojamiento interior espacioso, caldeado y con control de humedad (Howman, 1979; Howman, 1993; Howman, 1996). Roles describe aves mantenidas en salas cerradas caldeadas a 20–27 °C, con suelo de cemento cubierto de arena y grava de conchas de ostra, y una atmósfera muy seca para frenar la multiplicación de bacterias, a costa de que el plumaje se reseque y las aves parezcan desecadas; la cría puede inducirse todo el año si se mantiene al menos una temperatura de 75 °F (unos 24 °C), y en invierno se baja para dar descanso a las aves (Roles, 1976). El zoo de Rotterdam, en cambio, instaló en 1959 a su pareja en un gran aviario de la casa tropical, a 22–24 °C y con una humedad muy alta, plantado con ficus y, en parte, con coníferas que ofrecían una cobertura espesa; las aves se escondían en ella durante el día y solo salían a comer (van Bemmel, 1961).
| Fuente | Instalación y ambiente |
|---|---|
| Howman (1979, 1993, 1996) | Aviario mínimo de 200 pies cuadrados (18,6 m²; 18,5 m² en 1993) con alojamiento interior espacioso, caldeado y con control de humedad |
| Roles (1976) | Salas cerradas a 20–27 °C, suelo de cemento con arena y conchas de ostra, ambiente muy seco; perchas; cría anual si se mantiene un mínimo de 75 °F |
| van Bemmel (1961) | Aviario en la casa tropical del zoo de Rotterdam, a 22–24 °C y con humedad muy alta; ficus, coníferas como cobertura y tocones de sauce para dormir |
(Howman, 1979; Howman, 1993; Howman, 1996; Roles, 1976; van Bemmel, 1961)
Nidos y cobertura
En Rotterdam la hembra puso sus primeros huevos en un tocón de sauce, a unos 3 pies del suelo; los huevos cayeron y se rompieron porque el tronco no ofrecía apoyo. Por eso se fijó una cesta plana en el tocón como base del nido, y la hembra la usó (van Bemmel, 1961). En Jersey, las hembras usaban cestas de mimbre fijadas a unos 3 pies del suelo y rellenas de turba húmeda y serrín esterilizados (Roles, 1976). Tanto van Bemmel como Roles insisten en la cobertura densa: el primero, que había leído que las aves prefieren el sotobosque espeso y plantó parte del aviario con coníferas, considera que fue lo más acertado, porque las aves se refugiaron en ellas enseguida (Roles, 1976; van Bemmel, 1961).
Incubación artificial y crianza
En las fuentes revisadas, los pollos se criaron sobre todo con sus padres, tanto en el Congo (Herrling) como en Rotterdam, y Roles describe a ambos progenitores cubriendo y alimentando a las crías (Delacour, 1977; Roles, 1976; van Bemmel, 1961). En Planckendael, donde se obtuvieron huevos fértiles en 1960, el único que quedaba tras ocho días de incubación artificial se confió a una gallina bantam; el embrión se desarrolló con normalidad, pero se perdió pocos días antes de eclosionar sin que se supiera por qué (van Bemmel, 1961). En mayo de 1961, en Rotterdam, dos huevos fértiles de una hembra que dejó el nido se pasaron a una incubadora, y uno eclosionó, aunque el pollo murió a los ocho días por una estenosis intestinal (van Bemmel, 1961). Roles anota que, al nacer los pollos, se les daba pienso para pollitos y raciones adicionales de alimento vivo (Roles, 1976).
El libro del autor incluye al pavo del Congo en su ficha técnica de incubación; se reproducen aquí las filas de los pavos, que son sus parientes más próximos (Hernández García, 2014):
| Especie | Huevos | Incubación (días) | Época de puesta | Madurez (años) |
|---|---|---|---|---|
| Pavo del Congo (Afropavo congensis) | 1–4 | 27–28 | Sin dato en la ficha | 2 |
| Pavo real común (Pavo cristatus) | 4–8 | 28–30 | N: abril · S: octubre | 3 |
| Pavo real verde (Pavo muticus) | 4–8 | 26–28 | N: enero–mayo | 3 |
N = hemisferio norte; S = hemisferio sur. La tabla de postura de Chintaguay da, para el pavo del Congo, 2–3 huevos, 26–28 días e incubación sin época señalada, con madurez a los 1–2 años (del Campo, 2006; Hernández García, 2014).
Parámetros generales de incubación artificial
Los documentos de Chintaguay no dan una pauta específica del pavo del Congo, pero sí una pauta general para los faisanes, medida «a la altura media del huevo», que se reproduce aquí como referencia para una especie de 26–28 días de incubación (del Campo, 2006):
| Fase | Valor recomendado |
|---|---|
| Conservación de los huevos antes de incubar | 13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo |
| Cuándo empezar a incubar | Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7) |
| Precalentamiento | 6–8 horas a unos 23 °C antes de entrar en la incubadora |
| Temperatura | 37,5 °C durante toda la incubación |
| Humedad relativa | 55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo |
| Volteo | 3 o 4 veces al día, hasta tres días antes de la eclosión |
| Últimos tres días | Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora |
Pauta general para faisanes; no es específica del pavo del Congo (del Campo, 2006).
Salud: la fragilidad de la especie
Roles insiste en que es una especie delicada y propensa a muchas infecciones, por lo que las aves se mantienen en un entorno estéril, en salas cerradas, con arena y conchas de ostra en el suelo (Roles, 1976). La experiencia de Rotterdam entre 1960 y 1961 lo ilustra: uno de los dos primeros polluelos murió el 9 de septiembre de 1960 de coccidiosis; las aves se trataron con sulfametizina y el suelo se desinfectó con Halamid (van Bemmel, 1961). La hembra adulta sufrió una infección creciente por Capillaria durante su última incubación, que se trató con ditiazanina y extracto de hígado sin éxito: murió el 17 de mayo de 1961 (van Bemmel, 1961). La joven hembra enviada a Copenhague murió de aspergilosis, que según van Bemmel apareció por el debilitamiento tras el estrés del traslado y la negativa a comer (van Bemmel, 1961). Son experiencias históricas, no pautas de tratamiento actuales. Recomendación editorial: ante cualquier sospecha, un diagnóstico veterinario es preferible a tratar por cuenta propia, y el uso de antiparasitarios depende de la legislación de cada país.
La anilla y la longevidad
La tabla de diámetros de anilla del libro del autor da al pavo del Congo el valor 16–18 y a los pavos reales 18–20, sin expresar la unidad (Hernández García, 2014). Las fuentes aquí revisadas no recogen datos de longevidad en cautividad; el único dato disponible es el de la hembra de Nueva York, que murió a los ocho meses de llegar (Delacour, 1977).
El programa de cría y sus problemas
La población cautiva es pequeña y procede de un número muy limitado de fundadores, de ahí que la ficha original hable de numerosos problemas de consanguinidad (Hernández García, 2014). Birds of the World añade que es difícil lograr emparejamientos exitosos en cautividad (BOW), y la ficha original, que solo el 22 % de los huevos eclosiona. El libro del autor recoge que el pavo del Congo es una de las pocas especies con un programa de cría de nivel EEP, con coordinación en el zoo de Amberes (a cargo de Steven Vansteenkiste), junto con el faisán de Edwards y el pavo de Palawan, y explica que el EEP es el programa europeo más intensivo, con libro genealógico, análisis demográficos y genéticos y recomendaciones de cría y traslado (Hernández García, 2014). Fuller y Garson cuentan al pavo del Congo entre las especies con libro genealógico internacional (R. Van Bocxstaele) y cifran en 118 las aves del libro en 1998 (Fuller y Garson, 2000).
Estado de conservación
De vulnerable a casi amenazado: una población pequeña, dispersa y mal conocida, que se supone en descenso.
Cerca de cumplir los criterios de amenaza. Región: África.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La UICN la cataloga como casi amenazada (NT), categoría que BirdLife confirmó en su consulta de la Lista Roja de 2022, con el criterio C2a(i): población pequeña, de entre 2.500 y 9.999 individuos maduros, que se supone en descenso por la caza y la pérdida de hábitat (BirdLife, 2022). Hasta entonces, las obras de referencia habían tratado a la especie como vulnerable (Fuller y Garson, 2000; Madge y McGowan, 2002).
- 788.000km²extensión de presencia, según BirdLife (2022)
- 2.500–9.999individuos madurospoblación estimada por BirdLife (2022)
- 49 de 65sitioscon presencia confirmada o probable en las encuestas de 1993–1995
Cómo ha ido cambiando la valoración
Debido a la pérdida continua de hábitat, la población desapareció de algunas áreas; actualmente se evalúa como casi amenazada (NT) en la Lista Roja de Especies Amenazadas de la UICN.
Las valoraciones han ido variando con el conocimiento. En 1986, Johnsgard decía que el estado de la especie en libertad era esencialmente desconocido, aunque era probable que la tala y la caza hubieran reducido su número, y que las densidades, por todas las referencias, debían de ser extremadamente bajas (Johnsgard, 1986). Howman, en 1996, clasificaba su categoría de amenaza como «información insuficiente» (Howman, 1996). El plan de acción de la UICN y la WPA (2000) la clasificó como vulnerable (criterio C2a): se supone que tiene una población pequeña y los estudios recientes indicaban que grandes zonas de su área estaban desocupadas, lo que implicaba una población muy fragmentada; la caza y la pérdida de hábitat continuaban sin freno y se infería un descenso (Fuller y Garson, 2000). Madge y McGowan (2002) coinciden en la categoría de vulnerable (Madge y McGowan, 2002). La consulta de BirdLife de 2022 recomendó la categoría de casi amenazada, cerca del umbral de la de amenazada; en el debate previo, un participante recordó que un estudio de cámaras trampa de 2020 sugería densidades mayores de las supuestas (Bessone et al., 2020; BirdLife, 2022).
| Año | Fuente | Valoración |
|---|---|---|
| 1938 | Birds of the World | Protegida por ley en el antiguo Zaire (BOW) |
| 1986 | Johnsgard | Estado en libertad esencialmente desconocido; tala y caza podrían haber reducido su número; densidad probablemente muy baja (Johnsgard, 1986) |
| 1996 | Howman | Categoría de amenaza: información insuficiente (Howman, 1996) |
| 1997 | Hart y Upoki | Extirpada o dudosa en 16 de 65 sitios con buena cobertura; localmente común en solo 12; amenaza seria en 19 (Hart y Upoki, 1997) |
| 2000 | Plan de acción UICN/WPA | Vulnerable (C2a): población pequeña, fragmentada y en descenso (Fuller y Garson, 2000) |
| 2002 | Madge y McGowan | Vulnerable; menos de 10.000 individuos; rara vez detectada (Madge y McGowan, 2002) |
| 2013 | Wikipedia (según el recuadro de la ficha original) | 2.500–9.000 adultos, con tendencia a la baja (Wikipedia) |
| 2022 | BirdLife International | Casi amenazada (NT), criterio C2a(i); 2.500–9.999 individuos maduros; tendencia decreciente (BirdLife, 2022) |
La categoría que aparece en esta ficha es la de la lista de especies de la web (casi amenazada).
Cuántos quedan: todas las estimas
Las fuentes aquí revisadas no recogen ningún censo del conjunto de la población; las cifras son estimas de expertos. Madge y McGowan y Birds of the World sitúan la población por debajo de los 10.000 individuos, con sospecha de descenso (BOW; Madge y McGowan, 2002); Wikipedia, 2013, la cifra en 2.500–9.000 adultos (Wikipedia); BirdLife (2022), en 2.500–9.999 individuos maduros, lo que equivale a unos 3.500–15.000 individuos en total (BirdLife, 2022).
| Fuente | Estima | Observaciones |
|---|---|---|
| Johnsgard (1986) | Sin estimas | Densidades «extremadamente bajas», sin cifras (Johnsgard, 1986) |
| Madge y McGowan (2002) | Menos de 10.000 individuos | Maiko, probable reducto; en descenso fuera de las áreas más seguras (Madge y McGowan, 2002) |
| Birds of the World | Menos de 10.000 individuos | Sospecha de descenso; un individuo por cada 9,03 km recorridos en Salonga en 2004–2005 (BOW) |
| Wikipedia (2013) | 2.500–9.000 adultos | Tendencia a la baja (Wikipedia) |
| BirdLife (2022) | 2.500–9.999 individuos maduros (unos 3.500–15.000 en total) | Tendencia decreciente (BirdLife, 2022) |
| Bessone et al. (2020) | Primeras estimas de densidad con cámaras trampa, en Salonga sur | Densidades superiores a las supuestas, según un comentario en el foro de BirdLife (Bessone et al., 2020; BirdLife, 2022) |
Las cifras no son comparables entre sí: unas se refieren a adultos o a individuos maduros y otras al total.
Acciones de conservación
El plan de acción de 2000 incluyó el proyecto 24, dedicado al pavo del Congo: censar las partes menos conocidas de su área (sur y oeste), vigilar a intervalos regulares las poblaciones de tres áreas protegidas (el parque nacional de Maiko, la Reserva de Fauna de Okapi y el parque nacional de Kahuzi-Biega) y explorar el parque nacional de Salonga por su posible papel en la conservación de la especie; como acciones prioritarias señalaba los censos, un programa de seguimiento de la población y una evaluación a gran escala de su estado (Fuller y Garson, 2000). Subrayaba, además, que es la única especie de faisán nativa de África y, por eso, de gran importancia para la conservación; que sus poblaciones están muy fragmentadas y cada vez más amenazadas por los asentamientos mineros y de refugiados; y que urge asegurar algunas poblaciones viables en áreas protegidas (Fuller y Garson, 2000). Hart y Upoki consideraban a Maiko el mejor lugar para asegurarla en el este de la RDC y recomendaron más censos en el centro del país y estudios de su comportamiento y necesidades ecológicas (Hart y Upoki, 1997). Mulotwa y colaboradores añaden que en los planes de conservación hay que tener en cuenta los hábitats secundarios (Mulotwa et al., 2010).
La especie forma parte de un programa europeo de cría en cautividad (EEP). Wikipedia recoge que los programas de cría se iniciaron en el zoo de Amberes y en el parque nacional de Salonga (Wikipedia). El libro del autor lo incluye entre los faisanes con programa EEP, con coordinación en el zoo de Amberes, y define ese nivel como el reservado a especies muy amenazadas en la naturaleza, cuya situación es lo bastante preocupante como para conservar poblaciones cautivas con la mayor variabilidad genética (Hernández García, 2014). El apartado «Cría en cautividad» detalla ese programa.
Amenazas y protección
Lazos para antílopes, minas, cultivos y tala, y la guerra: un bosque que se abre y un ave que desaparece cerca de cada aldea.
La caza y la pérdida de hábitat, derivadas de las exigencias de la guerra, amenazan seriamente la supervivencia de esta ave endémica. El hábitat está siendo destruido en varios lugares por la minería, la agricultura de subsistencia y las operaciones de explotación forestal. Igualmente, ha aumentado la caza de subsistencia y comercial, que emplea trampas para pequeños mamíferos y antílopes y que con frecuencia se cobra víctimas entre los pavos del Congo.
Desde 1994, grupos de guerrilleros y un gran número de refugiados ruandeses han ocupado la parte oriental de la República Democrática del Congo (RDC), lo que ha aumentado la ya creciente presión de la caza y la pérdida de hábitat.
Resumen de las amenazas
| Amenaza | Detalle | Fuente |
|---|---|---|
| Lazos y trampas | Capturas, a menudo accidentales, en lazos puestos para pequeños mamíferos y antílopes | Fuller; Hart y Upoki; BOW; Delacour |
| Caza de subsistencia y comercial | Aumenta con la apertura del bosque; a finales de los años cincuenta y mediados de los sesenta, el ave ya estaba ausente a menos de 25 km de cada aldea y carretera | BOW; Madge y McGowan |
| Minería | Asentamientos mineros que abren zonas remotas y aumentan la caza | Fuller; Madge y McGowan; BOW |
| Agricultura de subsistencia | Pérdida de bosque, a menudo itinerante | Fuller; Madge y McGowan; Hart y Upoki |
| Tala | Explotación forestal y alteración del bosque | Fuller; Madge y McGowan; BOW |
| Guerra y refugiados | Guerrilleros y un gran número de refugiados ruandeses en el este, desde 1994 | Fuller; Hart y Upoki; ficha original |
| Caza furtiva e invasión | Afectan, al menos, a Salonga | BOW |
| Fragmentación | Grandes zonas del área desocupadas; población muy fragmentada | Fuller |
(BOW; Delacour, 1977; Fuller y Garson, 2000; Hart y Upoki, 1997; Madge y McGowan, 2002)
Lazos y caza
El plan de acción de 2000 resume que la captura en lazos puestos para pequeños mamíferos y antílopes es probablemente generalizada; Hart y Upoki la consideran una amenaza importante en casi toda la región estudiada (Fuller y Garson, 2000; Hart y Upoki, 1997). Birds of the World precisa que se cree que a finales de los años cincuenta y a mediados de los sesenta el ave ya estaba ausente a menos de 25 km de cada aldea y carretera (BOW). Madge y McGowan señalan que ha sido extirpada localmente por la caza en algunas zonas, a pesar de la alta estima que algunas culturas tribales parecen tenerle (Madge y McGowan, 2002). Delacour ya recogía, de Chapin, que la tala del bosque y la caza en las cercanías de Angumu, en siete años, habían hecho que el ave apenas se viera a poca distancia de la localidad (Delacour, 1977), y de Cordier, que los nativos capturaban aves con lazos sujetos a un arbolillo y cubiertos de hojas, y que se habían encontrado plumas de un macho caído en una trampa para antílopes (Delacour, 1977).
Minería, agricultura y tala
Madge y McGowan indican que los efectos de la pérdida de bosque no se pueden evaluar con certeza, porque nunca se ha conocido bien su área, pero que se estima que está seriamente afectada por la deforestación y la degradación del hábitat, causadas por la minería, la tala y la agricultura de subsistencia (Madge y McGowan, 2002). El plan de acción añade que la minería y los asentamientos asociados abren zonas remotas y aumentan la caza de subsistencia y comercial (Fuller y Garson, 2000). Birds of the World suma el crecimiento de la población humana y la minería artesanal (BOW). Hart y Upoki observaron que la especie parece haber desaparecido de algunos sitios muy usados por las personas incluso donde la pérdida de hábitat era limitada, y la consideraron en serio peligro en 19 de 65 sitios (Hart y Upoki, 1997).
Guerra y refugiados
La presencia de gran número de refugiados ruandeses en el este de la RDC desde 1994 supone, según el plan de acción, una amenaza por el aumento de la caza y de la pérdida de hábitat (Fuller y Garson, 2000; Hart y Upoki, 1997). El proyecto 24 del plan de acción justifica, de hecho, la urgencia de proteger poblaciones viables por la presencia de gran número de asentamientos mineros y de refugiados (Fuller y Garson, 2000).
Protección legal y áreas protegidas
Birds of the World indica que la especie está protegida por ley en el antiguo Zaire desde 1938 (BOW). El plan de acción de 2000 sostiene que su conservación puede depender de las poblaciones de áreas protegidas donde se pueda limitar o prohibir la caza: en la actualidad, hay una población importante en el parque nacional de Maiko, y también está en la Reserva de Fauna de Okapi y en el parque nacional de Kahuzi-Biega (Fuller y Garson, 2000). Madge y McGowan la consideran razonablemente a salvo en esas áreas protegidas y en grave descenso fuera de ellas (Madge y McGowan, 2002). En Salonga, en cambio, la caza furtiva y la invasión del parque son un problema (BOW).
Subespecies y variación
Especie monotípica: sin subespecies reconocidas, con variación individual y ninguna mutación ni híbrido documentados.
No se reconocen subespecies: el pavo del Congo es una especie monotípica.
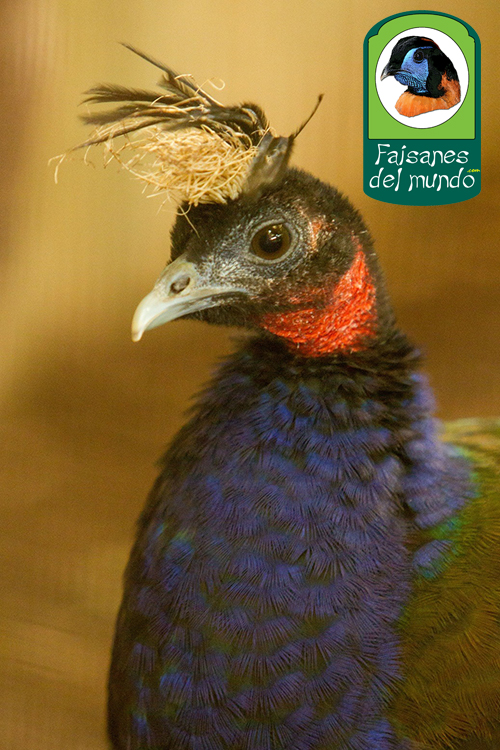
Las fuentes coinciden: Delacour escribe que no parece haber variación geográfica en toda su área y que es improbable que se descubran otras especies del género; Madge y McGowan y Johnsgard la tratan como monotípica, y el libro del autor y Chintaguay la presentan como único representante de su género (del Campo, 2006; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). El recuadro de la ficha original (de Wikipedia) añade que el pavo del Congo no solo carece de subespecies: es el único miembro superviviente de todo el género Afropavo y el único representante de los verdaderos pavos (tribu Pavonini) que existe fuera de Asia, donde vive su pariente más próximo, el género Pavo. Además de su rareza taxonómica, ha sido designado ave nacional de la República Democrática del Congo (Wikipedia).
Variación individual
Roles la llama «especie variable» en el sentido de que los machos difieren entre sí, sobre todo en la forma de la cresta (el mechón blanco está muy reducido en algunos) y en la extensión y densidad de la iridiscencia (Roles, 1976). Delacour describe el mechón de cerdas blancas de unos 90 mm y precisa que a veces está teñido de ante; en el macho tipo se había roto casi hasta la piel (Delacour, 1977). Por la edad cambian el color del dorso, los bordes de las plumas de pecho y la longitud de las cerdas, y los espolones faltan en el macho de primer año (Delacour, 1977; Madge y McGowan, 2002).
Mutaciones de cautividad
Ninguna de las fuentes consultadas recoge mutaciones de color fijadas en cautividad en el pavo del Congo, algo que no sorprende en una especie que se mantiene casi solo en programas de cría institucionales (Hernández García, 2014; Roles, 1976).
Híbridos
Johnsgard señala que, hasta la fecha de redacción de su obra, Afropavo era uno de los géneros que no se habían visto involucrados en ninguna hibridación, junto con Ithaginis, Pucrasia, Rheinartia y Argusianus (Johnsgard, 1986); la tabla de hibridación de Johnsgard (1999) que adaptó el criadero Chintaguay no incluye al pavo del Congo entre las 37 especies que recoge (del Campo, 2006; Johnsgard, 1999). En las fuentes aquí revisadas no se documenta ningún híbrido.
Cultura y curiosidades
El ave nacional de la RDC, el «pavo real» olvidado en un armario y una especie que se conoció por una pluma.
El pavo del Congo es el ave nacional de la República Democrática del Congo, donde, según la Wikipedia, se la conoce con el nombre bakôngo de mbulu (Wikipedia). En el este del país, los pueblos de lengua wabali y bakumu la llamaban ngowe e itundu cuando Chapin la buscó en 1937 (Delacour, 1977).
Un descubrimiento de leyenda
El pavo del Congo debe su descubrimiento a una pluma en un sombrero y a dos aves montadas que nadie había estudiado. Chapin guardó durante veintitrés años una pluma que no supo identificar, hasta que en 1936 reconoció dos aves de un museo belga que se habían tomado por pavos reales jóvenes; Howman resume esa historia, repetida en varias de sus ediciones, para presentar al ave como el único faisán no asiático (Delacour, 1977; Howman, 1979; Howman, 1993; Howman, 1996). Los relatos de Cordier, que enseñaba láminas del ave a los aldeanos, muestran una especie bien conocida de los cazadores locales: ante sus dibujos, en una aldea de la carretera de Opala, alguien dijo «itundu», y esa palabra le confirmó que estaba en el buen camino (Delacour, 1977).
Un ave respetada y cazada
Madge y McGowan observan una paradoja: algunas culturas tribales tienen en alta estima a esta ave y, sin embargo, localmente se ha extirpado por la caza (Madge y McGowan, 2002). Las plumas de sus alas aparecían en los tocados que Chapin vio en el Ituri, y en las colecciones europeas, los primeros ejemplares permanecieron más de veinte años sin identificar (Delacour, 1977; Wikipedia).
El pavo del Congo en el libro del autor
El capítulo del segundo volumen de Faisanes del mundo. Guía práctica dedicado al género Afropavo resume la especie en unas pocas páginas: introducción del género (endémico del bosque de las tierras bajas, monógamo, en la lista roja como vulnerable), nombres en cinco idiomas, descripción del macho y de la hembra, tabla de medidas, hábitat y distribución con mapa, historia del descubrimiento por «varias plumas» en la cabeza de un indígena, amenazas, reproducción y alimentación, con fotografías de Hugo Barbosa (zoo de Amberes), Jörgen Rilven (hembra, zoo de Amberes), Isidro Martínez (zoo de Londres) y Pablo Rodríguez López del Río (taxidermia de 1954, con el crédito de Wildvets) (Hernández García, 2014). En el apartado de conservación del mismo volumen aparece también como especie EEP, con coordinación en Amberes (Hernández García, 2014). La ficha original de esta web se basó en ese capítulo y lo amplió con datos de Birds of the World y Wikipedia.
Para seguir leyendo
Las obras más completas sobre la especie son el capítulo de Delacour, que reproduce el relato del descubrimiento de Chapin, el de Johnsgard, con su resumen de la sistemática y del comportamiento, la ficha de Madge y McGowan, el artículo de van Bemmel sobre la primera cría en Rotterdam y el estudio de Hart y Upoki sobre su distribución (Delacour, 1977; Hart y Upoki, 1997; Johnsgard, 1986; Madge y McGowan, 2002; van Bemmel, 1961).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Animal Diversity Web (Universidad de Míchigan). Afropavo congensis. animaldiversity.org/accounts/Afropavo_congensis. Consultada en octubre de 2026.
- Bemmel, A. C. V. van (1961). Breeding the Congo Peacock. Bijdragen tot de Dierkunde 31(1): 23–26. Texto completo en el repositorio de Naturalis: repository.naturalis.nl/pub/504049.
- Bessone, M., Kühl, H. S., Hohmann, G., Herbinger, I., N’Goran, K. P., Asanzi, P., et al. (2020). Drawn out of the shadows: surveying secretive forest species with camera trap distance sampling. Journal of Applied Ecology. doi:10.1111/1365-2664.13602. Solo se ha leído el resumen publicado.
- BirdLife International (2022). Afropavo congensis: ficha de especie en BirdLife DataZone (datazone.birdlife.org) y consulta de la Lista Roja 2022.1 en el foro de BirdLife (forums.birdlife.org; hilo abierto el 30 de enero de 2022, recomendación final del 7 de marzo de 2022). La ficha de DataZone no cargó por completo al consultarla: sus cifras (población, extensión de presencia) se tomaron de un resumen del buscador.
- Birds of the World (Cornell Lab of Ornithology, Ithaca, NY). Ficha del pavo del Congo, Congo Peafowl (Afropavo congensis). birdsoftheworld.org/bow/species/conpea1. Se cita a través de los recuadros de datos que reproduce la ficha original de esta web.
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Hart, J. A. y Upoki, A. (1997). Distribution and conservation status of Congo peafowl Afropavo congensis in eastern Zaire. Bird Conservation International 7(4): 295–316. doi:10.1017/S0959270900001647. Solo se ha leído el resumen publicado.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Mulotwa, M., Louette, M., Dudu, A., Upoki, A. y Fuller, R. A. (2010). Congo Peafowl use both primary and regenerating forest in Salonga National Park, Democratic Republic of Congo. Ostrich 81(1). Solo se ha leído el resumen publicado.
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- The Conversation (31 de marzo de 2020). Artículo divulgativo sobre el estudio de cámaras trampa de Salonga (Bessone et al., 2020). theconversation.com.
- Wikipedia (en inglés). Congo peafowl. en.wikipedia.org/wiki/Congo_peafowl. Consultada en octubre de 2026 y a través de los recuadros que reproduce la ficha original de esta web.
- Wikipédia (en francés). Paon du Congo. fr.wikipedia.org/wiki/Paon_du_Congo. Consultada en octubre de 2026; se usa solo para el resumen de las hipótesis sistemáticas y de las fechas del descubrimiento.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Pavo del Congo — Afropavo congensis. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/congo.php.


