Ithaginis cruentus (Hardwicke, 1821)LC — Preocupación menor
Es un faisán de tamaño pequeño, clasificado anteriormente como una perdiz. El nombre «Ithaginis» procede del griego «Ithagenes» y significa «de una verdadera raza»; el término «cruentus» procede del latín y significa «manchado de sangre», en referencia al color de su plumaje.
El faisán ensangrentado (Ithaginis cruentus) es el único miembro de su género y el faisán que vive a mayor altitud: del Himalaya de Nepal a las montañas del noroeste de China, se mantiene pegado al límite de las nieves, por lo general entre unos 3.000 y 4.500 m en verano (Beebe, 1918; BOW, 2020; Delacour, 1977; Howman, 1979). Catalogado por la UICN como de preocupación menor, es un ave del tamaño de una perdiz grande, muy gregaria y confiada, que se alimenta sobre todo de musgo, brotes, bayas y semillas (BOW, 2020; Madge y McGowan, 2002; WII, 2007).
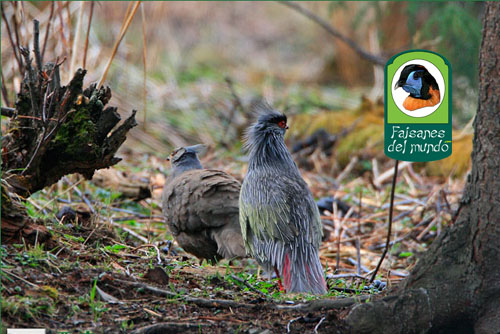
El macho, de unos 44 a 48 cm de longitud, es gris azulado con listas blancas por encima y verde manzana por debajo, con la garganta, las manchas del pecho, los bordes de la cola y las subcaudales de un carmesí intenso, la piel que rodea el ojo roja y las patas, del mismo rojo, armadas de varios espolones (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002; WII, 2007). La hembra, de unos 39,5 a 42 cm, es pardo rojiza, finamente moteada, con la cabeza más clara y una cresta gris (Delacour, 1977; Madge y McGowan, 2002). Los dos sexos llevan una cresta corta y despeinada y una cola de 14 plumas, rasgos que, con el pico corto y curvado, dan a la especie un aire de perdiz más que de faisán (Delacour, 1977; Johnsgard, 1986).
Es una especie muy variable: se han descrito hasta 14 formas, que se reemplazan unas a otras a lo largo del arco del Himalaya y de las montañas de China y que se distinguen sobre todo por la cantidad de rojo y de negro en la cabeza y el pecho del macho y por el verde o el pardo de las coberteras alares (BOW, 2020; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). El número de subespecies válidas depende del autor: de 11 a 15, según el criterio, pues la variación es en buena parte gradual (clinal) (BOW, 2020; Madge y McGowan, 2002).
En libertad forma bandadas de entre cinco y 30 aves que siguen la línea de nieve, sube y baja con ella a lo largo del año y duerme en árboles, matorrales o en el suelo; es monógama, anida en una depresión del suelo bajo un arbusto o un montón de hierba y pone de 5 a 12 huevos (7–9 en la mayoría de las fuentes del autor del sitio) que la hembra incuba sola unos 27 días (Beebe, 1918; Delacour, 1977; Hernández García, 2014; Madge y McGowan, 2002; WII, 2007). Es una de las especies más difíciles de mantener en cautividad: muy sensible a los parásitos y a las infecciones de las tierras bajas, agresiva entre machos y poco frecuente en las colecciones (del Campo, 2006; Delacour, 1977; Hernández García, 2013; Johnsgard, 1986). Su primera cría en cautividad se logró en la colección del mayor Iain Grahame, en Inglaterra (Howman, 1979; Johnsgard, 1986).
De Nepal, por Sikkim, Bután y el noreste de la India, al norte de Myanmar, el Tíbet y el centro y noroeste de China (Yunnan, Sichuan, Gansu, Qinghai, Shaanxi) (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002)
Preocupación menor (LC) · CITES, Apéndice II · en la India, Anexo I de la ley de protección de la vida silvestre (BOW, 2020; WII, 2007)
02
Sistemática y nomenclatura
Un género con una sola especie, un nombre que habla de sangre y una variación que desafía la taxonomía.
El faisán ensangrentado es la única especie del género Ithaginis, establecido por Wagler en 1832 para el ave que Hardwicke había descrito como un faisán (Phasianus cruentus) diez años antes (Beebe, 1918; Delacour, 1977). Durante mucho tiempo se la clasificó entre las perdices, y todavía hoy su posición dentro de la familia es una de las menos claras de los faisánidos (Beebe, 1918; Johnsgard, 1986; Madge y McGowan, 2002).
Posición taxonómica
Rango
Taxón
Reino
Animalia
Filo
Chordata
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Género
Ithaginis Wagler, 1832
Especie
Ithaginis cruentus (Hardwicke, 1822)
Subespecies
Entre 11 y 15 según el autor: 14 en esta guía (véase el capítulo de subespecies)
Clasificación tradicional que sigue esta guía (Hernández García, 2013; Johnsgard, 1986). Beebe (1918) incluía el género en la subfamilia Perdicinae, y el criadero Chintaguay lo mantiene entre los Phasianinae, aparte de los tragopanes (Tragopaninae) (Beebe, 1918; del Campo, 2006).
Origen del nombre
El nombre del género viene del griego ithagenes («de una verdadera raza», «legítimo»), y el del epíteto, del latín cruentus («manchado de sangre»), por las manchas carmesí del pecho y de la garganta del macho que dan al ave su nombre popular (Beebe, 1918; Hernández García, 2013). Wagler transcribió en 1832 la palabra griega como Ithaginis; diez años después Agassiz propuso enmendarla a Ithagenes, forma que usa Beebe en su monografía, mientras que Delacour, Johnsgard, Madge y McGowan, el plan de acción de la UICN y Birds of the World mantienen Ithaginis(Beebe, 1918; BOW, 2020; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002). Es una cuestión ortográfica del mismo nombre, no dos géneros distintos.
Jobling glosa el nombre del género, Ithaginis, como el griego ithagenes, que traduce por «bien nacido» y «noble»; es la grafía que recoge el diccionario. Los dos nombres de género sinónimos de la sinonimia tienen también su explicación, y ambos remiten a los espolones: Plectropus combina plektron («espolón de gallo») y pous («pie»), y Plectrophorus combina el mismo plektron y -phoros («portador») (Jobling, 2010).
Del epíteto cruentus, Jobling explica que es el adjetivo latino «sangriento, ensangrentado», derivado de cruor («sangre»). Se trata de una palabra corriente y no de un epónimo, y su entrada recoge otras aves a las que se aplicó. La forma emparentada cruentatus, que figura entre los sinónimos de la especie, la traduce como «manchado de sangre» (Jobling, 2010).
La mayoría de los nombres de las subespecies son epónimos, nombres de lugar o adjetivos descriptivos. Jobling recoge algunos de los de la tabla siguiente, pero a menudo los cita a propósito de otras aves, y en la tabla se indica cuándo su entrada no menciona el faisán. No tienen entrada propia kuseri, rocki, clarkei ni michaelis, y marionae figura solo para una alondra, sin relación con esta subespecie (Jobling, 2010).
Los nombres de las subespecies
Nombre
Significado o dedicatoria
Autoría
affinis
Jobling no le dedica entrada; en su introducción cita affinis entre los epítetos de sentido comparativo, que indican que una forma se considera parecida o distinta de otra. (Jobling, 2010)
Beebe, 1912
tibetanus
Del Tíbet; es un nombre de lugar. (Jobling, 2010) El tipo procede de la zona fronteriza entre Bután y el Tíbet.
S. Baker, 1914
holoptilus
Jobling da la raíz griega holopto («arrancar, despojar») y ptilon («pluma»); no explica a qué rasgo de esta subespecie se refiere. (Jobling, 2010)
Greenway, 1933
geoffroyi
Jobling recoge el epíteto solo para Étienne Geoffroy Saint-Hilaire (1772–1844), zoólogo francés, en otros taxones. No menciona esta subespecie, por lo que la dedicatoria no queda confirmada. (Jobling, 2010)
Verreaux, 1867
sinensis
Del latín moderno Sinensis, «chino», que a su vez procede del griego Sinai; hace referencia a China. (Jobling, 2010)
David, 1873
berezowskii
M. M. Berezovski (fallecido en 1911), explorador, zoólogo y coleccionista ruso en Mongolia, el Tíbet y China. Jobling lo cita a propósito del género Cyanistes y no menciona este faisán, aunque la subespecie se describió con material de las expediciones rusas. (Jobling, 2010)
Bianchi, 1908
beicki
Walter Beick (1883–1933), ornitólogo, coleccionista y explorador sueco-estonio en el Tíbet y China entre 1926 y 1933. Jobling lo cita a propósito del género Carpodacus y no menciona este faisán. (Jobling, 2010)
Mayr y Birckhead, 1937
annae
Jobling no da la dedicatoria de esta subespecie. Recoge otras Annas (la esposa de un coleccionista, la de un juez, una botánica neerlandesa) y, en un caso, indica que la dedicatoria no se ha descubierto, pero ninguna se refiere a este faisán (Jobling, 2010). El nombre «de Mrs Sage» que usa esta página procede de otras fuentes (Delacour, 1977; Fuller y Garson, 2000).
Mayr y Birckhead, 1937
Solo se incluyen las subespecies que Jobling cita de algún modo. Cuando se indica que no menciona el faisán, la identificación con el personaje o el lugar es una probabilidad razonable y no un dato del diccionario (Jobling, 2010).
Nombres comunes y vernáculos
En español se llama faisán ensangrentado, y en inglés blood pheasant; Beebe, que prefería llamarlo «perdiz de sangre» (blood partridge), recuerda además su nombre francés, francolin ensanglanté, y tres alemanes: Bergfasan, Indischer Blutfasan y Grünhuhn(Beebe, 1918). Hoy se emplean ithagine ensanglantée en francés y Blutfasan en alemán (Hernández García, 2013; Johnsgard, 1986). Entre los pueblos del Himalaya el ave tiene nombres propios: chilimé en Nepal, semo en tibetano y bhutiano, somong-pho o soomoong pho entre los lepchas de Sikkim y chiku entre los mishmi de Arunachal Pradesh (Beebe, 1918; Johnsgard, 1986; WII, 2007). En China se le dan nombres como hoa-ky («ave flor») y song-hoa-ky («ave flor de los abetos») para las formas del norte, y tsong-ky («gallina de matorral») y sung chi-i («gallina de abeto») para la de Geoffroy; en mongol, sermun(Beebe, 1918).
Historia nomenclatural
El ave tiene una larga lista de sinónimos, porque los autores del siglo XIX la describieron una y otra vez, a veces con otro género y a veces con un sexo distinto. La secuencia que recoge Beebe, y las formas añadidas después, es la siguiente (Beebe, 1918; Delacour, 1977):
Hardwicke describe el macho, procedente de Nepal, como Phasianus cruentus (Transactions of the Linnean Society 13: 237); Birds of the World lo fecha en 1821, pero la fecha correcta es 1822 (Beebe, 1918; BOW, 2020; Delacour, 1977; Johnsgard, 1986).
Hardwicke da a la hembra, de «las montañas nevadas al norte del valle de Nepal», otro nombre, Phasianus gardneri, creyendo que era una especie distinta (Beebe, 1918).
Baker (tibetanus, 1914), Rothschild (clarkei, 1920), Riley (rocki, 1925), Greenway (holoptilus, 1933), Mayr y Birckhead (annae y beicki, 1937) y Mayr (marionae, 1941) completan el catálogo de formas (Delacour, 1977).
Sinonimia principal
Nombre
Autor y fecha
Phasianus cruentus (macho)
Hardwicke, 1822
Phasianus gardneri (hembra)
Hardwicke, 1827
Perdix cruenta
Temminck, 1825
Phasianus cruentatus
Gray, 1829
Ithaginis cruentus
Wagler, 1832
Ithagenes cruentus
enmienda de Agassiz, usada por Ogilvie-Grant (1893) y Beebe (1918)
Plectropus y Plectrophorus
nombres de género sinónimos (Lesson, 1836; Gray, 1840)
Selección a partir de la sinonimia de Beebe (Beebe, 1918).
Un género aislado: ¿faisán o perdiz?
Beebe consideraba que los ensangrentados son los menos faisanes de todos los faisanes: aves de tamaño medio, por su forma semejantes a los francolines, pero con el dimorfismo sexual de los faisanes (Beebe, 1918). Entre sus rasgos «de perdiz» cita el pico muy corto, robusto y curvado, la muda de la cola de dentro hacia fuera (centrífuga, como en las perdices y los tragopanes), el número irregular de espolones, que recuerda a los gallos de espolones (Galloperdix), y los huevos, que le recuerdan a la vez a los de tragopán y a los de codorniz (Beebe, 1918). Delacour apunta la semejanza de las plumas lanceoladas, la cresta y el pico corto con el koklass (Pucrasia), otro género monotípico de gran altitud (Delacour, 1977).
Johnsgard concluye que no hay buenas razones para incluir el género entre los fasiánidos (Phasianini) o entre las perdices del Viejo Mundo (Perdicini), aunque tampoco para creer que esté más cerca de los faisanes que de las perdices: su organización social en bandadas, su monogamia y buena parte del plumaje son propios de perdices (Johnsgard, 1986). Madge y McGowan lo ven como un género monotípico peculiar, de plumaje blando, que por la muda de la cola es «de perdiz» y por su fuerte dimorfismo es un faisán, y señalan al koklass como su pariente probablemente más cercano (Madge y McGowan, 2002). El informe del Wildlife Institute of India recoge que el linaje que forman los tragopanes, el faisán ensangrentado, los monales y el koklass es el más basal de los faisanes, y que un análisis de caracteres de comportamiento y ecología coloca al ensangrentado, junto a los francolines de espolones, en la base de todo el grupo (WII, 2007). En 2020 se publicó un primer borrador de su genoma completo, pensado para estudiar su adaptación a la altitud (Zhou et al., 2020).
Del Himalaya a las vitrinas de los museos, y de ahí a unas pocas pajareras.
La historia del faisán ensangrentado es la de un ave abundante en sus montañas y muy mal conocida fuera de ellas: descrita en 1822 con un macho traído de Nepal, tardó casi un siglo en estudiarse en libertad y todavía hoy es una rareza en cautividad (Beebe, 1918; Delacour, 1977; Howman, 1979).
El primer macho, la primera hembra
Hardwicke describió el primer macho conocido en 1822 con un ejemplar de Nepal, y cinco años después dio otro nombre a la hembra, convencido de que era una especie distinta; los dos tipos están en el Museo Británico (Beebe, 1918). Hardwicke agradece los ejemplares a Nathaniel Wallich y a la influencia del residente inglés en Katmandú, Edward Gardner, sin la cual, escribe, nada podía obtenerse de un pueblo tan receloso de los extranjeros; Beebe señala que, noventa años después, las condiciones de acceso a Nepal seguían siendo las mismas (Beebe, 1918).
En las décadas siguientes las láminas de Gould (Birds of Asia) y de Elliot (Monograph of the Phasianidae) difundieron el ave. Beebe observa que las dos difieren más entre sí que de la especie de Geoffroy: la de Gould es un cruentus extremo, con mucho carmesí, y la de Elliot se acerca más al tipo de Sikkim (Beebe, 1918). Hooker, en sus Himalayan Journals (1855), dejó la nota de campo más repetida de la especie: que en invierno parece enterrarse bajo la nieve, pues la había capturado con lazo en enero, en una zona cubierta de nieve, a unos 12.000 pies (unos 3.660 m); como se verá, Beebe puso en duda ese hábito (Beebe, 1918).
Beebe en Sikkim y el nacimiento de la monografía
Hacia 1910 Beebe fue a buscar a la «perdiz de las nieves» al corazón de su área, en la cordillera de Singalila, que se extiende al noroeste de Darjeeling hacia el Kanchenjunga (Beebe, 1918; Beebe, 1927). Antes había comprobado que unos 70 de cada 100 ejemplares de museo no llevan localidad o solo una vaga indicación («India», «Himalaya», «Darjeeling»), y que el ave nunca existió en el propio Darjeeling: los que se etiquetaban con ese nombre vendrían de las laderas nepalíes de Singalila, mucho más al norte (Beebe, 1918). Allí recogió la información que hoy se cita en todas las monografías: la composición de las bandadas, el reparto estacional por altitudes, la dieta de las semillas de los lirios y las notas, que le dieron varios cazadores lepchas y tibetanos, sobre la monogamia, el cortejo y el nido (Beebe, 1918; Beebe, 1926). Su relato de las horas de espera en una pradera alpina, junto a una gran roca helada, hasta que siete aves aparecieron en el crepúsculo, es una de las páginas más conocidas de la literatura sobre faisanes (Beebe, 1918).
La ruta de las formas orientales
La primera forma oriental fue la de Geoffroy: el padre Chauveau, misionero francés, obtuvo cuatro machos y una hembra cerca de Tatsienlu (Kangding, Sichuan), y el cónsul Dabry los envió desde Hankow a París en 1866, en una remesa que incluía también al monal de L’Huys y los primeros tragopanes de Temminck vivos que llegaron a Europa; Verreaux los bautizó al año siguiente en honor de Geoffroy Saint-Hilaire (Beebe, 1918). David describió la forma de los Qinling (1873) y Bianchi, las del norte, con ejemplares de las expediciones de Potanin y de los hermanos Grum-Grzimailo a las montañas de Nanshan (Beebe, 1918).
Beebe vio por primera vez la forma más espectacular en diciembre de 1910, en el noroeste de Yunnan, en una carga de caballerías: bajo las correas de un fardo asomaba un manojo de plumas, con un destello escarlata, que resultó ser un pecho casi enteramente escarlata y negro y dos alas con las largas coberteras verdes de la forma de Geoffroy. Año y medio después, en el Jardin des Plantes de París, encontró dos ejemplares naturalizados que aclaraban el enigma: describió el ave como especie nueva, Ithaginis kuseri, en honor de su patrocinador, el coronel Anthony R. Kuser (Beebe, 1918; Beebe, 1926). El capitán F. M. Bailey la encontró después en las colinas Mishmi (Assam), lejos al oeste, entre 8.000 y 12.000 pies (unos 2.440–3.660 m) (Beebe, 1918).
En el Himalaya oriental Baker describió en 1914 tibetanus a partir de un único macho cazado en el Tíbet, justo al este de Bután, por el capitán Molesworth, que dijo haber visto a otros (Beebe, 1918; Delacour, 1977). En 1912, Thayer y Bangs describieron wilsoni, una forma enana, con dos machos recogidos en el monte Wa (Sichuan) por una expedición de Harvard (Beebe, 1918). Entre 1912 y 1941 se añadieron clarkei, rocki, holoptilus, annae, beicki y marionae(Delacour, 1977).
Las primeras aves cautivas
Los intentos de mantener ensangrentados en cautividad fracasaron durante décadas. Beebe no halló ningún registro en un zoológico europeo hasta 1911 y cuenta que en Darjeeling varios intentos habían acabado con aves muertas en menos de dos semanas (Beebe, 1918). El único ejemplar de la forma de Geoffroy que llegó vivo a Londres (19 de julio de 1875) vivió hasta el 19 de septiembre de 1876 y fue durante mucho tiempo el récord de longevidad del género (Beebe, 1918; Delacour, 1977). En 1911, W. Frost consiguió llevar a Inglaterra una pareja capturada en enero, que llegó el 3 de junio al zoo de Londres, en buen estado, pero murió poco después, quizá por el calor (Beebe, 1918). En 1912 diez ensangrentados más, junto con once perdices de las nieves tibetanas, murieron en el calor de Calcuta antes de embarcar (Beebe, 1918; Delacour, 1977). En 1938 llegaron a Clères tres geoffroyi de Sichuan, pero ya estaban enfermos de una difteria aviar (roup) y murieron (Delacour, 1977).
La primera reproducción en cautividad se logró mucho después, en la colección del mayor Iain Grahame en Daws Hall (Suffolk), de donde procede casi toda la información que hay sobre cría en pajarera (Howman, 1979; Johnsgard, 1986). Howman, en 1979, estimaba en unas 25 las aves mantenidas en el mundo según el censo de la World Pheasant Association de 1976, y señalaba que el único grupo importante era el de esa colección (Howman, 1979).
Tres geoffroyi llegan a Clères y mueren de roup (Delacour, 1977).
Grahame publica sus observaciones de cría en Daws Hall (Johnsgard, 1986).
Se publica el primer borrador del genoma completo (Zhou et al., 2020).
04
Morfología y plumajes
Gris azulado, verde manzana y carmesí en el macho; pardo rojizo en la hembra; y una cresta despeinada en los dos.
El faisán ensangrentado (Ithaginis cruentus) es un faisán de tamaño pequeño propio de la alta montaña del Himalaya, catalogado por la UICN como de preocupación menor. Se reconocen 14 subespecies, y el macho mide unos 43 cm de longitud. (BOW, 2020)
Macho adulto
♂ El macho presenta en la cabeza unas plumas alargadas que forman un pequeño copete, el cual pasa del negro al blanco en las puntas. La piel que rodea el ojo carece de plumas y es de color rojo, y la garganta también está coloreada en rojo; en la subespecie sinensis falta el rojo. El pecho es verde amarillento y las alas, cortas, tienen el mismo color que la espalda (gris verdoso con listas blancas). La cola, corta, es de color rojo carmín. Los ojos son marrones y las patas, de un rojo precioso, llevan varios espolones. Su longitud total se cifra en unos 43 cm, aunque otras fuentes la sitúan entre 44 y 48 cm, con una cola de 16,5 a 18 cm. (BOW, 2020)
La descripción de Beebe, hecha sobre ejemplares del Himalaya, permite afinar el conjunto. Frente, lores, cara y el borde de la piel desnuda son negros; la corona es de un canela anaranjado que se aclara hacia atrás hasta un ante pálido, y la cresta, de plumas gris azuladas con una lista central blanca, resulta alargada y suelta. La nuca y el manto son gris azulado con una lista blanca por pluma, que en la espalda y el obispillo se ensancha, se tiñe de verde y se bordea de negro; el borde de las supracaudales es carmesí intenso y sus barbas están disgregadas, de modo que parecen largas y estrechas (Beebe, 1918). Las remeras son de un pardo negruzco con el raquis blanco brillante en la mitad distal; las timoneras, blancas en la punta y pardo negruzcas en la base, tienen los bordes laterales disgregados y teñidos de carmesí, un color que disminuye del par central hacia fuera y falta en uno o dos pares externos (Beebe, 1918; Delacour, 1977).
Los lados del cuello y los auriculares combinan negro, verde pálido, gris o carmesí según la zona. La barbilla y la garganta son carmesí oscuro en las partes visibles de la pluma, con la mitad basal negra; en el pecho aparecen manchas carmesí redondas, una en cada barba, que en las aves de Nepal forman una zona densa y que Beebe encontró independiente de la edad. Los flancos y la parte baja del pecho son de un verde manzana, bordeado de negro; el abdomen, de un ante grisáceo apagado, con el plumón de un fuerte tinte ante; y las subcaudales, carmesí oscuro con la punta blanquecina o verdosa (Beebe, 1918; Delacour, 1977). Johnsgard reproduce la de Baker, según la cual el cuello anterior es verde amarillento con barras y bordes negros muy variables en extensión y el pecho superior, verde amarillento más o menos salpicado de carmesí (Johnsgard, 1986).
Partes blandas y espolones
El iris es pardo avellana (marrón rojizo), el pico negro, con la base, la cera y la comisura de un rojo coral a carmesí intenso, que en invierno palidece hasta un tono salmón; la piel desnuda alrededor del ojo es escarlata o naranja bermellón; las patas y los espolones, carmesí, y las uñas, de color cuerno oscuro (Beebe, 1918; Delacour, 1977; Johnsgard, 1986). Las patas son más pálidas en invierno (Beebe, 1918; Delacour, 1977). Los espolones son irregulares en número, de uno a cinco en cada pata: Beebe encontró dos en cada pata en el 60 % de los machos, más de dos en cerca del 30 % y una cifra menor de cuatro en total en el 10 % restante (Beebe, 1918). Delacour habla de uno a tres espolones irregulares y cortos (Delacour, 1977), y Madge y McGowan, de hasta tres de longitud variable en el macho, frente a simples nudos romos en la hembra (Madge y McGowan, 2002). Los espolones aparecen como nódulos redondeados entre agosto y noviembre del primer año (Beebe, 1918).
Hembra
♀ La hembra es de color marrón oxidado y de tamaño similar al del macho, aunque algo menor: mide entre 39,5 y 42 cm, con una cola de 14 a 15,5 cm. Su plumaje es mucho más apagado, de tonos principalmente marrones, con la frente, la cara y la garganta de un canela rufescente, a veces teñido de carmesí; algunas hembras llevan pequeños espolones. El peso de los adultos de la especie oscila entre 410 y 655 g. (BOW, 2020)
La descripción de Beebe añade que la corona y la nuca son gris azuladas y que el resto de las partes superiores es de un pardo rufo pálido, densamente vermiculado de pardo negruzco, igual que los flancos y el vientre bajo; la parte inferior del cuello y todo el pecho son de un pardo siena liso, sin vermiculaciones, con una lista central ante en cada pluma. Las remeras son pardo oscuras, con un moteado pálido en las secundarias; el iris es avellana, el pico, negro, a veces con la punta y la base rojizas, la cera y la comisura amarillo carmín (salmón pálido en invierno) y las patas, carmín intenso, más pálidas en invierno (Beebe, 1918; Delacour, 1977). Más de la mitad de las hembras carecen de espolones, un 20 % tiene un único nódulo romo en cada pata, y solo rara vez llegan a desarrollarlos como espolones agudos (Beebe, 1918).
Según Beebe, la hembra muestra más rastros de la librea masculina de lo que parece a primera vista: rara vez falta del todo el carmesí, ya sea en plumas sueltas o en un fuerte lavado rosa en la barbilla, la garganta y la cara. En las aves de Nepal es la regla, no la excepción, y las hembras con más carmesí tienen también más vivo el canela de la corona; las de Sikkim son, en cambio, más grises (Beebe, 1918). Varias formas de hembra son tan parecidas entre sí que Delacour y Johnsgard advierten de que solo se distinguen con seguridad por la zona de origen y por comparación con un ave de museo (Delacour, 1977; Johnsgard, 1986).
Jóvenes, desarrollo y muda
Los jóvenes son más apagados que los adultos y, hacia las tres semanas de edad, el macho ya es claramente más gris que la hembra. En conjunto, se trata de un faisán más bien pequeño, de aspecto próximo al de una perdiz. (BOW, 2020)
Beebe pudo reconstruir los plumajes jóvenes con aves de museo y con las pocas de cautividad. El polluelo de unos siete días tiene la cabeza y el cuello gris y negro, y todo el cuerpo de un rufo apagado con finas puntas negras, salvo por debajo, donde el rufo es más pálido y puro. Las alas ya muestran siete primarias y ocho secundarias, y miden unos 45 mm; el pico, 6 mm desde la narina, y el tarso, 23 mm (Beebe, 1918). A las cinco semanas el plumaje juvenil es un moteado pardo ante y negro con una conspicua mancha terminal triangular de ante pálido en cada pluma; en esa edad las 14 timoneras miden solo 84 mm, frente a los 170 del adulto, y son estrechas y falcadas (Beebe, 1918). A los dos meses ya se aprecia el cambio al plumaje del adulto, que empieza por el cuello y avanza hacia atrás por el dorso antes de tocar la parte inferior; a las diez semanas el macho está a medio camino, con verde y carmesí en el pecho, y a las catorce parece ya adulto salvo en la garganta, que solo empieza a cambiar (Beebe, 1918).
En cautividad, Grahame comprobó, según Johnsgard, que a los cinco días de edad los machos se distinguen de las hembras por las primeras trazas de gris en los hombros (Roles, que resume la misma experiencia, sitúa el sexado a los diez días, con los machos más oscuros y con más gris en el hombro; las dos edades se dan aquí atribuidas, sin prometer una edad de sexado infalible) (Roles, 1976), y que el plumaje adulto está completo a los cinco meses; en su primer invierno solo se diferencian de los mayores por los espolones, más cortos, y hay mucha variación individual en la cantidad de rojo del pecho (Johnsgard, 1986). Delacour dice que a los cuatro meses los machos se parecen a los adultos, pero con colores menos brillantes (Delacour, 1977), y Johnsgard añade que los machos jóvenes tienen el pico rojo anaranjado y la piel de la cera y del contorno de los ojos de un gris carnoso, y que a las seis semanas ya tienen la garganta roja (Johnsgard, 1986). Un joven típico cazado en septiembre u octubre tiene las patas bermellón pálido, el iris pardo oscuro y el pico negro con la punta, los bordes y la piel de las narinas rojo claro (Beebe, 1918).
Etapa
Descripción
Polluelo (plumón)
Cabeza gris y negra; cuerpo rufo apagado con finas puntas negras, más pálido por debajo; alas con las primeras remeras ya asomando hacia la primera semana (Beebe, 1918; Delacour, 1977)
Juvenil (5 semanas)
Moteado pardo ante y negro con una mancha triangular de ante pálido en cada pluma; timoneras cortas (84 mm), falcadas y barradas (Beebe, 1918; Delacour, 1977)
Muda hacia el plumaje adulto (2–3 meses)
Empieza por el cuello y el dorso; el macho muestra verde y carmesí en el pecho; la hembra apenas cambia de aspecto (Beebe, 1918)
Primer otoño
Los machos completan una librea casi idéntica a la del adulto, con un exceso de pigmento oscuro; se reconocen por dos o tres primarias externas retenidas, de raquis pardo, y por los espolones, todavía redondeados (Beebe, 1918)
Adulto
Descrito arriba; la cantidad de carmesí varía con la zona geográfica, no con la edad (Beebe, 1918)
Beebe fijó con cuidado el calendario de la muda: la muda anual de los adultos empieza a finales de julio, está en pleno apogeo en agosto y septiembre y concluye en octubre, cuando las últimas plumas de la cola y del vuelo alcanzan su tamaño y el plumaje espeso queda listo para el invierno (Beebe, 1918). La cola se renueva de dentro hacia fuera, como en las perdices, y en los jóvenes los dos o tres pares externos de plumas juveniles pueden persistir durante un tiempo como plumas cortas, pardas y curvas, parecidas a coberteras (Beebe, 1918; Delacour, 1977). No hay variación estacional de plumaje, salvo por el desgaste (Beebe, 1918).
Variación geográfica
La variación geográfica en los machos es considerable. La extensión del rojo y del negro en la cabeza aumenta hacia el este, entre el Himalaya occidental y Myanmar, mientras que más al norte y al este los machos carecen de rojo. También cambian la coloración de las partes inferiores y la de las coberteras mayores de las alas, que son verdes hacia el suroeste del área de distribución y rojizas hacia el noreste. (BOW, 2020)
Las hembras varían menos: son más pardo rojizas en el Himalaya y más pálidas y grisáceas hacia el norte y el este. (BOW, 2020)
Johnsgard y Madge precisan que la variación es muy grande y de carácter clinal: se reconocen dos grandes grupos de poblaciones, uno meridional y occidental (el grupo de cruentus, con las coberteras alares verdes, al menos en parte) y otro septentrional y oriental (el grupo de sinensis, que incluye michaelis, beicki, berezowskii, annae y sinensis, con coberteras pardo rojizas, penachos auriculares bien marcados y sin carmesí en la cabeza ni en el pecho) (Johnsgard, 1986; Madge y McGowan, 2002). La separación no es tajante: algunos machos del grupo de sinensis muestran plumas carmesí en la frente y la barbilla, y dos de sus subespecies (beicki y michaelis) tienen las coberteras algo teñidas de verde (Johnsgard, 1986). En el grupo de cruentus, el carmesí se extiende cada vez más por la cabeza y el pecho de oeste a este (de cruentus a kuseri), disminuye en el noroeste de Yunnan (de rocki a clarkei) y desaparece más al este, en geoffroyi; los penachos auriculares se aprecian de forma reducida hasta kuseri(Johnsgard, 1986). Las hembras del grupo de sinensis también tienen penachos, y son más grisáceas y menos ocres en la cara y la garganta que las del grupo de cruentus(Johnsgard, 1986). El capítulo de subespecies describe cada una de ellas.
Para qué sirven los colores
Beebe discutió en su monografía si el vistoso plumaje del macho es protector, como defendía Waddell para la combinación de grises, verdes y carmesí sobre el granito cubierto de líquenes. En su opinión, el color de los dos sexos puede ser protector, pero no por el motivo de Waddell: un día vio a toda una bandada agazaparse y quedarse inmóvil, con la cabeza ladeada, mirando fijamente al cielo, hasta que descubrió un punto en el cielo que resultó ser un águila, y las aves permanecieron quietas al menos tres minutos (Beebe, 1918; Beebe, 1926). Observó que las hembras, de plumaje pardo rojizo, coincidían más con el fondo de líquenes pardos que los machos, y que el carmesí de la garganta, el pecho y la cola de los machos queda oculto cuando el ave está en cuclillas; además, falta en los machos de otras formas del género que viven en las mismas laderas, de modo que no puede tener solo una función protectora (Beebe, 1918; Beebe, 1926).
05
Medidas y peso
Las tablas de la guía original, contrastadas con la literatura.
Las dos tablas siguientes recogen, para cada una de las subespecies, el peso y las medidas de ala, cola, tarso y longitud total. No todas las subespecies cuentan con todos los datos, por lo que algunas casillas aparecen sin cifra. El faisán ensangrentado es, en conjunto, una especie de tamaño pequeño. (BOW, 2020; Hernández García, 2013)
Machos
Subespecie
Peso (g)
Ala (mm)
Cola (mm)
Tarso (mm)
Longitud (mm)
cruentus
500
210
170
62
450
tibetanus
600
200
166
64
470
kuseri
600
200
166
64
470
marionae
—
195
—
—
460
rocki
—
198
—
—
450
clarkei
—
205
165
—
470
geoffroyi
—
220
170
65
480
berezowskii
600
190
160
—
440
beicki
—
207
—
—
460
michaelis
600
200
165
63
460
sinensis
—
200
160
61
450
Medidas en milímetros (peso en gramos) y expresadas con relatividad, ya que ningún animal es exactamente igual en tamaño; basadas, según el libro, en datos recopilados por Beebe y Johnsgard. Las tablas de la ficha original no indican que son de machos y de hembras ni las unidades; se han tomado del libro del autor (Hernández García, 2013).
Hembras
Subespecie
Peso (g)
Ala (mm)
Cola (mm)
Tarso (mm)
cruentus
470
188
147
60
tibetanus
500
190
—
62
kuseri
460
187
—
53
marionae
500
193
130
—
rocki
450
183
135
—
clarkei
450
183
140
—
geoffroyi
500
208
156
62
berezowskii
440
181
148
—
beicki
510
200
—
—
michaelis
500
195
—
61
sinensis
500
195
141
61
Misma fuente y mismas reservas que la tabla de machos (Hernández García, 2013). La tabla de hembras del libro lleva además una columna de longitud que repite los valores del peso (470, 500, 460…), un error de composición; la ficha original la dejó en blanco, y aquí se omite (Hernández García, 2013).
En el conjunto de la especie, el macho mide entre 44 y 48 cm de longitud total, con una cola de 16,5 a 18 cm, y la hembra entre 39,5 y 42 cm, con una cola de 14 a 15,5 cm; el peso de los adultos se sitúa entre 410 y 655 g. La ficha de identificación habla de «unos 43 cm», una cifra algo inferior a esos rangos, y las tablas por subespecie dan valores de longitud y peso coherentes con ellos. Las hembras tienen un tamaño y un peso similares a los del macho, pero su plumaje es mucho más apagado. (BOW, 2020; Wikipedia)
Medidas según distintas fuentes
Las cifras de los autores difieren de las tablas anteriores y, en parte, entre sí. Casi todas las medidas de museo proceden de las series de Beebe (1918) y de Delacour (1977), basadas en la forma nominal; los pesos de aves silvestres, en cambio, son pocos y se limitan a unas decenas de ejemplares, con cifras que repiten Johnsgard y Madge (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Fuente
Longitud total
Ala
Cola
Tarso
Peso
Beebe (1918), cruentus ♂
438–482 mm (media 460)
194–228 (211)
164–178 (171)
66–76 (71)
1 lb 1 oz a 1 lb 4 oz (unos 482–568 g)
Beebe (1918), cruentus ♀
394–420 mm (407)
179–197 (188)
140–154 (147)
56–70 (63)
12 oz a 1 lb 1 oz (unos 340–482 g)
Delacour (1977), cruentus ♂
438–482 mm
194–228
164–178
66–76
—
Delacour (1977), cruentus ♀
394–420 mm
179–197
140–154
56–70
—
Johnsgard (1986), especie
18 pulgadas (campo)
♂ 188–228 · ♀ 178–211
♂ 162–190 · ♀ 130–162
—
♂ 482–568 g (cruentus); ♂ 520–600 g y ♀ 410–620 g (berezowskii); un macho de michaelis, 655 g
Johnsgard calcula que el huevo medio mide 48 × 33 mm y pesa, fresco, unos 28,8 g (Johnsgard, 1986). Delacour da 50 × 32 mm para un huevo puesto en cautividad en Sikkim; Beebe, 47–52 mm de largo por 32–33 de ancho para los huevos de geoffroyi hallados en un nido de Sichuan (Beebe, 1918; Delacour, 1977). La ficha original da «aproximadamente 4,5 × 3 cm» y el libro del autor, 5 × 3,5 cm, que él mismo escribe por error en milímetros (BOW, 2020; Hernández García, 2013).
06
Distribución y hábitat
La parte más alta de las montañas, entre el bosque de abetos y la nieve, de Nepal al noroeste de China.
Se trata de una especie de alta montaña que puede encontrarse desde el centro de Asia hasta el este, de Nepal a Birmania (Myanmar), por lo general entre los 3.000 y los 4.500 m de altitud. Vive en zonas de bambú, enebros y coníferas, en muchos casos entre placas de nieve. También ocupa bosques de pino y enebro y prefiere los lugares cercanos al agua. (BOW, 2020)
Mapa de distribución. Pulsa para ampliar.
Distribución y altitud
La altitud varía según el país. En Nepal habita matorrales de rododendro y otros matorrales subalpinos de gran altitud, entre 3.200 y 4.400 m; en la India se encuentra entre 2.750 y 4.500 m; y en Bután se observa sobre todo entre 2.550 y 4.200 m, con un registro excepcional a solo 1.600 m. De Myanmar no hay datos recientes, pero antiguamente se encontraba por encima de los 2.500 m. (BOW, 2020)
Los autores describen el área con matices distintos, según la época y las formas que reconocen. Todos coinciden en que va de Nepal, por el Himalaya, hasta las montañas del noroeste y el centro de China, pasando por el sur y el este del Tíbet y el norte de Birmania (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Fuente
Límites del área y altitud
Beebe (1918)
Cordilleras altas del sureste del Himalaya, con el Kanchenjunga en el centro; para la forma nominal, Nepal, el límite sur del Tíbet y el norte de Sikkim nativo, y hasta el extremo oeste de Bután; zona de vida de 9.000 a 16.000 pies (unos 2.740–4.880 m), en los extremos solo rara vez. Ausente de Darjeeling. Las formas orientales llegan al Tíbet, Yunnan, Sichuan y Gansu (Beebe, 1918).
Delacour (1977)
Montañas de Asia central, de Nepal por el Tíbet y el norte de Birmania al noroeste de China; solo en la zona alta, cerca de la nieve, normalmente entre 11.000 y 15.000 pies en verano (unos 3.350–4.570 m), bajando en invierno hasta unos 9.000 pies (unos 2.740 m), nunca por debajo de 7.000 (unos 2.130 m) (Delacour, 1977).
Howman (1979, 1996)
De Nepal por el Tíbet y el norte de Birmania al noroeste de China; entre 11.000 pies (3.300 m) y 15.000 (4.500 m) en verano; unos 9.000 pies (2.700 m) en invierno (Howman, 1979; Howman, 1996).
Johnsgard (1986)
Del Himalaya de Nepal al este por el Tíbet y Sikang hasta el Nan Shan en Tsinghai y Kansu, y por el norte de Sichuan hasta el sur de Shensi y Honan vecino; sur desde Sikang hasta el noroeste de Yunnan y el noreste de Birmania. Sedentario, cría entre unos 10.000 y 15.000 pies (3.050–4.570 m) y baja hasta unos 7.000 pies (2.130 m) en invierno en algunas regiones (Johnsgard, 1986).
Madge y McGowan (2002)
Del oeste de Nepal (Rara y Jumla) al este por el noreste de la India, Bután y el noroeste de Myanmar, y de ahí al norte por el Tíbet, Yunnan y Gansu hasta Sichuan y Shaanxi. Registrada de 2.500 m (presumiblemente en invierno, en Myanmar) a 4.500 m en verano (Himalaya indio y Yunnan) (Madge y McGowan, 2002).
Chintaguay (2006)
Altas montañas del centro de Asia (China, Birmania, India), entre 2.000 y 4.500 m, según la época; en verano, entre 3.000 y 4.500 m; en invierno baja hasta unos 2.000 m (del Campo, 2006).
Wildlife Institute of India (2007)
Himalaya central y oriental (Sikkim y Arunachal Pradesh), sobre todo entre 3.200 y 4.700 m (hasta 1.500 m en invierno) (WII, 2007).
Birds of the World y ficha original
Nepal, India y Bután: 3.200–4.400, 2.750–4.500 y 2.550–4.200 m respectivamente; 3.000–4.500 m en general (BOW, 2020).
Las altitudes antiguas se dan en pies; entre paréntesis, la conversión aproximada.
Hábitat
Beebe describe el hábitat con detalle. El ave vive en la parte alta del bosque de coníferas y en los rododendros u otros matorrales que hay por encima de él, hasta el borde de los campos de nieve, avanzando o retrocediendo con ella: en verano no desciende por debajo del límite superior de los pinos pequeños y llega a los prados alpinos tipo tundra, y en invierno vive en los bosques abiertos de abeto y enebro del borde inferior de su zona (Beebe, 1918; Johnsgard, 1986). En el Himalaya oriental el abeto plateado y el rododendro comparten la franja: a 11.000 pies (unos 3.350 m) predominan los abetos, y dos o tres mil pies más arriba cede el bosque a un matorral denso de rododendro; en partes de Nepal prefiere los manchones de bambú de montaña (Beebe, 1918). Johnsgard cita para la forma de Geoffroy (geoffroyi) abetos, alerces y robles, rododendros arbóreos que arriba se hacen arbustivos, y prados alpinos a unos 16.000 pies (4.880 m), y para kuseri, jungla de bambú junto a la nieve (Beebe, 1918; Johnsgard, 1986).
El Wildlife Institute of India lo resume así: bosque abierto de abeto y rododendro, matorrales de rododendro, abedul y enebro, con preferencia por los macizos de bambú denso y muchas veces cerca de manchas de nieve (WII, 2007). Para Madge y McGowan, el verano transcurre en los prados alpinos sobre el límite del arbolado y en el matorral y bosque subalpinos de debajo, con bambú, rododendro, enebro y pino; en invierno desciende, empujado por la nieve, a bosques abiertos de abeto, enebro y otras especies, y la pendiente, la orientación y la climatología locales condicionan la altitud en que cada hábitat se encuentra (Madge y McGowan, 2002).
Beebe pinta, además, tres paisajes: la pradera alpina de las colinas Nanshan, en el centro-norte de China, que tras el deshielo se llena de flores y donde las perdices anidan entre los capullos, arrancan los brotes y rascan la tierra buscando larvas, y en otoño, cuando los pétalos caen y quedan las cápsulas y las bayas de semilla dura, pasean con sus pollos hasta la primera helada negra; las pasturas de Yunnan, donde los vientos de las nieves atraviesan los pasos y solo crecen bambúes enanos y hierba, y las aves duermen en los árboles pero comen en las praderas altas; y las crestas de Sikkim, tres millas sobre el mar, con tundra de hierba, lirios y enebros rastreros, donde anidan entre los arbustos de los barrancos protegidos (Beebe, 1918).
Del oeste (Rara, Jumla) al este; matorrales de rododendro y subalpinos entre 3.200 y 4.400 m; conocida en más de 20 localidades (Langtang, Sagarmatha, lago Rara y Makalu Barun, entre otras). Beebe cuenta que el maharajá le escribió que los cazadores nepalíes no la conocían al oeste de Katmandú, sino al norte y al este, hacia el Everest y el Kanchenjunga. En un estudio de Nepal se contaron entre 6 y 9 parejas en una zona de 1,2 km².
Madge; BOW; Beebe; Johnsgard
India: Sikkim y Bengala Occidental
En Sikkim es el ave estatal; Beebe la dio presente en todo el Sikkim nativo, pero ausente del distrito de Darjeeling (y desaparecida de la parte sur de la cordillera de Singalila hacia 1900). Hoy se conoce en el parque nacional de Singalila, en Bengala Occidental, por encima de los 3.200 m, cerca de Sandakphu.
Beebe; WII
India: Arunachal Pradesh
En el estado se encuentra la forma kuseri (llamada «de los Mishmi»); entre las zonas con la especie, el bosque de reserva de Ditchu y el área de Koloriang–Sarli–Damin. También hay un registro de la forma tibetana en el distrito de Tawang.
WII
Bután
Se observa sobre todo entre 2.550 y 4.200 m (con un registro a 1.600 m). Ludlow situaba la frontera entre las formas cruentus y tibetanus entre las cordilleras de Cheli-La y Donga-La, en el centro del país; la ficha original cita el parque nacional de Thrumshingla. Las creencias budistas parecen protegerla.
Delacour; BOW; Madge
Tíbet
Sur y este del país. Beebe sitúa a geoffroyi en un rectángulo entre los 92° y 102° de longitud este y los 29° y 31° de latitud norte; Johnsgard señala que tibetanus pasa a kuseri entre los 92° y los 93° de longitud este (Johnsgard, 1986).
Beebe; Johnsgard
Myanmar
Noreste, en la frontera con Yunnan, hasta la divisoria Shweli–Salween (forma marionae); sin datos recientes, pero antiguamente por encima de los 2.500 m.
Delacour; Johnsgard; BOW
China
Noroeste de Yunnan (rocki, clarkei, holoptilus, kuseri), Sichuan (geoffroyi, berezowskii, annae), Gansu y Qinghai (michaelis, beicki, berezowskii) y Shaanxi, en los montes Qinling (sinensis), hasta el suroeste de Henan; más de 70 localidades. Se conoce en las reservas de Wolong y de Foping.
Aves gregarias, confiadas y muy corredoras, que siguen la línea de nieve.
Realiza desplazamientos altitudinales condicionados por la nieve: en verano aparece alrededor del límite del arbolado y en los prados alpinos situados por encima, y en otoño desciende a bosques abiertos de abetos y enebros en el extremo inferior de su rango. Descansa en grupo, ya sea en los árboles o en el suelo. (BOW, 2020)
Bandadas y vida social
Beebe describe un ciclo anual de la sociabilidad: hacia octubre, las familias que han criado en una misma zona se funden en una bandada compacta de quince a cuarenta aves (a veces es una sola familia de seis u ocho), que se mantiene unida todo el invierno, alimentándose y durmiendo en estrecha compañía; los sexos están a partes iguales o con un ligero exceso de machos (Beebe, 1918; Johnsgard, 1986). En las demás regiones se citan grupos de unas diez a treinta aves (Johnsgard, para Geoffroy y otras), de diez a veinte o más (Delacour), de cinco a diez, a veces más de 30 (Wildlife Institute of India), de cinco a 30 y hasta 60 o 70 (Madge y McGowan); en kuseri, Bailey vio grupos de diez a veinte y de hasta cuarenta (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; WII, 2007). El tamaño de la bandada es mayor a principios del invierno que al final (Madge y McGowan, 2002).
Ignoramos cuándo se disuelven las bandadas antes de la cría; Johnsgard supone que poco antes de anidar, y Grahame, en Nepal, las halló deshechas a finales de abril (Johnsgard, 1986). Delacour precisa que en la época de cría se separan en parejas (Delacour, 1977). Las bandadas se reconstruyen en otoño con la fusión de las familias; Beebe cuenta que de una bandada de al menos 35 aves de la forma de Geoffroy se mataron tres adultos y seis jóvenes aún a medio crecer, lo que indica que los grupos se forman ya antes de que los pollos estén crecidos (Beebe, 1918). En verano, según la ficha original, se forman grupos de machos subadultos y de machos cuyas hembras incuban (BOW, 2020).
Tranquilidad, huida y reposo
Beebe subraya que, como muchos habitantes de grandes altitudes, los ensangrentados no son recelosos: salvo que hayan sido perseguidos, prefieren observar con curiosidad cualquier objeto extraño a huir, y la bandada transmite sus sospechas más con la postura que con la voz: cuando un ave se yergue y mira fijamente algo, todas dejan de comer y se quedan inmóviles hasta que pasa la sospecha (Beebe, 1918). Johnsgard los considera quizá el más manso de todos los faisanes, y precisamente por ello expuesto a la extinción local si no se controla la caza; Madge y McGowan indican que son muy confiados cerca de los monasterios budistas donde nadie los molesta (Johnsgard, 1986; Madge y McGowan, 2002). Pero, según Beebe, los ensangrentados no admiten la cercanía de las viviendas del hombre y desaparecen pronto de los alrededores de un campamento, aunque no sean aves recelosas (Beebe, 1918).
La marcha habitual es un paso lento, como de gallina, con la cola baja, al estilo de las perdices; en terreno accidentado la cola se levanta, sin abrirse. Rara vez vuelan, incluso alarmadas; si se las sorprende de golpe, la bandada se levanta en todas direcciones, como las codornices, en un vuelo plano, directo y breve, y al posarse prefieren correr cuesta arriba, hasta el abrigo del rododendro; si hay árboles y las acosa un perro, se suben a las ramas bajas; ante un peligro menor, escapan a pie con el cuello estirado y la cabeza y la cola altas (Beebe, 1918; Johnsgard, 1986). Bailey y Inglis, que observaron aves cautivas, vieron que no usan las alas más que para subirse al dormidero (Delacour, 1977).
Durante el día se alimentan activamente, y por la noche duermen juntas, en árboles (abetos en invierno, rododendros bajos o matorral en primavera), en matorrales o en el suelo; a veces repiten dormidero varias noches, y en el suelo se agrupan al abrigo de una peña o de un bloque, mirando hacia fuera, como las codornices (Beebe, 1918; Johnsgard, 1986; WII, 2007). Hooker había escrito que en invierno se entierran en la nieve, y de su única frase muchos autores sacaron un hábito; Beebe lo duda, porque la niebla helada nocturna sella la superficie con hielo y haría el refugio peligroso, y cree que, si ocurre, es accidental, por quedar el grupo cubierto por una nevada; Johnsgard y Grahame lo ponen en duda también, ya que sus montañas están llenas de cuevas y de bloques bajo los que refugiarse (Beebe, 1918; Johnsgard, 1986). Madge y McGowan, en cambio, anotan que sabe excavar en la nieve para comer (Madge y McGowan, 2002).
Movimientos estacionales
Beebe observó que cada bandada se queda en un mismo espolón de la montaña; el desplazamiento altitudinal está marcado por el avance y el retroceso de la nieve, y las aves bajan solo lo necesario, a menudo manteniéndose cerca de la línea de nieve todo el año. En primavera se produce un ascenso lento e irregular, y en verano ocupan las zonas altas (Beebe, 1918). En alturas de Sikkim las tormentas de finales de primavera pueden cubrir de nieve toda la vegetación y obligar a las aves a retroceder hacia los valles hasta donde la nieve se ha convertido en lluvia (Beebe, 1918). Johnsgard supone que esos desplazamientos son tranquilos y se hacen a pie, y que, en las laderas más resguardadas, la migración puede ser mucho menor (Johnsgard, 1986). Madge y McGowan añaden que el área de campeo aumenta durante la época de cría y disminuye un poco mientras la hembra incuba (Madge y McGowan, 2002).
Relaciones entre los sexos y territorialidad
Casi todos los autores coinciden en que la especie es monógama. Beebe lo dedujo de los informes de cazadores lepchas y tibetanos, que decían que la pareja y las crías siguen juntas durante el invierno, y de que las bandadas que vio tenían casi tantas hembras como machos, lo que coincidía con Blanford; Johnsgard no ve pruebas firmes, pero tampoco motivos para dudarlo, dado el escaso dimorfismo y las exhibiciones sencillas (Beebe, 1918; Johnsgard, 1986). Delacour y Madge recuerdan, sin embargo, que no hay unanimidad: Sheriff, citado por Delacour, observó en tres ocasiones dos machos con una hembra, con los pollos ya corriendo en dos de ellas; sus ayudantes le dijeron que existen tanto la poliandria como la poligamia (Delacour, 1977; Madge y McGowan, 2002). Ludlow y Kinnear (1944) sugirieron también que a veces puede darse poliandria o poliginia (Johnsgard, 1986).
Lelliott observó durante la época de cría que el 71 % de las aves estaban en pareja o en múltiplos de pareja, el 20 % eran machos solitarios y solo hubo una observación de cuatro machos juntos y otra de una hembra sola; por eso lo juzgó monógamo (Johnsgard, 1986). Sobre territorialidad no hay datos fiables en libertad; en cautividad los machos son pendencieros entre sí (Johnsgard, 1986). Grahame vio «formaciones monógamas laxas dentro de las bandadas»: con dos parejas en tres jaulas contiguas comunicadas, cada pareja ocupó una jaula de los extremos y la central quedó como «tierra de nadie», con incursiones ocasionales de los machos o de ambos miembros de una pareja, y mucha persecución de macho a macho o de macho a hembra (Johnsgard, 1986).
Entre los depredadores, el zorro gris constituye la amenaza más importante, y las martas asiáticas, el dhole, la pantera de las nieves y el águila de Nepal figuran entre los más significativos (A. Henache & M. Ottaviani). También son depredadores el águila dorada y el águila de Bonelli (Beebe). Por último, el ser humano contribuye con su caza descontrolada a disminuir el número de estos bellos pájaros, pese a la dificultad de acceder a su hábitat natural. (BOW, 2020)
Beebe tenía poca información de primera mano sobre enemigos y competidores. Cree que los monales y las perdices de las nieves no son competidores serios: los primeros comen de otro modo y las segundas viven aún más arriba, en terreno de pocos matorrales (Beebe, 1918; Johnsgard, 1986). Entre los depredadores considera el peor al zorro gris de los prados alpinos (el carnívoro más común en la zona alta de rododendros), capaz de caer de un salto sobre unas aves de sentidos y velocidad inferiores a los de los verdaderos faisanes, en un terreno de turba espesa y pedregales que amortigua sus pasos; menciona también a una garduña (marta), a los dholes y a los leopardos del Himalaya, y entre las rapaces, al águila real, la única que él vio cazando en el área, y al águila de Bonelli (Beebe, 1918). Beebe encontró señales de dholes junto a un dormidero de matorral de rododendro, pero ninguna en el interior (Beebe, 1918).
La voz
La llamada territorial es una frase peculiar de chillidos roncos y desgarradores, del tipo «glee-glee-keweee!». Emite además diversos graznidos cortos y un «chic» estridente como señal de alarma, un agudo «sree» repetido mientras busca alimento y un trino largo y agudo, emitido por ambos sexos, que sirve aparentemente para mantener el contacto y reagrupar a los miembros dispersos de una bandada cuando ha pasado el peligro. (BOW, 2020)
Beebe observó que, para ser aves tan gregarias, son notablemente silenciosas. En peligro, todos los miembros de la bandada emiten una serie de notas bruscas, seep! seep! seep!; cuando se reagrupan, la llamada de la bandada es esa misma nota alargada y cortada al final, see-e-e-elpe!; y una vez oyó a un macho de la bandada decir algo como silpe-silpe-silpe, lo más parecido a un cacareo que se ha descrito (Beebe, 1918; Johnsgard, 1986). Baker transcribió la alarma como un áspero ship, ship y añadió un sonido semejante al chillido de un milano; para geoffroyi, Beebe recogió de segunda mano un silbido largo, sibilante y arrastrado, seguido de notas más agudas, y otra llamada, de chillidos fuertes y prolongados (Beebe, 1918; Johnsgard, 1986). Przewalski describe la nota de las formas del norte como un silbido largo, claro pero no muy fuerte (Beebe, 1918).
Lelliott (1981) distinguió cinco llamadas de significado definido: un sree agudo, de cuatro a nueve veces por minuto mientras forrajean; un trino agudo de casi un segundo, asociado a una alarma leve y emitido por los dos sexos para mantener el contacto de la pareja; un chillido penetrante, sree cheeu, cheeu, cheeu…, con dos a seis notas cheeu, que reúne a los dispersos tras una separación (las aves parecen reconocer las llamadas de su propia bandada y rechazan las de otra); un chic estridente repetido cada una o dos segundos, de alarma; y un zumbido de alrededor de un segundo, solo de los machos, quizá producido por las plumas al abrir la cola en la exhibición (Johnsgard, 1986). El Wildlife Institute of India anota un chuck repetido y un fuerte y rasposo kzeeuuk-cheeu-chee(WII, 2007). Beebe cita la extrañeza de Hooker, que afirmó que «rara vez o nunca» canta, y la vaguedad de buena parte de la literatura sobre el tema (Beebe, 1918).
08
Alimentación
Brotes, musgo, bayas y semillas, y una despensa inesperada en los capullos de los lirios.
En libertad, los faisanes ensangrentados se alimentan de brotes de enebro y de bambú, bayas, musgo, pequeños frutos y semillas; en ocasiones buscan insectos entre la hierba. Son seguidores fieles de la línea de nieve y se desplazan junto a ella según avanza la estación; su dieta es esencialmente vegetal e incluye musgos, líquenes, brotes de coníferas y helechos, además de semillas de pino y bayas, y la complementan de forma ocasional con pequeños invertebrados, como caracoles, orugas y escarabajos. (BOW, 2020)
Dieta estacional y comportamiento alimentario
En Nepal se alimenta sobre todo de musgo, hojarasca y brotes de hierba; los excrementos primaverales contenían restos de élitros de escarabajo y captura también otros insectos. En otoño aprovecha pequeños frutos, hojas, semillas, esporas de musgo, brotes de bambú, bayas y escaramujos, y en invierno parece depender de brotes de abeto y enebro, bayas, musgo y hojas de bambú. Tras fuertes nevadas se ha observado comiendo vainas de semillas de lirio y los insectos asociados. Busca el alimento rascando el suelo a cualquier hora del día, se alimenta también en ramas cubiertas de musgo y excava en la nieve. (BOW, 2020)
Fuera de la época de cría forma bandadas de entre cinco y 30 aves, a veces de 60 o 70, más numerosas a principios del invierno que al final. En verano se forman grupos de machos subadultos y de machos cuyas hembras incuban; durante la incubación los machos están más vigilantes y las hembras dedican más tiempo a comer. (BOW, 2020)
Beebe, que recorrió el área, añade datos de primera mano: la comida varía según la estación y la localidad. Hooker había comprobado que los ensangrentados cazados en bosques de abeto con fuerte nevada sabían tanto a trementina que casi no se podían comer, por los brotes nuevos de abeto y enebro; Blanford los halló comestibles a finales de septiembre, con una dieta de pequeños frutos, hojas, semillas y cápsulas de esporas de musgo; Hodgson añadió insectos y hierba y señaló que no comen los bulbos que gustan a los monales y a los pandas. Beebe suma los brotes tiernos de bambú, las bayas escarlatas de una trepadora y las semillas del escaramujo de Sikkim (Beebe, 1918; Johnsgard, 1986). No se les puede seguir el rastro por las huellas de forrajeo, porque, a diferencia de los monales, no tienen lugares fijos de rascado, aunque rascan con ganas, levantando las enredaderas y el musgo en busca de alimento animal (Beebe, 1918; Johnsgard, 1986).
La despensa de los lirios
Un episodio de Beebe se ha vuelto célebre. A mediados de abril, en Nepal, cerca de la frontera con Sikkim, una nevada fuera de temporada cubrió el suelo y ocultó semillas y hojas. Una familia de cinco ensangrentados parecía saltar sobre unos tallos secos o doblarlos con el pecho. Beebe, tras ahuyentarla, examinó las cápsulas de semilla de los lirios del año anterior y comprobó que el viento y la nieve habían derramado la mitad de las semillas, y que los insectos adormecidos por el frío se habían refugiado dentro. De seis macizos de lirios, cápsulas por cápsula, la cuenta fue esta: nueve estaban vacías (salvo por unas semillas); veintiséis contenían una tijereta cada una; cuatro, dos tijeretas; el resto, escarabajos de varias especies (una nueva para la ciencia), larvas de mosca, arañas pequeñas, polillas y otros insectos. Casi la mitad de las cápsulas contenía una o más tijeretas, y todos los insectos estaban vivos, entumecidos (Beebe, 1918). Beebe dedujo que el hábito de estas aves de golpear y doblar los tallos del lirio explica cómo pueden mantenerse a esas alturas estériles cuando todo lo demás está helado y cubierto de nieve (Beebe, 1918; Johnsgard, 1986).
Para las formas de Asia oriental, David anota brotes, hojas y granos en la dieta de geoffroyi, y Beebe halló que las mollejas de tres aves cazadas en abril sobre la nieve solo contenían musgo (Beebe, 1918). Las de kuseri comían semillas y vegetales mezclados con insectos (Beebe, 1918). Chintaguay añade que, cuando el tiempo se vuelve muy inestable y hay demasiada nieve, estas aves buscan comida con los monales en las huertas de los campesinos, y revuelven el suelo en busca de patatas y cebollas (del Campo, 2006). Entre las observaciones en cautividad, Inglis siguió durante catorce horas a un macho y dos hembras en un recinto de Gangtok: calculó que más del 90 % de su alimento era vegetal, vio comer pocos insectos y comprobó que corrían a la puerta cuando les llevaban lechuga u hojas de coliflor; el observador no los vio beber, pero le dijeron que solo lo hacen en agua corriente (Delacour, 1977).
En cautividad
En cautividad se puede suministrar un pienso granulado, que puede acompañarse de insectos, fruta y verduras. Algunos criadores emplean también como complemento gusanos de harina, zanahorias, pasas, cebolla o patatas. En principio, una buena dieta asegura una vida saludable y, por lo tanto, contribuye a que los reproductores se encuentren en perfectas condiciones. (BOW, 2020)
Las dos aves que llegaron a Londres en 1911 eran, según Frost, de gusto fino y poco aficionadas al grano (en el viaje desde las colinas los nativos las habían alimentado solo con arroz remojado); en pajarera disfrutaban de ensaladas (lechuga, cebolla, patata y zanahoria picadas) y de insectos de todo tipo, como cucarachas, escarabajos, saltamontes y gusanos de harina (Beebe, 1918; Delacour, 1977). Grahame comprobó que pastan mucho: en sus pajareras mantuvieron un cuadro de hierba tan corto como un césped; comían también pellets de alfalfa y de pavo, maíz partido y una mezcla de huevo cocido, manzana a dados, pasas, zanahoria, gusanos de harina y comida para aves de pico blando, y otros criadores observaron su predilección por la lechuga, la cebolla y la patata picadas (Johnsgard, 1986). A las 24 horas de nacer, los pollos ya pastaban y hacían los movimientos de arranque como los gansos (Johnsgard, 1986). Howman resume que es una especie «principalmente vegetariana con énfasis en la hierba y la fruta» (Howman, 1979; Howman, 1996). Recomendación editorial: ofrecer hierba y verduras frescas todo el año, fruta, y un pienso de buena calidad, y evitar los cambios bruscos de dieta.
09
Cortejo y exhibición
Copete erguido, pecho hinchado y vueltas en círculo, con peleas entre los machos.
El cortejo del faisán ensangrentado es un tema casi virgen: las únicas descripciones de libertad proceden de las notas que cazadores lepchas y tibetanos dieron a Beebe, y los detalles más finos, de las aves cautivas de Grahame y de una única observación de campo de Lelliott (Beebe, 1918; Johnsgard, 1986). Johnsgard lo atribuye a la rareza y la discreción del ave (Johnsgard, 1986).
La parada nupcial
Según los informantes de Beebe, durante el cortejo el macho abre la cola y las alas, dejando caer estas últimas, levanta la cresta, hincha las plumas del pecho y se pavonea ante la hembra dando vueltas y vueltas (Beebe, 1918). Johnsgard cree que la descripción corresponde a la «exhibición del vals» típica de los faisanes, aunque no está seguro, y echa en falta saber si hay conductas de ofrecimiento de alimento (Johnsgard, 1986). Entre los machos, el cortejo provoca peleas feroces (Beebe, 1918); la ficha original describe cómo vuelan pecho contra pecho, se muerden las carúnculas y saltan con patadas dirigidas al pico del rival (véase el capítulo de reproducción).
Grahame, que observó el cortejo en cautividad, describe una exhibición parecida a la del koklass, pero con más «urgencia» en los movimientos y menos ruido: el único sonido que oyó fue un purrrh que el macho emite al abrir de pronto las plumas de la cola; por lo demás, la exhibición consistió en erguir la cresta y mucha persecución, sin vocalizaciones evidentes (Johnsgard, 1986). Lelliott, que siguió a las aves en plena época de cría, no vio ningún cortejo, pero sí una cópula: la hembra se subió a una roca y emitió el trino antes de agacharse; el macho se acercó y la cópula duró de 10 a 15 segundos, con los dos emitiendo llamadas suaves; después siguieron comiendo con tranquilidad (Johnsgard, 1986).
Cuándo empieza
El proceso comienza hacia mediados de abril, o a finales de ese mes según otras fuentes, y en Bután las parejas se forman en abril (BOW, 2020). Grahame comprobó en Nepal que a finales de abril las bandadas ya se habían dispersado, pero que la puesta no había empezado, y que esta coincide con la floración del rododendro (Rhododendron campanulatum) (Johnsgard, 1986). El calendario de la ficha técnica del segundo volumen del libro del autor sitúa la época de puesta a mediados de abril en el hemisferio norte (Hernández García, 2014).
10
Reproducción en la naturaleza
Un nido en el suelo, bajo un arbusto o en un hueco, entre abril y junio, y los dos padres con los pollos.
Son aves monógamas, aunque se han citado casos de poligamia y de poliandria. La parada nupcial no es muy compleja: el macho eleva el copete, infla el pecho y se pavonea en torno a la hembra. Entre los machos son habituales los enfrentamientos de cortejo, en los que vuelan pecho contra pecho, se muerden las carúnculas y realizan saltos con patadas dirigidos al pico del rival. El proceso comienza hacia mediados de abril, o a finales de ese mes según otras fuentes; en libertad la puesta se extiende hasta finales de junio y la mayoría de los nidos se encuentra en mayo. En Bután las parejas se forman en abril. La hembra pone entre 7 y 9 huevos por puesta, que se incuban durante 27 días. (BOW, 2020)
EFMAMJJASOND
Parejas y cortejoabril; mediados o finales, según las fuentes
Puestade abril a finales de junio; la mayoría de los nidos, en mayo
Incubaciónunos 27 días; solo la hembra
Muda de los adultosde finales de julio a octubre
Bandadas de inviernofamilias reunidas desde octubre; se disuelven en primavera
Calendario orientativo, basado en pocas observaciones directas de nidos en libertad y en aves cautivas.
El nido
En libertad el nido es una depresión somera en el suelo, forrada con tallos de hierba seca y, según otras descripciones, con musgo, acículas de pino y plumas; la hembra lo excava a menudo bajo montones de paja, entre matorrales, en pequeñas cuevas o en huecos junto a la base de los árboles. Se han hallado cinco nidos entre 3.600 y 3.650 m y uno a 4.000 m. (BOW, 2020)
Beebe recoge de los cazadores lepchas y tibetanos que el nido es un hueco entre hojas muertas y musgo, normalmente junto a una roca o un tocón, en el bosque de rododendros a 12.000–13.000 pies (unos 3.660–3.960 m), y que los huevos, de cinco a diez, se ponen en abril o mayo; añade que son muy buenos para comer (Beebe, 1918; Beebe, 1926). De las formas orientales hay hallazgos concretos: un nido de geoffroyi a 13.500 pies (unos 4.115 m), bajo ramas, en el bosque, al oeste de Tatsienlu, con siete huevos; dos nidos de la forma nominal en Sikkim a unos 12.000 pies, en un hueco rascado entre hojas caídas al pie de unos arbustos de un bosque de pinos; un nido de kuseri con dos huevos a unos 12.000 pies, bajo una mata de bambú, rodeado todavía de nieve; otro en Bután, con cuatro huevos, el 30 de mayo, en un talud bajo un arbusto que lo cubría; y otro de kuseri el 29 de mayo, a 12.000 pies, cerca de Lagong (Tíbet), con seis huevos incubados, en un talud bajo un enebro (Beebe, 1918; Johnsgard, 1986). Baker (1935) cita tres huevos frescos de kuseri a primeros de mayo, y Grahame halló en Nepal un nido el 13 de mayo con siete huevos (Johnsgard, 1986).
En la residencia de Gangtok, Bailey y Inglis vieron cómo una hembra cautiva hacía su nido: sentada bajo un arbusto, recogía hojas, ramitas y raíces del suelo y las remetía bajo el cuerpo; el nido era una simple depresión con algunos tallos de hierba seca bien apretados, muy tapado por el arbusto, al que la hembra entraba siempre desde el este y donde, al incubar, solo asomaban parte del dorso y la cola (Delacour, 1977).
Puesta y huevos
Las cifras de la puesta varían según las fuentes: a los 7 a 9 huevos habituales se contraponen los de 4 a 14 que citan otras fuentes y los de 2 a 7 observados en libertad. Los huevos se depositan a intervalos de dos o tres días. Son de color rosado, con una intensidad variable, aunque también se describen como pardo rosáceos con marcas rojizas y pardo oscuras o como blanco-amarillentos moteados de marrón, y miden aproximadamente 4,5 × 3 cm. La incubación la realiza solo la hembra y, además de los 27 días indicados, otras fuentes citan de 27 a 33 días y, de forma más precisa, de 26 a 29 días en cautividad y unos 37 en libertad. Mientras tanto, el macho vigila el territorio frente a otros machos. (BOW, 2020)
Delacour describe los huevos como de color pardo rosado, profusamente moteados y manchados de pardo intenso, de cinco a doce por puesta (Delacour, 1977). Los de geoffroyi hallados en Sichuan eran de forma elíptica alargada, lisos y casi brillantes, de un fondo ante rojizo pálido con manchas irregulares de varios tonos, el más oscuro pardo rojizo profundo, y por su forma y pigmentación recuerdan más a los de limícolas y láridos que a los de los faisanes; entre los galliformes se parecen a los de lagópodos y gallo lira (Beebe, 1918). Los de las formas del norte (berezowskii, de Sichuan) eran de color blanco cremoso, cubiertos de manchas negruzcas (Beebe, 1918). Un huevo recogido en Gangtok medía 50 × 32 mm y era de un ante claro, parecido a los del koklass, con manchas pardas muy ricas (Delacour, 1977).
27 días (27–33 en otras fuentes; 26–29 en cautividad; unos 37 en libertad) (BOW, 2020)
La mayoría de los datos de puesta y de incubación en libertad procede de informes de cazadores o de aves cautivas; no hay ninguna serie larga de nidos silvestres (Beebe, 1918; Johnsgard, 1986; Madge y McGowan, 2002).
Durante la incubación, la hembra suele hacer una única pausa diaria de más de seis horas, durante la cual los huevos experimentan hipotermia con regularidad. (BOW, 2020)
Los pollos nacen con plumón rufo apagado en las partes superiores, con marcas pardo oscuras, y rufo más pálido por debajo, y ambos adultos los cuidan. En el suroeste de China la eclosión alcanzó el 80 % en un estudio y más del 90 % en otro; la supervivencia de los pollos fue de alrededor del 31 %, con una mortalidad del 62,5 % durante los diez primeros días de vida. Los jóvenes alcanzan la madurez sexual al año de vida. (BOW, 2020)
Grahame comprobó en cautividad que los pollos son al principio muy asustadizos y a menudo se esconden en los rincones; al cabo de 24 horas ya pastan (Johnsgard, 1986). En la residencia de Gangtok los pollos, vistos por primera vez el 20 de junio, murieron poco después, quizá víctimas de las grullas con las que compartían el recinto (Delacour, 1977). El desarrollo es rápido: a los cinco días se distinguen los sexos por el gris de los hombros, a las cinco semanas lucen el plumaje juvenil y a los cinco meses el plumaje adulto está completo (Beebe, 1918; Johnsgard, 1986). Las fuentes tampoco coinciden sobre el momento en que maduran: la ficha original, Howman, Chintaguay y el libro del autor dan un año (BOW, 2020; del Campo, 2006; Hernández García, 2014; Howman, 1979).
Una de las especies más difíciles: sensible a los parásitos, al calor y a las enfermedades de las tierras bajas.
Se trata de una de las especies más complicadas de mantener en cautividad. Son aves que viven en parejas, ya que los machos son muy agresivos entre ellos (puede ser estimulante para la reproducción el hecho de que exista otra pareja cerca). Son animales muy sensibles a los parásitos, por lo que será necesario un control sanitario muy exigente. (Hernández García, 2013)
Estas aves son muy sensibles. Su alojamiento debe ser amplio, estar libre de corrientes de aire y tener el suelo de hierba. La lluvia y la nieve no les molestan, mientras que el sol intenso puede resultarles mortal. La cubierta vegetal es muy importante, ya que mantiene protegidos a los animales: las coníferas y los frutales resultan especialmente adecuados, pues son atractivos, no crecen en exceso y mantienen una temperatura agradable en el interior de la pajarera. (Hernández García, 2013)
Una especie difícil, y por qué
Los autores coinciden en que el ensangrentado es de los faisanes más delicados. Delacour explica que, como muchas aves adaptadas a la vida en las alturas, es muy susceptible a las enfermedades cuando se lleva a altitudes más bajas, y que hasta su época (1977) las pocas aves importadas, de las subespecies cruentus y geoffroyi, no habían vivido mucho (Delacour, 1977). Howman la sitúa entre las especies más difíciles de criar (Howman, 1979; Howman, 1996); Gerrits la cuenta entre las muy raras y muy caras (Gerrits, 1974); y Chintaguay recuerda que son «muy susceptibles a las infecciones que abundan en las bajas alturas» (del Campo, 2006). Johnsgard anota que las aves de Grahame fueron muy propensas a enfermedades como la aspergilosis y la tuberculosis, y a infecciones del hígado, de los riñones y del ciego (Johnsgard, 1986). Delacour cita, en las aves de Clères de 1938, una difteria aviar (roup) incurable (Delacour, 1977).
La historia de las colecciones (véase el capítulo de historia) lo confirma: de las aves llevadas a Europa antes de la Segunda Guerra Mundial ninguna vivió mucho; la que mejor lo hizo, un macho de geoffroyi, duró 14 meses en el zoo de Londres (Beebe, 1918; Delacour, 1977). En cambio, en su propio país las aves pueden mantenerse bien: las tres de la residencia de Gangtok llevaban más de tres meses cuando Inglis las observó, con muy buen aspecto, y se esperaba que vivieran mucho (Delacour, 1977).
Instalaciones
Howman recomienda una pajarera de 150 pies cuadrados (unos 14 m²) con suelo de arena (Howman, 1979; Howman, 1996). Chintaguay y el libro del autor insisten en lo mismo: alojamiento amplio, sin corrientes de aire, con hierba, con cubierta vegetal de coníferas y frutales, y protegido del sol intenso (del Campo, 2006; Hernández García, 2013). Grahame mantuvo sus aves en tres jaulas contiguas comunicadas, donde cada pareja ocupó una de las de los extremos y la central quedó como «tierra de nadie» (Johnsgard, 1986); y el recinto de Gangtok en que Inglis observó a tres aves de la forma de Sikkim durante catorce horas medía 6.473 «pies» (la unidad no está clara; si son pies cuadrados, unos 600 m²), de modo que las aves podían moverse con tanta libertad como en estado natural (Delacour, 1977). Recomendación editorial: dar a cada pareja la mayor superficie posible, con hierba, arbustos, abrigo del sol y suelo drenado.
Carácter y convivencia
Los ensangrentados son muy confiados: el macho del recinto de Gangtok llegó a pastar al alcance del brazo del observador, se subió a su lado y comió lechuga de su mano, mientras que las hembras eran más recelosas (Delacour, 1977). Los que los bhotias llevan a veces a Darjeeling parecen criados a mano, jóvenes, muy mansas y sin marcas de golpes contra el techo de las jaulas (Beebe, 1918). Los machos, en cambio, no toleran a otros: en el pequeño grupo de Frost se picoteaban y se arrancaban plumas (Beebe, 1918). Delacour refiere que en el recinto de Gangtok un macho persiguió largo rato a un faisán de collar (Phasianus torquatus) hasta que este se subió a la percha para dormir, y que un orejudo del género Crossoptilon mató a otro macho golpeándole la cabeza (Delacour, 1977). La mezcla con otras especies exige, por tanto, vigilancia.
Johnsgard recoge los datos del mayor Grahame, que ha criado la especie más que nadie. De dos parejas mantenidas en jaulas comunicadas, las hembras pusieron en total 15 huevos entre el 20 de abril y el 16 de mayo, y a veces una hembra puso en el nido de la otra; la incubación duró de 26 a 29 días (media de 27) y se hizo de forma artificial. Obtuvo huevos fértiles de una hembra de un año con un macho mayor y de un macho con dos hembras. Las hembras preferían nidificar en cestas colocadas a uno o dos metros del suelo. De 62 huevos puestos nacieron 29 pollos, y se criaron 12 (Johnsgard, 1986).
Roles (1976) resume la misma experiencia con más detalle de manejo. Los pollos, incubados bajo gallinas y eclosionados en incubadora, se criaron con una gallina sedosa adoptiva: alimento de iniciación para pavos, yema de huevo duro los dos primeros días, gusanos de la harina troceados y lenteja de agua (Lemna minor); tras unos días confinados bajo una lámpara de calor, pasaban a la hierba a las dos semanas y a un aviario permanente a las cuatro (Roles, 1976). Es una experiencia histórica concreta, no una dieta completa validada para todos los criadores, y el relato menciona además un tratamiento preventivo con antibiótico que no debe tomarse como pauta actual (Roles, 1976). Roles añade que Grahame crió primero la especie en aviarios plantados de hierba y más tarde la trasladó a recintos con una capa profunda de arena sobre tierra, para reducir el riesgo de enfermedades y parásitos, y que las aves siguieron reproduciéndose tras el cambio; la razón sanitaria es la del autor, no un resultado experimental, y no demuestra que la arena elimine los parásitos ni que sea siempre superior al césped (Roles, 1976).
Incubación artificial
Para la incubadora valen los parámetros generales de los criadores de faisanes, con la duración propia de la especie, 27 días en la ficha técnica del libro del autor y de 27 a 28 en la tabla de postura de Chintaguay (Grahame obtuvo de 26 a 29 en sus aves) (del Campo, 2006; Hernández García, 2014; Johnsgard, 1986). La pauta de del Campo, medida siempre «a la altura media del huevo», es la que se resume a continuación; el resto (conservación de los huevos, calor de crianza, espacio) es la descrita en la ficha del faisán dorado(del Campo, 2006):
Fase
Valor recomendado
Conservación de los huevos antes de incubar
13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo
Temperatura de incubación
37,5 °C durante toda la incubación, hasta que el pollo se seca
Humedad relativa
55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días
Volteo
3 o 4 veces al día, hasta tres días antes de la eclosión
Últimos tres días
Sin volteo; paso a una nacedora
Duración para esta especie
27 días (27–28 en la tabla de postura; 26–29 en las aves de Grahame)
Los pollos son al principio muy asustadizos y se esconden en los rincones, y a las 24 horas ya pastan; por eso conviene ofrecerles hierba y verdura fresca desde el primer día, además del pienso de iniciación (Johnsgard, 1986). Son sensibles a las infecciones y exigen, como los adultos, un control sanitario estricto; en los recintos de cría deben seguirse las pautas de calor, espacio y alimentación de los pollos de faisán descritas en la ficha del dorado, con un manejo aún más cuidadoso (del Campo, 2006; Hernández García, 2013).
La ficha técnica y la anilla del libro del autor
El apéndice práctico del segundo volumen recoge para el faisán ensangrentado 7–9 huevos, 27 días de incubación, puesta a mediados de abril en el hemisferio norte y madurez sexual al año; la anilla recomendada es de 9–10 (la tabla no indica la unidad; otras partes del libro hablan de milímetros), la más pequeña de todas las especies de la tabla (los tragopanes, los monales y los orejudos llevan una de 14, y el koklass, de 12) (Hernández García, 2014). El mismo libro incluye una guía de causas probables de fallos de eclosión y un resumen de las enfermedades del faisán (coccidiosis, tricomoniasis, helmintiasis, salmonelosis, pasteurelosis y micoplasmosis, entre otras), de carácter general, en el que la coccidiosis es la dolencia más frecuente (Hernández García, 2014). Recomendación editorial: dado que el ensangrentado es especialmente sensible a los parásitos, la prevención (suelo seco y limpio, rotación de los parques, lotes pequeños y desparasitación regular según indique un veterinario) debe pesar más que el tratamiento.
Un programa de cría que no se recomienda
En la lista de programas regionales de conservación de la EAZA (TAG Galliformes, 2000) que reproduce el segundo volumen del libro del autor, el faisán ensangrentado figura como «no recomendado»: son las especies que no precisan de planes de conservación ex situ porque los ejemplares son insuficientes o inexistentes, o bien muy abundantes y no es preciso actuar (Hernández García, 2014). Es coherente con que haya muy pocos ejemplares en cautividad (unos 25 en todo el mundo en el censo de 1976) y con que la especie no esté amenazada en libertad (Fuller y Garson, 2000; Hernández García, 2014; Howman, 1979).
Longevidad en cautividad
El macho de geoffroyi que llegó al zoo de Londres el 19 de julio de 1875 y vivió hasta el 19 de septiembre de 1876 (14 meses) fue durante mucho tiempo el récord del género en Europa (Beebe, 1918; Delacour, 1977). Roles (1976), que visitó Daws Hall en febrero de 1975, vio allí la pareja reproductora original de Grahame, que llevaba cinco años en su poder, de modo que los catorce meses del ejemplar de Londres no fueron el mayor tiempo de supervivencia recogido en la literatura consultada; el dato acredita al menos cinco años de mantenimiento de esa pareja, aunque no permite saber la edad real de las aves (Roles, 1976). Roles añade que, antes de las aves de Grahame, el récord de longevidad en cautividad era de solo 17 meses, frente a los 14 meses que detallan Beebe y Delacour, y no identifica ese ejemplar, por lo que ambas cifras se dejan atribuidas, sin conciliarlas (Beebe, 1918; Delacour, 1977; Roles, 1976).
12
Estado de conservación
Una especie de preocupación menor, extendida y poco amenazada, pero con subespecies de áreas muy reducidas.
LC
Preocupación menor
Población estable y extendida. Región: Himalaya.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La UICN la clasifica como de preocupación menor y la especie figura en el Apéndice II de CITES. Su área de distribución supera los 650.000 km², aunque el hábitat realmente disponible es mucho menor porque, al vivir en la parte alta de las montañas, se encuentra fragmentado de forma natural. Aunque la población global se considera estable en conjunto, más de la mitad de los efectivos está amenazada por la pérdida y fragmentación del hábitat, la caza furtiva y las molestias derivadas de la presencia humana, y la especie probablemente declina en todas partes salvo en Bután, donde las creencias budistas parecen protegerla. (BOW, 2020)
Se conoce en más de 70 localidades de China, en más de 20 de Nepal (Langtang, Sagarmatha, lago Rara y Makalu Barun, entre otras) y en áreas protegidas de Bután como el Parque Nacional de Thrumshingla; es además el ave estatal de Sikkim. Las presiones principales son la tala, el sobrepastoreo del sotobosque, la conversión de tierras a la agricultura y la caza. Aunque no es un faisán extremadamente amenazado en su hábitat natural, la fragmentación de los bosques está limitando su variabilidad genética, lo que puede convertirse en un problema para su conservación a medio y largo plazo. Cinco subespecies (kuseri, rocki, marionae, holoptilus y clarkei) comparten un área combinada de menos de 50.000 km², con quizá solo 25.000 km² de hábitat, y podrían ser vulnerables. (BOW, 2020)
Desde que se valora su situación, las listas han puesto siempre al faisán ensangrentado en la categoría de menor riesgo, aunque con matices: faltan datos de población en buena parte de su área, y las subespecies de pequeña área del Himalaya oriental y de la frontera entre Yunnan y Myanmar pueden estar en una situación peor que la media (BOW, 2020; Fuller y Garson, 2000; Madge y McGowan, 2002).
Cómo ha ido cambiando la valoración
Beebe, en 1918, no daba cifras, pero ya veía cómo la caza con lazo y el pastoreo hacían desaparecer al ave de las zonas más accesibles de Sikkim, y creía que el resto de su área corría la misma suerte, aunque más despacio: pese a la altura, cada año había más pastores nepalíes dedicados a atrapar aves con lazos y trampas (Beebe, 1918). En 1986 Johnsgard, con datos de Gaston (1981), la consideraba bastante común en el Himalaya central y oriental, con su hábitat sin amenazas importantes, y de situación segura; la de las poblaciones chinas era peor conocida (Johnsgard, 1986). El plan de acción de la UICN y la WPA (2000) la sitúa en la categoría de riesgo bajo, preocupación menor: un área global de más de 500.000 km², aunque con poblaciones fragmentadas (Fuller y Garson, 2000). Madge y McGowan (2002) la consideran no amenazada a escala global, pero ocupando probablemente un área mucho menor de la que sugieren sus límites geográficos (Madge y McGowan, 2002). El Wildlife Institute of India (2007) la da como «residente y bastante común» en la India, y la incluye en la categoría de preocupación menor en su lista de los galliformes del país (WII, 2007).
Año
Fuente
Valoración
1918
Beebe
Sin cifras. Desaparecida de la parte sur de la cordillera de Singalila por los lazos de los guardas forestales y los pastores; el resto de su área corre el mismo riesgo (Beebe, 1918).
1986
Johnsgard (con Gaston, 1981)
Bastante común en el Himalaya central y oriental, hábitat probablemente sin amenazas importantes y situación segura; estado de las poblaciones chinas, poco conocido (Johnsgard, 1986).
2000
Fuller y Garson (UICN/WPA)
Riesgo bajo, preocupación menor. Área global de más de 500.000 km², aunque con poblaciones fragmentadas (Fuller y Garson, 2000).
2002
Madge y McGowan
No amenazada a escala global; el área real es probablemente mucho menor que sus límites. Común y extendida en los lugares adecuados. Pocos datos de población (Madge y McGowan, 2002).
2007
Wildlife Institute of India
Residente y bastante común en el Himalaya central y oriental de la India (Sikkim y Arunachal Pradesh); CITES II; Anexo I de la ley india de protección de la vida silvestre (WII, 2007).
2020
Birds of the World y ficha original
Preocupación menor. Población estable en conjunto, pero con más de la mitad de los efectivos amenazada por la pérdida de hábitat, la caza furtiva y las molestias; probablemente en descenso en todas partes salvo en Bután (BOW, 2020).
Las valoraciones no son comparables entre sí: cada una usa un método y un área distintos, y en ningún caso hay un censo completo.
Densidades y recuentos locales
Los pocos datos locales de densidad vienen de Nepal, donde Lelliott y Yonzon (1981) contaron entre 6 y 9 parejas en una zona de estudio de 1,2 km² (Johnsgard, 1986). Beebe cuenta que, en la cordillera de Singalila, un cazador inglés mató 36 aves en un solo día, el 10 de noviembre de 1880, cerca de Sandakphu, 22 de ellas machos; en 1900 escribía que ya no se veía la especie a lo largo de la frontera nepalesa por culpa de los guardas forestales, que ponían lazos todo el año (Beebe, 1918). Beebe confirmó diez años después la ausencia en el sur de la cordillera (Beebe, 1918).
LCUICN
preocupación menor
+650.000km²
área de distribución; hábitat disponible mucho menor
70+localidades
conocidas en China; más de 20 en Nepal
13
Amenazas y protección
Caza con lazos, tala y sobrepastoreo en el límite alto del bosque, y el efecto de la fragmentación.
La principal presión sobre el faisán ensangrentado ha sido siempre la caza, favorecida por su mansedumbre, mientras que los cambios de uso del suelo (tala, ganadería y agricultura) afectan sobre todo a las formas de pequeña área de Yunnan y de Myanmar (Beebe, 1918; BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002). La dificultad de acceso a las montañas altas ha protegido buena parte de su hábitat (Johnsgard, 1986; Madge y McGowan, 2002).
Amenaza
Detalle
Fuente
Caza con lazos y trampas
Los pastores nepalíes los capturan con lazos y trampas de caída; en los bosques de Singalila los guardas forestales los pusieron durante todo el año y exterminaron al ave en el sur de la cordillera; los mishmi los cogen con lazos en una valla de ramitas con puertas; los chinos, con una demanda creciente de aves comestibles en el oeste de Sichuan.
Beebe
Caza para consumo
En el parque nacional de Singalila (Bengala Occidental) es una de las especies cazadas con más frecuencia, a un ritmo medio estimado de 1,67 aves por hogar y año; la especie tiene una distribución muy restringida en el territorio indio.
WII
Mansedumbre
Quizá es el más manso de los faisanes y puede extinguirse a escala local si no se controla la caza.
Johnsgard
Tala, sobrepastoreo y cultivos
Retirada de madera, sobrepastoreo del sotobosque de arbustos y cultivo creciente son las presiones citadas; las subespecies del Himalaya oriental y de los valles hondos de la frontera entre Myanmar y Yunnan (Mekong y Salween) pueden estar amenazadas.
Madge; BOW
Fragmentación y genética
La fragmentación del bosque limita la variabilidad genética, un problema para la conservación a medio y largo plazo.
Hernández; BOW
Depredadores naturales
Zorro gris, martas, dhole, pantera de las nieves, águilas.
Beebe describe una situación que no ha cambiado mucho en un siglo: cada año hay más demanda de carne de oveja y aumentan los pastores nepalíes, que parecen pasar casi todo el tiempo cazando aves de toda clase, con lazos y con trampas de caída; pero los ensangrentados sufren mucho menos que los tragopanes (Beebe, 1918). Considera también que los ingleses de la India no los estimaban como pieza de caza, por su confianza y su costumbre de correr; pero cuando un perro los acorrala en un árbol y se quedan mirando al ladrido, se puede abatir a toda una bandada, una tras otra, como ha ocurrido a menudo (Beebe, 1918). En el oeste de Sichuan los tibetanos rara vez los capturan, pero los chinos, con su creciente demanda de aves comestibles y su inmigración hacia el oeste, harán más rara a la especie (Beebe, 1918). Los mishmi cercan una ladera con una valla baja de ramitas, dejan unas puertas del ancho de un ave y colocan en cada una un lazo de raíces finas sujeto a un bambú flexible; las aves, al comer, siguen la valla hasta una puerta y la primera que pasa suele quedar atrapada (Beebe, 1918).
En la India, el informe del Wildlife Institute of India encontró que el faisán ensangrentado y el tragopán sátiro eran las dos especies cazadas con más frecuencia en el parque nacional de Singalila; la tasa media de caza era de 1,67 ± 0,06 aves por hogar y año en el norte de Bengala, único estado de los estudiados donde se registró la caza de la especie (WII, 2007). El informe subraya que ambas especies tienen una distribución restringida dentro del territorio indio (WII, 2007).
Cambios de uso del suelo
Madge y McGowan ven como amenazas principales la retirada de madera, el sobrepastoreo de los arbustos del sotobosque y el aumento de los cultivos, que fragmentan un hábitat naturalmente disperso, y creen que las subespecies del Himalaya oriental y de los valles profundos de la frontera entre Myanmar y Yunnan podrían estar amenazadas (Madge y McGowan, 2002). La ficha original, basada en Birds of the World, señala que cinco subespecies, kuseri, rocki, marionae, holoptilus y clarkei, comparten un área combinada de menos de 50.000 km² con quizá solo 25.000 km² de hábitat, por lo que podrían ser vulnerables (BOW, 2020). Johnsgard, en cambio, consideraba que lo remoto de su hábitat lo mantendría alejado de la actividad humana en el futuro previsible y que el ave es demasiado pequeña y discreta para ser objeto de caza masiva para deporte o alimento (Johnsgard, 1986).
Protección legal y áreas protegidas
La especie está incluida en el Apéndice II de CITES y en el Anexo I de la ley india de protección de la vida silvestre de 1972 (WII, 2007). Se encuentra en varias áreas protegidas: los parques nacionales de Sagarmatha y Langtang, en Nepal (Madge y McGowan, 2002); el lago Rara y Makalu Barun, en Nepal, y Thrumshingla, en Bután (BOW, 2020); Singalila, en Bengala Occidental (WII, 2007); y las reservas de osos panda de Foping (Shaanxi) y Wolong (Sichuan), en China (Madge y McGowan, 2002). Madge y McGowan señalan que muchos de esos lugares son bastante remotos y es improbable que se pierdan por completo, aunque la degradación continuada del hábitat es una preocupación importante (Madge y McGowan, 2002). En Bután, donde es relativamente común, parece protegida por las creencias religiosas budistas (BOW, 2020; Madge y McGowan, 2002).
14
Subespecies y variación
De 11 a 15 formas, según el autor, que se reemplazan a lo largo del Himalaya y de las montañas de China.
Se reconocen 14 subespecies de faisán ensangrentado, distribuidas a lo largo del arco del Himalaya y el sur de China. A continuación se relacionan junto con su autoría taxonómica y, cuando se conoce, su área de distribución. (BOW, 2020)
El número exacto de subespecies válidas sigue siendo objeto de debate. Algunas de las formas descritas son claramente distintivas, pero otras varían de forma gradual (clinal) entre poblaciones vecinas, por lo que las distintas autoridades taxonómicas reconocen entre 11 y 15 subespecies según el criterio aplicado. Las diferencias afectan sobre todo al plumaje de los machos: la cantidad de rojo o negro en garganta, frente, cuello, pecho y cola, y la presencia o ausencia de tonos rufos en las alas. Birds of the World reconoce las mismas 14 subespecies que esta ficha y precisa su distribución. (BOW, 2020)
I. c. cruentus ocupa el norte de Nepal y el sur del Tíbet adyacente; affinis, Sikkim (nordeste de la India), el oeste de Bután y el Tíbet; tibetanus, el este de Bután y el Tíbet, al este de affinis; y kuseri, el este de Arunachal Pradesh y el Alto Assam (India), el este del Tíbet y el noroeste de Yunnan. I. c. marionae vive en la frontera entre el nordeste de Myanmar y el oeste de Yunnan; rocki, en el valle del Mekong (noroeste de Yunnan); y holoptilus solo se conoce del distrito de Lijiang (Yunnan), donde también está clarkei, en la cordillera de Lijiang. (BOW, 2020)
En el norte y el centro de China se distribuyen michaelis (noroeste de Gansu y Qinghai adyacente), beicki (nordeste de Qinghai), berezowskii (sur de Gansu y norte de Sichuan), annae (noroeste de Sichuan) y sinensis (montes Qinling, en Shaanxi). I. c. geoffroyi se cita del Tíbet oriental. (BOW, 2020)
Cuántas subespecies, según cada autor
Fuente
Subespecies
Observaciones
Beebe (1918)
9 formas repartidas en 6 «especies»
Considera especies distintas a geoffroyi, kuseri, wilsoni, sinensis, tibetanus y la nominal con affinis(Beebe, 1918)
Delacour (1977)
13
Una sola especie; sinonimiza affinis y wilsoni, y acepta annae, holoptilus, marionae, rocki y clarkei(Delacour, 1977)
La cifra depende, sobre todo, de si se aceptan tres formas dudosas (affinis, holoptilus y annae), que Johnsgard y Madge y McGowan incluyen en otras.
Las subespecies, una a una: el grupo de cruentus
El grupo de cruentus reúne las poblaciones del sur y del oeste, desde Nepal hasta el noroeste de Yunnan y el Tíbet oriental, con las coberteras alares verdes, al menos en parte (Johnsgard, 1986; Madge y McGowan, 2002).
Norte de Nepal, límite meridional del Tíbet, norte de Sikkim y noroeste de Bután; en el pino subtropical hasta la línea de nieve, entre 6.000 y 14.000 pies (unos 1.830–4.270 m) (Beebe, 1918; BOW, 2020; Delacour, 1977; Johnsgard, 1986)
Macho
Mucho carmesí, de intenso tono, que empieza en la garganta baja y se extiende en manchas por el pecho y a veces los flancos; casi todas las timoneras con borde carmesí; coberteras medianas grises con una ancha lista central verde pálido; ceja negra y corona con carmesí (Beebe, 1918; Johnsgard, 1986)
Hembra
Cálida, de tono canela rojizo, pecho pardo liso; casi siempre con un lavado carmesí en la cara y la garganta y a veces algunas timoneras teñidas de carmesí (Beebe, 1918; Delacour, 1977)
Tamaño
♂ 438–482 mm (ala 194–228, cola 164–178) · ♀ 394–420 mm (ala 179–197, cola 140–154) (Beebe, 1918; Delacour, 1977)
Observaciones
Es la forma descrita por Hardwicke con un macho de Nepal, y los tipos están en el Museo Británico. La franja de contacto con tibetanus está en Bután central, entre las cordilleras de Cheli-La y Donga-La (Beebe, 1918; Delacour, 1977)
Las crestas más altas del Sikkim británico (tipo cerca de Nathang, a 12.000 pies, unos 3.660 m) (Beebe, 1918)
Macho
Sin carmesí pectoral en las partes visibles de las plumas, o con pocas manchas dispersas de óxido; las dos parejas externas de timoneras sin ningún tinte carmesí; sin carmesí en la corona (clave de Johnsgard); algo mayor que cruentus(Beebe, 1918; Johnsgard, 1986)
Hembra
Más gris que la del oeste, especialmente en las coberteras menores y las terciarias, con marcas casi blancas; solo el 10 % o menos tiene rastros de carmesí en la cara, la garganta o las timoneras (Beebe, 1918)
Estado
Considerada en muchos casos como no válida e incluida dentro de I. c. cruentus (Delacour, Johnsgard, Madge) (BOW, 2020; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). La ficha original dice que se distingue por la falta de plumas rojas en la garganta y/o el pecho; Beebe, que en cambio conserva el carmesí de la garganta y falta en el centro del pecho (Beebe, 1918; BOW, 2020)
Este de Bután y sur del Tíbet adyacente; el tipo, de la cordillera de Sela, entre Derang Dzong y Tawang, a 12.500 pies (unos 3.800 m), en el límite Bután-Tíbet; se mezcla con kuseri entre los 92° y los 93° de longitud este (Delacour, 1977; Johnsgard, 1986)
Macho
Frente y cara, por encima y por debajo de los ojos, rojas en lugar de negras; mucho más rojo en las plumas del pecho, como en kuseri; cresta más gris y menos blanca; auriculares posteriores gris y blanco; en el tipo, lores y ceja carmesí, sin línea negra bajo el ojo, y flancos y pecho bajo casi grises (Beebe, 1918; Delacour, 1977)
Hembra
Parecida a la nominal pero más oscura y más vermiculada por debajo; algunas con plumas escarlata en la garganta y los lados de la cabeza (Delacour, 1977)
Tamaño (libro del autor)
Macho: 600 g, ala 200, cola 166, tarso 64 y longitud 470 mm; hembra: 500 g, ala 190 y tarso 62 mm (Hernández García, 2013)
Observaciones
Beebe solo conocía un macho, cazado por el capitán Molesworth cerca de Tawang, que dijo haber visto otros (Beebe, 1918). El libro del autor reproduce dos fotografías de aves libres en Bután, en Sengor (Mongar) y en Thrumsing La (Hernández García, 2013)
Colinas Mishmi (Alto Assam) hasta el sureste del Tíbet y el noroeste de Yunnan; este hasta el alto Salween y el Mekong, y sur hasta unos 28° N; de 8.000 a 14.000 pies (unos 2.440–4.270 m) en matorral y bosque alpino (BOW, 2020; Delacour, 1977; Johnsgard, 1986)
Macho
Frente, garganta y pecho casi de un carmesí puro; superciliares, auriculares, lados de la cabeza y del cuello negros, con una ancha banda negra entre el rojo de la garganta y el del pecho; coberteras verdes brillantes; la más bella y colorida de las formas, según Beebe (Beebe, 1918; Delacour, 1977)
Hembra
Parecida a la de tibetanus, pero más oscura y más roja, a menudo con un lavado rojo en el pecho; la cabeza casi negra y las mejillas pardo rojizas vivas (Beebe, 1918; Delacour, 1977)
Tamaño
Un macho de museo medía 215 mm de ala, 132 de cola y 64 de tarso (Beebe, 1918); el libro del autor da 600 g, ala 200, cola 166, tarso 64 y longitud 470 mm para el macho; 460 g, ala 187 y tarso 53 mm para la hembra (Hernández García, 2013)
Observaciones
Bailey la encontró «extraordinariamente común» en ciertos lugares, siempre junto a la nieve y en bosque bastante denso, en bandadas de diez a veinte y hasta de cuarenta; los mishmi la cazan con lazos. Se han hallado tres huevos a 12.000 pies a principios de mayo (Beebe, 1918). En la India se la llama «faisán ensangrentado mishmi» y vive en Arunachal Pradesh (WII, 2007)
Frontera entre el nordeste de Myanmar y Yunnan, hasta la divisoria Shweli–Salween; tipo del paso de Nyetmaw, a 9.500 pies (unos 2.900 m); las aves del valle de Adung son intermedias con kuseri(Delacour, 1977; Johnsgard, 1986)
Macho
Como kuseri, pero con las superciliares enteramente rojas o rojas con unas pocas manchas negras; el collar negro interrumpido en medio de la garganta, con plumas rojas dispersas; las listas blancas del dorso más estrechas y casi inexistentes en el dorso alto; pecho más extensamente rojo (Delacour, 1977)
Menor que kuseri: ala de 190–200 mm frente a 200–208 (Delacour, 1977); el libro del autor da ala 195 y longitud 460 mm en el macho, y 500 g, ala 193 y cola 130 mm en la hembra (Hernández García, 2013)
Solo se conoce del distrito de Lijiang (Yunnan): Chou-yu-gko, sobre Tao-mung-chung, en las laderas orientales de la divisoria Yangtsé–Mekong, de 13.000 a 15.000 pies (unos 3.960–4.570 m) (BOW, 2020; Delacour, 1977)
Macho
Intermedio entre marionae y rocki: superciliares y lores negros y rojos, auriculares rayados de blanco, cresta corta y casi normal, poco disgregada; gran tamaño: ala de 202–206 mm (Delacour, 1977)
Johnsgard y Madge y McGowan la incluyen en rocki; el libro del autor, que señala que algunos autores la incorporan a rocki, la lista como subespecie (Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002). No hay fotografía disponible en esta guía
Montes Hofuping y Litiping, valle del Mekong, noroeste de Yunnan (tipo); según Johnsgard, noroeste de Yunnan hacia los 27° N, entre el Salween y el Yangtsé (Delacour, 1977; Johnsgard, 1986)
Macho
Parecido a tibetanus pero más pálido, con menos rojo en el pecho y más verde en el ala; cresta moderadamente larga y disgregada, gris con base rojiza; frente roja, lores y superciliares negros; garganta y mejillas rojas con listas ante; coberteras totalmente verdes (Delacour, 1977)
Hembra
Como la de tibetanus, pero más pálida, gris y moteada (Delacour, 1977)
Tamaño
Pequeño: ala 196–199 mm en el macho y unos 180 mm en la hembra (Delacour, 1977); el libro del autor da 198 mm de ala y 450 de longitud en el macho; 450 g, ala 183 y cola 135 mm en la hembra (Hernández García, 2013)
Estado
Posible forma intermedia entre kuseri y clarkei(Johnsgard, 1986)
Cordillera de Lijiang (Lichiang), noroeste de Yunnan, hacia 27° 20′ N y 100° 2′ E (Delacour, 1977)
Macho
Se parece a rocki, pero más pálido, con menos rojo y una cresta muy larga y desgreñada; frente negra; garganta y mejillas rojas y ante, menos vivas; auriculares y cuello grises con listas blancas y base rojiza; cola gris blanquecina (Delacour, 1977; Madge y McGowan, 2002)
Hembra
Muy gris en la cresta y el cuello, con todo el plumaje lavado de gris y finamente vermiculado; muy cercana a la de geoffroyi(Delacour, 1977)
Tamaño
Grande: ala 202–214 mm en el macho y 185–208 en la hembra (Delacour, 1977); el libro del autor da 205 mm de ala, 165 de cola y 470 de longitud en el macho (Hernández García, 2013)
Sur y este del Tíbet, al norte de las áreas de las formas anteriores, desde unos 90° E hasta el oeste de Sichuan; tipo de Moupin; de 10.000 a 16.000 pies (unos 3.050–4.880 m) (Beebe, 1918; Delacour, 1977)
Macho
Sin carmesí en la cabeza, la garganta, el cuello ni el pecho; frente, lores, superciliares y mejillas negros; auriculares rayados de negro y blanco; garganta y pecho superior grises; coberteras alares de un verde manzana intenso; cresta más corta que la de clarkei(Beebe, 1918; Delacour, 1977)
Hembra
Pálida y grisácea, muy parecida a la de clarkei, con moteados más gruesos, blanco grisáceos (Delacour, 1977)
Tamaño
Grande: ala 208–223 mm en el macho (media 215), cola 165–190 (177) y tarso 64; ala 205–210 en la hembra (Beebe, 1918; Delacour, 1977); el libro del autor da 220 mm de ala, 170 de cola y 480 de longitud en el macho (Hernández García, 2013)
Observaciones
Sus primeros ejemplares se obtuvieron en 1866 cerca de Tatsienlu, y un macho llegó vivo a Londres en 1875 (Beebe, 1918). Madge y McGowan señalan que clarkei podría ser un sinónimo suyo (Madge y McGowan, 2002). El libro del autor reproduce dos fotografías de aves en libertad, de Dong Lei (Hernández García, 2013)
Las subespecies, una a una: el grupo de sinensis
El grupo de sinensis reúne las formas del norte y el centro de China, de Gansu y Qinghai a Sichuan y Shaanxi; sus machos carecen de carmesí en la cabeza y el pecho, llevan penachos auriculares y tienen las coberteras alares pardo rojizas, a veces algo teñidas de verde (Johnsgard, 1986; Madge y McGowan, 2002).
Noroeste de Gansu: laderas septentrionales de los Nanshan (río Chycho, Baboche, río Edzingol, monte Nginsin-Shan); según Johnsgard, norte y centro de los Nan Shan (Qinghai), pasando hacia el sur a beicki(Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
Macho
Parecido a geoffroyi pero más pálido, con menos verde en las alas y los lados del pecho; garganta y pecho superior lavados de ante; cresta más corta y más rayada de blanco; coberteras medianas rufas con el centro y los bordes verdes; el carmesí de la cola y la grupa tiene un matiz malva (Delacour, 1977)
Un macho de Beebe medía 226 mm de ala; en las hembras, 203–210 (Beebe, 1918); el libro del autor da 600 g, 200 mm de ala y 460 de longitud en el macho; 500 g y ala de 195 mm en la hembra (Hernández García, 2013)
Observaciones
Un único macho pesó 655 g, la cifra más alta de la especie (Johnsgard, 1986)
Norte de Gansu: Chortentan, río Tetung, montes del sur del Tetung y Tsan-fou (el tipo, de Tzchau-tou, distrito de Sining); según Johnsgard, noreste de Qinghai, en la zona del medio río Tatung, y centro de Gansu, donde se mezcla con michaelis(Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
Macho
Parecido a michaelis, pero más gris oscuro y menos lavado de verde, con más rojo en las plumas de la cola; algo de rojo en las mejillas y el tinte ante del pecho más fuerte (Delacour, 1977)
Hembra
Muy cercana a la de michaelis: pálida, con la cresta y los lados de la cara grises y el dorso, el obispillo y la cola con un fuerte tinte grisáceo (Delacour, 1977)
Tamaño
Grande: ala 204–225 mm en el macho y 192–211 en la hembra (Delacour, 1977); el libro del autor da 207 mm de ala y 460 de longitud en el macho, y 510 g y 200 mm de ala en la hembra (Hernández García, 2013)
Parecido a berezowskii, pero más oscuro por encima; las listas blancas del dorso, muy anchamente bordeadas de negro; sin rojo o casi sin rojo en la frente, las mejillas y la barbilla; corona, cuello y lados del cuello gris oscuro; coberteras alares de un pardo rufo vivo, sin mezcla de rojo, solo muy levemente teñidas de verde; carmesí de la cola menos escarlata (Delacour, 1977)
Hembra
Más clara y más rufa que la de annae, sobre todo por debajo, y mucho menos gris que la de beicki(Delacour, 1977)
Tamaño
Medio-pequeño: ala 203–210 mm en el macho y 191–195 en la hembra (Delacour, 1977); el libro del autor da 200 mm de ala, 160 de cola y 450 de longitud en el macho; 500 g, ala 195 y cola 141 mm en la hembra (Hernández García, 2013)
Observaciones
Beebe, que no la vio en vida, describía en cambio las coberteras alares como amarillo dorado teñido de verdoso, y no de pardo rufo (Beebe, 1918)
Sur de Gansu y norte de Sichuan (Sungpan); según Johnsgard, oeste y noroeste de Sichuan hasta Sungpan y el sur de Gansu; Beebe añade las laderas sur de los Qinling en el sur de Shaanxi (Beebe, 1918; Delacour, 1977; Johnsgard, 1986)
Macho
Pequeño y oscuro, muy parecido a annae pero menos ricamente coloreado: con más lavado rojizo en las mejillas, la barbilla y las alas y un carmesí más cálido en la cola; coberteras alares de un canela o castaño sin verde y con abundante rojo carmín (Beebe, 1918; Delacour, 1977)
Hembra
Más clara y más rojiza, y menos moteada por encima, que la de annae; los lados del cuello son pardos y la parte inferior, canela apagado (Beebe, 1918; Delacour, 1977)
Tamaño
El más pequeño de la especie según Beebe: ala 187–209 mm en el macho y 178–195 en la hembra (Beebe, 1918); cinco machos pesaron 520–600 g y tres hembras, 410–620 g (Johnsgard, 1986); el libro del autor da 600 g, ala 190, cola 160 y longitud 440 mm en el macho; 440 g, ala 181 y cola 148 mm en la hembra (Hernández García, 2013)
Noroeste de Sichuan; el tipo, de Cheng-Gou Forks, a unos 50 km al oeste de Wenchwan, a 7.300 pies (unos 2.225 m) (BOW, 2020; Delacour, 1977)
Macho
Se parece a beicki, pero aún con menos verde en las partes superiores; coberteras medianas más rojas, pardo rufo con solo un poco de verde pálido en las listas centrales, a veces lavadas de rojo; cola más rosada, menos malva carmesí (Delacour, 1977)
Hembra
Parda lisa por debajo, con la cabeza y el cuello gris terroso, finamente moteada por encima y con el obispillo y la cola pálidos y grisáceos (Delacour, 1977)
Tamaño
Pequeño: ala 192–200 mm en el macho y 184–191 en la hembra (Delacour, 1977)
Estado
Delacour observa que los machos de Sungpan son intermedios con berezowskii y que las hembras son más cercanas a esta última, y recomienda incluir esa población en berezowskii; Johnsgard la escribe «de Mrs Seye» (errata de Sage) y la incluye también en berezowskii(Delacour, 1977; Johnsgard, 1986)
Faisán ensangrentado de Wilson
Ithaginis wilsoniThayer y Bangs, 1912
Distribución
Monte Wa, en el centro-sur de Sichuan; descrito con dos machos recogidos en noviembre de 1908 a 9.000 pies (unos 2.740 m) en las montañas de Washan por una expedición de Harvard (Beebe, 1918)
Macho
Sin diferencias de color con geoffroyi, pero un tercio menor (Beebe, 1918)
Estado
Beebe la admitió como especie válida, aunque observó que los geoffroyi del oeste de su área son mayores que los del entorno de Tatsienlu; Delacour la cita como sinónimo de geoffroyi, y hoy no se reconoce. No hay fotografía disponible (Beebe, 1918; Delacour, 1977)
Más imágenes de las subespecies
Se reúnen aquí otras fotografías de aves de las distintas formas, cuando no caben en su ficha: aves de los grupos de cruentus y de sinensis y un macho de subespecie no determinada.
Cómo distinguir las subespecies: claves dicotómicas
La distinción de las subespecies no es nada fácil, mucho menos en las hembras, y por eso la clave de Johnsgard que reproduce el libro del autor está pensada para los machos (Hernández García, 2013; Johnsgard, 1986). Se distinguen sobre todo por la proporción de rojo y de negro en la cabeza; algunos autores las separan en dos grupos, el de cruentus y el de sinensis(Hernández García, 2013). Se recoge aquí en forma de árbol de decisión.
Clave dicotómica · Machos de Ithaginis cruentus: clave según Johnsgard
Garganta roja o teñida de rojo.
Auriculares completamente negras.
Ceja negra.I. c. kuseri (Kuser)
Ceja roja y negra.I. c. marionae (Mrs Vernay)
Auriculares rayadas de blanco y negro.
Ceja roja y negra.
Plumas de la cresta disgregadas.I. c. tibetanus (tibetano)
Plumas de la cresta normales.I. c. holoptilus (Greenway)
Ceja negra.
Coberteras medianas grises, con una ancha lista central verde pálido.
Carmesí en la corona.I. c. cruentus (forma nominal)
Sin carmesí en la corona.I. c. affinis (Sikkim)
Coberteras medianas enteramente verdes.
Más oscuro, cresta más corta.I. c. rocki (Rock)
Más claro, cresta más larga.I. c. clarkei (Clarke)
Garganta gris.
Coberteras medianas totalmente verdes.I. c. geoffroyi (Geoffroy)
Coberteras medianas no totalmente verdes.
Coberteras medianas pardas y verdes.
Marcadas de pardo y verde.I. c. michaelis (Bianchi)
Pardas lavadas de verde.I. c. beicki (Beick)
Coberteras medianas enteramente pardas.
Líneas blancas del raquis (en el manto) estrechas.I. c. sinensis (Padre David)
Líneas blancas del raquis más anchas.
Más claro y más rojizo en las mejillas, la barbilla y las alas; cola más rosada.I. c. annae (Mrs Sage)
Más oscuro y menos rojizo en las mejillas, la barbilla y las alas; cola más carmesí.I. c. berezowskii (Berezowski)
Clave dicotómica · Hembras de Ithaginis cruentus: clave según Delacour
Auriculares canela.
Pecho pardo liso.I. c. cruentus ♀
Pecho moteado.
Moteado grueso.I. c. rocki ♀
Moteado minúsculo.
Pardo rufo.I. c. tibetanus ♀
Pardo oscuro.I. c. kuseri, marionae y holoptilus ♀
Auriculares grises.
Pecho fuertemente moteado.
Partes superiores finamente moteadas de gris pardusco.I. c. clarkei ♀
Partes superiores toscamente moteadas de gris pálido.I. c. geoffroyi ♀
Pecho levemente moteado.
Más pálido; dorso, obispillo y cola grisáceos.I. c. beicki y michaelis ♀
Más oscuro, menos grisáceo.I. c. annae y sinensis ♀
Mutaciones de cautividad
Ninguna de las fuentes consultadas recoge mutaciones de color fijadas en cautividad en el faisán ensangrentado, que además es una especie escasísima y muy difícil de mantener (Delacour, 1977; Hernández García, 2013; Howman, 1979).
Híbridos
Las fuentes consultadas no mencionan ningún híbrido del faisán ensangrentado, ni en libertad ni en cautividad: la tabla de hibridación de Johnsgard (1999), traducida y adaptada por del Campo, ni siquiera lo incluye entre las especies cruzadas (del Campo, 2006; Johnsgard, 1999). Recomendación editorial: no cruzar nunca formas distintas, para no perder la identidad de unas líneas ya escasas.
15
Cultura y curiosidades
Un genoma para vivir a 4.700 m, el ave de Sikkim y las perdices de las nieves de Beebe.
Al ser la única especie del género Ithaginis, el faisán ensangrentado ocupa una posición evolutiva singular dentro de los fasiánidos. En 2020 un equipo de investigadores publicó su primer borrador de genoma completo, de 1,04 Gb de longitud y con 17.209 genes codificantes, para estudiar su adaptación a la vida entre los 3.200 y los 4.700 m de altitud. El análisis identificó 550 genes bajo selección positiva relacionados con la supervivencia en ese ambiente extremo, entre ellos genes de respuesta a la hipoxia —como el de la mioglobina, con mutaciones exclusivas de la especie— y genes de reparación del ADN frente a la intensa radiación ultravioleta de alta montaña. (Zhou et al., 2020)
El ave de Sikkim
El faisán ensangrentado es el ave estatal del estado indio de Sikkim (Hernández García, 2013; WII, 2007). El Wildlife Institute of India lo recuerda al tratar los galliformes de Sikkim, donde hasta ahora solo se ha hecho una prospección dedicada en exclusiva a ellos, y el resto de los datos son avistamientos oportunistas de las expediciones de 1988 a 2005 (WII, 2007). En lepcha se le llama somong-pho(Beebe, 1918; WII, 2007).
La perdiz de las nieves
Beebe, que abre con las «perdices de sangre» su monografía, cuenta su larga espera, agazapado en la sombra de un gran bloque de piedra partido por la helada, con el murmullo de los arroyos, el canto de una alondra del Himalaya, el vuelo de un quebrantahuesos y el paso de un zorro gris, hasta que, con el último resplandor rosa sobre las nieves, aparecieron siete aves, tres machos y cuatro hembras, que bajaban por la ladera, con la cola alta y el carmesí brillando, y que con su única voz, un ligero doble gemido, se perdieron entre los rododendros enanos; entonces comprendió que había visto «las perdices de las nieves» (Beebe, 1918). En su libro Pheasant Jungles recuerda esa región, el entorno de Sandakphu, la garganta del Changthap y el paso de Dhanga La, a 15.000 pies, con los picos del Kanchenjunga a diez millas, donde estudió a los ensangrentados, a los monales y a los tragopanes (Beebe, 1927).
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
Beebe, W. (1927). Pheasant Jungles. Nueva York: G. P. Putnam's Sons (reed. World Pheasant Association, 1994).
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
McGowan, P. J. K., Kirwan, G. M. y Boesman, P. F. D. (2020). Blood Pheasant (Ithaginis cruentus), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/blophe1 · doi:10.2173/bow.blophe1.01
Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
Sathyakumar, S. y Sivakumar, K. (eds.) (2007). Galliformes of India. ENVIS Bulletin: Wildlife and Protected Areas, vol. 10 (1). Dehradun: Wildlife Institute of India. Incluye la ficha de especie del faisán ensangrentado y los capítulos sobre distribución en áreas protegidas, Sikkim, Arunachal Pradesh y aprovechamiento de carne silvestre.
Zhou, Y. y colaboradores (2020). The draft genome of the blood pheasant (Ithaginis cruentus): phylogeny and high-altitude adaptation. PubMed Central, PMC7593199
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán ensangrentado — Ithaginis cruentus. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/ensangrentado.php.