Resumen
La especie de un vistazo.
El faisán pavo de Rothschild (Polyplectron inopinatum), conocido en inglés como Mountain Peacock-pheasant, es una especie de la familia Phasianidae propia de las montañas centrales de Malasia, en el Sudeste asiático, y catalogada por la UICN como casi amenazada. (BirdLife DataZone, 2023; BOW, 2020; Wikipedia)
Es un faisán pavo de cuerpo y cola largos, sin cresta, que contrasta por tener el manto, las alas y el dorso de color castaño y la cabeza y las partes inferiores de un gris casi negro; el macho lleva sobre el manto y las alas pequeños ocelos azules, cada uno con una mancha clara en la base, y una cola larga, estrecha y puntiaguda con ocelos verdes metálicos, mientras que la hembra, más pequeña y de cola más corta, sustituye esos ocelos por manchas negras (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). Mide, según las fuentes, unos 65 cm el macho y unos 46 cm la hembra, y no hay pesos publicados en las obras de referencia: el único dato que se ha encontrado es el del libro del autor (500 y 900 g el macho, 500 g la hembra) (del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Es una especie endémica de los bosques de montaña del centro de la península malaya, y de forma marginal del extremo sur de Tailandia, donde vive entre unos 820 y 1.800 m de altitud en laderas empinadas y crestas, con afloramientos de roca, algo de bambú y palmas trepadoras (BirdLife DataZone, 2023; Johnsgard, 1986; Madge y McGowan, 2002). Es esquiva, poco vocal y muy difícil de observar: casi todo lo que se sabe de su vida en libertad procede de una observación breve de Beebe, de unos pocos nidos y de la cría en cautividad (Beebe, 1922; del Hoyo et al., 1994; Johnsgard, 1986).
Su historia es corta. Lord Rothschild la describió en 1903 con el nombre Chalcurus inopinatus, a partir de ejemplares de Ulu Pahang; durante décadas se creyó que no se había mantenido nunca en cautividad, y no se crió con éxito hasta los años setenta y ochenta del siglo XX, en California, Hong Kong y Malasia (Avibase; Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Howman, 1993; Johnsgard, 1986). Hoy tiene un registro genealógico internacional y, en el reparto europeo de programas de cría, figura con un ESB (del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2014).
En la Lista Roja de la UICN fue «casi amenazada» en 1988, «vulnerable» de 1994 a 2016 y vuelve a ser «casi amenazada» desde 2023; BirdLife estima 2.500–20.000 individuos maduros, con una mejor estima precautoria de 2.500–9.999 y una tendencia decreciente sospechada, y subraya que el cambio de categoría no implica necesariamente una mejora real (BirdLife DataZone, 2023). Las amenazas principales son la pérdida de bosque en el límite inferior de su rango y la posible carretera entre las estaciones de montaña de Genting Highlands, Fraser’s Hill y Cameron Highlands (BirdLife DataZone, 2023; del Hoyo et al., 1994; Fuller y Garson, 2000). Ninguna de las fuentes consultadas menciona poblaciones introducidas o asilvestradas de esta especie.
- 65cmde longitud total del macho
- 19–21díasde incubación en cautividad
- 820–1.800mde altitud según BirdLife
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoNTCasi amenazado - Tendencia de la población decreciente · evaluación de 2023 · criterios C2a(ii) · Lista Roja de la UICN (BirdLife International, 2023)
Ficha técnica
- Nombre científico
- Polyplectron inopinatum (Rothschild, 1903) (Avibase; BirdLife DataZone, 2023; Delacour, 1977)
- Protónimo
- Chalcurus inopinatus Rothschild, 1903; Bull. Brit. Orn. Club 13: 41; localidad tipo, Ulu Pahang (Avibase; del Hoyo et al., 1994; Delacour, 1977)
- Clasificación
- Orden Galliformes · familia Phasianidae · género Polyplectron Temminck, 1813 (del Hoyo et al., 1994; Johnsgard, 1986)
- Subespecies
- Ninguna: especie monotípica (BOW, 2020; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
- Nombres comunes
- ES faisán pavo de Rothschild (también espolonero de Rothschild o montañés) · EN Mountain Peacock-pheasant (Rothschild’s Peacock-pheasant, Mirror Pheasant) · FR éperonnier de Rothschild · DE Rothschildpfaufasan · IT speroniere di Rothschild · PT faisão-pavão-montês · MS burung kuang cermin (Avibase; del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977)
- Longitud total
- ♂ c. 65 cm (cola de 32–40 cm) · ♀ c. 46 cm (cola de 22–27,5 cm) (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002)
- Peso
- Sin datos en las obras de referencia; el libro del autor da ♂ 500 y 900 g · ♀ 500 g (Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
- Hábitat
- Bosque montano húmedo sin talar, en laderas empinadas y crestas con afloramientos de roca, algo de bambú y palmas trepadoras (BirdLife DataZone, 2023; del Hoyo et al., 1994; Johnsgard, 1986)
- Altitud
- 820–1.800 m según BirdLife; otras fuentes dan de 600 a 2.000 m (BirdLife DataZone, 2023; del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002)
- Distribución
- Montañas del centro de la península malaya (Malasia) y, de forma marginal, el extremo sur de Tailandia (BirdLife DataZone, 2023)
- Puesta
- 2 huevos; incubación de 19–21 días, solo la hembra (aves de cautividad) (BOW, 2020; del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002)
- Madurez
- Plumaje adulto en el primer año, menos vivo; casi dos años hasta la madurez en aves próximas a la raza pura (Howman, 1993; Johnsgard, 1986)
- Estado de conservación
- Casi amenazado (NT), evaluación de 2023, criterio C2a(ii) (BirdLife DataZone, 2023)
- Extensión de presencia
- 28.500 km² según BirdLife (BirdLife DataZone, 2023)
- Población
- 2.500–20.000 individuos maduros (estima de 2018, calidad de los datos pobre; mejor estima precautoria, 2.500–9.999); tendencia decreciente sospechada (BirdLife DataZone, 2023)
- CITES
- Apéndice III en Malasia (BOW, 2020; del Campo, 2006; Howman, 1993; Wikipedia) (el HBW dice Apéndice II; véase el capítulo de conservación)
- Anilla
- 10 mm (Corder)
- Conservación ex situ
- Registro genealógico internacional desde 1992; ESB europeo; más de 450 aves en cautividad hacia el año 2000 (del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2014)
Sistemática y nomenclatura
Un nombre «inesperado», un género abandonado y una especie intermedia entre los faisanes pavo de Sumatra y los de Indochina.
El faisán pavo de Rothschild es una de las especies del género Polyplectron, los faisanes pavo o espoloneros, que viven en los bosques del Sudeste asiático, desde el Himalaya oriental hasta Palawan; Delacour reconoce seis especies y Johnsgard siete, y esta guía trata ocho (Delacour, 1977; Johnsgard, 1986).
Posición taxonómica
| Rango | Taxón |
|---|---|
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Género | Polyplectron Temminck, 1813 |
| Especie | Polyplectron inopinatum (Rothschild, 1903) |
| Subespecies | Ninguna |
La autoridad figura entre paréntesis porque la especie se describió en otro género (Chalcurus) (Avibase; BirdLife DataZone, 2023; del Hoyo et al., 1994; Delacour, 1977).
Origen del nombre
El nombre inopinatum procede del latín y significa «inesperado», ya que fue el último faisán pavo en ser descubierto. (Beebe, 1922; Jobling, 2010; Johnsgard, 1986) Jobling traduce el latín inopinatus por «inesperado, impensado»; Johnsgard y Beebe lo dan simplemente como «inesperado» (Beebe, 1922; Jobling, 2010; Johnsgard, 1986). Ninguna de las fuentes consultadas explica por qué eligió Rothschild ese epíteto.
El nombre del género, Polyplectron, procede del griego polus, «muchos», y plektron, «espolón de gallo», según Jobling (Jobling, 2010); es el origen de «espolonero», el nombre español de estas aves: el criadero Chintaguay explica que se les llama así porque tienen dos, e incluso tres, pares de espolones (del Campo, 2006). Johnsgard dice que los machos del género llevan de uno a tres espolones cortos, y que las hembras no tienen (Johnsgard, 1986).
Rothschild describió la especie en el género Chalcurus Bonaparte, 1854, cuya especie tipo es Chalcurus chalcurus, la forma de Sumatra (Beebe, 1922). Beebe da Chalcurus como «de cola de cobre», del griego kalkos, «cobre», y oura, «cola», y Jobling lo refiere al epíteto chalcurum de Lesson, 1831, de khalkos, «bronce», y -ouros, «de cola» (Beebe, 1922; Jobling, 2010). De ahí los nombres ingleses antiguos Bronze-tailed Peacock-pheasant y Malay Bronze-tailed Peacock Pheasant (Avibase; Beebe, 1922).
El epíteto aparece con dos terminaciones según el género: inopinatus en la combinación original con Chalcurus y inopinatum en Polyplectron, como se ve en la sinonimia (Avibase; Beebe, 1922). Avibase registra además la variante ortográfica Polypectron inopinatum (Avibase).
El nombre vernáculo «de Rothschild» alude al autor de la descripción, Lord Rothschild; Jobling lo identifica como Lionel Walter, segundo barón Rothschild de Tring (1868–1937), ornitólogo, entomólogo, coleccionista y editor de Novitates Zoologicae inglés (Beebe, 1922; Jobling, 2010) (la relación entre el nombre común y el autor es una deducción editorial: las fuentes consultadas no dicen que el nombre se dedique a él). El nombre «montañés» (Mountain), hoy el preferido en las listas de BirdLife, el HBW, IOC, eBird y BOW, se refiere al hábitat; la lista de Clements en su 3.ª edición y la 2.ª de Howard y Moore todavía usaban «de Rothschild» (Avibase; BOW, 2020; del Hoyo et al., 1994).
Por último, el nombre inglés Mirror Pheasant («faisán espejo») y el malayo cermin, «espejo», aluden a los ocelos: Beebe cuenta que los malayos llaman chermin, «espejos», a esas manchas brillantes del plumaje (Avibase; Beebe, 1922; Johnsgard, 1986).
Nombres vernáculos
| Idioma | Nombre | Comentario |
|---|---|---|
| Español | faisán pavo de Rothschild; espolonero de Rothschild; espolonero montañés; pavo-faisán montañés | el primero es el nombre de esta guía; el segundo, el de Avibase y del HBW; los dos últimos, los del criadero Chintaguay (Avibase; del Campo, 2006; del Hoyo et al., 1994) |
| Inglés | Mountain Peacock-pheasant; Rothschild’s Peacock-pheasant; Mirror Pheasant; Malayan Peacock-pheasant; Malay Bronze-tailed Peacock Pheasant; Malay Mountain Pheasant; Malayan bronze-tailed pheasant; mountain pheasant; Rothschild’s pheasant | el primero es el de BirdLife, el HBW, IOC y BOW; los demás, de obras antiguas y de Avibase; no hay que confundirlo con el Malayan Peacock-pheasant de verdad, que es P. malacense (Avibase; Beebe, 1922; del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002) |
| Francés | éperonnier de Rothschild | (Avibase; del Hoyo et al., 1994; Delacour, 1977) |
| Alemán | Rothschildpfaufasan; Rothschild-Pfaufasan; Spiegel-Bronzeschwanzfasan | el último, en Johnsgard (Avibase; del Hoyo et al., 1994; Johnsgard, 1986) |
| Italiano | speroniere di Rothschild; speroniere montano | (Avibase) |
| Portugués | faisão-pavão-montês; faisão-ocelado-montês (Portugal) | (Avibase) |
| Malayo | burung kuang cermin; burung kuau cermin gunung; burung merak pongsu gunung | nombres de Avibase; Beebe dice que, como vive solo en la montaña, las gentes de las tierras bajas no la conocen por ningún nombre (Avibase; Beebe, 1922) |
| Japonés | アカコクジャク (akakokujaku) | (Avibase) |
| Chino | 山孔雀雉 · 铜尾孔雀雉 | (Avibase) |
| Tailandés | นกแว่นภูเขา (nók wâeen phuu-khăw) | (Avibase) |
| Otros | neerlandés Rothschilds pauwfazant; catalán faisà d’esperons de Rostchild; sueco bergpåfågelfasan | (Avibase) |
Los nombres proceden de Avibase y de las obras citadas; las transcripciones al español de los nombres tailandés y chino son orientativas.
Historia nomenclatural
La secuencia de nombres se puede reconstruir con Beebe, Delacour y Avibase (Avibase; Beebe, 1922; Delacour, 1977):
- Bonaparte crea el género Chalcurus, con C. chalcurus como especie tipo (Beebe, 1922).
- Rothschild describe Chalcurus inopinatus en el Bulletin of the British Ornithologists’ Club (vol. 13, p. 41), con localidad tipo en Ulu Pahang, península malaya; el tipo se conserva en el Museo de Tring (Avibase; Beebe, 1922; Delacour, 1977). La especie se figura también en Novitates Zoologicae 10, 1903, lámina II (Beebe, 1922).
- Robinson la cita en el Journal of the Federated Malay States Museums (vol. 1, p. 130) con registros de Ulu Dong y Gunong Tahan (Pahang) y de Gunong Mengkuang Lebah (Selangor) (Beebe, 1922).
- Robinson la cita ya como Polyplectron inopinatus, de la península malaya al sur del istmo de Kra (Beebe, 1922).
- Robinson añade los montes sobre el paso de Semangko, Mengkuang Lebah y Ulu Kali (Beebe, 1922).
- Beebe, en el volumen IV de su Monograph of the Pheasants, mantiene el género Chalcurus para los dos faisanes pavo «de cola de bronce», el de Malasia y el de Sumatra (Beebe, 1922).
- Descarta Chalcurus y deja las dos formas en Polyplectron, porque inopinatum es una forma intermedia entre el faisán pavo de Sumatra y el de Germain (Delacour, 1977).
- Johnsgard sigue a Delacour: no ve ventaja en separar las dos formas más generalizadas del resto del género (Johnsgard, 1986).
Sinonimia principal
| Nombre | Autor y fecha |
|---|---|
| Chalcurus inopinatus (basónimo) | Rothschild, 1903; Bull. Brit. Orn. Club 13: 41 |
| Polyplectron inopinatus | uso de Robinson, 1907 |
| Polypectron inopinatum | variante ortográfica que registra Avibase |
| Polyplectron inopinatum (Rothschild, 1903) | combinación vigente |
Selección de la sinonimia de Beebe y de Avibase; las listas de Peters, según Avibase, conservaron Chalcurus inopinatus (Avibase; Beebe, 1922).
Posición dentro del género
Johnsgard considera que la especie es transicional en casi todo entre el faisán pavo de Sumatra y los Polyplectron típicos, tanto en el desarrollo de los ocelos de la cola y del dorso como en el comportamiento de exhibición: conserva el carácter lateral de la parada del primero, pero empieza a usar los ocelos dorsales y es el precedente de la orientación frontal de los faisanes pavo grises (Johnsgard, 1986). Delacour la considera igualmente una forma intermedia entre chalcurum y germaini (Delacour, 1977). Johnsgard cita a Lowe, que en 1939 señaló en las coberteras caudales del pavo del Congo el esbozo del dibujo de ocelos de los pavos reales, que se ve también en la secuencia de faisanes pavo que empieza con el de Sumatra, sigue con el de Rothschild y continúa con las formas típicas (Johnsgard, 1986).
Beebe, que mantenía Chalcurus como género, comparaba así los dos grupos de la península malaya (Beebe, 1922):
| Rasgo | Chalcurus (aves de Malasia, según Beebe) | Polyplectron (aves de Malasia) |
|---|---|---|
| Cresta | Sin cresta ni iridiscencia en la cabeza | Larga cresta iridiscente |
| Blanco del plumaje | Aumenta con la edad | Gran aumento del blanco solo en la cabeza y el cuello |
| Colores de los inmaduros | Oscuros, que pasan a rufo en el cuerpo; el rufo de la cola se aclara a ante | Eliminación del rufo y aclarado de todo el plumaje |
| Ocelos | Poco aumento de tamaño y complejidad de pollo a adulto; los timoneles centrales casi sin ocelos | Ocelos muy grandes y perfectos en el cuerpo y las alas; ocelos plenos en los timoneles centrales |
| Partes inferiores | Plumaje ventral oscuro y monocromo del pollo, que pasa a moteado en el adulto | Partes inferiores pálidas y muy moteadas |
| Piel desnuda de la cara | Muy pequeña en el adulto; ninguna en el pollo | Gran área desnuda |
| Macho y hembra | Muy parecidos | Muy distintos |
Comparación de Beebe (1922). Johnsgard recuerda que Beebe enumeró ocho caracteres del plumaje y de la morfología en los que Polyplectron en sentido estricto representa una condición más especializada, y que él no ve ventaja en mantener Chalcurus (Beebe, 1922; Johnsgard, 1986).
Lo que dicen los datos moleculares
Según Wikipedia, los datos del ADN mitocondrial (citocromo b y región D-loop) y del intrón G nuclear del ovomucoide, de Kimball y colaboradores (2001), confirman que la especie pertenece a un clado con los faisanes pavo de Sumatra, de Germain y gris (Wikipedia). Esos datos sugieren, aunque sin mucha confianza, que se separó del tronco continental antes que el de Sumatra; Wikipedia considera esa lectura engañosa, porque la biogeografía, el plumaje derivado y su condición de endemismo peninsular de montaña apuntan a una población fundadora pequeña, y concluye que el patrón único de alas y cola es una autapomorfía y que las dos especies del sur, antes en Chalcurus, probablemente no son parientes cercanas (Wikipedia). La misma fuente estima que la especie evolucionó a partir de aves del continente en algún momento entre el Plioceno final y el Pleistoceno inicial (hace 3,6–1 millones de años), y añade que el método de calibración del reloj molecular de Kimball se sabe hoy inapropiado, con estimas demasiado bajas en galliformes (Wikipedia). No se ha podido consultar el artículo original de Kimball y colaboradores; solo se recoge lo que resume Wikipedia.
Cómo distinguirlo de los faisanes pavo próximos
| Rasgo | Faisán pavo de Rothschild | Faisán pavo de Sumatra (P. chalcurum) | Faisán pavo malayo (P. malacense) |
|---|---|---|---|
| Hábitat y altitud | Bosque montano, de unos 820 m hacia arriba | Bosque montano de Sumatra, 800–1.700 m | Tierras bajas de la península; el de Rothschild lo sustituye en las montañas |
| Cresta | Ninguna (solo un ligero rizado en la nuca) | Ninguna | Con cresta |
| Ocelos del manto | Pequeños y azules en el macho; manchas negras en la hembra | Ninguno en ninguno de los dos sexos | Grandes (macho metálico azul; hembra, negros) |
| Timoneles | 20 en el macho, 18 en la hembra | 16 | — |
| Piel desnuda de la cara | Cara totalmente emplumada | Muy poca | Con piel facial naranja |
| Cabeza y partes inferiores | Gris casi negro, más oscuras que el manto castaño | Pardo oscuro | Más pardo y menos contrastado |
Elaborada con Madge y McGowan, Delacour y Johnsgard; la mención del tarso de Delacour y la clave dicotómica de Johnsgard separan igualmente a las dos formas «de cola de bronce» por el color de la cabeza y del cuello (del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Madge y McGowan señalan que se separa del faisán pavo malayo por tener la cabeza y las partes inferiores mucho más oscuras, las partes superiores pardo rojizo, la cola más larga y estrecha y carecer de cresta rizada, y por vivir en otros hábitats y a otras altitudes; la hembra puede confundirse con las hembras del argus crestado y del argus grande, pero estas son mucho mayores y tienen una cabeza con dibujo distintivo (Madge y McGowan, 2002).
Historia
De unos ejemplares de Ulu Pahang a las pajareras de California, Hong Kong y Malasia.
Rothschild describió la especie en 1903; Beebe la vio por primera vez en libertad unos años después, y su cría en cautividad no se logró con éxito hasta bien entrado el siglo XX (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Howman, 1993).
La descripción de 1903
Lord Rothschild la describió en el Bulletin of the British Ornithologists’ Club con localidad tipo en Ulu Pahang, en la península malaya; Beebe indica que el ejemplar tipo se conserva en el Museo de Tring (Avibase; Beebe, 1922; Delacour, 1977). Avibase enlaza con el texto original digitalizado en la Biodiversity Heritage Library (Avibase). Ninguna de las fuentes consultadas dice quién recogió el ejemplar tipo.
Antes de la monografía de Beebe, la especie solo se conocía por pieles de museo. Robinson la registró en 1906 y 1909 en varias montañas de Pahang y Selangor (Beebe, 1922). Delacour, que se apoya en Robinson y Chasen, la describe como habitante estricto de un país muy abrupto y montañoso, no rara en las cumbres altas entre Selangor y Pahang, donde vive en grupos de cuatro o cinco en espesuras de barrancos umbríos (Delacour, 1977).
Beebe en Pahang
Beebe quiso verla en vida, y cuenta en el volumen IV de su monografía que pasaron muchos días en la zona antes de que lograra ver una sola ave; en Pheasant Jungles afirma que ni esta especie ni el argus ocelado habían sido vistos antes por un blanco y que nada se sabía de su vida en libertad (Beebe, 1922; Beebe, 1927). Tomó como base el paso de Semangko, a unos 2.700 pies de altitud, y trepó por laderas sin senda hasta unos 4.500 pies, entre bambúes y lianas; algunas jornadas avanzó apenas tres o cuatro millas (Beebe, 1922; Beebe, 1927).
Su primera observación fue, según su relato, hacia el final de una tarde, junto a un deslizamiento de tierra en el lado de Pahang, cerca de una cresta de bambúes: cinco aves, tres adultas y dos jóvenes a medio crecer, que permanecieron a la vista unos cuatro minutos. Una de las adultas se quedó quieta con la cabeza alzada y la cola cerrada; las otras caminaban con pasos altos y delicados, dos rascaron en la grava lavada por la lluvia, y una de ellas picoteó flores amarillas y se las tragó. Un ave adulta, al entrar en un haz de sol, hinchó el plumaje, abrió e inclinó la cola y levantó un ala mientras bajaba la otra, una postura que mantuvo unos instantes y que Beebe interpretó como el comienzo de la parada nupcial, aunque en este caso fue solo un estiramiento al sol; después emitió una serie de «chack» bajos, como risitas, y todas se perdieron en un helechal (Beebe, 1922).
Al día siguiente, bajo la lluvia, consiguió un macho en plumaje gastado y sin mudar, con el buche lleno de lo que había comido al amanecer (Beebe, 1922). En otro viaje, un viejo cazador malayo le dijo que había abatido muchas y le llevó al lugar donde había encontrado un nido pocos meses antes (véase el capítulo de reproducción) (Beebe, 1922). Beebe cuenta además que, mientras observaba un pequeño grupo en Pahang, vio a cuatro gallos de la jungla acostarse a dormir en un árbol al otro lado de un valle (Beebe, 1921; Beebe, 1927).
Los estudios de campo posteriores
Los estudios de campo recientes citados por Johnsgard son los de Davison y Scriven, que encontraron la especie solo por encima de 900 m, en bosques altos de montaña baja, en lugares empinados y siempre en las crestas o cerca de ellas, y que subrayaron lo difícil que es censarla porque no emite reclamos fuertes (Johnsgard, 1986). El HBW cita en su bibliografía trabajos de Davison (1985–1992), Davison y Scriven (1987), Denton (1978), Medway y Wells (1976), Searle (1986, 1989), Wells (1985, 1990), Bruning y Siti Hawa Yatim (1992) y Siti Hawa Yatim (1993), que no se han podido consultar (del Hoyo et al., 1994). Fuller y colaboradores recogen registros recientes de al menos doce localidades, en dos de las cuales se ha descrito como común, y observan que su rango y su abundancia relativa son poco conocidos (Fuller y Garson, 2000).
La cría en cautividad
La historia de la especie en cautividad es corta y está llena de matices. Beebe, en 1922, decía que nunca se había mantenido en cautividad; Delacour, en el texto disponible, que no se había importado todavía, y su manual de cría, en su 5.ª edición, que nunca se había mantenido (Beebe, 1922; Delacour, 1977; Delacour, 1978). Roles escribe, en el mismo pasaje, que no hay registros de aves en cautividad y que una pareja estuvo hasta hace poco en las pajareras de Vern Denton, en California; la hembra murió un año después de su llegada, tras dos puestas de dos huevos que no prosperaron (Roles, 1976). Johnsgard cuenta que una hembra capturada en libertad de Denton puso tres huevos en 1970, ocho en 1971 y varios en 1972, año en que murió (Johnsgard, 1986).
- Beebe: nunca se había mantenido en cautividad (Beebe, 1922).
- Una hembra silvestre de Vern Denton (Livermore, California) pone tres, ocho y varios huevos en tres años; murió en 1972 (Johnsgard, 1986). Denton publica en 1978 sus experiencias con la especie (Johnsgard, 1986).
- Howman (1979): pocas aves han estado en cautividad y se sabe poco de ellas; Roles describe la pareja de Denton (Howman, 1979; Roles, 1976).
- Johnsgard observa una breve parada nupcial de una pareja en la colección de Denton, el 22 de febrero (Johnsgard, 1986).
- Howman (edición de 1993): quince años después de escribir, en 1976, que se sabía poco de ellas, la situación ha cambiado; se ha criado con éxito en los Hong Kong Botanical Bird Gardens (Ken Searle) y en los centros de cría del Departamento de Bosques y Fauna de Malasia (Howman, 1993).
- Se inicia un registro genealógico internacional y un consorcio de cría, coordinados por la New York Zoological Society (Wildlife Conservation International) y el Departamento de Fauna y Parques Nacionales de la península malaya; en febrero de 1993 hay 111 aves (del Hoyo et al., 1994).
- Fuller y Garson: más de 450 aves (registro genealógico internacional); guardián del registro, D. Bruning (Fuller y Garson, 2000).
El HBW dice que la especie fue una de las últimas en criarse con éxito por primera vez en cautividad: casi desconocida en las colecciones hasta finales de la década de 1970, el éxito reproductor en Hong Kong y Malasia permitió formar una pequeña población (del Hoyo et al., 1994). Fuller y colaboradores añaden que el Departamento de Fauna de Malasia creó a comienzos de los años ochenta el Centro de Cría de Faisanes de Sungkai, que conserva reservas genéticas de especies endémicas y ha formado grupos de cría en el Reino Unido y en Estados Unidos, y que otro centro estaba en construcción en el estado de Johore; las fuentes consultadas no precisan qué especies se criaron en ellos (Fuller y Garson, 2000).
Morfología y plumajes
Un faisán pavo sin cresta, castaño por encima y gris casi negro por debajo, con ocelos azules muy pequeños.
Es un faisán pavo de cuerpo largo y sin cresta, casi gris negruzco en la cabeza, el cuello y las partes inferiores, con las partes superiores pardo rojizo marcadas por ocelos pequeños y una cola larga, graduada y vermiculada. (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002)
El macho
♂ El macho presenta una cola larga y, en el cuerpo, unos pequeños ocelos de color azul. El manto que lo recubre es de color marrón, las patas son grisáceas, el iris marrón y el pico gris. (Hernández García, 2014; Wikipedia)


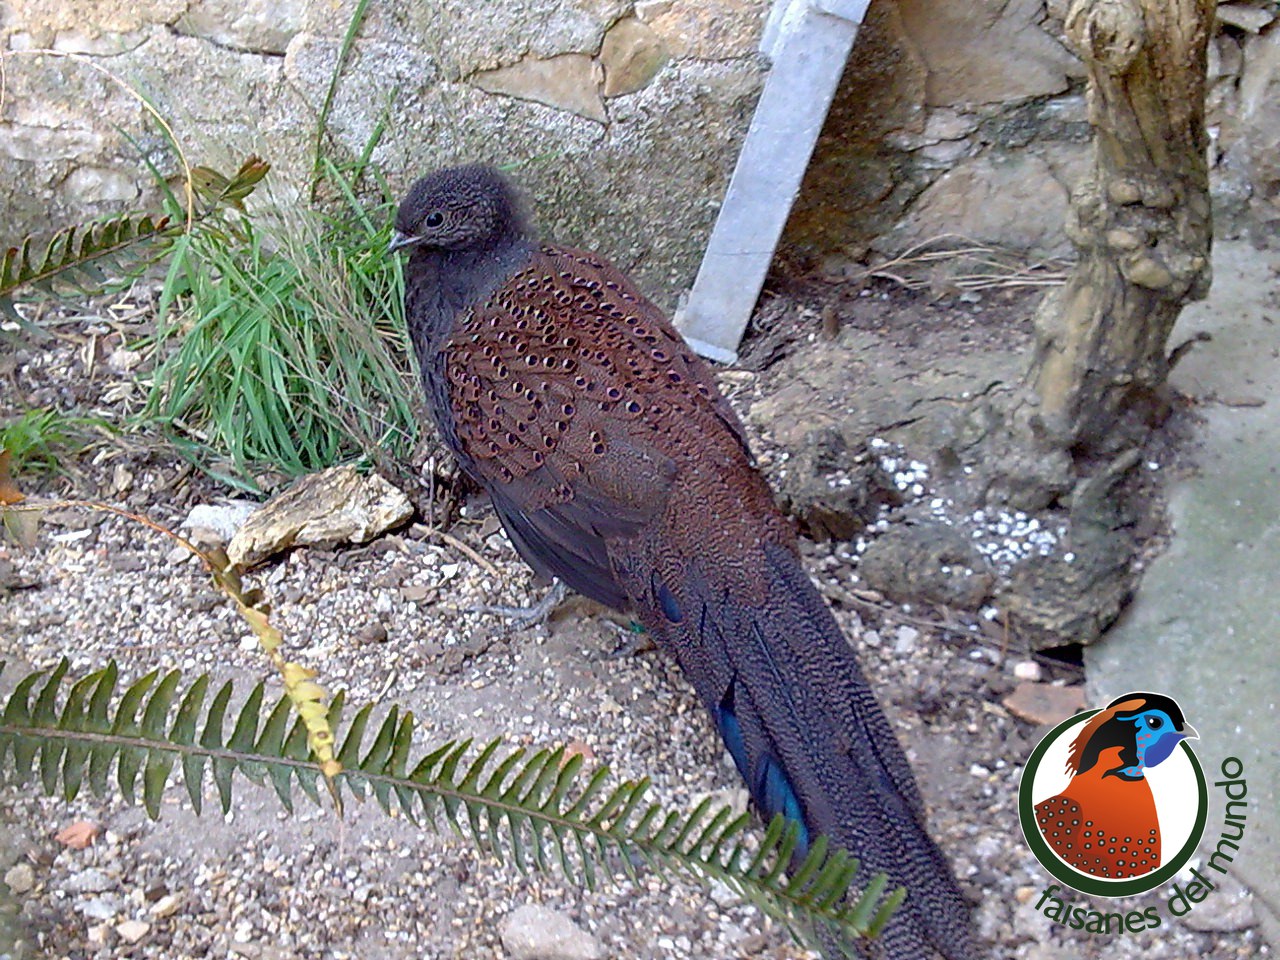
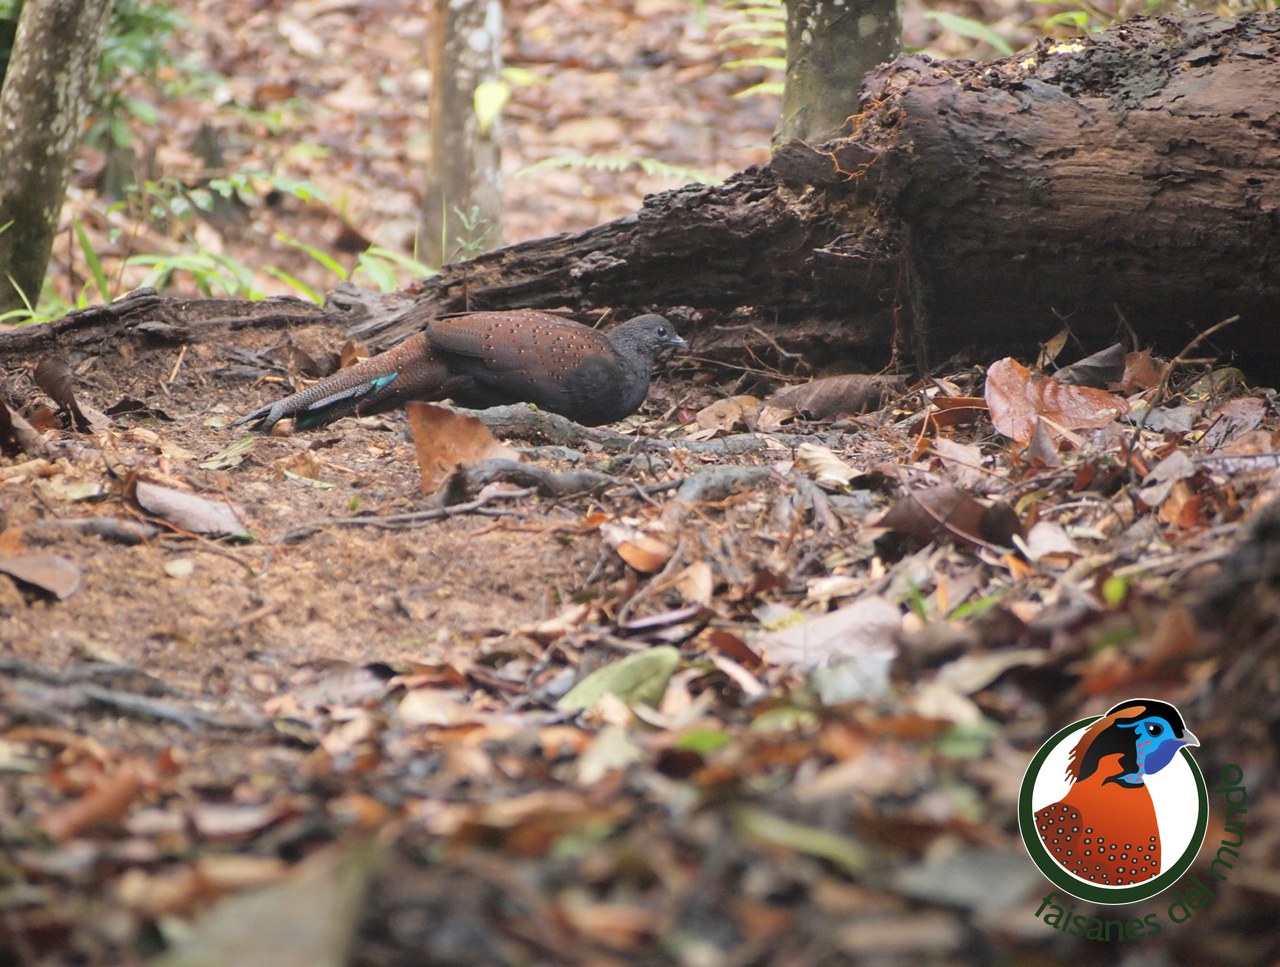
Delacour y Johnsgard describen la cabeza sin cresta, y el cuello, la cara y la garganta de un gris oscuro finamente veteado de gris claro y moteado o listado de blanco, sobre todo en la garganta y la cara; en la nuca y la parte alta de la espalda hay una gorguera muy corta de plumas esponjosas del mismo color. El manto, las alas y el dorso son castaños con líneas negras onduladas, con la base de las plumas grisácea; en la punta de cada pluma hay un ocelo azul metálico pequeño, rodeado por una línea negra y por un anillo rojizo más ancho, y con una mancha blanco ante en la base. Las primarias son de un negro mate sin marcas; las coberteras supracaudales están moteadas de castaño y negro, y las exteriores llevan grandes manchas azules, contiguas, en las dos barbas. Las partes inferiores son de un negro grisáceo finamente moteado de gris claro; los muslos y las infracaudales tienen un tinte pardo (Delacour, 1977; Johnsgard, 1986).
Beebe, que describió aves frescas, da una imagen algo distinta de los ocelos: cada pluma del dorso lleva un ocelo negro subterminal con el centro azul violeta, dentro de una pequeña zona castaña, y una mancha basal en el astil de color ante pálido; en machos adultos plenos los ocelos persisten bien desarrollados hasta la rabadilla, y en los más jóvenes se desvanecen hacia la mitad del dorso, donde aparece una segunda mancha ante en el extremo distal. Las coberteras alares y las secundarias internas no se distinguen del manto, y los ocelos desaparecen de golpe en la octava secundaria; las demás secundarias son de un pardo negruzco con motas rufas o ante que se difuminan (Beebe, 1922).
La cola y el espolón
La cola del macho tiene veinte timoneles, no dieciséis como se suponía antes, según Beebe; son puntiagudos y están fuertemente graduados, de color negro con motas ante, y el par central carece de mancha metálica o la lleva solo en la barba externa; el segundo par tiene una mancha reducida en la barba interna, y los demás, manchas verdes en las dos barbas, más pequeñas en la interna. Esas manchas tienden a ser redondas y a parecerse a ocelos, de modo que son una forma intermedia entre los parches del faisán pavo de Sumatra y los ocelos de las demás especies (Beebe, 1922; Delacour, 1977; Johnsgard, 1986). Beebe observó que el par central puede carecer por completo de adorno, o llevar en cada pluma, en la barba externa, desde una mancha negra incipiente hasta un ocelo iridiscente completo de unos 4 cm; a veces un timonel central lo tiene y el otro no (Beebe, 1922).
Los ocelos de las coberteras y los timoneles centrales brillan en verde con cualquier luz; los laterales se ven de un azul intenso mirando hacia la luz, que vira a verde al alejarse del punto de iluminación; en los timoneles laterales los ocelos son dobles y el externo es mucho mayor que el interno (Beebe, 1922). La muda de la cola, según Beebe, empieza por el tercer timonel contado desde el interior y avanza hacia fuera, como en Polyplectron y en el argus (Beebe, 1922).

La foto de una pluma muestra el aspecto de un ocelo azul de la especie, sin que las fuentes permitan precisar de qué pluma se trata. El macho tiene espolones: dos en las fuentes más generales (Madge y McGowan, Wikipedia), «uno o dos» según BOW y de dos a cinco en la clave de Johnsgard; Beebe, que examinó muchos ejemplares, encontró lo más frecuente un espolón en una pata y dos en la otra, algo menos uno en cada una, y solo en dos casos dos en cada pata; son rectos, agudos y de unos 10 mm de longitud media (Beebe, 1922; BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia).
Partes blandas
| Parte | Macho | Hembra | Fuente |
|---|---|---|---|
| Iris | marrón; avellana según Beebe | marrón; ídem | Delacour; Madge y McGowan; Beebe |
| Pico | gris; cuerno azulado más pálido en la punta según Beebe | ídem | Delacour; Madge y McGowan; Beebe |
| Patas y pies | gris; gris oscuro según Beebe (el texto de la web: grisáceas) | ídem; más cortas | Delacour; Beebe; Hernández García |
| Espolones | uno o dos; hasta cinco en la clave de Johnsgard | ausentes | Madge y McGowan; BOW; Johnsgard; Beebe |
| Piel desnuda de la cara | muy poca; cara totalmente emplumada | ídem | Beebe; Johnsgard |
(Beebe, 1922; BOW, 2020; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
La hembra
♀ La hembra presenta una constitución semejante a la del macho y, al igual que este, tiene las patas grises y el iris marrón. También presenta ocelos en sus plumas. (Delacour, 1977; Hernández García, 2014)
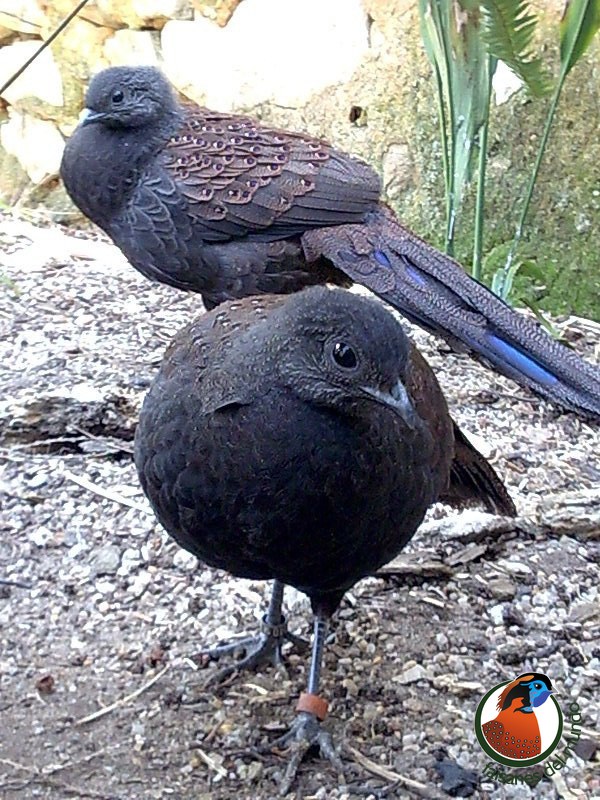
La hembra es mucho más pequeña que el macho, con la cola más corta y menos graduada y las patas más cortas (Delacour, 1977; Madge y McGowan, 2002). Sus ocelos de las partes superiores se sustituyen por manchas negras sin brillo; la cola tiene dieciocho timoneles, con el moteado más rojizo e irregular, y apenas lleva ocelos en ellos (Delacour, 1977; Madge y McGowan, 2002; Roles, 1976). Los ocelos —esas manchas iridiscentes en forma de ojo que decoran el plumaje— son la mejor guía para diferenciar a los sexos: el macho luce hasta veinte plumas en la cola con ocelos de tono azul verdoso metálico y un espolón en cada tarso, mientras que la hembra presenta dieciocho plumas caudales con ocelos negros, sin brillo metálico, y carece de espolones (Wikipedia).
Beebe, que tuvo hembras adultas en la mano, matiza que, salvo en el desarrollo de los ocelos del cuerpo y de las alas y en el tamaño, la hembra no se diferencia del macho: en una hembra completamente adulta los ocelos son tan grandes y numerosos como en el macho, pero sin el brillo violeta de los del cuerpo y las alas, o con un lustre apenas visible con ciertas luces; no hay ocelos en las coberteras de la cola ni en los timoneles centrales y están algo menos desarrollados en los laterales, y en los timoneles exteriores falta el ocelo de la barba interna (Beebe, 1922).
Juvenil y muda
El macho de primer año es más pequeño y menos vistoso que el adulto (Delacour, 1977; Howman, 1993; Madge y McGowan, 2002). BOW (recuadro de la ficha original) lo describe «más pequeño y apagado que la hembra adulta», mientras que Delacour y Madge y McGowan dicen que es más pequeño y apagado que el macho adulto (BOW, 2020; Delacour, 1977; Madge y McGowan, 2002). Beebe describe un macho de primer año con el cuello casi sin las manchas blancas subterminales del adulto, las manchas dorsales pocas y sin color metálico, y todo el plumaje superior más oscuro y menos castaño; la cola oscura, moteada de forma irregular y tenue de rojizo, con solo indicios de brillo metálico en los dos pares externos; las partes inferiores casi uniformemente pardo negruzcas, y ningún rastro de espolones (Beebe, 1922). Ese ave medía 395 mm de longitud, con el ala de 155 mm, la cola de 180 mm y el tarso de 52 mm (Beebe, 1922).
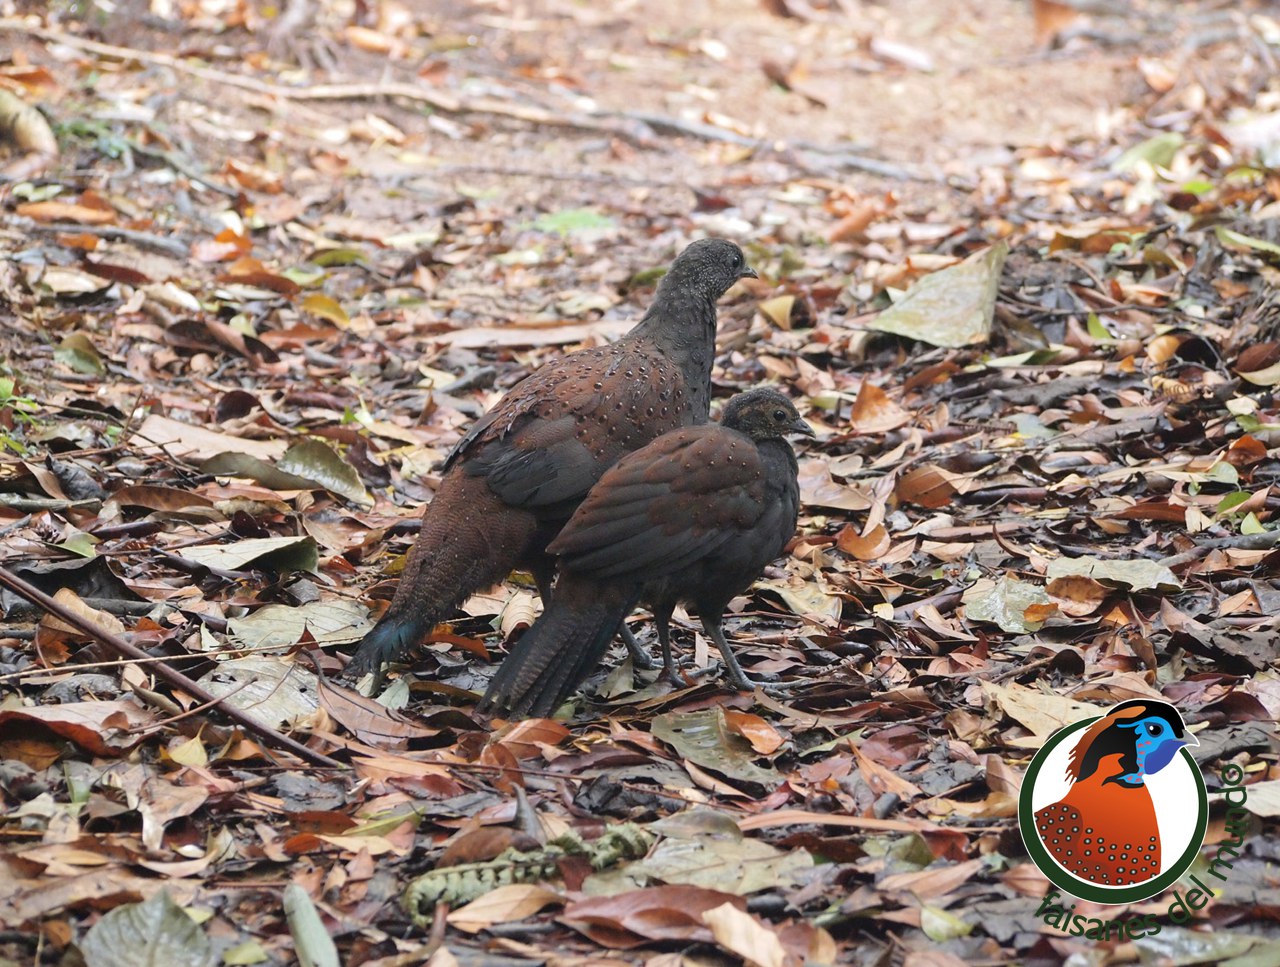
Los jóvenes se parecen a la hembra, y el joven macho se distingue por tener las patas más largas (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). De los jóvenes en muda, Beebe describió uno recogido el 23 de febrero todavía en parte con plumón: la cabeza y el cuello seguían cubiertos del plumón natal, rufo y barrado de negro en la corona, con las coberteras auriculares casi negras y una zona pálida ante en el mentón y la garganta; el plumaje del cuerpo, ya crecido, era de un pardo oscuro monocromo por debajo, con una mancha terminal ante bien marcada en las alas, y los timoneles estaban moteados de forma irregular, con barras rufas como en la hembra (Beebe, 1922).
Polluelo
El pollo es de color oscuro y de patas largas (Hernández García, 2014). El plumón es rufo por encima y beige por debajo, según el HBW, Madge y McGowan y BOW; Delacour lo da, para el género, de tipo común con la cabeza y las partes superiores rufas (BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). Delacour describe el plumón del género con la corona y las partes superiores de un castaño rico, dos anchas bandas ante a los lados del dorso, la frente y la cara de un pardo más claro y las partes inferiores ante, más ricas en el pecho; en el faisán pavo de Rothschild no hay descripción de detalle de un pollo de plumón en las fuentes consultadas, salvo los datos mencionados (del Hoyo et al., 1994; Delacour, 1977).
Identificación en el campo y en la mano
En el campo, Johnsgard da una longitud de 18 a 26 pulgadas; subraya que, donde coexiste con el faisán pavo malayo, este es de tierras bajas y no se espera en los hábitats de montaña de aquel, que además carece de cresta y tiene la cara completamente emplumada; la cabeza y la cara son más grises que el resto de las partes superiores, de tono castaño; en ambos sexos las partes superiores están salpicadas de ocelos pequeños y oscuros, pero los de las plumas de la cola se limitan a las laterales, donde son grandes y algo imprecisos (Johnsgard, 1986). En la mano, la presencia de pequeños ocelos en el manto la identifica como faisán pavo, y es la única que carece a la vez de cresta y de piel facial desnuda extensa y tiene, sin embargo, ocelos claros en las partes superiores (Johnsgard, 1986).
Aspecto general
Roles resume el aspecto de la especie como el de unos machos sin cresta, de colores sutiles y dibujos intrincados, y comenta que la hembra, más pequeña, tiene un dibujo semejante y la cola más corta y menos graduada (Roles, 1976). Madge y McGowan la describen como un ave de cabeza relativamente pequeña, sin cresta pero con un ligero rizado en la parte alta de la nuca; las coberteras supracaudales son largas y ocultan la cuarta parte basal de la cola o más; los sexos son semejantes; las patas son delgadas (Madge y McGowan, 2002).
Medidas y peso
Los datos de la guía original, contrastados con la literatura: casi todas las obras remiten a Delacour.
El faisán pavo de Rothschild alcanza una longitud de 65 cm en el macho y de 46 cm en la hembra. Las alas miden de 23 a 25 cm en el macho y de 17,5 a 19 cm en la hembra; la cola, 40 cm y de 22 a 27 cm, respectivamente, y el tarso, 6,5 cm y 5,5 cm. La tabla no recoge datos de peso. (Hernández García, 2014)
El libro del autor, sin embargo, sí da un peso, de 500 y 900 g para el macho y 500 g para la hembra, y el tarso lo expresa como 65 cm y 55 cm, evidentemente en milímetros (Hernández García, 2014). Ninguna de las obras de referencia revisadas (Delacour, Johnsgard, Madge y McGowan, HBW) da pesos: Johnsgard escribe expresamente que no hay pesos disponibles, y Madge y McGowan, que no hay datos de peso (del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Medidas según distintas fuentes
Las cifras de Delacour, Johnsgard, Madge y McGowan coinciden porque proceden todas de las medidas que Delacour publicó; las de BOW y el HBW dan la longitud total y la cola en centímetros (BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002):
| Fuente | Longitud ♂ | Longitud ♀ | Cola ♂ | Cola ♀ | Peso ♂ | Peso ♀ |
|---|---|---|---|---|---|---|
| Tabla original de esta guía | 65 cm | 46 cm | 40 cm | 22–27 cm | — | — |
| Libro del autor (2014) | 65 cm | 46 cm | 40 cm | 22–27 cm | 500 y 900 g | 500 g |
| Delacour (1977) | 650 mm | 460 mm | 320–400 mm | 220–275 mm | — | — |
| Beebe (1922; un macho y una hembra) | — | — | 320–380 mm | 215–255 mm | — | — |
| Johnsgard (1986) | 18–26 pulgadas (campo) | — | 320–400 mm (de Delacour) | 220–275 mm (de Delacour) | sin datos | sin datos |
| Madge y McGowan (2002) | c. 65 cm | c. 46 cm | 320–400 mm | 220–275 mm | sin datos | sin datos |
| HBW (1994) y BOW | c. 65 cm | c. 46 cm | 32–40 cm | 22–27,5 cm | — | — |
| Wikipedia | hasta 65 cm | — | — | — | — | — |
Delacour da la longitud en milímetros; Beebe, en milímetros también. Los pesos del libro del autor no tienen respaldo en las demás obras. (Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia)
| Medida | Macho | Hembra | Fuente |
|---|---|---|---|
| Ala | 230–255 mm | 175–190 mm | Delacour; Madge y McGowan; Johnsgard |
| Ala (ejemplares de Beebe) | 210 mm | 180 mm | Beebe |
| Ala (tabla de la guía, hembra corregida) | 23–25 cm | 17,5–19 cm | Hernández García; Delacour, Johnsgard, Madge y McGowan |
| Tarso | 65 mm | 55 mm | Delacour; Madge y McGowan |
| Tarso (ejemplares de Beebe) | 73 mm | 58 mm | Beebe |
| Tarso (tabla de la guía) | 6,5 cm | 5,5 cm | Hernández García |
| Culmen | 22 mm | 20 mm | Delacour |
| Pico desde la narina (Beebe) | 12 mm | 11 mm | Beebe |
| Dedo medio con uña (Beebe) | 54 mm | 43 mm | Beebe |
| Espolón (Beebe) | recto, agudo, de unos 10 mm | ausente | Beebe |
| Macho de primer año (Beebe) | longitud 395 mm; ala 155; cola 180; tarso 52 | Beebe | |
| Huevo (Johnsgard, de V. Denton) | 53,2 × 37,0 mm (51–57 × 36–38); peso estimado, 40,2 g | Johnsgard | |
| Huevo (BOW, recuadro) | unos 51–53 mm de largo | BOW | |
| Huevo (guía, ajustado a Johnsgard) | 5,3 × 3,7 cm; unos 40 g | Johnsgard; Hernández García |
(Beebe, 1922; BOW, 2020; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
Entre los faisanes pavo próximos
| Especie | Longitud ♂ | Longitud ♀ | Cola ♂ | Cola ♀ | Peso |
|---|---|---|---|---|---|
| Faisán pavo de Rothschild | c. 65 cm | c. 46 cm | 320–400 mm | 220–275 mm | sin datos |
| Faisán pavo de Sumatra | c. 56 cm | c. 40 cm | 260–380 mm | 180–220 mm | ♂ 425 y 590 g (dos aves); ♀ 238–269 g (cuatro) |
| Faisán pavo de Germain | 56–60 cm | c. 48 cm | 250–320 mm | 220–250 mm | ♂ 510 g (un ave); ♀ 397 g (una) |
Madge y McGowan. El macho del faisán pavo de Rothschild es el mayor de los tres, y en los de Sumatra y Germain los pesos son de aves de cautividad (Madge y McGowan, 2002).
Huevos
El texto de la guía da el huevo como blanco, de unos 40 g y 5,3 × 3,7 cm (cifras ajustadas por decisión editorial a las de Johnsgard); las demás fuentes lo describen blanco crema o blanco amarillento, bastante alargado, de unos 51–57 mm de largo (BOW, 2020; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). Delacour, en su texto, añade que solo se conocían entonces fragmentos de cáscara, y Beebe halló seis trozos de cáscara blanquecina en el lugar del nido que le enseñó el cazador malayo (Beebe, 1922; Delacour, 1977).

Distribución y hábitat
Las montañas del centro de la península malaya, en bosques húmedos de crestas y barrancos.

El faisán pavo de Rothschild vive en las montañas centrales de Malasia, a una altitud de entre unos 600 y 1.200 m. (Hernández García, 2014)
Área de distribución
Es una especie endémica de los bosques montanos del centro de la península malaya, concentrada en la cordillera de Titiwangsa (zona de Cameron Highlands) (Wikipedia). BirdLife la sitúa en Malasia, en la Cordillera Principal desde Cameron Highlands al sur hasta Genting Highlands, en la cordillera de Larut al noroeste y en los picos periféricos orientales de Gunung Tahan y Gunung Benom, y, de forma muy marginal, en el extremo sur de Tailandia, en los picos de Hala Bala (BirdLife DataZone, 2023). Madge y McGowan dan el mismo reparto para Malasia (Madge y McGowan, 2002). BOW (recuadro) añade que podría darse también en el extremo sur de Tailandia, en la provincia de Yala, a partir de una pluma de cola (BOW, 2020).
BirdLife calcula una extensión de presencia (resident/breeding) de 28.500 km², sin saber si hay un descenso continuado de esa extensión; no se conoce la superficie de ocupación, aunque sí se da un descenso continuado en ella, ni el número de localidades, y no la considera gravemente fragmentada (BirdLife DataZone, 2023). BOW (recuadro) da un área de unos 12.700 km² y 14 localidades, de las que solo en seis se ha registrado desde la década de 1970 (BOW, 2020). Fuller y colaboradores hablan de registros recientes de al menos 12 localidades; Madge y McGowan, de 12 áreas, concentradas en Fraser’s Hill y Cameron Highlands (Fuller y Garson, 2000; Madge y McGowan, 2002).
| Localidad | Dato | Fuente |
|---|---|---|
| Ulu Pahang | localidad tipo (1903) | Delacour; HBW; Avibase |
| Bukit Fraser (Fraser’s Hill) y paso de Semangko | punto de partida del área descrita por Johnsgard; Beebe trabajó en el paso de Semangko | Johnsgard; Beebe |
| Gunong Ulu Kali, Gunong Mengkuang Lebah (Mengjuang Lebar) | a lo largo de la cordillera principal; en Mengkuang Lebah, de 4.000 a 5.800 pies | Johnsgard; Beebe |
| Gunong Tahan y Gunong Benom (Pahang) | picos periféricos orientales; en Tahan es rara, a 3.000 pies | Johnsgard; Beebe; BirdLife |
| Ulu Dong (Pahang) | registro de Robinson | Beebe |
| Cameron Highlands y Genting Highlands | límites norte y sur de la cordillera principal | BirdLife; Madge y McGowan |
| Cordillera de Larut | noroeste | BirdLife; Madge y McGowan |
| Hala Bala (sur de Tailandia) | marginal | BirdLife |
| Provincia de Yala (Tailandia) | indicios por una pluma | BOW (recuadro) |
(Avibase; Beebe, 1922; BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)

Johnsgard señala que la península malaya, al sur del istmo de Kra, es una de las zonas de mayor diversidad de faisanes de Asia, con ocho especies autóctonas, entre ellas un endemismo, el faisán pavo de Rothschild, y que parece ser el centro de diversidad evolutiva de los faisanes de tipo pavonino (Pavo, Argusianus, Rheinartia y Polyplectron) (Johnsgard, 1986).
Altitud: cada fuente da un rango
| Fuente | Altitud | Observaciones |
|---|---|---|
| Texto de la guía y libro del autor | 600–1.200 m | sin fuente citada |
| Beebe (1922) | por encima de unos 3.000 pies | afirma que debe buscarse por encima de esa altura; nido a unos 3.200 pies; en Mengkuang Lebah de 4.000 a 5.800 pies |
| Johnsgard (1986) | por encima de 900 m (3.200–3.500 pies) | solo se ha observado por encima de 900 m; una vez a 1.800 m (Davison y Scriven; Medway y Wells) |
| Madge y McGowan (2002) | 820–1.800 m (texto); 900–2.000 m (lámina) | una pluma a unos 600 m |
| HBW (1994) | 900–2.000 m | nido a 970 m |
| Fuller y Garson (2000) | de unos 820 m a al menos 1.600 m | una vez a 1.800 m |
| BirdLife (2023) | 820–1.800 m (ecología: 820 a al menos 1.600 m) | ocasional a 1.800 m |
| BOW (recuadro) | 820–2.000 m | una pluma a 600 m |
| Wikipedia (recuadro) | hasta 1.800 m | algunas fuentes amplían el rango hasta esa altitud |
| Green-Armytage (2002) | por encima de 3.000 pies | sin solapamiento con los faisanes pavo malayos |
(Beebe, 1922; BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Green-Armytage, 2002; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia)
Hábitat
Vive en bosque montano sin talar: el HBW la da en todo el bosque de dipterocarpáceas altas sin talar, en bosque montano bajo y en bosque montano alto; BirdLife, en el bosque montano húmedo subtropical y tropical, de forma sedentaria, incluido el bosque enano de las cumbres, con una dependencia del bosque muy alta; Madge y McGowan, en bosque montano abrupto, incluido el de dipterocarpáceas, en las laderas altas (BirdLife DataZone, 2023; del Hoyo et al., 1994; Madge y McGowan, 2002). Wikipedia (recuadro) subraya que ocupa bosque primario denso con abundante sotobosque, donde su carácter esquivo y sigiloso hace muy difícil observarla (Wikipedia). Johnsgard, a partir de Davison y Scriven, añade que los lugares donde se la encontró eran empinados, con roca madre al descubierto, algo de bambú y palmas trepadoras sin tallo, con suelos delgados sobre materiales graníticos, aunque se ha citado también en suelos de arenisca, y que las aves se hallaron siempre sobre las crestas o muy cerca de ellas; en la zonación de la montaña, la sitúa en la zona de roble y laurel, de 1.200 a 1.500 m, con un rango de 900 a 1.800 m (Johnsgard, 1986). Fuller y colaboradores la consideran sedentaria en el bosque perennifolio montano bajo y alto, incluido el bosque enano, en zonas empinadas o en crestas con afloramientos rocosos (Fuller y Garson, 2000).
Beebe, en el relato de su estancia, describe los barrancos húmedos y oscuros, con arroyos en el fondo, donde reinan la penumbra y el frescor, y las crestas soleadas donde todo es calor y brillo; los lados altos de los barrancos, sobre todo los de orientación este y nordeste, eran los lugares preferidos, y allí encontró los lugares donde habían rascado profundos agujeros en el mantillo y en troncos medio descompuestos (Beebe, 1922).
Densidad y área de campeo
No hay estimas de densidad de población: Johnsgard dice que son comunes («fairly common») en las crestas, sin cifras, y BirdLife señala que la densidad de la especie no se ha estimado nunca; infiere densidades similares a las de otros faisanes pavo, de unos 2,5–8,5 individuos maduros por km², a partir de 3,74 aves/km² del de Hainan y 4,33 machos que cantan por km² del de Germain (BirdLife DataZone, 2023; Johnsgard, 1986). No hay información sobre movimientos; Johnsgard considera improbables los desplazamientos importantes, dada la limitación geográfica y de altitud de su área (Johnsgard, 1986).
Compañeros de hábitat y depredadores
Johnsgard indica que a esa altitud no vive ningún otro faisán pavo y que parece improbable que compita con los faisanes de fuego o con los argus (Johnsgard, 1986). Madge y McGowan la dan como la especie que sustituye en las montañas al faisán pavo malayo, que vive en las tierras bajas (Madge y McGowan, 2002). Davison y Scriven, citados por Johnsgard, vieron que ambas especies están separadas por la altitud (Johnsgard, 1986). En el mismo bosque vio Beebe cálaos, drongos, musarañas arborícolas y gallos de la jungla, y vivía el argus ocelado, que oyó y atrapó sin llegar a verlo (Beebe, 1922; Beebe, 1927). No se sabe con certeza nada de sus depredadores; Beebe supuso que las civetas (musangs) podrían ser una amenaza constante (Beebe, 1922; Johnsgard, 1986).
Comportamiento y voz
Un ave esquiva, de grupos pequeños y poco ruidosa: casi todo lo que se sabe viene de unos minutos de observación y de las aves de pajarera.
Es una de las aves menos vocales del género, y a esa discreción se debe en buena parte lo poco que se sabe de ella: BirdLife señala que su falta de reclamos fuertes la hace menos fácil de detectar (BirdLife DataZone, 2023; Johnsgard, 1986; Madge y McGowan, 2002).
Costumbres diarias
Según Delacour, que recoge a Robinson y Chasen, vive en el suelo, vuela mal y se alimenta de larvas y frutos; en las cumbres altas entre Selangor y Pahang no es rara y ocupa espesuras de barrancos umbríos (Delacour, 1977). Madge y McGowan la describen en grupos de cuatro o cinco, pero, como sus congéneres, muy cauta y dispuesta a deslizarse entre el sotobosque ante la menor señal de molestia; prefiere los barrancos cubiertos de vegetación en terreno montañoso, pero se la ve sobre todo en los senderos de las crestas o cerca de ellas (Madge y McGowan, 2002). Wikipedia habla de un ave esquiva y sigilosa (Wikipedia). Green-Armytage dice que se mueve en grupos pequeños y que ocupa altitudes superiores a las de los faisanes pavo malayos (Green-Armytage, 2002); Roles, que viaja en pequeños grupos familiares o en parejas (Roles, 1976).
Beebe es la fuente de la mayoría de los detalles. Contó que prefiere correr a volar y que nunca la vio alzar el vuelo, y que no es frecuente cerca de las aldeas, aunque supo de un joven capturado cerca de una casa; dos veces vio a ejemplares solitarios posados sobre las ramas secas desnudas de árboles altos, al parecer tomando el sol, un detalle que le recordó a los pavos reales; supuso que duermen en árboles sin lianas ni parásitos, pero no conoció su dormidero (Beebe, 1922). Roles, por su parte, dice que tiene fama de volar mal (Roles, 1976).
En una pajarera, Corder muestra una de estas aves dormida sobre una puerta, el punto más alto disponible, que prefería a las perchas más bajas (Corder).
Voz
| Fuente | Descripción |
|---|---|
| Beebe (1922) | un «chack» bajo, como una risita, repetido varias veces (chack–chack–chack), emitido por un ave al entrar en el helechal |
| Johnsgard (1986) | un «chack» bajo, de conversación, y un silbido ahogado y descendente; no hay reclamos territoriales de macho descritos |
| Madge y McGowan (2002) | el macho emite de 1 a 4 (normalmente 2) graznidos o cloqueos bastante fuertes y ásperos, en series separadas por 5–6 segundos; en alarma, cloqueos parecidos a los de una gallina doméstica; también un silbido bajo, descendente, como un borboteo; menos vocal que sus congéneres |
| BOW (recuadro) | el reclamo territorial del macho consiste en uno a cuatro graznidos zumbantes, normalmente dos; menos vocal que sus congéneres |
| Delacour (1977) | la voz, la exhibición y el comportamiento apenas se conocen; Beebe registró una especie de risita |
| Fuller y Garson (2000); BirdLife (2023) | menos vocal que los demás miembros del género y, por tanto, menos fácil de detectar |
(Beebe, 1922; BirdLife DataZone, 2023; BOW, 2020; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002)
Johnsgard anota que, si los machos son territoriales, parecen carecer de reclamos fuertes de anuncio o desafío, pues no se ha descrito ninguno, y que Davison y Scriven consideran difícil censarla por la ausencia de llamadas fuertes (Johnsgard, 1986). En su visita a la pareja de Denton, el 22 de febrero de 1983, no oyó ningún reclamo, ni de macho ni de hembra, en la breve exhibición que observó (Johnsgard, 1986).
Organización social
Beebe vio una vez cinco aves juntas (tres adultas y dos jóvenes), sin poder determinar el sexo de los adultos, aunque al menos uno era macho; es la única observación prolongada que tuvo de la especie (Beebe, 1922; Johnsgard, 1986). Madge y McGowan refieren grupos de cuatro o cinco (Madge y McGowan, 2002). No se sabe con certeza su sistema de apareamiento: Madge y McGowan y Johnsgard suponen monogamia por el escaso dimorfismo sexual, sin datos categóricos; Johnsgard recuerda que Ridley (en prensa) creía que los machos de la mayoría de los faisanes pavo abandonan a sus parejas durante o después de la puesta y pueden aparearse con otra hembra (poliginia secuencial), y que Vern Denton no encontró indicios de poliginia en sus aves en cautividad cuando se le dio la oportunidad (Johnsgard, 1986; Madge y McGowan, 2002). BOW (recuadro) supone un sistema monógamo, sin datos concretos (BOW, 2020). En cautividad, Delacour dice que en el género los machos son monógamos y que cada pareja debe aislarse, aunque muy ocasionalmente se han mantenido tríos (Delacour, 1977).
Cómo reacciona al ser molestada
Como sus congéneres, es muy cauta y se desliza hacia el sotobosque al menor signo de molestia (Madge y McGowan, 2002). Beebe dice que prefiere correr; durante su primera observación, las cinco aves permanecieron a la vista unos cuatro minutos y luego se perdieron una por una en el helechal, todas en la misma dirección (Beebe, 1922). Delacour afirma, para los faisanes pavo en general, que se los puede atrapar con lazos colocados junto a vallas o atados a un arbolillo, pero que rara vez se las ve (Delacour, 1977).
Sobre los sonidos: la ficha original de la web incluía un epígrafe «Sonidos y llamadas de la especie» sin ningún archivo de audio asociado. BOW registra, en su fonoteca, 7 grabaciones de la especie, 23 vídeos y 1.191 fotografías, y 1.032 observaciones en eBird en el momento de la consulta (BOW, 2020).
Sonidos y llamadas de la especie
Alimentación
Poco se sabe de la dieta silvestre: larvas, termitas, hormigas, escarabajos y frutos de ratán.
Una buena combinación para mantener estos faisanes en buenas condiciones es ofrecerles semillas germinadas, fruta, gusanos de la harina (Tenebrio molitor) y un buen pienso para faisanes. (del Campo, 2006; Hernández García, 2014)
En libertad
Los datos son escasos. El único buche examinado, de un macho que Beebe recogió por la mañana, contenía arañas, termitas («hormigas blancas»), varias larvas y otro material animal sin identificar, entre ello dos animales planos y extraños, que parecían trilobites devónicos y que no se sabía si eran insectos o crustáceos (Beebe, 1922; del Hoyo et al., 1994; Johnsgard, 1986). Robinson decía que se alimenta de insectos, miriápodos y del fruto de un ratán trepador, Calamus (Beebe, 1922; Johnsgard, 1986). En libertad, su dieta se compone principalmente de bayas y semillas, complementadas con pequeños invertebrados —sobre todo escarabajos y hormigas— que captura escarbando con el pico entre la hojarasca del sotobosque montano, un comportamiento omnívoro compartido con otros faisanes pavo del género Polyplectron (Wikipedia). Madge y McGowan dan larvas, escarabajos, hormigas y, sobre todo, bayas, en especial las de Calamus (Madge y McGowan, 2002). Delacour dice que se alimenta de larvas y frutos (Delacour, 1977). Beebe vio a dos aves rascar en la grava lavada por la lluvia y a otra arrancar los pétalos de un grupo de flores amarillas y tragárselos, y encontró hoyos profundos, rascados en el mantillo, en las laderas altas de los barrancos (Beebe, 1922; Johnsgard, 1986).
| Fuente | Alimentos citados |
|---|---|
| Beebe (1922) | un buche con arañas, termitas, varias larvas y dos animales planos sin identificar; según Robinson, insectos, miriápodos y fruto del ratán; flores amarillas |
| Delacour (1977) | larvas y frutos |
| Johnsgard (1986) | los datos de Beebe; ningún dato directo adicional |
| Madge y McGowan (2002) | larvas, escarabajos, hormigas y, sobre todo, bayas (Calamus) |
| HBW (1994) | un buche con arañas, termitas, larvas y otro material animal; otros invertebrados y frutos de Calamus |
| Wikipedia | bayas y semillas, con escarabajos y hormigas |
(Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia)
En cautividad
Semillas germinadas, fruta, gusanos de la harina y un buen pienso para faisanes son la pauta del libro del autor (Hernández García, 2014). Howman dice que la alimentación de la especie es la de los demás faisanes pavo, es decir, la dieta normal de faisán más cacahuetes, fruta troceada, semillas y gusanos de la harina, aunque en su primera edición escribía solo «probablemente como en otros faisanes pavo» (Howman, 1979; Howman, 1993). Delacour describe para los faisanes pavo en general una alimentación a base de grano, fruta, bayas y mezcla rica o pienso, y subraya que no les gusta la verdura (hierba o lechuga) y que les conviene algo de carne cruda troceada; a los pollos hay que darles insectos vivos, sobre todo gusanos de la harina, en los primeros días o semanas (Delacour, 1977).
Roles cuenta que Denton daba migajas de pienso de crianza de pavos durante todo el año, con maíz en otoño «para engordarlas de cara al invierno», y, a finales del invierno y en primavera, brotes de avena, trigo y cebada cuando medían de dos a tres pulgadas, como única verdura, que se suspendía al terminar la época de cría (Roles, 1976). Recomendación editorial: ofrecer siempre alimento vivo (gusanos de la harina) además del pienso, tanto a los adultos como, sobre todo, a los pollos.
Cortejo y exhibición
Una parada lateral con el ala inferior bajada y la cola inclinada: un estadio intermedio entre el faisán pavo de Sumatra y los faisanes pavo típicos.
Del cortejo en libertad de esta especie apenas existen observaciones directas, dada su rareza y su hábitat escarpado. (Beebe, 1922; Johnsgard, 1986; Wikipedia)
Por analogía con otros faisanes pavo del género Polyplectron, cuyo comportamiento sí se ha estudiado, se sabe que los machos realizan un despliegue lateral: extienden la cola en abanico, bajan un ala y levantan la otra, balanceando cabeza y cola para mostrar de frente a la hembra el máximo número posible de ocelos. (Delacour, 1977; Wikipedia (Peacock-pheasant)) Delacour precisa que, en todas las especies del género, el macho hace una parada lateral normal, caminando con delicadeza alrededor de la hembra, ofreciéndole bocados y cloqueando suavemente, y que en las especies de cola ancha añade una parada frontal notable, con el cuerpo bajado sobre los tarsos doblados y el manto, las alas y la cola abiertos en un círculo plano salpicado de manchas iridiscentes (Delacour, 1977). El faisán pavo de Rothschild, en cambio, solo se ha visto hacer la parada lateral (Delacour, 1977; Johnsgard, 1986; Roles, 1976).
Lo poco que se vio en libertad
Beebe vio un único ave, un macho que entró en un haz de luz solar: hinchó el plumaje del cuerpo y de la cabeza, abrió e inclinó la cola, levantó el ala derecha y bajó la izquierda. La postura duró solo unos instantes, y Beebe la interpretó como el comienzo de la actitud de cortejo de los Polyplectron verdaderos, aunque en este caso, como él mismo aclara, no era más que un estiramiento perezoso por el calor del sol (Beebe, 1922). Beebe no pudo apreciar los detalles del dibujo, porque el ave le mostraba las partes inferiores (Beebe, 1922).
En cautividad
Johnsgard observó brevemente la exhibición de una pareja en la colección de Vern Denton, en Livermore (California), el 22 de febrero de 1983: el macho caminó varias veces en círculo alrededor de un arbusto grande del recinto y, cada vez que salía a la vista de la hembra, se detenía y adoptaba una postura lateral enérgica, con la cola inclinada y abierta, el ala más próxima bajada y la más lejana levantada, inmóvil durante uno o dos segundos. No se oyó ningún reclamo ni se vio ofrecer bocados; a Johnsgard le llamó la atención el uso de la aparición repentina desde detrás del arbusto como una especie de «entrada dramática», sin aleteos ni cantos, y la hembra pareció ignorar todo el espectáculo (Johnsgard, 1986).
Denton le dijo que las paradas que había visto eran posturas laterales «de chasquido» y no la parada frontal completa típica del faisán pavo gris; que el macho suele hacer una parada lateral «parcial», pero, cuando se prepara activamente para criar, una lateral «completa»; y que un híbrido F1 con un faisán pavo gris hacía la parada frontal, mientras que un macho retrocruzado con el de Rothschild tendía a hacerla de lado (Johnsgard, 1986). Roles añade que, de las seis especies de Denton, esta era la única a la que nunca se vio exhibirse; supone que el macho era muy tímido o que lo hacía solo a primera hora de la mañana o al atardecer (Roles, 1976).
BOW (recuadro) describe en cautividad sacudidas del cuerpo, desfiles con las alas extendidas, inclinación de la cola hacia la hembra, movimientos de paso alto y rituales de ofrecimiento de comida (BOW, 2020). Madge y McGowan indican que las posturas de exhibición son intermedias entre las del faisán pavo de Sumatra y las de los demás congéneres, pero más próximas a las de aquel (Madge y McGowan, 2002).
Una parada intermedia
| Especie | Tipo de parada | Fuente |
|---|---|---|
| Faisán pavo de Sumatra | lateral, con el ala bajada y la cola abierta solo en parte, torcida hasta el plano vertical e inclinada hacia la hembra según Madge y McGowan (casi sin inclinar según Johnsgard); sin ocelos | Madge y McGowan; Delacour; Johnsgard |
| Faisán pavo de Rothschild | lateral, con mayor inclinación del dorso y despliegue de la cola, y más iridiscencia en el dorso, las coberteras y la cola | Johnsgard |
| Faisanes pavo gris y de Germain | desplazamiento hacia una orientación frontal en la exhibición intensa; cola redondeada y dorso cubierto de ocelos | Johnsgard |
| Faisanes pavo de Borneo y de Palawan | parada lateral muy desarrollada, con formas intermedias hacia la frontal | Johnsgard |
Johnsgard ve en la serie una evolución del comportamiento ligada a la de los ocelos: en el faisán pavo de Rothschild los ocelos dorsales empiezan a emplearse en la exhibición (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Johnsgard ilustra además posturas del macho de Rothschild, incluidas la parada lateral vista desde los dos lados y la erección de la cresta, dibujadas a partir de fotografías suyas (Johnsgard, 1986). Beebe, en su relato, conectaba la belleza de los «espejos» (chermin de los malayos), escondidos en el plumaje apagado del ave, con la función de ganarse una pareja (Beebe, 1922). La cópula no se ha descrito (Johnsgard, 1986).
Reproducción en la naturaleza
Muy pocos datos de campo: unos nidos entre rocas o bajo un rododendro, una puesta de dos huevos y una temporada de enero a marzo.
Los faisanes pavo de Rothschild comienzan a mostrarse inquietos en abril. Los huevos son de color blanco, pesan unos 40 g y miden aproximadamente 5,3 × 3,7 cm. El periodo de incubación oscila entre 19 y 20 días, a 37,7 °C y con un 65 % de humedad. (Hernández García, 2014)
En libertad se sabe muy poco: se sospecha que la temporada empieza en enero, pues se hallaron huevos ligeramente incubados en ese mes, un pollito a finales de febrero y una cría a medio crecer con la hembra en junio (Beebe, 1922; BOW, 2020; Madge y McGowan, 2002). Se supone un sistema monógamo por el escaso dimorfismo sexual, sin datos concretos (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002).
Calendario
No se ha encontrado en las fuentes un calendario completo del ciclo anual en libertad; el criadero Chintaguay no da época de puesta para la especie (Beebe, 1922; BOW, 2020; del Campo, 2006; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
El nido
Los datos sobre el nido proceden de muy pocas observaciones. Beebe fue conducido por un viejo cazador malayo a un lugar a unos 3.200 pies, en un barranco rocoso, en la mitad de una ladera, donde dos grandes árboles caídos yacían en paralelo, junto al hueco que dejó la raíz al arrancarse; allí, decía el cazador, había abatido a un ave sobre su nido y se la había comido; contó dos huevos blancos, uno roto por el disparo y el otro comido por él. Beebe recogió en un pañuelo el mantillo de ese lugar y halló seis fragmentos de cáscara blanquecina; no había hueco visible de nido, y el crecimiento de hojas variadas no estaba alterado. Beebe creyó la historia, por lo directa que era y porque el número de huevos coincidía con lo que se sabe de los parientes de la especie (Beebe, 1922).
El HBW habla de un nido viejo hallado a 970 m, entre rocas y entre dos árboles caídos (del Hoyo et al., 1994). Madge y McGowan describen uno entre dos árboles caídos entre rocas y otro que era un rasguño casi sin forrar bajo un rododendro, dentro del bosque enano denso (Madge y McGowan, 2002). BOW (recuadro) da las medidas del segundo, de 26 por 10 cm (BOW, 2020). Johnsgard recoge el nido de Beebe, en un barranco rocoso a unos 3.200 pies, con dos huevos en su momento (Johnsgard, 1986).
| Fuente | Tipo de nido |
|---|---|
| Beebe (1922) | entre dos árboles caídos paralelos, cerca del hueco de la raíz, en un barranco rocoso a unos 3.200 pies; sin hueco visible; dos huevos blancos, según un cazador |
| HBW (1994) | nido viejo a 970 m, entre rocas, entre dos árboles caídos |
| Madge y McGowan (2002) | entre dos árboles caídos entre rocas; y un rasguño casi sin forrar bajo un rododendro en bosque enano denso |
| BOW (recuadro) | entre rocas a 970 m; y un rasguño de 26 por 10 cm bajo un rododendro |
| Johnsgard (1986) | viejo, en un barranco rocoso a unos 3.200 pies, entre dos grandes árboles caídos; dos huevos |
(Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002)
Puesta e incubación
La puesta típica es de dos huevos; el segundo se pone dos días después del primero (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002). En libertad solo se conoce la historia del cazador de Beebe (dos huevos) y los nidos descritos; en cautividad, Johnsgard cita que una hembra tras una puesta de dos huevos esperaba unas dos semanas para la siguiente, con un intervalo más corto al empezar la temporada que al final (Beebe, 1922; Johnsgard, 1986). Green-Armytage dice que las hembras ponen dos huevos cada vez, y a veces solo uno (Green-Armytage, 2002). Los huevos son blancos o de un blanco amarillento, bastante alargados, de unos 51–53 mm de largo (BOW, 2020; Madge y McGowan, 2002). La hembra incuba sola, según BOW (recuadro) (BOW, 2020).
| Fuente | Huevos por puesta | Incubación (días) |
|---|---|---|
| Guía original y libro del autor | no indica | 19–20 (37,7 °C, 65 % de humedad) |
| Howman (1979, 1996) | probablemente 2 | desconocida |
| Howman (1993) | 2 | 22–23 |
| Delacour (género Polyplectron) | 2 (a veces 3 en cautividad) | 18–21 |
| Johnsgard (1986) | 2 | 19–21, normalmente 21 |
| Madge y McGowan (2002) | 2 | 19–21 |
| HBW (1994) | 2 | 19–21 |
| BOW (recuadro) | 2 | 19–21, solo la hembra |
| Criadero Chintaguay | 2 | 22 |
(BOW, 2020; del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002)
Los polluelos
El plumón del pollo es rufo por encima y beige por debajo (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002). Beebe obtuvo polluelos a medio camino entre el plumón y el plumaje juvenil cerca del paso de Semangko en la segunda mitad de febrero (Beebe, 1922); con la hembra, en junio, se vio una cría a medio crecer (BOW, 2020). En el único grupo que vio, Beebe contó dos jóvenes a medio crecer con tres adultos (Beebe, 1922). Johnsgard recoge que en aves próximas a la raza pura el periodo hasta la madurez se acerca a los dos años (Johnsgard, 1986).
Cría en cautividad
De especie desconocida en las pajareras a especie con registro genealógico internacional y ESB europeo.
La especie, casi desconocida en cautividad hasta los años setenta, se cría hoy en una pequeña población de zoos y criadores, con un registro genealógico internacional y un ESB europeo. (del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2014)
Estado de la población cautiva
| Fuente | Aves en cautividad | Observaciones |
|---|---|---|
| Roles (1976) | una pareja (Denton) | la hembra murió un año después de llegar |
| Johnsgard (1986) | pocas (censo de la WPA de 1982) | en su tabla de especies, con una puesta de 2 huevos |
| Howman (1979, 1996) | pocas; número desconocido | pocas han estado en cautividad y se sabe poco de ellas |
| Howman (1993) | aún rara, pero en aumento | criada con éxito por Ken Searle (Hong Kong) y en centros de Malasia |
| HBW (1994) | 111 (febrero de 1993) | registro genealógico internacional y consorcio de cría iniciados en 1992 |
| Fuller y Garson (2000) | más de 450 | registro genealógico internacional, apéndice 3; guardián, D. Bruning |
| Libro del autor (2014) | no da cifra | ESB europeo, en el reparto de la EAZA del año 2000 |
(del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2014; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Roles, 1976)
Los datos de censos de la WPA y de ZIMS por especie se añaden después en bloques propios; las cifras de la tabla son las que dan las fuentes bibliográficas.
Instalaciones y carácter
Howman recomienda una pajarera mínima de 100 a 150 pies cuadrados (9,3 a 14 m²) para una pareja (Howman, 1979; Howman, 1993; Howman, 1996). Roles describe la de Denton: 10 × 20 × 8 pies (unos 3 × 6 × 2,4 m), cubierta en una mitad para dar sombra y refugio, sin calefacción pese a las heladas del invierno (un frío en general seco), con el suelo natural cubierto de una capa de 3 pulgadas de arena, y refugios de abetos cortados clavados en el suelo y fajos de traviesas viejas para ejercitarse; en verano se rociaba para bajar la temperatura y aumentar la humedad (Roles, 1976). Delacour dice que los faisanes pavo, salvo el gris y el de Germain, necesitan una buena caseta de la que se aleje la helada, con mucha cama seca y una estufa que se use solo en frío intenso; los machos son monógamos y cada pareja debe aislarse; en Clères los asociaban a tragopanes y gallos de la jungla en grandes pajareras plantadas, pero casi siempre el argus los perseguía, por parecerse demasiado a ellos; y bastan recintos pequeños (Delacour, 1977).
Corder muestra pajareras con césped y descansaderos altos, y comenta que la especie prefería dormir sobre una puerta, el punto más alto, a las perchas más bajas, y que royó la base de una hiedra canaria sin dañarla de otra manera (Corder). Recomendación editorial: ofrecer percha alta, cobertura vegetal densa y una caseta seca, sin olvidar que Denton mantuvo a sus aves a la intemperie en un clima de heladas secas.
Edad de cría
Howman da el plumaje adulto en el primer año, aunque menos vivo (Howman, 1979; Howman, 1993; Howman, 1996); Delacour, que los machos jóvenes de primer año son más pequeños y menos brillantes (Delacour, 1977). Johnsgard anota que Denton obtuvo híbridos F1 con faisán pavo gris que casi criaron al año, y que en aves próximas a la raza pura el periodo de madurez se acercaba a los dos años (Johnsgard, 1986). El criadero Chintaguay da una madurez de 1–2 años (del Campo, 2006). Delacour afirma, para el género, que el plumaje adulto se adquiere en el segundo año (Delacour, 1977).
Puesta y nido
La hembra de Denton puso por primera vez en marzo, con un intervalo de unas dos semanas entre puestas de dos huevos y algo más corto al principio de la temporada; una hembra capturada puso tres huevos en 1970, ocho en 1971 y varios en 1972 (Johnsgard, 1986). Delacour dice, para los faisanes pavo, que si se retiran los huevos las hembras vuelven a poner en un par de semanas, y que los huevos no se conservan mucho y deben incubarse a los pocos días (Delacour, 1977). Howman dice que, como en todos los faisanes pavo, es probable que prefieran una cesta de nidificación a varios pies del suelo, y Delacour cuenta que la hembra de Sumatra puso en una cesta de plantas colgada alto en una pared; no hay datos específicos de la especie en las fuentes consultadas (Delacour, 1977; Howman, 1979).
Incubación artificial
La guía original da un periodo de incubación de 19–20 días a 37,7 °C y 65 % de humedad; Howman (1993) da 22–23 días y el criadero Chintaguay, 22 (del Campo, 2006; Hernández García, 2014; Howman, 1993). La pauta general de del Campo, medida siempre «a la altura media del huevo», es la siguiente (del Campo, 2006):
| Fase | Valor recomendado |
|---|---|
| Conservación de los huevos antes de incubar | 13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo |
| Cuándo empezar a incubar | Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo |
| Precalentamiento | 6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación |
| Temperatura | 37,5 °C durante toda la incubación, hasta que el pollo se seca |
| Humedad relativa | 55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo |
| Volteo | 3 o 4 veces al día, hasta tres días antes de la eclosión |
| Últimos tres días | Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora |
| Duración (faisán pavo de Rothschild) | 22 días según la tabla de postura; 19–21 según las demás fuentes, 22–23 según Howman (1993) |
| Después de nacer | 24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días) |
Pauta general de del Campo para faisanes; solo la duración es específica de la especie (del Campo, 2006; Howman, 1993; Johnsgard, 1986).
Crianza de los pollos
Tras la eclosión, los pollos deben colocarse en una caja pequeña a 36 °C. Los pollos de Rothschild son de color oscuro y de patas largas; nacen con mucha fuerza, pero necesitan un pequeño aprendizaje previo, que puede solventarse introduciendo junto a ellos otros pollos de faisán (Palawan, chinqui, etc.). (Delacour, 1977; Hernández García, 2014)

Denton comprobó que podía criar los pollos de esta especie, o de sus híbridos con el faisán pavo gris, manteniendo con ellos un polluelo de gallina enana, que les enseñaba a comer y a beber: la yema de huevo y el pienso de pollos se quedan pegados al pico del polluelo de gallina, y los de faisán lo picotean como harían con el pico de su madre (Johnsgard, 1986). Delacour dice, para los faisanes pavo, que los pollos son delicados los primeros días, se refugian bajo la cola de la madre y comen solo de su pico, sin querer picar el alimento del suelo; que, criados bajo una gallina enana, esta debe ser mansa y ligera; que, si no, hay que darles de comer a mano insectos con la punta de una aguja o pinzas; y que asociar uno o dos polluelos de faisán dorado con ellos les enseña a comer y permite criarlos en criadoras eléctricas, aunque no hay que mezclarlos con demasiados otros, con seis como máximo; comen poco y se desarrollan lentamente (Delacour, 1977).
| Semana | Días | Temperatura | Dónde |
|---|---|---|---|
| 1 | 1–2 | 36 °C | Nacedora |
| 1 | 2–7 | 32 °C | Criadora |
| 2 | 8–14 | 30 °C | Criadora |
| 3 | 15–21 | 28 °C | Criadora |
| 4 | 22–28 | 26 °C | Criadora |
| 5 | 29–35 | 24 °C | Jaula de recría (calor solo de noche durante la primera semana) |
| 6–8 | 36–56 | sin aporte | Jaula de recría |
Pauta general de calor suplementario del criadero Chintaguay para faisanes; lo decisivo es observar a las aves (del Campo, 2006).
Crecimiento

La fotografía muestra a dos pollos de nueve meses. Los jóvenes se parecen a la hembra, y los machos se distinguen por el mayor tamaño y las patas mucho más largas, con solo indicios de espolones, según Delacour para el género (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). No se han encontrado en las fuentes datos de crecimiento de pollos de la especie (pesos o longitudes por edad).
La anilla
Corder, que reproduce la tabla de anillas de Aviornis, da para el faisán pavo de Rothschild («Mountain PP») un diámetro de 10 mm, el mismo que para los faisanes pavo de Sumatra, de Germain, gris, malayo, de Palawan y de Borneo (Corder).
Híbridos en la pajarera
Denton cruzó la especie con el faisán pavo gris: los híbridos son totalmente fértiles; un híbrido F1 con un gris hacía la parada frontal, mientras que un macho retrocruzado con el de Rothschild tendía a hacerla de lado; un grupo de F1 casi crió al año de edad, con seis huevos y dos pollos que murieron antes de la semana (Johnsgard, 1986). Roles cuenta que Denton, con la hembra muerta y sin sustituta, probaba con una hembra de faisán pavo gris con la intención de cruzar de nuevo la descendencia con el padre hasta obtener aves de aspecto puro (Roles, 1976). Recomendación editorial: no mezclar la especie con otros faisanes pavo en un programa de conservación; las aves obtenidas así pierden su valor para el ESB.
Longevidad
No se ha encontrado en las fuentes consultadas ningún dato sobre la longevidad máxima de la especie.
Cría para la conservación
Un registro genealógico internacional (studbook) y un consorcio de cría se iniciaron en 1992, coordinados por la New York Zoological Society (Wildlife Conservation International) y el Departamento de Fauna y Parques Nacionales de la península malaya; en febrero de 1993 tenía 111 aves (del Hoyo et al., 1994). Fuller y colaboradores señalan siete registros genealógicos internacionales de faisanes en el año 2000, entre ellos el de esta especie, con D. Bruning como guardián, y cifran la población en más de 450 aves (Fuller y Garson, 2000). El libro del autor sitúa a la especie, en el reparto de programas de conservación ex situ de la EAZA del año 2000, en la categoría de ESB europeo, a diferencia de otros faisanes pavo (Sumatra, gris), que figuran como «no recomendado» (Hernández García, 2014). BirdLife, en cambio, propone considerar un programa de cría en cautividad con fines de conservación por si empeora el estado de la especie, y no marca la especie como objeto de conservación ex situ (BirdLife DataZone, 2023).
Estado de conservación
De «vulnerable» a «casi amenazada»: una población pequeña, en un solo bloque de montañas, con una tendencia que BirdLife sospecha decreciente.
Cerca de cumplir los criterios de amenaza. Región: Sudeste asiático.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
Cómo ha ido cambiando la valoración
La UICN la clasifica hoy como casi amenazada (NT) por el criterio C2a(ii) (Avibase; BirdLife DataZone, 2023; BOW, 2020; Wikipedia). BirdLife justifica la categoría así: la especie queda confinada a un rango moderadamente pequeño en la península malaya y, marginalmente, en el sur de Tailandia, y probablemente tiene una población pequeña; dentro de su rango se sospecha que decrece despacio por la pérdida de hábitat (en especial por infraestructuras viarias) y por alguna caza local; sin embargo, la protege de las peores amenazas su rango remoto y casi inaccesible, y por eso se considera «casi amenazada» (BirdLife DataZone, 2023). Wikipedia atribuye también la categoría a la inaccesibilidad del rango, que la protege de la presión humana (Wikipedia).
| Fuente y año | Categoría | Observaciones |
|---|---|---|
| Howman (1996) | vulnerable | figura como categoría de amenaza «vulnerable» (Howman, 1996) |
| HBW (1994) | «no amenazada globalmente»; Mace-Lande: vulnerable | el texto del HBW y la valoración de BirdLife para 1994 no coinciden (BirdLife DataZone, 2023; del Hoyo et al., 1994) |
| Fuller y Garson (2000) | vulnerable B1+2b-e; C1; C2a | rango pequeño y fragmentado, población que sufriría un declive grave de seguir adelante la carretera (Fuller y Garson, 2000) |
| Madge y McGowan (2002) | vulnerable | población estable o en ligero descenso (Madge y McGowan, 2002) |
| Libro del autor (2014) | vulnerable (escala de la UICN destacada) | en la página 138 del tomo II (Hernández García, 2014) |
| BirdLife, BOW, Wikipedia, Avibase (2023) | casi amenazada (NT) | criterio C2a(ii) (Avibase; BirdLife DataZone, 2023; BOW, 2020; Wikipedia) |
Se conserva cada valoración tal como la da cada obra (Avibase; BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2014; Howman, 1996; Madge y McGowan, 2002; Wikipedia).
El historial en la Lista Roja, según BirdLife
| Año | Categoría | Criterios |
|---|---|---|
| 2023 | Casi amenazada (NT) | C2a(ii) |
| 2016 | Vulnerable (VU) | B1ab(ii,iii,iv,v); C2a(i) |
| 2013 | Vulnerable (VU) | B1ab(ii,iii,iv,v); C2a(i) |
| 2012 | Vulnerable (VU) | B1ab(ii,iii,iv,v); C2a(i) |
| 2008 | Vulnerable (VU) | B1a+b(ii,iii,iv,v); C2a(i) |
| 2004 | Vulnerable (VU) | B1ab(ii,iii,iv,v); C2a(i) |
| 2000 | Vulnerable (VU) | B1ab(ii,iii,iv,v); C1+2a(i) |
| 1996 | Vulnerable (VU) | — |
| 1994 | Vulnerable (VU) | — |
| 1988 | Casi amenazada (NT) | — |
BirdLife advierte de que un cambio de categoría no indica necesariamente un cambio real de la situación de la especie, sino que puede reflejar un mejor conocimiento (BirdLife DataZone, 2023).
La rebaja de 2023 se apoya en cálculos de hábitat más recientes: según BirdLife, Savini y colaboradores (2021) estimaron en 2018 unos 5.600 km² de hábitat adecuado, solo en las manchas de bosque de más de 40 km², con una contracción modesta, de un 2 %, entre 2000 y 2018, y Global Forest Watch señala una pérdida forestal del 3,1 % en tres generaciones (18 años) entre 2003 y 2021 (BirdLife DataZone, 2023). Casi todas esas pérdidas se producen en el límite altitudinal inferior de la especie, mientras que el bosque de mayor altitud sigue intacto (BirdLife DataZone, 2023).
Población silvestre: todas las estimas
| Fuente | Estima | Observaciones |
|---|---|---|
| Fuller y Garson (2000) | sin cifra; «pequeña» por el rango muy restringido y la escasez relativa | estable o, como mucho, en ligero declive; al menos 12 localidades, en dos de ellas común |
| HBW (1994) | del orden de miles de aves | probablemente estable o en ligero declive; basado en datos anecdóticos y en el hábitat disponible |
| Madge y McGowan (2002) | 2.500–10.000 individuos | estable o en ligero declive; datos anecdóticos (frecuencia de encuentros) y extensión del hábitat; registros recientes de 12 áreas |
| BOW (recuadro) | 2.500–10.000 individuos maduros | área de unos 12.700 km²; probablemente estable o en ligero descenso; 14 localidades, 6 con registros desde la década de 1970 |
| BirdLife (2023) | 2.500–20.000 individuos maduros; mejor estima precautoria, 2.500–9.999 | estima de 2018; datos de calidad pobre; derivación inferida; una sola subpoblación; tendencia decreciente (sospechada), del 1 al 9 % en tres generaciones |
(BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002)
Tendencia
BirdLife califica la tendencia de decreciente, con derivación «sospechada», y no sabe si hay un descenso continuado de individuos maduros; las demás obras dan la población como estable o en ligero declive (BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002). Delacour, con las observaciones de Robinson y Chasen, la daba no rara en las cumbres altas entre Selangor y Pahang; Johnsgard, citando a Davison y Scriven, la consideraba localmente común en su área tan restringida, y Fuller dice que en dos localidades se había descrito como común (Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986).
Medidas de conservación
Fuller y colaboradores incluyen a la especie en su proyecto 19 del plan de acción: realizar más prospecciones de distribución para precisar su rango completo (sobre todo en la zona justo al norte del rango conocido), vigilar las poblaciones donde ya se ha registrado, apoyar el restablecimiento de un área protegida (en Cameron Highlands) y la designación de otra (en la Cordillera Principal), y estudiar un programa de sensibilización para esta y otras especies forestales de la península; proponen usarla como especie emblemática en la promoción del concepto de áreas protegidas en Malasia y hacer campaña contra el proyecto de carretera (Fuller y Garson, 2000). BirdLife propone desarrollar un protocolo de seguimiento sólido y vigilar las poblaciones de los lugares conocidos, precisar su distribución y estado, comprobar si vive al norte de su rango, estudiar sus preferencias de hábitat y considerar un programa de cría en cautividad por si empeora su estado (BirdLife DataZone, 2023). Según su tabla de acciones, no hay plan de recuperación (desconocido), ni programa sistemático de seguimiento, ni plan de gestión de la caza, ni programas de educación; los sitios de conservación sí están identificados en todo el rango (BirdLife DataZone, 2023).
Poblaciones introducidas y reintroducidas
Ninguna de las fuentes consultadas (Beebe, Delacour, Johnsgard, Madge y McGowan, HBW, Fuller y Garson, BOW, Wikipedia, Avibase) menciona poblaciones introducidas, asilvestradas o reintroducidas de esta especie. BirdLife la da solo como nativa y residente (Malasia y Tailandia), sin presencia introducida ni reintroducida, y anota que no se ha introducido ni reintroducido con éxito (BirdLife DataZone, 2023). Fuller y colaboradores señalan que el Departamento de Fauna de Malasia creó un centro de cría para conservar reservas genéticas de especies endémicas y que se construía otro en Johore para proveer aves a programas de reintroducción; no dicen que esos programas incluyan a esta especie (Fuller y Garson, 2000). Por tanto, no hay datos de poblaciones introducidas que dar.
Población en cautividad
La población cautiva, que a comienzos de los años setenta se reducía a las aves de Denton y que en el censo de la WPA de 1982 se consideraba escasa, se contaba en 111 en febrero de 1993 (HBW) y en más de 450 hacia el año 2000 (Fuller y Garson); el libro del autor la sitúa en el reparto de ESB europeos (del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2014; Johnsgard, 1986). Los detalles están en el capítulo de cría en cautividad.
Áreas protegidas
| Área | Dato | Fuente |
|---|---|---|
| Parque Nacional de Taman Negara | 4.343 km²; incluye Gunung Tahan y otros picos; 92,21 % del sitio clave protegido | HBW; BirdLife |
| Reserva de Fauna de Krau | 530 km²; incluye un tercio de las laderas de Gunung Benom; 85,63 % | HBW; BirdLife |
| Santuario de Fauna de Cameron Highlands | 649 km² | HBW |
| Santuario de Fauna de Fraser’s Hill | 30 km²; muy pequeño | HBW; BirdLife; Fuller |
| Cordillera de Bintang (IBA/KBA) | 14,03 % protegido (2026) | BirdLife |
| Parque Patrimonial de Selangor (IBA/KBA) | 62,74 % protegido | BirdLife |
| Cordillera Central de Titiwangsa (IBA/KBA) | 45,23 % protegido (2023) | BirdLife |
| Hala Bala, santuario de fauna, y Bang Lang (Tailandia) | 100 % protegido | BirdLife |
BirdLife identifica seis sitios importantes (IBA/KBA), con 15.363 km² en total y una cobertura media de áreas protegidas del 66,64 %. El HBW cita cuatro áreas protegidas; Madge y McGowan y Fuller, tres (Krau, Taman Negara y Fraser’s Hill) (BirdLife DataZone, 2023; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002).
CITES y legislación
La especie figura en el Apéndice III de la CITES en Malasia según BOW (recuadro), Wikipedia, Howman y el criadero Chintaguay (BOW, 2020; del Campo, 2006; Howman, 1993; Wikipedia). El HBW la daba, en cambio, en el Apéndice II en Malasia; BirdLife anota que no está incluida en legislación internacional ni sujeta a controles de comercio internacional (BirdLife DataZone, 2023; del Hoyo et al., 1994).
Amenazas y protección
Pérdida de bosque por el límite inferior del rango, desarrollo turístico, carreteras y una caza local menor.
Las amenazas que citan las fuentes son la destrucción del hábitat —sobre todo por la agricultura en el límite inferior de su rango y por los desarrollos turísticos— y, de forma especial, una posible carretera que uniría las estaciones de montaña de Genting Highlands, Fraser’s Hill y Cameron Highlands. (BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002)
Pérdida y fragmentación del hábitat
BirdLife indica que la conversión de bosque a agricultura en torno a su límite altitudinal inferior puede estar provocando algunos descensos, y que los desarrollos turísticos siguen fragmentando y degradando el bosque de Cameron Highlands, con perturbaciones añadidas por las carreteras (BirdLife DataZone, 2023). El HBW cita la destrucción del hábitat por agricultura y, posiblemente, el desarrollo urbano (del Hoyo et al., 1994). Fuller y colaboradores añaden que la conversión de tierras a la agricultura es una amenaza potencial para una especie de rango extremadamente pequeño, vulnerable a la pérdida y la fragmentación del hábitat (Fuller y Garson, 2000). Madge y McGowan observan que sus bosques montanos casi no han sido afectados, pero que su rango reducido y la posibilidad de un desarrollo que se expanda desde las estaciones de montaña existentes, junto con la carretera, podrían tener consecuencias graves (Madge y McGowan, 2002).
| Amenaza (BirdLife) | Plazo y alcance | Impacto |
|---|---|---|
| Agricultura industrial (cultivos no madereros) | en curso; minoría de la población (<50 %); descenso lento y significativo | bajo |
| Zonas comerciales e industriales | en curso; minoría; descenso lento y significativo | bajo |
| Carreteras y ferrocarriles | en curso; minoría; descenso lento y significativo | bajo |
| Caza y captura de animales terrestres | en curso; minoría; descensos despreciables | despreciable |
BirdLife (BirdLife DataZone, 2023).
La carretera proyectada
Fuller y colaboradores y el HBW coinciden en que el peligro principal es un proyecto de carretera norte-sur que uniría las estaciones de montaña de Genting Highlands, Fraser’s Hill y Cameron Highlands, y que fragmentaría y degradaría una parte sustancial de su hábitat de montaña; el HBW dice que destruiría mucho bosque montano a lo largo de la Cordillera Principal (del Hoyo et al., 1994; Fuller y Garson, 2000). Madge y McGowan, BOW (recuadro) y BirdLife se refieren al mismo riesgo (BirdLife DataZone, 2023; BOW, 2020; Madge y McGowan, 2002). Fuller y colaboradores proponen hacer campaña contra los planes de carretera de la Cordillera Principal (Fuller y Garson, 2000). Ninguna de las fuentes consultadas dice si el proyecto se ha ejecutado.
La caza
BirdLife considera que la caza es un impacto menor y más localizado, y da un uso de subsistencia, como alimento humano; no cree que provoque descensos importantes (BirdLife DataZone, 2023). Beebe cuenta que el viejo cazador que le enseñó el nido había abatido muchas aves, y que ese mismo cazador mató y se comió a una hembra sobre su nido; recoge también que un joven fue capturado cerca de una casa (Beebe, 1922). Delacour afirma que los faisanes pavo en general se capturan fácilmente con lazos (Delacour, 1977).
Los depredadores naturales
No se sabe nada con certeza; Beebe supuso que las civetas (musangs) serían una amenaza constante, y por eso las aves duermen, presumiblemente, en ramas de árboles sin lianas, no en el suelo (Beebe, 1922; Johnsgard, 1986).
Protección legal
No se han encontrado en las fuentes consultadas leyes malasias específicas más allá de la inclusión en el Apéndice III de la CITES por Malasia, que dan la mayoría de las obras (véase el capítulo de conservación) y de la existencia de áreas protegidas con la especie (BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Howman, 1993).
Medidas propuestas
Las medidas propuestas por Fuller y por BirdLife se resumen en el capítulo de conservación: prospecciones, seguimiento de poblaciones, nuevas áreas protegidas (Cordillera Principal y Cameron Highlands), campaña contra la carretera, programa de educación forestal con la especie como emblema y, por si empeorara su estado, un programa de cría en cautividad con fines de conservación (BirdLife DataZone, 2023; Fuller y Garson, 2000).
Subespecies y variación
Una especie monotípica, sin variedades de color y con un único cruce conocido: el faisán pavo gris.
No se reconocen subespecies del faisán pavo de Rothschild. (BOW, 2020; del Hoyo et al., 1994; Hernández García, 2014)
Todas las fuentes coinciden: Johnsgard dice que no se reconoce ninguna subespecie; el HBW, Madge y McGowan y BOW lo consideran monotípico, es decir, sin subespecies, y el libro del autor repite «ninguna»; Delacour describe una sola forma (BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). Sus poblaciones se distribuyen por las montañas de la península malaya, en un solo bloque de montañas que BirdLife considera una sola subpoblación (BirdLife DataZone, 2023; BOW, 2020).
Variación individual
Beebe señala una variación individual notable en los timoneles centrales del macho adulto, que pueden carecer por completo de ornamento o llevar un ocelo en la barba externa de una o de las dos plumas, desde una mancha negra incipiente hasta un ocelo iridiscente completo; además, el número de espolones varía entre uno y dos por pata, y el alcance de los ocelos del dorso depende de la edad: en los machos plenos llegan hasta la rabadilla, y en los jóvenes se apagan a mitad del dorso (Beebe, 1922).
Híbridos
Johnsgard recoge, a partir de información de Denton, que en el género Polyplectron los híbridos se limitan a los cruces entre el faisán pavo gris y el de Germain, el de Rothschild y el gris, y el malayo y el de Borneo (Johnsgard, 1986).
| Cruce | Resultado | Fuente |
|---|---|---|
| Faisán pavo de Rothschild × faisán pavo gris | híbridos totalmente fértiles; un F1 con un gris hacía la parada frontal; un macho retrocruzado con el de Rothschild, de lado | Johnsgard (de Denton) |
| F1 × F1 (híbridos con el gris) | puesta de seis huevos y dos pollos al año de edad; los pollos murieron antes de la semana | Johnsgard (de Denton) |
| Macho de Rothschild × hembra de faisán pavo gris | cruce intencionado de Denton para volver, por retrocruce, a aves de aspecto puro | Roles |
La tabla de hibridación de Johnsgard (1999), traducida y adaptada por del Campo, no incluye esta especie (del Campo, 2006; Johnsgard, 1986; Johnsgard, 1999; Roles, 1976).
Johnsgard anota que el hecho de que los híbridos de la especie con el faisán pavo gris sean fértiles respalda la opinión de que todos los faisanes pavo deben incluirse en un solo género, Polyplectron, en vez de segregar las formas más generalizadas como Chalcurus (Johnsgard, 1986).
Mutaciones de color
Ninguna de las fuentes consultadas menciona mutaciones de color ni variedades criadas de la especie.
Estudios genéticos
Los datos moleculares de Kimball y colaboradores (2001), resumidos por Wikipedia, sitúan a la especie en un clado con los faisanes pavo de Sumatra, de Germain y gris; se tratan en el capítulo de sistemática (Wikipedia).
Cultura y curiosidades
Un faisán «espejo» en los sellos de Malasia y en las láminas de los grandes libros.
Es un ave de la que se conoce muy poco en libertad y cuyo primer relato vivo —el de Beebe— la compara con una joya escondida en un plumaje apagado. (Beebe, 1922)
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.

El sello de la foto es de Malasia, de valor facial 20 sen, y lleva la inscripción Polyplectron inopinatum.
Los «espejos» del bosque
Beebe termina su relato de las colinas de Pahang comparando la flor, que reclama a las abejas con color y perfume, con el ave, de plumaje apagado en el que se esconden las «joyas de color» —los «espejos», chermin, como los llaman poéticamente los malayos—, que en su momento se desplegarán para ganarse una pareja (Beebe, 1922). El nombre inglés Mirror Pheasant y los nombres malayos que recoge Avibase, con cermin, conservan la imagen (Avibase; Beebe, 1922).
Un viaje al paso de Semangko
Beebe cuenta en Pheasant Jungles la subida al paso de Semangko, en un automóvil envuelto en polvo, hasta una casa de postas cubierta de rosales, con un criado cingalés perfectamente ataviado y un almuerzo de curry y té; para él era el Darjeeling y el Simla de la península malaya, y el lugar más hermoso de las montañas tropicales de Oriente; allí vivían dos grupos espléndidos de aves, los faisanes pavo de cola de bronce y el argus ocelado (Beebe, 1927). Beebe cuenta que vio a los primeros, pero que del argus ocelado, que oyó y atrapó, no llegó a ver ninguno vivo (Beebe, 1927).
Láminas y fotografías
La especie figura en la lámina 26 (macho) de la obra de Delacour, en la lámina 43 de la guía de Madge y McGowan, en la lámina 58 del HBW y en la lámina LXXIV de la monografía de Beebe, además de en las fotografías de Howman (1993), de Green-Armytage (2002) y de Johnsgard, que dibuja sus posturas de exhibición (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Green-Armytage, 2002; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002). Como la especie se describió en 1903, no figura en las láminas de Elliot de 1872.
Una especie emblema
Fuller y colaboradores sugieren usarla como especie emblemática de alto perfil en una campaña de sensibilización para promover el concepto de áreas protegidas en Malasia (Fuller y Garson, 2000).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Avibase: la base de datos de aves del mundo (Lepage, D., Bird Studies Canada). Polyplectron inopinatum (Rothschild, LW 1903), identificador B79C272AEE35468A. avibase.bsc-eoc.org. Consultada el 14 de noviembre de 2026.
- Beebe, W. (1921). A Monograph of the Pheasants, vol. II. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1927). Pheasant Jungles. Nueva York: G. P. Putnam's Sons (reed. World Pheasant Association, 1994).
- BirdLife International (2023). Polyplectron inopinatum. The IUCN Red List of Threatened Species 2023: e.T22679365A218821910. doi:10.2305/IUCN.UK.2023-1.RLTS.T22679365A218821910.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
- BirdLife International (2023). Species factsheet: Mountain Peacock-Pheasant Polyplectron inopinatum. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2023). datazone.birdlife.org. Descargada el 14 de noviembre de 2026. La ficha remite a Savini et al. (2021), Global Forest Watch (2022), Bird et al. (2020) y otras obras que no se han consultado directamente.
- Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan; ficha 145, Mountain Peacock-pheasant, p. 547; recuadro sobre la especie, p. 468).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ): T.F.H. Publications (© 1973 y 1978).
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- McGowan, P. J. K. y Kirwan, G. M. (2020). Mountain Peacock-Pheasant (Polyplectron inopinatum), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/mopphe1 · doi:10.2173/bow.mopphe1.01. El texto completo es de pago; en la consulta del 14 de noviembre de 2026 solo fue accesible la introducción (categoría NT, especie monotípica, texto actualizado por última vez el 16 de octubre de 2015); los datos de esta ficha que se atribuyen a BOW proceden de los recuadros de la ficha original de esta web.
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
- Wikipedia (en inglés). Mountain peacock-pheasant. en.wikipedia.org/wiki/Mountain_peacock-pheasant (consultada el 14 de noviembre de 2026). Los datos atribuidos a Wikipedia proceden de los recuadros de la ficha original de esta web y del artículo vigente.
- Wikipedia (en inglés). Peacock-pheasant (género Polyplectron). en.wikipedia.org/wiki/Peacock-pheasant. Solo se recoge lo que resume el recuadro de la ficha original de esta web.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán pavo de Rothschild — Polyplectron inopinatum. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/rothschild.php.


