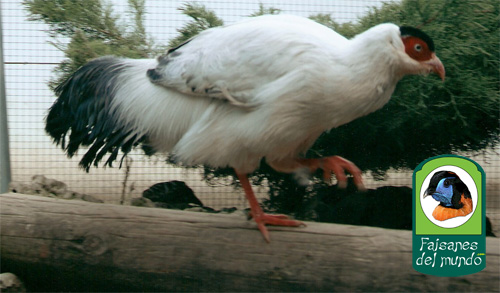
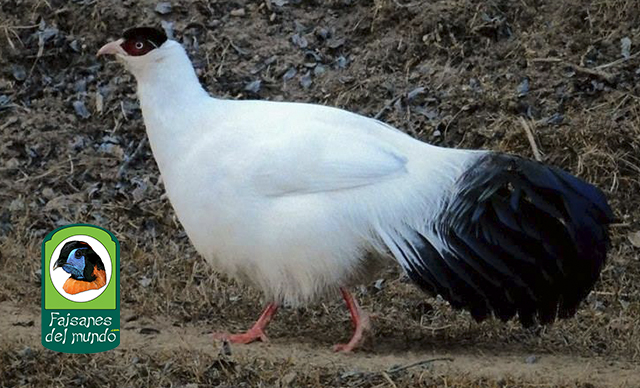
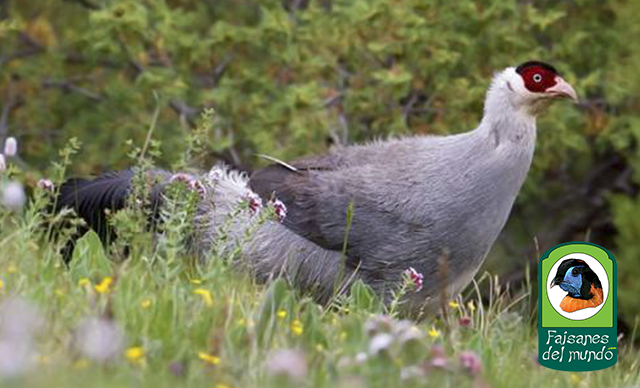
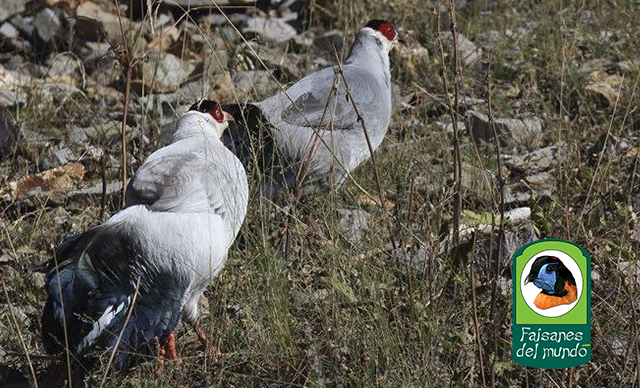
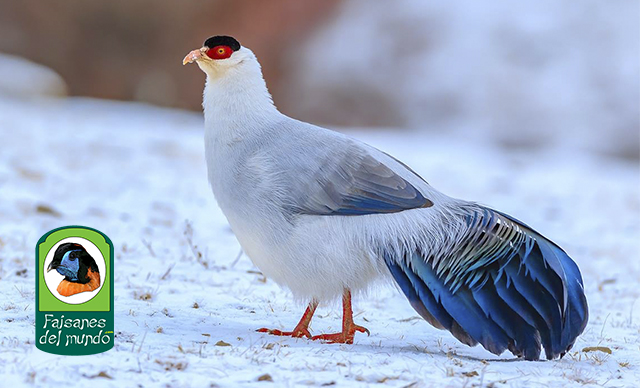
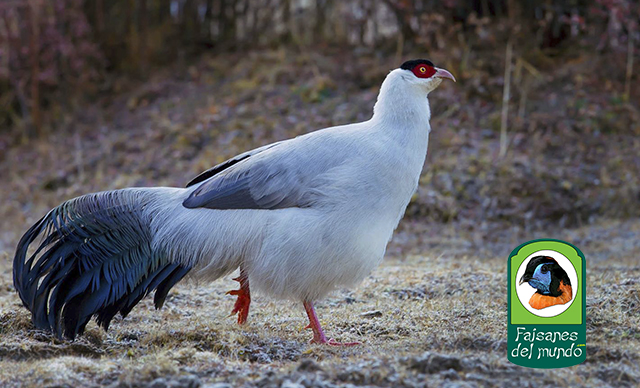
El faisán orejudo blanco (Crossoptilon crossoptilon) es una especie de la familia Phasianidae y del género Crossoptilon, propia de las praderas de montaña del sudeste del Tíbet y el sudoeste de China. La UICN la cataloga como de preocupación menor y se reconocen tres subespecies. (BOW, 2020; Hernández García, 2013)
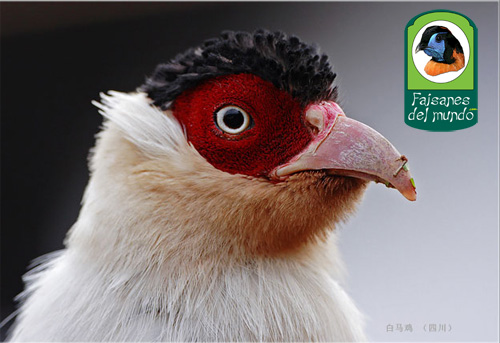
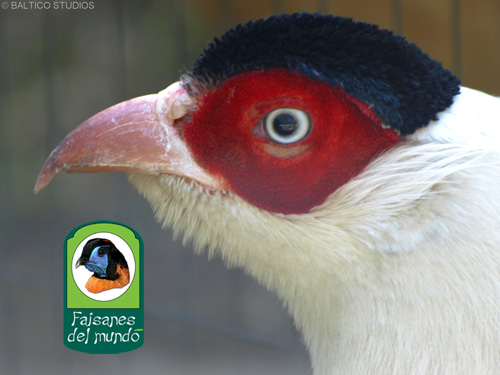
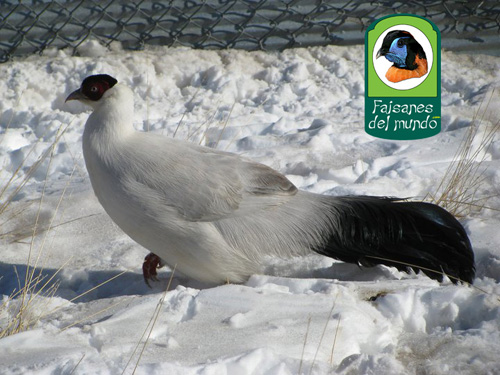
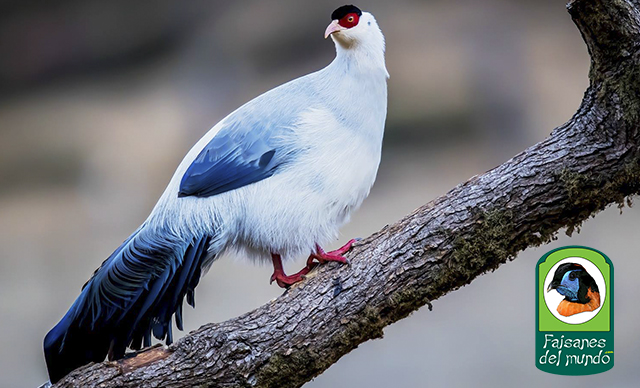
Es un faisán grande, casi blanco, de las montañas altas del oeste de China: el macho mide de 86 a 96 cm y pesa entre 2.350 y 2.750 g, y la hembra, algo menor, entre 1.400 y 2.050 g (del Hoyo et al., 1994; Madge y McGowan, 2002). Lleva un casquete negro de plumas cortas y aterciopeladas, la piel desnuda de la cara roja y una cola oscura, caída y con reflejos purpúreos y verdosos que contrasta con el cuerpo blanco (Delacour, 1977; Madge y McGowan, 2002). Es la única de las tres especies clásicas de orejudos en la que las «orejas», los mechones de plumas blancas a los lados de la cabeza, apenas sobresalen de la cabeza (Delacour, 1977; Johnsgard, 1986). Los dos sexos son prácticamente iguales; la hembra se distingue por su menor tamaño y por la ausencia de espolones (Delacour, 1977; Madge y McGowan, 2002).
Vive en bosques subalpinos de coníferas, en matorrales de rododendro y enebro y en prados alpinos, por lo general entre unos 3.000 y 4.300 m de altitud, en el este del Tíbet, el oeste de Sichuan, el noroeste de Yunnan y el sur de Qinghai (BirdLife, 2024; Delacour, 1977; Madge y McGowan, 2002). Fuera de la época de cría se reúne en bandadas, que en invierno suelen ser de unas 30 aves; en muchas zonas del Tíbet y de Sichuan convive sin miedo con las personas, protegido por la tradición budista, que desaconseja matar animales (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002).
Su historia en los libros es la de un ave que tardó mucho en conocerse. Hodgson la describió en 1838 a partir de una piel que le llegó a Nepal a través de un enviado nativo que volvía de Pekín; su hábitat siguió siendo un misterio durante décadas (Beebe, 1918). Los primeros ejemplares vivos llegaron al zoo de Londres en 1891 y no criaron; la cría regular en cautividad empezó en California a finales de los años treinta y se consolidó en Jersey a partir de 1966 (Delacour, 1977; Howman, 1979; Roles, 1976). Es un ave poco prolífica, nada fácil de criar y de reserva genética escasa (Delacour, 1977; Howman, 1993).
La taxonomía del grupo es discutida. Las fuentes consultadas reconocen entre tres y cinco subespecies, según se cuente o no como subespecie el orejudo del Tíbet (Crossoptilon harmani), que hoy se trata como especie aparte; el propio texto original de la ficha habla de tres subespecies, mientras que sus tablas presentan cuatro formas. El capítulo «Subespecies y variación» explica las cuentas de cada autor (Avibase; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002).
La Lista Roja la sitúa hoy como de preocupación menor (evaluación de 2024), tras una larga etapa de casi amenazada (2000–2016) y varias valoraciones anteriores como vulnerable. No existe un censo: las estimas antiguas hablaban de unas 20.000 aves, y la evaluación actual considera probable que se cuenten por decenas, si no por cientos, de miles (BirdLife, 2024; del Hoyo et al., 1994; Madge y McGowan, 2002). Figura en el Apéndice I de CITES (BirdLife, 2024; Howman, 1993).
Cuatro en Birds of the World y Avibase (crossoptilon, drouynii, dolani, lichiangense); cinco en Delacour y en el HBW si se cuenta harmani; tres en el texto original de la ficha (Avibase; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977)
Nombres comunes
ES faisán orejudo blanco · EN white eared-pheasant (también Tibetan eared-pheasant en Beebe y Johnsgard) · FR hokki blanc · DE Schmalschwanz-Ohrfasan · IT fagiano orecchiuto bianco · PT faisão-orelhudo-branco · chino 白马鸡 · tibetano shagga(Avibase; Beebe, 1918; del Hoyo et al., 1994; Johnsgard, 1986; Wikipedia)
Bosque subalpino de coníferas, matorral de rododendro, enebro y abedul, y prados alpinos; 3.000–4.300 m, a veces 2.800 m en invierno (BirdLife, 2024; Madge y McGowan, 2002)
Estable (sospechada); tamaño de población no cuantificado (BirdLife, 2024)
Conservación ex situ
En el reparto de la EAZA del año 2000 figura con «seguimiento de población»; libro genealógico llevado en su día por el Jersey Wildlife Preservation Trust (Hernández García, 2014; Howman, 1993)
02
Sistemática y nomenclatura
Un nombre de 1838, un género de cuatro especies y un debate abierto sobre cuántas formas hay.
El faisán orejudo blanco es la especie que da nombre al género Crossoptilon: Hodgson la describió en 1838 como Phasianus crossoptilon y el nombre del género sale de ese nombre específico (Avibase; Jobling, 2010). Fue, además, la segunda especie del género en recibir nombre científico, tras el orejudo azul (1811) y antes del marrón (1862–1863) (Beebe, 1918; Hernández García, 2013; Madge y McGowan, 2002).
Posición taxonómica
Rango
Taxón
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Género
Crossoptilon Hodgson, 1838
Especie
Crossoptilon crossoptilon (Hodgson, 1838)
Subespecies
Cuatro (crossoptilon, drouynii, dolani, lichiangense) según Birds of the World y Avibase
Clasificación que sigue esta guía; el número de subespecies varía según los autores (véase el capítulo de subespecies) (Avibase; BOW, 2020; Hernández García, 2013).
Origen del nombre
El diccionario de Jobling explica que el nombre del género procede del nombre específico Phasianus crossoptilon de Hodgson, y que crossoptilon se forma con las palabras griegas krossoi («flecos», «borlas») y ptilon («pluma»). Hodgson justificó el nombre porque el ave se distingue de todas sus congéneres por un plumaje ancho y como deshilachado, cuyo aspecto revuelto llega hasta las plumas centrales de la cola (Jobling, 2010). El epíteto es, pues, una descripción: «la de las plumas con flecos».
Beebe, que llamó a la especie Crossoptilon tibetanum, explicaba que ese epíteto venía del Tíbet, la patria del faisán (Beebe, 1918). Jobling registra tibetanum y tibetanus como un simple adjetivo geográfico («del Tíbet»), que cita, por ejemplo, para el «Paon du Thibet» de Brisson (1760), identificado con el faisán pavo gris (Polyplectron bicalcaratum), y da thibetanus como variante antigua de «Tíbet» (Jobling, 2010). Por eso tibetanum figura hoy como sinónimo, y no como nombre válido, entre los que enumera Avibase (Avibase).
Los epítetos de las demás formas son menos claros. harmani, que hoy designa al orejudo del Tíbet, honra al capitán H. J. Harman (1850–1881), ingeniero militar británico y topógrafo en la India y Sikkim (Jobling, 2010). lichiangense alude a Lichiang (Lijiang), en el noroeste de Yunnan, de donde procedían los ejemplares con los que Delacour describió la forma (Delacour, 1977). Ni Jobling ni las demás obras consultadas explican dolani ni drouynii; en el segundo caso la grafía recuerda al apellido Drouyn de Lhuys, que Jobling documenta como epónimo de otro faisán, el monal chino (Lophophorus lhuysii), pero ninguna fuente consultada confirma que sea el mismo personaje (Jobling, 2010).
Las transcripciones de las lenguas de Asia son las de cada fuente y varían de unas a otras.
Historia nomenclatural
Hodgson describe Phasianus crossoptilon en el Journal of the Asiatic Society of Bengal (vol. 7, p. 864): Avibase da esa referencia y precisa que no hay localidad tipo exacta, pero que el ejemplar procede probablemente del oeste de China (Avibase; Beebe, 1918).
Hodgson, en la obra de Gray, usa ya Crossoptilon tibetanum para el ave, nombre que Beebe y otros autores usaron durante décadas (Beebe, 1918).
J. Verreaux describe Crossoptilon drouynii, de la región de Moupin (Beebe, 1918).
Elwes describe Crossoptilon harmani a partir de una piel de la zona del Tsangpo, en el Tíbet (Beebe, 1918; Delacour, 1977).
Meyer de Schauensee describe Crossoptilon crossoptilon dolani de Jyekundo, en el sur de Kokonor (Delacour, 1977).
Delacour describe lichiangense, restringe la localidad tipo de la forma nominal a Tatsienlu (Sichuan) y propone el esquema de subespecies que recogen Johnsgard y el HBW (del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986).
Madge y McGowan tratan harmani como especie aparte, criterio que sigue Avibase (Avibase; Madge y McGowan, 2002).
Los orejudos forman un grupo pequeño y muy definido de faisanes chinos de gran tamaño, de plumaje suave, casi piloso, sin iridiscencia ni dibujo críptico y sin diferencias entre los sexos; esto último es raro en aves que anidan en el suelo, donde el camuflaje de la hembra importa (Madge y McGowan, 2002). Las colas tienen de 20 a 24 plumas, anchas y arqueadas las centrales, y las áreas de distribución de las especies son casi excluyentes entre sí, lo que sugiere un origen común (Johnsgard, 1986; Madge y McGowan, 2002). Delacour veía en los orejudos pocos lazos con el resto de la subfamilia, salvo con los faisanes del género Lophura, con los que comparten la cola comprimida, las carúnculas faciales rojas y cierto parecido de conducta, y con los que se han obtenido híbridos (Delacour, 1977). Johnsgard prefiere esa afinidad a la que Delacour sugería con el faisán cheer (Catreus) (Johnsgard, 1986).
Hay cuatro especies si se cuenta el orejudo del Tíbet: el azul (Crossoptilon auritum), el marrón (C. mantchuricum), el blanco y el del Tíbet (C. harmani) (Hernández García, 2013). Para Delacour los tres primeros eran las especies válidas. En el blanco las plumas de la cola son casi normales, planas y con la mitad final sin barbas sueltas; en el azul y en el marrón, en cambio, las centrales son largas y deshilachadas, los mechones de las orejas sobresalen sobre la nuca y la cola se lleva comprimida y levantada. Delacour consideraba el blanco la especie menos especializada, el azul la más y el marrón una forma intermedia (Delacour, 1977; Johnsgard, 1986).
Cuántas especies y cuántas formas: una discusión de un siglo
Beebe, en 1918, aceptaba solo tres de las cinco especies que entonces solían reconocerse en el género: el orejudo marrón, el azul y el blanco (al que llamaba tibetanum), y dudaba incluso de que dos de ellas fueran más que subespecies. Había observado, en museos, muchas aves del este de la distribución del azul y del blanco con rasgos intermedios entre ambos (cantidad variable de blanco, número distinto de plumas de la cola e incluso diseños asimétricos), y lo interpretaba como señal de hibridación en la naturaleza. De ahí que hundiera en la sinonimia harmani (bajo el azul) y leucurum y drouynii (bajo el blanco), considerándolos híbridos silvestres y no formas válidas (Beebe, 1918).
Delacour, en 1945 y de nuevo en su manual de 1977, trató el blanco como una especie con cinco subespecies (crossoptilon, lichiangense, drouyni, dolani y harmani), de las cuales varias se fusionan entre sí en el campo (del Hoyo et al., 1994; Delacour, 1977). Johnsgard mantuvo esa estructura, aunque observó que harmani se consideraba a veces especie aparte, que Vaurie (1972) tenía a harmani y crossoptilon por casos fronterizos de especiación y que algunos autores veían en drouyni el resultado de una hibridación entre los tipos extremos (Johnsgard, 1986). El HBW de 1994 reconocía igualmente cinco subespecies y advertía de que las intergradaciones sugerían que algunas podían ser de validez dudosa (del Hoyo et al., 1994).
Madge y McGowan, en 2002, separaron a harmani como especie, pero señalaron que, por las semejanzas estructurales y de voz y por la existencia de intermedios en la zona de contacto, quizá fuera mejor tratar a las dos como una sola especie (Madge y McGowan, 2002). El criadero Chintaguay recoge ese cambio, que sitúa en 2002 (del Campo, 2006). Fuller y Garson (2000) pedían ya aclarar la taxonomía: el orejudo del Tíbet difiere claramente de la forma nominal en varios rasgos del plumaje y en la estructura de las plumas de la cola, y había aparecido una población, aislada y relicta, de la forma de Dolan (Fuller y Garson, 2000). Avibase lista a harmani como especie distinta, anota que algunos autores consideran al blanco una subespecie de un conjunto más amplio que incluye a harmani, y registra híbridos del blanco con el azul, con el marrón y con el del Tíbet (Avibase).
Fuente
Subespecies del orejudo blanco
Situación de harmani
Beebe (1918)
Ninguna: drouynii y leucurum serían híbridos con el azul
La clave del género de Delacour, que reproducen Johnsgard y el libro del autor, separa las especies por la visibilidad de los mechones sobre la nuca y por el color del pecho y de las alas. Se reproduce, con sus formas, en el capítulo de subespecies (Delacour, 1977; Hernández García, 2013; Johnsgard, 1986).
03
Historia
De una piel enviada desde Pekín a Nepal a los aviarios de California y Jersey.
La historia del orejudo blanco se divide en dos partes casi sin relación entre sí: la de un ave de las montañas del Tíbet y Sichuan que los naturalistas fueron conociendo a retazos desde 1838, y la de unos pocos ejemplares que se sacaron vivos de China, primero a Londres y Berlín, luego a California y por fin a Jersey, y de los que desciende lo que hoy se mantiene en cautividad (Beebe, 1918; Delacour, 1977; Roles, 1976).
La piel de Hodgson y un misterio de décadas
En 1838 Hodgson describió un faisán blanco con el nombre de Phasianus tibetanus. Había obtenido el ejemplar en Nepal, de un enviado nativo que acababa de volver de Pekín, y durante muchos años fue un ejemplar único, de modo que sus lugares de vida siguieron envueltos en el misterio; la piel se conserva hoy en el Museo Británico (Beebe, 1918). Beebe, que escribió medio siglo después, añade una observación de su cosecha: cuando por fin se conocieron aves procedentes de las montañas, se vio que las típicas carecían de manchas blancas en la cola, de modo que el ejemplar de Hodgson, con algunas pequeñas, no sería del todo puro y tendría «algo» de sangre del orejudo azul (Beebe, 1918). Es una interpretación de Beebe, ligada a su idea de que muchas de las formas del grupo eran híbridos, y no un hecho comprobado (Beebe, 1918).
Los primeros observadores en libertad
El abate David, a quien debemos las primeras noticias, decía que el orejudo blanco vivía en China solo en algunas localidades boscosas de las montañas del país de los mantzes, como Yaotchy y Tatsienlu, donde lo protegían las supersticiones de los nativos; lo describe como un ave dulce y sociable, que ama la compañía de los suyos sobre todo cuando cría y no se separa fácilmente de los que ha criado, y que come hojas, raíces, granos e insectos; añade que, por fortuna para la especie, su carne tiene un sabor muy inferior, de modo que los cazadores prefieren otros faisanes más extendidos y fáciles de cazar (Beebe, 1918).
El capitán Hamilton Bower, en su viaje de oeste a este por el Tíbet, lo encontró varias veces, al bajar de la gran meseta central, a unos 13.000 pies de altitud más allá del puerto de Nam La, y en una ocasión hasta unos 9.000 pies. Cazó uno que tenía el buche lleno de bayas de enebro y comprobó lo difícil que era abatirlos: fallaban casi todos los disparos y solo una bala en la cabeza parecía servir. Los habitantes del valle salieron a detener la caza, con el argumento de que si se mataba cualquier animal enfermarían todos los vecinos (Beebe, 1918). El capitán H. R. Davies, que atravesó el oeste de Sichuan en 1899, los vio con frecuencia, en grandes bandadas, corriendo mucho y volando poco, y demasiado recelosos para acercarse a tiro (Beebe, 1918). Wilson, que los conoció en las cercanías de Tatsienlu, los describió como muy abundantes allí, y Tappey, que los vio en bandadas con un macho de vigilante, añadió que dormían en grandes abetos y que mudaban en agosto (Beebe, 1918).
Beebe aportó su propia observación en el extremo noroccidental de Yunnan: tres aves vistas en un claro entre rododendros, a gran altura, con un águila negra sobrevolándolas. Era el primer registro al sur del Yangtsé; hasta entonces solo se conocía en el oeste de Sichuan y el este del Tíbet, y Davies lo había registrado cerca de la latitud 28° N, al nordeste de Chungtien (Beebe, 1918). Beebe dedicó a la escena una lámina y una fotografía del lugar en su monografía y de nuevo en la edición divulgativa de 1926, donde la lámina se atribuye a G. E. Lodge; la describe como la visión fugaz de unas aves blancas sobre el verde oscuro del rododendro, que desaparecieron en la niebla (Beebe, 1918; Beebe, 1926).
La llegada a Europa: Londres y Berlín
Los primeros orejudos blancos llegaron al zoológico de Londres en 1891, de la mano de E. A. Pratt, pero no se consiguió reproducirlos. Posteriormente llegaron al zoo de Berlín, donde tampoco se obtuvieron buenos resultados. En 1936 llegaron a San Francisco (EE. UU.), tras una importación lamentable, nueve ejemplares; unos años más tarde se logró la primera reproducción en cautividad. (Hernández García, 2013)
Los ejemplares de 1891, según Beebe y Delacour, los había capturado Pratt en las montañas de Sichuan, cerca de la línea de nieve, a casi 15.000 pies de altitud, en las cercanías de Tatsienlu (Beebe, 1918; Delacour, 1977). Vivieron bien, pero no criaron; del grupo londinense, Beebe recoge la vida de siete aves: la más longeva vivió dos años y ocho meses y la media fue de solo 22 meses (Beebe, 1918). Otros ejemplares importados poco después llegaron al zoo de Berlín, donde pusieron huevos sin que nacieran pollos, y en Amberes se crió un híbrido con el orejudo marrón (Beebe, 1918; Delacour, 1977). Según Delacour, la especie desapareció pronto de las colecciones vivas (Delacour, 1977).
California, 1935–1938
La segunda importación se debe a Leland Smith, de Fair Oaks (California), que en 1935 contactó con los hermanos Jack y Quentin Young, chinos nacidos en Estados Unidos que habían guiado a Theodore y Kermit Roosevelt por el Tíbet y volvían a la región en busca de objetos antiguos y de un panda gigante. De la primera expedición llegaron dos machos jóvenes. En 1936 Young volvió al Tíbet y, según el relato de Smith, capturó treinta aves, que llevó hasta Shanghái antes de regresar a por más; los bandoleros, a los que Smith llama comunistas, se comieron las de esa primera partida, y la segunda, de otras treinta aves, tuvo que cruzar pasos de hasta 14.000 pies bajo nieve y aguanieve, con las aves en cestas de bambú a lomos de porteadores y por el Yangtsé en balsa, hasta llegar a Shanghái con diecinueve. Tras los problemas con la aduana, solo nueve llegaron a San Francisco, en un estado casi agónico: habían arrancado el relleno del techo de las cajas, tenían la cabeza pelada y estaban muy salvajes (Delacour, 1977).
Smith se quedó con una hembra y tres machos; en el segundo año la hembra puso huevos fértiles y crió cuatro aves, dos hembras y dos machos; la temporada siguiente crió nueve, y con dos hembras nacidas en 1938 apareadas con dos de los machos importados obtuvo huevos fértiles, tanto de esas parejas como de la pareja importada original. Describió la puesta como de hasta dieciséis huevos por temporada, de color pizarra verdoso pálido, a veces con manchas pardas, y la incubación como de veinticuatro días; los pollos eran «bolitas de plumón» pardas y blancas, tan pendencieros que, antes de cumplir un día, se enfrentaban hasta agotarse, aunque luego se calmaban; a los dos meses el plumaje pasaba de pardo a azul y más tarde a blanco, salvo en las puntas de las alas y la cola (Delacour, 1977). Delacour obtuvo un macho de Smith y lo envió a Francia, donde murió antes de la época de cría siguiente (Delacour, 1977). Roles cuenta el episodio de forma más escueta: la especie no se crió con éxito hasta 1938, cuando Smith sacó seis aves (Roles, 1976).
Jersey, Berlín y la importación de 1966
En 1966 llegaron a Holanda varios ejemplares procedentes del zoo de Pekín. Sus descendientes se enviaron al zoo de Amberes, a Jersey y a Berlín; en estos dos últimos lugares tuvieron bastante éxito. Las poblaciones que hoy se mantienen en cautividad son deudoras de los esfuerzos realizados en aquella época. (Hernández García, 2013)
El núcleo californiano casi se extinguió hacia 1970, probablemente por consanguinidad (Howman, 1979; Howman, 1996). La población actual desciende sobre todo de las aves que llegaron a Europa en 1966, con una cronología que las fuentes cuentan de maneras algo distintas:
Fuente
Qué cuenta de 1966 en adelante
Texto original de la ficha y libro del autor
En 1966 llegaron a Holanda varios ejemplares del zoo de Pekín; sus descendientes se enviaron a Amberes, Jersey y Berlín, donde tuvieron bastante éxito en los dos últimos (Hernández García, 2013)
Roles (1976)
Cuatro aves importadas a Jersey en 1966; de la pareja superviviente se habían criado casi cien, y se llevaba un libro genealógico en el Jersey Wildlife Preservation Trust; el parque mantenía una colonia de nueve parejas y repartía el resto de las crías por otros zoológicos (Roles, 1976)
Howman (1979, 1996)
Jersey había criado bastante más de cien aves a partir de una de dos parejas importadas vía Pekín y Berlín Este; otras aves llegaron a Estados Unidos directamente desde Pekín (Howman, 1979; Howman, 1996)
Howman (1993)
Jersey había criado varios cientos a partir de una de las dos parejas; el Jersey Wildlife Preservation Trust llevaba el libro genealógico de la especie (Howman, 1993)
Johnsgard (1986)
Un grupo de aves silvestres obtenido en 1966 pasó al Tierpark de Berlín; empezó a poner el 30 de mayo de 1968 y, tras once años, ya en torno al 6 de mayo; hay un programa intensivo de cría en cautividad y un libro genealógico (Johnsgard, 1986)
Todas las fuentes coinciden en 1966 y en Pekín como origen; difieren en el número de aves, los países que las recibieron y los centros que las criaron. No se resuelve con las fuentes disponibles.
En los años noventa la especie estaba, según Howman, en una situación razonable pero vulnerable por la pequeña reserva genética (Howman, 1993). Gerrits, en 1974, la consideraba extremadamente rara y en peligro de extinción en libertad, y recordaba que antes abundaba en el sudeste del Tíbet, protegida por las creencias religiosas de los habitantes (Gerrits, 1974). Esa valoración contrasta con la de Delacour, que la daba por abundante en el oeste de Sichuan, donde la protegían las creencias de los habitantes (Delacour, 1977); el capítulo de conservación reúne las valoraciones sucesivas.
Cronología
Hodgson describe Phasianus crossoptilon (tibetanus) con una piel recibida en Nepal (Avibase; Beebe, 1918).
El núcleo californiano casi se ha extinguido (Howman, 1979).
Pack-Blumenau y Lu Xin documentan una población relicta de la forma de Dolan en Qinghai (Fuller y Garson, 2000).
La Lista Roja pasa a la especie de casi amenazada a preocupación menor (BirdLife, 2024).
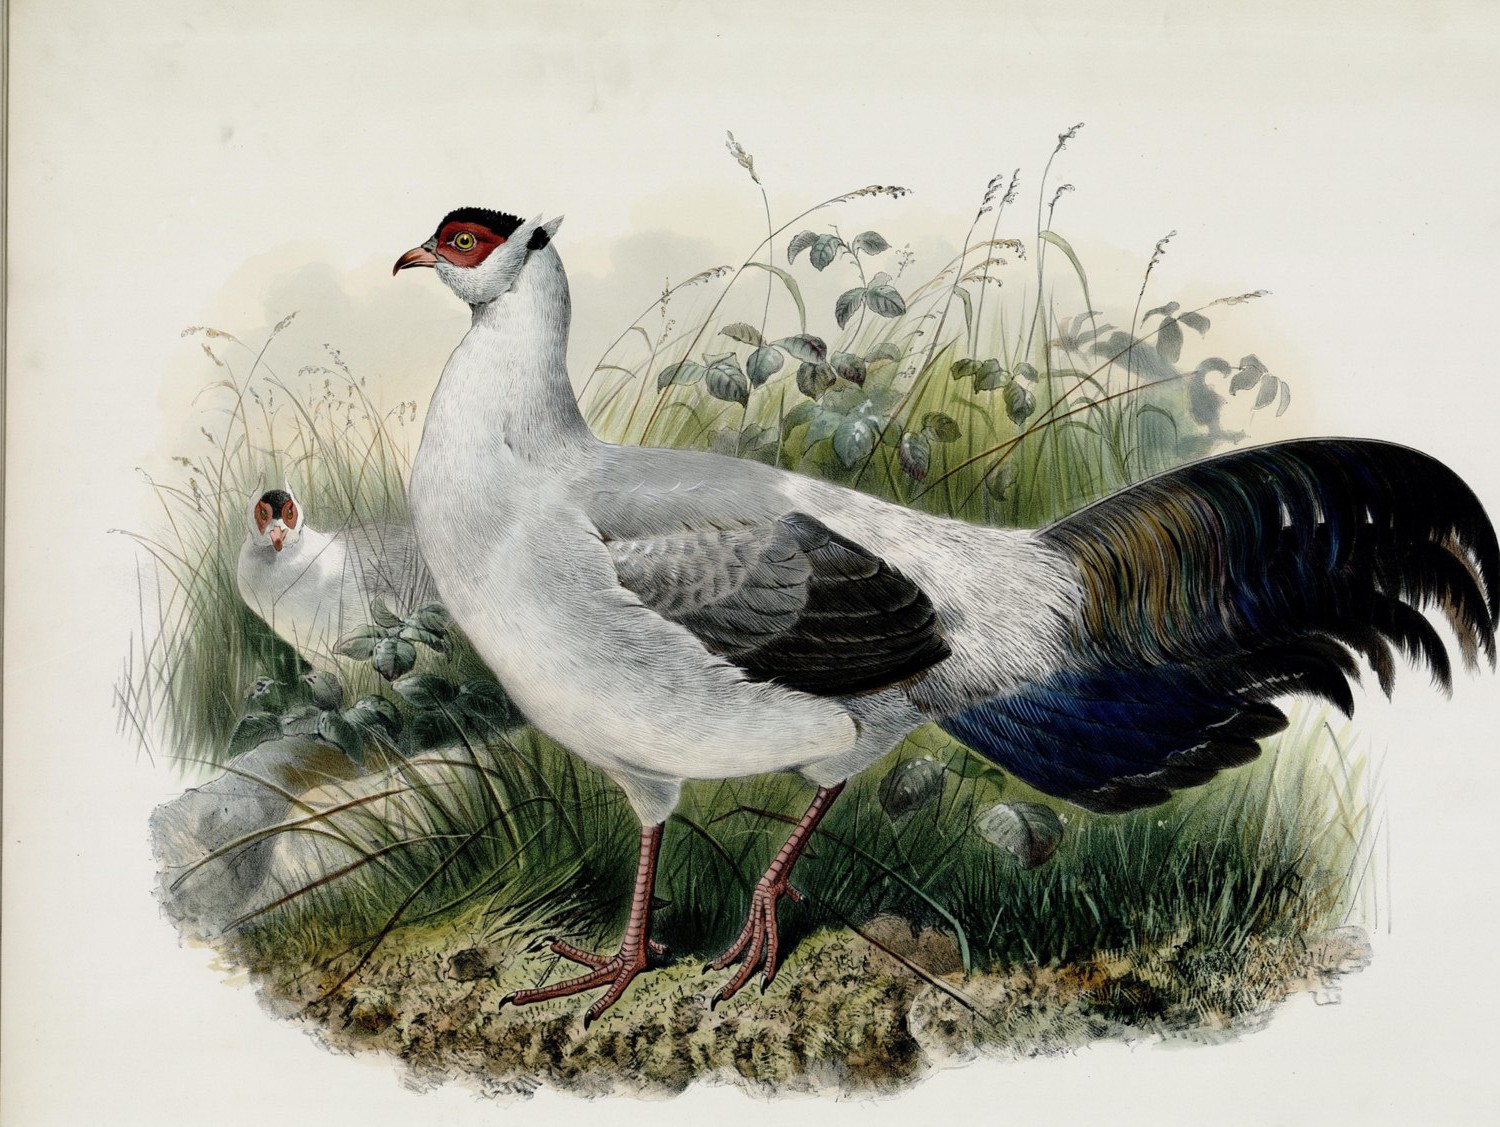
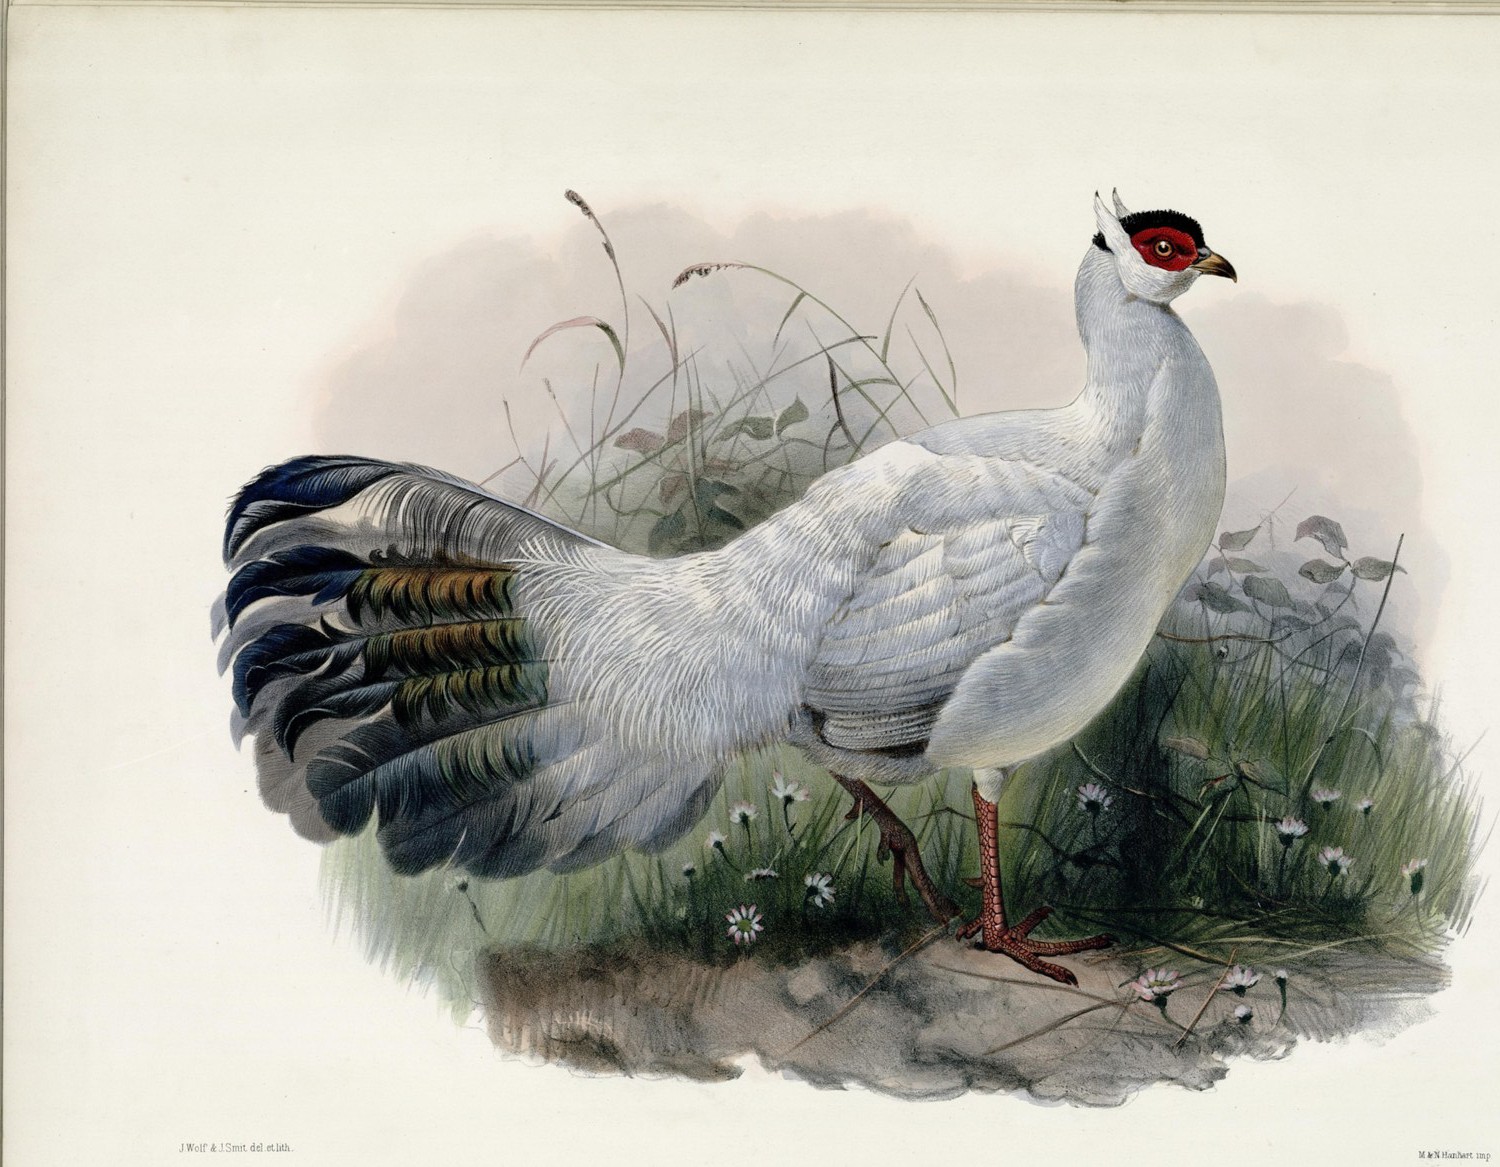
Daniel Giraud Elliot dedicó a las formas blancas de este grupo dos láminas en su Monograph of the Phasianidae (1872): una rotulada «Crossoptilon thibetanum» y otra, «Crossoptilon drouynii» (Elliot, 1872). Se reproducen aquí tal como aparecen en el ejemplar digitalizado. Véase Daniel Giraud Elliot.
Un plumaje blanco con cola oscura, sin diferencias de color entre macho y hembra.
♂ El macho posee un plumaje básicamente blanco. Las patas son fuertes y rosadas, los ojos son negros y la cara es roja. En la cabeza luce un llamativo copete negro y apenas desarrolla «orejas». El pico, de color marfil, es muy fuerte y está muy curvado. (Hernández García, 2013)
Parte
Texto original (libro del autor)
Beebe, Delacour y Gerrits
Madge, BOW, Roles y Howman
Iris
Negro
Amarillo anaranjado
Amarillo anaranjado (Madge, BOW, Roles)
Patas y pies
Rosados y fuertes
Escarlata
Escarlata (Madge, BOW, Roles); Howman, «rojas»
Pico
Color marfil
Color cuerno rojizo
Cuerno rojizo (Madge, Roles); BOW, «rojizo»
Cara
Roja
Piel desnuda escarlata
Roja (todas)
Copete
«Copete negro»
Casquete de plumas cortas, rizadas y aterciopeladas, negras
Corona de plumas cortas y densas, de aspecto de terciopelo
La corona está cubierta de plumas cortas, rizadas, suaves y como de terciopelo, negras (Beebe, 1918; Madge y McGowan, 2002). Las coberteras auriculares son blancas y están alargadas, pero los autores discrepan en cuánto: se describen más abajo (Beebe, 1918; Delacour, 1977). Todo el plumaje, por encima y por debajo, es de un blanco puro que se vuelve gris en las alas largas y las supracaudales; las barbas son muy sueltas y pilosas. Las secundarias son pardo negruzcas con algo de brillo purpúreo y las primarias, pardo oscuro (Beebe, 1918; Delacour, 1977).
La cola tiene veinte plumas, de un bronce purpúreo hacia la base, que pasa a verde azulado oscuro y a púrpura hacia el extremo; las barbas del borde de las plumas centrales son largas, curvadas y muy sueltas, pero sin la desintegración de las centrales del azul y del marrón (Beebe, 1918; Delacour, 1977). Las partes desnudas de la cara son escarlata, el pico es de color cuerno rojizo, las patas son escarlata y el iris, amarillo anaranjado; el espolón es robusto, corto y cónico (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002). Beebe adjudica a su macho adulto unas medidas de 920 mm de longitud, 330 mm de ala, 575 mm de cola y 100 mm de tarso (Beebe, 1918).
♀ La hembra es idéntica al macho, salvo en el tamaño y en los espolones. (Hernández García, 2013)
Las fuentes añaden poco: la hembra es algo menor, normalmente algo más oscura y parda y sin espolones (BOW, 2020; Delacour, 1977; Madge y McGowan, 2002). Gerrits recuerda que los orejudos casi no se pueden sexar a ojo para un aficionado; el macho tiene un espolón corto, es algo más pesado, de patas más fuertes y con las carúnculas faciales más redondeadas y de un rojo más vivo, y a veces el macho cautivo carece de espolón o la hembra lo tiene, de modo que los criterios son sutiles (Delacour, 1977; Gerrits, 1974). Beebe da para su hembra 298 mm de ala y 400 mm de cola, frente a los 330 y 575 mm del macho, y un tarso de 97 mm (Beebe, 1918).
Identificación y voz según Birds of the World
Según Birds of the World el orejudo blanco es inconfundible y sus «orejas», los mechones laterales, son más cortas que las de otros orejudos. La hembra se parece al macho, aunque es ligeramente más pequeña, más oscura y parda; carece de espolones, mientras que el macho tiene uno solo y corto. El iris es amarillo anaranjado, el pico rojizo, la piel de la cara roja y las patas escarlata. El juvenil es más grisáceo, con manchas beige, castañas y pardo oscuro, y la cola gris; adquiere el plumaje adulto tras 8 a 10 semanas. El patrón de color varía mucho entre formas blancas y gris pizarra, y no siempre guarda relación con la geografía: dolani es gris ceniza pálido, con garganta y vientre blancos; drouynii es variable, con el manto desde azul pizarra hasta casi blanco; y lichiangense recuerda a la forma nominal, pero con la base de la cola y las alas gris pálido. Su reclamo es un grito rápido, estridente y chirriante, del tipo «gag, gag, gagerah», audible a gran distancia. (BOW, 2020)
Plumajes según la edad
Etapa
Descripción
Polluelo (plumón)
Parte superior de la cabeza y partes superiores castaño oscuro mezclado con rufo; lados del cuello y de la cabeza amarillo crema, con una línea negra tras el ojo y una mancha negra en los lados del cuello; partes inferiores amarillo crema, más intenso en la garganta y la barbilla (Delacour, 1977). El HBW habla de plumón castaño y rufo por encima y amarillo cremoso por debajo (del Hoyo et al., 1994).
Juvenil
Cabeza y partes superiores grises con estrías y bandas de ante rojizo; alas pardo grisáceas finamente vermiculadas de pardo oscuro; obispillo gris mezclado con castaño; cola gris; pecho como el dorso; abdomen gris ante pálido. Este plumaje dura solo un par de meses; hacia las 8–10 semanas se parece ya a un adulto (Delacour, 1977; Madge y McGowan, 2002).
Primer año
Según Beebe, un macho en su plumaje del primer año, al comienzo de la muda del segundo otoño, tenía el plumaje del cuerpo en su mayor parte de plumas blancas recién mudadas, mezcladas con plumas pardo grisáceas del primer año, más sólidas y menos deshilachadas, concentradas en el manto y en las coberteras medianas; las secundarias seguían siendo las antiguas, pardo oscuro; el ala medía 290 mm (frente a 330 en el adulto) y las centrales de la cola, 415 mm (frente a 515), con la muda avanzando de fuera hacia dentro (Beebe, 1918).
Adulto
Las aves necesitan varios años para eliminar por completo el pigmento pardo que domina en las inmaduras; el manto conserva más tiempo el tono gris y las primarias son el mejor indicador (Beebe, 1918).
La descripción del polluelo y del juvenil procede de ejemplares de cautividad y de colecciones; no hay una descripción detallada de plumajes en libertad (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002).
En el relato de Smith en California, los pollos mudaban a los dos meses del pardo al azul y luego al blanco, salvo en las puntas de las alas y la cola (Delacour, 1977). Beebe subraya un detalle de la muda: entre los jóvenes y los adultos no hay diferencia en la cantidad de zonas oscuras y blancas bien delimitadas (la cola, las alas), de modo que el aclarado se debe a mudas sucesivas y no a una mezcla con otras formas, que dejaría zonas de color muy distinto (Beebe, 1918).
La cola y su variación
Como en los demás orejudos, la cola del blanco tiene normalmente veinte plumas (a veces veintidós), casi normales en su estructura, planas, con la mitad final sin barbas largas y deshilachadas, y que se llevan caídas; el blanco no tiene las plumas centrales largas y separadas del orejudo azul y el marrón, y su aspecto en vida es muy distinto (Delacour, 1977; Roles, 1976). Beebe observó que en las aves con algo de sangre del azul aparecen manchas blancas en las plumas laterales de la cola, que en un veinte por ciento de los machos están presentes en forma de pequeñas manchas alargadas, y que las aves más cercanas al orejudo azul o al del Tíbet pueden tener un par más de plumas centrales muy deshilachadas (Beebe, 1918).
Sexado de los pollos
Los pollos se pueden sexar hacia los tres o cuatro meses por el espolón, que en los machos mide 4–5 mm, según los datos de Grummt (1980) que recoge Johnsgard (Johnsgard, 1986); la ficha original da la misma edad, tres meses (Hernández García, 2013). Howman cuenta que Harry Hardy, de Southview Aviaries (Canadá), ha descubierto un método: al empezar a crecer el espolón, las yemas de las hembras son planas en sentido vertical y bastante flexibles, mientras que las de los machos son rígidas y de base redondeada (Howman, 1993).
Cómo identificarlo en el campo y en la mano
Johnsgard describe al orejudo blanco en el campo como un ave de unas 36 pulgadas, cuyo gran tamaño, plumaje blanco del cuerpo y cola oscura y caída son únicos y fáciles de identificar; no se solapa con los otros orejudos y no puede confundirse con ningún otro faisán (Johnsgard, 1986). En la mano, el rasgo característico son las orejas cortas y que es el único con la cabeza y el cuello blancos, o al menos blanco en la cabeza y en el cuello (Johnsgard, 1986). Madge y McGowan advierten de que sólo puede confundirse con el orejudo del Tíbet, mucho más oscuro, gris pizarra en el cuello, el pecho y las partes superiores, y contrastado con el «babero» blanco y el vientre blanquecino; ambos se encuentran en la zona del Salween, al sureste del Tíbet, donde se cruzan (Madge y McGowan, 2002).
Los datos de la guía original, contrastados con la literatura: casi todas las cifras de peso salen de muestras de muy pocas aves.
Según la primera de las cuatro tablas que siguen, el macho mide entre 86 y 96 cm de longitud, con alas de 30 a 34 cm y cola de 52 cm, y pesa entre 2,3 y 2,7 kg. La hembra mide unos 90 cm, con alas de 28 cm y cola de 50 cm, y pesa entre 1,4 y 2,1 kg. En ambos sexos el tarso mide de 7 a 10 cm. (Hernández García, 2013)
Macho ♂Hembra ♀
Longitud
♂86–96 cm
♀90 cm
Alas
♂30–34 cm
♀28 cm
Cola
♂52 cm
♀50 cm
Tarso
♂7–10 cm
♀7–10 cm
Peso
♂2,3–2,7 Kg
♀1,4–2,1 kg
Tamaño frente al resto de la colecciónlongitud total del macho · 51 especies
Faisán orejudo blanco · 96 cm
050100150200 cm
Las cuatro tablas del libro del autor
El libro del autor da una tabla para cada subespecie, que reproduce la ficha original: la primera corresponde a la forma nominal, y las otras tres a lichiangense, dolani y drouynii(Hernández García, 2013):
Birds of the World da para la especie una longitud de 75 a 96 cm, con una cola de 46 a 58 cm. El macho pesa entre 2.350 y 2.750 g y la hembra entre 1.400 y 2.050 g. Estas cifras son compatibles con las tablas de la ficha en peso y en longitud máxima, aunque la fuente consultada indica un límite inferior de longitud menor que el de la primera tabla y un intervalo de cola más amplio que el de las tablas del autor. (BOW, 2020)
Longitud y peso según distintas fuentes
Fuente
Longitud
Peso ♂
Peso ♀
Tabla original (forma nominal)
86–96 cm (♂); 90 cm (♀)
2.300–2.700 g
1.400–2.100 g
Beebe (1918) y Delacour (1977)
920 mm (macho adulto)
—
—
Wilson, en Beebe (1918)
—
8–9 libras (unos 3,6–4,1 kg)
—
Johnsgard (1986), sobre Cheng et al. (1978), drouynii
—
2.350–2.750 g (3 machos)
1.400–2.050 g (7 hembras)
Johnsgard (1986), sobre Cheng et al. (1978), lichiangense
Johnsgard (1986), todas las formas (incluida harmani), machos
272–340 mm
310–560 mm
—
—
Johnsgard (1986), todas las formas (incluida harmani), hembras
265–308 mm
280–440 mm
—
—
Las medidas del libro de Beebe y de Delacour coinciden en la forma nominal, y Gerrits las aplica a «el macho y la hembra»; la tabla de Johnsgard procede de un OCR en que el reparto por subespecie es ilegible, por lo que solo se da la fila de conjunto (Beebe, 1918; Delacour, 1977; Gerrits, 1974; Johnsgard, 1986; Madge y McGowan, 2002).
Los datos de crecimiento son del género en general y no solo de esta especie (Johnsgard, 1986).
06
Distribución y hábitat
Praderas, matorral y bosques subalpinos del este del Tíbet y el oeste de China, entre los 3.000 y los 4.500 m.
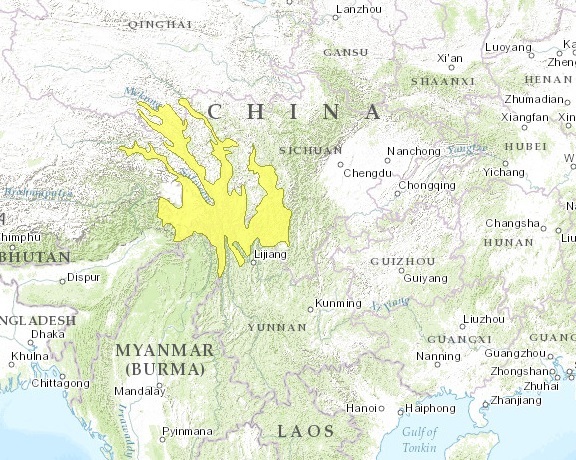
El faisán orejudo blanco vive en el sudeste del Tíbet y en el sudoeste de China, en praderas montañosas situadas entre los 3.000 y los 4.500 m de altitud. (BirdLife, 2024; Hernández García, 2013)
Mapa de distribución. Pulsa para ampliar.
Área de distribución
Su distribución actual abarca las regiones chinas de Qinghai, Sichuan, Yunnan y el Tíbet, en bosques mixtos de montaña, donde con frecuencia se le observa en las inmediaciones de monasterios budistas, que tradicionalmente lo han protegido de la caza por motivos religiosos. Aunque no existe un censo preciso, se estima que la población total podría rondar las decenas o incluso cientos de miles de ejemplares. (BirdLife, 2024; Wikipedia)
BirdLife calcula la extensión de presencia (el área que ocupa de manera residente o reproductora) en unos 427.000 km², y la considera endémica reproductora de China (Qinghai, Sichuan, Yunnan y Tíbet); en la misma evaluación no se aceptan registros en la India y se señala que tampoco hay pruebas en Myanmar, aunque su área se acerca bastante a ese país (BirdLife, 2024). Los autores más antiguos delimitaban el área de maneras algo distintas (Avibase; Beebe, 1918; BirdLife, 2024; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002):
Fuente
Área de distribución
Beebe (1918)
Montañas del noroeste de Yunnan, el oeste de Sichuan y el sudeste del Tíbet. Hasta que él vio tres ejemplares en el extremo noroeste de Yunnan, no se conocía al sur del Yangtsé; Davies lo había registrado cerca del paralelo 28° N, al nordeste de Chungtien. Hacia el oeste y el noroeste, las aves muestran más variación, con rasgos que apuntan al azul (Beebe, 1918).
Delacour (1977)
Montañas altas y mesetas del oeste de Sichuan, el noroeste de Yunnan, el este del Tíbet y el sur de Kokonor; hacia el suroeste llegaría, según Ludlow, hasta los 91° 33′ E en el valle del Tsangpo, y no ocurre al sur del eje del Himalaya (el dato se refiere al conjunto que incluye a harmani) (Delacour, 1977).
Johnsgard (1986)
Este del Tíbet, desde unos 91°–92° E hacia el este hasta el oeste de Sichuan; al norte hasta el sur de Qinghai y al sur hasta el noroeste de Yunnan. Sedentario. En la India habría un territorio muy pequeño, y se había propuesto una reserva en las colinas Mishmi, en Assam (Johnsgard, 1986).
Madge y McGowan (2002)
Desde el límite norte, en el sur de Qinghai, al sur por Sichuan y el Tíbet (sobre todo al este de harmani) hasta el noroeste de Yunnan (Madge y McGowan, 2002).
HBW (1994)
Con harmani: sudoeste y centro del Tíbet y extremo norte de Arunachal (India); además, este del Tíbet (drouynii), sur de Qinghai (dolani), oeste de Sichuan y sudeste del Tíbet, hasta el extremo nordeste de la India (forma nominal) y noroeste de Yunnan (lichiangense) (del Hoyo et al., 1994).
Birds of the World (2020)
La forma nominal, en el este del Tíbet y el oeste de Sichuan, y posiblemente en el nordeste de la India (nordeste de Arunachal) (BOW, 2020).
BirdLife (2024)
China (Qinghai, Sichuan, Yunnan y Tíbet); ningún registro aceptado en la India ni en Myanmar; 427.000 km² (BirdLife, 2024).
Avibase (Clements)
Bosque subalpino montano de coníferas, robledal y matorral de rododendro y enebro, desde el este del Tíbet y el sudeste de Qinghai hasta el suroeste de Sichuan y el noroeste de Yunnan (Avibase).
Cada subespecie tiene un área propia; se detalla en el capítulo de subespecies.
Oeste de Sichuan: de unos 12.000 a más de 14.000 pies, en bosque de pícea, abedul y roble espinoso. Davies: no por debajo de 11.000 pies, justo bajo la línea de nieve. Wilson, en Tatsienlu: de 9.500 a 13.000 pies. Bower: desde 13.000 pies, hasta 9.000 pies como límite inferior (Beebe, 1918)
Delacour (1977)
De 10.000 pies hasta la línea de nieve; no se ve en las cumbres peladas (Delacour, 1977)
Johnsgard (1986)
Desde unos 3.000 m hasta la línea de nieve; a veces hasta 4.600 m; en invierno rara vez por debajo de 3.000 m (Johnsgard, 1986)
HBW (1994)
3.500–3.900 m en bosque subalpino; en invierno hasta 2.800 m; en verano, prados alpinos hasta 4.600 m; algunas aves vistas a 4.500 m en invierno (del Hoyo et al., 1994)
Los rangos de unos autores y de otros se solapan en lo esencial: la especie se encuentra sobre todo entre los 3.000 y los 4.300 m, con excursiones puntuales más altas y más bajas.
El hábitat según los observadores
Beebe, que subió desde el fondo de un barranco en el norte de Yunnan hasta el paso donde vio a los tres orejudos, atravesó antes un mosaico de bosque de robles y rododendros con musgo, bambúes, helechos, bayas y viñas silvestres, y después de bambú bajo y sauces en el collado, con una turbera helada; los orejudos aparecieron en el límite superior de esa zona, en el claro abierto por un desprendimiento, con una vegetación de rododendros y un águila negra sobrevolando (Beebe, 1918). En el oeste de Sichuan, según Beebe, viven en bosques de pícea, abedul y roble espinoso, y Davies los encontró en los mismos lugares que los faisanes ensangrentados y no en las cumbres peladas (Beebe, 1918).
Johnsgard resume el hábitat de la especie como bosque subalpino cerca de la línea de nieve, con matorrales de rododendro, y la describe forrajeando en colinas herbosas abiertas junto a rododendros, y huyendo al matorral más cercano si se la molesta (Johnsgard, 1986). Delacour añade que los orejudos necesitan hierba, matorral y árboles, y que viven dentro o cerca de bosques de pinos, enebros, robles y abedules, por lo que no es una especie de roca desnuda (Delacour, 1977). Kaulback, citado por Delacour, vio cerca de Sating, durante la travesía de quince millas de bosques de enebro, unos cincuenta faisanes blancos y ensangrentados comiendo juntos al borde del camino (Delacour, 1977).
Según Birds of the World, el faisán orejudo blanco habita bosques subalpinos de coníferas, robles, abedules, rododendros y matorral de enebro entre 3.500 y 4.300 m, y en invierno desciende hasta unos 2.800 m, aunque se han visto aves hasta 4.500 m en esa estación. Parece preferir zonas relativamente cercanas al agua, al menos en invierno, y en algunas áreas forrajea en tierras de cultivo de baja intensidad. Se han registrado desplazamientos altitudinales: en verano ocupa prados alpinos y en invierno baja a bosques subalpinos de abetos y pinos; en caso de alarma, el vuelo puede llevarlo a una distancia considerable ladera abajo. (BOW, 2020)
BirdLife añade que su distribución parece determinada sobre todo por el agua, los sitios de forrajeo y la depredación, según un estudio de Fei Jia y colaboradores (2005), y que puede ser común alrededor de los monasterios budistas, donde recibe protección cultural, pero que suele encontrarse con densidades muy bajas y en grupos pequeños (BirdLife, 2024).
Un ave gregaria, confiada donde se la protege, que corre cuesta arriba y se lanza luego ladera abajo.
El orejudo blanco vive en bandadas durante casi todo el año, se mueve a pie, come escarbando y se oye desde muy lejos. En la parte occidental de su área, donde la tradición budista protege a las aves, se muestra muy confiado; en los lugares donde se le ha perseguido es muy receloso (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002).
Locomoción y huida
Delacour y Gerrits coinciden en que los orejudos vuelan mal: cuando se les molesta corren cuesta arriba y después se lanzan en un vuelo pesado pero muy rápido hacia el fondo del valle o la ladera opuesta (Delacour, 1977; Gerrits, 1974). Wilson, en los alrededores de Tatsienlu, describió el andar del orejudo blanco como el de un buen gallo de corral, con la cola ancha y ligeramente alzada, de aspecto muy señorial; siempre huye en línea recta montaña arriba hacia la espesura, y cuando se le levanta, despega con la velocidad de una bala y con mucho ruido, para un vuelo corto que solo emplea como último recurso, y suele posarse en un árbol (Beebe, 1918). Davies, en 1899, los vio correr rápido y volar muy poco (Beebe, 1918).
Kaulback, citado por Delacour, vio un grupo mixto de faisanes blancos y ensangrentados cerca de Sating: ninguno volaba bien; cuando se alarmaban, corrían cuesta arriba unos cientos de pies y esperaban desde la altura, y si el peligro se acercaba se lanzaban al aire y planeaban hasta un nivel más bajo, dando de vez en cuando un golpe de alas para ganar velocidad (Delacour, 1977). Wikipedia, por su parte, sostiene que vuela más que sus parientes, el orejudo marrón y el azul, y que puede planear sobre la nieve profunda con su ancha cola (Wikipedia).
Confianza, protección y recelo
En los lugares donde no se les molesta, los orejudos blancos son muy confiados. Delacour recuerda que en el norte de China, donde los orejudos marrón y azul fueron muy perseguidos por sus plumas, se han vuelto recelosos, mientras que en el Tíbet, protegidos por la población budista, los blancos y grises siguen siendo abundantes y totalmente confiados, sobre todo en los monasterios, donde se les da de comer (Delacour, 1977). Bower escribió que, cuando mató uno, salieron a su encuentro hombres armados con la intención de detener la caza, porque, decían, si se mataba cualquier animal enfermaría todo el valle (Beebe, 1918). Gerrits, en 1974, dudaba de que esa protección religiosa se mantuviera con el tiempo (Gerrits, 1974). Madge y McGowan señalan que la especie es mucho más escasa donde se la persigue (Madge y McGowan, 2002).
Según Birds of the World, en algunas zonas los monjes de los monasterios les proporcionan alimento suplementario (BOW, 2020). En el oeste de Sichuan, la protección local parece debilitarse, en parte por el turismo procedente de otras zonas de China (BOW, 2020).
Vida social
Fuera de la época de cría el orejudo blanco vive en bandadas. Bower las encontró de unas treinta aves, y a veces las vio muy cerca de las casas del valle (Beebe, 1918). Madge y McGowan hablan de grupos de hasta 30 en invierno, y recuerdan que antes se habían registrado bandadas de hasta 230 (Madge y McGowan, 2002). Schafer (1934), según Johnsgard, vio bandadas de hasta 250 aves en invierno, mientras que lo más habitual son grupos de unas 30; durante el resto del año se dividen en grupos mucho más pequeños, y Cheng (1963) habla de asociaciones de dos a cinco parejas (Johnsgard, 1986). Según Birds of the World, una concentración reciente de hasta 1.000 aves en Daocheng (Sichuan), referida por la población local, es la mayor de la que se tiene noticia (BOW, 2020). BirdLife subraya, en cambio, que la especie suele encontrarse a densidades muy bajas y en grupos pequeños (BirdLife, 2024).
Tappey escribió a Beebe que, mientras la bandada se alimenta, suele haber un macho de vigilante, a menudo posado en un abeto alto o en una roca; si se asustan, su llamada recuerda a la del pavo, y todos corren cuesta arriba o se echan a volar. Duermen en grandes abetos, normalmente varios juntos (Beebe, 1918). Davies los encontró a menudo en la nieve (Beebe, 1918). Beebe, en su lámina, dice que el orejudo blanco se asocia a menudo con el almizclero, un pequeño ciervo (Beebe, 1918; Beebe, 1926), y Wikipedia añade que forrajea con frecuencia junto a yaks (Wikipedia).
La rutina diaria
Johnsgard, citando a Felix (1964), describe un ciclo diurno típico: las aves se alimentan temprano, hasta las diez y media de la mañana, descansan durante las horas centrales del día y por la tarde visitan manantiales o arroyos para beber (Johnsgard, 1986). Madge y McGowan confirman que busca comida, picando y cavando, a primera hora de la mañana y al final de la tarde, y que entonces va también a buscar agua en los arroyos (Madge y McGowan, 2002).
Movimientos
Fuente
Qué dice sobre los movimientos
Delacour (1977)
Sedentarios; apenas dejan su entorno, ni siquiera en el invierno más duro (Delacour, 1977)
Johnsgard (1986)
Sin un descenso marcado a menor altitud; Bower los vio a más de 15.000 pies a mediados de enero y a 9.000 pies más adelante; probablemente se quedan cerca de la línea de nieve en invierno (Johnsgard, 1986)
HBW (1994)
En verano, prados alpinos hasta 4.600 m; en invierno, bosque subalpino de pícea y pino, quizá hasta 2.800 m; algunas aves a 4.500 m en invierno (del Hoyo et al., 1994)
Birds of the World, según la ficha original
Desplazamientos altitudinales: prados alpinos en verano, bosques subalpinos en invierno; en alarma, vuelo ladera abajo (BOW, 2020)
BirdLife (2024)
No migrador; 2.800 m como límite ocasional en invierno (BirdLife, 2024)
Las mayores amenazas en la naturaleza son los lobos, los halcones y los búhos. Además, en muchas zonas el faisán ensangrentado compite con él por los recursos. (Hernández García, 2013)
Johnsgard, citando a Felix (1964), enumera numerosos depredadores probables de los orejudos: el leopardo, el zorro rojo, el lobo, el dhole, la marta de garganta amarilla, el águila real, el halcón peregrino, el halcón sacre, el azor y el búho real (Johnsgard, 1986). En cuanto a la competencia, Johnsgard opina que el monal chino no compite con el orejudo, porque este ocupa una franja de altitud algo inferior, y que el faisán ensangrentado, el único otro faisán de esa franja, tampoco sería un competidor probable (Johnsgard, 1986). La ficha original, que dice lo contrario, se mantiene; las fuentes consultadas no aportan datos propios que la confirmen (Hernández García, 2013; Johnsgard, 1986).
La voz
Bower decía que el reclamo es un zumbido, de vez en cuando con un breve cloqueo (Beebe, 1918); Davies, un graznido muy fuerte y áspero que se oye a una o dos millas (Beebe, 1918). Delacour describe, para el género, un cacareo largo y maullante mientras se alimentan, que termina en una nota alta, cuco, cuco; una llamada de alarma aguda y repetida, wrack; y la llamada de celo, que ambos sexos emiten a menudo a la vez, un trip-crrra-ah cada vez más fuerte que puede durar treinta segundos (Delacour, 1977). Johnsgard añade que el macho grita con el cuello y la cabeza estirados en vertical y la cola algo levantada, que la llamada en dueto es quizá exclusiva entre los faisanes, que se oye a hasta una milla (Ludlow y Kinnear, 1944) o incluso 3.500 m (Cheng, 1963), y que suena como krrah-krrah, no tan plena y aguda como la de las otras dos especies de orejudos (Johnsgard, 1986). Madge y McGowan la transcriben como gag, gag, gagerah, gagerah…, casi idéntica a la del orejudo del Tíbet, aunque quizá algo más rápida (Madge y McGowan, 2002). En ninguno de los orejudos se conoce el batir de alas que acompaña a otros faisanes en la parada (Delacour, 1977; Johnsgard, 1986). Roles describe la expresión más habitual de una conversación como un «¿quién?» interrogativo, pero lo atribuye a todo el género (Roles, 1976).
08
Alimentación
Bulbos, tubérculos y bayas que se desentierran con el pico, y en cautividad un pienso de faisán con mucha verdura.
En la naturaleza se alimentan de bulbos, tubérculos, cebollas salvajes, bayas y otros alimentos similares. En cautividad pueden alimentarse con un buen pienso para faisanes, enriquecido con frutas y granos; incluso pueden añadirse puerros, tomates y otros vegetales. (Hernández García, 2013)
En libertad
Con frecuencia forrajea junto a yaks, buscando raíces y tubérculos en las praderas alpinas. En invierno, cuando la nieve cubre el suelo, su dieta se adapta a lo disponible: acículas de pino, bayas de enebro, frutos de agracejo y las vainas secas de iris, lirio y allium; en tormentas especialmente duras llega incluso a consumir resina de pino o excrementos de ungulados para sobrevivir. (Wikipedia)
Según Birds of the World, se cree que el faisán orejudo blanco se alimenta de bulbos y tallos de lirios y de bulbos de cebollas silvestres; un buche examinado en diciembre estaba lleno de bayas de enebro, y se ha visto comer serbal de los cazadores (Sorbus). En algunas zonas los monjes de los monasterios les proporcionan alimento suplementario. Se alimenta picoteando hojas y escarbando, y puede beber en arroyos a primera hora de la mañana y al atardecer. Forma bandadas de hasta 30 aves; en el pasado se citaron concentraciones de hasta 230 individuos, y la población local ha referido recientemente una agregación de hasta 1.000 aves en Daocheng (Sichuan). (BOW, 2020)
Esa lista coincide en lo esencial con las observaciones antiguas. El abate David daba como alimento hojas, raíces, granos e insectos (Beebe, 1918). Tappey cita bulbos y flores de lirio, y tallos y bulbos de cebolla silvestre, que le dan a la carne un fuerte olor y sabor a cebolla; Wilson confirma que la cebolla silvestre es su alimento favorito y que su fuerte sabor impregna la carne, que es oscura, basta y de poco valor en la mesa (Beebe, 1918). Bower abrió el buche de su ave y lo encontró lleno de bayas de enebro; Ludlow y Kinnear la vieron comer bayas de serbal en otoño (Beebe, 1918; Johnsgard, 1986). Johnsgard supone que las bayas de enebro son un alimento importante en otoño e invierno y que en verano pueden comer arándanos rojos y fresas silvestres (Johnsgard, 1986).
Delacour y Johnsgard describen al género como fundamentalmente cavador: comen semillas, hojas y brotes, pero sobre todo escarban con sus potentes picos en busca de bulbos, raíces e insectos que desentierran, y rara vez usan las patas para rascar (Delacour, 1977; Johnsgard, 1986). Johnsgard añade que el pico del orejudo es sensiblemente afilado y alargado, y que la conducta de excavar está muy desarrollada (Johnsgard, 1986).
En cautividad
En cautividad la especie acepta una dieta normal de faisán, pero es una gran cavadora (Howman, 1979; Howman, 1993). En el Jersey Zoological Park, según Roles, las aves se mantenían bien con un pienso de alta proteína para pavos reproductores, con algo de grano y fruta de vez en cuando, y con una cantidad de verdura que parece esencial, porque sufren falta de celulosa y entonces empiezan a picarse las plumas, un hábito desagradable y muy difícil de eliminar (Roles, 1976). Delacour da la misma explicación: en recintos pequeños los orejudos se vuelven plumívoros por falta de celulosa en la dieta, y más aún por la inactividad y el aburrimiento; la solución es dar abundante verdura y raíces, o mejor más espacio y, si no, tener a cada ave en un compartimento contiguo (Delacour, 1977; Gerrits, 1974).
Los piensos comerciales de las explotaciones de faisán se dividen en cuatro tipos, que Howman describe: los de cría (17–20 % de proteína), los iniciadores de polluelos (28–30 %), los de recría (20–24 %) y los de mantenimiento (13–15 %); son pautas generales para todos los faisanes de pajarera, no específicas del orejudo (Howman, 1993). A los polluelos de la especie les sientan bien las migas de iniciación con verdura finamente picada, pero no los gusanos de harina, que en Jersey se descartaron porque hacían que los pollos se picaran los dedos (Roles, 1976).
09
Cortejo y exhibición
Un cortejo sencillo: caminar de lado, bajar el ala, mostrar la cara roja y perseguir a la hembra.
El cortejo del orejudo blanco es poco vistoso, como el de todo el género, y consiste sobre todo en carreras, llamadas y una exhibición de lado (Delacour, 1977; Johnsgard, 1986).
La parada
Según Delacour, el macho corre mucho de un lado a otro y llama, con las alas bajas, la cola levantada, de lado, con las carúnculas escarlata de la cara extendidas y el cuello redondeado, algo muy parecido al de los gallofaisanes; no bate las alas. Tiene además una manera curiosa de perseguir a la hembra a grandes distancias, mientras ella finge escapar, hasta que al final ella se agacha ante él (Delacour, 1977). Johnsgard describe lo mismo con más detalle: el macho se pasea de lado, «en vals», con la cola levantada y la mitad inclinada, el ala del lado de la hembra tan baja que roza el suelo, la piel de la cara distendida y el cuello algo arqueado (Johnsgard, 1986).
El macho atrae a la hembra con un kak repetido, que quizá es la llamada de comida, y ella puede responder con unos krkrkr-krkrkr semejantes. Es característico el «ofrecimiento de bocados» (tidbitting): el macho sostiene un trozo de comida en el pico y llama a la hembra, algo propio, al parecer, de las aves que forman pareja por primera vez (Johnsgard, 1986). No se conoce el batir de alas durante la exhibición (Johnsgard, 1986). La ficha del libro del autor sobre el orejudo del Tíbet describe un cortejo muy sencillo: el macho, ante la hembra, picotea el suelo, donde suele haber comida o pequeñas piedras; cuando la hembra lo acepta, hace una serie de movimientos e hincha el cuerpo antes de la cópula (Hernández García, 2013). No hay una descripción semejante, específica, para el blanco.
En cautividad: persecución y cobertura
Roles confirma en Jersey que la parada es típica del género: un desfile de lado con la cola levantada, las alas bajas, las carúnculas distendidas y el cuello arqueado. A veces el macho persigue a la hembra y hay que proporcionarle perchas y cobertura para que pueda escapar de las atenciones del macho (Roles, 1976). En la época de cría, los machos pueden acosar a las hembras hasta el agotamiento (una persecución que sustituye al cortejo, sin que necesariamente las ataquen) y, por su tamaño, volverse peligrosos para los cuidadores, de modo que ayuda un acceso desde fuera para atender el recinto (Roles, 1976).
Sistema de apareamiento
Todos los observadores coinciden en que los orejudos son monógamos, algo que concuerda con la falta de dimorfismo de plumaje y con la sencillez del cortejo (Johnsgard, 1986). Delacour y Gerrits señalan que, pese a ello, un macho puede alternar con distintas hembras en el recinto, con buenos resultados (Delacour, 1977; Gerrits, 1974). No hay información definitiva sobre territorialidad más allá de las llamadas del macho en la época de cría (Johnsgard, 1986). Birds of the World presume monogamia, y BirdLife, citando a Wu y Peng (1996), afirma que la especie es monógama durante la reproducción (BirdLife, 2024; BOW, 2020).
Cuándo cortejan
La parada nupcial comienza en abril, según el texto original, y en el hemisferio norte la puesta en cautividad empieza a principios de ese mes (del Campo, 2006; Hernández García, 2013; Hernández García, 2014). Los datos de Berlín dan un ejemplo de la variabilidad de la época de puesta: las aves obtenidas en 1966 empezaron a poner el 30 de mayo de 1968, pero tras once años ya lo hacían en torno al 6 de mayo (Johnsgard, 1986). Más adelante, en el calendario del capítulo siguiente, se comparan las fechas de libertad y cautividad.
10
Reproducción en la naturaleza
Poco se sabe de la cría en libertad: unos pocos nidos, entre mayo y junio.
Son aves cuya reproducción no es fácil, por lo que no resultan adecuadas para principiantes. Nidifican en árboles. Son además aves gregarias, que viven en grupos durante gran parte del año y se separan en parejas en primavera. (Hernández García, 2013)
No alcanzan la madurez sexual hasta el segundo año de vida. La parada nupcial comienza en abril y, tras ella, la hembra pone entre 4 y 7 huevos de color gris claro y de 57 x 40 mm, que se incuban durante 24 a 25 días. (Hernández García, 2013)
Calendario anual
EFMAMJJASOND
Parada nupciala partir de abril (texto original de la ficha)
Puesta en libertadmayo y junio, probablemente (Madge; BOW; Johnsgard)
Nidos conocidosdos nidos a finales de mayo (BOW); uno con nueve huevos el 23 de mayo (Ludlow y Kinnear, en Johnsgard)
Cría de los pollosincubación a partir de principios de junio y pollos con buen tamaño a finales de julio (Wilson, en Beebe); pollos vistos en julio y agosto (Baker, en Johnsgard)
Mudaagosto (Tappey, en Beebe)
Puesta en cautividad, hemisferio norteprincipios de abril (Howman; Chintaguay; libro del autor); desde finales de mayo, en Berlín en 1968
El calendario es orientativo: combina datos de libertad y de cautividad, de fuentes y regiones distintas, y no hay un ciclo anual publicado para la especie.
Lo que se sabe de la cría en libertad
Birds of the World indica que se dispone de poca información sobre la reproducción en libertad. Se considera una especie monógama, que probablemente pone los huevos en mayo y junio. Se han descrito dos nidos a finales de mayo y uno, de registro cuestionado, en el nordeste de Assam a 3.300-3.600 m. Un nido se encontró en el suelo, bajo un árbol caído en un bosque denso, construido con corteza y pulpa y forrado de musgo. Dos puestas tenían cuatro y siete huevos, de color piedra pálido a beige, con un tamaño medio en la forma drouynii de unos 59,1 × 43,5 mm. En cautividad la incubación dura 24 días y corre a cargo solo de la hembra; los polluelos tienen el plumón castaño y rufo por encima y amarillo cremoso por debajo. (BOW, 2020)
Esa síntesis coincide en lo esencial con el HBW, que escribe, sobre los mismos datos, que no se tiene casi información del medio natural: probablemente la puesta sea en mayo–junio; dos nidos a finales de mayo, uno de ellos en el nordeste de Assam (registro puesto en duda), a 3.300–3.600 m; un nido en el suelo, en un bosque denso; dos puestas de 4 y de 9 huevos; incubación (en cautividad) de 24 días, solo por la hembra; polluelos de plumón castaño y rufo por encima y amarillo cremoso por debajo (del Hoyo et al., 1994). Madge y McGowan presumen que es monógama, que cría en mayo–junio y que en cautividad la puesta es de 4–7 huevos de color piedra pálido a beige (Madge y McGowan, 2002). Wilson, citado por Beebe, decía que la incubación empezaba hacia principios de junio, quizá antes, y que a finales de julio los pollos eran ya grandes y volaban bien; de los nidos hallados no se había obtenido más información que el número de huevos, de cuatro a siete (Beebe, 1918).
Dato
Fuente
Valor
Nidos con huevos conocidos
Johnsgard (Ludlow y Kinnear, 1944; Baker, 1930)
Tres nidos en el Tíbet, uno con 9 huevos muy incubados bajo un abeto caído (23 de mayo); uno en Assam con 4 huevos (26 de mayo) (Johnsgard, 1986)
La divergencia entre los 7 huevos de Birds of the World y los 9 del HBW (y de Ludlow y Kinnear) no puede resolverse con las fuentes disponibles (BOW, 2020; del Hoyo et al., 1994; Johnsgard, 1986).
El nido y el huevo
El único nido descrito por Birds of the World estaba en el suelo, bajo un árbol caído, en un bosque denso, construido con corteza y pulpa y forrado de musgo (BOW, 2020); Madge y McGowan describen un nido igual, pero lo incluyen en la ficha del orejudo del Tíbet (Madge y McGowan, 2002). Los huevos de Tatsienlu eran óvalos anchos, muy brillantes y lisos, de color piedra pálido, ante pálido o ante rojizo; algunos eran lisos y otros con puntos pardo rojizos, sobre todo en el extremo más ancho, y medían de 58 a 62 mm de largo por 43 o 44 de ancho (Beebe, 1918). Smith los describió, en cautividad, de un verde pizarra pálido, a veces con numerosas manchas pardas, y más grandes que los del azul y el marrón (Delacour, 1977). Delacour da para el género huevos ovales, lisos, brillantes y sin manchas (Delacour, 1977). Delacour y Madge, para el orejudo del Tíbet, dan huevos de color gris verdoso (Delacour, 1977; Madge y McGowan, 2002).
Incubación y crianza de los pollos
La hembra incuba sola, aunque la pareja sea monógama (del Hoyo et al., 1994; Johnsgard, 1986). La incubación dura 24 días en cautividad según la mayoría de las fuentes (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002); de 24 a 25 días según Howman, el libro del autor y Chintaguay (del Campo, 2006; Hernández García, 2013; Howman, 1993); y 27–28 días según Roles y Mallet (1973) (Johnsgard, 1986; Roles, 1976). Felix, citado por Johnsgard, aclara que esos plazos más largos son propios del orejudo marrón y del azul (Johnsgard, 1986). En las fuentes aquí revisadas no se documenta, en libertad, que el macho del orejudo blanco participe en la crianza; en el del Tíbet, en cambio, se cita que ambos sexos atienden a los pollos (Madge y McGowan, 2002). El abate David afirmó, en cambio, que el ave es sociable, sobre todo en la época de la cría, y que no se separa fácilmente de los que ha criado (Beebe, 1918).
11
Cría en cautividad
Una especie robusta y mansa, pero poco prolífica, de reserva genética pequeña y no apta para principiantes.
Para obtener buenos resultados es muy aconsejable alojar a la pareja en una instalación de unos 25 m², con vegetación abundante y terreno en el que puedan darse sus habituales baños de arena. (Hernández García, 2013)
La situación de la especie en las colecciones
Delacour, resumiendo la experiencia de California, escribía que el orejudo blanco es menos robusto y prolífico que el azul y el marrón y que no podía considerarse aún bien establecido en cautividad; Gerrits lo repite casi con las mismas palabras (Delacour, 1977; Gerrits, 1974). Howman, que describe la especie en tres ediciones de su manual, la considera en una situación razonable, pero vulnerable por la pequeña reserva genética, en 1993, y cuenta que un libro genealógico lo llevaba el Jersey Wildlife Preservation Trust (Howman, 1993). Johnsgard recoge además un programa intensivo de cría y un libro genealógico elaborado por Mallinson y Taynton (1978) (Johnsgard, 1986). El libro del autor, que no da cifras, resume el panorama con una advertencia: aunque la población cautiva crece, las subespecies se cruzan sin criterio y eso pone en peligro su futuro (véase el capítulo de amenazas) (Hernández García, 2013). En el reparto de la EAZA del año 2000 figura con «seguimiento de población», no con un programa EEP ni ESB (Hernández García, 2014).
Mínimo de 2 m² por faisán adulto, y hasta 5 m² en especies grandes (del Campo, 2006)
Roles (1976), Jersey
Seis voladeras de 24 × 12 × 7 pies (unos 7,3 × 3,7 × 2,1 m), con los 4 pies traseros cubiertos en tres lados, suelo de arena gruesa y, en algunas, zonas de césped y arbustos (Roles, 1976)
Delacour (para el género)
Recintos amplios, de césped y hojarasca; no necesitan red en el techo, por su mansedumbre y su poca afición a volar; hay que tener en cuenta que cavan (Delacour, 1977)
Los orejudos son resistentes a cualquier frío, pero no soportan bien la humedad prolongada; en grandes recintos con hierba y matorral conservan el plumaje intacto y viven muchos años (Delacour, 1977; Gerrits, 1974). Se vuelven mansos, aunque en la época de cría los machos pueden ser agresivos con los cuidadores y, por su tamaño, peligrosos; algunas aves criadas en pajarera se muestran salvajes desde que nacen y lo siguen siendo (Roles, 1976). En recintos pequeños suelen hacerse picadores inveterados de plumas, sobre todo de las colas, por falta de fibra y de actividad; Delacour recomienda separar a cada ave en un compartimento contiguo y juntarlas solo en el periodo de apareamiento, lo que además evita que el macho se coma los huevos y permite alternar a un macho con varias hembras, a pesar de la monogamia de la especie (Delacour, 1977; Gerrits, 1974). El criadero Chintaguay añade, para los orejudos en general, que conviene mantenerlos por parejas, pues la hembra más fuerte domina a las otras y puede llegar a matarlas (del Campo, 2006).
Howman recuerda que los orejudos, como los monales y los cheer, son cavadores y estropean las raíces de las plantas del recinto, por lo que hay que protegerlas con malla de vinilo mientras prenden (Howman, 1993). Roles, en Jersey, comprobó que cualquier arbusto nuevo introducido en el recinto de una pareja establecida es destruido por la curiosidad de las aves (las prueban, no necesariamente las comen, y desentierran las raíces), por lo que es mejor introducir las aves en un recinto ya plantado; las plantas usadas allí eran chinas o tibetanas, sobre todo bambúes, viburnos, cotoneaster y rododendros (Roles, 1976).
Los orejudos blancos no alcanzan la madurez sexual hasta el segundo año de vida, aunque el plumaje adulto aparece en el primero (Hernández García, 2013; Howman, 1993). Gerrits indica que en cautividad, por consanguinidad, algunas aves son fértiles en el primer año, y Johnsgard, que a veces las hembras empiezan a poner a un año de edad (Gerrits, 1974; Johnsgard, 1986); Howman anota que en cautividad las hembras suelen poner en su primera temporada (Howman, 1993). Smith, en California, creía que no criaban hasta el segundo año, aunque a veces ponían ya en el primero (Delacour, 1977).
Puesta y recogida de huevos
La puesta de cautividad es de 4 a 7 huevos por tanda, y en una temporada cada hembra pone varias tandas: Smith habla de hasta 16 huevos, Roles de unos 20 por ave y Delacour, para el género, de hasta 30 en varias puestas desde abril (Delacour, 1977; Roles, 1976). En Jersey la puesta empezaba a mediados de mayo (Roles, 1976); en el hemisferio norte las pautas actuales dan principios de abril y, en el sur, principios de octubre (del Campo, 2006; Hernández García, 2014; Howman, 1993). Roles añade que las hembras suelen escoger un lugar resguardado, pero pueden poner en cualquier sitio, a veces enterrando los huevos al escarbar a su alrededor (Roles, 1976).
Especie
Madurez (años)
Huevos
Época de puesta
Incubación (días)
Orejudo blanco (Crossoptilon crossoptilon)
2
4–7
N: principios de abril · S: principios de octubre
24–25 (24 en el libro del autor)
Orejudo del Tíbet (C. harmani)
2
4–7 (libro del autor)
N: mayo–junio (libro del autor)
24 (libro del autor)
Orejudo marrón (C. mantchuricum)
2
5–8
N: finales de abril · S: finales de octubre
26–27
Orejudo azul (C. auritum)
2
5–8 (6–12 en el libro del autor)
N: finales de abril · S: finales de octubre
26–28 (24–26 en el libro del autor)
Tabla de postura del criadero Chintaguay y ficha técnica de incubación del libro del autor; difieren en el huevo y los días de incubación del azul, y para el blanco coinciden en 4–7 huevos y en la época (del Campo, 2006; Hernández García, 2014).
La ovofagia
Howman cuenta que tuvo una pareja de orejudos blancos cuyo macho era un comedor de huevos inveterado, y que obtenía todos los huevos fértiles juntando al macho con la hembra el día en que ella no ponía y separándolos el siguiente, en que sí lo hacía; la hembra suele poner en días alternos (Howman, 1993; Howman, 1996). Roles y Howman recomiendan también poner huevos falsos en el recinto antes de la puesta y revisarlo con frecuencia, y el criadero Chintaguay recoger los huevos lo antes posible, mantener nidos en el recinto durante todo el año y recoger los huevos con las manos limpias (del Campo, 2006; Howman, 1993; Roles, 1976). Delacour destaca que mantener al macho separado evita que se coma los huevos (Delacour, 1977).
Incubación
La duración de la incubación varía según la fuente, y esas diferencias se explican en parte por la especie, la técnica y la época:
Fuente
Incubación
Smith, en Delacour; Johnsgard (Felix, Grummt); Madge; HBW; BOW
Felix (1964) precisa que los 27–28 días corresponden al marrón y al azul, no al blanco (Johnsgard, 1986).
Las incubadoras actuales siguen una pauta muy ajustada, común a casi todos los faisanes. Con la duración específica del orejudo, que es de 24 a 25 días, se resume así (del Campo, 2006):
Fase
Valor recomendado
Conservación de los huevos antes de incubar
13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo
Cuándo empezar a incubar
Cuanto antes: la fertilidad cae deprisa con la edad del huevo
Precalentamiento
6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación
Temperatura
37,5 °C durante toda la incubación, hasta que el pollo se seca
Humedad relativa
55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo
Volteo
3 o 4 veces al día, hasta tres días antes de la eclosión
Últimos tres días
Sin volteo; la humedad sube; conviene pasar los huevos a una nacedora
En Jersey se ponían los huevos en tandas de 6 a 9 bajo gallinas bantam; la gallina y los pollos permanecían 24 horas en la caja de cría, y después se pasaban a un pequeño gallinero móvil con corraleta, al que accedían cuando se les veía comer con normalidad (Roles, 1976). Howman publica fotografías de pollos de orejudo blanco criados por una gallina clueca, en Paradise Bird Gardens (Cornualles), y por una gallina sedosa, en Southview Aviaries (Canadá), y defiende en general la cría con gallina: no hay riesgo de que los pollos se impriman en el cuidador, y los criados al aire libre se endurecen antes (Howman, 1979; Howman, 1993).
Crianza de los pollos
Los polluelos se caracterizan por su rápido crecimiento: a los 3 meses ya pueden sexarse, pues el macho tiene el espolón más grande. (Hernández García, 2013)
Delacour describe los pollos como grandes y esponjosos, con la cabeza grande; a los cuatro meses se parecen ya al adulto y a veces pueden sexarse, y no suelen criar hasta el segundo año; les va mejor si se les deja en libertad en un prado a las dos o tres semanas, comen grandes cantidades de comida y a veces se picotean los dedos unos a otros, por lo que hay que vigilarlos; en lugares húmedos son sensibles a la difteria (Delacour, 1977; Gerrits, 1974). Smith, que los crió en California, los vio pendencieros desde el primer día y deseosos de enfrentarse apenas salidos del cascarón, aunque la pelea se terminaba a las pocas horas; Howman precisa que en las mezclas de pollos de varias especies conviene vigilar al orejudo blanco y al faisán de Reeves, que son los dos belicosos con los suyos y con los demás, y que el blanco se calma tras uno o dos días (Delacour, 1977; Howman, 1993). En Jersey los pollos se alimentaban con migas de iniciación y verdura picada, estaban cinco semanas en los gallineros y luego pasaban con la gallina a una corraleta; dormían en un compartimento dentro de la corraleta hasta que se les veía subir a las perchas, hacia las 12 semanas (Roles, 1976). Roles califica a los pollos de sorprendentemente delicados; no obstante, no plantean problemas de cría nuevos, y la higiene es un factor muy importante (Roles, 1976).
Semana
Días
Temperatura
Dónde
1
1–2
36 °C
Nacedora
1
2–7
32 °C
Criadora
2
8–14
30 °C
Criadora
3
15–21
28 °C
Criadora
4
22–28
26 °C
Criadora
5
29–35
24 °C
Jaula de recría (calor solo de noche durante la primera semana)
6–8
36–56
sin aporte
Jaula de recría
Pauta de calor suplementario del criadero Chintaguay para los faisanes en general; lo decisivo es observar a las aves: si se amontonan bajo la fuente de calor tienen frío, y si jadean y se alejan, calor (del Campo, 2006).
Longevidad
Beebe recoge que, de siete orejudos blancos del zoo de Londres, el más longevo vivió dos años y ocho meses y la vida media fue de 22 meses (Beebe, 1918); eran aves recién importadas y mantenidas en recintos reducidos, muy distintos de los actuales. El criadero Chintaguay da, para los faisanes en cautividad en general, una vida de 10 a 15 años con buena alimentación y manejo (del Campo, 2006). No se ha encontrado un dato específico para la especie en las obras consultadas.
La anilla
La tabla de diámetros de anilla del libro del autor asigna al orejudo blanco el valor 14, igual que a los otros orejudos; no expresa la unidad de medida (Hernández García, 2014).
12
Estado de conservación
De vulnerable a preocupación menor: una especie sin censo, con un área amplia y una población que se supone por decenas de miles.
LC
Preocupación menor
Población estable y extendida. Región: China.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La UICN cataloga hoy el orejudo blanco como de preocupación menor (evaluación de 2024), y figura en el Apéndice I de CITES (BirdLife, 2024). Antes de ese cambio, la especie estuvo casi tres décadas en alguna categoría de amenaza o de casi amenaza (BirdLife, 2024).
427.000km²
de extensión de presencia, según BirdLife
10.000–50.000aves
estima de Madge y McGowan (2002)
ICITES
Apéndice en el que figura la especie
El faisán orejudo blanco figura incluido en el Apéndice I de CITES, el nivel de protección más estricto del convenio, que prohíbe su comercio internacional con fines comerciales. Actualmente está catalogado por la UICN como de Preocupación menor (LC), tras una revisión de su estado de conservación en 2024. (BirdLife, 2024; Wikipedia)
Cómo ha cambiado la valoración
Año
Fuente
Valoración
1974
Gerrits
Extremadamente rara y, según él, en peligro de extinción (Gerrits, 1974)
Vulnerable; según Mace-Lande, vulnerables las formas crossoptilon, dolani, drouynii y lichiangense, y en peligro harmani(BirdLife, 2024; del Hoyo et al., 1994)
El cambio de 2024 no responde a una recuperación observada, sino a una nueva lectura de los datos: la evaluación reconoce que el tamaño de la población no se ha cuantificado y que el hábitat es muy extenso, que a menudo la especie se encuentra con regularidad y que las amenazas, la pérdida de hábitat y la caza, son sobre todo locales; la pérdida de hábitat entre 2010 y 2020 fue mínima (menos del 1 %) y la reforestación en algunas provincias, sobre todo en Sichuan desde finales de la década de 1990, puede haber aumentado el hábitat adecuado, mientras que en el oeste de su área la cultura tibetana tradicional protege a la especie (BirdLife, 2024). La longitud de generación que usa BirdLife es de 8,3 años (BirdLife, 2024).
En 1994 el HBW decía que no se conocía de ninguna área protegida y que había que evaluar cuanto antes su estado en ellas (del Hoyo et al., 1994). Johnsgard hablaba de unos pocos santuarios en China, apenas dentro de su posible área, mientras que la mayor parte de la distribución carecía de protección; había propuesta una reserva en las colinas Mishmi (Assam) y la situación en el Tíbet era incierta (Johnsgard, 1986). Madge y McGowan la conocían ya de al menos 20 localidades, entre ellas varias reservas como la Reserva del Panda de Wolong (Madge y McGowan, 2002). BirdLife anota registros recientes en varias áreas protegidas y identifica siete áreas importantes para las aves (IBA) para la especie: Huanglongsi, Xiaozhaizigou, Jiuding Shan, Fengtongzhai Qiaoqi, Labahe, Baima Xueshan y Yulong Xueshan; en total, abarcan 4.189 km² y están protegidas, en promedio, en un 52,58 % (BirdLife, 2024).
La protección más antigua y probablemente más eficaz es la cultural: la tradición budista que prohíbe matar animales en ciertas zonas y la costumbre de alimentarlos en los monasterios (Beebe, 1918; BirdLife, 2024; Delacour, 1977). Birds of the World añade, sin embargo, que esa tradición parece debilitarse en el oeste de Sichuan (BOW, 2020).
Medidas de conservación en marcha
BirdLife anota que no hay plan de recuperación ni seguimiento sistemático, y propone seguir vigilando la población, directamente o a partir de las tendencias del hábitat (BirdLife, 2024). Fuera de China, el libro del autor recoge que en el reparto de la EAZA de 2000 figura con «seguimiento de población» (Hernández García, 2014), y Howman y Roles dejan constancia de un libro genealógico, a cargo del Jersey Wildlife Preservation Trust, y de un grupo mantenido en Jersey (Howman, 1993; Roles, 1976).
Deforestación, caza y turismo en libertad; consanguinidad y mezcla de subespecies en cautividad.
La deforestación, la caza para alimentación, la agricultura y la expansión de la población humana constituyen una gran amenaza para este faisán. (Hernández García, 2013)
Amenazas en libertad
Johnsgard y el HBW ya señalaban como amenazas la destrucción del bosque y la caza excesiva para comida (del Hoyo et al., 1994; Johnsgard, 1986). Madge y McGowan precisan que la población se ha estimado a partir del tamaño del área y de su fragmentación, y que disminuye por pérdida de hábitat y caza, y que donde se persigue es mucho más escasa (Madge y McGowan, 2002).
Birds of the World explica que la especie tiene un área de distribución amplia, pero su hábitat, bastante especializado, es limitado y fragmentado. Se estima una población global de unas 20.000 aves (rango de 10.000 a 50.000), en declive. Figura en el Apéndice I de CITES y se conoce en pocas áreas protegidas, como la Reserva Natural Nacional de Wolong. En el oeste de Sichuan la protegía la población local, pero esa tradición parece debilitarse, en parte por el turismo procedente de otras zonas de China. Las amenazas principales son la deforestación y la caza para alimentación; un enclave del noroeste de Yunnan que alberga unas 300 aves se vio amenazado por el desarrollo de una mina de cobre, que probablemente aumentaría también la caza furtiva. La ficha señala además la existencia de híbridos con el faisán orejudo del Tíbet (Crossoptilon harmani). (BOW, 2020)
Depredadores naturales
Las mayores amenazas naturales (lobos, halcones y búhos) se tratan en el capítulo de comportamiento; Johnsgard, a través de Felix (1964), recoge un abanico mucho más amplio de depredadores posibles, que incluye al leopardo, al zorro rojo, al dhole y al águila real (Johnsgard, 1986).
Caza, supersticiones y uso
Varios observadores antiguos (David, Bower, Wilson) coinciden en que la caza era difícil y poco rentable: los cazadores prefieren otros faisanes, porque la carne del orejudo blanco es oscura, basta y con un fuerte sabor a cebolla, y porque en muchas zonas los habitantes impedían que se cazara (Beebe, 1918). BirdLife considera que hoy la caza es local y de subsistencia, sin efecto sobre la tendencia global (BirdLife, 2024). Beebe señalaba que, en algunos lugares, las pieles se veían colgadas en las casas tibetanas, y los pies se llevaban como amuleto (Beebe, 1918).
Protección legal
La especie figura en el Apéndice I de CITES, el de mayor protección, y además está protegida por la cultura budista en buena parte de su área (BirdLife, 2024; del Campo, 2006; Howman, 1993). Las fuentes consultadas no recogen el estatus legal nacional chino de la especie.
Amenazas en cautividad
Aunque en cautividad su población sigue en aumento, las subespecies se están cruzando sin ningún criterio, lo que llevará a esta especie al desastre a corto plazo. (Hernández García, 2013)
Es la misma preocupación que muestran otros autores: la población cautiva procede de pocas aves y, cuando se mezclan subespecies o se cría en un mismo recinto con otros orejudos, se pierden las líneas puras (Howman habla de una reserva genética pequeña, y Roles de una población de Jersey que procedía de solo cuatro aves) (Howman, 1993; Roles, 1976). El núcleo californiano casi se extinguió hacia 1970, probablemente por consanguinidad (Howman, 1979; Howman, 1996). Howman describe el estado de las aves en cautividad como razonable pero vulnerable por su pequeña reserva genética (Howman, 1993).
14
Subespecies y variación
Cuatro formas, de casi blancas a gris ceniza, que se funden unas con otras en el campo.
Se reconocen tres subespecies de faisán orejudo blanco, que se presentan a continuación junto con su área de distribución y sus rasgos distintivos. (BOW, 2020; Hernández García, 2013)
Como se explica en el capítulo de sistemática, el texto original cuenta tres subespecies, Birds of the World y Avibase cuentan cuatro, y Delacour, Johnsgard y el HBW cinco al incluir a harmani. Aquí se presentan, con sus fotografías y datos, las cuatro formas que recogen las tablas de medidas de la propia ficha: la nominal y las tres de las tarjetas originales (lichiangense, dolani y drouynii). Los nombres en español son los del libro del autor; Fuller y Garson dan en inglés los equivalentes Sichuan, Yunnan, Tibetan y Dolan’s white eared-pheasant(Avibase; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Hernández García, 2013; Johnsgard, 1986).
Sudeste del Tíbet y oeste de Sichuan, según la tarjeta del libro del autor (Hernández García, 2013); para Delacour, el oeste de Sichuan y las partes adyacentes del sudeste del Tíbet, entre unos 28° y 32° N, con Tatsienlu como localidad tipo restringida; para Birds of the World, este del Tíbet y oeste de Sichuan, y posiblemente el nordeste de la India (BOW, 2020; Delacour, 1977)
Rasgos distintivos
Cuerpo blanco con un lavado gris en el manto, alas gris oscuro (pardo oscuro a gris carbón, según Roles) y cola casi negra con reflejos purpúreos y verdes; iris amarillo anaranjado, según la tarjeta (Delacour, 1977; Hernández García, 2013; Roles, 1976)
Tamaño
Macho de 86–96 cm, 2,3–2,7 kg; hembra de 90 cm, 1,4–2,1 kg (libro del autor); Beebe y Delacour dan 920 mm de longitud, ala de 330 mm, cola de 575 mm y tarso de 100 mm (Beebe, 1918; Delacour, 1977; Hernández García, 2013)
Altitud
De unos 10.000 pies a la línea de nieve (Delacour, 1977)
Estado
Vulnerable en la evaluación de Mace-Lande de 1994, como las otras formas blancas o grises salvo harmani(del Hoyo et al., 1994)
Es la forma que más se acerca al tipo de Hodgson y la que da nombre a la especie. Delacour recoge bajo esta forma a las aves de California de los años treinta y sitúa su origen en la cordillera de Minya Konka, en el oeste de Sichuan; Howman titula también «Szechuan» su descripción de las aves de cautividad, mientras que Roles habla de una colonia de drouyni en Jersey, de modo que no está claro a qué forma pertenece cada línea de cautividad (Delacour, 1977; Howman, 1979; Roles, 1976).
Sudeste del Tíbet, según la tarjeta; entre el Yangtsé y el Salween, en las montañas que los separan del Mekong, entre unos 30° y 32° N (Delacour); registrada entre Tchamdo y el paso de Sok, y cerca de Zunda Gong y Sating Gong (BOW, 2020; Delacour, 1977; Hernández García, 2013)
Rasgos distintivos
Destaca por ser el más blanco de todos, con el iris blanco según la tarjeta; para Delacour, el plumaje es blanco puro salvo el casquete negro (a veces moteado de blanco), la cola y, normalmente, la cara interna de las primarias, con un ligero lavado gris en el manto y el obispillo de algunas aves; la base de las plumas de la cola es blanca o gris pálida (Delacour, 1977; Hernández García, 2013)
Tamaño
Libro del autor: macho de 96 cm, ala de 34 cm, cola de 52 cm, tarso de 10–11 cm, 2,5–2,7 kg; hembra de 90 cm, 1,8 kg. Madge: macho, ala de 300–340 mm y 2.350–2.750 g; hembra, ala de 271–308 mm y 1.400–2.050 g (Hernández García, 2013; Madge y McGowan, 2002)
Huevos
Tamaño medio de 59,1 × 43,5 mm, según Birds of the World (BOW, 2020)
Variación
Muy variable: algunos ejemplares tienen el manto desde azul pizarra hasta casi blanco, con la base de la cola blanca u oscura; Madge sugiere que la forma podría no ser válida y ser solo una población de intermedios; Roles describe un ejemplar «moteado» nacido en Jersey, con casquete manchado, alas grises y blancas y cola de plumas negras y blancas (BOW, 2020; Madge y McGowan, 2002; Roles, 1976)
Estado
Inestable, según Delacour: se mezcla con las formas grises en muchas zonas; él la daba por no exportada viva, aunque Roles menciona una colonia en Jersey y Howman publica una fotografía de un orejudo del Tíbet (Delacour, 1977; Howman, 1993; Roles, 1976)
Las dos últimas fotografías del grupo figuran en el libro del autor con el pie «Orejudo blanco del Tibet» y la firma de Siro Serena; las dos primeras se conservan en el sitio con el nombre de esta forma, sin autor (Hernández García, 2013).
Crossoptilon crossoptilon dolaniMeyer de Schauensee, 1938
Distribución
Sur de Kokonor (Qinghai), según la tarjeta y Delacour, que cita Jyekundo y Lamdo, en el alto Yangtsé; Madge, las regiones de Yushu y Lamdo, en el sur de Qinghai (Delacour, 1977; Hernández García, 2013; Madge y McGowan, 2002). Delacour menciona aves gris pálido entre Deje y Kyierothang, y cerca de Pengar Gompa, mezcladas con aves blancas, que podrían pertenecer a esta forma (Delacour, 1977)
Rasgos distintivos
Plumas gris claro que se oscurecen en las alas y la espalda, según la tarjeta; para Delacour, barbilla, garganta, parte anterior del cuello, mechones de las orejas, una banda que separa el casquete negro del cuello gris y el vientre blancos, partes superiores gris ceniza pálido, primarias gris pálido por fuera y pardo oscuro por dentro, y plumas muy deshilachadas y ásperas al tacto (Delacour, 1977; Hernández García, 2013)
Tamaño
Libro del autor: macho de 96 cm, ala de 32 cm, cola de 44–48 cm, tarso de 9 cm, 2,3–2,5 kg; hembra de 90 cm, 1,8 kg. Delacour: ala de 328 mm, cola de 460 mm, tarso de 93,5 mm (Delacour, 1977; Hernández García, 2013)
Estado
Fuller y Garson mencionan que se encontró una población aparentemente aislada y relicta de esta forma, estudiada por Pack-Blumenau y Lu Xin (1999) en Qinghai (Fuller y Garson, 2000)
La fotografía principal, de un ave en libertad, es la que el libro del autor reproduce como «Orejudo blanco de Dolan» con la firma de Dong Lei (Hernández García, 2013). Las otras dos se conservan en el sitio con el nombre de esta forma, sin autor.
Noroeste de Yunnan, según la tarjeta; Delacour, solo conocida de las montañas de Lichiang, en el recodo del alto Yangtsé; Birds of the World la extiende desde el suroeste de Sichuan (BOW, 2020; Delacour, 1977; Hernández García, 2013)
Rasgos distintivos
Alas gris claro e iris amarillo claro, según la tarjeta; para Delacour, alas más claras que las de la forma nominal, con la cara externa de las primarias gris clara, y cuatro pares de plumas externas de la cola, en la mayoría de los casos, con un borde externo gris blanquecino; más gris en la mitad basal de las plumas de la cola, y lavado gris del manto más débil (Delacour, 1977; Hernández García, 2013)
Tamaño
Libro del autor: macho de 96 cm, ala de 32 cm, cola de 52 cm, tarso de 9–10 cm, 2,3–2,7 kg; hembra de 90 cm, cola de 47 cm, 1,4–2,1 kg. Delacour: ala de 327 mm, cola de 520 mm, tarso de 95 mm (Delacour, 1977; Hernández García, 2013)
Altitud
Forrest y Rock recogieron sus ejemplares en bosque de pino entre 12.000 y 14.000 pies (Delacour, 1977)
Estado
Para Madge y McGowan es una forma poco diferenciada, parecida a la nominal pero con alas y base de la cola gris pálido; Delacour la daba por no exportada viva (Delacour, 1977; Madge y McGowan, 2002)
Las tres fotografías se conservan en el sitio con el nombre de esta forma, sin autor. Las aves que Beebe vio en el noroeste de Yunnan, algo más al norte, probablemente pertenecen a ella, según Delacour (Delacour, 1977).
Clave dicotómica de los orejudos, con las formas del blanco (según Delacour y Johnsgard)
Mechones de las orejas visibles por encima de la nuca
Plumaje general gris azuladoFaisán orejudo azul (Crossoptilon auritum)
Plumaje general marrón y blancoFaisán orejudo marrón (Crossoptilon mantchuricum)
Mechones de las orejas no visibles por encima de la nuca
Pecho gris
Pecho gris oscuroFaisán orejudo del Tíbet (Crossoptilon harmani)
Pecho gris claroOrejudo blanco de Dolan (C. c. dolani)
Pecho blanco
Alas casi blancasOrejudo blanco del Tíbet (C. c. drouynii)
Alas grises
Alas gris claroOrejudo blanco de Yunnan (C. c. lichiangense)
Alas gris oscuroOrejudo blanco de Sichuan (C. c. crossoptilon)
La clave figura en la tarjeta de drouynii de la ficha original; es la de Delacour, y la recoge Johnsgard (Delacour, 1977; Johnsgard, 1986). En la clave, harmani figura aún como una forma de pecho gris oscuro; hoy se trata como especie aparte (Avibase; Madge y McGowan, 2002).
Cómo se diferencian las formas
Rasgo
Sichuan
Yunnan
Tíbet
Dolan
Pecho
Blanco
Blanco
Blanco
Gris claro
Alas
Gris oscuro
Gris claro
Casi blancas
Gris claro, más oscuras en la espalda
Cola
Casi negra, sin blanco
Borde externo gris blanquecino en los cuatro pares externos; más gris en la base
Base blanca o gris pálida; a veces casi toda blanca
Como en harmani, con las centrales más verdes
Área
Oeste de Sichuan y sudeste del Tíbet
Noroeste de Yunnan (y suroeste de Sichuan, según BOW)
La variación de color es el rasgo central de la especie y el origen de casi toda la discusión taxonómica. Johnsgard la resume así: la forma nominal es extremadamente blanca, harmani, en el otro extremo, de gris pizarra oscuro, y entre ellas la forma de Dolan, gris ceniza pálido, hace de puente; pero estas tres formas, aunque individualmente constantes, quedan unidas geográficamente por la muy variable drouynii, que algunos consideran el resultado de una hibridación entre los tipos extremos; la poco estudiada lichiangense muestra cierta tendencia hacia el plumaje de drouynii, pero no se sabe que esté en contacto con ella (Johnsgard, 1986). Cheng y colaboradores (1978) indican que la forma nominal se ha registrado muy cerca del borde del área del orejudo azul, pero sin zonas de contacto conocidas entre ambos (Johnsgard, 1986). «No parece haber un patrón claro» que permita entender las variaciones geográficas del plumaje (Johnsgard, 1986), y Birds of the World advierte también de que la variación de blanco a gris pizarra no siempre guarda relación con la geografía (BOW, 2020).
Delacour describe en el este del Tíbet, dentro del área de drouynii, poblaciones inestables de plumaje mixto: aves casi totalmente blancas, otras con cola gris y negra y otras teñidas de gris en distintos tonos, que se han encontrado juntas en Showa, en el valle del Po Tsangpo, en Pome (Ludlow, 1947), entre el paso de Sok y Tchamdo (Bower, 1891) y en Tioungen, al oeste del paso de Sok (príncipe Enrique de Orleans, 1890) (Delacour, 1977). harmani es muy uniforme y estable, salvo hacia el borde nordeste de su área, donde se cruza con drouynii y da ejemplares irregularmente moteados de blanco (Delacour, 1977). Roles cree que drouynii es la forma central del área y que se cruza con las tres formas vecinas en las fronteras comunes (Roles, 1976). Madge y McGowan opinan que la variabilidad de drouynii probablemente refleja la influencia del orejudo del Tíbet, porque algunos ejemplares son gris pizarra en las partes superiores (Madge y McGowan, 2002).
La explicación de Beebe: híbridos con el orejudo azul
Beebe ofrecía en 1918 otra explicación: las aves intermedias de la zona oriental serían el resultado de cruces de generaciones sucesivas entre el orejudo blanco y el azul, y las formas drouynii, leucurum y harmani no serían más que híbridos silvestres sin valor taxonómico (Beebe, 1918). La tabla de hibridación de Johnsgard (1999), adaptada por del Campo, marca el cruce del orejudo blanco con el azul con un cuadro rojo, que indica híbridos fértiles de ambos sexos y «hibridación conocida en estado salvaje»; no marca ningún otro cruce para el blanco (del Campo, 2006; Johnsgard, 1999). Johnsgard (1986), en cambio, escribía que la hibridación natural con el azul se había sugerido (Gray, 1958), pero que parecía no estar probada (Johnsgard, 1986). BOW y Avibase registran híbridos con el azul, con el marrón y con el del Tíbet (Avibase; BOW, 2020).
El orejudo del Tíbet, la quinta forma de Delacour
Para Delacour, harmani era la quinta subespecie del blanco; se encuentra en el sudeste del Tíbet, al norte del eje principal del Himalaya, entre los 91° y 94° E, con el pecho gris azulado oscuro, collar blanco en la nuca, cara roja, pico curvado y patas rosadas según el libro del autor, y de menor tamaño que el blanco (75–85 cm, según Madge) (Delacour, 1977; Hernández García, 2013; Madge y McGowan, 2002). Hoy se trata como especie aparte y tiene su propia ficha en esta guía (Faisán orejudo del Tíbet). Los polluelos son mucho más oscuros que los del blanco y los huevos, de color gris verdoso (Delacour, 1977; Hernández García, 2013; Madge y McGowan, 2002).
Híbridos en cautividad
Delacour recuerda que se han obtenido híbridos de orejudos con monales, con faisanes plateados y con kalij; en el último caso dominan los rasgos de Lophura y los machos son fértiles, lo que indica una relación bastante estrecha entre los géneros (Delacour, 1977; Gerrits, 1974). Entre los orejudos, la cría en cautividad ha dado: un híbrido con el orejudo marrón criado en Amberes; las experiencias de Ghigi (1934), que mostraron que en el cruce crossoptilon × mantchuricum las «orejas» son de longitud intermedia y domina la cola casi normal del blanco; los híbridos auritum × crossoptilon que R. H. Gibson crió en St. Helena (California) en 1947 y 1948, con las orejas y la cola de la madre, mayores que las de las especies parentales y de color gris plateado; y su retrocruce con el blanco, en 1949, por Lehman, que dio aves casi como el blanco, solo algo más grises (Delacour, 1977). Johnsgard añade que los cruces dentro del género parecen dar descendientes plenamente fértiles (Johnsgard, 1986).
Cruce con el orejudo blanco
Resultado reportado
Orejudo azul
Híbridos de ambos sexos fértiles; hibridación conocida en estado salvaje (tabla de Johnsgard, 1999) (del Campo, 2006; Johnsgard, 1999)
Orejudo marrón
Un híbrido criado en Amberes; en la tabla de Johnsgard (1999) no figura ningún cruce marcado (Delacour, 1977; Johnsgard, 1999)
Orejudo del Tíbet
Híbridos en la zona de contacto de drouynii con harmani; BOW y Avibase los registran (Avibase; BOW, 2020; Delacour, 1977)
Tabla de hibridación de Johnsgard (1999), traducida y adaptada por del Campo, y fuentes citadas; la tabla no detalla los casos concretos (del Campo, 2006; Johnsgard, 1999).
15
Cultura y curiosidades
Un ave protegida por los monasterios, con piel de amuleto y un sello de Bután.
La cultura que rodea al orejudo blanco es, sobre todo, la de las montañas tibetanas: el ave sagrada, o al menos intocable, de los monasterios budistas, y una pieza de caza difícil y de carne poco apreciada (Beebe, 1918; Delacour, 1977; Wikipedia).
Un ave protegida por la religión
Beebe cuenta, en el pie de su lámina, que, aunque el ave es casi totalmente blanca, no vive en la nieve, sino que baja a los valles ante las primeras tormentas de invierno; que fuera de la época de cría vive en bandadas, a menudo en estrecha relación con el pequeño almizclero; y que los tibetanos de esa región son muy supersticiosos y no permiten matar animales ni aves siempre que pueden evitarlo, de modo que los «shaggas» tienen buenas posibilidades de seguir existiendo mientras los lamas mantengan esa influencia (Beebe, 1918; Beebe, 1926). Delacour insiste en que el ave sigue siendo abundante y confiada donde la protegen los budistas, sobre todo cerca de los monasterios, y la ficha original de la web y BirdLife recogen lo mismo (BirdLife, 2024; Delacour, 1977; Wikipedia).
Cuando matar un faisán enferma a un valle
El pasaje de Bower que cita Beebe es una pequeña historia por sí misma: tras abatir un orejudo blanco y bajar de la montaña con el ave en la mano, se encontró con un grupo de hombres armados que venían a detener la caza; decían que, si se mataba cualquier animal, todos los habitantes del valle enfermarían. Bower, que acababa de fallar con varios disparos fáciles contra una bandada, concluyó que eran gente muy supersticiosa y capaz de volverse peligrosa por ello (Beebe, 1918).
Pieles, amuletos y nombres
Tappey escribió a Beebe que a veces se ven pieles de orejudo colgadas en las casas tibetanas y que los nativos llevan a menudo el pie de una de estas aves como amuleto (Beebe, 1918). El nombre tibetano, shagga, significa, según Wikipedia, «gallina de la nieve», y Beebe lo recoge con otras formas como sharkér; Wilson da Shar-har y el nombre chino Mache(Beebe, 1918; Wikipedia). El nombre chino que Wilson recoge para el blanco, Mache, es el que Beebe transcribe como Ma-chi para el orejudo azul y traduce como «gallo-caballo», quizá por su velocidad al correr (Beebe, 1918).
Láminas históricas
Beebe dedicó una lámina a la especie en su monografía de 1918 y la reutilizó en la edición divulgativa de 1926 con un pie y la firma de G. E. Lodge (Beebe, 1918; Beebe, 1926). Delacour incluyó el orejudo blanco en la lámina XIX de su manual, junto con el orejudo marrón, el azul y el de Harman, con machos del blanco del Tíbet (drouyni) y del blanco de Sichuan (Delacour, 1977). Beebe incluyó también una fotografía del lugar donde vio los tres orejudos blancos en el norte de Yunnan (Beebe, 1918).
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.
El sello reproducido es de Bután, con valor facial de 15 CH, y muestra un ave blanca con la cola oscura sobre una rama; las fuentes consultadas sitúan la especie en China y, quizá, el nordeste de la India, pero no en Bután (BirdLife, 2024; BOW, 2020; del Hoyo et al., 1994).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
BirdLife International (2024). Crossoptilon crossoptilon. The IUCN Red List of Threatened Species 2024: e.T22679292A254209795. doi:10.2305/IUCN.UK.2024-2.RLTS.T22679292A254209795.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions. Familia Phasianidae (texto de P. J. K. McGowan); ficha 131, White Eared-pheasant, p. 539.
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; láminas de dominio público).
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Lepage, D. Avibase: Crossoptilon crossoptilon (Faisán orejudo blanco). Avibase, la base de datos de aves del mundo (Bird Studies Canada y Birds Canada). avibase.bsc-eoc.org (ID D39EDBF11CD8DA49) (consultada el 13 de noviembre de 2026).
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
McGowan, P. J. K., Kirwan, G. M. y Christie, D. A. (2020). White Eared-Pheasant (Crossoptilon crossoptilon), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/whieap1 · doi:10.2173/bow.whieap1.01 (la ficha completa es de pago; los datos que se citan proceden de la página de acceso libre y de los recuadros de la ficha original de esta web, que se basan en ella).
Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
Wikipedia (en inglés). White eared pheasant. en.wikipedia.org/wiki/White_eared_pheasant (consultada el 13 de noviembre de 2026; los recuadros «Información ampliada» de la ficha original proceden de este artículo).
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán orejudo blanco — Crossoptilon crossoptilon. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/orejudoblanco.php.