Resumen
La especie de un vistazo.
El faisán pavo de Hainan (Polyplectron katsumatae) es una especie de la familia Phasianidae endémica de la isla de Hainan (China), donde es el único faisán pavo, y está catalogada por la UICN como en peligro. (BirdLife DataZone, 2022; Hernández García, 2014; Madge y McGowan, 2002)
Es un faisán pavo pequeño y pardo oscuro, con la piel desnuda de la cara roja y ocelos verdes y azules rodeados de un anillo blanco que se ensancha en la punta; el macho mide 53–65 cm y la hembra, 40–45 cm, y los únicos pesos publicados son los de un macho de 456 g y, según HBW, unos 400 g para la hembra (BOW, 2020; del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002). Se distingue del faisán pavo gris por su menor tamaño, su piel facial roja y más extensa, sus ocelos sobre todo verdes (y no morados), su corona más oscura y su cuerpo más pardo y más densamente vermiculado (BirdLife DataZone, 2022; BOW, 2020; Madge y McGowan, 2002).
Rothschild la describió como especie en 1906 a partir de pieles de Hainan, donde la había descubierto el coleccionista japonés Katsumata; Beebe (1922) la mantuvo como especie, pero Delacour, Johnsgard, HBW y Fuller y Garson la trataron durante décadas como una subespecie del faisán pavo gris (P. bicalcaratum katsumatae) (Avibase; Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986). Madge y McGowan (2002), BirdLife (2022), BOW y Avibase la tratan hoy como especie, y en esta guía lo es; un estudio molecular de 2008 la separa del gris hace unos 1,4 millones de años (Avibase; BirdLife DataZone, 2022; BOW, 2020; Madge y McGowan, 2002; Wikipedia).
Vive en el centro y el suroeste de la isla, en bosques perennifolios y semiperennifolios (también en bosque secundario maduro, pero no en plantaciones), entre 200 y 1.300 m según BirdLife; los datos de su biología son muy escasos (BirdLife DataZone, 2022; BOW, 2020; Madge y McGowan, 2002). En la reproducción solo se conocen unos nidos en el suelo, con uno o dos huevos blancos, y una puesta que se estudia sobre todo a través de aves cautivas (BOW, 2020; Hernández García, 2014).
Figura como en peligro (EN) en la Lista Roja desde 2010; la evaluación de 2022 aplica el criterio C2a(i), con una población de 800–2.000 individuos maduros (estima de 2018), repartida en entre 5 y 100 subpoblaciones, y una tendencia decreciente inferida; la caza es hoy la amenaza principal, junto a la pérdida de bosque (BirdLife DataZone, 2022). En 1990 se calcularon unos 2.700 individuos (BirdLife DataZone, 2022; BOW, 2020; Madge y McGowan, 2002). Es especie protegida de clase I en China, y un núcleo cautivo se mantiene en el Instituto del Sur de China para los Animales Amenazados (BirdLife DataZone, 2022). Ninguna de las fuentes consultadas menciona poblaciones introducidas o asilvestradas. Es una especie monotípica (BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014).
- 53–65cmde longitud total del macho (BOW, Madge y McGowan)
- 200–1.300mde altitud según BirdLife
- 800–2.000individuos madurosestima de BirdLife (2018); evaluación de 2022
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoENEn peligro - Tendencia de la población decreciente · evaluación de 2022 · criterios C2a(i) · Lista Roja de la UICN (BirdLife International, 2022)
Ficha técnica
- Nombre científico
- Polyplectron katsumatae Rothschild, 1906 (Avibase; BirdLife DataZone, 2022; BOW, 2020; Madge y McGowan, 2002)
- Clasificación
- Orden Galliformes · familia Phasianidae · género Polyplectron Temminck, 1813 (Avibase; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986)
- Subespecies
- Ninguna: especie monotípica (BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
- Nombres comunes
- ES faisán pavo de Hainan (espolonero de Hainán, en Avibase) · EN Hainan Peacock-pheasant · FR éperonnier de Hainan · DE Hainanpfaufasan · IT speroniere di Hainan · PT faisão-ocelado-de-ainão (nombre de Avibase para Portugal) · ZH 海南孔雀雉 (Avibase; Hernández García, 2014; Madge y McGowan, 2002)
- Longitud total
- ♂ 53–65 cm · ♀ 40–45 cm (BOW; Madge y McGowan); la tabla de la ficha original daba 56–76 cm y 48–55 cm, cifras del gris, y se ha corregido (BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
- Peso
- un macho de 456 g (Cheng et al., 1978, según Johnsgard); hembra c. 400 g (HBW); la tabla original daba 500 y 900 g (♂) y 500 g (♀), cifras del gris, y se ha corregido (del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
- Hábitat
- Bosque denso perennifolio y semiperennifolio, de montaña y de tierras bajas; también bosque secundario maduro; no se ha hallado en plantaciones (BirdLife DataZone, 2022; BOW, 2020; del Hoyo et al., 1994)
- Distribución
- Endémica de la isla de Hainan (China): centro y suroeste (BirdLife DataZone, 2022; BOW, 2020; Madge y McGowan, 2002)
- Altitud
- 200–1.300 m (BirdLife; BOW); 600–1.200 m (Madge y McGowan); 1.000–1.300 m (ficha original) (BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
- Puesta
- 1–2 huevos blancos (BOW); 2 huevos, con incubación de 22 días (ficha original) (BOW, 2020; Hernández García, 2014)
- Madurez
- 2 años, según la ficha original (Hernández García, 2014)
- Estado de conservación
- En peligro (EN), evaluación de 2022, criterio C2a(i); tendencia decreciente (inferida) (BirdLife DataZone, 2022)
- Extensión de presencia
- 10.100 km² según BirdLife (BirdLife DataZone, 2022)
- Población
- 800–2.000 individuos maduros (BirdLife, estima de 2018); 250–1.000 individuos (BOW) (BirdLife DataZone, 2022; BOW, 2020)
- Protección
- Especie protegida de clase I en China; varias reservas naturales nacionales y provinciales (BirdLife DataZone, 2022)
- Conservación ex situ
- Núcleo cautivo en el Instituto del Sur de China para los Animales Amenazados; sin datos en el censo de la WPA (BirdLife DataZone, 2022; Censo WPA)
Sistemática y nomenclatura
Una especie descrita en 1906 de pieles de una isla, tratada durante un siglo como subespecie del faisán pavo gris y hoy reconocida por BirdLife, BOW, Avibase y por esta guía.
El faisán pavo de Hainan pertenece al género Polyplectron, el de los espoloneros o faisanes pavo, que reúne seis especies para Delacour, siete para Johnsgard y ocho en la lista de Madge y McGowan; su rango es el asunto que más ha discutido la sistemática de esta forma: ¿especie propia o subespecie del faisán pavo gris? (Beebe, 1922; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
Posición taxonómica
| Rango | Taxón |
|---|---|
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Género | Polyplectron Temminck, 1813 |
| Especie | Polyplectron katsumatae Rothschild, 1906 |
| Subespecies | ninguna |
El autor no va entre paréntesis porque Rothschild describió la especie ya en el género Polyplectron, el mismo en que hoy se clasifica: Polyplectron katsumatae, en el Bulletin of the British Ornithologists’ Club 16, p. 111 (el texto digital de Beebe lee «p. iii»), con el monte Wuchi, en Hainan, como localidad tipo (Avibase; Beebe, 1922; Delacour, 1977). La taxonomía de esta guía, Avibase, Wikipedia y BirdLife dan «Rothschild, 1906» (Avibase; BirdLife DataZone, 2022; Wikipedia). Beebe incluye el género en la subfamilia Argusianinae y el criadero Chintaguay lo mantiene en ella (Beebe, 1922; del Campo, 2006).
El género lo funda Temminck en 1813, según la taxonomía de esta guía y Beebe, Delacour, Johnsgard y HBW, en la Histoire naturelle des pigeons et des gallinacés (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986). Delacour reconocía seis especies de Polyplectron (con katsumatae y schleiermacheri como subespecies), Beebe cinco especies completas y una subespecie, Johnsgard siete y HBW siete (incluyendo a katsumatae dentro del gris), Madge y McGowan ocho; el libro del autor da nueve («ocho según versiones») y lista ocho en el volumen II (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
Origen del nombre
El epíteto katsumatae honra a Z. Katsumata (activo hacia 1903), farmacéutico y coleccionista japonés en la isla de Hainan, según Jobling; Beebe dice solo que es en honor del coleccionista, el señor Katsumata, de Japón (Beebe, 1922; Jobling, 2010). El nombre del género, Polyplectron, viene del griego polus, «muchos», y plektron, «espolón de gallo»: es el origen de «espolonero», el nombre español de estas aves (Jobling, 2010). «Hainan» es el nombre de la isla donde vive.
Nombres comunes
| Idioma | Nombre | Observaciones |
|---|---|---|
| Español | Faisán pavo de Hainan (también «espolonero») | la guía y el libro del autor; el libro del volumen I lo rotula «Faisán Pavo Gris de Hainan» (Hernández García, 2013; Hernández García, 2014); Avibase: «Espolonero de Hainán» y «Espolonero de Hainan» (Avibase) |
| Inglés | Hainan Peacock-Pheasant | Madge y McGowan, BirdLife y BOW; Beebe: «Hainan» o «Katsumata’s Peacock Pheasant»; Delacour, Johnsgard, Roles y Fuller y Garson: «Hainan Grey Peacock Pheasant» (como subespecie) (Beebe, 1922; BirdLife DataZone, 2022; BOW, 2020; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976) |
| Francés | Éperonnier de Hainan | la guía y Avibase; Avibase recoge también «Éperonnier chinquis (de Hainan)» (Avibase; Hernández García, 2014) |
| Alemán | Hainanpfaufasan | la guía y Avibase (Avibase; Hernández García, 2014) |
| Italiano | Speroniere di Hainan | la guía y Avibase (Avibase; Hernández García, 2014) |
| Portugués | faisão-ocelado-de-ainão | Avibase, para Portugal; la ficha original decía «Faisão-pavão-Hainan», y Avibase da «Faisão-pavão-chinquis» para el gris (Avibase; Hernández García, 2014) |
| Chino | 海南孔雀雉 (y 海南灰孔雀雉) | Avibase (Avibase) |
| Otros (Avibase) | neerlandés Hainanspiegelpauw · polaco wieloszpon hainański · checo bažant chajnanský · japonés ハイナンコクジャク · ruso Хайнаньский павлиний фазан | (Avibase) |
Avibase registra además en inglés «Gray Peacock-Pheasant (Hainan)» (nombre de eBird hasta su versión 1.55, cuando la forma se trataba como subespecie), «Hainan Gray peacock pheasant» y «Burmese Peacock-Pheasant» (Avibase).
¿Especie o subespecie? Cómo la tratan las fuentes
| Fuente | Rango | Observaciones |
|---|---|---|
| Rothschild (1906), descripción original | especie | Polyplectron katsumatae; localidad tipo, monte Wuchi; tipo en el Museo de Tring (Avibase; Beebe, 1922) |
| Hartert (1910), según la sinonimia de Beebe | subespecie | Polyplectron bicalcaratus katsumatae (Chickeriang, sur de Hainan) (Beebe, 1922) |
| Beebe (1922) | especie | por su insularidad, que impide la intergradación, y por la falta de pruebas de una variabilidad como la que muestra el faisán común de Formosa (Phasianus colchicus formosanus) (Beebe, 1922) |
| Roles (1976) | subespecie | quinta forma del gris, aislada en Hainan (rotulada P. katsumatae en el texto) (Roles, 1976) |
| Delacour (1977) | subespecie | Polyplectron bicalcaratum katsumatae, «Hainan Grey Peacock Pheasant»; resume que se parece al gris, pero es menor, y la considera subespecie (Delacour, 1977) |
| Johnsgard (1986) | subespecie | cita que Beebe la consideraba especie distinta (Johnsgard, 1986) |
| HBW (1994) | subespecie | P. b. katsumatae; HBW la considera digna de atención especial de conservación por sus diferencias morfológicas con las formas continentales y su aislamiento geográfico (del Hoyo et al., 1994) |
| Fuller y Garson (2000) | subespecie | Fuller y Garson señalan que algunos autores la listan como especie distinta (p. ej., Inskipp et al., 1996) y piden caracterizarla mejor (Fuller y Garson, 2000) |
| Madge y McGowan (2002) | especie | monotípica; Madge y McGowan señalan que a menudo se trata como conespecífica del gris, pero le dan rango de especie (Madge y McGowan, 2002) |
| Criadero Chintaguay (2005–2006) | subespecie | «a veces considerada una especie distinta» (del Campo, 2006) |
| Libro del autor, vol. I (2013) | subespecie | con nota: «algunos autores lo consideran una especie separada» (Hernández García, 2013) |
| Libro del autor, vol. II (2014), y ficha original | especie | con ficha propia y la nota «algunos autores la incluyen como subespecie» en la ficha del gris (Hernández García, 2014) |
| Wikipedia | especie | cita el estudio molecular de Chang et al. (2008) (Wikipedia) |
| BirdLife (2022) | especie | monotípica; la valoración de caracteres de Collar (2009), Pilgrim et al. (2009) y Davison et al. (2012) la separa del gris (BirdLife DataZone, 2022) |
| BOW (2020) | especie | monotípica; «Hainan Peacock-Pheasant» (BOW, 2020) |
| Avibase (2026) | especie («a veces subespecie») | recoge cómo la tratan distintas listas, resumidas abajo (Avibase) |
Las discrepancias se deben, sobre todo, a la época: las obras anteriores a 2002 siguen a Delacour, y las posteriores, al criterio morfológico y molecular (BirdLife DataZone, 2022; Delacour, 1977; Madge y McGowan, 2002; Wikipedia).
| Lista (según Avibase) | Tratamiento |
|---|---|
| Peters, Check-list of the Birds of the World | subespecie del gris |
| Howard y Moore, 2.ª y 3.ª ediciones | subespecie del gris |
| Howard y Moore, 4.ª edición | especie |
| Clements, 5.ª y 6.ª ediciones (hasta las revisiones de 2014) | subespecie del gris |
| Clements, desde la versión de 2015 | especie |
| eBird, versiones 1.52 a 1.55 | subespecie del gris («Gray Peacock-Pheasant (Hainan)») |
| eBird, desde la versión de 2015 | especie |
| Handbook of the Birds of the World (16 volúmenes) | subespecie del gris |
| HBW Alive (2015, 2017) y lista HBW–BirdLife (desde diciembre de 2017) | especie |
| IOC World Bird Names (todas las versiones que lista Avibase, desde la 2.3) | especie |
| Sibley y Monroe, v. 2.0 | especie |
| Oriental Bird Club | especie |
| AviList (2025 y 2026) | especie |
| Zoonomen | ambas |
Avibase resume así cuándo cambió el tratamiento de cada lista; las fechas son las de las versiones que reproduce, no las del estudio que motivó el cambio (Avibase).
Los caracteres y los datos moleculares que la separan
BirdLife resume la valoración de caracteres que se emplea para separar a los machos de katsumatae de los de las demás formas de P. bicalcaratum: menor tamaño (con un tamaño del efecto de 8,57 en el ala, puntuación 3), piel de la cara de un rojo brillante y más extensa, frente al gris sucio o amarillo pálido y menos extensa del gris (3), ocelos verdes y no purpúreos, con una forma algo distinta (2), ausencia de plumas alargadas en la corona (1), corona más oscura (1), plumaje del cuerpo más densamente y más pulcramente vermiculado (puntuación no significativa, «ns1») y color general más pardo que gris (ns1), y apunta que el color del iris podría ser otro carácter (BirdLife DataZone, 2022). BOW añade que se distingue del gris por su tamaño claramente menor, su piel facial roja y más extensa, sus ocelos sobre todo verdes, su corona más oscura con plumas menos alargadas y su cuerpo más pardo y densamente vermiculado (BOW, 2020).
Chang y colaboradores (2008) emplearon el gen mitocondrial del citocromo b completo y el intrón G del gen nuclear de la ovomucoide para reevaluar la taxonomía: hallaron monofilia filogeográfica y una gran distancia genética entre el faisán pavo de Hainan y el gris, y estimaron que ambos divergieron hace unos 1,4 ± 0,3 millones de años, hacia la época en que la isla se separó del continente (BirdLife DataZone, 2022; Wikipedia). BirdLife, citando a Chang et al. (2008) y a Davison et al. (2012), añade que los dos taxones ni siquiera son parientes próximos entre sí: el gris resulta hermano del faisán pavo de Sumatra, y el de Rothschild, hermano de ese par (BirdLife DataZone, 2022). Johnsgard, por el contrario, ya veía en la cresta y la gorguera cortas de la forma de Hainan y en su tamaño reducido un posible eslabón intermedio con el faisán pavo de Germain, en la serie clinal del gris, que pasa del gris del oeste al pardo del este; Beebe la comparaba también con Germain (más pequeña, con ocelos azul verdoso que se vuelven verde amarillento, y no violeta y verde purpúreo), y Delacour decía que el fondo es más oscuro y pardo, «como el de Germain» (Beebe, 1922; Delacour, 1977; Johnsgard, 1986). Ninguna de las fuentes consultadas sitúa con detalle a katsumatae en el árbol del género.
Sinonimia y combinaciones
| Nombre | Autor y año | Observaciones |
|---|---|---|
| Polyplectron katsumatae | Rothschild, 1906 | nombre original y válido en esta guía; Bull. Brit. Orn. Club 16, p. 111 (Avibase; Beebe, 1922; Delacour, 1977) |
| Polyplectron bicalcaratus katsumatae | Hartert, 1910 | Novitates Zoologicae 17, p. 191 (Chickeriang, sur de Hainan), según Beebe (Beebe, 1922) |
| Polyplectron bicalcaratum katsumatae | (Rothschild, 1906) | combinación de Delacour, Johnsgard, HBW, Fuller y Garson, Peters y Howard y Moore (2.ª y 3.ª ed.) (Avibase; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986) |
| Polypectron bicalcaratum katsumatae | — | grafía errónea que Avibase registra entre los sinónimos (Avibase) |
En la sinonimia de Avibase figura también Polyplectron [bicalcaratum o katsumatae] como concepto agrupado, bajo el que Avibase reúne a bicalcaratum y katsumatae cuando una lista las trata como una sola especie (Avibase).
Historia
Una pluma suelta en 1904, unas pieles en 1906 y un siglo de dudas sobre su rango; de las primeras fotografías de la WPA a los censos que cuentan unos pocos cientos de aves.
De la historia de esta especie se conoce poco: un coleccionista japonés la descubrió en Hainan, Rothschild la describió en 1906 y casi nada se escribió después sobre su vida en libertad hasta los estudios chinos de finales del siglo XX; Beebe, que no visitó la isla, advierte de que el coleccionista no dejó notas de campo. (Beebe, 1922; BirdLife DataZone, 2022; Madge y McGowan, 2002)
Cronología
- John Whitehead, coleccionista inglés, visita Hainan y descubre allí el faisán plateado de Hainan; muere de fiebre menos de ocho semanas después de conseguirlo (Beebe, 1926; Jobling, 2010).
- Z. Katsumata, farmacéutico y coleccionista japonés, trabaja en Hainan; de él toma el nombre la especie (Beebe, 1922; Jobling, 2010).
- Se encuentra en Hainan una sola pluma de cola de Polyplectron; aunque parecía tener buenos caracteres específicos, no se le dio nombre hasta que se obtuvieron pieles completas (Beebe, 1922).
- Rothschild describe Polyplectron katsumatae en el Bulletin of the British Ornithologists’ Club (volumen 16, p. 111); localidad tipo, el monte Wuchi, en Hainan; el tipo se conserva en el Museo de Tring (Avibase; Beebe, 1922; Delacour, 1977).
- Hartert recoge la forma como subespecie del gris (Polyplectron bicalcaratus katsumatae) en las Novitates Zoologicae, con ejemplares de Chickeriang, en el sur de Hainan (Beebe, 1922).
- Beebe, que no visitó Hainan, publica el volumen IV de su monografía y da a la forma pleno valor específico, por su insularidad, que impide la intergradación actual (Beebe, 1922).
- Delacour la trata como subespecie del gris (P. bicalcaratum katsumatae) en The Pheasants of the World; la lámina 26 de la obra representa a un macho (Delacour, 1977).
- Roles la cuenta como la quinta forma del gris, aislada en Hainan, y no la menciona entre las que conoce en cautividad (Roles, 1976).
- Johnsgard la mantiene como subespecie y recoge la opinión contraria de Beebe; da un único peso, el de un macho de 456 g (Johnsgard, 1986).
- Estudios chinos calculan la población en unos 2.700 individuos (1990) y una densidad de 3,74 aves por km² (1993) (BirdLife DataZone, 2022; Madge y McGowan, 2002).
- HBW incluye la forma entre las del gris y la califica de en peligro según los criterios de Mace y Lande; en enero se prohíbe talar el bosque primario de la isla (del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002).
- Gao Yu-ren publica un estudio sobre el estado de conservación de los galliformes endémicos de Hainan (BirdLife DataZone, 2022; Fuller y Garson, 2000).
- Fuller y Garson (plan de acción de los faisanes) piden caracterizar mejor la forma de Hainan, que algunos autores listan como especie (Fuller y Garson, 2000).
- Madge y McGowan la tratan como especie y la describen como una miniatura del gris (Madge y McGowan, 2002).
- Chang y colaboradores publican en Zoological Science el estudio molecular que respalda su rango de especie (BirdLife DataZone, 2022; Wikipedia).
- Collar (2009), Pilgrim, Inskipp y Collar (2009) y Davison y colaboradores (2012), obras que cita BirdLife, analizan los caracteres y la filogenia de la forma; en 2010 aparece en la Lista Roja de la UICN como en peligro (BirdLife DataZone, 2022).
- Liang y Zhang publican una síntesis sobre el ave, con 18 localidades y datos de radioseguimiento (BirdLife DataZone, 2022).
- BOW publica la ficha de la especie (versión 1.0) (BOW, 2020).
- BirdLife actualiza la evaluación: en peligro, criterio C2a(i), con 800–2.000 individuos maduros (BirdLife DataZone, 2022).
Descubrimiento y descripción
Beebe cuenta que no visitó Hainan y que el coleccionista japonés que descubrió la especie no dejó notas de campo. En 1904 se había encontrado en la isla una sola pluma de cola de Polyplectron; aunque parecía tener buenos caracteres específicos, no recibió nombre hasta que Rothschild obtuvo pieles completas y la nombró y describió (Beebe, 1922). Beebe da como describiente a Lord Rothschild, el lugar de la descripción (Bull. Brit. Orn. Club 16, 1906) y el monte Wuchi, en Hainan, como localidad tipo, con el tipo en el Museo de Tring; Avibase da la cita original como «Rothschild, LW 1906, Bull. Brit. Orn. Club 16, p. 111» (Avibase; Beebe, 1922). La descripción breve de Beebe dice que el macho es muy próximo a germaini, pero menor, con los ocelos azul verdoso que cambian a verde amarillento, y no violeta y verde purpúreo; que el moteado del dorso, la rabadilla, las cobertoras de la cola y el vientre es más fino, y que la barbilla no es blanca pura; y la hembra se distingue por su menor tamaño y sus marcas más desiguales y finas, sin ocelos en punta (Beebe, 1922).
De subespecie a especie
Hartert (1910) trató la forma como subespecie del gris, y Delacour y quienes lo siguieron mantuvieron ese criterio durante buena parte del siglo XX; Beebe, en cambio, le había dado rango de especie en 1922 (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986). Madge y McGowan (2002) vuelven a tratarla como especie, y desde 2008 los datos moleculares de Chang y colaboradores respaldan esa decisión; BirdLife la reconoce en su lista y la incluye en la Lista Roja con la evaluación de 2010 (BirdLife DataZone, 2022; Madge y McGowan, 2002; Wikipedia). El apartado de sistemática reúne todos los tratamientos (Avibase).
En cautividad
Ninguna de las fuentes consultadas da una fecha de primera cría de esta especie en cautividad. Roles (1976) dice que conoce dos formas cautivas del gris, la nominal y bakeri, y no la de Hainan; Delacour, en su descripción del género, no la menciona entre las que se han criado (Delacour, 1977; Roles, 1976). BirdLife dice hoy que un núcleo cautivo se mantiene en el Instituto del Sur de China para los Animales Amenazados, según Davison y colaboradores (2012) (BirdLife DataZone, 2022). Las dos fotografías de la ficha, de Yu Hai-yan y de Zhang Cizu, las cede la WPA según sus pies (Hernández García, 2014).
Láminas, fotografías y libros
La especie figura en la lámina 26 de la obra de Delacour (un macho, rotulado «Hainan Grey Peacock Pheasant»), en la lámina 44 de la guía de Madge y McGowan (ficha 153, un macho), y en el mapa de distribución de Beebe, que la numera como la forma 3 de Polyplectron (Beebe, 1922; Delacour, 1977; Madge y McGowan, 2002). En el libro del autor, el volumen II ilustra su ficha con dos fotografías cedidas por la WPA y con una foto de pieles de hembras de varios faisanes pavo (Kermit Blackwood) (Hernández García, 2014). Green-Armytage dice, en su capítulo sobre los faisanes pavo grises, que su área incluye la isla de Hainan, aunque la tala de bosque ha reducido ese hábitat (Green-Armytage, 2002).
Morfología y plumajes
Un faisán pavo pequeño y pardo oscuro, con la cara roja y ocelos azul verdoso con un ancho borde blanco; la hembra, más pequeña y apagada, con ocelos azul acero.
El faisán pavo de Hainan es un pariente pequeño y oscuro del gris, con la piel desnuda de la cara roja, una cresta y una gorguera cortas y ocelos que brillan en azul y verde con un borde blanco ancho en la punta; los dos sexos se parecen, pero la hembra es menor y más apagada. (BirdLife DataZone, 2022; BOW, 2020; Delacour, 1977; Madge y McGowan, 2002)
El macho
♂ El macho posee generalmente un espolón. Tiene la cabeza y la mayor parte del cuerpo de color marrón oscuro, la barbilla finamente barrada y la garganta blanca o blanquecina, mientras que el resto de las plumas son oscuras. Los machos del primer año son más pequeños y de colores más apagados, que se irán intensificando progresivamente a medida que alcanzan la madurez sexual. (Hernández García, 2014)
Birds of the World da al macho cabeza y cuello pardo oscuro con un fino barrado beige claro y plumas alargadas en la frente que suelen abrirse como una cresta tupida sobre el pico; barbilla y garganta blanquecinas, y el resto del plumaje pardo oscuro a negruzco con finas vermiculaciones y moteado beige. Las plumas de las partes superiores, incluidas las coberteras alares y las terciarias, llevan cada una un ocelo azul o verde con borde negro y un borde blanco cerca de la punta, y las coberteras supracaudales alargadas lucen ocelos similares. (BOW, 2020)
Madge y McGowan dan al macho plumas alargadas, como pelos, en la frente, que se pueden abrir sobre el pico; las plumas de la nuca, algo alargadas, se abren en la exhibición formando una gorguera corta; las supracaudales son largas y algunas muy alargadas, cubren hasta la mitad de la cola y llevan pares de ocelos subterminales; la cola es larga y graduada, con plumas anchas de punta roma y pares de ocelos metálicos subterminales, nítidamente rodeados de blanquecino. Cabeza y cuello, pardo oscuro con un fino barrado ante; barbilla y garganta, blanquecinas; el resto del cuerpo, pardo negruzco, con barras y moteado ante irregulares y apretados; en el manto, los escapularios, las coberteras y las terciarias, un ocelo terminal azul verdoso, bordeado de negro y de un anillo blanquecino completo que se ensancha en la punta; las primarias, de un negro apagado sin marcas (Madge y McGowan, 2002). Delacour dice que se parece a ghigii, pero es mucho más pequeño, con todas las marcas muy brillantes, el fondo más oscuro y pardo, «como el de Germain», la gorguera y la cresta cortas, los ocelos del manto y del ala azules y verdes con el borde blanco muy ancho en la punta, y los de la cola con un borde pálido continuo (Delacour, 1977).
Beebe es el más minucioso. En el macho adulto, la parte superior de la cabeza y la nuca son negras, con barras gris pálido, aunque la disgregación de las barbas da un aspecto jaspeado más que barrado; en el manto superior las barras pasan a pardo rojizo pálido; los ocelos empiezan pequeños pero perfectos y alcanzan casi enseguida su tamaño pleno, y se extienden por el manto inferior, los escapularios y las coberteras alares. Mirados hacia la luz muestran un efecto prismático, violeta por delante, azul después y de un verde brillante en el tercio posterior; mirados de espaldas a la luz son de un verde amarillo brillante. El anillo terminal que rodea el ocelo es blanco claro o grisáceo, y el resto de la pluma, pardo oscuro con abundantes motas ante. En las secundarias el paso de los ocelos a la ausencia total ocurre en el espacio de dos plumas (un ocelo débil y asimétrico en la octava y una mancha semitranslúcida en la barba externa de la séptima). Los ocelos gemelos aparecen primero en las coberteras supracaudales medianas: los de las laterales son violetas y se vuelven más verdes hacia las centrales; los de las timoneras son de un verde dorado brillante cuando se miran de espaldas a la luz, y todos los de la cola son mucho más verdes que en Germain (Beebe, 1922). Barbilla, garganta, parte inferior de la cara y lados del cuello son blancos, y la zona desnuda de la cara queda bordeada por encima y por debajo por una ancha línea de plumas blancas con la base negra; la parte inferior es negro parduzco con bandas y manchas irregulares ante pálido (Beebe, 1922).

La hembra
♀ La hembra posee ocelos, aunque más pequeños que los del macho, y su cresta es mucho más clara y más pequeña. (Hernández García, 2014)
Madge y McGowan la describen más pequeña, con la cresta apenas esbozada y el plumaje más apagado que el del macho, con ocelos menores de un azul acero, y Delacour la compara con la de ghigii, pero mucho más pequeña y de un pardo más oscuro, con los ocelos azul acero y no violeta negruzco; BOW dice que es más pequeña y algo más apagada (BOW, 2020; Delacour, 1977; Madge y McGowan, 2002). Según Beebe, la frente, la corona y la nuca son pardas con una raya blanca en el astil y la punta negra; en el manto aparecen barras olivas y el blanco se concentra en una mancha subterminal central; en el manto inferior y las coberteras alares el blanco forma una ancha banda transversal en una zona negra, y en la punta de la pluma hay un borde irregular de listas blanco ante. Unas veces ninguna y otras casi todas las plumas del manto y del ala tienen una extensión distal redondeada de la zona negra, con un brillo azulado y violeta en el centro; el dorso y la rabadilla llevan vermiculaciones olivas y grises sobre negro, con algunas grandes motas blancas. Las cobertoras más largas de la cola carecen de ocelos gemelos o los tienen muy imperfectos, mientras que las timoneras los tienen bien desarrollados y con un barrado regular; barbilla y garganta, blancas, y la parte inferior, negro parduzco con barras regulares de ante oliváceo. No hay rastro de ocelos en punta, como en la hembra de Germain, y la parte superior es más ante y menos gris que la de Germain (Beebe, 1922).
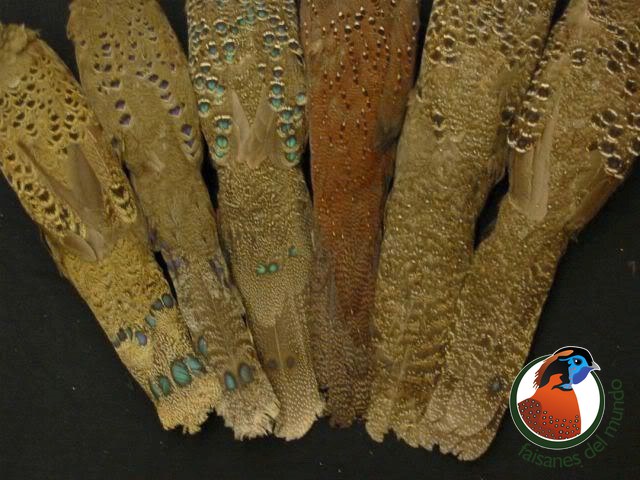
La foto de arriba (Kermit Blackwood), reproducida en el volumen II del libro del autor, muestra pieles de hembras de seis taxones de faisán pavo; si el orden de las pieles es el del pie (Borneo, Germain, Hainan, Rothschild, Lowe y Ghigi), la de Hainan es la tercera por la izquierda, con ocelos azules en el manto (Hernández García, 2014).
Plumajes por edades
| Edad | Descripción | Fuente |
|---|---|---|
| Polluelo | sin datos publicados en las fuentes consultadas | — |
| Juvenil | Madge y McGowan: probablemente muy parecido a la hembra, pero mal descrito; BOW: se sabe poco del juvenil; Beebe describe un macho joven: cabeza parda lisa, mancha pálida terminal muy tenue en las plumas de la nuca, manto con un área central ante en una zona oscura con ancho borde rojizo, secundarias sin pseudo-ocelo, timoneras largas, estrechas y puntiagudas, con medias barras rojizas moteadas (hasta veinte en las centrales y seis o siete en las externas), y diez pares de plumas de cola; garganta blanca con puntas pardas estrechas, vientre pardo oscuro con tenues bandas y subcaudales con una banda blanca subterminal | (Beebe, 1922; BOW, 2020; Madge y McGowan, 2002) |
| Macho de primer año | Ficha original y libro del autor: más pequeño y de colores más apagados, que se intensifican progresivamente hasta la madurez; Madge y McGowan: presumiblemente más pequeño y más apagado que el adulto; Beebe: la cabeza y el borde de la cara son pardos, no negros y blancos puros; el plumaje superior es más oliváceo; los ocelos, con mucho brillo verde en una gran zona negra sin borde, se hallan precedidos de una banda blanca ancha e interrumpida, y los de las timoneras, todos presentes, están poco definidos (falta el anillo gris); garganta blanca y parte inferior menos marcada; ala de 183 mm y cola de 233 mm | (Beebe, 1922; Hernández García, 2014; Madge y McGowan, 2002) |
| Macho adulto | véase arriba | (Beebe, 1922; BOW, 2020; Delacour, 1977; Madge y McGowan, 2002) |
| Hembra adulta | véase arriba | (Beebe, 1922; BOW, 2020; Delacour, 1977; Madge y McGowan, 2002) |
Beebe describe los tres plumajes del macho; las fuentes modernas se limitan a decir que el macho joven es más pequeño y apagado (Beebe, 1922; Hernández García, 2014; Madge y McGowan, 2002).
Partes blandas, espolones y muda
Según BOW, el iris es gris claro, la piel desnuda de la cara es roja, y el pico y las patas son grises; según Madge y McGowan, el pico y las patas son gris oscuro y el iris es gris pálido; Beebe da el iris gris lavanda, el pico negro pizarra y las patas plomizas, con las uñas negro pizarra (Beebe, 1922; BOW, 2020; Madge y McGowan, 2002). Los machos suelen llevar al menos un espolón según Madge y McGowan (la ficha original dice «generalmente un espolón»), mientras que Beebe cuenta cuatro espolones de 8 a 11 mm en el ejemplar que describe; las hembras no llevan espolones (Beebe, 1922; Hernández García, 2014; Madge y McGowan, 2002). Johnsgard anota, para el género, que los machos tienen de uno a tres espolones cortos (Johnsgard, 1986). Beebe da, para el macho adulto, una cola de 285 mm, un tarso de 65 mm y un dedo medio con uña de 48 mm (Beebe, 1922). Ninguna de las fuentes consultadas describe la muda de esta especie.
| Rasgo | Faisán pavo de Hainan | Faisán pavo gris | Faisán pavo de Germain |
|---|---|---|---|
| Tamaño (longitud total) | ♂ 53–65 cm · ♀ 40–45 cm (BOW, 2020; Madge y McGowan, 2002) | ♂ 56–76 cm · ♀ 48–55 cm (Madge y McGowan, 2002) | ♂ 56–60 cm · ♀ c. 48 cm (Madge y McGowan, 2002) |
| Cresta del macho | plumas alargadas como pelos en la frente, que se pueden abrir sobre el pico, y gorguera corta; BirdLife anota la ausencia de plumas alargadas en la corona, frente al gris (BirdLife DataZone, 2022; Delacour, 1977; Madge y McGowan, 2002) | cresta tupida que cae hacia delante sobre el pico, y gorguera (Madge y McGowan, 2002) | sin cresta ni gorguera (Madge y McGowan, 2002) |
| Piel desnuda de la cara | roja (BOW, BirdLife, Wikipedia); amarillo carnoso pálido (Madge y McGowan) (BirdLife DataZone, 2022; BOW, 2020; Madge y McGowan, 2002; Wikipedia) | de amarillo pálido a rosa apagado (Madge y McGowan, 2002) | roja (Madge y McGowan, 2002) |
| Iris | gris claro (BOW, 2020; Madge y McGowan, 2002) | blanquecino o gris claro (Madge y McGowan, 2002) | pardo (Johnsgard, 1986) |
| Ocelos del manto y las alas (macho) | azules y verdes, con un anillo blanco que se ensancha en la punta (Delacour, 1977; Madge y McGowan, 2002) | azul morado con reflejos verdes, con anillos negro y ante (Madge y McGowan, 2002) | azul violáceo con reflejos verdes, con un anillo pardo dorado pálido (del Hoyo et al., 1994; Johnsgard, 1986) |
| Ocelos de la cola | borde completo gris ante, como en ghigii (Delacour, 1977; Madge y McGowan, 2002) | pares subterminales de ocelos verdes metálicos (Madge y McGowan, 2002) | verdes, con bordes negro y gris pálido (Johnsgard, 1986) |
| Hembra | ocelos azul acero, pequeños; cresta apenas esbozada (Delacour, 1977; Madge y McGowan, 2002) | ocelos negruzcos, pequeños (Madge y McGowan, 2002) | ocelos triangulares azul metálico (del Hoyo et al., 1994; Johnsgard, 1986) |
| Color general (macho) | pardo oscuro, densamente vermiculado (BirdLife DataZone, 2022; BOW, 2020) | gris pardo; más gris en el oeste, más pardo en el este (Madge y McGowan, 2002) | gris negruzco oscuro (Johnsgard, 1986) |
| Área | isla de Hainan (BirdLife DataZone, 2022; Madge y McGowan, 2002) | gran parte del Sudeste asiático, salvo casi toda Indochina (Madge y McGowan, 2002) | sur de Vietnam y este de Camboya (BirdLife DataZone, 2022; Madge y McGowan, 2002) |
Solo se anotan rasgos que dan las fuentes; Madge y McGowan advierten de que los rangos de Germain, Hainan y el faisán pavo malayo no se solapan con el del gris (Madge y McGowan, 2002).
Medidas y peso
Los datos de la guía original, contrastados con la literatura: la tabla original coincide con las cifras del faisán pavo gris.
El macho del faisán pavo de Hainan mide entre 53 y 65 cm de longitud y la hembra, entre 40 y 45 cm. Las alas miden de 19,5 a 19,8 cm en el macho y de 16 a 16,5 cm en la hembra; la cola, de 28,5 a 30 cm y de 17 a 19 cm, respectivamente, y el tarso, 60 mm y 53 mm. El macho pesa 456 g, y la hembra, unos 400 g. (del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
Birds of the World da para el macho una longitud total de 53 a 65 cm, cola incluida, y para la hembra de 40 a 45 cm, y subraya que la especie es claramente menor que el faisán pavo gris. Estas cifras coinciden con las de la cita del encabezado y con las de la tabla de esta página. Esta fuente no ofrece datos de peso ni de alas, cola o tarso. (BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
Medidas según distintas fuentes
| Fuente | Longitud ♂ | Longitud ♀ | Ala ♂ | Ala ♀ | Cola ♂ | Cola ♀ | Tarso ♂ / ♀ | Peso ♂ / ♀ |
|---|---|---|---|---|---|---|---|---|
| Libro del autor (2014) y tabla de la ficha original (antes de la corrección) | 56–76 cm | 48–55 cm | 21–24 cm | 17–21 cm | 35–40 cm | 23–25 cm | 76 / 65–70 mm | 500 y 900 / 500 g |
| Tabla de esta guía (corregida) | 53–65 cm | 40–45 cm | 19,5–19,8 cm | 16–16,5 cm | 28,5–30 cm | 17–19 cm | 60 / 53 mm | 456 / c. 400 g |
| Cabecera de esta guía y libro del autor (2014) | 55 cm | 40 cm | — | — | — | — | — | — |
| Delacour (1977) | 530 mm | 400 mm | 195–198 mm | 160–165 mm | 285–300 mm | 170–190 mm | 60 / 53 mm | — |
| Beebe (1922) | — | — | — | — | 285 mm | — | 65 mm (♂) | — |
| Johnsgard (1986) | — | — | 195–198 mm | 160–165 mm | 285–300 mm | 170–190 mm | — | 456 g (un macho; Cheng et al., 1978) / — |
| HBW (1994) | c. 53 cm | c. 40 cm | — | — | 28,5–30 cm | 17–19 cm | — | — / c. 400 g |
| Madge y McGowan (2002) | 53–65 cm | 40–45 cm | 195–198 mm | 160–165 mm | 285–300 mm | 170–190 mm | 60 / 53 mm | 456 g (un macho) / — |
| BOW (recuadro) | 53–65 cm | 40–45 cm | — | — | — | — | — | — |
| Para comparar: el gris, P. b. bakeri (Madge y McGowan) | 56–76 cm (también la forma nominal) | 48–55 cm | 210–240 mm | 175–215 mm | 350–400 mm | 230–255 mm | 75–80 / 65–70 mm | 568–910 g / 460–500 g (dos aves) |
Johnsgard da las medidas de Delacour y el peso de Cheng y colaboradores (1978); Delacour da además el culmen: 18 mm en el macho y 16 mm en la hembra; Beebe da también, para el macho joven de primer año, un ala de 183 mm y una cola de 233 mm (Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
El faisán pavo de Hainan entre los espoloneros
| Especie | Longitud ♂ | Longitud ♀ |
|---|---|---|
| Faisán pavo de Sumatra (chalcurum) | c. 56 cm | c. 40 cm |
| Faisán pavo de Rothschild (inopinatum) | c. 65 cm | c. 46 cm |
| Faisán pavo de Germain (germaini) | c. 56 cm | c. 48 cm |
| Faisán pavo gris (bicalcaratum) | 56–76 cm | 48–55 cm |
| Faisán pavo de Hainan (katsumatae) | c. 53 cm (HBW); 53–65 cm (Madge y McGowan) | c. 40 cm (HBW); 40–45 cm (Madge y McGowan) |
| Faisán pavo malayo (malacense) | c. 50 cm (Madge y McGowan: 50–53 cm) | c. 40 cm (Madge y McGowan: 40–45 cm) |
| Faisán pavo de Borneo (schleiermacheri) | c. 50 cm | c. 35,5 cm |
| Faisán pavo de Palawan (emphanum) | c. 50 cm | c. 40 cm |
Medidas de HBW (1994) salvo indicación; Madge y McGowan dan 53–65 y 40–45 cm para Hainan y 50–53 y 40–45 cm para el malayo (del Hoyo et al., 1994; Madge y McGowan, 2002).
Huevos
La ficha original da para el huevo un color blanquecino y un tamaño de entre 44,5 y 51 mm de largo y de 37 a 39 mm de ancho; BOW dice que los huevos son blancos (BOW, 2020; Hernández García, 2014). Johnsgard da para el gris (bakeri) una media de 48 × 37,5 mm y un peso fresco estimado de 37,3 g, y para el de Germain, 45 × 35 mm y 30,4 g (Johnsgard, 1986). No hay fotografías de huevos de esta especie en la carpeta de la ficha ni se conoce su peso.
Distribución y hábitat
Una sola isla: los bosques perennifolios del centro y el suroeste de Hainan, entre 200 y 1.300 m, hoy reducidos a manchas aisladas.

El faisán pavo de Hainan vive en bosques de hoja perenne, a alturas que oscilan entre los 1000 y los 1.300 m, con una extensión de presencia de unos 10.100 km². También puede sobrevivir en hábitats secundarios. (BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014)
Es una especie endémica de la isla de Hainan (China), donde es el único faisán pavo. En este lugar está seriamente amenazada: su hábitat ha perdido un 75 % del bosque en las últimas décadas y, aunque la tala fue declarada ilegal en 1994, el bosque secundario aún puede ser cortado. Por ello es escasa o infrecuente y puede encontrarse en las reservas de Ba Wang Ling, donde la población se estima en 4 individuos por km², y, en los últimos años, en la reserva de Jiang Feng Ling. La población actual del faisán pavo de Hainan se estima en unos 2800 individuos (1990), lo que demuestra el estado crítico de esta especie, que se enfrenta a un futuro totalmente incierto. (BirdLife DataZone, 2022; Fuller y Garson, 2000; Hernández García, 2014; Madge y McGowan, 2002)
Área de distribución
BirdLife dice que la especie es endémica de la isla de Hainan, en China, país donde figura como presente, nativa y residente; calcula una extensión de presencia de 10.100 km², no conoce el área de ocupación ni el número de localidades y apunta un declive continuo del área de ocupación (BirdLife DataZone, 2022). BOW la da por sedentaria y limitada al centro y suroeste de la isla; Madge y McGowan, por endémica del suroeste de Hainan (BOW, 2020; Madge y McGowan, 2002). Delacour y Johnsgard dicen solo que vive en la isla de Hainan; Avibase, citando a Clements, «muy local en el bosque del sur de Hainan» (Avibase; Delacour, 1977; Johnsgard, 1986). Beebe, que la reconoce como especie, cita como localidad tipo el monte Wuchi, y su sinonimia recoge ejemplares de Chickeriang, en el sur de Hainan (Beebe, 1922). La guía original dice que es el único faisán pavo de la isla (Hernández García, 2014; Madge y McGowan, 2002).
| Fuente | Área descrita |
|---|---|
| Beebe (1922) | la isla de Hainan; localidad tipo, monte Wuchi; Chickeriang, sur de Hainan (Hartert, 1910) |
| Delacour (1977) | la isla de Hainan |
| HBW (1994) | Hainan (sur de China) |
| Madge y McGowan (2002) | endémica del suroeste de Hainan, donde es el único faisán pavo |
| BOW (recuadro) | sedentaria; centro y suroeste de la isla de Hainan |
| Avibase, según Clements | muy local en el bosque del sur de Hainan |
| BirdLife (2022) | endémica de la isla de Hainan; extensión de presencia de 10.100 km² |
(Avibase; Beebe, 1922; BirdLife DataZone, 2022; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002)
Altitud
| Fuente | Altitud | Observaciones |
|---|---|---|
| Ficha original y libro del autor (2014) | 1.000–1.300 m | en un área de 2,165 km² (Hernández García, 2014) |
| HBW (1994) | hasta 1.300 m (para el conjunto del gris) | la forma de Hainan puede sobrevivir al menos en hábitats secundarios, quizá solo en bosque secundario maduro (del Hoyo et al., 1994) |
| Madge y McGowan (2002) | 600–1.200 m | persiste, al parecer, en bosque secundario maduro (Madge y McGowan, 2002) |
| BOW (recuadro) | 200–1.300 m | los lugareños la citan desde 100 m, dato por confirmar (BOW, 2020) |
| BirdLife (2022) | 200–1.300 m | con citas desde cotas más bajas (Liang y Zhang, 2011); límite ocasional inferior, 0 m (BirdLife DataZone, 2022) |
(BirdLife DataZone, 2022; BOW, 2020; del Hoyo et al., 1994; Hernández García, 2014; Madge y McGowan, 2002)
Hábitat
BirdLife dice que habita en bosques densos perennifolios y semiperennifolios; su clasificación UICN anota como hábitats principales el bosque subtropical y tropical húmedo de montaña y el de tierras bajas, para una especie de dependencia alta del bosque (BirdLife DataZone, 2022). BOW añade que ocupa también el bosque secundario, aunque probablemente solo sea capaz de vivir en hábitats secundarios maduros, y que no se ha hallado en plantaciones; BirdLife dice, citando a Liang y Zhang (2011), que evita incluso las plantaciones bien arboladas (BirdLife DataZone, 2022; BOW, 2020). Madge y McGowan dicen que es de los bosques perennifolios y semiperennifolios, de 600 a 1.200 m, y que persiste, al parecer, en bosque secundario maduro; HBW, que la forma de Hainan puede sobrevivir al menos en hábitats secundarios, pero probablemente solo en bosque secundario maduro (del Hoyo et al., 1994; Madge y McGowan, 2002). Madge y McGowan, en la lámina de la especie, hablan de bosque de colinas de Hainan (Madge y McGowan, 2002).
Ámbito de hogar y movimientos
BOW dice que es sedentaria y que su ámbito de hogar es pequeño y relativamente fijo: unas 2,95 ha de media en los machos y 2,54 ha en las hembras; BirdLife, que la especie no es migratoria y que su pequeño ámbito de hogar se ha inferido de datos de radioseguimiento (BirdLife DataZone, 2022; BOW, 2020). La longitud de generación que usa BirdLife es de 6,1 años (BirdLife DataZone, 2022).
Localidades y reservas
| Fuente | Localidades y reservas citadas |
|---|---|
| HBW (1994) | tres reservas naturales de Hainan, de eficacia incierta para proteger a la especie; al menos una, Ba Wang Ling (20 km²), probablemente no es eficaz |
| Madge y McGowan (2002) | al menos seis sitios, entre ellos las reservas naturales nacionales de Ba Wang Ling (3,75 individuos por km²) y Jian Feng Ling; más de la mitad de los 740 km² de bosque que quedaban a finales de los ochenta y principios de los noventa estaba en reservas |
| Ficha original y libro del autor (2014) | Ba Wang Ling (4 individuos por km²) y, en los últimos años, Jiang Feng Ling |
| BOW (recuadro) | nueve reservas, entre ellas Bawangling, Jianfengling y Diaoluoshan, aunque en muchas se sigue cazando; 18 localidades; en 1992 se estimó una densidad de 3 a 75 aves por km² en Bawangling |
| BirdLife (2022) | Jianfengling, Bawangling, Diaoluoshan y Wuzhishan (reservas naturales nacionales) y ocho reservas provinciales; 18 sitios con registros (Liang y Zhang, 2011); no se identifican IBA/KBA, porque los sitios son sensibles |
(BirdLife DataZone, 2022; BOW, 2020; del Hoyo et al., 1994; Hernández García, 2014; Madge y McGowan, 2002)
El bosque de Hainan
Madge y McGowan dicen que Hainan perdió cerca del 75 % de sus bosques nativos en las últimas décadas; Johnsgard cita una pérdida del 72 % de los bosques tropicales de la isla desde 1949 (Smil, 1983); BirdLife, citando a Chang y colaboradores (2008), que hacia los años ochenta solo un 10 % de Hainan seguía cubierto de bosque (BirdLife DataZone, 2022; Johnsgard, 1986; Madge y McGowan, 2002). La tala del bosque primario se prohibió en enero de 1994, pero el bosque secundario aún puede cortarse; Fuller y Garson atribuyen a esa prohibición que la pérdida de hábitat sea hoy una amenaza menor que antes, y Madge y McGowan recogen que de los 740 km² de bosque no perturbado que quedaban a finales de los ochenta y principios de los noventa, más de la mitad estaba en reservas (Fuller y Garson, 2000; Madge y McGowan, 2002). Para BirdLife, la pérdida de bosque en su área ha sido lenta en los últimos tiempos: Savini y colaboradores (2021) estimaron una contracción del hábitat adecuado del 3 % entre 2000 y 2018, en las manchas de más de 40 km², y Global Forest Watch (2021), una pérdida de bosque del 4 % entre 2002 y 2020; la superficie de hábitat disponible en 2018 era de 1.663 km² (BirdLife DataZone, 2022).
Otros países y poblaciones introducidas
La especie solo vive en China, donde es nativa y residente (BirdLife DataZone, 2022). No hay datos de poblaciones introducidas; se tratan en el capítulo de conservación.
Comportamiento y voz
Un ave esquiva de la que casi nada se ha observado en libertad: su voz, dos notas del macho y una serie de la hembra, y sus costumbres, supuestas por las del faisán pavo gris.
Costumbres
Madge y McGowan dicen que la especie se ve pocas veces y se conoce mal, y que presumiblemente se comporta como los demás faisanes pavo; HBW no añade datos de comportamiento propios de esta forma (del Hoyo et al., 1994; Madge y McGowan, 2002). La ficha original, en un recuadro que atribuye a Wikipedia, dice que en su hábitat suele detectarse por el ruido que hace al escarbar y voltear la hojarasca en busca de alimento (véase el capítulo de alimentación) (Wikipedia (Grey peacock-pheasant)). Beebe, que no visitó la isla, no recoge nada de su comportamiento en libertad (Beebe, 1922).
Para el conjunto de los faisanes pavo, Delacour dice que son aves tímidas y reservadas, que se esconden en la vegetación densa y se oyen mucho más de lo que se ven, que van solos, en pareja o en familias, que no son sociables y que se capturan con facilidad con lazos en los lugares donde son comunes (Delacour, 1977). Para el gris, Johnsgard resume que no son aves sociales y que viven en parejas o, como mucho, en pequeños grupos, y que no se sabe nada de dónde duermen (Johnsgard, 1986). Son datos del gris y del género; no se han comprobado en esta especie.
La voz
| Fuente | Llamada del macho | Llamada de la hembra |
|---|---|---|
| Madge y McGowan (2002) | relativamente fuerte y melodiosa, guang-gui, guang-gui, guang-gui, con la primera nota más larga | una serie más rápida, ga, ga, ga |
| BOW (recuadro) | serie breve y fuerte de dos notas (guang-gui), con la primera más marcada; actividad vocal mayor en primavera | series rápidas de notas ga-ga-ga como señal de alarma |
| Beebe, Delacour, Johnsgard, HBW | sin datos de esta forma | sin datos |
(Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002)
Las dos descripciones coinciden en la llamada del macho (dos notas, la primera más prolongada) y en la serie rápida de notas de la hembra; BOW añade que la hembra la emite como señal de alarma y que la actividad vocal es mayor en primavera (BOW, 2020; Madge y McGowan, 2002). Para comparar, Madge y McGowan dan para el gris un silbido fuerte (trew-tree, taa-pwi o phee-hoi, con la segunda nota más larga y ascendente) repetido hasta cinco veces, y otra llamada gutural y ronca (qua qua qua) que puede servir de alarma (Madge y McGowan, 2002).
Sonidos y llamadas de la especie
Grabaciones de voz en xeno-canto
Organización social
Ninguna de las fuentes consultadas describe el sistema de apareamiento ni la territorialidad de esta especie. Para el gris, Johnsgard dice que Baker dudaba de que fuera poligínico en libertad y pensaba que cada pareja tiene un territorio bien definido, y que Ridley creía que, en la mayoría de las especies de Polyplectron, el vínculo de la pareja termina hacia el momento de la incubación; también apunta que los machos hacen reclamos de autoanuncio a lo largo de gran parte del año (Johnsgard, 1986). Delacour dice que los machos de faisán pavo son monógamos y que cada pareja debe mantenerse aislada (Delacour, 1977).
Alimentación
Sin datos de la naturaleza: se presume que come semillas, bayas y pequeños invertebrados, como el faisán pavo gris; en cautividad, pienso, fruta, hojas, insectos y frutos secos.
Estos faisanes pueden alimentarse con un buen pienso para faisanes, acompañado de frutas (manzana, pera, etc.), hojas, insectos y frutos secos. (Hernández García, 2014)
En libertad
La dieta es poco conocida; BOW dice que se presume que consiste sobre todo en semillas y bayas, complementadas con algunos pequeños invertebrados (BOW, 2020). Madge y McGowan, HBW y Beebe no dan datos de alimentación de esta forma en libertad (Beebe, 1922; del Hoyo et al., 1994; Madge y McGowan, 2002). La ficha original, en un recuadro que atribuye a Wikipedia (Grey peacock-pheasant), dice que en su hábitat natural suele detectarse por el discreto ruido que produce al escarbar y voltear la hojarasca, que no hay estudios detallados sobre su dieta exacta en libertad y que, por su estrecho parentesco con el faisán pavo gris, es probable que se alimente sobre todo de semillas, frutos, termitas y otros invertebrados del suelo del bosque; es una inferencia a partir del gris, no una observación de esta especie (Wikipedia (Grey peacock-pheasant)).
Para el gris, HBW da una dieta de bayas, frutos (ciruelas y azufaifo, Zizyphus), semillas, higos silvestres, larvas, hormigas y otros insectos, caracoles y otros animales pequeños, con predilección por las termitas, y semillas de bambú cuando las hay, además de arroz y grano de los cultivos de los pueblos; el forrajeo es lento y reservado, y las aves escarban sin hacer ruido (del Hoyo et al., 1994). Johnsgard recoge que Beebe encontró arroz e insectos pequeños en los buches de aves cazadas cerca de aldeas kachin, y que Baker las consideraba omnívoras, con preferencia por higos, ciruelas silvestres, azufaifas y semillas de bambú, y a veces brotes de cultivos verdes (Johnsgard, 1986). Son datos del gris, no de la especie, y se citan como orientación. HBW describe el escarbado del gris como discreto, mientras que el recuadro de la ficha original atribuye al de Hainan un «característico ruido»; ninguna fuente consultada resuelve la diferencia.
| Fuente | Alimentos citados para la especie en libertad |
|---|---|
| Beebe (1922) | sin datos |
| Delacour (1977) | sin datos específicos; para los faisanes pavo en general, omnívoros, con insectos y frutos como alimento habitual |
| Johnsgard (1986) | sin datos de esta forma; datos del gris |
| HBW (1994) | sin datos de esta forma; datos del gris |
| Madge y McGowan (2002) | sin datos |
| BOW (recuadro) | poco conocida; se presume que come sobre todo semillas y bayas, y algunos pequeños invertebrados |
| Wikipedia (recuadro de la ficha original) | sin estudios; por inferencia del gris, semillas, frutos, termitas e invertebrados del suelo del bosque |
(Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (Grey peacock-pheasant))
En cautividad
La ficha original y el libro del autor recomiendan un buen pienso para faisanes, con fruta (manzana, pera), hojas, insectos y frutos secos (Hernández García, 2014). Para el género, Delacour dice que los faisanes pavo comen grano, fruta, bayas y mezcla rica o pienso, que no les gusta la verdura (hierba o lechuga) y que les conviene algo de carne cruda troceada; en otra obra dice que comen sobre todo larvas, bayas y fruta caída, y que en cautividad hay que darles carne picada, insectos y fruta (Delacour, 1977; Delacour, 1978). Para el gris, Roles recomienda un pienso básico rico en proteínas, a menudo de criadores de pavos, con fruta e insectos, y dice que algunas aves comen muy bien la carne picada (Roles, 1976). Los pollos son casi exclusivamente insectívoros: Delacour recomienda insectos vivos, sobre todo gusanos de la harina, durante los primeros días o semanas (Delacour, 1977). Recomendación editorial: ofrecer siempre alimento vivo (gusanos de la harina) además del pienso, tanto a los adultos como, sobre todo, a los pollos.
Cortejo y exhibición
Una parada nupcial que, según el libro del autor, se parece a la del faisán pavo gris: el macho abre la cola, extiende un ala hacia arriba y otra hacia abajo, ofrece insectos y emite un suave chillido.
La parada nupcial comienza a mediados de marzo. El macho abre la cola, extiende un ala hacia arriba y otra hacia abajo y emite un suave chillido. Suele ofrecer insectos a la hembra y, si no puede brindarle este tipo de alimento, no desaprovecha un palito o una piedra, que pueden servirle de reclamo. (Hernández García, 2014)

El volumen II del libro del autor dice, de esta misma fecha, que a mediados de marzo empieza la parada nupcial, que es muy similar a la del faisán chinquis (el faisán pavo gris) (Hernández García, 2014). Ninguna de las demás fuentes consultadas describe la exhibición de esta especie: Madge y McGowan dicen que sus hábitos están poco documentados y que presumiblemente son como los de los demás faisanes pavo (Madge y McGowan, 2002).
La exhibición del género y del gris
Delacour describe para los faisanes pavo que, en todas las especies, el macho hace una exhibición lateral normal: camina con delicadeza alrededor de la hembra ofreciéndole bocados y cloqueando suavemente; en las especies de cola ancha añade una exhibición frontal notable, en la que baja el cuerpo sobre los tarsos doblados mientras el manto, las alas y la cola se extienden en un círculo plano perfecto, salpicado de manchas iridiscentes (Delacour, 1977). Beebe escribe que la parada del género es frontal (Beebe, 1922). Johnsgard describe la del faisán pavo gris, con una exhibición lateral en la que el ala más cercana apenas se baja y la lejana se alza y se extiende hacia delante, con la cola abierta y torcida hacia la hembra formando un abanico casi vertical, y otra frontal, precedida de un silbido musical de reclamo con el que se atrae a la hembra (el reclamo del bocado), en la que el macho levanta y abre cola y alas e inclina el cuerpo hasta la vertical, bajando la cabeza y el pecho hacia el suelo (Johnsgard, 1986). Roles describe para el gris un paseo preliminar con la cabeza alta y la cresta y la gorguera levantadas, gorjeos con los que llama a la hembra, el bocado soltado ante ella cuando se acerca y la exhibición plena inmediata (Roles, 1976).
El gesto de la ficha original —un ala hacia arriba y otra hacia abajo, con la cola abierta— se corresponde con la exhibición lateral que Johnsgard describe para el gris, en la que un ala se alza y la otra apenas se baja; el ofrecimiento de insectos, o de un palito o una piedra, se corresponde con el «bocado» que, según Delacour, Johnsgard y Roles, ofrece el macho de los faisanes pavo a la hembra (Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Roles, 1976). Son paralelos con otras especies, no observaciones de campo de la de Hainan.
La fotografía del cortejo
La fotografía de arriba (Yu Hai-yan, cortesía de la WPA) muestra a un macho con la cola y las alas abiertas en abanico junto a una hembra; la pareja está sobre un suelo de piedras y, al parecer, la hembra lleva una anilla en la pata, lo que apunta a aves cautivas. El pie de la fotografía es el de la ficha original: «Foto del cortejo en Faisán Pavo de Hainan (Polyplectron katsumatae) © Yu Hai-yan - cortesía WPA» (Hernández García, 2014).
Pareja y llamada
BOW y Madge y McGowan describen la llamada del macho (dos notas, guang-gui), más frecuente en primavera; no dicen si se emplea en el cortejo (BOW, 2020; Madge y McGowan, 2002). En el gris, según Johnsgard, las parejas parecen monógamas y los machos llaman durante casi todo el año (Johnsgard, 1986).
Reproducción en la naturaleza
Pocos nidos descritos —en el suelo, de hojas muertas, con uno o dos huevos blancos—, una temporada de febrero a junio y una incubación de unos 22 días según el libro del autor.
En libertad hay muy pocos datos de reproducción: Madge y McGowan dicen que no hay datos documentados, mientras que BOW recoge nidos hallados entre finales de febrero y la segunda semana de junio, con pollos ya en febrero; el libro del autor da la madurez, la puesta y la incubación. (BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
Madurez
El faisán pavo de Hainan alcanza la madurez sexual a los dos años. (Hernández García, 2014)
| Fuente | Plumaje adulto o madurez | Observación |
|---|---|---|
| Ficha original y libro del autor (2014) | madurez sexual a los dos años | para esta especie (Hernández García, 2014) |
| Delacour (1977) | plumaje adulto en el segundo año; los machos jóvenes se parecen al principio a las hembras, pero son mayores y de patas mucho más largas, con solo trazas de espolones | para el género (Delacour, 1977) |
| Johnsgard (1986) | madurez sexual en el primer año (Flieg, 1973) | para el gris (Johnsgard, 1986) |
| Madge y McGowan (2002) | macho de primer año presumiblemente más pequeño y apagado | para esta especie (Madge y McGowan, 2002) |
| Criadero Chintaguay | madurez sexual de 1–2 años | para el gris y el faisán pavo de Germain (del Campo, 2006) |
| BOW (recuadro) | no recoge la madurez sexual | (BOW, 2020) |
(BOW, 2020; del Campo, 2006; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
Calendario
Solo hay datos de libertad en BOW; el resto de las filas son del gris o del género (BOW, 2020; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986).
El nido
BOW dice que el nido está en el suelo, hecho con hojas muertas y a veces hierba, con hasta 23 cm de diámetro; que la puesta es de uno o dos huevos blancos y que las tasas de depredación parecen altas; y que no hay más datos (BOW, 2020). Madge y McGowan dicen que la reproducción parece no estar documentada (Madge y McGowan, 2002). Para el gris, Johnsgard cuenta que el nido suele ser una cavidad, a menudo al pie de una mata de bambú o entre arbustos espesos, siempre en jungla muy densa y, por lo general, a no más de unos centenares de metros de un arroyo o una charca (Johnsgard, 1986). No se conoce el nido de esta especie fuera de lo que da BOW.
Puesta e incubación
Tras la cópula, la hembra pone dos huevos por puesta, de entre 44,5 y 51 mm de largo y de 37 a 39 mm de ancho, y puede realizar seis puestas. Los huevos son blanquecinos y se incuban durante 22 días. (Hernández García, 2014)
| Fuente | Huevos por puesta | Incubación (días) | Observaciones |
|---|---|---|---|
| Ficha original y libro del autor (2014) | 2 | 22 | hasta seis puestas; huevos blanquecinos de aprox. 48 × 51 mm (Hernández García, 2014) |
| BOW (recuadro) | 1–2 | — | huevos blancos; tasas de depredación altas (BOW, 2020) |
| Madge y McGowan (2002) | — | — | reproducción al parecer no documentada (Madge y McGowan, 2002) |
| Delacour (1977), para el género | 2 (rara vez 3) | 18–21 | en cautividad; cuatro o cinco puestas lo normal; los huevos no se conservan mucho tiempo (Delacour, 1977) |
| Johnsgard (1986), para el gris | 1–2 | c. 21 | en cautividad; de tres a seis puestas por temporada (Flieg, 1973), con 21 días de media entre ellas (Johnsgard, 1986) |
| HBW (1994), para el gris | probablemente 2 | 21 | en cautividad (del Hoyo et al., 1994) |
| Roles (1976), para el gris | 2 | 21 | de tres o cuatro puestas por temporada; hasta 15 huevos en una temporada en alguna hembra (Roles, 1976) |
| Libro del autor (2014), para los Polyplectron | 2 | 20–22 | tabla de incubación del género; la de Hainan no figura (Hernández García, 2014) |
| Criadero Chintaguay, para el gris | 1–2 | 22 | puesta a principios de marzo (N) o de septiembre (S) (del Campo, 2006) |
Solo la primera fila y BOW son de esta especie; el resto son del gris o del género (BOW, 2020; del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976).
Los polluelos
No hay descripción del pollo de esta especie en las fuentes consultadas. Para el gris, HBW da un plumón pardo oscuro por encima y leonado por debajo; Delacour dice, para los faisanes pavo, que los pollos recuerdan a los del argus: corona y partes superiores de un pardo castaño intenso y dos anchas bandas ante a los lados del dorso, frente y cara de un pardo más claro, y partes inferiores ante, más rico en el pecho (del Hoyo et al., 1994; Delacour, 1977). Johnsgard dice que, en el gris, la hembra incuba sola y los pollos siguen a la madre bajo la cobertura de la cola, que lleva baja y algo abierta; cuando la hembra encuentra un bocado, llama y los pollos salen corriendo a cogerlo y vuelven enseguida al abrigo de su cola, y en los primeros días se alimentan directamente del pico de la madre; luego cazan insectos con mucha eficacia y pronto saltan para perseguirlos (Johnsgard, 1986).
Cría en cautividad
Casi nada publicado: un núcleo en China y las dos fotografías de la WPA; el resto de la cría se apoya en lo que se sabe del faisán pavo gris y del género.
Las fuentes consultadas casi no dicen nada de la cría en cautividad de esta especie: BirdLife cita un núcleo cautivo en China y propone programas de cría; el libro del autor da solo la alimentación, la reproducción y las dos fotografías de la WPA; lo demás es lo que se sabe del faisán pavo gris y del género. (BirdLife DataZone, 2022; Delacour, 1977; Hernández García, 2014; Roles, 1976)
Qué se sabe de las aves cautivas
BirdLife dice que la especie está sujeta a conservación ex situ y que el Instituto del Sur de China para los Animales Amenazados mantiene un núcleo cautivo (Davison et al., 2012); entre las acciones propuestas figura desarrollar programas de cría en cautividad para reforzar y reintroducir la población en el futuro (Collar y Butchart, 2013), lo que indica que aún no existen (BirdLife DataZone, 2022). Roles (1976) dice que conoce en cautividad solo dos formas del gris (la nominal y bakeri); Delacour no menciona a la de Hainan entre los faisanes pavo criados; Howman no la menciona en el texto consultado; y el reparto de la EAZA del año 2000 y la tabla de anillas y de incubación del libro del autor no recogen la especie (Delacour, 1977; Hernández García, 2014; Howman, 1993; Roles, 1976). Corder, que reproduce la tabla de anillas de Aviornis, tampoco la incluye (Corder). El censo de la WPA no devuelve datos para Polyplectron katsumatae (Censo WPA). Las dos fotografías de la ficha (macho en el campo y pareja en cortejo) las cede la WPA (Hernández García, 2014).
Instalaciones y carácter
Para el género, Delacour dice que los faisanes pavo viven en el bosque donde es espeso y húmedo, que son tímidos y reservados, y que son excelentes aves de pajarera, graciosas, dóciles e inofensivas, aunque en cautividad el gris y el de Germain son resistentes en los países templados, y las demás especies necesitan una caseta de la que se pueda mantener alejada la helada; que cada pareja debe aislarse y que en alguna ocasión se han mantenido tríos con éxito (Delacour, 1977). Corder recomienda para una pareja de faisanes pavo una pajarera de unos 10 m² como mínimo absoluto, con abundante cobertura, y advierte de que algunos faisanes, en particular los faisanes pavo tropicales, sufren estrés con mucha facilidad y que capturarlos para examinarlos puede causar su muerte en manos del veterinario (Corder). Ninguna fuente consultada da datos de resistencia al frío ni de carácter de la forma de Hainan. Recomendación editorial: hasta que haya datos propios, tratarla como a los demás faisanes pavo tropicales —refugio sin helada, cobertura vegetal densa y el menor número posible de capturas—.
Cortejo, puesta e incubación
Los datos de la ficha original (puesta de dos huevos, de entre 44,5 y 51 mm de largo y de 37 a 39 mm de ancho, hasta seis puestas y 22 días de incubación) están en el capítulo de reproducción (Hernández García, 2014). Delacour dice, para los faisanes pavo, que los huevos no se conservan mucho tiempo y que hay que ponerlos a incubar a los pocos días de la puesta, y que, si se retiran, las hembras ponen de nuevo en un par de semanas (Delacour, 1977).
La pauta general de incubación artificial de del Campo, medida siempre «a la altura media del huevo», es la siguiente (del Campo, 2006):
| Fase | Valor recomendado |
|---|---|
| Conservación de los huevos antes de incubar | 13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo |
| Cuándo empezar a incubar | Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo |
| Precalentamiento | 6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación |
| Temperatura | 37,5 °C durante toda la incubación, hasta que el pollo se seca |
| Humedad relativa | 55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo |
| Volteo | 3 o 4 veces al día, hasta tres días antes de la eclosión |
| Últimos tres días | Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora |
| Duración (faisán pavo de Hainan) | 22 días según la ficha original; 18–21 en Delacour para el género; 21 en HBW, Johnsgard y Roles para el gris; 22 en la tabla de postura del criadero Chintaguay para el gris |
| Después de nacer | 24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días) |
Pauta general de del Campo para faisanes; solo la duración se refiere a la especie o a especies próximas (del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Roles, 1976).
Crianza de los pollos
Delacour dice, para los faisanes pavo, que los pollos son delicados los primeros días, se refugian bajo la cola de la madre y comen solo de su pico, sin querer picar el alimento del suelo; que, criados bajo una gallina enana, esta debe ser mansa y ligera; que, si no, hay que darles de comer a mano insectos con la punta de una aguja o pinzas; y que asociar uno o dos polluelos de faisán dorado con ellos les enseña a comer y permite criarlos en criadoras eléctricas, aunque no hay que mezclarlos con demasiados otros, con seis como máximo; comen poco y viven del insecto vivo, sobre todo de gusanos de la harina, los primeros días o semanas (Delacour, 1977). Roles dice, para el gris, que los pollos no son especialmente difíciles, y que se vuelven autosuficientes tras los primeros días con un pienso proteico para pollos y algunos insectos (Roles, 1976).
| Semana | Días | Temperatura | Dónde |
|---|---|---|---|
| 1 | 1–2 | 36 °C | Nacedora |
| 1 | 2–7 | 32 °C | Criadora |
| 2 | 8–14 | 30 °C | Criadora |
| 3 | 15–21 | 28 °C | Criadora |
| 4 | 22–28 | 26 °C | Criadora |
| 5 | 29–35 | 24 °C | Jaula de recría (calor solo de noche durante la primera semana) |
| 6–8 | 36–56 | sin aporte | Jaula de recría |
Pauta general de calor suplementario del criadero Chintaguay para faisanes; lo decisivo es observar a las aves (del Campo, 2006).
La anilla
Corder, que reproduce la tabla de anillas de Aviornis, da un diámetro de 10 mm para todos los faisanes pavo que lista (Sumatra, Rothschild, Germain, gris, malayo, Palawan y Borneo); el faisán pavo de Hainan no figura en ella, y el libro del autor da también 10 mm para todos los Polyplectron de su tabla (Corder; Hernández García, 2014). Recomendación editorial: 10 mm, como el resto del género, hasta que haya una tabla propia.
Híbridos en la pajarera
Delacour dice que los híbridos entre el faisán pavo gris y el de Germain se han producido con frecuencia y que, por lo demás, los faisanes pavo no parecen cruzarse con facilidad con otros galliformes (Delacour, 1977). La tabla de hibridación del criadero Chintaguay, adaptada de Johnsgard (1999), recoge los cruces del espolonero gris, del de Germain, del malayo y del de Borneo; no tiene fila para el de Hainan (del Campo, 2006; Johnsgard, 1999). Ninguna de las fuentes consultadas menciona híbridos de la especie. Recomendación editorial: no cruzar la especie con el faisán pavo gris ni con ninguna otra, porque los híbridos perderían su valor para un programa de conservación de la forma de Hainan.
Cría para la conservación
BirdLife dice que no hay un plan de recuperación ni un esquema de seguimiento sistemático, que la especie está sujeta a conservación ex situ y que el núcleo cautivo está en el Instituto del Sur de China para los Animales Amenazados (BirdLife DataZone, 2022). El libro del autor no incluye a la especie en el reparto de programas regionales de la EAZA del año 2000 (en el que el faisán pavo gris figura como «no recomendado» y el de Germain como «seguimiento de población»), y no se la cita en la lista de programas ex situ (Hernández García, 2014). Fuller y Garson piden caracterizar mejor la forma de Hainan, pero no la incluyen entre los candidatos a un manejo ex situ de alto nivel (el faisán pavo de Elliot, el de Sumatra, el de Germain y el de Palawan), y evalúan al faisán pavo gris, que entonces incluía esta forma, como de preocupación menor por su gran área y su tolerancia a cierta presión humana (Fuller y Garson, 2000).
Estado de conservación
En peligro desde 2010: una población de unos pocos cientos a unos pocos miles de aves, que desciende por la caza y la pérdida de bosque.
Se enfrenta a un riesgo muy alto de extinción en estado silvestre; población pequeña en descenso (tendencia inferida). Región: China.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La justificación de la categoría
La UICN la clasifica hoy como en peligro (EN) por el criterio C2a(i) (BirdLife DataZone, 2022). BirdLife justifica la categoría así: la especie tiene una población pequeña que sigue disminuyendo por la caza y la pérdida de hábitat; gran parte de su área está ahora fragmentada y la especie vive en numerosas subpoblaciones pequeñas que se supone aisladas entre sí (BirdLife DataZone, 2022). BirdLife estima 800–2.000 individuos maduros (estima de 2018, de calidad pobre, derivación estimada), repartidos en 5–100 subpoblaciones, ninguna de las cuales tendría más de 51–250 individuos maduros, y deduce una tendencia decreciente (BirdLife DataZone, 2022). Wikipedia dice que, por su densidad muy baja en bosque tropical y su población en descenso, debería considerarse la especie más rara del orden Galliformes en China (Wikipedia).
Cómo ha ido cambiando la valoración
| Año | Fuente | Valoración |
|---|---|---|
| 1988, 1994, 2000, 2004, 2008 | BirdLife (historial) | no reconocida (como especie) (BirdLife DataZone, 2022) |
| 1994 | HBW | en peligro según los criterios de Mace y Lande (la forma katsumatae, dentro del gris; el resto del gris, «seguro»); digna de atención especial de conservación (del Hoyo et al., 1994) |
| 2000 | Fuller y Garson | el gris, que incluía la forma de Hainan, se evalúa como de preocupación menor (Fuller y Garson, 2000) |
| 2002 | Madge y McGowan | en peligro según los criterios de Mace y Lande, y mal conocida (Madge y McGowan, 2002) |
| 2010 | BirdLife (historial) | en peligro, criterios A2c,d; A3c,d; A4c,d; C2a(i) (BirdLife DataZone, 2022) |
| 2012, 2013 y 2016 | BirdLife (historial) | en peligro, criterios A2cd+3cd+4cd; C2a(i) (BirdLife DataZone, 2022) |
| 2022 | BirdLife, Wikipedia, BOW | en peligro, criterio C2a(i) (BirdLife DataZone, 2022; BOW, 2020; Wikipedia) |
BirdLife advierte de que un cambio de categoría no indica necesariamente un cambio real de la situación de la especie, sino que puede reflejar un mejor conocimiento (BirdLife DataZone, 2022).
| Año | Categoría de la Lista Roja | Criterios |
|---|---|---|
| 2022 | En peligro (EN) | C2a(i) |
| 2016 | En peligro (EN) | A2cd+3cd+4cd; C2a(i) |
| 2013 | En peligro (EN) | A2cd+3cd+4cd; C2a(i) |
| 2012 | En peligro (EN) | A2cd+3cd+4cd; C2a(i) |
| 2010 | En peligro (EN) | A2c,d; A3c,d; A4c,d; C2a(i) |
| 2008 y años anteriores | no reconocida | — |
El artículo de Collar (2009) que citan BirdLife y Wikipedia se titula, en español, «Faisán pavo de Hainan: ¿otra especie en peligro crítico para la Lista Roja de la UICN?»; BirdLife, no obstante, mantiene la categoría de en peligro en las evaluaciones de 2010 a 2022 (BirdLife DataZone, 2022; Wikipedia).
- 10.100km²de extensión de presencia, según BirdLife (2022)
- 800–2.000individuos madurosestima de BirdLife (2018); BOW: 250–1.000 individuos
- EN2022criterio C2a(i); tendencia decreciente (inferida)
Población silvestre: todas las estimas
| Año | Fuente | Estima | Base |
|---|---|---|---|
| 1990 | BirdLife, a partir de Gao y Yu (1990) | unos 2.700 individuos | estudio en chino; no se han consultado los originales (BirdLife DataZone, 2022) |
| 1990 | Ficha original y libro del autor | unos 2.800 individuos («actual» según la ficha, pero datada en 1990) | sin fuente citada (Hernández García, 2014) |
| principios de los noventa | Madge y McGowan (2002) | 2.775 individuos | sin detalle (Madge y McGowan, 2002) |
| 1990 | BOW (recuadro) | unos 2.700 individuos | punto de partida del descenso que describe (BOW, 2020) |
| 1993 (Gao, 1998) | BirdLife | densidad de 3,74 individuos por km² | observaciones visuales (BirdLife DataZone, 2022) |
| 1992 | BOW (recuadro) | de 3 a 75 aves por km² en la reserva de Bawangling | densidad (BOW, 2020) |
| principios de los noventa | Madge y McGowan | 3,75 individuos por km² en Ba Wang Ling | densidad; la ficha original da «4 individuos por km2» (Hernández García, 2014; Madge y McGowan, 2002) |
| 2000 | Ficha original y libro del autor | «una subestimación de menos de 500 ejemplares» | sin fuente citada (Hernández García, 2014) |
| texto de 2015 | BOW (recuadro) | 250–1.000 individuos, en 18 localidades | tras un fuerte descenso desde 1990 (BOW, 2020) |
| 2018 (evaluación de 2022) | BirdLife | 800–2.000 individuos maduros (el texto de la ficha dice 700–2.000); 1.865 individuos, c. 1.230 maduros, en el cálculo | calidad pobre; derivación estimada; entre 5 y 100 subpoblaciones; ninguna con más de 51–250 maduros (BirdLife DataZone, 2022) |
(BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
La estima de BirdLife se obtiene aplicando la densidad de 3,74 individuos por km² (Gao, 1998) a la superficie de hábitat disponible en 2018 (1.663 km², según Savini y colaboradores, 2021) y a una tasa de ocupación de c. 0,3 inferida de datos de cámaras-trampa de Mo y colaboradores (2021) en la reserva natural nacional de Jianfengling, lo que da 1.865 individuos, equivalentes a c. 1.230 individuos maduros; como los datos no son contemporáneos, BirdLife redondea a una banda de 700–2.000 individuos maduros, y en el encabezado de su ficha da 800–2.000 (BirdLife DataZone, 2022). Liang y Zhang (2011) identificaron 18 sitios con registros (BirdLife DataZone, 2022).
Tendencia
BirdLife califica la tendencia de decreciente, con derivación inferida, con descenso continuado de los individuos maduros y del área de ocupación, y no sabe si hay un descenso continuado del número de subpoblaciones (BirdLife DataZone, 2022). Los datos recientes indican que la pérdida de bosque ha sido lenta (c. 3 % de contracción del hábitat adecuado entre 2000 y 2018, y c. 4 % de pérdida de bosque entre 2002 y 2020), pero la presión de caza sigue siendo relativamente alta, y BirdLife infiere un descenso lento y continuado, sobre todo por la desaparición de sitios antes ocupados (BirdLife DataZone, 2022). HBW decía en 1994 que el área de la forma de Hainan se reducía; Madge y McGowan, que estaba gravemente amenazada, y BOW, que la población había caído con fuerza desde 1990 (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002).
Medidas de conservación
Entre las medidas que se están llevando a cabo figuran crear un censo de población para evaluar el tamaño real de la población y desarrollar técnicas de monitoreo que permitan establecer las tendencias poblacionales. También se pretende evaluar el grado de pérdida de hábitat y la caza en la isla y desarrollar medidas para mitigar estas amenazas; establecer áreas protegidas y garantizar la aplicación efectiva de estas medidas dentro de sus fronteras; y hacer cumplir las leyes dentro de las áreas protegidas actuales y, sobre todo, aumentar la sensibilización sobre el estado de conservación actual de la especie. (BirdLife DataZone, 2022; Hernández García, 2014)
BirdLife recoge, como acciones en marcha, que es una especie protegida de clase I en China, que se conoce de varias reservas naturales de Hainan (las nacionales de Jianfengling, Bawangling, Diaoluoshan y Wuzhishan y ocho reservas provinciales), aunque se conoce mal su eficacia y se ha registrado caza con regularidad en muchas de ellas, y que un núcleo cautivo se mantiene en el Instituto del Sur de China para los Animales Amenazados; y como acciones propuestas, reestimar las densidades de población para conocer mejor su tamaño y desarrollar técnicas de seguimiento para establecer las tendencias, seguir vigilando con teledetección la pérdida y la fragmentación del hábitat en Hainan, establecer más áreas protegidas y garantizar su aplicación efectiva, hacer cumplir la normativa en las áreas protegidas actuales, aumentar la sensibilización sobre el estado de conservación y desarrollar programas de cría en cautividad para reforzar y reintroducir la población (Collar y Butchart, 2013) (BirdLife DataZone, 2022). Las medidas de la ficha original coinciden en lo esencial con las propuestas de BirdLife.
| Medida (BirdLife) | En marcha o propuesta | Observaciones |
|---|---|---|
| Plan de recuperación | no | (BirdLife DataZone, 2022) |
| Esquema de seguimiento sistemático | no | (BirdLife DataZone, 2022) |
| Sitios de conservación identificados | sí, en todo el área | (BirdLife DataZone, 2022) |
| Control o prevención de especies invasoras | no | (BirdLife DataZone, 2022) |
| Introducción o reintroducción con éxito | no | (BirdLife DataZone, 2022) |
| Conservación ex situ | sí | núcleo cautivo en el Instituto del Sur de China para los Animales Amenazados (BirdLife DataZone, 2022) |
| Programas recientes de educación y sensibilización | no | (BirdLife DataZone, 2022) |
| Incluida en legislación internacional | no | (BirdLife DataZone, 2022) |
| Sujeta a controles internacionales de gestión o comercio | no | (BirdLife DataZone, 2022) |
| Especie de la Alianza para Cero Extinción | no | (BirdLife DataZone, 2022) |
Estado de las medidas de conservación según BirdLife (2022).
Poblaciones introducidas y asilvestradas
Ninguna de las fuentes consultadas menciona poblaciones introducidas, asilvestradas o reintroducidas de esta especie. BirdLife da como único país de presencia China (continental), de origen nativo, y contesta «no» a la pregunta de si se ha introducido o reintroducido con éxito; Beebe, Delacour, Johnsgard, Madge y McGowan, HBW, Fuller y Garson, Roles, BOW y Wikipedia tampoco registran sueltas de la especie (Beebe, 1922; BirdLife DataZone, 2022; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976; Wikipedia). Madge y McGowan sí recogen poblaciones introducidas en el Reino Unido de otros faisanes, pero no de este (Madge y McGowan, 2002). Por tanto, no hay datos de poblaciones introducidas que dar; BirdLife propone, de hecho, la cría en cautividad para una futura reintroducción (BirdLife DataZone, 2022).
Población en cautividad
| Fecha | Fuente | Población en cautividad |
|---|---|---|
| 1976 | Roles | no figura entre las formas del gris que conoce en cautividad (la nominal y bakeri) (Roles, 1976) |
| 1977 | Delacour | sin mención entre las formas criadas (Delacour, 1977) |
| 1979, 1993, 1996 | Howman | sin mención en el texto consultado (Howman, 1979; Howman, 1993; Howman, 1996) |
| 2000 | Libro del autor (reparto de la EAZA) | no incluida en la lista de especies (Hernández García, 2014) |
| 2000 | Fuller y Garson | sin cifras de cautividad; no está entre los candidatos a manejo ex situ (Fuller y Garson, 2000) |
| 2012 (BirdLife, 2022) | BirdLife, a partir de Davison et al. | un núcleo en el Instituto del Sur de China para los Animales Amenazados; sin cifra (BirdLife DataZone, 2022) |
| 2025 | Censo de la WPA | sin datos para Polyplectron katsumatae (Censo WPA) |
No se conocen cifras de la población cautiva; los detalles de cría están en el capítulo de cría en cautividad.
Áreas protegidas
Las reservas de Hainan en las que se ha registrado la especie (con las cifras de densidad y la valoración de su eficacia) se recogen en el capítulo de distribución (BirdLife DataZone, 2022; BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002). HBW añade que, de las tres reservas que conocía, al menos Ba Wang Ling (20 km²) probablemente no era eficaz (del Hoyo et al., 1994). BirdLife no identifica IBA/KBA para la especie, porque los sitios son sensibles y no se muestran (BirdLife DataZone, 2022).
Protección legal y CITES
La especie es una especie protegida de clase I en China, según BirdLife; Madge y McGowan recogen que, aunque protegida por la ley china, se sigue cazando para comer (BirdLife DataZone, 2022; Madge y McGowan, 2002). BirdLife indica que no está incluida en legislación internacional ni sujeta a controles internacionales de gestión o comercio (BirdLife DataZone, 2022). HBW anota «CITES II» en la ficha del gris, en la que incluía a la forma de Hainan (del Hoyo et al., 1994). El volumen II del libro del autor dedica a la CITES un apartado general, sin recoger la especie (Hernández García, 2014).
Amenazas y protección
La caza, hoy la amenaza principal; la pérdida de bosque desde los años cincuenta; y el aislamiento de una población dividida en pequeños grupos.
Las amenazas que citan las fuentes son la caza (hoy la principal, según BirdLife, incluso dentro de las áreas protegidas) y la pérdida y la fragmentación del bosque por la tala, que ha reducido y aislado a la población desde los años cincuenta. (BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
La caza
BirdLife dice que la caza se considera hoy la principal amenaza; que se caza incluso en áreas protegidas (Liang y Zhang, 2011; Wang et al., 2021), aunque de forma bastante localizada y con un valor comercial relativamente bajo de la especie; y la clasifica como un uso intencionado, ya en curso, que afecta a la mayor parte de la población (50–90 %), con descensos rápidos y un impacto medio (BirdLife DataZone, 2022). De las 169 personas entrevistadas por Wang y colaboradores (2021), 77 conocían la especie y 20 aportaron conocimientos sobre su explotación (comercio y precio, caza, consumo, uso medicinal y uso ornamental) (BirdLife DataZone, 2022). Madge y McGowan recogen que, aunque la especie está protegida por la ley china, se sigue cazando para comer; BOW, que la caza continúa en muchas de las nueve reservas donde vive (BOW, 2020; Madge y McGowan, 2002). Para el gris, Johnsgard dice que es muy vulnerable a los lazos, pero que no parece una amenaza grave salvo a escala local, y que no se la caza por las plumas ni la carne (Johnsgard, 1986).
Pérdida y fragmentación del hábitat
BirdLife anota la tala y la recolección de madera, a pequeña y a gran escala, como efectos no intencionados que afectan a la mayor parte de la población, con descensos lentos pero significativos y un impacto bajo, y dice que la pérdida de hábitat y la caza parecen haber causado los descensos desde los años cincuenta; hacia los ochenta, solo un 10 % de Hainan conservaba bosque (BirdLife DataZone, 2022). Madge y McGowan hablan de una pérdida de cerca del 75 % del bosque nativo en las últimas décadas, de 740 km² de bosque que quedaban a finales de los ochenta y principios de los noventa, y de la prohibición de talar el bosque primario en 1994; Johnsgard, de una pérdida del 72 % de los bosques tropicales de la isla desde 1949; Fuller y Garson, de la presión de la tala destructiva, atenuada tras la prohibición de 1994 (Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002). Green-Armytage dice que la tala ha reducido el hábitat de los faisanes pavo grises de Hainan (Green-Armytage, 2002). La ficha original dice que el bosque secundario aún puede cortarse (Hernández García, 2014).
Tamaño pequeño y aislamiento
BirdLife dice que la población está formada por numerosas subpoblaciones pequeñas, que se supone aisladas entre sí (en el texto de la justificación), con ninguna de más de 51–250 individuos maduros; que la especie evita incluso las plantaciones bien arboladas y que ha desaparecido de sitios antes ocupados (BirdLife, 2001) (BirdLife DataZone, 2022). Madge y McGowan la califican de escasa o infrecuente en el bosque no perturbado que queda (Madge y McGowan, 2002).
Depredación y otras amenazas
BOW dice que las tasas de depredación de los nidos parecen altas (BOW, 2020). Ninguna de las fuentes consultadas cita enfermedades, contaminación ni cambio climático como amenazas de esta especie, y BirdLife no anota ninguna otra amenaza (BirdLife DataZone, 2022).
| Fuente | Amenazas que cita |
|---|---|
| HBW (1994) | la extensión del área de la forma de Hainan disminuye; reservas de eficacia incierta (del Hoyo et al., 1994) |
| Madge y McGowan (2002) | pérdida del 75 % del bosque nativo; prohibición de talar el bosque primario (1994); se sigue cazando para comer a pesar de la protección legal (Madge y McGowan, 2002) |
| Fuller y Garson (2000) | la tala destructiva presiona a la forma de Hainan; la prohibición de 1994 reduce la amenaza (Fuller y Garson, 2000) |
| BOW (recuadro) | pérdida de hábitat y caza desde mediados del siglo XX; se sigue cazando en muchas reservas; depredación alta de nidos (BOW, 2020) |
| Ficha original y libro del autor (2014) | pérdida de bosque; el bosque secundario aún puede cortarse; medidas: censo, evaluar la caza, áreas protegidas, aplicación de la ley y sensibilización (Hernández García, 2014) |
| BirdLife (2022) | caza (principal, hoy), tala a pequeña y a gran escala; subpoblaciones pequeñas y aisladas (BirdLife DataZone, 2022) |
(BirdLife DataZone, 2022; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2014; Madge y McGowan, 2002)
Subespecies y variación
Una especie monotípica, sin subespecies, sin variedades de color conocidas y sin híbridos documentados; durante un siglo fue, a su vez, una subespecie del faisán pavo gris.
No se reconocen subespecies del faisán pavo de Hainan. (BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002)
La especie es monotípica en BOW, BirdLife y Madge y McGowan; el volumen II del libro del autor dice «Subespecies: ninguna» (BirdLife DataZone, 2022; BOW, 2020; Hernández García, 2014; Madge y McGowan, 2002). Durante mucho tiempo se consideró una simple subespecie del faisán pavo gris (Polyplectron bicalcaratum katsumatae). Un estudio de 2008 basado en ADN mitocondrial y en un intrón de un gen nuclear confirmó que se trata de un linaje genéticamente diferenciado, separado del faisán pavo gris hace aproximadamente 1,4 millones de años, en una época cercana a la separación de la isla de Hainan del continente chino; a partir de esos resultados fue reconocida como especie de pleno derecho, sin subespecies propias, según el recuadro de la ficha original, que cita a Chang et al. (2008), Zoological Science 25: 30–35 (BirdLife DataZone, 2022; Hernández García, 2014; Wikipedia). Los detalles están en el capítulo de sistemática.
Variación
Ninguna de las fuentes consultadas describe variación geográfica dentro de la isla ni variedades de color (mutaciones) de esta especie, ni en libertad ni en cautividad. Los machos del primer año son más pequeños y apagados que los adultos (véase el capítulo de morfología) (Beebe, 1922; Hernández García, 2014; Madge y McGowan, 2002). Beebe, Delacour y Johnsgard consideran que la forma de Hainan, como isla aislada, no intergrada con el gris continental, y Johnsgard añade que es la más pequeña y parda de la serie, la más oriental del gris (Beebe, 1922; Delacour, 1977; Johnsgard, 1986).
- A. Rectrices centrales con ocelos bien desarrollados; zona facial desnuda grande en los adultos
- B. Manto y cubiertas con ocelos metálicos, tarsos con espolones; cabeza con cresta (machos)
- C. Plumaje ventral pardo; costados del pecho no iridiscentes; cola sin bandas o motas subterminales oscuras
- D. Rectrices externas sin ocelos en la barba interna; cola de menos de 350 mm: faisán pavo malayoPolyplectron malacense
- DD. Rectrices externas con ocelos en la barba interna; cola de más de 350 mm
- E. Color general gris negruzco oscuro; garganta no blanca; piel facial rojiza: faisán pavo de GermainPolyplectron germaini
- EE. Color general gris claro; garganta blanca; piel facial amarillenta: faisán pavo gris
- F. Ocelos de las rectrices rodeados de anchas bandas gris ante
- G. Mayor (ala por lo general de más de 200 mm): faisán pavo gris de GhigiPolyplectron bicalcaratum ghigii
- GG. Menor (ala de menos de 200 mm): faisán pavo gris de HainanPolyplectron katsumatae
- FF. Ocelos de la cola no rodeados de anchas bandas gris ante
- G. Más gris, con manchas y rayas de un blanco puro: faisán pavo gris de LowePolyplectron bicalcaratum bailyi
- GG. Más pardo, con más manchas y rayas ante
- H. Más grisáceo, con las manchas más blanquecinas: faisán pavo gris del HimalayaPolyplectron bicalcaratum bakeri
- HH. Más pardusco, con las manchas más ante: faisán pavo gris birmanoPolyplectron bicalcaratum bicalcaratum
- F. Ocelos de las rectrices rodeados de anchas bandas gris ante
- C. Plumaje ventral pardo; costados del pecho no iridiscentes; cola sin bandas o motas subterminales oscuras
- B. Manto y cubiertas con ocelos metálicos, tarsos con espolones; cabeza con cresta (machos)
Híbridos y variedades en cautividad
No se conocen híbridos ni variedades de color de esta especie en las fuentes consultadas; la tabla de hibridación del criadero Chintaguay no tiene fila para ella, y Delacour dice que los faisanes pavo no parecen cruzarse con facilidad con otros galliformes (aunque los grises y los de Germain se han hibridado con frecuencia) (del Campo, 2006; Delacour, 1977).
Cultura y curiosidades
El faisán pavo más raro de una isla, un coleccionista japonés y una pluma suelta en 1904; y una especie que, fuera de los museos, apenas se ha visto.
El nombre y el coleccionista
El epíteto honra a Z. Katsumata, farmacéutico y coleccionista japonés en Hainan (activo hacia 1903) (Jobling, 2010). Beebe cuenta que no dejó notas de campo y que, en 1904, se encontró en la isla una pluma de cola de faisán pavo que, aunque parecía tener buenos caracteres específicos, no recibió nombre hasta que se obtuvieron pieles completas (Beebe, 1922). El nombre chino que da Avibase, 海南孔雀雉, se compone de «Hainan», «pavo real» y «faisán» (Avibase).
¿La más rara de China?
El recuadro de la ficha original, atribuido a Wikipedia, dice que, por su reducidísima población y su presencia en solo 18 localidades, el faisán pavo de Hainan está considerado el gallináceo (orden Galliformes) más raro y amenazado de toda China. El artículo vigente de Wikipedia dice que debería considerarse la especie más rara del orden Galliformes en China (Wikipedia). Se conserva el texto del recuadro (véase la nota del capítulo de distribución).
Observaciones y fotografías
Según BOW, en noviembre de 2026 había 320 observaciones, 409 fotografías, 7 grabaciones sonoras y 9 vídeos de la especie en eBird y en la Macaulay Library; la fotografía de portada de BOW lleva el crédito «© 俊峰 于», tal como figura en la página (BOW, 2020). BirdLife ilustra su ficha con una fotografía de Matthew Kwan (BirdLife DataZone, 2022). El libro del autor reproduce dos fotografías de la WPA (de Zhang Cizu y de Yu Hai-yan), que son las dos de esta ficha, y una foto de pieles de hembras de Kermit Blackwood (Hernández García, 2014). No hay sellos, monedas ni obras de arte de la especie en las fuentes consultadas.
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Avibase: la base de datos de aves del mundo (Lepage, D., Bird Studies Canada). Polyplectron katsumatae Rothschild, LW 1906, identificador F6DD2F7EA8D90C06. avibase.bsc-eoc.org. Consultada el 14 de noviembre de 2026.
- Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
- BirdLife International (2022). Polyplectron katsumatae. The IUCN Red List of Threatened Species 2022: e.T22734897A207341783. doi:10.2305/IUCN.UK.2022-2.RLTS.T22734897A207341783.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
- BirdLife International (2022). Species factsheet: Hainan Peacock-Pheasant Polyplectron katsumatae. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2022; identificador UICN 22734897). datazone.birdlife.org. Descargada el 14 de noviembre de 2026. La ficha remite a Gao y Yu (1990), Gao (1998), Chang et al. (2008), Collar (2009), Pilgrim et al. (2009), Liang y Zhang (2011), Davison et al. (2012), Savini et al. (2021), Mo et al. (2021), Wang et al. (2021), Global Forest Watch (2021) y otras obras que no se han consultado directamente.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Collar, N., Christie, D. A. y Kirwan, G. M. (2020). Hainan Peacock-Pheasant (Polyplectron katsumatae), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/grypep3 · doi:10.2173/bow.grypep3.01. El texto completo es de pago; en la consulta del 14 de noviembre de 2026 solo fue accesible la introducción (especie monotípica, 27 nombres, publicada el 4 de marzo de 2020, texto actualizado por última vez el 16 de octubre de 2015, con 320 observaciones, 409 fotografías, 7 grabaciones y 9 vídeos en eBird y la Macaulay Library); los datos de esta ficha que se atribuyen a BOW proceden de los recuadros de la ficha original de esta web.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan; ficha 147, Grey Peacock-pheasant, pp. 547–548, que incluye la subespecie katsumatae; fichas 144–150 del género Polyplectron, pp. 547–549).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ): T.F.H. Publications (© 1973 y 1978).
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
- Wikipedia (en inglés). Grey peacock-pheasant. en.wikipedia.org/wiki/Grey_peacock-pheasant. No se ha consultado directamente para esta ficha: se cita solo por lo que resume un recuadro de la ficha original de esta web sobre la alimentación y el modo de localizar al ave.
- Wikipedia (en inglés). Hainan peacock-pheasant. en.wikipedia.org/wiki/Hainan_peacock-pheasant (consultada el 14 de noviembre de 2026). Los datos atribuidos a Wikipedia proceden de los recuadros de la ficha original de esta web y del artículo vigente, que es más breve que lo que resumen esos recuadros.
- World Pheasant Association, censo de faisanes en cautividad (Serena Mueller). wpa.serena-mueller.ch. Consulta por nombre científico (Polyplectron katsumatae), noviembre de 2026.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán pavo de Hainan — Polyplectron katsumatae. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/hainan.php.


