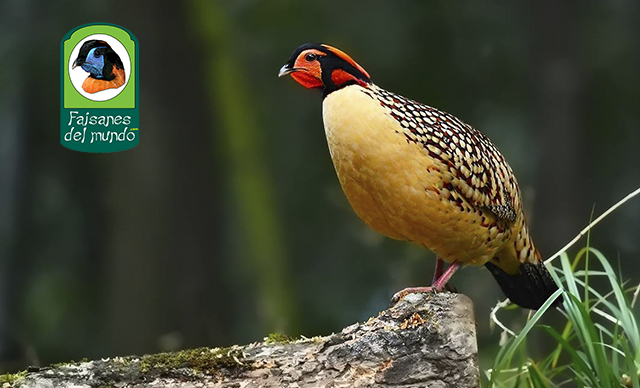
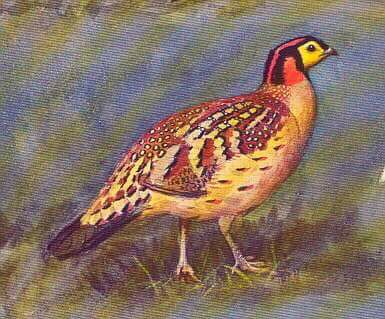
Es, junto con el tragopan Satyr y el de Temminck, el faisán tragopan más conocido. Se cree que su nombre fue puesto en honor a Samuel Cabot (1815-1885), ornitólogo americano. Inicialmente fue clasificado como Ceriornis, que significa «ave cornuda» (del griego kereinos, «cornudo», y ornis, «ave»).
🇪🇸 Tragopan Cabot o Tragopan de Cabot🇬🇧 Cabot's tragopan🇫🇷 Tragopan de Cabot🇩🇪 Cabottragopan🇮🇹 Tragopano di Cabot🇵🇹 Faisão Tragopan Cabot
El faisán tragopan Cabot (Tragopan caboti), de la familia Phasianidae, es una especie endémica del sureste de China catalogada por la UICN como vulnerable. El macho combina la cabeza negra con la cara naranja rojiza, la hembra es de tonos pardos moteados, y se reconocen dos subespecies.
Es el tragopán más oriental y el que vive a menor altitud. Sus congéneres viven en el Himalaya y en las montañas del interior de China; el de Cabot ocupa, en cambio, las sierras húmedas del sureste de China, y solo en el nordeste de Guangxi se acerca al tragopán de Temminck (Beebe, 1918; Madge y McGowan, 2002; Ramesh, 2007). El macho mide unos 61 cm y pesa en torno a 1.400 g; la hembra, unos 50 cm y 900 g (Johnsgard, 1986; Madge y McGowan, 2002). Las cifras de la tabla de medidas original de esta guía son algo mayores, y las diferencias se discuten en el capítulo de medidas.
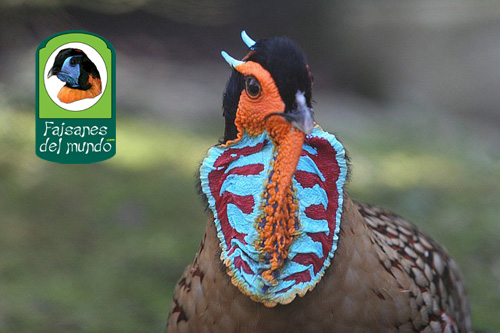
Lo que lo distingue a primera vista es un conjunto de rasgos que no se repiten en ningún otro tragopán: el vientre es de un beige liso, sin las manchas redondas de los demás; la espalda está cubierta de grandes motas de color crema o amarillo blanquecino orladas de negro y rojo granate; la piel desnuda de la cara y de la garganta es de un amarillo anaranjado, no azul ni roja; y la hembra, oscura, luce manchas pálidas más grandes que las de otras hembras de su género y un anillo orbital naranja (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Durante el cortejo el macho despliega, además, un par de cuernos azul pálido y un babero (lappet) naranja, con motas púrpura, rodeado de cobalto y de nueve grandes manchas verdes grisáceas a cada lado (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002).
Habita bosques perennifolios de hoja ancha y bosques mixtos de montaña, entre unos 800 y 1.400 m en los estudios de campo más detallados, con una fuerte asociación con un árbol, Daphniphyllum macropodum, del que come hojas y frutos y en el que duerme (BOW, 2020; Fuller y Garson, 2000; Madge y McGowan, 2002). Pasa mucho tiempo en los árboles, anida en nidos viejos de otras aves o de ardilla y, como los demás tragopanes, es uno de los pocos faisanes que no nidifican en el suelo (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002).
Su historia científica es corta y accidentada. John Gould lo describió en 1857 a partir de un único ejemplar de una colección de Boston; el primer ave viva llegó a Europa en 1882; y Beebe, que recorrió su hábitat en Fujian, lo vio una sola vez en libertad, durante unos cinco segundos (Beebe, 1918). Casi todo lo que se sabe de su vida libre procede de los estudios de campo que se hicieron en China desde la década de 1980 (Fuller y Garson, 2000; Madge y McGowan, 2002; Robertson, 1997).
Está catalogado como vulnerable. Su población, pequeña y cada vez más fragmentada, ha sido estimada por debajo de las 5.000 aves, y la principal amenaza es la sustitución del bosque natural por plantaciones de coníferas (Fuller y Garson, 2000; Madge y McGowan, 2002). Figura en el Apéndice I de CITES y está protegido en China en la máxima categoría nacional (Fuller y Garson, 2000). En cautividad es poco frecuente y vive sobre todo en colecciones privadas (Hernández García, 2013; Howman, 1996).
61cm
longitud del macho adulto (la tabla original da 64–70)
28días
de incubación, solo la hembra
800–1.400m
de altitud en los estudios de campo detallados
Estado de conservación · UICN
LC
NT
VU
EN
CR
EW
EX
Menor riesgoMayor riesgo
VUVulnerable
Ficha técnica
Nombre científico
Tragopan caboti (Gould, 1857)
Clasificación
Orden Galliformes · familia Phasianidae · género Tragopan Cuvier, 1829 (Beebe lo incluía en la subfamilia Perdicinae) (Beebe, 1918; Ramesh, 2007)
ES tragopan de Cabot · EN Cabot’s tragopan (también Chinese tragopan y yellow-bellied tragopan) · FR tragopan de Cabot · DE Cabottragopan (Cabot-Satyrhuhn) · IT tragopano di Cabot · PT faisão tragopan Cabot · Braunbauchtragopan en el libro del autor · chino de Hong Kong T’u-shou-chi(Beebe, 1918; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002)
Vulnerable (VU); CITES, Apéndice I; protegido de primera clase en China (Fuller y Garson, 2000)
02
Sistemática y nomenclatura
Un género de cinco especies, un nombre dedicado a un doctor de Boston y una segunda subespecie descrita en 1979.
El tragopán de Cabot es una de las cinco especies del género Tragopan, los llamados faisanes cornudos. Es la única que no vive en el Himalaya, y su posición dentro del género ha sido discutida: Beebe la consideraba notablemente distinta de sus parientes, Johnsgard la emparenta con el tragopán de Blyth y los análisis morfométricos la agrupan con el de Temminck (Beebe, 1918; Johnsgard, 1986; Ramesh, 2007).
Posición taxonómica
Rango
Taxón
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Género
Tragopan Cuvier, 1829
Especie
Tragopan caboti (Gould, 1857)
Subespecies
T. c. caboti (Gould, 1857) · T. c. guangxiensis Cheng, 1979
Clasificación tradicional que sigue esta guía. Beebe (1918) colocaba los tragopanes en la subfamilia Perdicinae; la ubicación de los géneros dentro de la familia varía según los autores (Beebe, 1918; Madge y McGowan, 2002; Ramesh, 2007).
Origen del nombre
El nombre del género, Tragopan, lo introdujo Cuvier en 1829 y procede del griego: tragos («cabra») y Pan, el dios de los pastores y de los montes salvajes; alude al balido que emiten los machos en la época de cría y a los cuernos carnosos que exhiben en el cortejo (Beebe, 1918; Ramesh, 2007). Los griegos y los romanos aplicaron ese nombre a un ave fabulosa de la que habla Plinio, y Beebe observaba que quien haya visto cortejar a estas aves o haya oído sus voces en la montaña comprenderá lo acertado del término, porque son, en efecto, los machos cabríos del dios Pan, con sus cuernos y su música (Beebe, 1918). Swainson propuso en 1837 sustituirlo por Ceriornis, que muchos autores usaron después, pero Beebe adoptó Tragopan por prioridad (Beebe, 1918).
El epíteto específico, caboti, honra al doctor Cabot, de Boston, dueño del ejemplar sobre el que Gould describió la especie (Beebe, 1918). La cita de cabecera de esta ficha, que procede del libro del autor, cree que el homenajeado fue el ornitólogo estadounidense Samuel Cabot (1815–1885) (Hernández García, 2013); Beebe solo da el título y la ciudad, y no hay en las demás obras consultadas dato que lo confirme (Beebe, 1918). El nombre vernáculo en chino que recoge Beebe, procedente de Hong Kong, es T’u-shou-chi; en inglés se le llama también «tragopán chino» (Chinese tragopan) o «tragopán de vientre amarillo» (yellow-bellied tragopan) (Beebe, 1918; Fuller y Garson, 2000; Madge y McGowan, 2002).
Jobling resuelve la duda que la ficha dejaba abierta sobre el homenajeado: caboti corresponde, según él, al doctor Samuel Cabot (1815–1885), médico estadounidense, colector en Yucatán de 1841 a 1842 y conservador de ornitología de la Boston Society of Natural History. Esa identidad concuerda con lo que dice la ficha: el doctor Cabot de Boston que prestó a Gould el ejemplar, y con la suposición del libro del autor (Jobling, 2010).
Para el género, Jobling da tragopan como palabra latina de un ave mítica, con cuernos y cabeza púrpura, mencionada por Plinio y Pomponio Mela, sin desglosarla en raíces griegas (Jobling, 2010).
Como la especie fue descrita por Gould dentro de Ceriornis, conviene saber cómo explica Jobling ese nombre y sus compañeros de sinonimia, todos referidos a los cuernos: Ceriornis, de kereinos, «cornudo», y ornis, «ave»; Ceratornis, de keras, «cuerno», y ornis; y Diceratornis, de dikeratos, «de dos cuernos», y ornis(Jobling, 2010).
Historia nomenclatural
La secuencia de nombres es corta, porque, según Beebe, los nomencladores casi siempre adoptaron sin más el primer nombre aplicado al ave (Beebe, 1918):
Gould describe la especie como Ceriornis caboti en las Proceedings of the Zoological Society, a partir de un ejemplar prestado de la colección del doctor Cabot, de Boston (Beebe, 1918; Delacour, 1977).
Gould publica la lámina de la especie en The Birds of Asia (vol. VII, lámina 48) (Beebe, 1918).
Sclater incluye la especie en su lista de Phasianidae con procedencia dudosa (¿China?), y Swinhoe compra en Hong Kong un joven vivo que muere en el viaje a Calcuta (Beebe, 1918).
David y Oustalet registran la especie en Oiseaux de la Chine y citan un nombre manuscrito de David, Ceriornis modestus(Beebe, 1918).
Ogilvie-Grant usa por primera vez la combinación Tragopan caboti en el catálogo de aves del museo de Londres (Beebe, 1918).
Beebe adopta Tragopan caboti en su monografía, con una sinonimia completa (Beebe, 1918).
Hasta fechas recientes la especie se consideraba monotípica; en 1979 Cheng describió una segunda forma, guangxiensis, de modo que hoy se reconocen dos subespecies, que se describen en el capítulo de variación (Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002; Ramesh, 2007). El criadero Chintaguay y el libro del autor de esta guía, que ordena el género en cinco especies, siguen el mismo criterio (del Campo, 2006; Hernández García, 2013).
El género y sus parientes
El género Tragopan reúne cinco especies de faisanes robustos y de cola corta que viven en los bosques de montaña del Himalaya y de China: el tragopán occidental, el sátiro, el de Blyth, el de Temminck y el de Cabot (Beebe, 1918; Madge y McGowan, 2002). Se reconocen por la cola de 18 plumas, el pico corto y recio y, en los machos, por un plumaje con intensas motas blancas, dos «cuernos» carnosos eréctiles y un babero de piel desnuda que solo muestran al cortejar; las hembras son difíciles de separar entre sí, salvo por el área en que viven (Johnsgard, 1986; Madge y McGowan, 2002). Los tragopanes, además, mudan la cola del centro hacia fuera, como las perdices, y anidan en los árboles, algo muy poco frecuente entre los faisanes (Beebe, 1918; Madge y McGowan, 2002).
Sobre cuál es el pariente más próximo del de Cabot hay opiniones distintas. Johnsgard cree que es el tragopán de Blyth, porque ambos se han adaptado a bosques de montaña muy húmedos y templados y porque, probablemente, se separaron en las montañas del sur o del suroeste de China, aunque hoy el área del de Cabot esté más cerca de la del de Temminck (Johnsgard, 1986). El análisis de las medidas corporales, en cambio, separa dos grupos, el de Temminck y Cabot, por un lado, y el de los tragopanes sátiro, occidental y de Blyth, por otro; la filogenia del ADN mitocondrial, sin embargo, también sitúa a Cabot y Blyth en grupos distintos, aunque parezcan semejantes por su plumaje, lo que sugiere que clasificar por el color puede inducir a error (Ramesh, 2007).
Especie
Cómo se reconoce el macho
Altitud (Madge y McGowan)
Área
Tragopán occidental
Pecho y espalda grises a negruzcos; cara rojo anaranjado
2.000–3.500 m
Himalaya occidental (norte de Pakistán y noroeste de India)
Tragopán sátiro
Espalda y pecho pardo rojizos, con pequeñas manchas blancas bordeadas de negro; cara azul oscuro
2.500–4.000 m
Himalaya central y oriental
Tragopán de Blyth
Vientre sin manchas, gris; piel de la cara amarilla; pecho rojo
2.000–3.000 m
Himalaya oriental (dos subespecies)
Tragopán de Temminck
Manchas grandes de color gris perla; cara azulada
2.500–3.600 m
Del nordeste de la India y Birmania a China
Tragopán de Cabot
Pecho y vientre beige, sin manchas; espalda con motas beige; piel facial naranja amarillenta
De un ejemplar olvidado en un museo de Boston a los estudios de campo en Zhejiang.
El tragopán de Cabot fue descrito por John Gould en 1857 sobre un solo ejemplar, de procedencia incierta, que pertenecía a una colección privada de Boston. Lo que se supo de él en libertad durante los sesenta años siguientes cabe en pocas páginas: la observación del abate David en 1877, un nido hallado cerca de Kuatun y los cinco segundos en que Beebe vio una pareja (Beebe, 1918).
La descripción de Gould
Según Beebe, en el verano de 1857 Gould visitó Estados Unidos para estudiar los colibríes y examinó la colección de aves del doctor Cabot, de Boston; entre ellas había un tragopán que se llevó prestado a Inglaterra, describió ese mismo año y bautizó en honor de su dueño. El ejemplar regresó a Boston, y de su historia previa solo se sabía que venía de China y que, según se decía, se había obtenido en Macao (Beebe, 1918). Beebe lo localizó años después: estaba mal montado y oculto en los almacenes de la Boston Society of Natural History; hoy se conserva en el Museo de Zoología Comparada de Harvard (Beebe, 1918). La lámina de Gould contiene errores que se comentan en el capítulo de cultura.
Del Hong Kong de los coleccionistas a los bosques de Fujian
Seis años después, Robert Swinhoe compró a un traficante de Hong Kong un joven vivo que embarcó hacia Calcuta y murió en el viaje (Beebe, 1918). La primera mención de la especie en estado salvaje es la del abate David, que en 1877 la halló muy común en la cordillera que separa Fujian de Jiangxi; los naturales la llamaban igual que al tragopán de Temminck y su carne era igualmente buena para comer. Como en octubre y noviembre no vio machos con plumaje de hembra, creyó que esta especie, a diferencia de las demás, adquiría el plumaje adulto completo en el primer año, una idea que luego se demostró errónea (Beebe, 1918).
Durante los treinta y cinco años siguientes, apunta Beebe, lo poco que se registró procedía del entorno inmediato de las observaciones de David. El hallazgo más importante fue el de un nido con cuatro huevos en una vieja ardillera, a unos nueve metros del suelo, que un cazador chino encontró cerca de Kuatun, un pueblo del extremo noroeste de Fujian, y que La Touche describió en 1900 (Beebe, 1918; Johnsgard, 1986). En las colecciones reunidas allí se contaron dieciocho ejemplares: un macho adulto, tres machos jóvenes en plumaje de transición y catorce hembras, de los que uno se cazó el 30 de marzo y los demás en otoño. Nadie estudió a fondo ninguno de ellos y, lamentaba Beebe, se ignoraba todo sobre pesos, muda o parásitos (Beebe, 1918).
Cinco segundos en una montaña de Fujian
Beebe cuenta su propio encuentro con la especie. Una mañana de mediados de marzo, mientras trepaba por una empinada colina del centro-oeste de Fujian entre una niebla tan densa que limitaba la vista a unos nueve metros, vio de pronto surgir una pareja: una hembra en pleno vuelo, perseguida de cerca por un macho. Durante unos cinco segundos zigzaguearon entre la maleza baja y se perdieron en el bosque, silenciosos como habían llegado. La hembra era, sin duda, una hembra; el macho, un ave joven que no estaba en plumaje completo. Beebe tenía la escopeta apoyada a su lado y se quedó mirando el lugar por el que habían desaparecido, convencido casi de haberlo imaginado. El resto de su estancia fue infructuoso y tuvo que conformarse con un macho adulto que le llevó un cazador chino (Beebe, 1918; Beebe, 1926). Una lámina de su monografía, dedicada al hogar chino de la especie, evoca otra vez la escena: una pareja irrumpe sin aviso en un claro, rodea un árbol cargado de bayas y se esfuma en el matorral (Beebe, 1918).
Cabot en las pajareras
El primer macho vivo llegó al zoo de Londres en 1882 y, un año después, una hembra (Beebe, 1918; Delacour, 1977). Poco después se criaban en cautividad: hay un registro de pollos criados por Comely en Beaujardin (Francia) en 1884 (Delacour, 1977). W. H. St Quintin obtuvo pollos en 1901 de una hembra que ponía en nidos viejos de paloma torcaz, y en 1902 anotó el caso de una segunda hembra que nidificó en un árbol; son las descripciones más detalladas que recoge Beebe de la cría de la especie (Beebe, 1918). Antes de 1914 era la especie más barata de adquirir en Francia y se criaban numerosos ejemplares cada año; la guerra la dejó escasa y, aunque llegaron algunas parejas de China en los años siguientes, jamás recuperó su abundancia anterior en Europa (Delacour, 1977).
La especie se hizo rara en las colecciones: Howman escribía en 1996 que, bastante común antes de la Primera Guerra Mundial, era ya poco frecuente en cautividad (Howman, 1996). Johnsgard cuenta que todo el stock de los años ochenta descendía de aves salidas de China desde 1960, cuando el Pheasant Trust recibió cinco machos y dos hembras; en un decenio se importaron unos quince ejemplares y se criaron bastantes jóvenes, y en 1978 y 1979 el Trust vendió sus aves a criadores particulares, entre ellos C. Sivelle, en Estados Unidos (Johnsgard, 1986). Howman, por su parte, atribuye ese núcleo de cría a aves enviadas desde Hong Kong por el doctor K. Searle, repartidas en 1977 y 1978 entre Estados Unidos, Alemania y Bélgica (Howman, 1996). Ambas versiones son compatibles: se refieren a envíos distintos.
Los estudios modernos
La biología del tragopán de Cabot apenas se estudió hasta la década de 1980. Peter Robertson cuenta que Zhang Zheng-wang, joven biólogo de Pekín, acababa de terminar su máster sobre esta especie cuando visitó la Game Conservancy y la World Pheasant Association a finales de esa década (Robertson, 1997). Fuller cita un proyecto de investigación de cuatro años sobre la biología y la conservación de la especie (Zhang, 1999), y el informe indio de 2007 recoge un trabajo de Zhang y Zheng (2006) sobre el fracaso reproductor por depredación (Fuller y Garson, 2000; Ramesh, 2007). Entre los estudios que citan Fuller y Madge figuran los de distribución en las montañas Jinggang (Yan Li, 1984), los de movimientos invernales y uso del hábitat (Young et al., 1991), el de la dieta invernal (Sun Yue-hua, 1995) y el de su sistema de apareamiento y ecología reproductora (Ding, 1995) (Fuller y Garson, 2000; Madge y McGowan, 2002). En 2007 el Instituto de Vida Silvestre de la India resumía así el esfuerzo: los chinos llevaban más de veinticinco años estudiando la ecología y el comportamiento de los tragopanes de Temminck y de Cabot (Ramesh, 2007).
Gould describe la especie sobre un ejemplar de la colección del doctor Cabot (Beebe, 1918).
El abate David la encuentra muy común en la sierra entre Fujian y Jiangxi (Beebe, 1918).
Llega al zoo de Londres el primer macho vivo; la primera hembra, en 1883 (Beebe, 1918).
St Quintin cría los primeros pollos que describe con detalle (Beebe, 1918).
Beebe publica la primera síntesis de lo que se sabe de la especie (Beebe, 1918).
El Pheasant Trust recibe cinco machos y dos hembras de China (Johnsgard, 1986).
Censo de población en el núcleo del área de distribución: unas 4.000 aves (Fuller y Garson, 2000).
Fuller y colaboradores la clasifican como Vulnerable (criterios C1 y C2a) (Fuller y Garson, 2000).
La evaluación de BirdLife International y la UICN estima entre 2.500 y 9.999 adultos (BirdLife DataZone; BOW, 2020).
04
Morfología y plumajes
Un macho beige, moteado de crema, con la cara naranja y un babero azul cobalto que solo muestra en el cortejo.
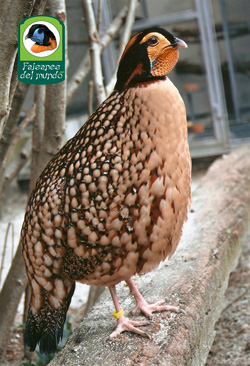
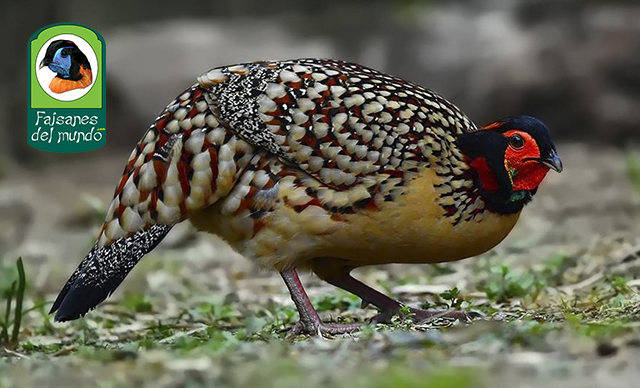
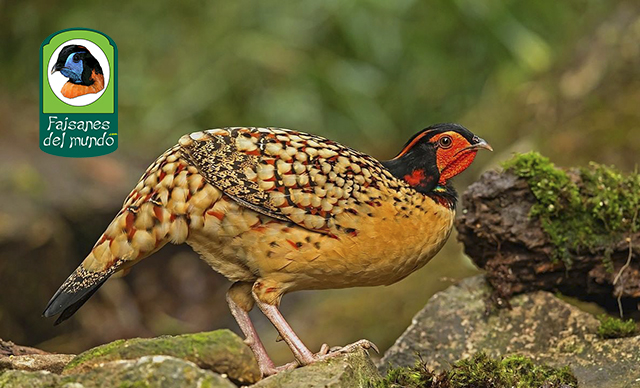
♂ El macho del tragopan de Cabot tiene la cabeza y el cuello negros, mientras que la cara y los laterales de la cabeza y del cuello son de color naranja rojizo. El cuerpo es crema, punteado en rojo y negro, y la cola termina en negro. Las patas son fuertes y de color rosáceo, los ojos son marrones y el conjunto transmite un porte elegante. Es el único tragopan de pecho beige y, en general, es más pálido que sus congéneres. La piel desnuda del rostro es anaranjada, con el lóbulo y los cuernos hinchables azules y rojos, y los lados de la corona son dorados. El pico es de color marrón cuerno y las patas, de un rojo rosáceo que es más pálido en el macho no reproductivo. (BOW, 2020; Hernández García, 2013; Wikipedia)
Macho adulto
Con más detalle: la cabeza es negra, salvo las plumas centrales y posteriores del pequeño copete, que son naranjas; el negro desciende por el cuello y bordea la piel desnuda de la cara y el babero de la garganta (Beebe, 1918; Madge y McGowan, 2002). A los lados del cuello, desde debajo de las cubiertas del oído, hay una gran mancha rojo anaranjado que se prolonga por delante en una segunda banda completa de ese color, bajo el negro; el pecho, en cambio, pasa bruscamente a un beige pálido uniforme que cubre todo el pecho y el vientre (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002). Beebe subraya que es la coloración más especializada de todo el género, más aún que la de la parte inferior del tragopán de Blyth (Beebe, 1918).
Las partes superiores forman el dibujo característico: sobre el fondo negro y rojo granate de la espalda, cada pluma lleva una gran mota beige, separada del borde rojo por una banda negra, de modo que el ave parece espesamente moteada de crema (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002). A medida que se avanza desde el centro de la espalda hacia los costados, los flancos, las alas y las coberteras de la cola, el negro disminuye y el beige crece, hasta que la mitad visible de la pluma es toda beige con un fino marco rojo; al menor desorden del plumaje asoman las bases, con manchas y barras de blanco puro, naranja y beige (Beebe, 1918). Los flancos, los muslos y las subcaudales llevan rojo y negro; las alas y la cola son moteadas de pardo y de beige, y la cola, de 18 plumas, termina en una ancha banda negra (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002). Las coberteras largas de la cola son grandes, romas, de color beige claro y rematadas de rojo y negro (Madge y McGowan, 2002).
Cuernos y babero: el adorno oculto
Como todos los tragopanes, el macho esconde casi todo el año sus mayores adornos (BOW, 2020; Gerrits, 1974). La piel desnuda de la cara, la banda sobre el ojo y la garganta son de un naranja amarillento; bajo la barbilla, un pliegue de piel forma una carúncula central. En plena época de cría, la cara, la barbilla y esa carúncula adquieren un naranja brillante (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002). Los cuernos, de unos 50 mm, son azul pálido, y el párpado, violeta púrpura (Beebe, 1918). El babero (lappet) es un pliegue grueso de piel arrugada en la base de la garganta, de 150 mm de largo y la mitad de ancho; cuando se extiende, el naranja se rompe en una red de masas redondeadas que encierran motas púrpura, y de ese centro salen a cada lado nueve bandas azul pálido, más oscuras junto al cuello y de un cerúleo verdoso hacia el borde, separadas por franjas gris beige (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002). Cerca de la base el azul se vuelve verde donde toca la banda negra del pecho, y ambos colores tienen un brillo plateado (Beebe, 1918).
Beebe describe un pliegue de cortejo grueso y arrugado que solo se desarrolla por completo cuando la época de cría se aproxima (Beebe, 1918). Johnsgard recoge además que La Touche describió el babero de un macho inmaduro cazado en marzo como aparentemente desarrollado en color, aunque con un dibujo algo distinto del del adulto, y supone que hay variación de edad, individual y de estación (Johnsgard, 1986).
Parte blanda
Macho adulto
Hembra adulta
Iris
Pardo avellana
Pardo avellana
Pico
Marrón cuerno
Marrón cuerno (Madge); rosa cuerno, con la mandíbula superior más oscura (Beebe)
Piel de la cara y garganta
Naranja amarillento; en plena cría, naranja brillante
Párpados y mejillas rojo anaranjados; barbilla y garganta de un naranja más vivo y arrugado
Cuernos
Azul pálido, unos 50 mm
No tiene
Patas
Rosa rojizo (más pálidas fuera de la época de cría)
Rosa cuerno oscuro, más pálidas
Espolones
Unos 10 mm de media; un ave puede tener solo uno
Un nódulo plano, a unos 16 mm sobre el dedo posterior
Beebe describe aves vivas y recién cazadas; Madge y McGowan precisan que las patas son más pálidas fuera de la época de cría y en la hembra (Beebe, 1918; Madge y McGowan, 2002).
Beebe examinó a dos machos adultos con espolón solo en una pata, la derecha en uno y la izquierda en el otro; en la pata sin espolón había un nódulo plano como el de la hembra (Beebe, 1918). Madge y McGowan, por su parte, indican que los machos del género llevan un solo espolón tarsal y las hembras carecen de él (Madge y McGowan, 2002).
Hembra
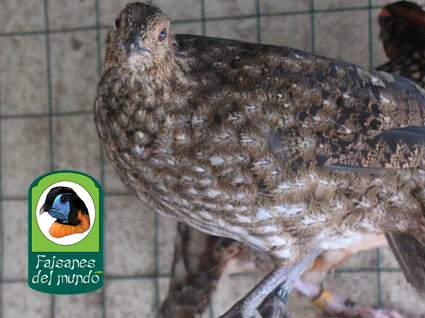
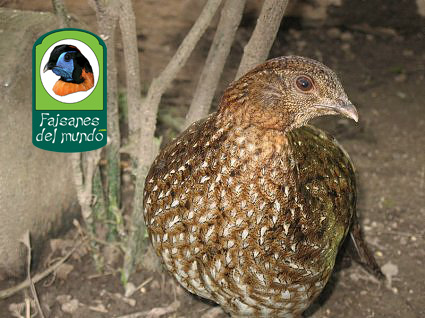
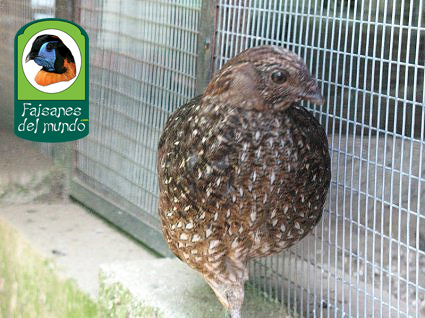
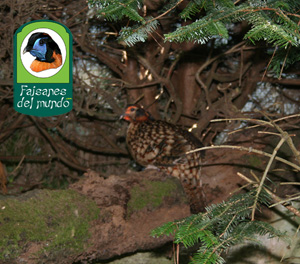
♀ La hembra es similar a la del tragopan de Temminck. Presenta un punteado negro con manchas marrones y triángulos blancos: por encima es negra moteada y marrón rufo, y por debajo, marrón grisáceo, con marcas triangulares blanquecinas. El pecho es marrón grisáceo y los ojos son marrones. La hembra de Temminck se distingue por sus manchas ovales pálidas, mayores en las partes inferiores, por las marcas en forma de flecha más marcadas en las superiores y por la piel orbital azulada, no anaranjada. En la hembra de Cabot, el pico es marrón cuerno y las patas son de un rojo rosáceo más pálido. (BOW, 2020; Hernández García, 2013; Wikipedia)
Beebe y Delacour describen con más detalle a la hembra: la frente y la corona son negras con una ancha raya pálida en el eje de cada pluma y la punta castaña; el dorso, pardo oscuro con motas gris beige o más rojizo según los ejemplares, lleva en casi todas las plumas un ocelo negro y una mancha blanca central, estrecha en el manto y la espalda; las secundarias son negras, con muescas triangulares beige que, en el ala cerrada, simulan seis o más barras; y la cara, la barbilla y la garganta son blancas con borde negro o crema listado de beige (Beebe, 1918; Delacour, 1977). Lo más característico son las grandes manchas blancas centrales que se extienden desde el pecho hasta las subcaudales, tan abundantes que igualan o superan el moteado de los bordes (Beebe, 1918). La piel de la cara y de la garganta es anaranjada, y la de la garganta es arrugada y plegada, como el babero del macho, un detalle que, según Beebe, había escapado a todos los observadores (Beebe, 1918).
El libro del autor de esta guía distingue, en fotografías de Hugo Barbosa, cuatro tipos de hembras según las líneas de cría: de cuello dorado y con grandes marcas blancas, clara con la cara naranja, castaña más rojiza y oscura con pequeñas marcas (Hernández García, 2013). Es una variación individual o de línea, no de subespecie, y las obras consultadas no la describen.
Cómo distinguir a las hembras de tragopán
Distinguir a las hembras de los distintos tragopanes es difícil. La clave de Johnsgard, que reproducen también Beebe en una versión anterior y el libro del autor, separa por la presencia de listas blancas en el dorso, el color de la piel orbital y el color dominante del vientre (Beebe, 1918; Hernández García, 2013; Johnsgard, 1986):
Clave dicotómica · Clave de las hembras de tragopán (según Johnsgard)
Dorso con listas blancas; piel orbital rojiza a naranja
Gris dominante en el vientre; pequeñas manchas blancas redondas en el dorsoTragopán occidental
Blanco o beige dominante en el vientre; manchas blancas triangulares en el dorsoTragopán de Cabot
Dorso sin listas blancas; piel orbital amarillenta o azulada
Parte interior del ala sin naranja rojizo; piel orbital azuladaTragopán de Temminck
Parte interior del ala por lo común naranja rojizo; si no, piel orbital amarillenta
Plumaje verde oliva, con marcas gruesas; ocelos negros dominantes en el dorso; piel orbital amarillentaTragopán de Blyth
Plumaje beige crema, con marcas finas; ocelos negros no dominantes; piel orbital azuladaTragopán sátiro
Madge y McGowan resumen la diferencia de la hembra de Cabot: es oscura, pero con manchas pálidas mucho más grandes que las de otros tragopanes en la parte inferior, y con un anillo orbital naranja (Madge y McGowan, 2002). Johnsgard añade que sus hembras se parecen a las del tragopán occidental, aunque las del de Cabot son más beige o blanquecinas por debajo, en lugar de grisáceas, y que el moteado dorsal tiende a ser lineal o triangular y no redondeado (Johnsgard, 1986).
Tamaño, juveniles y variación geográfica
El macho adulto alcanza en torno a 60 cm de longitud (unos 61 cm, con una cola de unos 21 cm) y puede pesar alrededor de 1,4 kg (unos 1.400 g, según el único ejemplar medido), mientras que la hembra es algo más pequeña, de unos 50 cm (con una cola de unos 16 cm) y alrededor de 0,9 kg (unos 900 g). Estas cifras difieren en parte de las de la tabla de medidas. (BOW, 2020; Wikipedia)
Los juveniles muestran un plumaje muy similar al de la hembra, con tonos pardo-rojizos moteados, hasta que van adquiriendo el vistoso colorido adulto; el macho de primer año se parece a la hembra adulta, con algo de negro y rojo en la cabeza. La subespecie guangxiensis es más oscura que la forma nominal, con más rojo granate en el dorso y la rabadilla. (BOW, 2020; Wikipedia)
Plumajes según la edad
Etapa
Descripción
Polluelo (plumón)
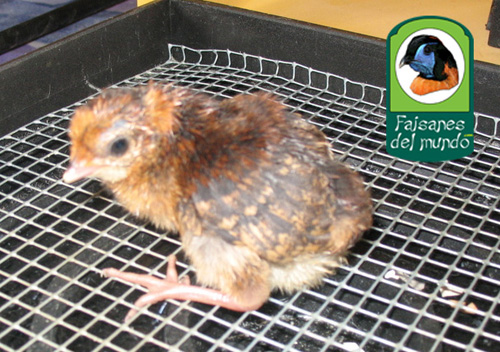
Cubierto de un plumón grueso, hirsuto y de color castaño; las primarias están tan adelantadas que el primer día ya aletean y se encaraman a una percha. Se parece mucho al del tragopán de Temminck, pero es más oscuro en la cabeza y más pálido por debajo (Beebe, 1918; Delacour, 1977).
Juvenil (5–6 semanas)
Restos abundantes de plumón rufo anaranjado en la cabeza y el cuello, y plumaje juvenil completo: corona negra con finas rayas beige; en el manto y el dorso, las plumas son casi enteramente de un beige claro con dos ocelos negros laterales; la garganta lleva todavía plumón blanco. Las primarias exteriores están en pleno crecimiento. Medidas de esa edad: pico 10 mm, ala 138 mm, cola 91 mm, tarso 42 mm (Beebe, 1918).
Hembra de primer año
Conserva las plumas apagadas de la cara y la garganta del plumaje juvenil, tiene menos blanco en el vientre (con ocelos blancos más pequeños y beige) y un tono ventral más rojizo; la parte superior apenas se distingue de la de la adulta. La cola es estrecha y puntiaguda, con barras sucesivas rufas, beige claro y pardo oscuro, hasta doce en las plumas centrales, frente a las siete u ocho barras irregulares de la hembra adulta (Beebe, 1918).
Macho de primer año
Plumaje intermedio entre el de la hembra y el del macho adulto: más grande y de patas más largas que la hembra, con negro y rojo variables en la cabeza y moteado beige en el dorso (Delacour, 1977; Madge y McGowan, 2002). Lo habitual, según Beebe, es una corona negruzca con marcas carmesí en la nuca y el pecho superior y algunos ocelos beige imperfectos en el manto; St Quintin, que lo observó en pajarera, lo consideró casi tan apagado como la hembra inmadura y comprobó que no avanza más hacia el plumaje adulto hasta la muda completa de su segundo año (Beebe, 1918).
Macho adulto
Plumaje descrito en el apartado anterior; el color adulto aparece en el otoño del segundo año (Beebe, 1918; Howman, 1996).
Beebe explicó por qué los viajeros hallaban machos jóvenes en «transición» tanto en otoño como a finales de marzo, y por qué se confundió el abate David: el plumaje abigarrado que el macho adquiere en su primera muda de otoño basta para explicarlo, y no hace falta suponer mudas fuera de estación (Beebe, 1918). En el macho de octubre que describe, las tres primarias exteriores estaban aún lejos de su longitud total y las 18 plumas de la cola estaban todas en crecimiento, con la sustitución de dentro hacia fuera propia del género; las cuatro hembras de la misma fecha, en cambio, aún no habían empezado a mudar la cola (Beebe, 1918; Madge y McGowan, 2002).
Lo que comparten los tragopanes
La cola de los tragopanes tiene 18 plumas y es más corta que el ala; el pico es corto y recio y el tarso, muy robusto, es tan largo como el dedo medio con la uña; el ala es redondeada y la quinta y la sexta primarias son las más largas (Johnsgard, 1986). Los machos de este género suman a la cabeza un pequeño copete occipital, dos cuernos eréctiles y un babero gular que solo muestran en el cortejo (Johnsgard, 1986). Gerrits indica que en los tragopanes los cuernos alcanzan 5–7 cm de altura erguidos y el babero se extiende de 10 a 15 cm de largo por 5–7 cm de ancho; las medidas de Beebe para el de Cabot, de 50 mm y 150 mm, entran en esos márgenes (Beebe, 1918; Gerrits, 1974).
05
Medidas y peso
Los datos de la guía original, contrastados con la literatura: las fuentes difieren bastante.
El macho del faisán tragopan Cabot mide entre 64 y 70 cm de longitud, con alas de 21 a 26 cm, una cola de 15 a 20 cm, un tarso de 70 mm y un peso de 1,1 kg. La hembra mide 58 cm de longitud, con alas de 22 cm, una cola de 16 cm, un tarso de 80 mm y un peso de 1 kg. (Hernández García, 2013)
Macho ♂Hembra ♀
Longitud
♂64–70 cm
♀58 cm
Alas
♂21–26 cm
♀22 cm
Cola
♂15–20 cm.
♀16 cm.
Tarso
♂70 mm
♀80 mm
Peso
♂1,1 kg.
♀1 kg
Tamaño frente al resto de la colecciónlongitud total del macho · 51 especies
Faisán tragopan Cabot · 70 cm
050100150200 cm
Otras descripciones de la especie dan para el macho unos 60 cm de longitud (61 cm, con una cola de unos 21 cm) y un peso en torno a 1,4 kg (1.400 g, a partir de un solo ejemplar), y para la hembra unos 50 cm, una cola de unos 16 cm y alrededor de 0,9 kg (900 g). Estas cifras son algo menores que la longitud de la tabla (de 64 a 70 cm el macho y 58 cm la hembra) y difieren también en el peso (1,1 kg y 1 kg); solo coincide la cola de la hembra (16 cm). Las fuentes consultadas difieren, por tanto, en las medidas de esta especie. (BOW, 2020; Wikipedia)
Medidas según distintas fuentes
Los datos de campo y de museo son pocos: casi todas las medidas publicadas proceden de un puñado de ejemplares, y varias obras se citan unas a otras. Beebe midió pocos individuos; Delacour da cifras que Johnsgard recoge y completa con las de Cheng y colaboradores (1978), de seis machos y seis hembras; y Madge y McGowan resumen la bibliografía. Se recogen todas para que cada lector juzgue (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Fuente
Longitud ♂
Longitud ♀
Cola ♂
Cola ♀
Peso ♂
Peso ♀
Tabla original de esta guía (Hernández, 2013)
64–70 cm
58 cm
15–20 cm
16 cm
1,1 kg
1 kg
Beebe (1918)
610 mm
505 mm
213 mm
165 mm
—
unas 2 libras
Delacour (1977)
610 mm
505 mm
210–215 mm
160–168 mm
—
—
Johnsgard (1986), sobre Delacour y Cheng et al. (1978)
—
—
207–230 mm
151–171 mm
1.400 g (un ejemplar)
unos 900 g
Madge y McGowan (2002)
unos 61 cm
unos 50 cm
207–230 mm
151–171 mm
unos 1.400 g
unos 900 g
Birds of the World y Wikipedia (según la guía original)
Entre los cinco tragopanes, el de Cabot es el más pequeño. El resumen del Instituto de Vida Silvestre de la India, que usa las cifras de Madge y McGowan, da para el macho una longitud media de 71 cm en el tragopán occidental, 70 cm en el sátiro, 68 cm en el de Blyth, 64 cm en el de Temminck y 61 cm en el de Cabot; en las hembras, 60, 58, 59, 58 y 50 cm, respectivamente (Ramesh, 2007). El análisis de las medidas corporales agrupa a Temminck y Cabot (Ramesh, 2007).
06
Distribución y hábitat
Bosques húmedos de montaña del sureste de China, hasta unos 1.400 m.
El faisán tragopan Cabot es una especie endémica de los bosques húmedos de montaña del sureste de China, repartida por las sierras de Zhejiang, Fujian, Jiangxi, Hunan, Guangxi y Guangdong. Catalogado como vulnerable, su población disminuye por la pérdida y fragmentación del bosque. (BirdLife DataZone; BOW, 2020)
Mapa de distribución. Pulsa para ampliar.
Área de distribución
La especie es endémica del sureste de China y sus poblaciones se distribuyen ampliamente por las sierras de Zhejiang, Fujian, Jiangxi, Hunan, Guangxi y Guangdong. (BOW, 2020; Hernández García, 2013)
Cordillera del sureste de China, al sur del Yangtsé. Un triángulo desde 26° N, 110° E y 26° N, 117° E hasta el vértice en 28° N, 118° E; un ejemplar cazado en el extremo sur de Hunan; abundante en el noroeste de Fujian.
Delacour (1977)
Montañas de Fujian (Fokien) y Guangdong (Kwangtung); un registro en el extremo sur de Hunan.
Johnsgard (1986)
Centro y noroeste de Fujian, norte de Guangdong, sur de Hunan y nordeste de Guangxi. La forma nominal ocupa todo el área salvo Guangxi; guangxiensis solo se conoce del nordeste de Guangxi.
Madge y McGowan (2002)
Del nordeste de Guangxi hacia el este por el norte de Guangdong y el sureste de Hunan, hasta el centro y noroeste de Fujian y el sur de Zhejiang; hoy probablemente restringida a bosques pequeños y aislados.
Fuller et al. (2000)
Muchas localidades dispersas en las sierras de Zhejiang, Fujian, Jiangxi, Hunan, Guangxi y Guangdong; un registro sin confirmar en Anhui.
Ramesh (2007)
Del sureste de China por el norte de Guangdong y el sureste de Hunan, hasta el centro y noroeste de Fujian y el sur de Zhejiang; el único tragopán que no vive en la India.
Los nombres antiguos usados por Beebe y Delacour (Fokien, Kwangtung, Kwangsi, Kiangsi) corresponden a Fujian, Guangdong, Guangxi y Jiangxi.
Beebe, que no podía fijar el límite occidental, escribió que sería generoso trazar el área como un triángulo escaleno (Beebe, 1918). Johnsgard anota que en el nordeste de Guangxi la subespecie guangxiensis convive a menudo con el tragopán de Temminck; en el resto del área no hay otro tragopán (Johnsgard, 1986; Madge y McGowan, 2002). Hay constancia de que en el pasado era más abundante: en la cordillera que separa Fujian de Jiangxi, común en tiempos del abate David, se la considera hoy muy rara, y ha desaparecido de varios condados de Fujian (Johnsgard, 1986; Madge y McGowan, 2002).
Hábitat
Habita en bosques mixtos de elevada humedad, a una altitud de entre 700 y 1.500 m, aunque otras fuentes sitúan su rango entre 800 y 2.000 m. Ocupa bosques caducifolios siempreverdes y bosques mixtos de caducifolios y coníferas, sobre todo en zonas dominadas por fagáceas, lauráceas, teáceas, aquifoliáceas, simplocáceas, rosáceas y ericáceas, con una fuerte asociación con Daphniphyllum macropodum. Puede anidar en bosques de píceas, pero depende de las frondosas para alimentarse. Los fragmentos de bosque ocupados tenían una media de 21,7 ha, frente a 6,3 ha en los desocupados. (BirdLife DataZone; BOW, 2020; Hernández García, 2013)
Se desplaza poco: en la Reserva Natural de Wuyanling (Zhejiang) se mueve entre 800 y 1.400 m en verano y entre 800 y 1.000 m en invierno, y el mayor desplazamiento lineal registrado es de 3 km. (BOW, 2020; Madge y McGowan, 2002)
Las descripciones de Beebe son más pintorescas. Subió hasta una cresta de Fujian entre nubes bajas, bajo una niebla que empapaba el sotobosque, entre manchas de azaleas de un rosa cereza, y desde la cima vio empezar el bosque, cuyas copas quedaban a la altura de sus ojos; la lámina que ilustra su relato muestra un valle del río Min con laderas salpicadas de pinos jóvenes y de azaleas, y un matorral enmarañado de bambú enano por el que nada mayor que un faisán puede avanzar con rapidez (Beebe, 1918). Madge y McGowan añaden que ocupa bosques perennifolios y mixtos, que en invierno aprovecha zonas ricas en nueces de Lithocarpus y Cyclobalanopsis y que en verano se la ha visto también en terreno abierto por encima del límite del bosque (Madge y McGowan, 2002).
Altitud según las distintas fuentes
Fuente
Altitud
Observaciones
Beebe (1918)
≤ 2.800 pies (unos 850 m); 3.500–4.500 pies (unos 1.070–1.370 m) en Kuatun
Los de Kuatun viven más bajo que cualquier otro tragopán
Delacour (1977)
3.000–5.000 pies (unos 900–1.500 m)
Más abajo que las demás especies del género
Howman (1996)
3.000–5.000 pies (900–1.500 m)
Más bajo que los demás tragopanes
Johnsgard (1986)
Observación de Beebe, hasta 2.800 pies; 3.000–4.000 pies en Kuatun; guangxiensis, 700–1.100 m (Cheng, 1979)
Fuller et al. (2000)
600–1.800 m
También espacios abiertos por encima del límite del bosque
Madge y McGowan (2002)
Hasta 1.400 m; en Zhejiang, 800–1.000 m en invierno y 800–1.400 m en verano
Poco movimiento altitudinal
Ramesh (2007)
800–1.400 m (invierno, 800–1.000 m)
Bosques subtropicales de hoja perenne y mixtos, con roble chino, cedro y abeto
Un ave arborícola, discreta y tímida, a la que casi nadie ha visto en libertad.
El tragopán de Cabot es un ave de sotobosque y de copas, y rara de ver. Casi todo lo que se sabe de su comportamiento procede de las pajareras, de unos pocos estudios de campo y de lo que se conoce del resto de los tragopanes (Johnsgard, 1986; Madge y McGowan, 2002).
Dónde pasa el día
El carácter arborícola es lo más llamativo: Madge y McGowan indican que se le ve a menudo en los árboles, y Delacour la considera muy arborícola, hasta el punto de que se encontró una puesta muy alta en una vieja ardillera (Delacour, 1977; Madge y McGowan, 2002). Johnsgard va más lejos y la cree inusualmente arborícola en comparación con los demás tragopanes, quizá como reflejo de los densos bosques donde vive (Johnsgard, 1986). St Quintin lo comprobó en un cercado de unas cinco hectáreas, con césped, matorral y un arroyo: sus tragopanes de Cabot pasaban gran parte del tiempo en los árboles, a menudo en un tejo umbrío, aunque por regla general no en el mismo en que dormían; descendían a comer y volvían de inmediato; caminaban con habilidad por las ramas y entre el follaje denso; y aprovechaban la menor ocasión para escapar si alguna rama tocaba la valla (Beebe, 1918; Delacour, 1977).
En libertad se alimenta en el suelo y en las primeras y últimas horas del día. Según Madge y McGowan, el área de campeo es mayor en primavera que en invierno y se amplía con el comienzo de la cría; las hembras suelen forrajear con los machos territoriales y usan áreas mayores que los machos antes de que se intensifique la temporada (Madge y McGowan, 2002).
Vida social
No se ha estudiado en detalle. Cheng (1979) afirmó que las aves se reúnen en pequeños grupos para forrajear y para ir a beber hacia las diez de la mañana y de nuevo hacia las tres de la tarde (Johnsgard, 1986). Madge y McGowan señalan que forrajea a veces en pequeños grupos, en las primeras horas de la mañana y al final de la tarde (Madge y McGowan, 2002). Johnsgard supone que no es más social que los demás tragopanes, que a lo sumo se ven en parejas o en grupos familiares (Johnsgard, 1986); el informe del Instituto de Vida Silvestre de la India dice lo mismo del género en general: se encuentran sobre todo solos o en pareja, salvo en los grupos familiares (Ramesh, 2007).
En cuanto al sistema de apareamiento, véase el capítulo de reproducción: los autores lo describen a la vez como monógamo y poligínico (Johnsgard, 1986; Madge y McGowan, 2002).
Carácter
En cautividad, Delacour la considera quizá la más mansa y gentil de todos los tragopanes (Delacour, 1977). Beebe, en cambio, advertía de que, como todos los miembros del género, no tiene una constitución fuerte (Beebe, 1918).
La voz
Johnsgard, que escribía en 1986, afirmaba que la llamada territorial del macho no estaba descrita y que probablemente se parecía a la de los demás tragopanes (Johnsgard, 1986). Madge y McGowan, en 2002, la recogen: en la época de cría, el macho emite una llamada de dos notas, que comienza con un wa-r parecido al llanto de un bebé y continúa con tres a cinco notas gua; también se oye con frecuencia un chi-chi-chi rápido y continuo, producido no con la voz, sino con un rápido batir de alas; y, cuando se alarma o se molesta, emite un fuerte gua-gua-gua durante varios minutos o más (Madge y McGowan, 2002).
Su llamada territorial consiste en una ráfaga rápida de 5 a 25 notas repetidas, que dura de 2 a 8 segundos y va disminuyendo en tono y volumen. El reclamo del macho, emitido solo en la época de cría desde una rama grande, es un llanto de dos notas similar al de un bebé, seguido de 3 a 5 notas «gua»; en esta época se oye también un rápido batir de alas. Como llamada de cortejo emite además notas agudas repetidas. (BOW, 2020; Hernández García, 2013; Wikipedia)
Cuando se asusta
Beebe, en su breve encuentro, vio una huida silenciosa y rápida en zigzag a baja altura, con la hembra delante y el macho tras ella (Beebe, 1918). Johnsgard señala que no se ha escrito nada sobre los posibles depredadores de los adultos (Johnsgard, 1986); los depredadores de nidos que cita la ficha original se mencionan en el capítulo de amenazas (BOW, 2020; Hernández García, 2013).
08
Alimentación
Hojas, frutos y semillas del bosque; en cautividad, pienso, verdura y fruta.
En libertad, el tragopan de Cabot se alimenta sobre todo en el suelo del bosque y en las primeras y últimas horas del día, con una dieta de hojas, frutos y semillas. En cautividad basta un buen pienso para faisanes, complementado con verduras. (BOW, 2020; Wikipedia)
En libertad
En estado salvaje se alimenta de hojas, granos y frutas. Busca su alimento principalmente en el suelo del bosque, seleccionando raíces, brotes tiernos, yemas, flores, frutos y semillas, y se ha descrito una especial preferencia por las hojas y los frutos de Daphniphyllum macropodum, un arbusto que además utiliza como posadero nocturno. Tras el amanecer y antes del anochecer se alimenta de hojas de este arbusto: el 45 % de los demás encuentros fueron con aves comiendo en él, el 48 % en el suelo y el 7 % en otros árboles. En invierno frecuenta zonas ricas en nueces de Lithocarpus y Cyclobalanopsis y en cápsulas de semillas de Schima superba. (BOW, 2020; Hernández García, 2013; Wikipedia)
Un estudio realizado en Jiangxi registró en la dieta 74 especies de plantas superiores de 39 familias y 65 géneros, y los invertebrados pequeños la complementan de forma ocasional (cuatro tipos en dicho estudio). La subespecie guangxiensis consume sobre todo semillas de Castanopsis y también judías rojas. Forrajea especialmente a primera hora de la mañana y a última de la tarde, a veces en pequeños grupos. (BOW, 2020; Wikipedia)
Las observaciones más antiguas son las de Beebe y La Touche, y eran escasas. La Touche examinó el buche de un macho inmaduro, con hojas jóvenes, y el estómago de una hembra adulta, con bellotas. El buche del macho adulto que Beebe pudo estudiar estaba repleto de hojas parecidas a las del laurel, de un fuerte olor aromático, similar al de las hojas que prefieren los tragopanes del Himalaya; contenía además dos pequeños caracoles terrestres, y en la molleja solo había un poco de materia vegetal triturada (Beebe, 1918; Johnsgard, 1986). Cheng (1979) señaló que la subespecie guangxiensis come sobre todo semillas, entre ellas las de Castanopsis, además de judías rojas (Johnsgard, 1986). La dieta de invierno y la importancia de Daphniphyllum proceden de los trabajos de Young y colaboradores (1991) y de Sun Yue-hua (1995), que citan Fuller y Madge (Fuller y Garson, 2000; Madge y McGowan, 2002).
En cautividad
Un buen pienso para faisanes resulta suficiente, aunque la cebolla, las zanahorias, la col rizada, la lechuga y las endivias constituyen buenos complementos vegetales. En cambio, se desaconsejan la lombarda y el repollo. (BOW, 2020; Hernández García, 2013; Wikipedia)
Los criadores históricos y modernos coinciden en que la dieta de los tragopanes es sobre todo vegetal. Howman la resume como principalmente vegetariana, con énfasis en la fruta y las bayas (Howman, 1996). Johnsgard cita a Sivelle (1979), que alimentaba a sus tragopanes con alfalfa fresca o recién cortada, hierbas, calabaza, pepino, manzanas, frambuesas, moras, pasas, uvas, cacahuetes y similares; apenas se dan insectos vivos, salvo a los pollos, y los cacahuetes se dan a diario a los reproductores (Johnsgard, 1986). Los criadores actuales de faisanes insisten, en general, en un pienso equilibrado complementado con verduras, fruta y, de vez en cuando, algo de proteína animal (del Campo, 2006).
Con los pollos hay más variedad. St Quintin tuvo dificultades para que los suyos comieran; lo consiguió con pequeñas orugas verdes de arce, luego con lombrices de jardín picadas y huevos de hormiga y, a la semana, con natillas y lechuga fresca; más adelante tomaron cáñamo y trigo, lombriz y fruta (Beebe, 1918). Sivelle alimentaba a los suyos con hierbas y alfalfa, un pienso comercial de arranque para pavos y granos, con un contenido proteico inferior al 20 %; tras empezar con granos partidos mezclados y agua medicada, a las dos semanas los pasaba al exterior y les daba verduras, fruta y cacahuetes (Johnsgard, 1986). La ficha original recomienda para los polluelos ortigas y forraje picado, además de un buen pienso de arranque (BOW, 2020; Wikipedia).
09
Cortejo y exhibición
Una parada con cuernos, babero y alas: pocos segundos, mucho color.
La puesta viene precedida de una preciosa parada nupcial, en la que el macho infla la cara y los cuernecillos mientras gira alrededor de la hembra. Durante el cortejo despliega bajo el pico unas carúnculas eréctiles de colores azul y naranja, junto con un par de «cuernecillos» carnosos de tono azulado situados sobre los ojos; ambos elementos suelen permanecer ocultos y solo se hinchan y muestran en todo su esplendor en estos momentos. El sistema de apareamiento parece mixto: el macho permanece con una sola hembra al comienzo de la temporada, pero al avanzar la incubación se agrupa con otros machos o se aparea con hembras adicionales. (BOW, 2020; Hernández García, 2013; Wikipedia)
La exhibición según Wayre
Casi todo lo que se sabe de la parada procede de la cautividad: en 1986 Johnsgard escribía que prácticamente nada se había descrito de la conducta sexual de la especie en libertad, y poco de ella en las pajareras (Johnsgard, 1986). El relato más detallado es el de Wayre (1969), que Johnsgard reproduce (Johnsgard, 1986):
El macho comienza erguido, con el cuerpo y la cola en línea vertical y solo el pico algo inclinado. Alza el copete e hincha las plumas de los muslos como unos pantalones bombachos. El borde azul del babero, aunque aún sin desplegar, se ve de un azul cobalto intenso.
Baja las primarias del ala más próxima a la hembra y alza el hombro opuesto, con lo que aplana el cuerpo y muestra a la hembra la máxima superficie de plumaje coloreado. Sigue erguido y camina en círculo alrededor de ella.
La exhibición puede cesar en ese punto, o el ave puede detenerse de pronto, frente a la hembra, y pasar al clímax grotesco: con el plumaje inferior hinchado y las alas entreabiertas, sacude la cabeza y el cuello hasta que los cuernos carnosos azules y el babero naranja y azul se extienden al máximo.
En ese momento el babero cuelga ante el pecho y deja ver todo su dibujo. Todo dura unos segundos: cuernos y babero se recogen enseguida y el ave recupera su forma normal.
Wayre vio además a un macho erguirse y zumbar con las alas como un faisán plateado, aunque con menos fuerza y menos ruido; como en otros faisanes, quizá sea un desafío a otros machos (Johnsgard, 1986). El zumbido de alas que se oye en la época de cría se ha descrito también en el campo, como un chi-chi-chi continuo producido por las alas, no por la voz (Madge y McGowan, 2002).
Un babero precoz
Se supone que solo los machos adultos exhiben, pero La Touche describió el babero de un macho inmaduro cazado en marzo como aparentemente desarrollado en cuanto a color, lo que sugiere que hay variaciones de edad, de individuo y de estación (Johnsgard, 1986). La respuesta de la hembra y la cópula no se describen en las obras consultadas.
Cuándo cortejan
La ficha original sitúa el cortejo desde febrero y la temporada de cría entre marzo y mayo (BOW, 2020; Hernández García, 2013); Madge y McGowan dan la misma temporada, con nidos desde el 1 de abril (Madge y McGowan, 2002). El reclamo del macho, de 5 a 25 notas, se emite desde una rama grande y anuncia el territorio (BOW, 2020; Hernández García, 2013).
10
Reproducción en la naturaleza
Lo poco que se sabe del nido, la puesta y la incubación en libertad.
En el tragopan de Cabot, la puesta viene precedida de una vistosa parada nupcial en primavera. La hembra pone unos 4 huevos, los incuba durante unos 28 días y cría a los polluelos sola. Los machos alcanzan la madurez sexual a los 2 años de vida, y las hembras al primero. (BOW, 2020; Hernández García, 2013; Wikipedia)
Calendario anual
EFMAMJJASOND
Cortejodesde febrero (ficha original)
Estación de críade marzo a mayo (ficha original; Madge y McGowan)
Puesta (nidos con huevos)desde mediados de marzo según la ficha original; nidos desde el 1 de abril (Madge); el único nido silvestre descrito en detalle, el 17 de mayo (La Touche)
Incubación (28 días)orientativo: de mediados de marzo a mayo, más 28 días
Puesta en cautividad (hemisferio norte)principios de abril (Chintaguay; Hernández, 2014); en mayo, en los casos de St Quintin
El calendario es orientativo: procede de fuentes y aves de cautividad y de campo distintas, y no hay un ciclo anual publicado para la especie.
La época de cría
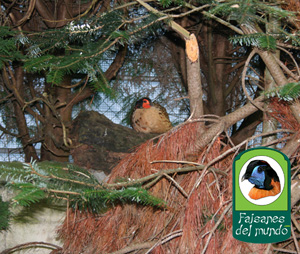
La época de cría se sitúa en primavera: la temporada va de marzo a mayo, con el cortejo desde febrero y nidos con huevos desde mediados de marzo. Normalmente anida en un nido situado a una altura de entre 1,5 y 1,8 m, aunque en libertad se han registrado nidos en árboles grandes de hasta 10 m del suelo. De 15 nidos, 11 estaban en el borde del bosque, sobre todo en Pinus taiwanensis; uno ocupaba un nido abandonado de ardilla, y la especie acepta plataformas artificiales de bambú de 30 cm de ancho y 15 cm de profundidad. (BOW, 2020; Hernández García, 2013; Wikipedia)
En la literatura de libros, la estación empieza algo más tarde que en la ficha original: Madge y McGowan dan marzo a mayo, con nidos encontrados desde el 1 de abril (Madge y McGowan, 2002). Johnsgard (1986) registraba un solo nido descrito en libertad (Johnsgard, 1986).
El nido
El único nido silvestre que describían las obras clásicas lo encontró un cazador chino cerca de Kuatun, en el noroeste de Fujian: estaba a unos 30 pies (unos 9 m) de altura, en una vieja ardillera del año anterior, en un gran árbol, y contenía cuatro huevos, dos de ellos a punto de eclosionar y dos malogrados (Beebe, 1918; Johnsgard, 1986). Fue un hallazgo muy importante para Beebe: los nativos, que hasta entonces solo habían encontrado nidos de faisán en el suelo, quedaron asombrados de hallarlo tan alto (Beebe, 1918). Beebe interpretó los cuatro huevos como dos puestas de dos huevos, aunque Johnsgard recuerda que en cautividad las puestas habituales son de tres o cuatro (Beebe, 1918; Johnsgard, 1986). Para Beebe, es una prueba más de que los tragopanes se apartan de la norma de los faisanes y se acercan a los crácidos sudamericanos, y de que el instinto de construir nido se está adquiriendo, empezando por adoptar nidos ya hechos de otras aves y de mamíferos arborícolas, con un ligero forro de hojas y ramitas (Beebe, 1918).
Los estudios recientes añaden detalles: Madge y McGowan indican que anida en bosque de pino Pinus taiwanensis y de Cryptomeria, según las condiciones locales, a menudo en el borde del bosque, y que uno de los nidos estaba en una ardillera abandonada (Madge y McGowan, 2002). En cautividad, las hembras eligen nidos de otras aves a diferentes alturas: St Quintin registró puestas en nidos viejos de paloma torcaz a unos 10 y a unos 14 pies del suelo (unos 3 y 4,3 m) y, en otro caso, a 8 pies de altura (2,4 m) en un abeto, con ramitas muertas que la hembra rompía de las ramas vecinas (Beebe, 1918; Johnsgard, 1986). Wayre anotó, en cambio, que las aves del Pheasant Trust no siempre elegían un lugar elevado y a menudo ponían en una depresión bajo un arbusto perennifolio (Johnsgard, 1986).
Puesta y huevos
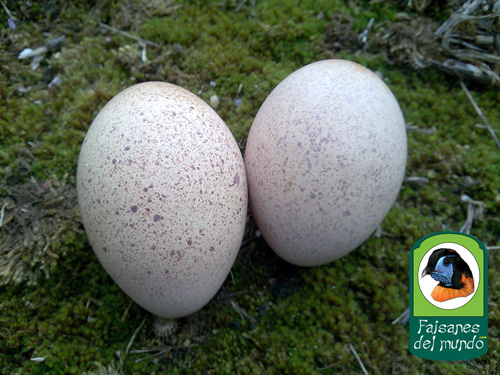
La hembra pone unos 4 huevos de color crema (de 3 a 5 huevos beige oscuro moteados de marrón; las puestas registradas en el medio natural oscilan entre 2 y 6) y, si se retiran a las 3 semanas, realiza otra puesta. La hembra, sola, los incuba durante unos 28 días (de 28 a 29 días en cautividad). De 15 nidos se perdieron 13, nueve de ellos por depredación. (BOW, 2020; Wikipedia)
Los huevos son de color ante o beige crema, sin brillo, con pecas pardas o rojizas que a veces confluyen, de textura calcárea y de forma ovalada corta y ancha; Delacour los considera muy parecidos a los del tragopán de Temminck, aunque todavía más cortos y redondeados (Beebe, 1918; Delacour, 1977). Miden de media 50 × 40 mm, con un peso fresco estimado de 44,2 g (Delacour, 1977; Johnsgard, 1986).
Fuente
Huevos por puesta
Observaciones
La Touche, en Beebe (1918)
4 en el único nido silvestre
Quizá dos puestas de 2
Johnsgard (1986)
3–4 en cautividad
Sivelle: 3–4 puestas por temporada, 12–14 huevos en total
Howman (1996)
2–4
Criadero Chintaguay (2005) y Hernández (2014)
2–4
Principios de abril en el hemisferio norte; 28 días
Todas las obras coinciden en 28 días: Johnsgard, Madge y McGowan, Howman, el criadero Chintaguay y el libro del autor de esta guía; la ficha original menciona 28–29 días en cautividad (BOW, 2020; del Campo, 2006; Hernández García, 2014; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002). La hembra incuba sola y cría sola a los pollos (BOW, 2020; Madge y McGowan, 2002). Los pollos nacen con un plumón grueso y las primarias tan desarrolladas que el primer día ya vuelan hasta una percha; al crecer, trepan y vuelan entre ramas con la agilidad de un joven paseriforme y duermen juntos en una percha (Beebe, 1918; Johnsgard, 1986). Robertson recuerda que los pollos de los tragopanes pueden volar en cuanto nacen (Robertson, 1997).
Éxito y depredación
Las poblaciones silvestres sufren mucha pérdida de nidos. La ficha original recoge que, de 15 nidos, 13 se perdieron, 9 de ellos por depredación, y, en otro lugar, que desde 1983 el 48 % de los nidos conocidos ha sido destruido por depredadores naturales (véase el capítulo de amenazas) (BOW, 2020; Hernández García, 2013). El Instituto de Vida Silvestre de la India menciona asimismo el fracaso reproductor por la presión de la depredación, según Zhang y Zheng (2006) (Ramesh, 2007).
Sistema de apareamiento y madurez
Los autores lo describen de formas distintas. Madge y McGowan dicen que es a la vez monógamo y poligínico: el macho permanece con una sola hembra al principio de la temporada, pero, avanzada la incubación, se alimenta solo o con otros machos o se aparea con otras hembras que entran en su área (Madge y McGowan, 2002). Johnsgard, con una muestra pequeña de aves en cautividad (un grupo de tres machos y tres hembras de Sivelle), sugirió un sistema esencialmente monógamo (Johnsgard, 1986). La ficha original dice que el sistema parece mixto (BOW, 2020; Hernández García, 2013).
En cuanto a la madurez, el libro del autor y la ficha original afirman que los machos alcanzan la madurez sexual a los 2 años y las hembras al primero (Hernández García, 2013). Howman, el criadero Chintaguay y el volumen II del libro del autor dan 2 años de madurez para la especie, sin distinguir sexos, y St Quintin estableció que el macho solo adopta el plumaje adulto en el otoño de su segundo año (Beebe, 1918; del Campo, 2006; Hernández García, 2014; Howman, 1996).
11
Cría en cautividad
Prolífica y mansa, pero de vida corta y poco abundante en las colecciones.
El tragopán de Cabot se cría en cautividad desde la década de 1880. Pone con generosidad y los pollos se crían con facilidad, pero Delacour, que lo conoció bien, advertía de que es de vida más corta que cualquier otro tragopán (Beebe, 1918; Delacour, 1977).
Instalaciones
Howman recomienda para el tragopán de Cabot una pajarera de unos 37 m² (400 pies cuadrados), con base de hierba (Howman, 1996). Gerrits añade que los tragopanes son perfectamente rústicos y necesitan más protección contra el calor del verano que contra el frío del invierno; no viven mucho en recintos pequeños, pero en pajareras amplias y bien plantadas llegan a edades avanzadas y se obtienen buenos resultados de cría (Gerrits, 1974). Delacour insistía en lo mismo para el de Cabot: con espacio suficiente y ejercicio se evitan las convulsiones y las muertes súbitas de los machos (Delacour, 1977).
La condición arborícola de esta especie condiciona el diseño de las instalaciones. St Quintin vigilaba que ninguna rama alcanzase la valla, porque las aves aprovechaban cualquier ocasión para escapar; tenía los tragopanes con un ala cortada y cercados con alambrada a prueba de zorros (Beebe, 1918; Delacour, 1977). Sivelle ofrecía cajas nido elevadas, de entre dos y seis pies (entre 0,6 y 1,8 m) de altura; aproximadamente una de cada diez de sus hembras de tragopán (de varias especies) no usaba una caja para la primera puesta, pero la siguiente era siempre en una de ellas (Johnsgard, 1986). En el Pheasant Trust, en cambio, las hembras de Cabot no siempre elegían un lugar elevado y a menudo ponían en una depresión bajo un arbusto perennifolio (Johnsgard, 1986).
Delacour la considera la más mansa y gentil de los tragopanes; con todo, los machos son propensos a convulsiones y a morir de forma súbita cuando parecen estar en perfecta salud, algo que, según él, se evita dándoles sitio y ocasión de hacer ejercicio (Delacour, 1977). Beebe es todavía más pesimista: como todos los miembros de su género, tiene una constitución poco fuerte, y en 1918 no veía esperanza de mantener la especie en cautividad si desaparecía de su hábitat (Beebe, 1918).
Puesta
Delacour y Beebe coinciden en que las hembras ponen abundantemente (Beebe, 1918; Delacour, 1977). Johnsgard cuenta que las aves de Sivelle hacían de tres a cuatro puestas por temporada, de 12 a 14 huevos en total. Con tres machos y tres hembras en recintos contiguos, hacia finales de marzo uno de los machos pareció atraer a una hembra y se juntaron; con la segunda pareja los huevos resultaron infértiles, y la hembra apareada después con el tercer macho tampoco dio huevos fértiles; la tercera hembra, de primer año, no mostró interés y no puso (Johnsgard, 1986). La tabla de postura del criadero Chintaguay indica una madurez de 2 años, de 2 a 4 huevos por puesta, puesta a principios de abril en el hemisferio norte y a principios de octubre en el sur, y 28 días de incubación; el volumen II del libro del autor da las mismas cifras (del Campo, 2006; Hernández García, 2014). Howman da también de 2 a 4 huevos, 28 días y plumaje adulto en el segundo año (Howman, 1996).
St Quintin, que mantenía tragopanes en un cercado de unos cinco acres (unas dos hectáreas), vio que su primera hembra puso dos huevos en un nido viejo de paloma torcaz, a unos diez pies del suelo (1900); al año siguiente, con un macho adulto, puso tres en otro nido de paloma, que retiró y puso bajo una gallina, pero resultaron infértiles, quizá por una helada; a principios de mayo puso de nuevo en el mismo nido, ya a 14 pies de altura, y entonces cambió los huevos por otros de pintada, que ella aceptó al instante. Los huevos fértiles de tragopán, incubados en incubadora, dieron dos pollos; el menor murió atacado por una comadreja y el otro era ya, a principios de diciembre, un macho joven con mucho color en la cabeza y la parte alta del cuello (Beebe, 1918; Delacour, 1977).
Incubación
En cautividad la incubación dura 28 días, igual que en los demás tragopanes (del Campo, 2006; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002). Johnsgard cuenta que Sivelle incubaba los huevos de tragopán a 99,5 °F (unos 37,5 °C), con una humedad relativa del 84 % y tres volteos diarios, y que los huevos picados se pasaban a una nacedora con un 88–94 % de humedad relativa (Johnsgard, 1986). St Quintin colocó huevos de tragopán en una incubadora y dejó que la propia hembra incubase huevos de pintada, y confió los pollos a una gallina nodriza (Beebe, 1918). Para el resto de los parámetros (conservación de los huevos antes de incubar, temperatura y humedad de la incubadora y de la nacedora, y calor de la crianza) rigen las pautas generales del criadero Chintaguay para faisanes, descritas con detalle en la ficha del faisán dorado, con una salvedad importante: la incubación del tragopán de Cabot dura 28 días y no 22 (del Campo, 2006).
Crianza de los pollos
Tras la eclosión hay que situar a los polluelos en una caja de aproximadamente 50 × 50 cm, cuyo suelo debe ser rugoso para evitar problemas en las patas. Pueden alimentarse con ortigas y forraje picado, además de un buen pienso para polluelos de faisán. Cuando cumplen 3 semanas se pueden trasladar a un lugar más amplio. Los machos alcanzan la madurez sexual a los 2 años de vida, mientras que las hembras la alcanzan al primero. (BOW, 2020; Hernández García, 2013; Wikipedia)
La peculiaridad de los pollos de tragopán es su precocidad: St Quintin vio que los suyos, el primer día, aleteaban hasta una percha, y a los pocos días volaban de rama en rama con la soltura de un joven paseriforme; si la jaula se cerraba tarde al atardecer, los encontraba dormidos uno junto a otro en una percha. Tardó en que comieran: tuvieron que tentarlos orugas verdes pequeñas y, más tarde, lombrices picadas y huevos de hormiga; hasta que aprendieron a volver al compartimento caliente tuvo que encerrarlos al anochecer, y les daba otra comida a las cuatro de la mañana (Beebe, 1918). Se crían mucho más despacio que los pollos de gallina y tardan más en aficionarse a la nodriza (Beebe, 1918).
En el zoo de Londres, la vida media de los tragopanes de Cabot era de unos dos años y medio, y el ave más longeva alcanzó los seis años; la docena de aves del parque zoológico de Nueva York, sometidas a un clima más extremo, vivieron todavía menos (Beebe, 1918).
Población cautiva y programas de cría
En cautividad está protegida por un Studbook europeo, y la población cautiva cuenta con centenares de ejemplares, distribuidos sobre todo en colecciones privadas, ya que es una especie poco común en los zoológicos. Existe además un programa de cría en cautividad en China. (BOW, 2020; Hernández García, 2013; Wikipedia)
Fuller y colaboradores (2000) estimaban entre 50 y 150 las aves puras de la especie en cautividad, según el registro internacional, una cifra algo inferior a la que sugiere la ficha original; el libro genealógico internacional lo llevaba H. Assink (Fuller y Garson, 2000). El volumen II del libro del autor la sitúa entre las especies con libro genealógico europeo (ESB), cuyo coordinador es Mathieu Dorval, y el programa regional de 2000 de los zoológicos europeos le asigna el mismo nivel (Hernández García, 2014). Fuller subraya que las supuestas subespecies conviene manejarlas por separado mientras no se resuelva su rango taxonómico (Fuller y Garson, 2000).
La inseminación artificial ha sido decisiva: según el libro del autor, el tragopán de Cabot se ha reproducido por ese método en Estados Unidos, China y Europa, y sin ella probablemente no estaría en las colecciones; los pollos así obtenidos se reproducen después por vía natural (Hernández García, 2014).
Pureza de las líneas
Johnsgard, en 1986, anotaba que no se conocían híbridos del tragopán de Cabot (Johnsgard, 1986). La tabla de hibridación de Johnsgard (1999) en la versión de del Campo registra, sin embargo, dos casos: un cruce con el tragopán sátiro, que se logró en cautividad, y otro con el faisán de Lady Amherst, con híbridos reportados como estériles (del Campo, 2006; Johnsgard, 1999). Recomendación editorial: no cruzar especies ni subespecies distintas, tanto por conservación como porque un programa de cría solo es útil con aves de línea pura y de origen conocido.
12
Estado de conservación
Vulnerable: pocos miles de aves y un bosque que se fragmenta.
VU
Vulnerable
Se enfrenta a un riesgo alto de extinción en estado silvestre. Región: China.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La especie está catalogada como vulnerable por una población pequeña, en descenso y cada vez más fragmentada, debido sobre todo a la conversión de los bosques mixtos naturales en plantaciones de coníferas (Fuller y Garson, 2000; Madge y McGowan, 2002).
Un censo de población realizado en 1985-1986 estimó en 4.000 los ejemplares presentes en el centro de su área de distribución, en Guangdong, Fujian, Zhejiang y Guangxi, y el censo nacional de fauna silvestre de China (1995-2000) calculó la población en 9.300 individuos. Esta cifra es relativamente estable dentro de las áreas protegidas, aunque disminuye en otras zonas. (BirdLife DataZone; BOW, 2020; Hernández García, 2013)
La evaluación de BirdLife International y la UICN de 2020 estima la población mundial entre 2.500 y 9.999 ejemplares adultos, con tendencia decreciente (otras fuentes hablan de 2.500 a 10.000 individuos). Las cifras proceden de censos y evaluaciones de fechas y métodos distintos. La especie está catalogada como vulnerable y figura en el Apéndice I de CITES. (BirdLife DataZone; BOW, 2020)
Cómo ha cambiado la valoración
Año
Fuente
Valoración
1877
Abate David (en Beebe)
Muy común en la cordillera entre Fujian y Jiangxi (Beebe, 1918).
1918
Beebe
Numerosa en el noroeste de Fujian según varios observadores; con pocos datos de campo (Beebe, 1918).
1981–1986
King (ICBP), en Johnsgard
Considerada «en peligro» y muy rara en todo su área, sobre todo por la destrucción del hábitat por la agricultura (Johnsgard, 1986).
1996
Howman
Categoría de amenaza «en peligro»; rara en cautividad (Howman, 1996).
2000
Fuller et al.
Vulnerable (criterios C1 y C2a): pequeña población en declive y cada vez más fragmentada (Fuller y Garson, 2000).
2002
Madge y McGowan
Vulnerable; quizá menos de 5.000 aves; extinta en algunas zonas (Madge y McGowan, 2002).
2007
Ramesh (Instituto de Vida Silvestre de la India)
Vulnerable; población de unas 5.000 aves; CITES, Apéndice I (Ramesh, 2007).
Las valoraciones proceden de organismos y sistemas de evaluación distintos y no son estrictamente comparables.
Cuántas aves quedan
Fuente
Estimación
Observaciones
Fuller et al. (2000), sobre el censo de 1985–1986 (Zheng y Wang, 1998)
Unas 4.000 aves
En el núcleo del área, en Guangdong, Fujian, Zhejiang y Guangxi; estable dentro de áreas protegidas y en general en descenso fuera (Fuller y Garson, 2000)
de la población dentro de áreas protegidas, según la ficha original
Medidas propuestas por la UICN y la WPA
Fuller y colaboradores señalaron las acciones prioritarias para la especie: estudios, una evaluación a gran escala de su estado, una gestión eficaz del hábitat y un programa de seguimiento de la población (Fuller y Garson, 2000). Entre los objetivos de su plan de acción para 2000–2004 figuraban realizar estudios en las áreas protegidas para saber cuáles albergan poblaciones importantes, preparar planes de gestión de las reservas clave, vigilar cada año las poblaciones de algunas de ellas y fomentar la gestión del hábitat degradado, por ejemplo replantando de especies caducifolias adecuadas, como Daphniphyllum macropodum, las zonas de coníferas (Fuller y Garson, 2000). Propusieron también, con los departamentos forestales provinciales, sustituir tras la tala parte de las plantaciones de coníferas por bosque autóctono de hoja ancha que incluya esa especie (Fuller y Garson, 2000).
13
Amenazas y protección
Pérdida y fragmentación del bosque, plantaciones de coníferas, caza y depredación de nidos.
La principal amenaza identificada es la pérdida y modificación de su hábitat, que ha fragmentado las poblaciones y las ha dejado en bosques pequeños y aislados (Fuller y Garson, 2000; Madge y McGowan, 2002).
Amenazas
La principal amenaza es la pérdida y modificación de su hábitat, y la especie es además muy susceptible a la fragmentación. La mayor parte de los bosques naturales se ha eliminado o modificado como consecuencia de la demanda de tierras agrícolas y de madera, y la tala y la invasión agrícola siguen siendo factores de riesgo. La sustitución progresiva de los bosques naturales de hoja perenne por plantaciones de coníferas y de bambú constituye hoy un grave problema, en parte porque la especie anida en plataformas naturales, como las horquillas entre las ramas, que estas plantaciones reducen; la instalación de plataformas artificiales de anidación podría permitirle persistir en estos nuevos hábitats. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013)
La caza ilegal para consumo sigue produciéndose en algunos lugares, especialmente fuera de las áreas protegidas. Desde 1983, el 48 % de los nidos conocidos ha sido destruido por depredadores naturales, en particular Garrulus glandarius, Charronia flavigula y Felis bengalensis. En la Reserva Natural de Wuyanling, la densidad de aves bajó de 7,1 a 0,9 por km² entre finales de los años ochenta y 2002-2003. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013)
Se han obtenido datos genéticos que muestran que la especie se encuentra inmersa en un proceso de división en dos grupos, el occidental y el oriental. Diversos cambios geográficos en el paisaje han creado una barrera entre ambos que ha aislado a la población oriental de la occidental. Ello tendrá implicaciones para la conservación y la gestión de los grupos de población y, sobre todo, para la variabilidad genética. (BOW, 2020; Hernández García, 2013)
Amenaza
Detalle
Fuente
Pérdida y fragmentación del hábitat
Los bosques naturales se han talado o transformado para ganar terreno a la agricultura y obtener madera; las reservas son pequeñas y están aisladas.
La de Cabot sufre, como señala el informe del Instituto de Vida Silvestre de la India, fragmentación de hábitat (Deng y Zheng, 2004) y fracaso reproductor por la presión de la depredación (Zhang y Zheng, 2006) (Ramesh, 2007). Madge y McGowan resumen las presiones principales en una zona de China muy densamente poblada: la pérdida de hábitat para madera y la conversión del suelo para la agricultura (Madge y McGowan, 2002). Johnsgard, en 1986, consideraba que la especie estaba muy amenazada sobre todo por la destrucción del hábitat ligada a la agricultura (Johnsgard, 1986).
Protección
Es una especie protegida a nivel nacional en China, y su biología y su conservación se han estudiado intensamente durante un período de cuatro años. Hay muchas áreas protegidas en el interior o cerca de su área de distribución, pero estas reservas tienden a ser relativamente pequeñas y aisladas, y no está claro cuántas de ellas contienen extensiones de bosque lo bastante amplias y adecuadas para sostener poblaciones viables. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013)
Existen pruebas de que el establecimiento de áreas protegidas ha sido eficaz para frenar la tala de bosques y la caza dentro de su área de distribución, y se estima además que el 60 % de la población se encuentra ya dentro de ellas. La especie forma parte de un programa de seguimiento en la Reserva Natural Nacional Wuyanling. (BOW, 2020; Fuller y Garson, 2000; Hernández García, 2013)
Fuller y colaboradores precisan que la especie es de primera clase en la protección nacional china y que figura en el Apéndice I de CITES; su plan de 2000–2004 hablaba todavía de un proyecto de estudio de cuatro años por venir (Fuller y Garson, 2000). Madge y McGowan citan como áreas protegidas con la especie las reservas de Nanling, Wuyanling y Wuyishan (Madge y McGowan, 2002); Johnsgard recoge la creación de varias reservas en su área histórica, la mayor de ellas de 5.000 ha, en Guangdong, y al menos otras tres menores (Johnsgard, 1986).
Dos subespecies: la forma nominal y una subespecie occidental de Guangxi, más oscura.
Se reconocen dos subespecies del faisán tragopan Cabot, Tragopan caboti caboti y Tragopan caboti guangxiensis, que se presentan a continuación. (BOW, 2020; Hernández García, 2013)
Durante mucho tiempo se consideró una especie monotípica; la segunda subespecie la describió Cheng en 1979 (Johnsgard, 1986; Madge y McGowan, 2002).
Macho de rojo granate más claro y menos extendido en el dorso y la rabadilla, con motas beige en las puntas de las plumas; hembra de un marrón menos oscuro (BOW, 2020; Johnsgard, 1986; Ramesh, 2007)
Tamaño
Macho unos 61 cm y 1.400 g; hembra unos 50 cm y 900 g (las medidas de Madge y McGowan corresponden a esta forma) (Johnsgard, 1986; Madge y McGowan, 2002)
Es la forma descrita por Gould en 1857 y la que recoge casi toda la literatura. Las hembras se muestran en el capítulo de morfología (Beebe, 1918; Johnsgard, 1986).
Macho más oscuro, de un granate más profundo y extendido en el dorso y la rabadilla, con motas blanco amarillentas ovaladas, en lugar de beige, y bandas más estrechas; hembra de un pardo mucho más oscuro, con estrías negras más gruesas y manchas blancas mejor desarrolladas (BOW, 2020; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002)
Tamaño
Sin medidas propias en las obras consultadas
Altitud
700–1.100 m, algo más bajo que la forma nominal (Cheng, 1979) (Johnsgard, 1986)
Las tres fotografías de machos se conservan en el sitio con el nombre de esta subespecie, sin autor ni pie; la identificación se basa en ese nombre de archivo y en la descripción de Cheng.
Distribución y diferencias
Tragopan caboti caboti ocupa el este de China, desde el nordeste de Guangdong hasta Zhejiang. Tragopan caboti guangxiensis habita el sur de China, en el nordeste de Guangxi, y se sabe muy poco de ella; su estatus de conservación se valora como en peligro, frente a vulnerable para la forma nominal. El macho de guangxiensis es más oscuro que el nominal, con más rojo granate en el dorso y la rabadilla y manchas blanco-amarillentas, en lugar de beige, en las puntas de las plumas; la hembra es también más oscura, con estrías negras más gruesas y manchas blancas mejor desarrolladas. (BOW, 2020)
La descripción de Cheng, resumida por Johnsgard y por Madge y McGowan, coincide en lo esencial: en la subespecie occidental el macho es de un granate más profundo en todo el cuerpo, con más extensión de ese color en el dorso y la rabadilla, y con motas de un blanco amarillento más pálido y ovaladas en las puntas; la hembra es de un pardo mucho más oscuro, con más estrías negras y manchas blancas mejor desarrolladas que en la forma nominal (Johnsgard, 1986; Madge y McGowan, 2002). El libro del autor resume la diferencia diciendo que la subespecie es más oscura que la forma nominal y de bandas más estrechas (Hernández García, 2013). Según Cheng, la forma occidental vive a 700–1.100 m, algo más bajo que la nominal, en bosques mixtos con sotobosque denso de arbustos, bambúes enanos y helechos, y a menudo con el tragopán de Temminck en el nordeste de Guangxi (Johnsgard, 1986).
Otros tipos y mutaciones
En las obras consultadas no se describen mutaciones de color ni otras subespecies. El libro del autor, que no incluye clave de subespecies, sí recoge fotografías de hembras de aspecto muy diverso (de cuello dorado, claras de cara naranja, castañas más rojizas y oscuras de marcas pequeñas), que atribuye a las distintas líneas de cría (Hernández García, 2013); se muestran en el capítulo de morfología.
Híbridos
En 1986 Johnsgard escribía que hasta entonces no se habían registrado híbridos de esta especie (Johnsgard, 1986). La tabla de hibridación de Johnsgard (1999), traducida por del Campo, señala, en cambio, dos cruces con el tragopán de Cabot: con el tragopán sátiro (hibridación en cautividad) y con el faisán de Lady Amherst (híbridos reportados como estériles) (del Campo, 2006; Johnsgard, 1999).
Cruce con el tragopán de Cabot
Resultado reportado
Tragopán sátiro
Hibridación reportada en cautividad
Faisán de Lady Amherst
Híbridos reportados como estériles
Otros tragopanes y especies
Sin híbridos reportados en la tabla
Tabla de hibridación de Johnsgard (1999), traducida y adaptada por del Campo; la tabla no detalla los casos concretos (del Campo, 2006; Johnsgard, 1999).
Una lámina con errores, un nombre chino de Hong Kong y dos sellos de correos.
El tragopán de Cabot no tiene en las obras consultadas una carga cultural comparable a la de otras especies del género; lo que sí hay son pequeñas historias que tienen que ver con su descubrimiento, con su imagen en el arte científico y con su representación en sellos.
Una lámina con errores
La lámina de Gould (The Birds of Asia, 1858), la primera imagen de la especie, está llena de licencias artísticas. Cuando Beebe la comparó con el ejemplar original, descubrió que el dibujante había añadido negro bajo el parche rufo del cuello, había puesto un espeso plumaje negro en la barbilla, con lóbulos laterales que el ave no tiene, y había prolongado el moteado de la cola hasta la punta; era comprensible, comentó, porque la cola del ejemplar había sido recortada con tijeras y le faltaba la cuarta parte de su longitud, con lo que había desaparecido la banda negra terminal del macho. Beebe lo contrapone al método de George Edwards, que más de un siglo antes, para no equivocarse sobre la cola deshilachada de su tragopán sátiro, la dejó «tras un árbol» en el dibujo (Beebe, 1918).
Imágenes y portadas
La edición de 1994 de Pheasant Jungles, de Beebe, publicada por la World Pheasant Association, lleva en la cubierta un tragopán de Cabot de R. David Digby (Beebe, 1927). El plan de acción de la UICN y la WPA de 2000–2004 acredita una ilustración de la especie de Timothy Greenwood (Fuller y Garson, 2000). Beebe dedicó además una lámina de su monografía a la especie (Beebe, 1918), y el libro del autor reproduce la de Henrik Grönvold, que ilustró esa obra, en la que el tragopán de Cabot figura como número 2 junto a los otros cuatro tragopanes (Hernández García, 2013).
La pintura reproducida de un macho de tragopán de Cabot figura en el sitio sin autor ni pie; podría ser la lámina de Grönvold que reproduce el libro del autor, pero no se ha podido confirmar.
Nombres y usos
El abate David anotó que los naturales llamaban al tragopán de Cabot igual que al de Temminck y que su carne era igualmente buena para comer (Beebe, 1918). El nombre chino que recoge Beebe, de Hong Kong, es T’u-shou-chi(Beebe, 1918).
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.
Los dos sellos reproducidos son de la administración postal de China; uno de ellos muestra al macho con los cuernos y el babero desplegados, el momento culminante de la parada descrita en el capítulo de cortejo (Johnsgard, 1986).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
Beebe, W. (1927). Pheasant Jungles. Nueva York: G. P. Putnam's Sons (reed. World Pheasant Association, 1994).
BirdLife International. Cabot's Tragopan (Tragopan caboti), ficha de la especie en la BirdLife DataZone (fuente que cita la ficha original de esta web). datazone.birdlife.org/species/factsheet/22679172
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
McGowan, P. J. K. y Kirwan, G. M. (2020). Cabot's Tragopan (Tragopan caboti), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/cabtra1 · doi:10.2173/bow.cabtra1.01
Ramesh, K. (2007). «Tragopans, the horned pheasants; their taxonomy, distribution and status». En Sathyakumar, S. y Sivakumar, K. (eds.), Galliformes of India. ENVIS Bulletin: Wildlife and Protected Areas, vol. 10 (1), pp. 69–77. Dehradun: Wildlife Institute of India.
Robertson, P. A. (1997). Pheasants. Voyageur Press (cabecera de página de la obra: «A Natural History of the Pheasant»).