Polyplectron chalcurum (Lesson, 1831)LC — Preocupación menor
El nombre específico chalcurum hace referencia a la cola de esta ave, puesto que «chalkos» significa «cobre» y «oura», «cola». También fue denominado Chalcurus chalcurus (Beebe, 1922).
🇪🇸 Faisán Pavo de Sumatra🇬🇧 Bronze-tailed Peacock-pheasant🇫🇷 éperonnier à queue bronzée🇩🇪 Bronzepfaufasan🇮🇹 Calcuro di Sumatra🇵🇹 Faisão-pavão-rabo-de-bronze
El faisán pavo de Sumatra (Polyplectron chalcurum) es una especie de la familia Phasianidae, del género Polyplectron, propia de las montañas del oeste de Sumatra, en el sudeste asiático, y catalogada por la UICN como de preocupación menor. (BirdLife DataZone; del Hoyo et al., 1994; Madge y McGowan, 2002; Wikipedia)
Es un faisán pavo pequeño, discreto y muy esquivo, endémico de las montañas de Sumatra. Es el único del género cuyos dos sexos carecen de ocelos: en su lugar, la cola, estrecha, puntiaguda y de 16 plumas, lleva franjas y parches metálicos de un violeta purpúreo (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). El macho mide unos 56 cm y la hembra unos 40 cm, y se conocen muy pocos pesos, todos de aves cautivas: entre 370 y 590 g en el macho y entre 238 y 269 g en la hembra (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002). La tabla de la guía original daba 600 g y 300 g, por encima de esos intervalos, y se ha corregido con los pesos de las fuentes.
Su historia científica empieza con un solo ejemplar de museo: Lesson lo describió en 1831 con la localidad errónea de Java, y Temminck lo figuró el mismo año diciendo que lo había traído Diard de Sumatra (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977). Beebe escribía en 1922 que ningún observador europeo la había visto viva (Beebe, 1922). Las primeras aves vivas salieron de Sumatra en 1929, y desde 1932 se criaron en Clères, en Francia, hasta 1940 (Delacour, 1977; Roles, 1976); después, la especie ha estado representada en las colecciones por muy pocas aves, y la guía original estima unos 350 ejemplares cautivos (Hernández García, 2014; Howman, 1979; Howman, 1993; Roles, 1976).
Vive solo en Sumatra, en bosques montanos bajos, tanto inalterados como talados, a unos 800–1.800 m de altitud según BirdLife y el HBW, aunque cada fuente da un rango algo distinto; BirdLife calcula una extensión de presencia de 197.000 km² y no tiene una cifra de población, y el HBW y Madge y McGowan la estiman, de forma muy tentativa, en decenas de miles de aves (BirdLife DataZone; del Hoyo et al., 1994; Madge y McGowan, 2002). Se conoce muy poco de su vida: lo que se sabe del cortejo y la cría procede sobre todo de aves cautivas, y de la dieta silvestre solo se sabe que varios buches contenían frutos pequeños e insectos (BOW, 2020; del Hoyo et al., 1994; Johnsgard, 1986).
Su estado de conservación es de preocupación menor desde el año 2000 (casi amenazada en 1988 y 1994), con una tendencia decreciente sospechada por BirdLife en su evaluación de 2024, a partir de la pérdida de cobertura forestal en su área (BirdLife DataZone). La especie tiene dos subespecies, la del sur (chalcurum) y la del norte (scutulatum), que se distinguen por el diseño de la parte superior, pero entre las que hay una intergradación que ha hecho dudar de su validez (del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002). Ninguna de las fuentes consultadas menciona poblaciones introducidas, asilvestradas o reintroducidas.
ES faisán pavo de Sumatra (espolonero de Sumatra) · EN Bronze-tailed Peacock-pheasant (también Sumatran Peacock-pheasant) · FR éperonnier à queue bronzée · DE Bronzepfaufasan (también Bronzeschwanzfasan) · IT calcuro di Sumatra · PT faisão-pavão-rabo-de-bronze · JA アオオビコクジャク · ZH 铜尾孔雀雉 (Avibase; del Hoyo et al., 1994; Hernández García, 2014; Madge y McGowan, 2002)
Sin programa EEP ni ESB («no recomendado» en el reparto de la EAZA del año 2000) (Hernández García, 2014)
02
Sistemática y nomenclatura
Un ejemplar de museo con la localidad equivocada, un género propio que ya no se usa y una especie sin ocelos.
El género Polyplectron reúne, según el libro del autor, nueve especies conocidas como espoloneros o faisanes pavo (ocho, según otras versiones), y su sistemática no está clara; la de Sumatra es la única que carece por completo de ocelos (del Hoyo et al., 1994; Hernández García, 2014).
Posición taxonómica
Rango
Taxón
Clase
Aves
Orden
Galliformes
Familia
Phasianidae
Género
Polyplectron Temminck, 1813
Especie
Polyplectron chalcurum Lesson, 1831
Subespecies
P. c. chalcurum Lesson, 1831 · P. c. scutulatum Chasen y Hoogerwerf, 1941
Los autores no van entre paréntesis porque la especie se describió en el mismo género en que hoy se clasifica: Lesson la nombró Polyplectrum chalcurum, variante ortográfica de Polyplectron(Avibase; Beebe, 1922; del Hoyo et al., 1994). Beebe y el criadero Chintaguay incluyen el género en la subfamilia Argusianinae (Beebe, 1922; del Campo, 2006).
Delacour reconocía seis especies de Polyplectron, Johnsgard y el HBW, siete, y el libro del autor da nueve (ocho según versiones); la diferencia se debe, entre otras cosas, a que las formas de Hainan y de Borneo se traten como subespecies o como especies (del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). El libro del autor añade que las especies del género evolucionaron entre el Plioceno superior y el Pleistoceno medio, hace entre 5 y 1 millones de años (Hernández García, 2014).
Origen del nombre
La ficha original lo explica así: el nombre específico chalcurum hace referencia a la cola de esta ave, puesto que «chalkos» significa «cobre» y «oura», «cola». También fue denominado Chalcurus chalcurus (Beebe, 1922). (Hernández García, 2014)
Jobling da chalcurum como compuesto del griego khalkos, «bronce», y -ouros, «de cola» (oura, «cola»), mientras que Johnsgard y Beebe traducen la primera parte por «cobre» (de cola de cobre): las fuentes lo leen unas veces como bronce y otras como cobre, y de ahí los dos nombres, «cola de bronce» en inglés y la explicación de la ficha original (Beebe, 1922; Jobling, 2010; Johnsgard, 1986). El nombre genérico Polyplectron es, según Jobling, del griego polus, «muchos», y plēktron, «espolón de gallo»; Johnsgard lo glosa como «muchos» y «algo con que golpear», y el criadero Chintaguay recuerda que los espoloneros se llaman así porque los machos tienen dos, e incluso tres, pares de espolones (del Campo, 2006; Jobling, 2010; Johnsgard, 1986).
El género Chalcurus, hoy sinónimo de Polyplectron, se creó a partir del nombre de esta especie, y Beebe da como autor a Bonaparte (1854) y como especie tipo a C. chalcurus(Beebe, 1922; Jobling, 2010). El nombre manuscrito de Cuvier que cita Lesson, Polyplectrum inocellatus, significa «sin ocelos» (del latín in-, «sin», y ocellatus, «con ocelos») (Beebe, 1922; Jobling, 2010), y el nombre francés que dio Lesson, «éperonnier sans yeux», dice lo mismo («espolonero sin ojos») (Beebe, 1922). Para el epíteto de la subespecie del norte, scutulatum, Jobling da el latín scutulatus, «en forma de rombo» (de scutula, «figura romboidal»); ninguna fuente consultada dice a qué se refiere (Jobling, 2010).
Jobling recoge a Frederick Nutter Chasen (1897–1942), ornitólogo británico del Museo Raffles de Singapur, y a Andries Hoogerwerf (1907–1977), zoólogo y botánico neerlandés y colector en las Indias Orientales entre 1931 y 1958, como epónimos de otros nombres científicos; es muy probable que sean los autores que describieron la subespecie scutulatum, pero ninguna de las fuentes consultadas lo afirma expresamente (Jobling, 2010).
Nombres vernáculos
Idioma
Nombre
Comentario
Español
faisán pavo de Sumatra; espolonero de Sumatra; espolonero colibronceado; faisán de cola bronceada
Lesson describe Polyplectrum chalcurum en su Traité d’Ornithologie (entrega 7, p. 487), como «éperonnier sans yeux», sobre un ejemplar del Museo de París que dice proceder de Java; cita el nombre manuscrito de Cuvier Polyplectrum inocellatus. Delacour escribe la atribución como «Cuv.» Lesson (Avibase; Beebe, 1922; Delacour, 1977).
Temminck, en las Planches coloriées (lámina 519), figura el mismo ejemplar como Polyplectron chalcurum, «éperonnier chalcure», y añade que M. Diard lo trajo de Sumatra (Beebe, 1922; Elliot, 1872).
Jardine copia la lámina de Temminck en su Naturalist’s Library, sin añadir nada, según Beebe (Beebe, 1922).
Bonaparte crea Chalcurus (1854), con C. chalcurus por especie tipo, y usa el nombre Chalcurus inocellatus (1856) (Beebe, 1922; Elliot, 1872).
Elliot, en su monografía, la llama «Sumatran Polyplectron», da como hábitat Sumatra y dice que nada se sabía de sus costumbres (Elliot, 1872).
Grant, en el Catalogue of Birds in the British Museum (vol. 22, p. 361), la cita como Chalcurus chalcurus(Beebe, 1922).
Beebe dedica a Chalcurus (dos especies, la de Sumatra y la de Malasia) un capítulo de su Monograph of the Pheasants y escribe Chalcurus chalcurus (Lesson) (Beebe, 1922).
Chasen y Hoogerwerf describen la subespecie scutulatum (localidad tipo Simpang Agoesan, Atjeh, norte de Sumatra) y fijan la localidad tipo de la forma nominal en Bankoelen (Bengkulu) (del Hoyo et al., 1994; Delacour, 1977).
Johnsgard no ve ventaja en mantener Chalcurus y la incluye en Polyplectron(Johnsgard, 1986).
Kimball y colaboradores publican la filogenia molecular de los espoloneros, que según Wikipedia la sitúa en un grupo con el espolonero de Rothschild, el de Germain y el gris (Wikipedia).
Sinonimia principal
Nombre
Autor y fecha
Polyplectrum chalcurum (protónimo)
Lesson, 1831; Traité d’Ornithologie, entrega 7, p. 487
forma nominal; Avibase la registra como sinónimo científico
Selección de la sinonimia de Beebe (1922) y de Avibase (Avibase; Beebe, 1922).
Posición dentro del género
Delacour descartó el género Chalcurus porque una de sus dos especies, el espolonero de Rothschild (P. inopinatum), es una forma intermedia entre la de Sumatra y la de Germain (Delacour, 1977). Johnsgard la considera la más generalizada de los faisanes pavo y juzga que su pariente más próximo es inopinatum; recuerda que Beebe enumeró ocho rasgos de plumaje y morfología por los que Polyplectron en sentido estricto se diferencia de Chalcurus, pero no ve ventaja en separar las dos formas más generalizadas del resto (Johnsgard, 1986). Madge y McGowan escriben que quizá esté muy emparentada con el espolonero de Rothschild, que tiene a la vez la cola estrecha de la especie de Sumatra y los ocelos de las demás (Madge y McGowan, 2002). El HBW anota que se incluyó antes en Chalcurus junto con inopinatum(del Hoyo et al., 1994).
Al carecer de ocelos, esta especie y el faisán pavo de Rothschild (Polyplectron inopinatum) fueron separadas durante buena parte del siglo XX en un género propio, Chalcurus, distinto del resto de faisanes pavo. Sin embargo, los estudios genómicos actuales indican que ambas especies no serían necesariamente las más emparentadas entre sí dentro del género Polyplectron —al que hoy han vuelto a integrarse—, y que la pérdida de los ocelos se habría producido de forma independiente (evolución convergente) en cada linaje. (Wikipedia)
El artículo vigente de Wikipedia detalla lo que sale de los datos moleculares de Kimball y colaboradores (2001): la especie forma un grupo con el espolonero de Rothschild y con los de Germain y gris, se habría separado de forma relativamente reciente de antepasados del gris, aunque con poca confianza, y habría evolucionado a partir de poblaciones continentales del sudeste asiático, probablemente entre el Plioceno tardío y el Pleistoceno temprano (hace entre 3,6 y 1 millones de años); la pérdida de los ocelos sería, por tanto, un rasgo propio de esta especie, y las dos formas antes separadas en Chalcurus probablemente no son parientes cercanas entre sí (Wikipedia).
Cómo se distingue de los demás faisanes pavo
Rasgo
Faisán pavo de Sumatra
Espolonero de Rothschild (P. inopinatum)
Otros espoloneros
Ocelos en manto y alas
Ninguno, en ninguno de los sexos
Pequeños, azules, en el macho; negros, en la hembra
Comparación elaborada con Delacour, Johnsgard, Madge y McGowan y Beebe. Beebe resume así las diferencias que veía entre Chalcurus y Polyplectron: Chalcurus no tiene cresta ni irisación en la cabeza, tiene los ocelos de cuerpo y alas poco desarrollados, las rectrices centrales sin ocelos o casi, el área facial desnuda muy pequeña y los dos sexos muy parecidos; Polyplectron tiene una cresta larga e iridiscente, ocelos de cuerpo y alas muy grandes y perfectos, ocelos desarrollados en las rectrices centrales, un área facial desnuda grande y los sexos muy distintos (Beebe, 1922).
03
Historia
De un ejemplar del Museo de París a las pajareras de Clères y a unas pocas colecciones actuales.
El faisán pavo de Sumatra se describió en 1831 a partir de un único ejemplar de museo, y las primeras aves vivas salieron de Sumatra solo en 1929 (Beebe, 1922; Delacour, 1977).
El ejemplar del Museo de París (1831)
El ejemplar que sirvió a Lesson era el mismo que, más tarde ese mismo año, Temminck figuró en sus Planches coloriées; Temminck añadió que M. Diard lo había traído de Sumatra, y no de Java, como había escrito Lesson (Beebe, 1922). Jobling anota a un Pierre Médard Diard (1795–1863), zoólogo francés al servicio de la Compañía Neerlandesa de las Indias Orientales entre 1825 y 1863, en el nombre de otras aves; no se afirma en las fuentes consultadas que sea la misma persona (Jobling, 2010). Delacour recoge que la localidad «Java» era un error y que Chasen y Hoogerwerf fijaron en 1941 la localidad tipo de la forma nominal en Bankoelen (Bengkulu), en el oeste de Sumatra (del Hoyo et al., 1994; Delacour, 1977). Avibase anota «Java = Sumatra» (Avibase).
Elliot cuenta que Temminck pensó que su ejemplar no había alcanzado todavía el plumaje completo, a pesar de los fuertes espolones, y que hoy se sabe que era adulto; de las costumbres del ave no sabía nada nadie, porque los naturalistas habían tenido muy pocas ocasiones de observarla (Elliot, 1872). Beebe escribía en 1922 que ningún observador europeo la había visto viva y que las pocas pieles que se conservaban procedían de aves que los nativos habían cazado con lazos cuando bajaban a las proximidades de sus aldeas en busca de comida; el interior de Sumatra había sido, además, muy descuidado por los zoólogos (Beebe, 1922).
Los primeros registros de campo
La sinonimia de Beebe permite seguir las citas del siglo XIX: el monte Singalan, en Sumatra occidental (Salvadori), los bosques de las cercanías de «Hoedjoeng» (Nicholson, 1883) y Padang (Büttikofer, 1887); la transcripción del OCR de algunos topónimos es dudosa (Beebe, 1922). Singalan es probablemente el mismo monte que el Gunung Singgalang que BirdLife recoge hoy como zona importante para la especie (Beebe, 1922; BirdLife DataZone). Beebe resume que se la había observado y colectado a unos 3.000 pies de altitud o más (unos 910 m) (Beebe, 1922).
Las primeras aves vivas (1929–1940)
Delacour cuenta que la primera ave que salió de Sumatra, una hembra, llegó a Marsella en 1929 y fue adquirida por la señora Lecallier. Al año siguiente W. Frost llevó dos parejas a Clères; una de ellas pasó luego a la colección del profesor Ghigi, en Bolonia, donde, según un pasaje de lectura dudosa, no vivió mucho. La otra pareja pasó el invierno en un compartimento caldeado, y la hembra no puso en primavera. Al invierno siguiente estuvo en un cobertizo sin calefacción, y en la primavera de 1932 se la trasladó a un gran vuelo plantado en el que ya vivían argus crestados, algunas tórtolas y aves pequeñas. A principios de mayo se vio al macho de argus comerse un huevo de la hembra, pero el día 15 se la encontró incubando en una cesta colgada a gran altura en la pared del refugio. Se retiraron los dos huevos y se pusieron a una gallina bantam: solo uno era fértil y eclosionó a los 22 días más o menos. La hembra volvió a poner el 1 de junio y dio dos pollos; la tercera puesta fue infértil (Delacour, 1977).
Los pollos se criaron fácilmente, con los mismos cuidados y alimentos que los demás espoloneros, y en Clères se criaron muchos más hasta 1940; Delacour añade que, en el texto consultado, no quedaba ninguna ave de la especie en Europa ni en América, lo que lamenta, porque le parece un ave graciosa y encantadora a pesar de su plumaje sombrío (Delacour, 1977). Delacour no sabe con certeza si las aves de Clères eran de la subespecie del sur o de la del norte, y supone que probablemente eran de la del sur (Delacour, 1977). En su manual de cría anota que la especie se importó y se crio en Europa desde 1932 (Delacour, 1978). Roles escribe también que se importó por primera vez a Europa en 1929 y que se mantuvo y crio con regularidad antes de la guerra (Roles, 1976).
La especie en las colecciones a partir de los años setenta
Roles señalaba hacia 1976 que quedaban en cautividad muy pocos ejemplares, unos pocos en Estados Unidos y algunos en los Países Bajos. El doctor Vallen, de los Países Bajos, solo conservaba una hembra de su plantel original y la cruzó con un macho de espolonero gris, con el que obtuvo siete pollos en dos años; después consiguió dos machos puros capturados en libertad, uno de los cuales pensaba emparejar con la hembra (Roles, 1976). Howman escribía, en la primera edición de su obra (1979), que era propietario de la única pareja que había en Inglaterra, y que Charles Sivelle había importado en Estados Unidos, en años recientes, varias parejas que criaban bien (Howman, 1979). En la edición revisada (1993) anota que desde entonces la especie se había difundido más por Europa y por Estados Unidos y que había varias parejas en el Reino Unido, aunque seguía siendo escasa (Howman, 1993). Las fuentes consultadas no precisan cuándo ni de dónde llegaron las aves de esta nueva introducción.
Los estudios de campo
Johnsgard (1986) escribe que la especie, poco estudiada, no se había investigado con detalle en el campo; el HBW (1994) no tenía datos de la reproducción ni de los movimientos en libertad (del Hoyo et al., 1994; Johnsgard, 1986). Madge y McGowan citan a Delacour, Johnsgard, MacKinnon y Phillipps (1993) y McGowan y Garson (1995) (Madge y McGowan, 2002). BOW, en cambio, recoge un nido en libertad, con dos huevos, hallado en septiembre (BOW, 2020). BirdLife, que no dispone de una cifra de población, infiere la tendencia a partir de la pérdida de cobertura forestal en el área de la especie (BirdLife DataZone).
Cronología
Lesson describe Polyplectrum chalcurum sobre un ejemplar del Museo de París; Temminck lo figura ese año (Beebe, 1922; Delacour, 1977).
El plan de acción de los faisanes la califica de riesgo menor (preocupación menor) (Fuller y Garson, 2000).
BirdLife la evalúa como de preocupación menor, con tendencia decreciente sospechada (BirdLife DataZone).
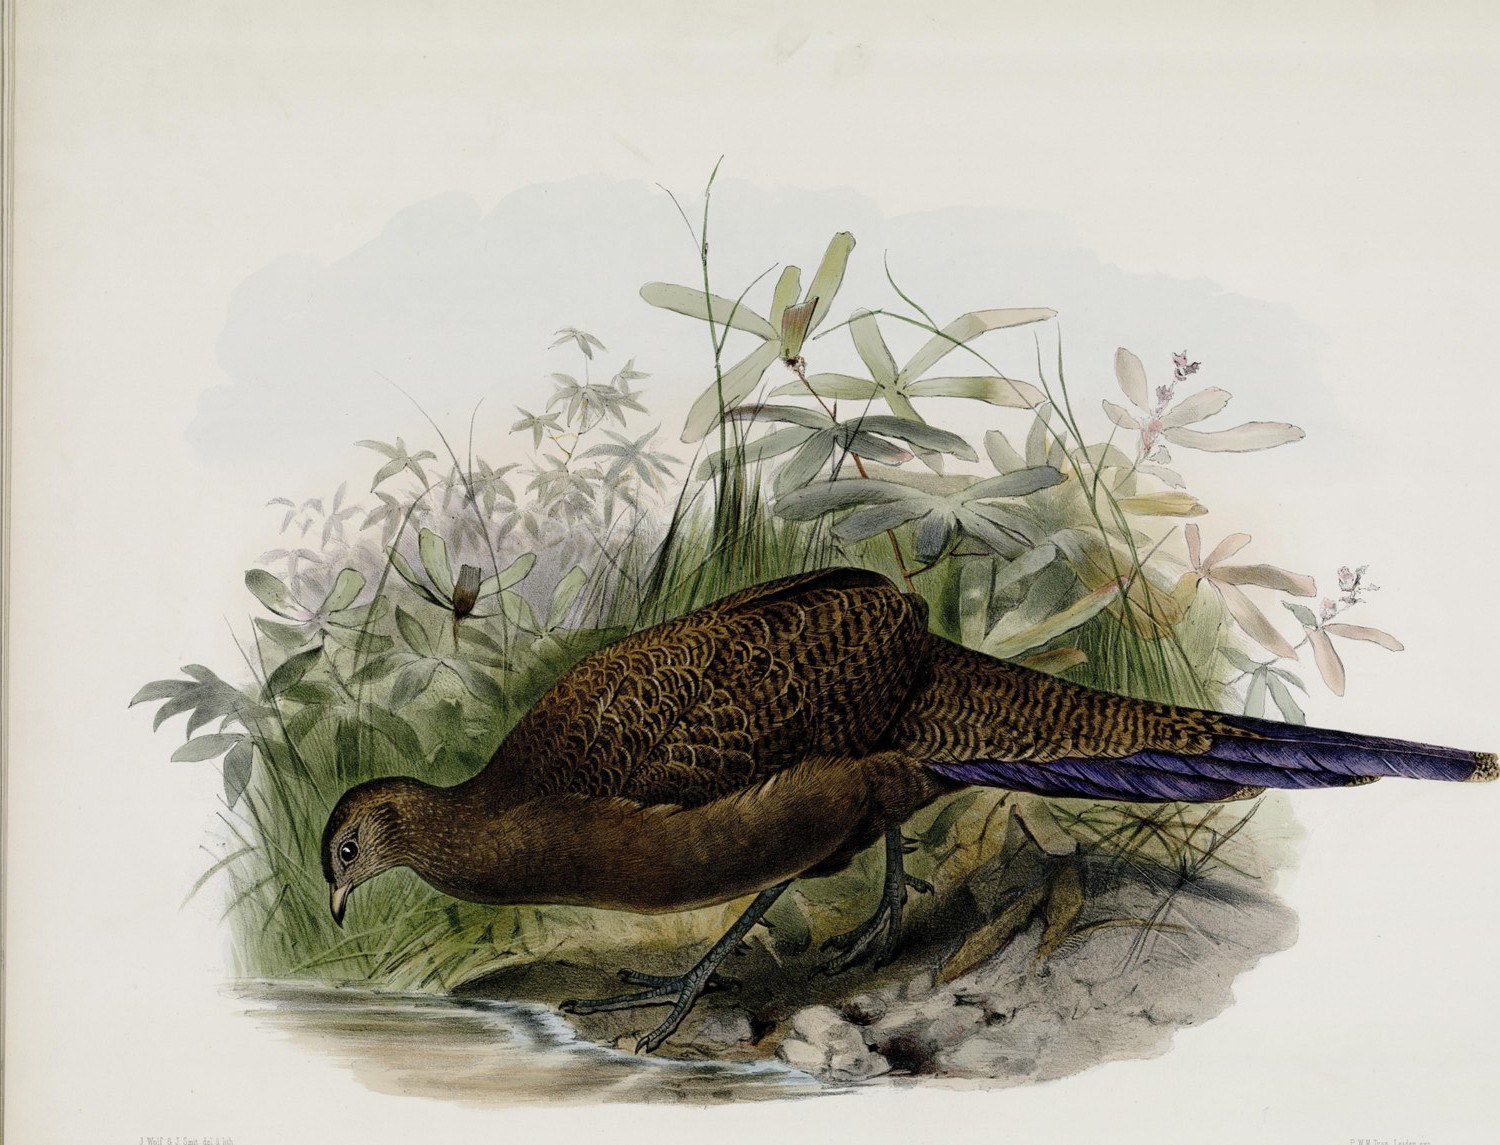
La lámina de la Monograph of the Phasianidae (1872) lleva el rótulo «Polyplectron chalcurum» y el título «Sumatran Polyplectron»; muestra un ave junto al agua, entre la hierba y las plantas de un arroyo (Elliot, 1872). Se reproduce aquí tal como aparece en el ejemplar digitalizado. Véase Daniel Giraud Elliot.
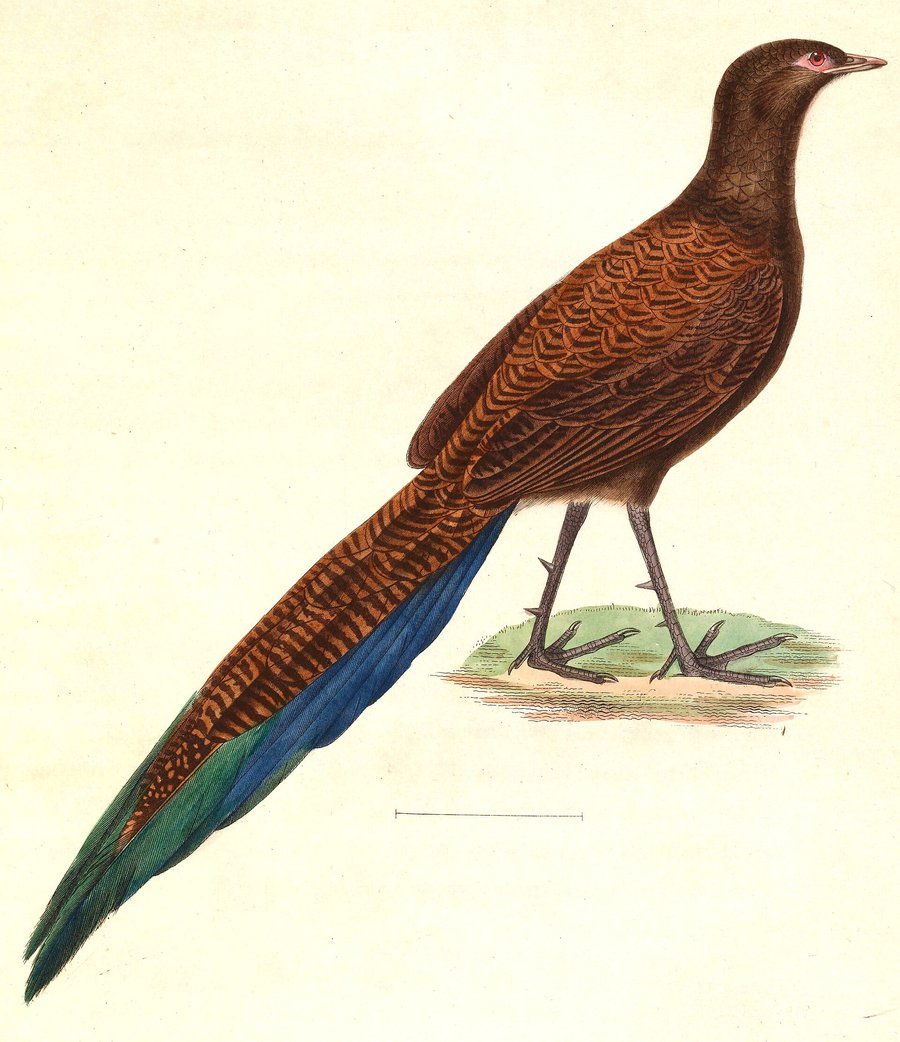
La lámina 519 del Nouveau recueil de planches coloriées d’oiseaux, de Temminck y Laugier (1831), con dibujos de Nicolas Huet y Jean-Gabriel Prêtre, muestra al macho con el nombre Polyplectron chalcurum. Véase Coenraad Jacob Temminck.
«Polyplectron chalcurum», macho; lámina 519 del Nouveau recueil de planches coloriées d’oiseaux (1831) de Temminck y Laugier, con dibujos de Huet y Prêtre. Wikimedia Commons, <a href="https://commons.wikimedia.org/wiki/File:Polyplectron_chalcurum_1838.jpg" target="_blank" rel="noopener">Polyplectron chalcurum 1838.jpg</a>; dominio público.
04
Morfología y plumajes
Un faisán pardo castaño, sin cresta ni ocelos, con una cola estrecha y de reflejos violeta.
El faisán pavo de Sumatra es un ave pequeña de plumaje pardo castaño y oscuro, de cabeza pequeña y sin cresta, con una cola larga, graduada y puntiaguda cuyas franjas y parches metálicos violeta sustituyen a los ocelos de los demás espoloneros (Delacour, 1977; Madge y McGowan, 2002; Wikipedia).
El macho
♂ El macho es uno de los faisanes más pequeños. Además, es el único de los faisanes pavo que carece de ocelos. Su plumaje es básicamente marrón, con líneas más oscuras; el pico es oscuro y las patas son grises. En la cola destaca el color azul metálico. (Hernández García, 2014)
Delacour describe la cabeza y el cuello de un pardo terroso, con la garganta moteada de blanco sucio; las partes superiores, de un pardo castaño con barras negras estrechas e irregulares; las primarias, de un pardo oscuro uniforme; las supracaudales, largas y como el dorso; y las rectrices, castañas con barras negras que, a cierta distancia de la base, se ensanchan y se vuelven de un violeta purpúreo metálico, primero en las barbas externas y más arriba en las internas, hasta fundirse en parches continuos cerca de la punta, que es siempre de un pardo oscuro moteado de gris leonado; esas barras y parches metálicos representan los ocelos de las demás especies. Las partes inferiores son de un pardo oscuro con una barra negruzca tenue, y las infracaudales llevan barras claras (Delacour, 1977; Johnsgard, 1986). Roles lo describe de forma parecida, con la cabeza y el cuello de un pardo uniforme y la garganta moteada de blanco, y las barras de la cola de un negro purpúreo con iridiscencia violeta azulada (Roles, 1976). Madge y McGowan añaden que las supracaudales son tan largas que cubren al menos el tercio basal de la cola, que las partes superiores son pardo castaño con un barrado fino e irregular salvo en las primarias, y que las infracaudales tienen un barrado más marcado (Madge y McGowan, 2002).
Beebe, que describe pieles de museo, ve la cabeza y el cuello de un pardo negruzco oscuro, con la cara, la barbilla y la garganta más grises y una pequeña mancha subterminal en cada pluma de la garganta; la nuca, el manto superior y todas las partes inferiores, de un pardo chocolate muy oscuro y brillante, con barras casi obsoletas y, con buena luz, un tinte violeta; en el manto, una o dos manchas claras separadas, en el eje de la pluma. Hacia atrás, en las partes superiores, el ala y la cola aparecen barras negras (tres o cuatro en el centro del dorso, dos en las coberteras menores y de seis a nueve en las más largas) sobre un fondo pardo rojizo apagado; y en las coberteras y hasta la rabadilla, ocelos claros y negros bien desarrollados en la parte central de las plumas, que quedan ocultos (Beebe, 1922).
La cola y el espolón
La cola consta de 16 plumas, estrechas, puntiagudas y muy graduadas, y no se puede abrir en abanico; Delacour la compara, por su forma, con la de las hembras de los faisanes de gorguera y de los faisanes comunes, y observa que las aves la llevan muy apretada (Beebe, 1922; Delacour, 1977; Madge y McGowan, 2002). Beebe dice, de las aves que examinó, que la zona metálica es mayor que en cualquier otro Polyplectron o Chalcurus, pero no se separa nítidamente de las barras rojizas y negras; es menor en las rectrices centrales y, en las laterales, ocupa la mayor parte de la barba externa y más de la mitad de la interna; hacia la luz es de un violeta brillante, y de espaldas a ella, de un verde brillante (Beebe, 1922). Las fuentes no coinciden en qué barba predomina el color metálico:
Fuente
Zona metálica de la cola
Delacour (1977) y Johnsgard
barras violeta purpúreo que se ensanchan a cierta distancia de la base, primero en las barbas externas y más arriba en las internas, y se funden en parches cerca de la punta (Delacour, 1977; Johnsgard, 1986)
Madge y McGowan
franjas negras que se vuelven violeta purpúreo y se funden en grandes áreas sobre gran parte de las barbas internas, y menos sobre las externas (Madge y McGowan, 2002)
Beebe (1922)
en las rectrices laterales, la mayor parte de la barba externa y más de la mitad de la interna; menor en las centrales (Beebe, 1922)
Elliot (1872)
las rectrices centrales, pardo oscuro moteado de leonado hasta unos 5 cm de la punta; luego, de un púrpura brillante cambiante, y las barbas externas de las laterales, de púrpura que cambia al azul (Elliot, 1872)
Roles (1976)
barras negro purpúreas con iridiscencia violeta azulada, que forman parches sólidos hacia la punta (Roles, 1976)
En cuanto a los espolones, Madge y McGowan dan dos al macho y ninguno a la hembra; Beebe contó dos en cada pata en casi todas sus aves, y cinco en una; Johnsgard, que habla del género, da de uno a tres (Beebe, 1922; Johnsgard, 1986; Madge y McGowan, 2002). El macho de primer año solo tiene los espolones esbozados (Delacour, 1977; Madge y McGowan, 2002).
Partes blandas
Las fuentes no coinciden en el color del iris del macho:
Parte
Delacour y Johnsgard
Madge y McGowan, BOW, Wikipedia
Beebe
Roles
Ficha original
Iris (macho)
pardo oscuro
amarillo
pardo oscuro, tizne
pardo oscuro
amarillo
Iris (hembra)
—
pardo oscuro
—
—
marrón oscuro
Pico
negro grisáceo
negro grisáceo
—
negro grisáceo
oscuro
Patas
negro grisáceo
negro grisáceo
de color cuerno azulado desvaído
negro grisáceo
grises
Cara
casi emplumada, sin piel desnuda visible alrededor del ojo
—
zona desnuda muy pequeña en el adulto y ninguna en el pollo
La hembra se parece al macho, pero es notablemente más pequeña, de cola mucho más corta y sin espolones, mientras que el macho tiene dos (BOW, 2020; Madge y McGowan, 2002). Delacour la describe con la cola y las patas mucho más cortas; según Madge y McGowan, la zona metálica de la cola llega más cerca de la punta, y en su lámina las franjas violeta azuladas de las plumas más externas aparecen muy reducidas (Delacour, 1977; Madge y McGowan, 2002). Elliot añadía que los sexos solo se distinguen porque la hembra tiene la cola algo más corta y menos brillante (Elliot, 1872). Para Beebe, la barbilla y la garganta están más claramente marcadas de blanco, con aspecto de rayas, y la coronilla y la cara están también estriadas, aunque menos; las marcas del dorso son más irregulares y están menos barradas que incluso en el macho joven, aunque se aprecia en todas partes el dibujo de barras alternas negras y castaño oscuro (Beebe, 1922). Para él, la cabeza y el cuello son de un gris pardo oscuro, no pardo negruzco (Beebe, 1922). Roles dice que las hembras son más pequeñas y apagadas, con la cola y las patas proporcionalmente más cortas (Roles, 1976).
Juvenil y macho de primer año
El juvenil recuerda a la hembra adulta, aunque más pálido y rojizo, con menos tono azul purpúreo en la cola, más corta; en el macho de primer año los reflejos iridiscentes pueden alcanzar la punta de la cola y empiezan a aparecer los espolones. (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002)
Delacour describe al macho de primer año parecido al adulto, pero con la cola más corta y con los parches metálicos alcanzando a menudo la punta de las rectrices, y los espolones apenas indicados; el inmaduro, ligeramente más claro y rojizo, con poco o nada de azul en la cola (Delacour, 1977; Johnsgard, 1986). Beebe añade que en el macho de primer año los ocelos de las plumas apenas se han formado, las barras negras del dorso y de las alas son más irregulares y moteadas, y el color metálico, si acaso, está aún más desarrollado que en los machos viejos, hasta casi la punta de las plumas; midió en un macho de primer año un ala de 155 mm, una cola de 215 mm y un tarso de 63 mm (Beebe, 1922).
Polluelo
Los pollos tienen el plumón pardo negruzco por encima y pardo amarillento por debajo. (BOW, 2020) Delacour y el HBW coinciden en lo esencial: pardo negruzco por encima y pardo leonado por debajo, y Delacour añade dos bandas de un leonado intenso a lo largo del dorso (del Hoyo et al., 1994; Delacour, 1977). El plumón de los espoloneros, en general, recuerda al del argus, con la corona y las partes superiores de color castaño rico, y la frente y la cara más claras; el de esta especie es, dice Delacour, muy oscuro (Delacour, 1977).
Muda
Beebe señala que el género Chalcurus coincide con los otros tres géneros de la subfamilia Argusianinae en la muda de la cola y en el número de huevos (Beebe, 1922). Johnsgard describe la muda de la cola de Polyplectron: empieza por la tercera pluma contando desde el par central y avanza hacia fuera y hacia dentro, y los pares segundo y primero mudan entre los pares cuarto y quinto, y quinto y sexto (Johnsgard, 1986). No se encuentra en las fuentes consultadas la época de la muda de esta especie.
Aspecto general
Madge y McGowan la describen como un faisán elegante y bastante pequeño, de un pardo rojizo oscuro, de cola larga, graduada y barrada; es inconfundible dentro de su área y se delata sobre todo por la llamada del macho, que se oye de lejos (Madge y McGowan, 2002). Delacour dice que se parece, en la forma y en los movimientos, a las hembras del faisán dorado, y que la sombría librea no le resta gracia (Delacour, 1977). Johnsgard indica que en el campo mide entre 14 y 22 pulgadas (unos 36–56 cm) y que se identifica por el pardo castaño general sin ocelos y la cola puntiaguda (Johnsgard, 1986). Elliot la califica de «Polyplectron» de colores sencillos, apartado en cierto modo del resto del género, que carece de las brillantes manchas de colores cambiantes de sus parientes (Elliot, 1872).
05
Medidas y peso
Los datos de la guía original, contrastados con la literatura.
Según la tabla, el macho alcanza una longitud de 56 cm y un peso de entre 425 y 590 g, frente a los 40 cm y los 238-269 g de la hembra. Las alas miden entre 16 y 19 cm en el macho y 15 cm en la hembra; la cola, entre 26 y 38 cm en el macho y 22 cm en la hembra, y el tarso, 6,5 cm y 5,5 cm, respectivamente. (Hernández García, 2014)
Macho ♂Hembra ♀
Longitud
♂56 cm.
♀40 cm.
Alas
♂16–19 cm.
♀15 cm.
Cola
♂26–38 cm.
♀22 cm.
Tarso
♂6,5 cm.
♀5,5 cm.
Peso
♂425–590 g.
♀238–269 g.
Tamaño frente al resto de la colecciónlongitud total del macho · 51 especies
Faisán pavo de Sumatra · 56 cm
050100150200 cm
Medidas según distintas fuentes
Birds of the World da al macho unos 56 cm de longitud total, una cola de 26 a 38 cm y un peso de entre 370 y 590 g, y a la hembra unos 40 cm, una cola de 18 a 22 cm y un peso de entre 238 y 269 g (BOW, 2020; del Hoyo et al., 1994). Las longitudes coinciden con la tabla de la web; los pesos de la tabla, que eran de 600 g en el macho y de 300 g en la hembra y superaban los intervalos conocidos, se han sustituido por los de las fuentes, y la cola de la hembra (22 cm en la tabla) coincide con el extremo superior del intervalo (BOW, 2020; Hernández García, 2014). Los pocos pesos que se conocen son de aves cautivas: dos machos de 425 y 590 g y cuatro hembras de entre 238 y 269 g, con una media de 251 g (D. Rimlinger, según Johnsgard) (Johnsgard, 1986; Madge y McGowan, 2002).
Beebe midió muy pocas pieles de museo, con la cola en mal estado, por lo que su cola de 24 cm queda por debajo del intervalo que dan los demás autores (Beebe, 1922).
El faisán pavo de Sumatra entre los espoloneros
Especie
Longitud ♂
Longitud ♀
Cola ♂
Cola ♀
Peso
Sumatra (P. chalcurum)
c. 56 cm
c. 40 cm
26–38 cm
18–22 cm
♂ 370–590 g; ♀ 238–269 g
Rothschild (P. inopinatum)
c. 65 cm
c. 46 cm
32–40 cm
22–27,5 cm
sin datos
Germain (P. germaini)
c. 56 cm
c. 48 cm
25–32 cm
22–25 cm
♂ 510 g; ♀ 397 g (una ave de cada)
Gris (P. bicalcaratum)
56–76 cm
48–55 cm
35–40 cm (bakeri)
23–25,5 cm (bakeri)
♂ 568–910 g; ♀ c. 460 g (bakeri)
Malayo (P. malacense)
c. 50 cm
c. 40 cm
24–25 cm
18–19 cm
c. 586–680 g (sin precisar sexo)
Borneo (P. schleiermacheri)
c. 50 cm
c. 35,5 cm
c. 20 cm
c. 15,5 cm
sin datos
Palawan (P. emphanum)
c. 50 cm
c. 40 cm
24–25 cm
16,5–17 cm
♂ c. 436 g; ♀ c. 322 g
Datos del HBW (1994). El peso de las especies con una sola ave o con pocas procede de aves cautivas (del Hoyo et al., 1994).
Huevos
Los huevos son de color blanco leonado, según Delacour, y miden unos 49 × 36 mm; y Johnsgard da el mismo valor y estima su peso fresco en unos 35 g; el libro del autor da 48 × 36 mm (Delacour, 1977; Hernández García, 2014; Johnsgard, 1986). Madge y McGowan los describen como blanco leonados, y BOW, como blanco amarillentos, quizá con alguna mancha (BOW, 2020; Madge y McGowan, 2002).
Las montañas de Sumatra, en bosques montanos bajos, inalterados o talados.
El faisán pavo de Sumatra vive en las montañas del oeste de Sumatra, en distintos tipos de bosque de media montaña, entre los 700 y los 1.600 m de altitud. En ocasiones se acerca a las zonas modificadas por el ser humano. (Hernández García, 2014)
Mapa de distribución. Pulsa para ampliar.
Área de distribución
La especie es endémica de Sumatra, y más en concreto de la cordillera Barisan, en el oeste de la isla (BirdLife DataZone; del Hoyo et al., 1994; Madge y McGowan, 2002). BirdLife calcula una extensión de presencia de 197.000 km², sin que se conozcan ni la superficie de ocupación ni si hay un descenso continuado de esa extensión; Indonesia es el único país de su distribución, de origen nativo y con presencia estacional de cría (BirdLife DataZone). El HBW incluye su área en una zona de aves endémicas, con la península malaya, por encima de los 600 m (del Hoyo et al., 1994). BOW la conoce de unas 30 localidades (BOW, 2020), y el HBW cita registros recientes en varios puntos del norte y del centro de la isla, desde Ketambe (Gunung Leuser) hasta el monte Kerinci, y la da por bastante común en algunas zonas, como las tierras altas de Padang (del Hoyo et al., 1994). Johnsgard recuerda que Sumatra cuenta con cinco especies de faisán, dos de ellas endémicas, esta y el faisán de Salvadori (Johnsgard, 1986).
Delacour sitúa la forma nominal en las montañas del sur de Sumatra, al sur del ecuador (monte Ophir), y la subespecie scutulatum en las del norte, al norte del ecuador, y precisa que los ejemplares de los montes Korinchi (Kerinci) son algo intermedios, aunque muchos se parecen a los del sur (Delacour, 1977). Roles describe las dos formas distribuidas sin interrupción por la cordillera central de la isla (Roles, 1976), y Avibase, siguiendo a Clements, da la nominal en las montañas del centro-oeste y suroeste, y scutulatum, en las del norte (Avibase). Johnsgard incluye un mapa de las dos subespecies (mapa 19) (Johnsgard, 1986).
Zonas importantes y espacios protegidos
Está presente en los dos grandes parques nacionales montanos de la isla: Gunung Leuser, en el norte (7.927 km²), y Kerinci Seblat, en el sur (15.000 km²); entre los dos cubrirían probablemente el 50 % de su hábitat, y hasta la mitad del hábitat adecuado goza de algún grado de protección, aunque la especie no está protegida por la legislación indonesia (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002). BirdLife recoge siete zonas importantes (IBA/KBA) para la especie, con una superficie total de 26.813 km² y un 68,74 % de media dentro de áreas protegidas (BirdLife DataZone):
Zona importante (IBA/KBA)
% protegido
Última evaluación
Gunung Singgalang
41,65 %
2006
Kerinci Seblat
97,75 %
2023
Gunung Leuser
86,05 %
2006
Gunung Dempo
0 %
2006
Bukit Kaba
89,46 %
2006
Bukit Barisan Selatan
85,82 %
2006
Hutan Raya Bukit Barisan
80,48 %
2006
Todas se identificaron por los criterios A2 y A3 de las IBA (BirdLife DataZone).
altitudes a las que se la observó y se colectó (Beebe, 1922)
Conversión de pies a metros orientativa. Avibase resume el hábitat como bosque de colinas y montano bajo, incluido el talado, y no da altitud (Avibase).
Hábitat
Habita en bosques de montaña baja de distintos tipos, tanto inalterados como talados, e incluso en plantaciones de pinos y pequeños remanentes de bosque (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002). BirdLife considera la especie muy dependiente del bosque y clasifica como hábitat principal el bosque subtropical y tropical húmedo de montaña, y como hábitat adecuado, el de tierras bajas (BirdLife DataZone). Johnsgard lo describe como un ave de cobertura densa, a menudo en terreno muy montañoso (Johnsgard, 1986), y el HBW, como una especie que parece tolerar cierto grado de alteración del hábitat y que ocupa terrenos de montaña (del Hoyo et al., 1994). Beebe cuenta que alguna vez se acerca a las aldeas apartadas, donde la cazan con lazos (Beebe, 1922).
Madge y McGowan estiman que su hábitat, en general, es bastante seguro, aunque la ocupación humana avanza y puede expandirse con rapidez en algunas zonas (Madge y McGowan, 2002).
Movimientos
No hay datos sobre movimientos migratorios: ante el peligro, las aves prefieren escabullirse entre la maleza (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002). Johnsgard considera muy improbable que haya movimientos significativos, dada su distribución ecuatorial (Johnsgard, 1986). BirdLife la clasifica como especie no migratoria (BirdLife DataZone).
Otras aves de Sumatra
Delacour, que reconoce dos especies de Polyplectron en Sumatra, explica que una vive a menor altitud y la otra más arriba, con poco o ningún solapamiento; el HBW anota que el espolonero malayo se ha incluido tradicionalmente en la fauna de Sumatra, pero que no hay pruebas de ello (del Hoyo et al., 1994; Delacour, 1977).
07
Comportamiento y voz
Un ave tímida, silenciosa y huidiza, de la que se sabe sobre todo por las aves cautivas.
Madge y McGowan la describen como tímida y esquiva, muy cautelosa y propensa a escabullirse entre la maleza a la menor señal de peligro, y de hábitos casi desconocidos, porque rara vez se la ve (BOW, 2020; Madge y McGowan, 2002). En cautividad Delacour la ve tranquila y mansa, con la costumbre de pasar mucho tiempo sobre las perchas, y sin que pelee nunca con otras aves; parecida a las hembras del faisán dorado en la forma y en los movimientos, lleva la cola muy pegada (Delacour, 1977). Johnsgard añade que las aves cautivas son muy reservadas y pasan la mayor parte del tiempo bajo cubierta o en las perchas (Johnsgard, 1986). Roles recoge la opinión del doctor Vallen, que las mantuvo y crio durante años: las considera aves simpáticas, siempre juntas y muy silenciosas (Roles, 1976). Johnsgard no tiene datos de competidores ni de depredadores; la considera, por su pequeño tamaño, probablemente dominada por cualquier otro faisán con el que se encuentre (Johnsgard, 1986).
Organización social
No hay información de aves silvestres. Se presume monógama por el escaso dimorfismo sexual (BOW, 2020; Johnsgard, 1986; Madge y McGowan, 2002), pero Johnsgard, a la vista del escaso dimorfismo y de la sencillez del cortejo, juzga posible que haya como mucho un grado limitado de apareamiento no monógamo; tampoco se ha descrito un canto territorial ni cualquier otro comportamiento de anuncio de territorio (Johnsgard, 1986). Delacour escribe, del género, que los machos son monógamos, que los espoloneros no son sociables y que viven solos, en parejas o en familias, y que la pareja debe aislarse, aunque en muy contadas ocasiones se han mantenido tríos (Delacour, 1977). Johnsgard cree que probablemente vive en pareja o, como mucho, en grupos familiares (Johnsgard, 1986). En cautividad, la ficha original indica que el macho puede ser muy agresivo con la hembra (Hernández García, 2014).
La voz
Las fuentes dan descripciones distintas del reclamo del macho, que se oye poco:
Sonido
Descripción
Fuente
Reclamo del macho en libertad
un «karau» repetido, fuerte, áspero y que se oye de lejos, con una segunda nota algo más aguda
Johnsgard cuenta que, según Rutgers y Norris (1970), los machos tienen un reclamo fuerte y bastante áspero, aunque Delacour dijo que nunca les oyó otra cosa que un gorjeo y un «pitt» repetido (Johnsgard, 1986). En el género, Delacour anota que los reclamos de doble nota de algunos espoloneros, como el de Sumatra y el de Palawan, se parecen a los de los faisanes de gorguera (Delacour, 1977).
Frutos pequeños e insectos en libertad; pienso de faisán con proteína extra en pajarera.
En su hábitat natural, la dieta se reparte a partes iguales: un 50 % de alimento vegetal (frutas, semillas, etc.) y un 50 % de alimento animal (insectos, gusanos, etc.). (Hernández García, 2014)
En libertad
La información sobre la dieta silvestre es escasa. Varios buches examinados contenían pequeños frutos e insectos, y no se dispone de más datos. Esta fuente no recoge el reparto porcentual entre alimento vegetal y animal que indica el texto de la web. (BOW, 2020; del Hoyo et al., 1994) Beebe, que cita el examen de varios buches, no dio más detalles (Beebe, 1922; Johnsgard, 1986). Para el género, Roles apunta una alimentación omnívora de brotes tiernos, yemas, bayas, fruta caída, semillas e insectos (Roles, 1976). De los parientes cercanos, el HBW y Beebe citan, para el espolonero de Rothschild, arañas, termitas, larvas y el fruto de una palmera de ratán (Calamus) (Beebe, 1922; del Hoyo et al., 1994).
En cautividad
En cautividad, un buen pienso para faisanes es una buena opción para mantener a estas aves en buenas condiciones. Puesto que necesitan un aporte extra de proteínas, algunos criadores ofrecen pienso de perro troceado y gusanos de la harina, con la finalidad de suministrarlo. (Hernández García, 2014)
Howman recomienda la dieta normal de los faisanes más cacahuetes, fruta troceada, semillas y gusanos de la harina (Howman, 1979; Howman, 1993; Howman, 1996). En Clères, Delacour daba a los adultos grano, fruta, pasta de cría y un poco de carne cruda (Delacour, 1977). Para los espoloneros en general, Delacour recomienda grano, fruta, bayas y una pasta de cría o un pienso ricos, y observa que no aprecian el verde, como la hierba o la lechuga, y que les sienta bien algo de carne cruda troceada; Roles da como base un pienso de pavos reproductores, con fruta troceada y verdura, alimento insectívoro, huevo cocido, carne picada e insectos (Delacour, 1977; Roles, 1976). Johnsgard escribe que las crías comen una mezcla de los alimentos habituales de los faisanes, con insectos vivos como hormigas, pupas de hormiga y gusanos de la harina, y que rara vez comen verde (Johnsgard, 1986). Ninguna de las fuentes consultadas menciona el pienso de perro que cita el libro del autor.
09
Cortejo y exhibición
Una parada lateral sencilla, sin la gran exhibición de ocelos de los demás espoloneros.
El cortejo consiste en una parada lateral simple: el macho se aproxima, hincha las plumas del pecho y extiende el ala; después eleva parcialmente la cola y se inclina hacia la hembra para mostrarle sus encantos. (Hernández García, 2014)
La exhibición del género
Delacour explica que, en todos los espoloneros, el macho hace una exhibición lateral normal: camina con delicadeza alrededor de la hembra, le ofrece bocados y cloquea suavemente; las especies de cola ancha añaden a eso una exhibición frontal, con el cuerpo bajo sobre los tarsos doblados y el manto, las alas y la cola abiertos en un círculo plano cubierto de manchas iridiscentes (Delacour, 1977). Roles describe cómo el macho ofrece un bocado, lo suelta al acercarse la hembra y se queda inmóvil, agazapado, con el pecho en el suelo, la cabeza ladeada y las alas y la cola abiertas en un plano vertical, y añade que la forma más primitiva del género, la de Sumatra, se limita a una pose lateral en la que solo abre la cola y la inclina hacia la hembra (Roles, 1976).
La exhibición del faisán pavo de Sumatra
Al carecer de ocelos, solo puede exhibir las franjas violeta de la cola. Delacour describe una exhibición lateral en la que la cola se abre solo en parte, en un plano vertical, para enseñar el púrpura metálico (Delacour, 1977). Roles precisa que el macho rodea a la hembra con la cola horizontal pero con las plumas giradas casi a un plano vertical, de forma muy parecida a un macho de faisán dorado (Roles, 1976). Madge y McGowan, y BOW, dicen que el macho abre en parte las alas y la cola, levanta esta en vertical y la retuerce hacia la hembra (BOW, 2020; Madge y McGowan, 2002).
Johnsgard observó varias veces la exhibición de un macho en el zoo de San Diego, junto con Kenneth Fink: el macho se acercaba a la hembra, que quedaba oculta por la vegetación, se detenía, aleteaba un momento, bajaba el ala más próxima a la hembra de modo que las primarias rozaran el suelo y se quedaba inmóvil; la cola no se levantaba ni se inclinaba, y el único sonido era un siseo con un chasquido al final; además, el macho repitió la exhibición casi siempre en el mismo lugar (Johnsgard, 1986). Las observaciones de aves cautivas de Davison, que Johnsgard cita, indican una postura lateral con el ala más próxima baja y una leve inclinación de la cola; otras conductas del macho son erizar las plumas de la cabeza y del pecho, una carrera agazapada hacia la hembra, el balanceo de la cabeza (que también hacen las hembras) y un «arrastre» entre el aleteo y la postura lateral; la cópula se produce sin una exhibición elaborada (Johnsgard, 1986).
Sin ocelos, sin exhibición frontal
Este faisán pavo es una rareza dentro de su género: es el único Polyplectron que carece por completo de ocelos (los llamativos «ojos» metálicos que la mayoría de faisanes pavo despliegan frontalmente ante la hembra), lo que explicaría que su parada nupcial se limite al despliegue lateral simple descrito más arriba, en lugar del clásico despliegue frontal de ocelos de sus parientes. (Wikipedia)
Johnsgard vincula este comportamiento con la evolución del grupo: en el espolonero de Rothschild, forma intermedia, la exhibición conserva el aspecto lateral de la de Sumatra, pero empieza a usar los ocelos del dorso, y eso sería el precedente de la exhibición frontal de los espoloneros grises y sus parientes (Johnsgard, 1986).
Un solo nido silvestre conocido y una puesta de dos huevos que, en cautividad, se incuba en 22 días.
Se sabe muy poco sobre la reproducción de esta especie en su hábitat natural, por lo que buena parte de los datos de que se dispone se refieren a experiencias en cautividad. (del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986)
La reproducción en libertad es poco conocida. Un nido con dos huevos, hallado en septiembre, estaba al pie de un árbol, oculto entre macollas de hierba: una copa de unos 15 cm de ancho y 10 cm de profundidad, hecha con hojarasca seca marrón oscura y ramitas finas. Se presume la monogamia por el escaso dimorfismo sexual. En cautividad, el macho abre las alas y la cola parcialmente, la levanta en vertical y la retuerce hacia la hembra. (BOW, 2020)
El nido silvestre que cita BOW estaba al pie de un árbol, entre macollas de hierba: una copa de unos 15 cm de ancho y 10 cm de profundidad, de hojarasca marrón oscura y ramitas finas (BOW, 2020). En cautividad, la hembra de Clères hizo la puesta en una cesta colgada a gran altura en la pared de un refugio, y Roles anota que la especie se ha criado en una pequeña cesta de plantas fijada a una pared (Delacour, 1977; Johnsgard, 1986; Roles, 1976). Para los espoloneros en general, Howman y el criadero Chintaguay aconsejan nidos colgados a cierta altura, y no cajas en el suelo (del Campo, 2006; Howman, 1979; Howman, 1996).
Fuente
Tipo de nido
BOW (nido silvestre)
copa de hojarasca seca y ramitas, al pie de un árbol, oculta entre macollas de hierba (BOW, 2020)
Delacour (aves cautivas)
cesta colgada muy alta en la pared de un refugio (Delacour, 1977)
Roles (aves cautivas)
pequeña cesta de plantas fijada a una pared, a gran altura del suelo (Roles, 1976)
En libertad no hay datos fiables de la puesta, y se recurre a los de cautividad: dos huevos, con una incubación de 22 días (bajo una gallina bantam, según Delacour y Johnsgard); el macho, hasta donde se sabe, no interviene tras la fecundación (Delacour, 1977; Johnsgard, 1986). Beebe, que habla del género, anota que en el número de huevos concuerda con los otros tres géneros de su subfamilia (Beebe, 1922).
La hembra de Delacour puso dos huevos hacia el 15 de mayo de 1932, repitió el 1 de junio con otros dos y una tercera puesta resultó infértil (Delacour, 1977). Según Johnsgard, tras retirarle los huevos, la hembra volvió a poner en menos de un mes, y una tercera vez en la misma temporada (Johnsgard, 1986). Roles anota hasta cuatro puestas por temporada en las aves del doctor Vallen, y Howman, varias al año (Howman, 1979; Roles, 1976). Para el género, Delacour dice que lo normal son cuatro o cinco puestas, y que si se retiran los huevos, la hembra vuelve a poner en un par de semanas (Delacour, 1977). La ficha original dice que, si se retiran los huevos, la hembra puede llegar a realizar hasta 4 puestas (Hernández García, 2014).
Los polluelos
El plumón de los pollos se describe en el capítulo de morfología; los detalles de su cría y su alimentación en cautividad, en el capítulo siguiente. No hay datos del desarrollo de los pollos en libertad (BOW, 2020; del Hoyo et al., 1994).
11
Cría en cautividad
Tranquila y fácil de mantener, pero frágil, necesitada de abrigo en invierno y exigente con la crianza de los pollos.
En cautividad el faisán pavo de Sumatra es tranquilo y de manejo relativamente fácil, pero exige abrigo en invierno, una instalación amplia y arbolada y mucha atención a la crianza de los pollos (Delacour, 1977; Hernández García, 2014; Howman, 1993).
Instalaciones y carácter
Los faisanes pavo de Sumatra son monógamos. El macho puede ser muy agresivo con la hembra, de modo que, para obtener buenos resultados, es necesaria una instalación bastante grande (2 × 4 m) y arbolada, en la que ella pueda refugiarse y no se sienta acosada. (Hernández García, 2014)
Además, hay que evitar en todo momento el frío intenso, ya que se trata de una especie que habita zonas cálidas; incluso es recomendable disponer de calefacción en invierno. (Hernández García, 2014)
El libro del autor da la superficie en metros (2 × 4 m, es decir, unos 8 m²); Howman recomienda al menos 100 pies cuadrados (9,3 m²) (Hernández García, 2014; Howman, 1979; Howman, 1993). Howman anota, además, que en invierno es necesario el calor (Howman, 1979; Howman, 1993; Howman, 1996). Delacour la considera tranquila y mansa, sin conflictos con otras aves, y no difícil de mantener ni de criar, bastante resistente, pero señala que hay que protegerla del frío extremo, porque los pies tienden a helarse (Delacour, 1977). En Clères, el macho de argus crestado con el que compartió el vuelo en 1932 se comió un huevo de la hembra (Delacour, 1977). Para los espoloneros en general, Delacour recomienda una pajarera pequeña con buena cama y un pequeño refugio con calefacción de aceite o eléctrica solo en caso de frío intenso, y cada pareja aislada; no aconseja asociarlos con el argus, que acaba por perseguirlos (Delacour, 1977). Roles anota que los machos del género son muy agresivos entre sí y pueden pelearse a través de la malla, por lo que conviene separar con paneles macizos a los vecinos de la misma especie; el doctor Vallen mantenía a sus aves en pajareras de 20 × 7 pies (unos 6 × 2 m), con refugios a los que se encerraba a las aves en caso de nieve y de frío extremo (Roles, 1976).
Recomendación editorial: aunque las aves puedan criar en su primer año, conviene reservar las parejas de cría para ejemplares de dos años o más, y asegurar que las hembras no se sientan acosadas por el macho.
Cortejo y puesta
Tras la cópula, la hembra pone 2 huevos (48 × 36 mm) y, si estos se retiran, puede llegar a realizar hasta 4 puestas. (Hernández García, 2014)
Delacour y Roles registran puestas de la especie en cestas colgadas a cierta altura (Delacour, 1977; Roles, 1976). Delacour apunta que los espoloneros empiezan a poner a principios de marzo, y el libro del autor y el criadero Chintaguay dan enero como comienzo de la puesta en el hemisferio norte (del Campo, 2006; Delacour, 1977; Hernández García, 2014).
Las hembras suelen ser buenas incubadoras; por ello, y debido a la fragilidad de la especie y a lo complicado que resulta verlos en cautividad, es aconsejable utilizar este método para evitar riesgos. Se incuba a 37,7 °C y con un 55 % de humedad (3 × 5 m), aunque la cría artificial no presenta demasiados problemas. (Hernández García, 2014)
Delacour retiró los huevos a la hembra y los puso a una gallina bantam, y Johnsgard anota que la incubación bajo bantam es de 22 días (Delacour, 1977; Johnsgard, 1986). Delacour y Roles advierten de que los huevos de los espoloneros no se conservan bien y hay que ponerlos a incubar pronto: Roles señala que la viabilidad de los huevos de Polyplectron parece disminuir más deprisa que la de otros géneros, y recomienda ponerlos a incubar cuanto antes, ya sea bajo una bantam o en incubadora (Delacour, 1977; Roles, 1976). La pauta de incubación artificial para casi todos los faisanes del criadero Chintaguay, medida siempre «a la altura media del huevo», es la siguiente (del Campo, 2006):
Fase
Valor recomendado
Conservación de los huevos antes de incubar
13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo
Cuándo empezar a incubar
Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo
Precalentamiento
6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación
Temperatura
37,5 °C durante toda la incubación, hasta que el pollo se seca (el libro del autor da 37,7 °C para esta especie)
Humedad relativa
55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo (el libro del autor da el 55 % para esta especie)
Volteo
3 o 4 veces al día, hasta tres días antes de la eclosión
Últimos tres días
Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora
Duración (faisán pavo de Sumatra)
22 días en todas las fuentes (20–22 en la tabla de incubaciones del libro del autor)
Después de nacer
24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días)
Los pollos de faisán pavo de Sumatra son bastante activos y algo tímidos. Como se trata de una especie que necesita un aporte extra de proteínas, es necesario ofrecerles gusanos de la harina y, por supuesto, es importante enseñarles bien a comer, por lo que la opción de la incubación artificial supone un reto y una exigencia extra para el criador. (Hernández García, 2014)
Delacour cuenta que los pollos de Clères se criaron fácilmente y necesitaron los mismos cuidados y alimentos que los de otros Polyplectron(Delacour, 1977). Para los espoloneros en general, Delacour explica que los pollos buscan refugio bajo la cola de la madre y solo comen de su pico, y que si los cría una gallina bantam esta debe ser una gallina tranquila y ligera; si no, hay que alimentarlos a mano al principio, con insectos en la punta de una aguja o de unas pinzas; da buen resultado, añade, juntarles uno o dos pollos de faisán dorado para que les enseñen a comer, y es mejor no criar más de seis juntos (Delacour, 1977). Roles recomienda dar de comer a mano a los pollos durante los tres primeros días, aunque haya una gallina con ellos, ofreciendo cada dos horas, aproximadamente, gusanos de la harina pequeños o arañas; después de esos tres días, los pollos deberían picotear solos y responder a los reclamos de la gallina; recuerda que los pollos picotean antes los alimentos de colores, de modo que se pueden esparcir trozos de lechuga o migas de yema de huevo amarillas entre las migas grises; que aprenden imitando a otros pollos que ya comen solos, y que, como último recurso, se les puede dar de comer a la fuerza; y que la higiene es fundamental (Roles, 1976). Johnsgard indica que los pollos se han criado con facilidad, con la mezcla habitual de alimentos de los faisanes y con insectos vivos (Johnsgard, 1986).
No son fácilmente sexables hasta, por lo menos, las 25 semanas de edad. (Hernández García, 2014)
Johnsgard anota, además, que las aves alcanzan el plumaje adulto en el primer año (Johnsgard, 1986); el apartado de edad de cría muestra las discrepancias.
Pauta de calor para los pollos
Semana
Días
Temperatura
Dónde
1
1–2
36 °C
Nacedora
1
2–7
32 °C
Criadora
2
8–14
30 °C
Criadora
3
15–21
28 °C
Criadora
4
22–28
26 °C
Criadora
5
29–35
24 °C
Jaula de recría (calor solo de noche durante la primera semana)
6–8
36–56
sin aporte
Jaula de recría
Pauta general de calor suplementario del criadero Chintaguay para faisanes; lo decisivo es observar a las aves, y los pollos de los espoloneros requieren cuidados especiales en los primeros días (del Campo, 2006; Delacour, 1977; Roles, 1976).
La anilla
El libro del autor y Corder, que reproduce la tabla de anillas de Aviornis, dan para el faisán pavo de Sumatra un diámetro de 10 mm, el mismo que para los demás espoloneros (Corder; Hernández García, 2014).
Híbridos en la pajarera
El doctor Vallen, de los Países Bajos, solo tenía una hembra de su plantel original y la cruzó con un macho de espolonero gris (P. bicalcaratum): obtuvo siete pollos en dos años (Roles, 1976). Delacour anota que los espoloneros no parecen cruzarse con facilidad con otros galliformes, salvo los híbridos de gris por Germain, que son frecuentes (Delacour, 1977). La tabla de hibridación del criadero Chintaguay, que adapta la de Johnsgard (1999), no incluye a esta especie (del Campo, 2006).
Longevidad y datos de conservación en cautividad
No se ha encontrado en las fuentes consultadas un dato sobre la longevidad máxima. El libro del autor estima en unos 350 los ejemplares cautivos fuera de su hábitat natural, y Howman, en la edición de 1993, anota que en cautividad la especie sigue siendo escasa (Hernández García, 2014; Howman, 1993). La serie de datos históricos de población cautiva se reúne en el capítulo de conservación. Los datos de los censos de la WPA y de ZIMS se añaden después en bloques propios.
Cría para la conservación
El libro del autor sitúa a esta especie, en el reparto de programas de conservación ex situ de la EAZA del año 2000, en la categoría «no recomendado», que corresponde a especies que no precisan planes de conservación ex situ, porque sus ejemplares son insuficientes o inexistentes o muy abundantes (Hernández García, 2014). BirdLife anota que no es objeto de conservación ex situ y que no se ha reintroducido con éxito (BirdLife DataZone). Ninguna de las fuentes consultadas da más datos.
12
Estado de conservación
De casi amenazada a preocupación menor, con una población que nadie ha cuantificado.
LC
Preocupación menor
Población en descenso (tendencia sospechada). Región: Sudeste asiático.
LC
NT
VU
EN
CR
EW
EX
Preocupación menor
Casi amenazado
Vulnerable
En peligro
En peligro crítico
Extinto en la naturaleza
Extinto
Menor riesgoMayor riesgo
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La UICN la clasifica como de preocupación menor; la evaluación vigente es la de 2024, que sospecha una tendencia decreciente de la población (BirdLife DataZone).
La justificación de la categoría
La ficha original recoge la justificación de la UICN, que dice así:
No obstante, y a pesar de que la población parece tener una tendencia a disminuir, el descenso no se considera lo bastante rápido para acercarse a los umbrales de la categoría Vulnerable según el criterio de tendencia (una disminución superior al 30 % en diez años o tres generaciones). El tamaño de la población no se ha cuantificado, pero no se cree que se aproxime a los umbrales de la categoría Vulnerable según el criterio de tamaño (menos de 10.000 individuos maduros, con un descenso continuo estimado superior al 10 % en diez años o tres generaciones). Por estas razones, la especie se considera de preocupación menor. (BirdLife DataZone; Hernández García, 2014)
BirdLife añade que la especie tiene un área grande, que no se acerca al umbral de la categoría Vulnerable por el criterio del tamaño del área (una extensión de presencia de menos de 20.000 km², combinada con una disminución o fluctuación continuas, y con pocas localidades o una fuerte fragmentación) (BirdLife DataZone).
Cómo ha ido cambiando la valoración
Año
Fuente
Valoración
1922
Beebe
No hay valoración: la especie se conocía solo por pieles; ningún observador europeo la había visto viva (Beebe, 1922).
1986
Johnsgard
Probablemente poco molestada por el ser humano por su carne o sus plumas; su futuro depende de que se conserven zonas de bosque montano en Sumatra; mientras existan, no hay motivo de preocupación (Johnsgard, 1986).
BirdLife: riesgo menor / casi amenazada. El HBW: no globalmente amenazada; en la escala de Mace-Lande, vulnerable (BirdLife DataZone; del Hoyo et al., 1994).
1996
Howman
Casilla de categoría de amenaza: vulnerable (Howman, 1996).
2000
UICN (según BirdLife); Fuller y Garson
Riesgo menor / preocupación menor; el plan de acción la califica de preocupación menor (lc): área global bastante pequeña, pero en hábitats montanos de los que, hasta ahora, no se ha talado el bosque (BirdLife DataZone; Fuller y Garson, 2000).
2002
Madge y McGowan
Localmente no infrecuente, con registros recientes en varias zonas de gran parte de su área histórica; el hábitat es en general bastante seguro (Madge y McGowan, 2002).
2004–2024
UICN (según BirdLife)
Preocupación menor (LC), en todas las evaluaciones (BirdLife DataZone).
El historial en la Lista Roja, según BirdLife
La ficha de BirdLife DataZone, descargada el 14 de noviembre de 2026, reúne el historial de las valoraciones de la UICN y recuerda que un cambio de categoría no indica necesariamente un cambio real en el estado de la especie, sino que puede reflejar solo un mejor conocimiento (BirdLife DataZone):
Año
Categoría de la Lista Roja
1988
Casi amenazada (NT)
1994
Riesgo menor / casi amenazada (LR/nt)
2000
Riesgo menor / preocupación menor (LR/lc)
2004
Preocupación menor (LC)
2008
Preocupación menor (LC)
2009
Preocupación menor (LC)
2012
Preocupación menor (LC)
2016
Preocupación menor (LC)
2024
Preocupación menor (LC)
La evaluación vigente es la de 2024, realizada por BirdLife International y revisada por el Grupo de Especialistas en Galliformes de la CSE de la UICN (BirdLife DataZone).
197.000km²
de extensión de presencia, según BirdLife (2024)
Decenas de milesaves
estima muy tentativa (HBW; Madge y McGowan); BirdLife: sin cuantificar
7IBA/KBA
zonas importantes, con un 68,7 % de media protegido
Población silvestre: todas las estimas
Las estimas de población se basan en muy pocos datos. Se recogen todas, sin elegir entre ellas:
no cuantificada; tendencia decreciente (sospechada)
pérdida del 12 % de la cobertura arbórea en su área en tres generaciones (BirdLife DataZone)
BirdLife estima que la pérdida de cobertura forestal en el área de la especie (el 12 % en tres generaciones, de unos 19 años, con un tiempo generacional de 6,3 años) ha podido provocar un descenso de la población de entre el 1 y el 19 %, con una mejor estima del 11–14 % (BirdLife DataZone). Como las demás fuentes solo dan la expresión «decenas de miles» y no cifras, no se calcula una media aritmética orientativa.
Medidas de conservación
Medida de conservación
¿Existe?
Plan de acción o de recuperación
No
Programa de seguimiento sistemático
No
Lugares de conservación identificados
Sí, en toda su área
Control o prevención de especies invasoras
No
Reintroducción o introducción con éxito
No
Sometida a conservación ex situ
No
Programas de educación y sensibilización
No
Incluida en la legislación internacional
No
Sometida a controles o limitaciones del comercio internacional
Ninguna de las fuentes consultadas menciona poblaciones introducidas, asilvestradas o reintroducidas de esta especie. BirdLife da como único país Indonesia, de origen nativo, y contesta «no» a la pregunta de si se ha introducido o reintroducido con éxito (BirdLife DataZone); Delacour, Johnsgard, Madge y McGowan, el HBW, Howman y Roles no registran sueltas de la especie (del Hoyo et al., 1994; Delacour, 1977; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976). Madge y McGowan, en cambio, sí recogen poblaciones introducidas en el Reino Unido en otras especies de faisanes, pero no en esta (Madge y McGowan, 2002).
Población en cautividad
Fuera de su hábitat natural, la población en cautividad se estima en unos 350 ejemplares. (Hernández García, 2014)
Fecha
Fuente
Población en cautividad
hasta 1940
Delacour
muchas aves criadas en Clères; después, según el texto consultado, ninguna en Europa ni en América (Delacour, 1977)
c. 1976
Roles
muy pocos ejemplares: unos pocos en Estados Unidos y un pequeño número en los Países Bajos (Roles, 1976)
1979
Howman
la única pareja de Inglaterra; varias parejas importadas por Sivelle en Estados Unidos, que criaban bien (Howman, 1979)
1993
Howman
más difundida por Europa y Estados Unidos, con varias parejas en el Reino Unido; sigue siendo escasa (Howman, 1993)
Los censos de la WPA y los datos de ZIMS se añaden después en bloques propios.
Áreas protegidas
Está presente en los parques nacionales de Gunung Leuser (7.927 km²) y de Kerinci Seblat (15.000 km²), con varios registros recientes en ambos, que cubren probablemente el 50 % de su hábitat; Madge y McGowan señalan que un conocimiento más claro de su distribución en estos parques, sobre todo fuera de las zonas más visitadas, sería muy valioso (del Hoyo et al., 1994; Madge y McGowan, 2002). De las siete zonas importantes que BirdLife identifica, la media protegida es del 68,74 %, aunque Gunung Dempo no tiene protección (BirdLife DataZone).
13
Amenazas y protección
La pérdida del hábitat, la caza con lazos y el comercio de aves, atenuadas por lo inaccesible de su territorio.
La mayor amenaza para esta especie es la destrucción y degradación del hábitat. La caza constituye también, aunque en menor medida, otra de las amenazas a las que se enfrenta en su entorno natural. Entre 1997 y 1998, Sumatra fue devastada por numerosos incendios que destruyeron considerablemente su hábitat. (del Hoyo et al., 1994; Hernández García, 2014)
Pérdida y degradación del hábitat
El HBW señala la degradación y la pérdida del hábitat y, en algunos lugares, la sobreexplotación como principales amenazas (del Hoyo et al., 1994). BirdLife, que la considera muy dependiente del bosque, calcula que la cobertura arbórea ha disminuido un 12 % dentro de su área en tres generaciones (BirdLife DataZone). Madge y McGowan observan algún avance de la ocupación humana del hábitat, que podría expandirse con rapidez en algunas zonas (Madge y McGowan, 2002). Johnsgard escribe que el futuro de la especie depende de que se conserven zonas de bosque montano en Sumatra (Johnsgard, 1986). Fuller y Garson, que no tratan la especie entre las amenazadas, recuerdan que en Sumatra y Kalimantan se deforestaron unos 1,3 millones de hectáreas entre 1985 y 1997, el 26 % del total, de forma desproporcionada en las tierras bajas, y que los incendios de 1997 y 1998 han tenido un impacto aún no evaluado del todo (Fuller y Garson, 2000); la especie de esta ficha figura en su lista como de montaña, a salvo hasta ahora de la tala (Fuller y Garson, 2000).
Caza y trampeo
El HBW anota que la especie está en descenso en algunas zonas, por ejemplo en Brestagi, por la caza y el trampeo (del Hoyo et al., 1994). Madge y McGowan señalan que se caza en algunas partes de su área (Madge y McGowan, 2002). Beebe escribía que a veces se acerca a las aldeas apartadas y se atrapa con lazos para comerla (Beebe, 1922). BirdLife recoge como usos de la especie la alimentación humana (de subsistencia y nacional) y los animales de exhibición o mascotas (internacional), y anota que está presente, con una prevalencia alta, en tres de los siete conjuntos de datos sobre aves silvestres en el comercio que se evaluaron (Donald y colaboradores, 2024) (BirdLife DataZone). Johnsgard escribía en 1986 que probablemente el ser humano la molestaba poco por su carne o sus plumas (Johnsgard, 1986).
Protección legal
La especie no está protegida por la legislación indonesia (BOW, 2020; del Hoyo et al., 1994). Según BirdLife, no está incluida en ninguna legislación internacional ni sometida a controles o limitaciones del comercio internacional (BirdLife DataZone). Las fuentes consultadas no la citan entre las especies del Apéndice I o II de CITES, a diferencia de otros espoloneros, como el de Germain, el gris y el malayo, que el HBW da en el Apéndice II (BirdLife DataZone; del Hoyo et al., 1994).
Medidas propuestas
Madge y McGowan consideran muy valioso tener una idea más clara de su distribución en los dos grandes parques nacionales, sobre todo lejos de las zonas más visitadas (Madge y McGowan, 2002). El plan de acción de Fuller y Garson incluye, entre sus proyectos, estudios de la distribución de los faisanes amenazados de Sumatra y de la eficacia de la red de áreas protegidas (Fuller y Garson, 2000). BirdLife anota que no hay plan de recuperación ni programa de seguimiento sistemático (BirdLife DataZone).
14
Subespecies y variación
Dos subespecies que se parecen mucho y que se mezclan donde se encuentran; sin mutaciones ni híbridos conocidos en libertad.
Montañas del sur de Sumatra, al sur del ecuador (monte Ophir); los ejemplares de los montes Kerinci son algo intermedios, aunque muchos se parecen a los del sur (BOW, 2020; del Hoyo et al., 1994; Delacour, 1977). Avibase, siguiendo a Clements, la da en las montañas del centro-oeste y suroeste de la isla (Avibase).
Rasgos distintivos
Diseño de la parte superior menos marcado que en la subespecie del norte, con barras más estrechas y menos nítidas; en el resto, cabeza y cuello pardo terroso, partes superiores castaño con barras negras finas, cola con franjas violeta metálico (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Tamaño
Macho: ala 162–190 mm, cola 260–380 mm, tarso 65 mm; hembra: ala 150–162 mm, cola 180–220 mm, tarso 55 mm; peso 425 y 590 g en dos machos cautivos, y 238–269 g en cuatro hembras cautivas (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Estado
No se valora por separado: la UICN la valora con la especie, de preocupación menor (BirdLife DataZone).
Autor y localidad tipo
Lesson, 1831 (Traité d’Ornithologie, entrega 7, p. 487); «Java», por error; fijada en Bankoelen (Bengkulu), en el oeste de Sumatra, por Chasen y Hoogerwerf (1941) (Avibase; del Hoyo et al., 1994; Delacour, 1977).
Faisán pavo de Sumatra del Sur - Vive en las montañas del sur de Sumatra (texto de la tarjeta original) (Hernández García, 2014). La fotografía es la que la tarjeta original asigna a esta forma; no se indica la procedencia del ave, que vive en cautividad. Delacour supone que las aves criadas en Clères eran probablemente de la forma del sur (Delacour, 1977).
Faisán pavo de Sumatra del Norte
Polyplectron chalcurum scutulatumChasen y Hoogerwerf, 1941
Las fuentes consultadas no dan medidas propias; Delacour dice que es muy parecida a la forma nominal (Delacour, 1977).
Estado
No se valora por separado: la UICN la valora con la especie (BirdLife DataZone). El HBW anota que la validez de la subespecie se ha puesto en duda, porque las diferencias son leves y las enmascara una considerable variación individual (del Hoyo et al., 1994).
Autor y localidad tipo
Chasen y Hoogerwerf, 1941 (Treubia 18, suplemento, p. 17); Simpang Agoesan, Atjeh, norte de Sumatra (del Hoyo et al., 1994; Delacour, 1977).
Faisán pavo de Sumatra del Norte - vive en las montañas del norte de Sumatra. Se diferencia por tener el diseño de la parte superior más marcado y con líneas más largas (texto de la tarjeta original). La tarjeta original no llevaba fotografía y se mantiene sin ella (Hernández García, 2014).
Birds of the World reconoce las mismas dos subespecies que la web. Polyplectron chalcurum scutulatum vive en las montañas del norte de Sumatra y P. c. chalcurum, en las del sur, al sur del ecuador. Se dice que la subespecie septentrional tiene el dibujo del dorso más marcado, con un barrado más ancho y nítido, aunque esta diferencia puede verse confundida por la notable variación individual e incluso por una posible intergradación entre ambas. (BOW, 2020; Madge y McGowan, 2002)
Comparación de las dos subespecies
Rasgo
P. c. chalcurum (sur)
P. c. scutulatum (norte)
Fuente
Distribución
Montañas del sur de Sumatra, al sur del ecuador
Montañas del norte de Sumatra, al norte del ecuador
Johnsgard escribe que la variación geográfica de la especie es limitada y probablemente clinal; Delacour dice que las dos subespecies se diferencian muy poco y están unidas por poblaciones intermedias, y Roles, que las dos formas se encuentran y se mezclan a lo largo de su frontera común (Delacour, 1977; Johnsgard, 1986; Roles, 1976). Madge y McGowan indican que las dos subespecies intergradan y que su separación puede no ser válida; el HBW, que la validez de scutulatum se ha puesto en duda (del Hoyo et al., 1994; Madge y McGowan, 2002). Los ejemplares de los montes Kerinci son algo intermedios (Delacour, 1977).
Clave dicotómica de Johnsgard (1986): tramo que lleva a la especie y a sus subespecies
A. Rectrices centrales con ocelos poco desarrollados o ausentes; zona facial desnuda muy pequeña en los adultos
B. Ala de al menos 180 mm y de 2 a 5 espolones (machos)
C. Cabeza y cuello grises; manto con ocelos iridiscentesPolyplectron inopinatum
CC. Cabeza y cuello pardo negruzcos; manto sin ocelos: faisán pavo de Sumatra
D. Partes superiores menos marcadas: faisán pavo de Sumatra del surPolyplectron chalcurum chalcurum
DD. Partes superiores más marcadas: faisán pavo de Sumatra del nortePolyplectron chalcurum scutulatum
BB. Ala de menos de 180 mm; sin espolones (hembras)
C. Cabeza y cuello grisesPolyplectron inopinatum
CC. Cabeza y cuello gris parduzcosPolyplectron chalcurum
Híbridos
Cruce
Resultado
Fuente
Hembra de faisán pavo de Sumatra × macho de espolonero gris
Siete pollos en dos años, en las aves del doctor Vallen (Países Bajos); no se indica su fertilidad
La tabla de hibridación del criadero Chintaguay, adaptada de Johnsgard (1999), no incluye esta especie; Delacour anota que los espoloneros no parecen cruzarse con facilidad con otros galliformes, salvo gris por Germain
No se documentan mutaciones de color en las fuentes aquí revisadas.
Estudios genéticos
Wikipedia, que cita el estudio de Kimball y colaboradores (2001), da la filogenia molecular del género: la especie formaría un grupo con los espoloneros de Rothschild, de Germain y gris, y habría evolucionado a partir de poblaciones del continente (Wikipedia). No se ha encontrado en las fuentes consultadas ningún estudio genético de las dos subespecies.
15
Cultura y curiosidades
Un ave poco vista, con nombres nativos y una historia de colecciones que se perdieron.
Las fuentes consultadas no recogen usos culturales de esta especie (monedas, sellos, billetes, mitos); lo que sí recogen son sus nombres locales y las impresiones de quienes la han visto en cautividad (Avibase; Beebe, 1922; Delacour, 1977; Johnsgard, 1986).
Nombres locales
Beebe y Johnsgard citan dos nombres nativos de Sumatra, «karo-karo» y «loekei»; Avibase recoge el indonesio «kuaukerdil sumatera» (Avibase; Beebe, 1922; Johnsgard, 1986).
Un ave poco vista
Beebe señalaba en 1922 que la isla de Sumatra había sido descuidada por los zoólogos y que las pieles que se conocían eran de aves que los nativos cazaban con lazos (Beebe, 1922). Delacour la calificó de graciosa y encantadora a pesar de su plumaje sombrío, y lamentó que no quedaran aves en Europa ni en América cuando escribió (Delacour, 1977). Howman las considera aves muy encantadoras, extremadamente tranquilas y, por desgracia, raras en las colecciones (Howman, 1979). Roles recoge la descripción del doctor Vallen: aves siempre juntas y muy silenciosas (Roles, 1976).
Uso y comercio
BirdLife señala usos de la especie como alimento humano de subsistencia y como animal de exhibición o mascota, y anota una alta prevalencia en el comercio de aves silvestres (BirdLife DataZone).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
Avibase: la base de datos de aves del mundo (Lepage, D., Bird Studies Canada). Polyplectron chalcurum Lesson, RP 1831, identificador BC793E065625AAFE. avibase.bsc-eoc.org. Consultada el 14 de noviembre de 2026.
Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
BirdLife International (2024). Polyplectron chalcurum. The IUCN Red List of Threatened Species 2024: e.T22679361A264079800. doi:10.2305/IUCN.UK.2024-2.RLTS.T22679361A264079800.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
BirdLife International (2024). Species factsheet: Bronze-tailed Peacock-Pheasant Polyplectron chalcurum. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2024). datazone.birdlife.org. Descargada el 14 de noviembre de 2026.
Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan; ficha 144, Bronze-tailed Peacock-pheasant, p. 547).
Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas). Solo se cita el texto; no se usa la lámina.
Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
McGowan, P. J. K. y Kirwan, G. M. (2020). Sumatran Peacock-Pheasant (Polyplectron chalcurum), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/btpphe1 · doi:10.2173/bow.btpphe1.01. El texto completo es de pago; en la consulta del 14 de noviembre de 2026 solo fue accesible la introducción (categoría LC, 2 subespecies con su distribución, versión 1.0 publicada el 4 de marzo de 2020, texto actualizado el 24 de julio de 2018); los datos de esta ficha que se atribuyen a BOW proceden de los recuadros de la ficha original de esta web. BOW titula hoy la especie Sumatran Peacock-Pheasant.
Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
Wikipedia (en inglés). Sumatran peacock-pheasant (antes Bronze-tailed peacock-pheasant). en.wikipedia.org/wiki/Sumatran_peacock-pheasant (consultada el 14 de noviembre de 2026). Los recuadros de la ficha original de esta web resumen una versión anterior del artículo; el texto vigente no contiene todo lo que recogen.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán pavo de Sumatra — Polyplectron chalcurum. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/sumatra.php.