Resumen
La especie de un vistazo.
El faisán orejudo marrón (Crossoptilon mantchuricum) es una especie del género Crossoptilon, de la familia Phasianidae, propia del noreste de China y catalogada por la UICN como de preocupación menor. Es el único faisán orejudo de plumaje pardo.
Es un faisán grande, corpulento y de patas cortas, de las montañas boscosas del norte de China. Los dos sexos son casi iguales: plumaje pardo oscuro, casquete de plumas negras como terciopelo, piel roja desnuda alrededor de los ojos, dos largos mechones blancos que sobresalen de la cabeza como «orejas» o «cuernos», grupa y base de la cola de un blanco plateado y una cola de 22 plumas, las centrales deshilachadas como plumas de avestruz (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002). Mide de 96 a 100 cm de longitud; el macho pesa de 1.650 a 2.475 g y la hembra, de 1.450 a 2.025 g (del Hoyo et al., 1994; Madge y McGowan, 2002).
Es el más oriental y el más escaso de los faisanes orejudos, y su área, hoy muy reducida y fragmentada, no se solapa con la de ninguna de las otras tres especies del género (Delacour, 1977; Madge y McGowan, 2002). Vive en bosques de montaña de coníferas y de frondosas con sotobosque denso, entre 1.100 y 2.600 m de altitud, en unos pocos macizos de Shanxi, Hebei, Shaanxi y los alrededores de Pekín (BirdLife, 2024; Madge y McGowan, 2002). Se alimenta sobre todo de plantas, que desentierra con el pico, y vive en bandos de 10 a 30 aves fuera de la época de cría (Beebe, 1918; Madge y McGowan, 2002).
En China se conoce desde hace más de dos milenios y se le ha tenido por símbolo de valor, porque los machos pelean con tenacidad; según el HBW, sus plumas caudales adornaron los cascos de los generales desde la época de los Reinos Combatientes hasta la dinastía Qing (del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002). En Europa llegó en 1864, y las aves de las pajareras descienden en buena parte de las pocas que se importaron entonces, con los problemas de consanguinidad y de baja fertilidad que ello trajo (Delacour, 1977; Gerrits, 1974; Howman, 1993).
En la Lista Roja de la UICN pasó de «Amenazada» (1988) a «Vulnerable» (1994–2016) y, en 2024, a «Preocupación menor»: la extensión de presencia, de unos 160.500 km², supera con holgura los umbrales de amenaza, el hábitat adecuado ha aumentado con las repoblaciones forestales y se sospecha que la población, de 5.000 a 15.000 individuos maduros, es estable (BirdLife, 2024). Aun así, se trata de un pequeño número de aves repartidas en cuatro subpoblaciones aisladas, y sigue en el Apéndice I de la CITES (BirdLife, 2024; Wikipedia (2026)). La especie es monotípica: no se reconoce ninguna subespecie (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002).
- 96–100cmde longitud total
- 26–27díasde incubación en cautividad; solo la hembra incuba
- 1.100–2.600mde altitud en la naturaleza
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoLCPreocupación menor - Tendencia de la población estable · evaluación de 2024 · Lista Roja de la UICN (BirdLife International, 2024)
Ficha técnica
- Nombre científico
- Crossoptilon mantchuricum Swinhoe, 1863 (Avibase; BirdLife, 2024; del Hoyo et al., 1994)
- Clasificación
- Orden Galliformes · familia Phasianidae · género Crossoptilon Hodgson, 1838 (Avibase; Delacour, 1977)
- Subespecies
- Ninguna: especie monotípica (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002)
- Nombres comunes
- ES faisán orejudo marrón (también faisán orejudo pardo, «hoki») · EN brown eared-pheasant · FR hokki brun · DE Braunflügel-Ohrfasan (o Brauner Ohrfasan) · IT fagiano orecchiuto bruno · PT faisão-orelhudo-marrom · chino 褐马鸡 (hèmǎjī) (Avibase; del Hoyo et al., 1994; Hernández García, 2013)
- Longitud total
- 96–100 cm (del Hoyo et al., 1994; Madge y McGowan, 2002)
- Peso
- ♂ 1.650–2.475 g · ♀ 1.450–2.025 g (del Hoyo et al., 1994; Madge y McGowan, 2002)
- Hábitat
- Bosques de montaña de coníferas y de frondosas con sotobosque denso; de 1.100 a 2.600 m (BirdLife, 2024; Madge y McGowan, 2002)
- Distribución
- Noreste de China: Shanxi, Hebei, Shaanxi y los alrededores de Pekín (BirdLife, 2024; Madge y McGowan, 2002)
- Puesta
- 5–8 huevos en cautividad (4–14 en la naturaleza, con casos de hasta 22); incubación de 26–27 días, solo la hembra (del Hoyo et al., 1994; Howman, 1996; Madge y McGowan, 2002)
- Madurez
- A los 2 años de edad (del Campo, 2006; Johnsgard, 1986)
- Estado de conservación
- Preocupación menor (LC), desde 2024; antes, «Vulnerable» (BirdLife, 2024)
- Población
- 5.000–15.000 individuos maduros en cuatro subpoblaciones (2023, BirdLife); otras estimas figuran en el capítulo de conservación (BirdLife, 2024)
- Extensión de presencia
- 160.500 km² según BirdLife; 147.000 km² según la ficha original (BirdLife, 2024; BOW, 2020)
- Anilla
- 14 (mm) (Corder; Hernández García, 2014)
- Conservación ex situ
- Sin EEP ni ESB; categoría «seguimiento de población» en el reparto de la EAZA del año 2000 (Hernández García, 2014)
Sistemática y nomenclatura
Un nombre que miente sobre el lugar de origen, una fecha con dos años y un género de cuatro especies.
El género Crossoptilon reúne a los faisanes orejudos, aves grandes y robustas de las montañas del norte y el oeste de China y del Tíbet. El orejudo marrón es su miembro más oriental y el único de plumaje pardo (Delacour, 1977; Madge y McGowan, 2002).
Posición taxonómica
| Rango | Taxón |
|---|---|
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Género | Crossoptilon Hodgson, 1838 |
| Especie | Crossoptilon mantchuricum Swinhoe, 1863 |
| Subespecies | Ninguna |
Clasificación según Avibase, que reconoce la especie como especie plena (Avibase); el género procede de Hodgson (Journal of the Asiatic Society of Bengal VII, 1838, p. 864; especie tipo, por monotipia: Phasianus crossoptilon) (Delacour, 1977).
Origen del nombre
El nombre del género, Crossoptilon, se creó a partir de una especie anterior, Phasianus crossoptilon Hodgson, 1838, el orejudo blanco. Jobling explica el nombre específico de esa especie como el griego krossoi («flecos») más ptilon («pluma»), y recuerda que Hodgson destacaba el plumaje en forma de flecos, desordenado y suelto, que llega hasta las plumas centrales de la cola (Jobling, 2010). Beebe da el mismo significado, «de plumas con flecos», por el estado de las plumas de la cola (Beebe, 1918).
El epíteto mantchuricum significa, según Jobling, «de Manchuria, en el noreste de China» (Jobling, 2010). Es un nombre equivocado: Swinhoe lo eligió a partir de una información muy vaga, llegada por varias personas, según la cual el ejemplar procedía de Manchuria, y en 1918 Beebe no encontró un solo ejemplar auténtico registrado en esa región (Beebe, 1918). Beebe señala además que los mongoles no llevan al mercado de Pekín aves congeladas de esta especie, un indicio de que no vive en esa zona, y descarta el nombre inglés de «Manchurian» por incorrecto (Beebe, 1918); Delacour afirma que no ha vivido en Manchuria y que el nombre de «orejudo manchú» debe abandonarse (Delacour, 1977). Ya Saurin, que fue uno de los primeros en dar noticia de las aves que se vendían en Pekín, escribió que mantchuricum era un nombre inadecuado, porque los mongoles no las traían congeladas (Elliot, 1872). La ficha original de esta web recuerda lo mismo: el nombre alude a Manchuria, aunque la especie no habita allí (Hernández García, 2013).
El nombre honra, en cambio, a quien lo describió: Robert Swinhoe (1836–1877), diplomático británico en China, coleccionista y naturalista, a quien Jobling dedica la entrada swinhoei (Jobling, 2010).
Nombres vernáculos
| Idioma | Nombre | Comentario |
|---|---|---|
| Español | faisán orejudo marrón | nombre de esta web y del libro del autor (Hernández García, 2013) |
| Español | faisán orejudo pardo | nombre de Avibase y del HBW; Avibase añade «faisán hoki» (Avibase; del Hoyo et al., 1994) |
| Español | faisán orejudo café | nombre del criadero Chintaguay (Chile) (del Campo, 2006) |
| Inglés | brown eared-pheasant | también Manchurian eared-pheasant y, en la primera edición de Clements, Manchurian snow pheasant (Avibase; Beebe, 1918; del Hoyo et al., 1994) |
| Francés | hokki brun; faisan oreillard brun | Delacour dice que «hoki» es el nombre con que se la llama en China y con el que se la conoce en Europa (Avibase; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986) |
| Alemán | Braunflügel-Ohrfasan; Brauner Ohrfasan | Beebe daba Mandschurischer Ohrfasan (Avibase; Beebe, 1918; del Hoyo et al., 1994) |
| Italiano | fagiano orecchiuto bruno | (Avibase; Hernández García, 2013) |
| Portugués | faisão-orelhudo-marrom (Brasil); faisão-orelhudo-castanho (Portugal) | (Avibase) |
| Chino | 褐马鸡 (hèmǎjī) | nombre moderno que dan Wikipedia y Avibase (Avibase; Wikipedia (2026)) |
| Chino (nombres antiguos) | ho-ke o ho-ky; chao chi | Swinhoe escribe ho-ke: «ke» es gallo, y «ho» es un carácter que se aplica a esta ave desde la antigüedad y que, según él, no significa «fuego», como había creído Saurin; Beebe cita ho-ky en Hebei (Chihli) y chao chi («gallo con cuernos») en Shanxi (Beebe, 1918; Elliot, 1872) |
| Japonés | ミミキジ (mimikiji) | (Avibase) |
Hay muchos más nombres en Avibase (holandés bruine oorfazant, polaco uszak brunatny, checo bažant mandžuský, ruso Бурый ушастый фазан, sueco brun öronfasan, entre otros) (Avibase).
El nombre de «orejudo» es el de la familia entera: las plumas auriculares alargadas y blancas, que en esta especie y en el orejudo azul sobresalen por encima de la nuca, dan a la cabeza el aspecto de tener orejas o cuernos (Delacour, 1977; Madge y McGowan, 2002). Los libros de Hernández lo resumen con las mismas palabras que la ficha original: un mechón de finas plumas blancas que sale de la base del pico y termina en la nuca (Hernández García, 2013).
Historia nomenclatural
La historia científica del orejudo marrón es corta y se concentra en los años 1860, cuando llegaron a Europa las primeras pieles y las primeras aves vivas. Beebe reúne su sinonimia con detalle (Beebe, 1918):
- Swinhoe presenta en la Sociedad Zoológica de Londres la piel de una hembra que le envió un tal Dr. Lamprey desde Tsin-tsin (Tientsin). Tras muchos rodeos concluye que no es el auritum de Pallas y la llama mantchuricum. En la sinonimia de Beebe figura, en el mismo volumen (p. 221), una cita anterior de Lamprey que la llama Crossoptilon tibetanum, nombre del orejudo blanco (Beebe, 1918; Elliot, 1872).
- Père David la encuentra en montes boscosos al otro lado de San-Yu, al norte de Pekín, donde ya era escasa por la persecución y la destrucción del bosque (Delacour, 1977; Elliot, 1872).
- Sclater, en su lista de los faisánidos, la figura como Crossoptilon auritum; Swinhoe publica una segunda nota sobre ella (Proc. Zool. Soc., 1863, p. 306) (Beebe, 1918).
- Llegan las primeras aves vivas al Jardin d’Acclimatation de París y, hacia las mismas fechas, a los Jardines Zoológicos de Londres (Beebe, 1918; Delacour, 1977).
- Gray (1867), David (1871) y Elliot (1872) usan ya el nombre mantchuricum; Elliot la ilustra en su monografía y la titula «Mantchurian Eared Pheasant» (Beebe, 1918; Elliot, 1872).
- En su monografía, Beebe, que había observado la especie en Shanxi, reduce a tres las especies del género (mantchuricum, auritum y tibetanum, es decir, el actual crossoptilon) (Beebe, 1918).
- Delacour publica en Zoologica (80: 30–45) su nota sobre los orejudos, en la que mantiene tres especies y describe las subespecies del orejudo blanco (Delacour, 1977).
- Madge y McGowan separan como especie al orejudo del Tíbet (harmani), con lo que el género pasa a tener cuatro especies (del Campo, 2006; Madge y McGowan, 2002).
Variantes de escritura
En la literatura del siglo XIX y principios del XX el nombre aparece escrito de varias formas: Crossoptilon auritum sive mantchuricum (Swinhoe), C. mantchuricum, C. manchuricum (Seebohm, Grant, Sharpe y otros), Crossoptilum mantchuricum y Crossoptilum manchuricum; Elliot usa en el texto de su monografía la grafía manchuricum (Beebe, 1918; Elliot, 1872). La forma válida es mantchuricum, que es la que usan Avibase, BirdLife y el HBW (Avibase; BirdLife, 2024; del Hoyo et al., 1994).
Dónde se describió: la localidad tipo
Las fuentes dan la localidad tipo con ligeras diferencias (Avibase; del Hoyo et al., 1994; Delacour, 1977; Elliot, 1872):
| Fuente | Localidad tipo |
|---|---|
| Avibase | Alrededores de Pekín (China) |
| HBW (1994) | Alrededores de Pekín; montes más allá de San-yu, en Jilin |
| Delacour (1977) | Alrededores de Pekín; montes más allá de San-Yu, en Chihli (el antiguo nombre de Hebei) |
| Elliot (1872) | China, noreste de Pekín (según Saurin); Manchuria (según Swinhoe) |
La diferencia entre Jilin (HBW) y Chihli (Delacour) es de los dos autores. Delacour sitúa los montes de San-Yu al norte de Pekín; el texto de Saurin que cita Elliot habla de montañas a unos 160 km (100 millas) al noroeste de la capital, dentro de la Gran Muralla, aunque el encabezado de Elliot dice «noreste de Pekín» (del Hoyo et al., 1994; Delacour, 1977; Elliot, 1872).
El género y sus parientes
Los faisanes orejudos son un grupo muy aislado dentro de la familia. Beebe los consideraba aparte de todos los demás faisanes y observaba que Elliot los colocaba junto a los monales y los pavos reales, mientras que otros los colocaban a continuación de los gallofaisanes, por el gran número de plumas de la cola (Beebe, 1918). Delacour pensaba que su parentesco es lejano con el resto de la subfamilia, salvo con los gallofaisanes (Lophura), a los que se parecen en la cola comprimida, en las carúnculas faciales y en parte en el comportamiento; el faisán cheer (Catreus) también pudiera estar emparentado, por su pico largo, ganchudo y fuerte, adecuado para escarbar, como el de los monales (Delacour, 1977). Se han obtenido híbridos de orejudos con monales, plateados y kalij; en los últimos, los rasgos de Lophura dominan y los machos son fértiles, lo que indica una relación bastante estrecha (Delacour, 1977). Johnsgard prefiere relacionarlos con Lophura antes que con Catreus (Johnsgard, 1986).
Dentro del género, Delacour reconocía tres especies: el orejudo azul (C. auritum), el marrón (C. mantchuricum) y el blanco (C. crossoptilon). Los dos primeros, de áreas totalmente separadas, son idénticos en forma, voz y comportamiento, tienen las plumas auriculares bien visibles sobre la nuca y la cola comprimida y erguida, y pueden considerarse una superespecie; el blanco es más grande, con las orejas cortas, una cola plana y colgante, y 20 plumas caudales en vez de 22 o 24 (Delacour, 1977). Johnsgard considera a las tres especies formas de reemplazo geográfico, que constituyen una superespecie, y llama «alospecie» al par que forman el marrón y el azul; supone que el linaje del orejudo blanco se separó primero y el del marrón y el azul mucho más tarde, y recuerda que Delacour (1945) consideraba al blanco el menos especializado, al azul el más especializado y al marrón, intermedio (Johnsgard, 1986). Los análisis moleculares citados por Wikipedia confirman que el marrón es el pariente más cercano del azul, mientras que el orejudo del Tíbet y el blanco forman otro grupo (Wikipedia (2026)).
El número de especies depende de cómo se trate el orejudo del Tíbet (C. harmani), descrito por Elwes en 1881: el HBW (1994) lo trata como una raza del orejudo blanco, aunque reconoce que a veces se considera especie distinta; Madge y McGowan (2002) lo separan, aunque admiten que quizá convenga tratarlo como la misma especie que el blanco, por las semejanzas de estructura y de voz y por la existencia de intermedios; y el libro del autor y el criadero Chintaguay lo cuentan como cuarta especie (del Campo, 2006; del Hoyo et al., 1994; Hernández García, 2013; Madge y McGowan, 2002). Las cuatro especies, con su subdivisión, son las que recoge la clave de la sección «Subespecies y variación».
El orejudo marrón en los libros del autor
En el primer volumen de Faisanes del mundo. Guía práctica (2013) la especie ocupa las páginas 256 a 260 (numeración impresa). El libro escribe el nombre como Crossoptilon mantchuricum (Swinhoe, 1862), con la misma observación sobre Manchuria que figura en la ficha original, y lo presenta como «faisán orejudo marrón», con los nombres inglés (brown eared-pheasant), francés (hoki brun), alemán (Brauner Ohrfasan) e italiano (fagiano orecchiuto bruno) (Hernández García, 2013). El segundo volumen (2014) la incluye en las tablas de puesta, de incubación y de anillas, y en el reparto de programas de conservación de la EAZA (Hernández García, 2014). Las observaciones concretas de esos libros se recogen en los capítulos que siguen, con la cita correspondiente.
Historia
De las plumas de guerra de los generales chinos a las pajareras de Europa.
La referencia más antigua de este faisán data del siglo IV a. C. (Hernández García, 2013). Desde entonces ha sido, en China, un ave tenida por valiente y apreciada por sus plumas, y en Europa, una de las especies que se aclimataron en Europa en el siglo XIX, aunque con problemas de fertilidad por la consanguinidad (Delacour, 1977; Howman, 1993).
Un símbolo de valor
En China se ha considerado a este faisán un símbolo de valentía por las peleas de los machos; el libro del autor añade que se enfrentan a otros machos o a sus enemigos hasta la muerte, y que por eso muchos emperadores chinos adornaban sus cascos con sus plumas (Hernández García, 2013). Según el HBW, los generales de casi todos los emperadores, desde la época de los Reinos Combatientes (475–221 a. C.) hasta la dinastía Qing (1644–1911), llevaban las plumas de la cola de esta ave en el casco (del Hoyo et al., 1994). El plan de acción de la UICN para los faisanes lo cuenta del mismo modo, y subraya que la asociación con el valor militar nace de los combates de los machos durante el cortejo (Fuller y Garson, 2000). Madge y McGowan recuerdan esa tradición al hablar de la influencia de los faisanes en la cultura humana (Madge y McGowan, 2002).
Swinhoe, por su parte, oyó decir que las plumas de esta ave las habían llevado antiguamente los guerreros tártaros (Elliot, 1872); Beebe lo repite y añade que en su época la demanda de esas plumas era mucho menor en Pekín y en el norte de China que en el centro y el oeste, donde se buscaban con avidez las del orejudo azul (Beebe, 1918). Beebe cuenta también que, de vez en cuando, alguno de los pastores nómadas que bajaban a Pekín llevaba clavada una pluma de la cola de un orejudo en el gorro de piel (Beebe, 1918).
El descubrimiento para la ciencia
Los misioneros habían señalado la especie mucho antes de que se describiera (Elliot, 1872). Para la ciencia occidental, la historia empieza en 1862, cuando un tal doctor Lamprey envió a Swinhoe, desde Tientsin, la piel de una hembra; Swinhoe la presentó en la Sociedad Zoológica de Londres y la llamó mantchuricum (Beebe, 1918). Ese mismo año Père David la encontró en los montes boscosos al otro lado de San-Yu, al norte de Pekín, donde ya era muy escasa por la persecución y la destrucción del bosque (Delacour, 1977; Elliot, 1872).
Swinhoe escribió a Elliot que el ave vivía en las colinas al norte de Pekín, que en invierno se llevaban a la ciudad muchas, vivas y muertas, y que los nativos la llamaban ho-ke (Elliot, 1872). Saurin contaba, por su parte, que se veía rara vez en el mercado, que vivía en las montañas del noroeste de Pekín, dentro de la Gran Muralla, a unas cien millas, en una zona famosa por sus minas de carbón, muy visitada por europeos, y que desde que había europeos en Pekín los campesinos encontraban un buen mercado para los nidos; el ministro francés, M. Berthemy, que era cazador y aficionado a la historia natural, temía que un ave tan mansa y de lugar tan reducido se extinguiera pronto (Elliot, 1872). Fue el mismo Berthemy quien envió a París los primeros ejemplares vivos (Delacour, 1977).
Llegada a Europa y a América
El primer ejemplar vivo llegó a Europa en 1864 al Jardin d’Acclimatation de París, enviado desde Pekín por M. Berthemy, ministro de Francia en China: un macho y dos hembras, según Delacour (Delacour, 1977). Howman cuenta que todas las aves cautivas descienden de dos hembras y un macho importados a Francia en 1864; Gerrits, que son todos descendientes de un macho y dos hembras llevados a Europa en 1864 (Gerrits, 1974; Howman, 1993). Beebe da la misma fecha, hacia 1864, para el Jardín Zoológico de Londres y el Jardin d’Acclimatation (Beebe, 1918), y Roles, la de 1864 para el Jardin d’Acclimatation de París (Roles, 1976).
Aquellas aves vivieron bien en París, pero, aunque pusieron huevos, ninguno fue fértil. Se las prestó a una criadora particular, la señorita de Bellonet, que sacó adelante unos cuantos pollos en 1866, y el éxito fue tan grande que se criaron más de cien en 1868 y doscientos en 1869, con una distribución por toda Europa (Delacour, 1977). Beebe recoge cuatro camadas de siete, nueve, diez y ocho pollos, y cifra el precio de una pareja en 400 dólares en 1866 y en 100 cuatro años después (Beebe, 1918). Bartlett, superintendente del zoo de Londres, contaba que se habían criado nueve aves en la segunda puesta, después de perder, por la enfermedad llamada gapes, la primera, de siete; que criaban con un año de edad; que en la primera muda los jóvenes adquirían el plumaje adulto, indistinguible entre machos y hembras; y que eran robustas y muy mansas (Elliot, 1872).
Esa edad de oro duró poco. En 1871, un texto que Beebe reproduce lamentaba que las esperanzas de introducir de forma permanente esta ave en Europa parecían a punto de verse defraudadas: casi todos los ejemplares del zoo de Londres, introducidos y criados allí, habían enfermado y muerto y solo quedaban dos hembras, y lo mismo, hasta donde sabía, había sucedido en la mayoría de los jardines del continente (Beebe, 1918). De veinte aves del zoo de Londres, la más longeva vivió tres años y medio, y la vida media, 22 meses y medio (Beebe, 1918).
Cuántas aves llegaron: tres versiones
Las fuentes no cuentan del mismo modo las importaciones que sucedieron a la de 1864 (Delacour, 1977; Howman, 1993; Roles, 1976):
| Fuente | Aves de la primera llegada | Entradas posteriores |
|---|---|---|
| Delacour (1977) | Un macho y dos hembras a París en 1864 | Dos machos enviados de Pekín al zoo de Londres en 1866; no parece que se hiciera ninguna otra importación, de modo que las aves que había entonces en el mundo descenderían de las criadas por la señorita de Bellonet |
| Howman (1979, 1993, 1996) | Dos hembras y un macho a Francia en 1864 | Dos machos más (1979, 1996); dos machos importados por el zoo de Londres «unos años después» (1993) |
| Roles (1976) | Aves del Jardin d’Acclimatation de París de 1864 | Dos machos a mediados de la década de 1950 («sangre nueva») |
| Gerrits (1974) | Un macho y dos hembras en 1864 | No menciona otras |
El año de la segunda importación difiere según el autor (1866, «unos años después» o mediados de los años cincuenta del siglo XX), y esta guía conserva las tres versiones (Delacour, 1977; Gerrits, 1974; Howman, 1979; Howman, 1993; Howman, 1996; Roles, 1976).
La segunda mitad del siglo XX: nuevas importaciones y la inseminación artificial
Howman cuenta que, tras la época de las primeras aves, la consanguinidad hizo caer la fertilidad hasta niveles muy bajos, y que en 1977 la World Pheasant Association patrocinó un programa de inseminación artificial que demostró que la infertilidad era casi con seguridad un problema de comportamiento y no físico: la fertilidad de los primeros cien huevos fue superior al 70 % y la técnica resultó práctica (Howman, 1993; Howman, 1996). Roles consideraba en 1976 imprescindible importar ejemplares frescos de la naturaleza si se quería hacer algo más que posponer la fecha de la extinción de la especie, en libertad y en cautividad (Roles, 1976). Después, según Howman (1993), se exportaron desde China a Reino Unido, Europa, Estados Unidos y México aves silvestres recién capturadas (Howman, 1993). Johnsgard (1986) añade que hubo importaciones a Inglaterra (1975) y que el zoo de San Diego recibió aves de origen silvestre (Johnsgard, 1986). En 1994, el HBW señalaba que existía un programa de cría en cautividad en la Reserva Natural Nacional de Pangquangou, dedicada a la especie (del Hoyo et al., 1994).
Lo que se creía saber de su área
En 1918 Beebe situaba la especie en las provincias de Chihli (la mitad occidental) y Shansi, con límite occidental en el río Amarillo y límite septentrional probable en la Gran Muralla (Beebe, 1918). Delacour (1977) la daba por habitante del noroeste de Shansi y del noroeste de Chihli, y por probablemente extinta en esa última provincia (Delacour, 1977). Johnsgard, citando a Vaurie (1965), la situaba además en el sur de Chahar, en Mongolia Interior, y en Hopeh, y recoge que quizá se había extinguido en Hopeh hacia 1931 (Johnsgard, 1986). Madge y McGowan cuentan que parecía extendida hasta la década de 1930, y que desde entonces una combinación de pérdida de bosque y de caza provocó una caída muy fuerte en su pequeña área (Madge y McGowan, 2002). En 1989, dos de las reservas, Luyashan y Pangquangou, dieron censos de 2.790 y 1.230 aves, mucho más que las estimas de principios de los años ochenta (del Hoyo et al., 1994).
Cronología
- Referencia más antigua de la especie que recoge el libro del autor (Hernández García, 2013).
- Sus plumas adornan los cascos militares, de los Reinos Combatientes al final de la dinastía Qing (del Hoyo et al., 1994; Fuller y Garson, 2000).
- Swinhoe la describe; Père David la encuentra al norte de Pekín (Beebe, 1918; Delacour, 1977).
- Primeras aves vivas en el Jardin d’Acclimatation de París (Delacour, 1977).
- La señorita de Bellonet las cría con éxito; más de cien aves en 1868 y doscientas en 1869 (Delacour, 1977).
- Los zoológicos europeos lamentan la mala adaptación de los ejemplares (Beebe, 1918).
- Programa de inseminación artificial patrocinado por la WPA (Howman, 1996).
- Censos en Luyashan (2.790 aves) y Pangquangou (1.230) (del Hoyo et al., 1994).
- Se descubre en Shaanxi una población de unos 1.500 individuos (BOW, 2020).
- La UICN pasa la especie de «Vulnerable» a «Preocupación menor» (BirdLife, 2024).
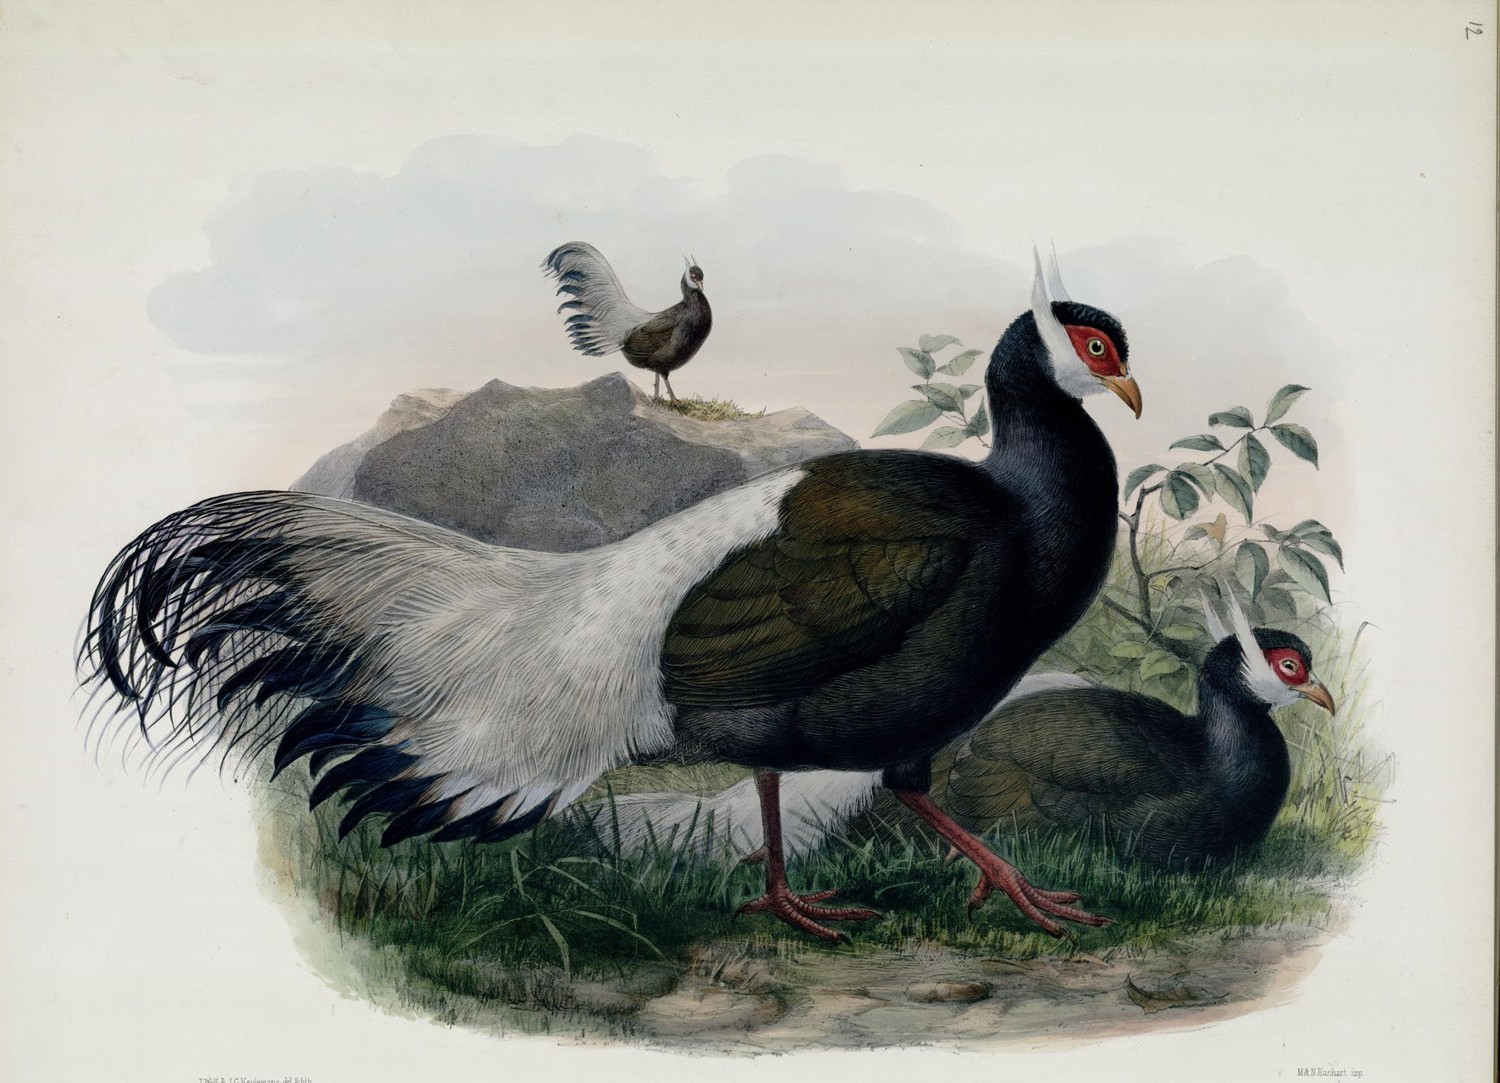
La lámina de Elliot (1872) lleva el rótulo «Crossoptilon mantchuricum» y el título «Mantchurian Eared Pheasant» (Elliot, 1872). Se reproduce aquí tal como aparece en el ejemplar digitalizado. Véase Daniel Giraud Elliot.
Morfología y plumajes
Un faisán sin colores vistosos y sin diferencias entre sexos, de cola deshilachada y orejas blancas.
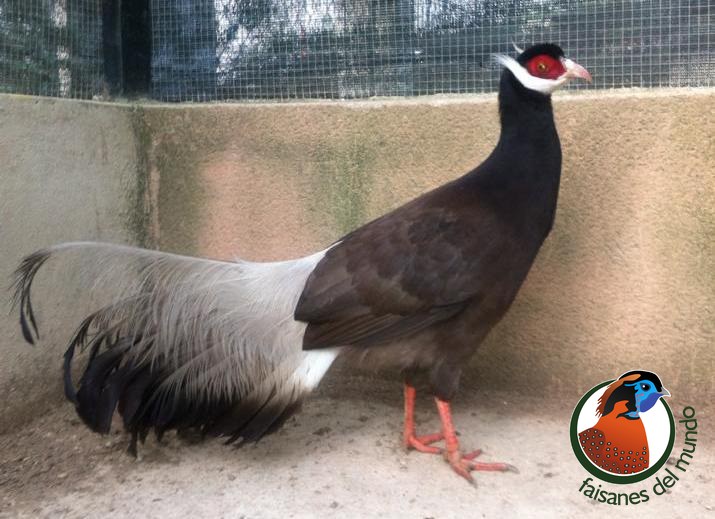
El macho es de gran tamaño y de plumaje general pardo oscuro. Las plumas de la coronilla son cortas, densas y aterciopeladas, y la piel que rodea el ojo es roja. De la base del pico parte un largo mechón de finas plumas blancas, en forma de cuerno, que bordea la cara y termina en la nuca, lo que le da un aspecto de «orejas». La grupa y la cola son de color blanco plateado, con el último tercio de las plumas caudales de tono pardo negruzco. Las alas son fuertes y los ojos, de color marrón rojizo. Las patas, de color carmesí, son muy fuertes y presentan un único espolón corto.


Macho adulto
Es el único faisán orejudo de plumaje pardo y su área de distribución no se solapa con la de ninguno de sus tres congéneres. Entre sus rasgos destacan las cobertoras supracaudales blanco plateado, largas, sueltas y filamentosas, los mechones auriculares blancos, largos y en forma de cuerno, y las plumas de la coronilla, cortas, densas y aterciopeladas; las rectrices son blancas con el tercio terminal pardo negruzco. El pico es de color cuerno rojizo.
Beebe y Delacour describen con más detalle el macho adulto (Beebe, 1918; Delacour, 1977). La coronilla va cubierta de plumas negras, cortas, rizadas y de aspecto de terciopelo; la parte de piel desnuda de la cara es roja y está cubierta de pequeñas papilas, y por detrás de las fosas nasales, en la barbilla, la garganta y bajo el área desnuda las plumas son de un blanco cremoso. Las plumas auriculares, muy alargadas y rígidas, son de un blanco brillante y apuntan hacia arriba y hacia atrás, de modo que sobresalen a cada lado de la cabeza como dos mechones oblicuos. La nuca y todo el cuello son de un negro lustroso. Las plumas de la parte delantera del occipucio tienen la base y el centro blanquecinos, y, como el borde de las plumas rizadas de la coronilla es neto, deja ver una estrecha línea blanquecina entre ambas zonas (Beebe, 1918).
El negro del cuello pasa poco a poco al pardo en el manto y las alas, y todas las partes visibles de esas plumas son sueltas y como pelos, porque en toda la mitad distal las bárbulas se acortan bruscamente y desaparecen las bárbulas de enganche; incluso en la base hay pocas, de modo que la lámina de la pluma casi no tiene cohesión. Las coberteras y las secundarias son algo más firmes y tienen un fuerte lustre púrpura, y las barbas internas de las primarias tienen un brillo azulado. La zona inferior del dorso, la grupa y las supracaudales son de un blanco plateado apagado, a veces manchadas de pardo por el dorso; la parte inferior del cuerpo es parda, algo más pálida en los flancos y las subcaudales (Beebe, 1918; Delacour, 1977). Roles lo describe de un rico color chocolate, más oscuro en el cuello y el pecho, con el dorso, la grupa y casi toda la cola de un tono avena claro, igual que las plumas auriculares (Roles, 1976).
La cola de 22 plumas
La cola es, según Beebe, la gloria de esta ave de aspecto sombrío. Tiene 22 plumas y está muy graduada: las centrales son dos veces y media más largas que las externas. La mayor parte de cada pluma es de un blanco apagado que se ensucia de pardo hacia la punta, y el tercio terminal es negro pardusco, con brillo azul púrpura (Beebe, 1918). Los dos pares externos tienen la lámina compacta; desde el tercero hacia dentro, la barba externa se deshilacha, con las bárbulas más largas y curvadas, de modo que en el tercer par contando desde el centro los filamentos de la barba externa llegan a ser cuatro veces más largos que los de la interna. Los dos pares centrales son casi enteramente filamentosos, con solo una pequeña punta compacta, morada, con forma de espátula, que se dobla hacia abajo; las barbas cubren toda la cola cuando está cerrada (Beebe, 1918; Delacour, 1977).
En posición habitual, las plumas de la cola se mantienen en dos líneas casi verticales y los pares centrales, deshilachados, se alzan bien por encima de los demás; las puntas de los cuatro pares internos se curvan con fuerza hacia abajo (Beebe, 1918; Delacour, 1977). Madge y McGowan comparan los dos pares centrales, de láminas blandas y colgantes, con plumas de avestruz (Madge y McGowan, 2002); Wikipedia dice que los filamentos y las puntas cuelgan como una cola de caballo (Wikipedia (2026)).
Variaciones individuales
Beebe observó que en una buena parte de los machos hay una tendencia clara a que aparezca blanco en las alas: las bases de las primarias suelen ser claras o moteadas de blanco y, a veces, las barbas externas están muy vermiculadas de blanco; no es raro, además, que casi todas las plumas del vientre tengan una banda blanca terminal. También varía la proporción de negro y de pardo: a veces el negro brillante predomina tanto que el ave parece negra como el azabache, aunque eso se debe solo en parte, y poco, al desgaste, pues el plumaje es algo más pálido justo antes de la muda que recién mudado (Beebe, 1918).
Partes blandas: lo que dice cada fuente
| Parte | Ficha original | Delacour y Beebe | Madge y McGowan | Wikipedia | Libro del autor (2013) |
|---|---|---|---|---|---|
| Iris | marrón rojizo | pardo rojizo pálido | pardo rojizo | del amarillo anaranjado al pardo rojizo | marrón |
| Pico | cuerno rojizo | cuerno rojizo claro | cuerno rojizo | rosado | no se describe |
| Patas | carmesí | carmesí (Delacour); escarlata (Beebe) | carmesí | rojo coral | rosado |
| Piel de la cara | roja | roja (escarlata), con papilas | roja | roja, con pequeñas verrugas | roja |
| Espolón del macho | uno solo, corto | 10–13 mm, grueso y cónico (Beebe) | corto | presente | ausente o pequeño |
La ficha original, Delacour, Beebe y Madge y McGowan coinciden en lo esencial; Wikipedia (que sigue a un manual chino de aves de 2001) y el libro del autor dan, para pico y patas, tonos algo distintos (Beebe, 1918; Delacour, 1977; Hernández García, 2013; Madge y McGowan, 2002; Wikipedia (2026)).
Hembra
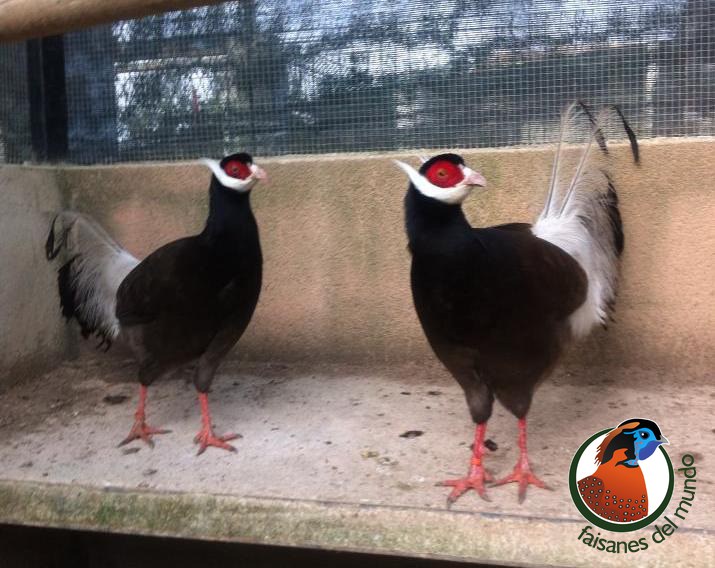
La hembra es muy parecida al macho en el plumaje, aunque suele ser algo menor y carece de espolones.


Beebe confirma que no hay diferencias decididas de color entre los sexos, salvo que la hembra es apreciablemente más pequeña; los espolones apenas se notan, como cortas escamillas puntiagudas (Beebe, 1918). Delacour precisa que, además de los espolones, el macho tiene el tamaño algo mayor, las patas más fuertes y las carúnculas rojas de la cara más redondeadas y extensas (Delacour, 1977). La hembra joven que describió Beebe tenía el plumaje posjuvenil pardo uniforme desde la coronilla hasta el dorso, con las plumas auriculares blancas muy pequeñas; el vientre era pardo, como las alas del adulto, y las alas y la cola eran como las del adulto, aunque la cola era más corta y de un blanco pardusco más sucio (Beebe, 1918). El libro del autor dice que la hembra es idéntica al macho (Hernández García, 2013).
Cómo se distinguen los sexos
Distinguir macho y hembra es difícil en esta especie, incluso en la mano. Delacour recuerda que, cuando faltan los espolones, algo que sucede a veces en ejemplares cautivos, y sobre todo en el orejudo marrón, o cuando la hembra los tiene, solo quedan como diferencias el tamaño, la fuerza de las patas y la forma de las carúnculas (Delacour, 1977); Gerrits dice lo mismo y subraya que esto sucede sobre todo en el orejudo marrón (Gerrits, 1974). Johnsgard, que sigue a Thompson (1976) sobre aves cautivas, afirma que el desarrollo del espolón es variable y no vale como criterio seguro de sexo, que tampoco la longitud ni el diámetro del tarso son totalmente fiables, y que las carúnculas del macho son siempre mayores, tanto a lo alto como a lo ancho; los machos adultos tienen además la voz algo más grave y pesan de media unos 225 g (media libra) más que las hembras (Johnsgard, 1986). Beebe, que observó un bando de 19 aves en libertad, solo pudo distinguir los sexos cuando de vez en cuando asomaban los espolones (Beebe, 1918).
Howman cuenta que Harry Hardy, de Southview Aviaries (Canadá), ha descubierto una técnica para sexar orejudos jóvenes: los botones de los espolones de las hembras son comprimidos en vertical y flexibles, y los de los machos, rígidos y de base redondeada (Howman, 1993). Johnsgard, citando a Grummt, da para los orejudos blancos de cría, y como dato orientativo, que hacia los tres meses y medio los machos tienen un espolón de 4–5 mm (Johnsgard, 1986). Los consejos de los criadores sobre cómo sexar una pareja figuran en el capítulo de cría en cautividad.
El polluelo de plumón
Los polluelos de plumón son rufos y negros por encima y blanco crema por debajo. El juvenil es moteado de pardo grisáceo oscuro, con las puntas de las plumas beige y la cola relativamente corta, y adquiere el plumaje adulto hacia los dos meses.
Delacour y Beebe describen el plumón (Beebe, 1918; Delacour, 1977): corona y cara de un amarillo ante apagado; en el occipucio y la nuca, una mancha rufa que baja por la parte trasera del cuello como una raya más oscura y se ensancha por la parte superior del cuerpo en un rufo muy mezclado de negro; dos rayas laterales blanco crema desde los hombros hasta la cola; una raya pardo chocolate oscuro, oblicua, que va del ojo a través de las coberteras auriculares hasta una mancha mayor en el lado del cuello, sin unirse a la raya de la nuca; y la barbilla, la garganta y las partes inferiores blanco crema. El plumón es largo y esponjoso, y su dibujo general se parece al de los pollos de Lophura, según Delacour (Delacour, 1977). Los pollos son nidífugos y, a los dos días de nacer, abandonan el nido y siguen a los padres (del Hoyo et al., 1994; Wikipedia (2026)). Los de la ficha original, rufos y negros por encima, coinciden con la descripción del HBW (rufo y negro encima, blanco crema debajo) (del Hoyo et al., 1994).
En los primeros días las plumas del ala crecen deprisa: Beebe observó en un pollo, cuando el ala medía 63 mm, siete primarias que crecían a partir de la primera y escápulas rufas con la punta ante y un gran ocelo pardo, redondo, en cada barba (Beebe, 1918).
Del polluelo al adulto: los plumajes según la edad
| Edad | Descripción | Fuente |
|---|---|---|
| Polluelo | Plumón largo y esponjoso, rufo y negro encima, blanco crema debajo; nidífugo | Delacour; HBW (del Hoyo et al., 1994; Delacour, 1977) |
| Juvenil | Pardo grisáceo oscuro, moteado por las puntas ante de las plumas; cola relativamente corta y compacta | Delacour; Madge y McGowan; ficha original (Delacour, 1977; Madge y McGowan, 2002) |
| Hacia las 8 semanas | Ya con el plumaje adulto («como el adulto a las ocho semanas») | Madge y McGowan (Madge y McGowan, 2002) |
| 2 meses | Adquiere el plumaje adulto | HBW; Delacour (del Hoyo et al., 1994; Delacour, 1977) |
| 3,5 meses (orejudos en general) | Se distinguen los sexos por el espolón de 4–5 mm del macho | Grummt, en Johnsgard (Johnsgard, 1986) |
| 4 meses | Los pollos ya se parecen a los adultos y a menudo pueden sexarse | Delacour (orejudos en general) (Delacour, 1977) |
| 5 meses | Plumaje adulto | Johnsgard (Johnsgard, 1986) |
| 5,5 meses (150–170 días) | El plumaje adulto se completa; peso de adulto a los 150 días | Felix y Grummt, en Johnsgard (Johnsgard, 1986) |
| 6 meses | Tamaño completo y plumaje adulto (aficionado francés) | Beebe (Beebe, 1918) |
| 1.er año | Plumaje adulto completo; muy poca fertilidad | Howman (Howman, 1993; Howman, 1996) |
| 2.º año | Tamaño completo, espolones y capacidad de criar (en cautividad); madurez sexual | Thompson, en Johnsgard; Chintaguay (del Campo, 2006; Johnsgard, 1986) |
Los rangos no coinciden entre sí ni se refieren siempre al orejudo marrón: dos filas son del género en general.
La muda
La muda de la cola del orejudo, como en todos los faisanes, es centrípeta (las plumas se renuevan de fuera adentro) (Johnsgard, 1986). Beebe, que describe las aves de las que disponía, menciona que el plumaje está algo más pálido justo antes de la muda (Beebe, 1918). En la bibliografía del HBW figura al menos un estudio chino sobre la muda de los pollos del orejudo marrón (del Hoyo et al., 1994), pero esta guía no ha podido consultarlo y no lo resume.
Cómo distinguirlo de los otros orejudos
| Rasgo | Marrón | Azul | Blanco (y Tíbet) |
|---|---|---|---|
| Plumas auriculares | Largas, visibles sobre la nuca | Largas, visibles sobre la nuca | Cortas; no sobresalen de la nuca |
| Color general | Pardo y blanco | Gris azulado | Blanco (el del Tíbet, gris pizarra) |
| Plumas de la cola | 22; blancas con el extremo oscuro | 24; con la base blanca en los pares externos | 20; tipo normal |
| Grupa y supracaudales | Blanco plateado | Gris azulado, más uniformes | Claras |
| Cola en posición normal | Comprimida y erguida | Comprimida y erguida | Plana, colgante |
Datos de Delacour, Madge y McGowan y Johnsgard; véase también la clave de la sección «Subespecies y variación» (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Medidas y peso
Los datos de la guía original, contrastados con la literatura.
El macho del faisán orejudo marrón mide de 96 a 100 cm de longitud, con alas de 28 cm, cola de 52 a 58 cm, tarsos de 10 cm y un peso de 2 kg. La hembra tiene la misma longitud, de 96 a 100 cm, con alas de 26 cm, cola de 44 a 56 cm, tarsos de 10 cm y un peso de 1,7 kg.
Es también el mayor de los faisanes orejudos: mide entre 96 y 100 cm de longitud (de 83 a 110 cm según otras fuentes). El macho pesa de 1.650 a 2.475 g, tiene un ala de 270 a 312 mm de cuerda y una cola de 51,8 a 58,2 cm; la hembra, algo menor, pesa de 1.450 a 2.025 g (2.026 g según otras fuentes) y tiene una cola de 44,7 a 57,6 cm.
Otras fuentes dan cifras algo distintas. Birds of the World indica una longitud de 96 a 100 cm; según Wikipedia, el faisán orejudo marrón mide entre 83 y 110 cm, lo que lo convierte en el mayor de su género. El macho pesa de 1.650 a 2.475 g y la hembra, de 1.450 a 2.025 g (2.026 g en otras fuentes), de modo que los 2 kg y los 1,7 kg de la tabla quedan dentro de esos intervalos. La cola mide de 51,8 a 58,2 cm en el macho y de 44,7 a 57,6 cm en la hembra, prácticamente lo mismo que indica la tabla, y el ala del macho mide de 270 a 312 mm de cuerda.
Medidas según distintas fuentes
Casi todas las cifras publicadas proceden de las mismas pocas series: las de Beebe (1918) sobre un macho y una hembra, que repiten Delacour y Gerrits, y las de Cheng y colaboradores (1978), con ocho machos y ocho hembras, que recogen Johnsgard, Madge y McGowan y el HBW. A ellas se añaden las del manual chino de Zhao (2001), que cita Wikipedia (Beebe, 1918; del Hoyo et al., 1994; Delacour, 1977; Gerrits, 1974; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (2026)).
| Fuente | Longitud ♂ | Longitud ♀ | Cola ♂ | Cola ♀ | Peso ♂ | Peso ♀ |
|---|---|---|---|---|---|---|
| Tabla original de esta guía (Hernández, 2013) | 96–100 cm | 96–100 cm | 52–58 cm | 44–56 cm | 2 kg | 1,7 kg |
| Beebe (1918), un macho y una hembra | 1.000 mm | — | 544 mm | 520 mm | — | — |
| Delacour (1977) y Gerrits (1974) | 1.000 mm | — | 544 mm | — | — | — |
| Cheng et al. (1978), en Johnsgard (1986) | — | — | 518–582 mm | 447–576 mm | 1.650–2.475 g | 1.450–2.025 g |
| Felix (1964), en Johnsgard (1986) | — | — | — | — | 1.700–2.050 g | 1.500–1.750 g |
| Madge y McGowan (2002) | 96–100 cm | 96–100 cm | 518–582 mm | 447–576 mm | 1.650–2.475 g | 1.450–2.025 g |
| HBW (1994) | 96–100 cm | 96–100 cm | — | — | 1.650–2.475 g | 1.450–2.025 g |
| Zhao (2001), en Wikipedia (2026) | 985–1.074 mm | 830–1.050 mm | 518–582 mm | 447–576 mm | 1.650–2.475 g | 1.450–2.026 g |
| Wikipedia (texto introductorio) | 83–110 cm | |||||
| Roles (1976) | 40 pulgadas | — | — | — | — | — |
| Criadero Chintaguay (el género) | — | — | — | — | ≈ 2 kg | ≈ 1,8 kg |
Madge y McGowan y el HBW no distinguen la longitud de los sexos. Roles da la longitud como 40 pulgadas, unos 102 cm (Beebe, 1918; del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977; Gerrits, 1974; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976; Wikipedia (2026)).
| Medida | Macho | Hembra | Fuente |
|---|---|---|---|
| Ala | 270–312 mm (tabla original: 28 cm) | 265–290 mm (tabla original: 26 cm) | Cheng et al.; Madge y McGowan; Zhao |
| Ala (ejemplares únicos) | 306 mm | 290 mm | Beebe |
| Tarso | ≈ 100 mm (92–101 mm) | 94 mm (89–97 mm) | Beebe; Delacour; Madge y McGowan; Zhao |
| Culmen o pico | 32 mm (41–42,5 mm) | 37,5–42 mm | Delacour; Zhao |
| Espolón | 10–13 mm | apenas perceptible | Beebe |
| Envergadura | no se da en las fuentes revisadas |
Entre paréntesis, los valores de Zhao (2001), citado por Wikipedia. La diferencia de culmen entre Delacour (32 mm) y Zhao (41–42,5 mm) puede deberse a que se miden desde puntos distintos (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002; Wikipedia (2026)).
Peso del macho y de la hembra
Los 2 kg y los 1,7 kg de la tabla original caen dentro de los intervalos que dan Cheng y colaboradores y Madge y McGowan, lo que sugiere que la ficha original usa valores medios redondeados (Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002). Chintaguay da como peso típico del género unos 2 kg para el macho y unos 1,8 kg para la hembra (del Campo, 2006). Johnsgard indica además que, en cautividad, los machos pesan en promedio media libra, unos 225 g, más que las hembras (Johnsgard, 1986).
Crecimiento de los pollos
Johnsgard recoge para el orejudo marrón que el peso medio al nacer es algo superior a 40 g: trece pollos recién nacidos en el zoo de San Diego pesaron de 38,5 a 45 g (media de 41,4 g), y a las cuatro semanas el peso medio era de 309 g (Johnsgard, 1986). Para los orejudos en general, según Felix (1964), citado por Johnsgard en el apartado del orejudo blanco, el peso es de unos 40 g al nacer, 85 g a los 10 días y unos 600 g a los 50 días (con las hembras de 50 a 70 g más ligeras que los machos); a los 100 días los machos pesan unos 1.500 g y las hembras 1.350 g, y a los 150 días ya tienen el peso adulto (Johnsgard, 1986).
| Edad | Peso aproximado | Fuente |
|---|---|---|
| Al nacer | 38,5–45 g (media 41,4 g; 13 pollos) | Rimlinger, en Johnsgard (orejudo marrón) |
| 10 días | ≈ 85 g | Felix, en Johnsgard (orejudos en general) |
| 4 semanas | ≈ 309 g (media) | Rimlinger, en Johnsgard (orejudo marrón) |
| 50 días | ≈ 600 g | Felix, en Johnsgard (orejudos en general) |
| 100 días | ♂ ≈ 1.500 g · ♀ ≈ 1.350 g | Felix, en Johnsgard (orejudos en general) |
| 150 días | peso de adulto | Felix, en Johnsgard (orejudos en general) |
Los datos del género proceden de las observaciones de Felix sobre orejudos en general; no son específicos del marrón (Johnsgard, 1986).
El huevo
Las medidas del huevo se recogen en el capítulo de reproducción, junto con una tabla de lo que da cada fuente.
Distribución y hábitat
Un puñado de macizos montañosos del norte de China, aislados entre sí.
El faisán orejudo marrón vive en el norte de China. En la actualidad su área se reduce a localidades dispersas de Shaanxi, Shanxi, el noroeste de Hebei y una población cercana a Pekín, en bosques situados entre 1.100 y 2.600 m de altitud, aunque otras fuentes lo mantienen siempre por debajo de los 2.500 m. Fue importado a Europa en 1864.

Área de distribución
La especie es endémica del noreste de China y hoy se restringe a localidades dispersas del centro-este de Shaanxi (condados de Yichuan, Huanglong y Hancheng), el oeste de Shanxi (Luya Shan y Luliang Shan, o montes Lüliang) y las montañas del noroeste de Hebei, entre ellas los montes Xiaowutai, además de una población cercana a Pekín, en Dongling Shan.
Madge y McGowan la describen igual: subsiste en unos pocos puntos de Luya Shan y Luliang Shan, en Shanxi, y en Xiaowutai Shan, en la vecina Hebei, y hay una pequeña población en Dongling Shan, al borde occidental del municipio de Pekín (Madge y McGowan, 2002). El HBW la cifra en cinco áreas muy separadas, de las cuales cuatro son reservas (tres en Shanxi y una en Hebei) y una población, hallada hace poco, cerca de Pekín (del Hoyo et al., 1994). Madge y McGowan dicen que el hábitat adecuado está hoy concentrado en cinco o seis zonas (Madge y McGowan, 2002). BirdLife, que se basa en Li y colaboradores (2016), cuenta que antes estaba extendida por Shanxi, por el este y el centro de Shaanxi y por el oeste y el norte de Hebei, y que hoy se limita a Huanglongshan (Shaanxi), a los montes Luliang (oeste de Shanxi), a Xiaowutai (Hebei) y a partes de los montes Baihua, al oeste de Pekín (BirdLife, 2024).
| Fuente | Cómo describe el área |
|---|---|
| Beebe (1918) | Provincias de Chihli (mitad occidental) y Shansi; el límite occidental es el río Amarillo y el septentrional probable, la Gran Muralla |
| Delacour (1977) | Oeste de China, en las montañas del noroeste de Shansi y del noroeste de Chihli; probablemente extinta en esta última |
| Johnsgard (1986), sobre Vaurie (1965) | Sur de Chahar, en Mongolia Interior (hasta quizá el este de Suiyuan, 70 km al oeste de Changkiakow o Kalgan), norte y noroeste de Hopeh y Shansi hasta la región de Yangku |
| Roles (1976) | Norte de China y Mongolia Interior, en regiones montañosas de altura |
| Howman (1993) | Centro-este de China; buena población en la reserva de Pangquangou y una pequeña población nueva cerca de Pekín |
| Madge y McGowan (2002) | Unos pocos puntos de Luya Shan y Luliang Shan (Shanxi) y Xiaowutai Shan (Hebei); pequeña población en Dongling Shan (Pekín) |
| HBW (1994) | Noreste de China; cinco áreas muy separadas, cuatro de ellas reservas (tres en Shanxi y una en Hebei), y una población cerca de Pekín |
| Fuller y Garson (2000) | Luliang Shan, «en el oeste de Shaanxi» (así lo escriben), y montañas del noroeste de Hebei, el oeste de Pekín y el centro de Shaanxi |
| Avibase, según Clements | Bosque de montaña del noreste de China (Liaoning y Shanxi) |
| BirdLife (2024) | Endémica de China; hoy limitada a Huanglongshan (Shaanxi), montes Luliang (Shanxi), Xiaowutai (Hebei) y parte de los montes Baihua, al oeste de Pekín; 160.500 km² de extensión de presencia |
| Ficha original (BOW) | Localidades dispersas de Shaanxi, Shanxi y Hebei, y Dongling Shan; unos 147.000 km² |
| Wikipedia (2026) | Montes Xiaowutai (noroeste de Hebei), noroeste de Shanxi y montes Lüliang |
Algunas fuentes mezclan Shaanxi (陕西) con Shanxi (山西), dos provincias distintas: Luliang Shan y Pangquangou están en Shanxi, y el HBW sitúa «en Shaanxi» las reservas de Pangquangou y de Xiaowutai, siendo esta última de Hebei. La diferencia de superficie (160.500 y 147.000 km²) se conserva sin elegir. Liaoning solo la nombra Avibase (Clements) (Avibase; Beebe, 1918; BirdLife, 2024; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976; Wikipedia (2026)).
Hábitat
Vive en bosques montanos caducifolios de hoja ancha y en bosques mixtos de coníferas con un denso sotobosque de arbustos, entre 1.100 y 2.600 m. En Shanxi se localizaron siete nidos entre 1.800 y 2.150 m, en bosques de alerce y de picea. Descansa en los árboles, en pendientes más pronunciadas, cerca del agua y lejos de los bordes del bosque y de posibles molestias. Se cree que solo realiza movimientos estacionales limitados.
BirdLife precisa que cría en bosque de coníferas o en bosque mixto de coníferas y frondosas hasta 2.600 m y que en invierno baja a los 1.100 m como mínimo, a los matorrales de borde de bosque en las laderas orientadas al sur; en el oeste de Pekín no se halló por debajo de los 1.000 m. Es la especie de su género que vive a altitudes mucho más bajas, y la clasifica como ave terrestre de dependencia alta del bosque, con presencia residente y principal en el bosque templado y el matorral templado (BirdLife, 2024). Wikipedia añade que en verano y otoño prefiere el bosque mixto secundario de coníferas y frondosas o el de coníferas, y que en invierno baja a campos de frondosas, bordes de bosque y matorral a menor altura; busca espacios abiertos dentro del bosque o pastizales en su borde y duerme en los árboles (Wikipedia (2026)).
| Fuente | Altitud |
|---|---|
| BirdLife (2024) | 1.100–2.600 m (en invierno, mínimo 1.100 m; límite ocasional 1.000 m) |
| Madge y McGowan (2002), texto | 1.100–2.600 m |
| Madge y McGowan (2002), pie de lámina | 1.300–2.500 m («bosques alpinos») |
| HBW (1994) | 1.300–2.500 m |
| Fuller y Garson (2000) | cría hasta 2.600 m; en invierno, a 1.100 m como mínimo |
| Johnsgard (1986), sobre Felix (1964) | 1.800–3.500 m |
| Wikipedia (2026) | por debajo de 2.500 m; nidos entre 1.800 y 2.500 m |
| Siete nidos en Shanxi | 1.800–2.150 m, en bosques de alerce y de picea |
Las diferencias vienen de métodos y épocas distintos; las cifras de Johnsgard se refieren a un hábitat subalpino algo más alto que el que dan las fuentes modernas (BirdLife, 2024; del Hoyo et al., 1994; Fuller y Garson, 2000; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (2026)).
Cómo describieron el hábitat los autores clásicos
Beebe, que buscó la especie en las montañas de Shansi, la encontró en un país ondulado, desnudo y rocoso, de montañas irregulares y valles profundos que se hunden hasta las llanuras exteriores. En las partes áridas, la vegetación consistía en arbustos leñosos bajos y hierba basta; donde el suelo y la exposición al sur lo permitían había bosquetes de pino y de abedul blanco, rara vez de más de 4,5–6 m, y robles achaparrados de 2–3 m, muy retorcidos y rugosos (Beebe, 1918). Los observadores competentes que consultó le aseguraron que las aves son residentes todo el año en ese tipo de región (Beebe, 1918).
Delacour la describe en montañas pedregosas, rocosas y desnudas con matorrales, hierba basta y rodales de árboles escasos y achaparrados, como coníferas o abedules; Johnsgard, en bosques subalpinos de abedules, robles y pinos, cuyos árboles apenas alcanzan los 5 m, con el límite arbóreo en Gansu y Shanxi hacia los 3.500 m y el de la tundra herbosa hacia los 3.800 (Delacour, 1977; Johnsgard, 1986). Son descripciones generales, basadas en observaciones antiguas, y no tienen por qué corresponder a las zonas de las reservas actuales.
Áreas protegidas
Cuatro reservas naturales son clave para la especie: Luyashan, Pangquangou, Wulushan y Xiaowutai Shan, y hay datos de aumento numérico en Luyashan y Pangquangou desde su creación; en 2001 se creó la reserva natural provincial de Huanglongshan, en el condado de Huanglong (BirdLife, 2024; Fuller y Garson, 2000). Las estimas de Beebe, del HBW y de BirdLife se discuten en el capítulo de conservación. BirdLife cuenta siete áreas importantes para las aves (IBA) —Xiaowutai, Dongling Shan, Luya Shan, Pangquangou, Tianlongshan, Wulu Shan y Huanglong Shan— con 2.071 km² en total (BirdLife, 2024).
Más información en otras fuentes
Birds of the World · Wikipedia · BirdLife DataZone · Avibase
Sonidos y llamadas de la especie
Comportamiento y voz
Aves sociables y mansas, que corren cuesta arriba y planean cuesta abajo.
Fuera de la época de cría el orejudo marrón vive en bandos, y de todos los faisanes es uno de los más gregarios. Beebe lo atribuye a la falta de belicosidad de los machos, que en otros faisanes es la causa principal de las disensiones entre bandos y familias (Beebe, 1918; Delacour, 1977).
Locomoción y huida
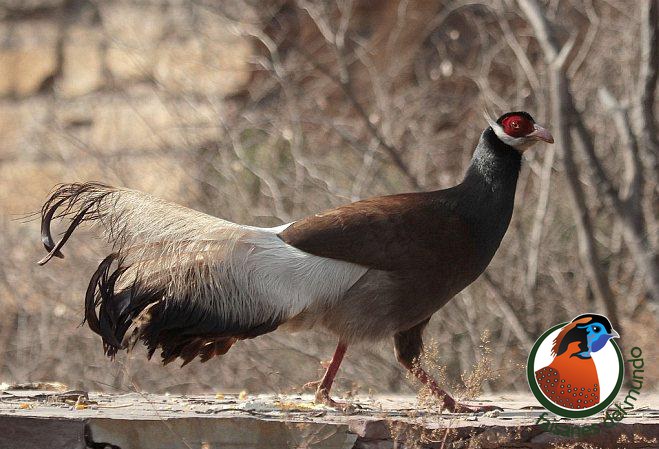
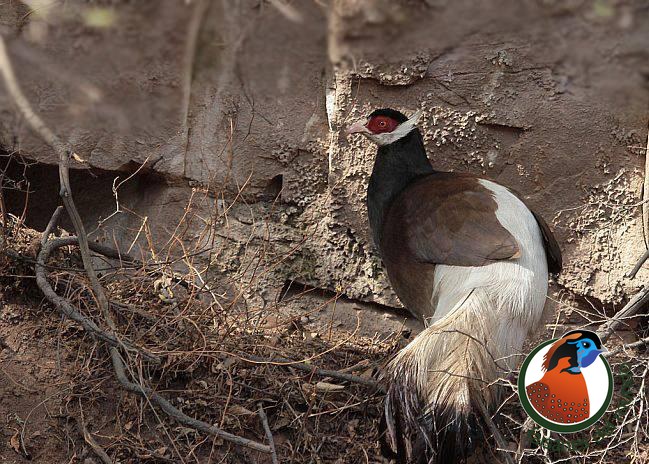
Camina con paso lento y digno, con la cola larga y suelta bien alta; Beebe señala que las puntas curvas y colgantes de las plumas más largas eliminan toda la alerta que da al faisán común su cola puntiaguda (Beebe, 1918). Cuando se le molesta corre, y muy deprisa, cuesta arriba: cada paso es un salto que lo lleva con un trote constante, como de avestruz. Si el perseguidor se detiene, sigue corriendo hasta la cima y baja por la otra ladera; pero si se ve perseguido de cerca, se lanza desde el punto más alto y planea a un valle lejano o a la ladera de enfrente (Beebe, 1918). Es mal volador: las alas, extendidas al máximo, baten con esfuerzo e irregularidad; el vuelo rara vez pasa de unos 180 m (doscientas yardas), con frecuencia se queda en 18–27 m (veinte o treinta yardas), y Beebe duda de que pueda volar cuesta arriba o en llano (Beebe, 1918). Delacour y Wikipedia describen lo mismo: corre hacia arriba y solo vuela al llegar a las crestas, planeando hacia el valle o la ladera de enfrente (Delacour, 1977; Wikipedia (2026)). Al alzar el vuelo no emite ninguna nota de alarma, a diferencia de otros faisanes, que gritan frenéticamente (Beebe, 1918).
Ante un ave de presa que sobrevuela, se agazapa y se queda inmóvil, confiando en su coloración parda, y solo se escabulle hacia el matorral cuando el ave se ha ido (Beebe, 1918); Johnsgard, citando a Beebe y a Cheng, resume que ante las rapaces se queda inmóvil y ante los mamíferos corre cuesta arriba o hacia el cobijo más cercano (Johnsgard, 1986). Beebe se maravilló de que quedaran casi invisibles mientras estaban quietas, como piedras cubiertas de líquenes y de hierba seca, y dejaran de serlo en cuanto movían una pata o giraban la cabeza (Beebe, 1918; Beebe, 1926).
Vida social
Beebe observó en Shansi, un día de principios de abril, cómo pasaba, a entre 9 y 18 m (diez a veinte yardas) de su tienda, un bando de 19 aves, que comían mientras avanzaban y escarbaban en torno a las matas de hierba hasta que caían y dejaban las raíces al descubierto. Iba con ellas, aunque algo aparte, un ciervo almizclero. Las aves no emitieron ningún sonido (Beebe, 1918; Beebe, 1926). Observó además que había tantos individuos vigilantes y nerviosos entre las hembras como entre los machos, de modo que la cautela no distinguía los sexos, y que en las partes más abiertas la vigilancia se relajaba algo, aunque siempre había varias cabezas erguidas atentas a un posible peligro (Beebe, 1918).
Los bandos de invierno son de 10 a 30 aves, y Beebe cuenta que, en un día de marcha en línea recta, llegó a contar 33 repartidas en tres bandos; Johnsgard, que lo cita, escribe cinco bandos (Beebe, 1918; Johnsgard, 1986). Madge y McGowan hablan de bandos de entre 10 y 30 aves fuera de la época de cría, en los que a veces siguen siendo visibles las parejas, y la ficha original recoge lo mismo (Madge y McGowan, 2002). Wikipedia describe un calendario más fino: los bandos se forman a principios de julio y alcanzan de 20 a 60 aves a finales de septiembre; tienen una jerarquía clara, con un macho grande y dominante al frente y otro ave en forma como centinela; pasan casi todo el día alimentándose, descansan y se bañan en polvo hacia el mediodía y siguen rutas fijas hacia los lugares de alimentación, en fila poco ordenada. Cuando se asustan se dispersan y el jefe reagrupa luego a jóvenes con adultos, a hembras con machos y a aves sueltas con los bandos (Wikipedia (2026)).
Los machos y las hembras no se separan aun en invierno: Beebe vio, en un bando de cinco, una división muy clara en dos parejas, cada una de las cuales se mantenía y trabajaba junta, y piensa que los que parecen viejas parejas se van tranquilamente al romperse el bando en primavera, lo que sugiere que el lazo de pareja se mantiene a lo largo del invierno (Beebe, 1918; Johnsgard, 1986). En captividad, un grupo de varios orejudos en una pajarera estrecha suele mantenerse siempre muy junto, sin que ninguno, macho o hembra, tome la iniciativa; Beebe los describe como aves más bien torpes, pero muy aficionadas a la compañía de los suyos (Beebe, 1918). Delacour afirma que esa sociabilidad es probablemente más acusada que en cualquier otro género de la familia (Delacour, 1977).
Territorio y peleas entre machos
En primavera los bandos se separan en parejas. Los territorios se defienden sobre todo de abril a junio (del Hoyo et al., 1994); Wikipedia cuenta que cada pareja ocupa normalmente una ladera, en un territorio de 0,7 a 1,3 ha, y que los machos rechazan a los intrusos, a veces con peleas físicas hasta que el rival se retira (Wikipedia (2026)). Beebe no llegó a ver peleas, pero un cazador que había disparado a algunas mientras se enfrentaban dijo que eran siempre jóvenes; Beebe concluye que al romperse los bandos los jóvenes buscan pareja y que entre ellos se dan casi todas las peleas, que, por lo que cuentan quienes las han visto, son bastante tranquilas: los espolones, cortos y robustos, no permiten combates sangrientos como los de los gallofaisanes (Beebe, 1918). Delacour escribe que en primavera no se pelean mucho ni nunca con saña (Delacour, 1977).
Dormideros y agua
Beebe no llegó a asegurarse de haber hallado un dormidero, pero los indicios (mucho rastro y plumas, y el hecho de que las aves llegaran a las ramas altas saltando de rama en rama) lo convencieron de que un pequeño pinar de pinos de menos de 4,5 m, con las ramas dispuestas al sudeste por los vendavales, lo era. Duermen en lo alto, protegidas por el follaje y por la altura de los enemigos del suelo (Beebe, 1918). Delacour da que duermen en los árboles (Delacour, 1977). El agua es una necesidad aparentemente diaria: Beebe vio a un bando de una docena de aves bajar de la ladera por la tarde a un arroyo, extenderse en línea y beber con ganas el agua helada, y volver luego arriba hacia el matorral (Beebe, 1918).
Movimientos
Se cree que realiza solo movimientos estacionales limitados (del Hoyo et al., 1994). Beebe supone que el desplazamiento altitudinal anual es menor de lo que cabría esperar: incluso en verano no se encuentran en las cumbres, y piensa que se mantienen todo el año en los niveles medios; una nevada muy profunda las obligaría a bajar, pero son capaces de escarbar agujeros hondos para llegar al suelo (Beebe, 1918). Delacour la considera sedentaria y señala que casi nunca se aleja de sus alrededores, ni siquiera en los inviernos más duros (Delacour, 1977). BirdLife precisa que en invierno baja a un mínimo de 1.100 m, a matorrales del borde del bosque en laderas orientadas al sur (BirdLife, 2024).
Depredadores y competidores
Beebe cita tres mamíferos que probablemente cobran su tributo, por orden de peligrosidad: zorros, leopardos y lobos; no entiende por qué los zorros, muy comunes en la región, no exterminan a unas aves tan grandes y pesadas (Beebe, 1918). Johnsgard, que sigue a Beebe y a Cheng, añade aves de presa, y recuerda que el orejudo marrón es un excavador y probablemente no tiene competidores directos (Johnsgard, 1986). En las mismas zonas viven faisanes comunes de collar, pero Beebe no los vio cerca de los orejudos, porque estos suben a niveles más altos y los otros se quedan en los bajos (Beebe, 1918). Cuando un águila apareció sobre la ladera opuesta, los orejudos que Beebe observaba se agazaparon antes de que él la viera; para él, los halcones y las grandes águilas son enemigos peligrosos, y la compañía de los ciervos almizcleros quizá les aporta, además de la vista y el oído, el olfato (Beebe, 1918).
La voz del macho
En la época de cría, el macho emite una llamada parecida a la del faisán orejudo azul, que empieza suave, aumenta rápidamente de volumen, puede durar hasta un minuto y a veces termina de forma brusca.
Beebe, que la oyó en libertad, la transcribe como trip-c-r-r-r-r-ah, que a veces se corta en una frase breve y rodada y a veces se alarga mucho; empieza baja y suave, sube enseguida de volumen y puede durar un minuto entero, aparentemente sin que el ave respire, aunque no pudo asegurarlo (Beebe, 1918). El macho la emite de pie, con el cuello estirado y el pico casi vertical, la cola algo alzada y las dos plumas centrales muy por encima de las demás, desde el suelo, desde una piedra redondeada o desde las ramas de un roble bajo y retorcido; un informante la comparó con una mezcla de la nota de la pintada y la del pavo real (Beebe, 1918). Beebe la oyó también a miembros de un bando a principios de primavera, y la llamada, que se emite incluso cuando las aves ya están emparejadas, es más un desafío o una advertencia de que la zona y la pareja están ocupadas; los cazadores le aseguraron que nunca la habían oído en verano, otoño ni invierno, y que en primavera se emite al amanecer y al anochecer, casi nunca a mediodía (Beebe, 1918). En cautividad la llamada es menos desarrollada, y la más larga que cronometró duró 15 s (Beebe, 1918).
Delacour describe para los orejudos una llamada de amor, emitida a menudo por ambos sexos al unísono, que es un resonante trip-crrra-ah repetido, cada vez más fuerte, a veces durante treinta segundos; el reclamo de alarma es un wrack agudo y repetido, y al alimentarse emiten constantemente un maullido arrastrado que acaba en una nota alta, cuco (Delacour, 1977). Madge y McGowan transcriben la llamada como trip crrrr ah y recuerdan que puede durar hasta un minuto (Madge y McGowan, 2002). Beebe describe además una voz de contento, parecida a la del gallo doméstico, que repetida como wak-wak expresa sospecha o aprensión; los orejudos son charlatanes, y entre sí mantienen conversaciones en voz baja (Beebe, 1918).
| Fuente | Cómo se transcribe o describe la voz |
|---|---|
| Beebe (1918) | trip-c-r-r-r-r-ah; hasta 60 s en libertad y 15 s en cautividad; wak-wak de sospecha |
| Delacour (1977) | trip-crrra-ah, a veces al unísono por macho y hembra, hasta 30 s; cuco al alimentarse; wrack de alarma (para el género) |
| Madge y McGowan (2002) | trip crrrr ah; empieza suave, sube de volumen y puede durar un minuto; quizá semejante a la del orejudo azul |
| Wikipedia (2026) | gu-ji o gu-gu, entre individuos y entre padres y polluelos; ji-ji de alarma; gua-gua-gua en el cortejo |
| Ficha original | Llamada del macho en la época de cría, parecida a la del orejudo azul, de hasta un minuto |
Thompson (1976), en Johnsgard, no halló diferencias acústicas claras entre las llamadas del orejudo azul y las del marrón, ni siquiera con sonogramas (Beebe, 1918; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (2026)).
Según Thompson (1976), que trabajó con aves cautivas en el estado de Nueva York, el macho empieza a llamar en enero, aumenta mucho en marzo, alcanza el máximo en abril, apenas llama en mayo, calla en junio y julio y tiene un segundo pico en agosto en el que llaman también las hembras. Casi todo el año llaman los dos sexos, pero en marzo casi solo los machos; en abril, la llamada del macho es intensa y baja mucho cuando empiezan la fecundación y la puesta (Johnsgard, 1986).
Alimentación
Raíces, bulbos y brotes que desentierra con el pico.
En libertad, la base de su alimentación es vegetal (brotes, hojas, semillas, bulbos y bayas silvestres), complementada con una pequeña proporción de alimento animal, sobre todo invertebrados, cuya importancia varía según la estación y la disponibilidad de recursos en su entorno de montaña. Se han registrado 62 especies de plantas, hongos y animales como alimento; entre los principales figuran Allium macranthum, Hippophae rhamnoides, Cacalia hastata, Fragaria orientalis y Vicia cracca.
En libertad
Suele verse en pequeños grupos que escarban alrededor de los macizos de hierba para comer raíces. Fuera de la época de cría se han citado grupos mayores, de 10 a 30 aves, en los que a veces siguen siendo visibles las asociaciones de pareja.
El HBW y la ficha original citan las cinco plantas principales: una cebolla de flor grande (Allium macranthum), el espino amarillo (Hippophae rhamnoides), Cacalia hastata, una fresa oriental (Fragaria orientalis) y la arveja de pájaros (Vicia cracca), dentro de un total de 62 especies de plantas, hongos y animales (BOW, 2020; del Hoyo et al., 1994). Madge y McGowan resumen que se alimenta sobre todo de plantas y que se la ve escarbando en las matas de hierba en busca de raíces, bulbos y tubérculos (Madge y McGowan, 2002). Wikipedia añade que come principalmente materia vegetal variada y un poco de alimento animal, con una dieta que cambia con la estación (Wikipedia (2026)).
Beebe, que estudió el contenido de buches y mollejas, dice que la especie es esencialmente excavadora: usa para ello la gran mandíbula superior, fuerte y curva, y su alimento habitual consiste en tubérculos, finas raicillas e insectos. Le sorprendió que las raicillas de las gramíneas fueran un alimento regular, pero comprobó que en algunos sitios rocosos, al menos a principios de primavera, eran más suculentas que los tallos y las hojas secas (Beebe, 1918). Son muy omnívoras, y pocas hojas, brotes, semillas o granos suculentos les sientan mal: Beebe halló el buche de un ave repleto de bellotas, muchas aún dentro de su cúpula, y en la molleja trituradas a pasta otras tragadas antes, con ayuda de guijarros y arena (Beebe, 1918). Como los monales, probablemente nunca escarba con las patas (Beebe, 1918). Père David, citado por Elliot, halló en tres aves cazadas en julio el buche lleno de hojas de Cytisus, y en las de invierno, nueces, pepitas, hojas de artemisa y de helechos y, sobre todo, raíces de orquídeas y de otras plantas suculentas, escarabajos, gusanos y orugas (Beebe, 1918; Elliot, 1872). Johnsgard resume el menú con tubérculos, bulbos, bellotas, raíces, semillas, hojas, tallos, brotes, insectos y lombrices de tierra (Johnsgard, 1986).
Cuando viven cerca de aldeas, a veces comen mijo, cebada y otros granos que han quedado, pero la especie no tolera bien la presencia humana y suele dejar esos lugares al faisán común, que sí vive junto a las aldeas (Beebe, 1918).
| Alimento | Fuente |
|---|---|
| Raíces, bulbos y tubérculos que desentierra | Madge y McGowan; Beebe; Johnsgard |
| Raicillas de gramíneas, sobre todo en primavera temprana | Beebe |
| Bellotas, avellanas y pepitas | Beebe; Père David (en Elliot); Johnsgard |
| Hojas de Cytisus (julio); artemisa y helechos (invierno) | Père David (en Elliot) |
| Raíces de orquídeas y otras plantas suculentas | Père David (en Elliot) |
| Escarabajos, gusanos, orugas, insectos y lombrices | Père David (en Elliot); Johnsgard |
| 62 especies de plantas, hongos y animales; cinco principales (Allium macranthum, Hippophae rhamnoides, Cacalia hastata, Fragaria orientalis, Vicia cracca) | HBW; ficha original |
| Mijo, cebada y otros granos cerca de las aldeas | Beebe |
(Beebe, 1918; BOW, 2020; del Hoyo et al., 1994; Elliot, 1872; Johnsgard, 1986; Madge y McGowan, 2002)
En cautividad
Son aves muy resistentes, que soportan muy bien el clima de Europa. Un buen pienso para faisanes acompañado de frutas y hortalizas (tomates, puerros, lechugas...) es suficiente para mantenerlos en forma, y en ocasiones es bueno darles trigo en distintas cantidades, ya que para ellos es como una golosina. Aunque son animales duros, son a la vez muy sensibles a los parásitos, por lo que hay que extremar el cuidado y realizar de 2 a 3 desinfecciones anuales.
Los criadores coinciden en lo esencial: la dieta normal de faisanes, con mucha verdura y raíces. Delacour y Roles advierten que la falta de celulosa en la dieta lleva a las aves, sobre todo en recintos pequeños, a arrancarse las plumas de la cola unas a otras, un vicio muy difícil de corregir, y que conviene dar buenas cantidades de verdura y de raíces, además de espacio (Delacour, 1977; Gerrits, 1974; Roles, 1976). Roles recomienda un pienso de alto contenido proteico, tipo de los que se dan a pavos reproductores, con grano y fruta ocasionales y una buena ración de verde (Roles, 1976). El criadero Chintaguay resume para todos los orejudos que basta con un pienso compuesto para faisanes y algo de grano para mantenerlos en buena forma, y que necesitan un jaulón espacioso con tierra o arena de buen drenaje en que puedan escarbar y buscar insectos y raíces (del Campo, 2006). Howman añade que el orejudo marrón come la dieta normal de los faisanes, pero que es un gran excavador (Howman, 1993).
Cerca de Nueva York, a principios del siglo XX, Beebe vio criar aves con una dieta de huevo duro, huevos de hormiga, saúco y moras, arroz hervido, cáñamo y, al crecer, otros granos; les gustaban las larvas de escarabajo pero no tocaban las lombrices rojas comunes. En invierno, lechuga y repollo, y alguna forma de alimento animal, completarían, según él, un régimen ideal (Beebe, 1918). Es el dato de una época y no una pauta actual.
Cortejo y exhibición
Un baile de lado, con la cola abierta y el ala rozando el suelo.
El paso previo a la parada nupcial consiste en alimentar a la hembra y, a continuación, bailar en torno a ella. El macho, además, hincha las plumas, baja la cabeza y despliega la cola.
La estación del cortejo
La formación de las parejas empieza a mediados de marzo; a principios de abril las parejas establecen sus territorios y se mueven y alimentan juntas, y el macho emite entonces repetidamente un gua-gua-gua rítmico (Wikipedia (2026)). En aves cautivas, Thompson (1976) comprobó que el macho llama poco en enero, mucho más en marzo, al máximo en abril y muy poco en mayo, y que en junio y julio no llama; un segundo pico de llamadas, en agosto, incluye también a las hembras (Johnsgard, 1986).
Las fases del cortejo
Johnsgard, apoyándose en Thompson (1976), describe el cortejo del orejudo marrón como una secuencia (Johnsgard, 1986):
- Ofrenda de comida. El macho ofrece alimento y llama a la hembra. Es la primera fase y es típica de las aves que forman pareja por primera vez; el comportamiento del orejudo es un término medio entre el macho que se queda inmóvil sobre la comida mientras llama a la hembra y el que recoge y suelta el alimento varias veces delante de ella.
- Exhibición lateral. El macho se pone de lado ante la hembra, ensancha las carúnculas de la cara, deja caer las primarias del lado más cercano a ella hasta que rozan el suelo, eriza las plumas de la grupa y las supracaudales y abre la cola; mete la cabeza hacia el pecho e inclina el cuerpo y la cola hacia ella.
- Respuesta de la hembra. Cuando está dispuesta, se agacha y mueve la cabeza adelante y atrás, en arco, con el pico recogido hacia el pecho. Casi invariablemente, según Thompson, esto estimula al macho a montarla.
- Cópula. Puede producirse tras una breve persecución o tras la invitación de la hembra.
Delacour describe la parada del macho de los orejudos como un correr de acá para allá y llamar, con las alas bajas, la cola levantada y el cuerpo de lado, las carúnculas rojas de la cara extendidas y el cuello redondeado, parecido al de los gallofaisanes; no hace zumbar las alas. Persigue a la hembra a grandes distancias mientras ella finge huir, hasta que al fin se agacha ante él (Delacour, 1977). Roles, hablando del género, la define como una larga persecución en carrera, acompañada de un sencillo desfile: alas bajas, cola enhiesta, cuello arqueado como el de un caballo de carreras, con las carúnculas vivas y dilatadas, el macho caminando de lado en torno a la hembra (Roles, 1976). En los orejudos, el aleteo durante la exhibición, tan frecuente en otros faisanes, es desconocido (Johnsgard, 1986).
Beebe observó la misma postura lateral en aves cautivas, pero dirigida contra su cuidador, cuando algún individuo irritable se acerca de lado para atacarlo: el ala más próxima baja, la contraria sube, y la cola se abre más que en cualquier otro momento, claramente como objeto principal de la exhibición o de la intimidación. Beebe supone que es también la exhibición del cortejo (Beebe, 1918).
La llamada del macho
La voz del macho en la época de cría, que se describe en el capítulo anterior, forma parte del cortejo: el macho la emite con el cuello estirado hacia arriba y el pico casi vertical, y en el cortejo se oye un gua-gua-gua rítmico (Beebe, 1918; Wikipedia (2026)).
Cómo se ve en pajarera
En cautividad el cortejo es agotador para la hembra: Roles cuenta que, en la estación de cría, los machos pueden acosar a las hembras hasta la extenuación, en una persecución que sustituye a la parada, sin atacarlas necesariamente, por lo que la pajarera debe tener mucha cobertura (Roles, 1976). Delacour y Gerrits aconsejan mantener separados los dos miembros de cada pareja en pajareras contiguas y juntarlos solo durante cortos periodos en la época de cría, un procedimiento que además evita que el macho se coma los huevos (Delacour, 1977; Gerrits, 1974). La ficha original dice, en la misma línea, que en una pajarera pequeña el macho se aburre y pica a la hembra (Hernández García, 2013).
Reproducción en la naturaleza
Lo poco que se sabe del nido, la puesta y la crianza en libertad.
Se presume que es una especie monógama, que cría en el suelo entre abril y junio. De su reproducción en libertad se sabe poco: unas pocas observaciones de naturalistas del siglo XX y los estudios más recientes de investigadores chinos, que las fuentes occidentales resumen; casi todo lo demás, incluida la duración de la incubación, procede de aves cautivas (Beebe, 1918; del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (2026)).
Calendario anual
El calendario es orientativo: combina datos de China, de aves cautivas y de fuentes antiguas, y no hay un ciclo anual publicado en China que lo respalde.
Sistema de apareamiento
Se presume que la especie es monógama. La formación de las parejas y la defensa del territorio comienzan a mediados de marzo, y los territorios se defienden sobre todo entre abril y junio. El nido es una depresión poco profunda en el suelo.
Todos los observadores en libertad coinciden en que predomina la monogamia, y Johnsgard la considera quizá la más estricta entre los faisanes; en primavera los bandos se rompen en parejas, que se dispersan y probablemente establecen territorios de cría (Beebe, 1918; Johnsgard, 1986). En cautividad, Delacour dice que son monógamos, aunque un macho puede ir pasando por turnos por distintas hembras sin problema, siempre que se las aloje por separado (Delacour, 1977; Gerrits, 1974). Respecto al reparto de tareas, Johnsgard resume que solo incuba la hembra, aunque el macho se queda muy cerca y quizá ayude a defender el nido (Johnsgard, 1986); Beebe añade que, según lo que sabía, en cautividad el macho no participa en la incubación, pero sí hace su parte después, y que en libertad ambos padres van juntos con la pollada, compartiendo la búsqueda de comida y la vigilancia (Beebe, 1918).
El nido
El nido es, según Beebe, una simple hoyada en el suelo o entre hojas secas, siempre a cubierto de bosques de pino o de abedul, y Johnsgard lo repite; Madge y McGowan hablan de un hueco en el suelo en un bosque de alerce y de picea (Beebe, 1918; Johnsgard, 1986; Madge y McGowan, 2002). El HBW registró en Shanxi siete nidos, separados entre sí por 210 a 360 m, a 1.800–2.150 m de altitud, en bosque de alerce y de picea (del Hoyo et al., 1994). Wikipedia añade que los nidos se sitúan a 1.800–2.500 m en bosques mixtos de coníferas y frondosas, en el suelo, a cubierto o junto a la base de rocas o de tocones; son un cuenco sencillo en una depresión del terreno, forrado de hojas de hierba, ramitas y plumas, de unos 28,6 cm (23–33 cm) por 32,7 cm (28–40 cm) y con una profundidad de 9,9 cm (8–14 cm) (Wikipedia (2026)).
Un aficionado francés, citado por Beebe en una afirmación que no ha sido confirmada por otros autores, cuenta que el macho prepara la hoyada cavando el césped con el pico; que los huevos se ponen cada dos días; y que, una vez puestos, el macho se coloca a su lado y arranca briznas de hierba para cubrirlos del todo (Beebe, 1918). Es una observación de aves cautivas que Beebe dice no haber visto confirmada.
Puesta y huevos
Según Birds of the World, la puesta sería de 4 a 14 huevos verde piedra pálido; se han citado incluso 22, probablemente por puestas de varias hembras en un mismo nido, aunque también se ha descrito parasitismo por el faisán común (Phasianus colchicus). Según Wikipedia, la puesta puede alcanzar entre 4 y 17 huevos según las condiciones, aunque lo habitual son 6 a 9, depositados a intervalos de uno a dos días. Las puestas de reposición o las de aves de un año pueden ser menores.
Madge y McGowan afinan: la puesta probable es de 5 a 8 huevos, pero se han citado de 4 a 20, con una media de 8,8, y una vez incluso 22; las puestas pequeñas pueden ser de aves de primer año o de reposición; los huevos son verde piedra pálido (Madge y McGowan, 2002). El HBW, al hablar de los faisánidos en general, incluye al orejudo marrón entre las especies con puestas citadas de 18 huevos o más, pero sospecha que en algunos casos ha contribuido más de una hembra, y da como norma de esas especies de 7 a 12 huevos, o hasta 15 (del Hoyo et al., 1994). Johnsgard, citando a Lu y Liu (1983), recoge el mismo máximo de 22 huevos (Johnsgard, 1986).
| Fuente | Tamaño de la puesta | Observaciones |
|---|---|---|
| Beebe (1918) | 5–8 huevos | cifra que le dieron varios naturales de la región; en cautividad, de 12 a 16 huevos por hembra, y 41 de dos parejas |
| Delacour (1977) | 5–8 huevos | en cautividad, hasta 30 huevos por hembra en varias puestas desde abril (dato del género) |
| Johnsgard (1986) | 4–14 huevos, hasta 22 | según Felix y según Lu y Liu (1983); en cautividad se ponen cada dos días; Mallet daba hasta 15 huevos por pareja |
| Howman (1979, 1993, 1996) | 5–8 huevos | |
| Madge y McGowan (2002) | 5–8 huevos (4–20, media 8,8; una vez 22) | las puestas pequeñas, de aves de un año o de reposición |
| HBW (1994) | 4–14 huevos, e incluso 22 | incluido entre los faisánidos con puestas de 18 huevos o más, probablemente de varias hembras |
| Hernández (2013) y ficha original | 5–8 huevos | comienzo a mediados de abril |
| Criadero Chintaguay | 5–8 huevos | blancos y marrones, de 4 a 8 huevos |
| Wikipedia (2026) | 4–17 huevos, normalmente 6–9 | a intervalos de 1–2 días |
Las cifras se aceptan tal cual las dan los autores. Las puestas de más de 14 huevos se han atribuido a varias hembras en un mismo nido (Beebe, 1918; del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2013; Howman, 1979; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (2026)).
El huevo según cada fuente
El huevo es oval, liso y sin manchas. Beebe lo describe de forma oval regular, con poco brillo, de color piedra claro y pequeño para el tamaño del ave; Delacour y Madge, de un verde piedra pálido; Wikipedia, de pardo claro, verde azulado o blanquecino (Beebe, 1918; Delacour, 1977; Madge y McGowan, 2002; Wikipedia (2026)). Delacour, en su manual de cría, cuenta que los huevos de la gallina araucana, de Chile, tienen el mismo color azul pálido, el mismo tamaño y la misma forma que los del orejudo marrón, y lo cita como ejemplo de que se pueden «arreglar» huevos para que no eclosionen sin que lo detecten ni los expertos (Delacour, 1978).
| Fuente | Medidas del huevo | Peso |
|---|---|---|
| Beebe (1918) | 53 × 39 mm (media) | — |
| Delacour (1977) | 53 × 39 mm (media) | — |
| Johnsgard (1986) | 53 × 39 mm (media) | peso fresco estimado de 44,5 g; 58 huevos frescos pesaron una media de 60 g (D. Rimlinger) |
| Hernández (2013) y ficha original | 54 × 40 mm | — |
| Wikipedia (2026), sobre Zhao (2001) | 59,9 (54,9–63,7) × 43,8 (42,7–46,8) mm | 58,8 g (54,8–63,4 g) |
La diferencia entre el huevo de las fuentes clásicas (53 × 39 mm) y el que da Wikipedia (casi 60 × 44 mm) es de unos 7 mm de largo; Johnsgard anota él mismo que el peso estimado de 44,5 g queda lejos de los 60 g de los 58 huevos pesados por Rimlinger (Beebe, 1918; Delacour, 1977; Hernández García, 2013; Johnsgard, 1986; Wikipedia (2026)).
Incubación y eclosión
En cautividad, la hembra incuba sola durante 26 o 27 días. Los pollos son nidífugos: nacen cubiertos de plumón, de color rufo y negro por encima y blanco crema por debajo, y apenas dos días después de la eclosión abandonan el nido para seguir a sus padres en la búsqueda de alimento.
En libertad la incubación empieza cuando se completa la puesta y corre a cargo de la hembra; el macho vigila cerca del nido (Johnsgard, 1986; Wikipedia (2026)). Los 26–27 días son el valor más repetido: el HBW, Madge y McGowan, Johnsgard, Delacour, Howman, Wikipedia, el criadero Chintaguay y el libro del autor (2014) dan esa cifra, y el libro del autor (2013) y la ficha original, 26 (del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2013; Hernández García, 2014; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (2026)). Beebe da, en cambio, de 28 a 30 días (Beebe, 1918). Todos los datos de incubación son de aves cautivas.
Las crías en libertad
Beebe cuenta que en libertad ambos padres van siempre juntos con la pollada y comparten la búsqueda de comida y la guarda de las crías, y que los pollos son notablemente mansos y casi indistinguibles según el sexo (Beebe, 1918). Johnsgard indica que el macho permanece muy cerca y ayuda a defender el nido (Johnsgard, 1986). Los pollos son nidífugos y siguen a los padres al segundo día (del Hoyo et al., 1994; Wikipedia (2026)).
Pérdidas de nidos
En algunas reservas la tasa de fracaso de los nidos es alta: Madge y McGowan la sitúan en un 78 % en algunas zonas, y el plan de acción de la UICN atribuye el fracaso a que los recolectores de hongos, sobre todo de morillas, que entran en el bosque durante la época de cría, molestan a las aves en el nido; los agricultores recogen además huevos (Fuller y Garson, 2000; Madge y McGowan, 2002; WII, 2007). La investigación ecológica que lo descubrió, en la reserva de Pangquangou, llevó a poner medidas para controlar la recolección de hongos y a restringir la caza furtiva (Fuller y Garson, 2000; McGowan, 2001). El problema se trata también en el capítulo de amenazas.
Cría en cautividad
Fácil de mantener y tan dócil como un ave de corral, pero con la fertilidad mermada por la consanguinidad.
La puesta comienza a mediados de abril y suele constar de 5 a 8 huevos (54 × 40 mm), que se incuban durante 26 días.
Lo más importante es conseguir una pareja correctamente sexada, algo que se logra observando varios detalles. Los ejemplares más grandes de la misma edad suelen ser machos, y los espolones son también una forma de diferenciación. Una vez sexados, solo hay que asegurarse de que no sean consanguíneos. Para conseguir buenos resultados es necesario instalarlos en una pajarera de unos 35 m². La razón es clara: en una pajarera pequeña el macho se aburre y pica a la hembra. El suelo de la pajarera ha de ser de arena, en una gruesa capa, y es aconsejable plantar árboles o arbustos.
Una especie fácil de mantener, de fertilidad frágil
Howman la define como una especie que puede llegar a ser de las más amistosas e interesantes de cualquier colección y que merece la pena tener, aunque sus costumbres de excavar pueden dejar las pajareras con césped como un campo mal arado (Howman, 1979; Howman, 1993). Aunque son aves fáciles de criar, su historia en las pajareras es la de una consanguinidad extrema: todas las aves cautivas descienden de un macho y dos hembras llevados a Francia en 1864, con pocas entradas posteriores (Delacour, 1977; Gerrits, 1974; Howman, 1993). Delacour escribe que son frecuentes los huevos claros y que a menudo los machos resultan infértiles, algo que se evita con más facilidad si hay espacio de sobra; la falta de espolones en los machos, no rara en Estados Unidos, la atribuye a la misma falta de sangre nueva (Delacour, 1977). Howman cuenta que en 1977 la WPA patrocinó un programa de inseminación artificial que demostró que la infertilidad era casi con seguridad un defecto de comportamiento y no físico (Howman, 1993; Howman, 1996). Su valoración de la situación en cautividad en 1993 era que es razonable, pero vulnerable por lo reducido de su reserva genética (Howman, 1993).
Instalaciones y manejo
Howman da 200 pies cuadrados (unos 18,5 m²) como tamaño mínimo de pajarera en 1993, y en las ediciones de 1979 y de 1996 escribe «200 pies cuadrados o más (más de 19 m²)» (Howman, 1979; Howman, 1993; Howman, 1996). El libro del autor, por su parte, aconseja unos 35 m² y arena en una capa gruesa, con árboles o arbustos (Hernández García, 2013). Corder da 400 pies cuadrados (40 m²) como el mínimo práctico para mantener una zona de césped, que de todos modos acabarán destrozando los orejudos y los monales; para especies excavadoras recomienda proteger la vegetación y que cada pareja tenga la mayor superficie posible (Corder). Roles, por su parte, dice que en una pajarera de 3 × 6 m (10 × 20 pies) no puede esperarse mantener una pareja de orejudos y, a la vez, una zona de césped del doble de tamaño (Roles, 1976).
Son aves resistentes: toleran cualquier frío, pero no la humedad (Delacour, 1977; Roles, 1976). Delacour dice que, con espacio suficiente y mucho césped y hojas, mantienen un plumaje perfecto y viven mucho, y que con tantas aves tan mansas y poco aficionadas a volar no hace falta cubrir los recintos con malla ni cortarles las alas, aunque las hembras tienden a vagar en primavera en busca de un sitio para nidificar (Delacour, 1977; Gerrits, 1974). En pajareras pequeñas, en cambio, las parejas se vuelven inveteradas comedoras de plumas, sobre todo de la cola, por falta de celulosa en la dieta y por inactividad y aburrimiento; el remedio más seguro, aparte de más espacio, es mantener a cada ave separada, en pajareras contiguas, y juntarlas solo un tiempo breve en la época de cría, lo que además impide al macho comerse los huevos y permite emparejarlo por turnos con distintas hembras (Delacour, 1977; Gerrits, 1974).
Corder aprendió, por experiencia, que los vecinos de pajarera pueden pelearse a través de la malla: un orejudo marrón mató de un picotazo en la cabeza a un tragopán sátiro macho de la pajarera contigua. Su consejo es que haya barreras sólidas entre pajareras, también para proteger a los pollos (Corder). Roles, que describe a los monales y a los orejudos como aves bastante perezosas y poco arborícolas, recomienda poner en el recinto troncos limpios de 30 cm de diámetro o más, bien clavados, para animarlos a subir y a hacer ejercicio y evitar la degeneración grasa de los órganos vitales (Roles, 1976). Howman aconseja proteger con redes de vinilo marrón o verde las raíces y los tallos de los arbustos plantados, porque los orejudos, como los monales y el cheer, dañan las raíces al escarbar (Howman, 1993).
Cómo sexar y emparejar
La ficha original aconseja elegir ejemplares sexados y no consanguíneos, y fiarse del tamaño (los machos son mayores) y de los espolones (Hernández García, 2013). Delacour, Johnsgard y Howman matizan que ninguno de esos dos criterios es seguro; los detalles están en el capítulo de morfología (Delacour, 1977; Howman, 1993; Johnsgard, 1986). Chintaguay aconseja, para los orejudos, mantenerlos por parejas, pues la hembra más fuerte dominaría a las otras y llegaría a matarlas; añade que los primeros pollos del año son fértiles la temporada siguiente (del Campo, 2006). Corder aconseja evitar las parejas de hermanos, que reducen la diversidad genética, y procurar adquirir aves no emparentadas, con el apoyo de otros criadores de la misma especie (Corder).
Carácter
Beebe habla de la mansedumbre de las aves cautivas casi como de una vocación doméstica: los pollos no tienen ningún miedo al hombre y corretean por los zapatos o tiran de la ropa de su cuidador, y de adultos, salvo algún individuo irritable que ataca los tobillos con el pico y a veces con los espolones, son amables, tranquilos y, en poco tiempo, comen de la mano. Su domesticabilidad se aproxima a la del gallo rojo y la del ánade real (Beebe, 1918). Howman sospecha que el exceso de confianza de las aves actuales hacia el hombre, quizá por imprinting, tiene que ver con el descenso de su fertilidad (Howman, 1979; Howman, 1996). Chintaguay recuerda que todos los orejudos son fáciles de domesticar, increíblemente amistosos y curiosos, aunque en el celo algunos machos pueden ser violentos con las personas (del Campo, 2006). Delacour, en su manual de cría, cuenta que los pollos de orejudo, de cheer, de tragopán y de argus son tan mansos y fáciles de manejar como pollos domésticos (Delacour, 1978).
Puesta y calendario en cautividad
| Fuente | Madurez | Huevos | Inicio de la puesta | Incubación |
|---|---|---|---|---|
| Tabla de postura del criadero Chintaguay (2005) | 2 años | 5–8 | finales de abril (hemisferio norte); finales de octubre (sur) | 26–27 días |
| Libro del autor, vol. II (2014) | 2 años | 5–8 | abril (norte); octubre (sur) | 26–27 días |
| Howman (1993) | plumaje adulto en el primer año; solo rara vez fértil | 5–8 | finales de abril | 26–27 días |
| Thompson (1976), en Johnsgard (Nueva York) | espolón y capacidad de criar en el segundo año | — | finales de abril o principios de mayo, hasta finales de junio | — |
| Libro del autor, vol. I (2013) | — | 5–8 | mediados de abril | 26 días |
En el hemisferio sur, la temporada se invierte (del Campo, 2006; Hernández García, 2013; Hernández García, 2014; Howman, 1993; Johnsgard, 1986).
Beebe cuenta que en cautividad las hembras ponen de 12 a 16 huevos y que de dos parejas se obtuvieron 41, una cifra que él cree muy superior a la puesta normal del nido natural (Beebe, 1918). Delacour, para el género, dice que cada hembra puede poner en cautividad hasta 30 huevos en varias puestas desde abril (Delacour, 1977). Roles confirma que las hembras eligen un sitio resguardado, pero pueden poner los huevos en cualquier parte, a veces enterrándolos al escarbar (Roles, 1976). Para los orejudos, Johnsgard recuerda que, en cautividad, los huevos se ponen cada dos días (Johnsgard, 1986).
Incubación
Howman recomienda que los huevos del orejudo marrón eclosionen bajo una gallina clueca y que los pollos permanezcan con ella las primeras 12 a 24 horas: así nacen mejor y evitan las patas abiertas («splayed legs»), porque se quedan casi inertes bajo la gallina y adquieren fuerza poco a poco, mientras que en la incubadora tienden a correr buscando dónde meterse (Howman, 1993; Howman, 1996). La cría bajo gallina clueca tiene otras ventajas: no hay riesgo de que las crías se «impriman» en las personas, y los pollos criados en jaulas móviles se endurecen antes (Howman, 1993). Beebe cuenta que en cautividad los huevos se incuban habitualmente bajo una gallina doméstica (Beebe, 1918).
Incubación artificial: parámetros
El criadero Chintaguay, de Chile, publica una pauta de incubación y de cría para todos los faisanes; no da ningún dato específico distinto para el orejudo marrón salvo los 26–27 días de incubación, así que los demás parámetros se citan como los de faisanes en general (del Campo, 2006):
| Fase | Valor recomendado |
|---|---|
| Conservación de los huevos antes de incubar | 13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo |
| Cuándo empezar a incubar | Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7) |
| Precalentamiento | 6–8 horas a unos 23 °C antes de entrar en la incubadora |
| Temperatura | 37,5 °C durante toda la incubación |
| Humedad relativa | 55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días |
| Volteo | 3 o 4 veces al día, hasta tres días antes de la eclosión |
| Últimos tres días | Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %; conviene pasar los huevos a una nacedora |
| Duración para el orejudo marrón | 26–27 días |
| Después de nacer | 24–48 horas en la nacedora, sin comida ni agua |
Crianza de los pollos
Los pollos son grandes y esponjosos, de cabeza grande, y crecen rápido: a los cuatro meses ya se parecen a los adultos y a menudo se pueden sexar; si hay espacio, es bueno soltarlos en un prado a las dos o tres semanas de vida, y comen grandes cantidades de comida (Delacour, 1977; Gerrits, 1974). Tienen el vicio de picarse unos a otros los dedos de los pies y hay que vigilarlos; en sitios húmedos son sensibles a la difteria, y Delacour y Gerrits aconsejaban añadir al agua de bebida una parte por mil de sublimado corrosivo, una práctica histórica y tóxica que esta guía no recomienda (Delacour, 1977; Gerrits, 1974). Roles dice que las crías, aunque sorprendentemente delicadas, no plantean problemas nuevos: prosperan con los granulados habituales para pollitos con verdura muy picada, y la higiene es el factor más importante (Roles, 1976). Beebe cuenta que los pollos mueren de gapes y otras enfermedades de las aves de corral y los adultos, de enteritis o de enfermedad hepática (Beebe, 1918).
| Semana | Días | Temperatura | Dónde |
|---|---|---|---|
| 1 | 1–2 | 36 °C | Nacedora |
| 1 | 2–7 | 32 °C | Criadora |
| 2 | 8–14 | 30 °C | Criadora |
| 3 | 15–21 | 28 °C | Criadora |
| 4 | 22–28 | 26 °C | Criadora |
| 5 | 29–35 | 24 °C | Jaula de recría |
| 6–8 | 36–56 | sin aporte | Jaula de recría |
Pauta de calor suplementario del criadero Chintaguay para faisanes en general: lo decisivo es observar a las aves; si se amontonan bajo la fuente de calor tienen frío, y si jadean y se alejan, calor (del Campo, 2006).
Anilla
El libro del autor da para el orejudo marrón una anilla de 14, con la tabla de diámetros que no expresa la unidad; Corder, con los diámetros de las anillas Aviornis, da 14 mm para el orejudo marrón, igual que para el blanco y el azul (Corder; Hernández García, 2014).
La conservación ex situ
En el reparto de programas de la EAZA del año 2000 que reproduce el libro del autor, el orejudo marrón figura en la categoría «seguimiento de población», igual que el orejudo blanco, mientras que el azul está en «no recomendado»; no tiene, por tanto, programa EEP ni ESB europeo en ese reparto (Hernández García, 2014). El plan de acción de la UICN (2000) incluye la especie en su lista de poblaciones cautivas, pero sin cifra de ejemplares (Fuller y Garson, 2000). En 1994, el HBW mencionaba un programa de cría en cautividad en la reserva de Pangquangou (del Hoyo et al., 1994); BirdLife reconoce que existen varias poblaciones cautivas, pero de poca importancia para la conservación mientras la causa del declive sea la pérdida de hábitat (BirdLife, 2024).
Estado de conservación
De especie vulnerable a preocupación menor: una población pequeña y aislada, pero estable.
Población estable y extendida. Región: China.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
Birds of the World estima la población en 3.300 a 11.000 individuos maduros, en un área de distribución de unos 147.000 km², la mayoría en zonas protegidas del oeste de Shanxi y el noroeste de Hebei, y se presume que está en declive. En 1998 se descubrió en Shaanxi una población importante, de unos 1.500 individuos, dentro de la Reserva Natural de Huanglongshan, y en Dongling Shan, a unos 100 km de Pekín, se especula con 200 a 500 aves. Por su fragilidad y su distribución restringida, la especie está incluida en el Apéndice I de CITES, la categoría de máxima protección para el comercio internacional de especies amenazadas.
Cómo ha ido cambiando la valoración
Durante décadas, el faisán orejudo marrón estuvo catalogado como Vulnerable por la UICN, debido a su reducidísima área de distribución, restringida a un puñado de macizos montañosos del norte de China. La revisión de 2024 de la Lista Roja rebajó finalmente su categoría a Preocupación menor, un cambio que refleja la mejora en la protección de su hábitat de montaña en las últimas décadas.
La ficha de BirdLife DataZone, consultada el 13 de noviembre de 2026, reúne el historial completo de las valoraciones de la UICN (BirdLife, 2024):
| Año | Categoría de la Lista Roja |
|---|---|
| 1988 | Amenazada (Threatened) |
| 1994 | Vulnerable (VU) |
| 1996 | Vulnerable (VU) |
| 2000 | Vulnerable (VU), criterio C1 |
| 2004, 2008, 2012, 2013 y 2016 | Vulnerable (VU), criterio C2a(i) |
| 2024 | Preocupación menor (LC) |
La evaluación vigente es la de 2024, realizada por BirdLife International, compilada por A. Berryman, con revisión de J. Vine, contribuciones de F. He y Z. Zhang y la participación del Grupo de Especialistas en Galliformes de la CSE de la UICN (BirdLife, 2024).
La justificación de 2024 es la de las especies de gran área: la extensión de presencia (160.500 km²) está muy por encima de los 20.000 km² que marcan el umbral de «vulnerable»; la tendencia de la población se sospecha estable, de modo que no se alcanza el umbral de descenso del 30 % en diez años o tres generaciones; y el tamaño de la población, relativamente pequeño, no se acerca al umbral porque la especie no está disminuyendo (el criterio exige menos de 10.000 individuos maduros con un descenso continuado) (BirdLife, 2024).
| Año | Fuente | Valoración |
|---|---|---|
| 1976 | Roles | Especie muy rara, en situación comprometida en la naturaleza por la deforestación y la persecución humana (Roles, 1976). |
| 1986 | Johnsgard | Incluida en la lista de especies en peligro del ICBP (King, 1981); situación en la naturaleza incierta, quizá extinguida en Hopeh hacia 1931; la población parecía aumentar (Johnsgard, 1986). |
| 1994 | HBW (del Hoyo et al.) | En peligro (Endangered); según el método de Mace y Lande, también en peligro; población probable de 1.000 a 5.000 individuos (del Hoyo et al., 1994). |
| 1979 y 1996 | Howman | Categoría de amenaza: en peligro (el mismo texto en las dos ediciones) (Howman, 1979; Howman, 1996). |
| 2000 | Fuller y Garson (UICN/WPA) | Vulnerable, criterio C1: población quizá pequeña; estables en las áreas protegidas, en declive (quizá rápido) las poblaciones aisladas y sin protección (Fuller y Garson, 2000). |
| 2002 | Madge y McGowan | Vulnerable; unos 5.000–17.000 individuos (Madge y McGowan, 2002). |
| 2013 | Libro del autor, vol. I | Vulnerable; población estimada en unos 10.000–17.000 ejemplares (Hernández García, 2013). |
| 2024 | BirdLife / UICN | Preocupación menor; 5.000–15.000 individuos maduros, población estable (BirdLife, 2024). |
Cuántas aves quedan: todas las estimas
No se conoce con precisión el tamaño de la población. Cada autor da una cifra distinta, y no todas se refieren a lo mismo: unas hablan de individuos maduros y otras de aves en total (BirdLife, 2024; BOW, 2020; del Campo, 2006; del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2013; Madge y McGowan, 2002):
| Fuente | Estima | Qué cuenta |
|---|---|---|
| Johnsgard (1986) | sin estima; la población parecía aumentar | — |
| HBW (1994) | 1.000–5.000 individuos, probablemente | total; la mayoría en áreas protegidas |
| Fuller y Garson (2000) | unos 5.000 dentro de áreas protegidas; hasta unos 17.000 en total | total; el segundo, estimado a partir del hábitat potencial y suponiendo que la densidad media en áreas protegidas es doble que fuera de ellas |
| Madge y McGowan (2002) | 5.000–17.000 individuos | total |
| Criadero Chintaguay (2005–2006) | menos de 5.000 ejemplares en libertad | total |
| Libro del autor (2013) | 10.000–17.000 ejemplares | total |
| BirdLife (2001), citada por BirdLife (2024) | 5.000–17.000 aves, de ellas 3.300–11.000 maduras | total y maduras |
| Birds of the World (2020), según la ficha original | 3.300–11.000 individuos maduros | maduros |
| BirdLife / UICN (2024) | 5.000–15.000 individuos maduros (cifra de 2023; calidad de los datos media) | maduros; cuatro subpoblaciones |
BirdLife precisa que su estima requiere verificación con métodos más precisos (BirdLife, 2024; BOW, 2020; del Campo, 2006; del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002).
Subpoblaciones y tendencias locales
BirdLife cuenta cuatro subpoblaciones. Las cifras locales muestran tendencias contrarias: en la reserva nacional de Xiaowutaishan, la densidad cayó de 11,45 a 3,68 aves por km² entre 1996 y 2017, un descenso que se atribuye al aumento de las molestias recreativas, mientras que en la de Baihuashan subió de 0,98 a 2,66 aves por km² entre 1993 y 2017. Para la población situada al oeste de Pekín, la superficie de hábitat adecuado pasó de 225 a 248 km² entre 1995 y 2013, pero dentro de Xiaowutaishan bajó de 58 a 33 km² (BirdLife, 2024). Otras cifras locales son las de 1989 del HBW (2.790 aves en Luyashan y 1.230 en Pangquangou) y las de Birds of the World (unos 1.500 individuos en Huanglongshan y de 200 a 500 en Dongling Shan) (BOW, 2020; del Hoyo et al., 1994).
- 160.500km²de extensión de presencia (BirdLife)
- 5.000–15.000avesmaduras, según BirdLife (2024)
- 4reservasclave: Luyashan, Pangquangou, Wulushan y Xiaowutai Shan
| Medida de conservación | ¿Existe? |
|---|---|
| Plan de recuperación | No |
| Programa sistemático de seguimiento | No |
| Espacios de conservación identificados | Sí, en todo el área de distribución |
| Control de especies invasoras | No |
| Conservación ex situ | Varias poblaciones en cautividad, de poca importancia mientras la causa del declive sea la pérdida de hábitat |
| Programas de educación y sensibilización | No |
| Incluida en legislación internacional | No |
| Sometida a controles internacionales de gestión o comercio | Sí (CITES, Apéndice I) |
Según BirdLife DataZone (BirdLife, 2024). La CITES figura a la vez como «controles internacionales de comercio» e «incluida en legislación internacional: no» en la propia ficha; se reproducen ambas casillas tal como aparecen.
Las medidas propuestas
El plan de acción de la UICN para los faisanes (2000) proponía, para el orejudo marrón: impedir más deforestación dentro de su área; hacer más prospecciones en Shaanxi y en otras zonas para identificar áreas nuevas que proteger; elaborar planes de gestión y programas de seguimiento en las cuatro reservas críticas (Luyashan, Pangquangou, Wulushan y Xiaowutai Shan); proteger y vigilar mejor la población de Dongling Shan; reducir las molestias humanas durante la época de cría; y estudiar la viabilidad de una translocación a Taiyue Shan (Shanxi), donde se ha restaurado el hábitat (Fuller y Garson, 2000). BirdLife (2024) propone seguir asegurando la recuperación gracias a la reforestación y a la protección de las áreas protegidas, y seguir vigilando las tendencias de población (BirdLife, 2024).
Protección legal
La especie figura en el Apéndice I de la CITES (la máxima protección para el comercio internacional) y está protegida por la legislación china en su máxima categoría (primera clase) (BirdLife, 2024; Fuller y Garson, 2000; Johnsgard, 1986; Wikipedia (2026)). Howman, en 1993, la anotaba ya con la CITES I (Howman, 1993). En 2001 se creó la reserva natural provincial de Huanglongshan, en el condado de Huanglong, y hay estudios sobre la especie desde principios de los años ochenta (BirdLife, 2024). Los programas de plantación de árboles y gestión forestal emprendidos por el Gobierno chino desde la década de 1980 han beneficiado probablemente a la especie en algunas zonas (BirdLife, 2024; Fuller y Garson, 2000).
Amenazas y protección
Bosque talado, aislamiento y, hoy, las molestias en la época de cría.
Las principales preocupaciones son el pequeño tamaño de las poblaciones y su completo aislamiento. A ello se suman el turismo, la recogida de leña, el pastoreo, la recolección de plantas medicinales, el desarrollo agrícola y, en menor medida, la recogida de huevos y el comercio de adultos. Presenta la menor diversidad genética hallada en un Crossoptilon, lo que agrava el riesgo en poblaciones fragmentadas.
Pérdida y fragmentación del bosque
El factor principal ha sido la pérdida de bosque, y probablemente sigue siéndolo; la caza puede haber tenido un efecto cada vez más desproporcionado a medida que el hábitat se reducía (Madge y McGowan, 2002). Según Fuller y Garson, el área de la especie se ha fragmentado durante siglos por pérdida de hábitat y las poblaciones aisladas están amenazadas por la pérdida de bosque y por otras presiones; fuera de las reservas, las amenazas son la deforestación para agricultura y urbanización y la degradación por tala y ganadería (Fuller y Garson, 2000). El libro del autor lo dice con las mismas palabras: la pérdida de hábitat, la deforestación para la agricultura y el desarrollo urbano y la degradación por la tala y el pastoreo (Hernández García, 2013). Ya Beebe (1918) y Delacour escribían que el orejudo desaparece donde se destruyen los bosques en que anida, duerme y se refugia de sus enemigos, y que a eso se sumaba la persecución de los cazadores (Beebe, 1918; Delacour, 1977). Madge y McGowan recuerdan que la especie parecía extendida hasta los años treinta y que desde entonces la pérdida de bosque y la caza provocaron un descenso muy grande (Madge y McGowan, 2002).
BirdLife (2024) matiza el panorama actual: la limpieza de hábitat por expansión urbana y agrícola fue importante en el pasado, pero en las últimas décadas ha sido insignificante, y la extensión del hábitat puede incluso haber aumentado (BirdLife, 2024). Presenta como amenazas pasadas la ganadería de pequeña escala, los cultivos, el aprovechamiento de madera de subsistencia y la urbanización, y como amenaza presente las actividades recreativas, que afectan a una minoría de la población, con un efecto insignificante (BirdLife, 2024).
| Amenaza | Momento y alcance según BirdLife (2024) |
|---|---|
| Ganadería y pastoreo de pequeña escala | Pasada; poco probable que vuelva; afecta a menos del 50 % de la población; descenso lento y significativo |
| Cultivos no madereros | Pasada; poco probable que vuelva; descenso lento y significativo |
| Tala y recogida de madera de subsistencia | Pasada; poco probable que vuelva; degradación del ecosistema |
| Vivienda y urbanización | Pasada; poco probable que vuelva; degradación y conversión del ecosistema |
| Actividades recreativas | Presente; afecta a una minoría de la población; descenso insignificante; molestia a las aves |
Recolectores de hongos y plantas medicinales
Una amenaza concreta, descubierta por la investigación, es la presencia de recolectores de hongos durante la época de cría. En dos reservas nacionales de China donde la recolección de morillas es habitual en primavera, los nidos del orejudo marrón fracasan en gran proporción, y en Pangquangou los recolectores de hongos pueden ser la causa de que el índice de fracaso sea alto; Madge y McGowan cuentan que el fracaso llega al 78 % en algunas áreas y que los agricultores recogen además huevos (Fuller y Garson, 2000; Madge y McGowan, 2002). El libro del autor atribuye las altas tasas de fracaso de nidos en la reserva de Pangquangou a la población local que recoge hongos (Hernández García, 2013). El informe de la World Pheasant Association de 2001 relata que, a raíz de esas observaciones, se han puesto medidas para controlar esa actividad en la reserva y se ha restringido la caza furtiva (McGowan, 2001), y el WII recuerda que los recolectores de morillas molestan a la especie en China (WII, 2007). El plan de acción de la UICN señala además que el auge del ecoturismo puede ser otra amenaza de este tipo (Fuller y Garson, 2000).
Caza y comercio
Beebe, en 1918, contaba que la especie no tenía protección legal en ninguna época y que, aunque la carne no es buena, el cambio de costumbres de los chinos hacia una dieta de carne y la destrucción del bosque contribuían a que se la exterminara en muchos lugares donde había sido abundante (Beebe, 1918). Delacour atribuye la persecución del orejudo marrón y del azul en el norte de China principalmente a su plumaje (Delacour, 1977), y Roles habla de persecución humana directa (Roles, 1976). Madge y McGowan y el HBW mencionan la recogida de huevos por los agricultores (del Hoyo et al., 1994; Madge y McGowan, 2002), y la ficha original (BOW) cita, en menor medida, el comercio de adultos (BOW, 2020). Howman, en 1993, la cataloga con la CITES I, y Fuller y Garson, como especie de protección nacional de primera clase en China (Fuller y Garson, 2000; Howman, 1993).
Aislamiento genético y tamaño de las poblaciones
El HBW insistía en que los dos grandes problemas son el pequeño tamaño de las poblaciones y su completo aislamiento mutuo, y en que su supervivencia dependerá de que se mantenga la protección actual y se reúna información suficiente para gestionar poblaciones pequeñas (del Hoyo et al., 1994). Esa fragmentación se ve agravada, según la ficha original (BOW), por una baja diversidad genética: la menor hallada en un Crossoptilon (BOW, 2020). En cautividad, el problema genético es otro: una población que desciende de muy pocas aves (Delacour, 1977; Howman, 1993).
Protección
La protección de la especie descansa en las reservas: Luyashan, Pangquangou, Wulushan y Xiaowutai Shan son cruciales para ella, y la de Huanglongshan es de 2001 (BirdLife, 2024; Fuller y Garson, 2000). El HBW comentaba en 1994 que cuatro de las reservas, con las poblaciones totalmente aisladas, podían haber salvado a la especie a corto plazo, pero que ese aislamiento podía tener graves consecuencias a largo plazo para su viabilidad (del Hoyo et al., 1994). Las medidas propuestas por la UICN y por BirdLife se exponen en el capítulo anterior.
Subespecies y variación
Ninguna subespecie, ninguna mutación documentada; sí, una clave para no confundirlo con sus tres parientes.
No se reconocen subespecies: Birds of the World la considera una especie monotípica. A continuación se presenta una clave para diferenciar las especies de faisán orejudo.
Una especie sin subespecies
Madge y McGowan, el HBW y Wikipedia coinciden en que la especie es monotípica (del Hoyo et al., 1994; Madge y McGowan, 2002; Wikipedia (2026)). Delacour precisa que, a diferencia del orejudo blanco, que varía mucho de color a lo largo de su área, el orejudo marrón y el azul no presentan variación geográfica y ocupan áreas totalmente aisladas (Delacour, 1977). En ausencia de subespecies, la variación que describen los autores es individual: la cantidad de blanco en las alas y la proporción de negro y de pardo del plumaje, ya mencionadas en el capítulo de morfología (Beebe, 1918).
- Mechones visibles por encima de la nuca
- Plumaje general de color azul grisáceoFaisán orejudo azul (Crossoptilon auritum)
- Plumaje general de color marrón y blancoFaisán orejudo marrón (Crossoptilon mantchuricum)
- Mechones no visibles por encima de la nuca
- Pecho gris
- Pecho gris oscuroFaisán orejudo del Tibet (Crossoptilon harmani)
- Pecho gris claroFaisán orejudo blanco de Dolan (Crossoptilon crossoptilon dolani)
- Pecho blanco
- Alas prácticamente blanco puroFaisán orejudo blanco del Tibet (Crossoptilon drouyni)
- Alas grises
- Alas gris claroFaisán orejudo blanco de Yunnan (Crossoptilon crossoptilon lichiangense)
- Alas gris oscuroFaisán orejudo blanco de Sichuan (Crossoptilon crossoptilon crossoptilon)
- Pecho gris
- Mechones auriculares visibles por encima de la nuca
- Plumaje general gris azuladoOrejudo azul (Crossoptilon auritum)
- Plumaje general pardo y blancoOrejudo marrón (Crossoptilon mantchuricum)
- Mechones auriculares no visibles por encima de la nuca (C. crossoptilon)
- Pecho gris
- Pecho gris oscuroOrejudo de Harman (C. crossoptilon harmani)
- Pecho gris claroOrejudo de Dolan (C. c. dolani)
- Pecho blanco
- Alas casi blancasOrejudo del Tíbet (C. c. drouyni)
- Alas grises
- Alas gris claroOrejudo de Yunnan (C. c. lichiangense)
- Alas gris oscuroOrejudo de Sichuan (C. c. crossoptilon)
- Pecho gris
Mutaciones y variedades de color
Ninguna de las fuentes aquí revisadas (los libros del autor, la guía de variedades del criadero Chintaguay y la literatura de aviculturistas) recoge mutaciones de color ni variedades de pajarera del orejudo marrón. La variación que se ve en las pajareras es la individual, propia de la especie (Beebe, 1918; del Campo, 2006; Delacour, 1977; Hernández García, 2013).
Híbridos
El orejudo marrón puede cruzarse con otros orejudos y con algunos gallofaisanes y monales. Los datos son estos (Avibase; del Campo, 2006; Delacour, 1977; Gerrits, 1974; Johnsgard, 1986):
| Cruce | Resultado | Fuente |
|---|---|---|
| Orejudo marrón × orejudo azul | Híbridos fértiles en ambos sexos; en los cruces de Ghigi en Bolonia, los rasgos del azul dominan: el híbrido azul × marrón es casi indistinguible de un azul puro | Delacour; Gerrits; Chintaguay (tabla adaptada de Johnsgard); Ghigi, en Delacour (del Campo, 2006; Delacour, 1977; Gerrits, 1974) |
| Orejudo marrón × orejudo blanco (crossoptilon) | Híbridos con las plumas auriculares de longitud intermedia y la cola plana, casi normal, del orejudo blanco (que domina); se crió uno en Amberes | Ghigi y Delacour (Delacour, 1977) |
| Orejudo marrón × faisán plateado | Híbridos machos fértiles o a veces fértiles | Tabla de hibridación del criadero Chintaguay, adaptada de Johnsgard (1999) (del Campo, 2006; Johnsgard, 1999) |
| Orejudo marrón × monal del Himalaya y × gallofaisán plateado, según Avibase | Citados en la lista de híbridos de Avibase, sin más datos | Avibase (Avibase) |
| Orejudos con monales, plateados y kalij | En los híbridos con kalij, los rasgos de Lophura dominan y los machos son fértiles; lo que, según Delacour, indica una relación bastante estrecha entre los géneros | Delacour (para los orejudos en general) (Delacour, 1977) |
Johnsgard (1986) recuerda que los cruces entre orejudos dan hijos plenamente fértiles; se ha propuesto la hibridación natural del orejudo blanco con el azul, pero no está probada (Johnsgard, 1986). La lectura de la celda de la tabla de hibridación se ha hecho sobre la imagen original y se consigna solo lo que se ve con claridad.
Corder, que escribe para los criadores de conservación, aconseja no hacer cruces entre especies, porque las aves de las colecciones son demasiado valiosas para «contaminarlas», y recuerda que casi tres cuartas partes de las aves del libro genealógico internacional del faisán de Edwards tuvieron que excluirse por una sola hibridación accidental (Corder). Recomendación editorial: no mezclar orejudos marrones con azules ni con blancos en las pajareras de conservación, y mantener cada especie en su línea.
Cultura y curiosidades
Plumas de guerra, un símbolo de valor y los sellos de China.
Desde hace más de dos mil años, el orejudo marrón es en China un ave de valor y un adorno militar; hoy figura también en los sellos de correos.
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.


El ave del valor y de los cascos
La tradición china lo tiene por símbolo de valentía: en las peleas, los machos se enfrentan con tenacidad, y por eso, desde la época de los Reinos Combatientes (475–221 a. C.) hasta la de la dinastía Qing, los generales de casi todos los emperadores llevaban en el casco las plumas caudales de esta ave (del Hoyo et al., 1994; Fuller y Garson, 2000; Hernández García, 2013; Madge y McGowan, 2002). Beebe recoge que esas plumas las habían llevado los guerreros tártaros y que, en su época, se pedían mucho más en el centro y el oeste de China (las del orejudo azul, que servían de insignia en los sombreros de los mandarines militares) que en Pekín (Beebe, 1918; Delacour, 1977). El plan de acción de la UICN señala que el potencial de estos lazos culturales para ofrecer incentivos de conservación apenas se ha investigado (Fuller y Garson, 2000).
Un nombre antiguo
Swinhoe contaba a Elliot que el carácter con que se escribe una parte de su nombre chino se aplica a esta ave desde tiempos antiguos (Elliot, 1872). La referencia más antigua de la especie que recoge el libro del autor es del siglo IV a. C. (Hernández García, 2013). Esta guía no ha podido localizar el texto antiguo concreto y no lo identifica.
Un manjar mediocre
Beebe observaba que ni los chinos ni los extranjeros apreciaban demasiado su carne, dura y fibrosa, muy inferior a la del faisán común, aunque en los jóvenes era mejor; la de un ave cautiva alimentada con grano durante algún tiempo era, según él, tan delicada como la de cualquier faisán (Beebe, 1918). Pero su tamaño y sus costumbres regulares la convertían, según él, en presa fácil del cazador furtivo chino (Beebe, 1918).
Más información
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Ir a la bibliografía recomendada →
Más fotografías
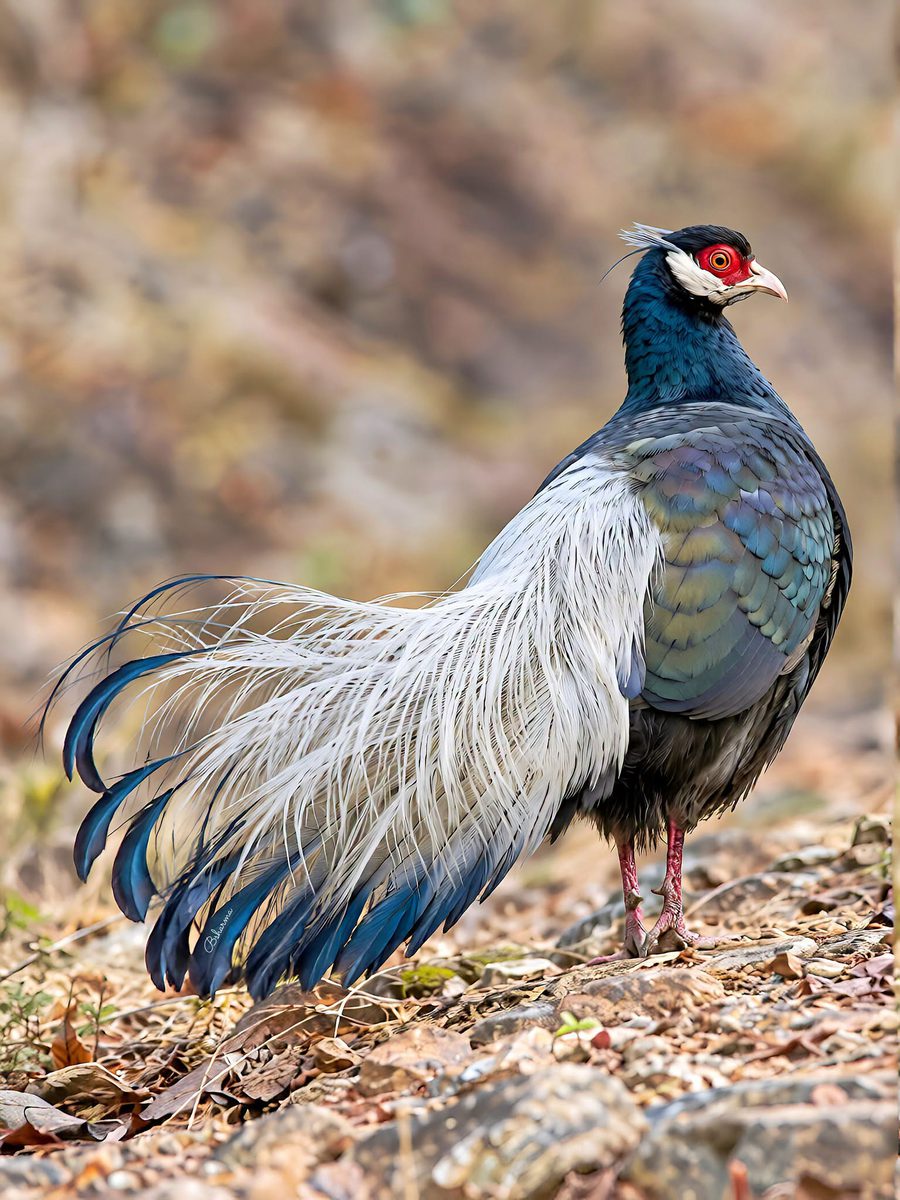
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Beebe, W. (1918). A Monograph of the Pheasants, vol. I. Londres: H. F. Witherby (para la New York Zoological Society).
- Beebe, W. (1926). Pheasants: Their Lives and Homes. Nueva York: Doubleday, Page & Co.
- BirdLife International (2024). Crossoptilon mantchuricum. The IUCN Red List of Threatened Species 2024: e.T22679299A254340969. doi:10.2305/IUCN.UK.2024-2.RLTS.T22679299A254340969.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
- BirdLife International (2024). Species factsheet: Brown Eared-pheasant Crossoptilon mantchuricum. BirdLife DataZone (evaluación de la Lista Roja de la UICN de 2024). datazone.birdlife.org/species/factsheet/brown-eared-pheasant-crossoptilon-mantchuricum (consultada el 13 de noviembre de 2026).
- Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ): T.F.H. Publications (© 1973 y 1978).
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vols. 1 y 2. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas).
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Lepage, D. Avibase, the world bird database: Crossoptilon mantchuricum Swinhoe, 1863 (Brown Eared Pheasant). Identificador Avibase 3AE74F1C350F8E34. avibase.bsc-eoc.org (consultada el 13 de noviembre de 2026).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- McGowan, P. (2001). Species Survival Commission Action Plan Evaluation. Informe de la World Pheasant Association para el Programa de Especies de la UICN. Reading (Berkshire): World Pheasant Association.
- McGowan, P. J. K. y Kirwan, G. M. (2020). Brown Eared-Pheasant (Crossoptilon mantchuricum), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/brephe1 · doi:10.2173/bow.brephe1.01. De este texto solo se ha podido consultar la portada (el resto exige suscripción); los datos que se le atribuyen proceden de la ficha original de esta web, que ya los recoge.
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- Sathyakumar, S. y Sivakumar, K. (eds.) (2007). Galliformes of India. ENVIS Bulletin: Wildlife and Protected Areas, vol. 10 (1). Dehradun: Wildlife Institute of India. Solo la mención de las molestias a los nidos del orejudo marrón por los recolectores de morillas en China.
- Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
- Wikipedia (en inglés). Brown eared pheasant. en.wikipedia.org/wiki/Brown_eared_pheasant (consultada el 13 de noviembre de 2026).
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán orejudo marrón — Crossoptilon mantchuricum Swinhoe, 1863. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/orejudomarron.php.


