Resumen
La especie de un vistazo.
El faisán pavo de Germain (Polyplectron germaini) es una especie de la familia Phasianidae propia del Sudeste asiático, que vive en el este de la Cochinchina y el sur de Annam. Está catalogada por la UICN como vulnerable. (BirdLife DataZone, 2023; del Hoyo et al., 1994; Hernández García, 2014; Madge y McGowan, 2002)
Es un faisán pavo pequeño, de plumaje oscuro y sin cresta, con ocelos metálicos de azul violáceo y verde en el manto, las alas y la cola, la piel desnuda de la cara roja y el iris pardo (del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002). Los dos sexos se parecen mucho; la hembra, algo más pequeña y apagada, tiene los ocelos del manto y de las alas triangulares y 18 plumas en la cola, frente a las 20 del macho (Delacour, 1977; Madge y McGowan, 2002; Wikipedia). El macho mide 56–60 cm y la hembra, unos 48 cm; los únicos pesos publicados son los de un macho de 510 g y una hembra de 397 g, ambos cautivos (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002).
Su historia científica empieza con una sola piel de macho que M. Germain, veterinario del ejército francés en Indochina, envió al Museo de París en 1866 según Beebe; Elliot la describió ese mismo año en The Ibis (Avibase; Beebe, 1922; Jobling, 2010). Las aves vivas llegaron a París en 1875 según Delacour y Gerrits, y se criaron enseguida, aunque el propio Elliot hablaba en 1872 de ejemplares vivos en los zoológicos del continente (Delacour, 1977; Elliot, 1872; Gerrits, 1974). Beebe la trató en 1922 como subespecie del faisán pavo gris; Delacour y Johnsgard la consideran una especie propia (Beebe, 1922; Delacour, 1977; Johnsgard, 1986).
Vive en el sur de Vietnam (sur de Annam y Cochinchina) y, según BirdLife, en el extremo este de Camboya, en bosques perennifolios y semiperennifolios de tierras bajas y de piedemonte, también talados o secundarios, desde el nivel del mar hasta unos 1.400–1.500 m (BirdLife DataZone, 2023; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002). BirdLife calcula una extensión de presencia de 48.700 km² y una población de 5.400–27.000 individuos maduros, con una mejor estima de 7.500–15.000 (BirdLife DataZone, 2023).
Figura como vulnerable (VU) en la evaluación de 2023, tras haber sido casi amenazada entre 2005 y 2016; BirdLife infiere un descenso superior al 30 % en tres generaciones, causado sobre todo por la pérdida de bosque de tierras bajas y por la caza con lazos (BirdLife DataZone, 2023). Está en el Apéndice II de la CITES (BirdLife DataZone, 2023; del Hoyo et al., 1994; Wikipedia). En cautividad, el libro del autor da unos 800 ejemplares y Fuller y Garson, entre 100 y 300 hacia el año 2000 (Fuller y Garson, 2000; Hernández García, 2014). Es una especie monotípica: no se reconocen subespecies (BOW, 2020; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002).
- 56–60cmde longitud total del macho
- 0–1.500mde altitud según BirdLife
- 1–2huevospor puesta; incubación de 21–22 días en cautividad
- Estado de conservación · UICN
- LC
- NT
- VU
- EN
- CR
- EW
- EX
Menor riesgoMayor riesgoVUVulnerable - Tendencia de la población decreciente · evaluación de 2023 · criterios A2cd+4cd; C2a(i) · Lista Roja de la UICN (BirdLife International, 2023)
Ficha técnica
- Nombre científico
- Polyplectron germaini Elliot, 1866 (Avibase; BirdLife DataZone, 2023; del Hoyo et al., 1994; Delacour, 1977; Madge y McGowan, 2002)
- Clasificación
- Orden Galliformes · familia Phasianidae · género Polyplectron Temminck, 1813 (Avibase; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986)
- Subespecies
- Ninguna: especie monotípica (BOW, 2020; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
- Nombres comunes
- ES faisán pavo de Germain (espolonero de Germain) · EN Germain’s Peacock-pheasant · FR éperonnier de Germain · DE Annampfaufasan (también Brauner Pfaufasan) · IT speroniere di Germain · PT faisão-pavão-marrom · VI gà tiền mặt đỏ (Avibase; del Hoyo et al., 1994; Hernández García, 2014; Madge y McGowan, 2002)
- Longitud total
- ♂ 56–60 cm (cola de 25–35 cm) · ♀ c. 48 cm (cola de 22–25 cm) (del Hoyo et al., 1994; Hernández García, 2014; Madge y McGowan, 2002)
- Peso
- ♂ 500 g (guía original) o 510 g (un ejemplar cautivo) · ♀ 400 g (guía original) o 397 g (un ejemplar cautivo) (del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002)
- Hábitat
- Bosque perennifolio y semiperennifolio de tierras bajas y de piedemonte, con dipterocarpáceas; también bosque talado, secundario y de bambú espinoso (BirdLife DataZone, 2023; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002)
- Distribución
- Sur de Vietnam (sur de Annam y Cochinchina) y este de Camboya (Mondulkiri y Ratanakiri); endémica del sur de Indochina (BirdLife DataZone, 2023; Delacour, 1977; Fuller y Garson, 2000; Madge y McGowan, 2002)
- Altitud
- Del nivel del mar a 1.400–1.500 m, quizá hasta 1.800 m; 4.000 pies (unos 1.200 m) según Delacour (BirdLife DataZone, 2023; Delacour, 1977; Fuller y Garson, 2000; Madge y McGowan, 2002)
- Puesta
- 1–2 huevos de color crema; incubación de 21–22 días en cautividad (del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002)
- Madurez
- Plumaje adulto en el primer año según Howman y Johnsgard; 1–2 años según el criadero Chintaguay (del Campo, 2006; Howman, 1993; Johnsgard, 1986)
- Estado de conservación
- Vulnerable (VU), evaluación de 2023, criterios A2cd+4cd; C2a(i); tendencia decreciente (BirdLife DataZone, 2023)
- Extensión de presencia
- 48.700 km² según BirdLife (BirdLife DataZone, 2023)
- Población
- 5.400–27.000 individuos maduros; mejor estima, 7.500–15.000 (BirdLife, 2022) (BirdLife DataZone, 2023)
- CITES
- Apéndice II (BirdLife DataZone, 2023; del Hoyo et al., 1994; Howman, 1993; Wikipedia)
- Anilla
- 10 mm (Corder)
- Conservación ex situ
- «Seguimiento de población» en el reparto de la EAZA del año 2000; sin programa coordinado de cría según BirdLife (BirdLife DataZone, 2023; Hernández García, 2014)
Sistemática y nomenclatura
Una piel enviada a París en 1866, un nombre dedicado a un veterinario militar y un siglo de dudas sobre si es especie o subespecie del faisán pavo gris.
El faisán pavo de Germain pertenece al género Polyplectron, el de los espoloneros o faisanes pavo, que reúne seis especies para Delacour, siete para Johnsgard y ocho en la lista de Madge y McGowan; su relación con el faisán pavo gris es el asunto que más ha discutido la sistemática de esta especie (Beebe, 1922; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Posición taxonómica
| Rango | Taxón |
|---|---|
| Clase | Aves |
| Orden | Galliformes |
| Familia | Phasianidae |
| Género | Polyplectron Temminck, 1813 |
| Especie | Polyplectron germaini Elliot, 1866 |
| Subespecies | ninguna |
El autor no va entre paréntesis porque Elliot describió la especie ya en el género Polyplectron, el mismo en que hoy se clasifica: Polyplectron germaini, en The Ibis, serie 2, vol. 2, n.º 5, p. 56, con la Cochinchina como localidad tipo (Avibase; Beebe, 1922; del Hoyo et al., 1994). Beebe incluye el género en la subfamilia Argusianinae y el criadero Chintaguay lo mantiene en ella (Beebe, 1922; del Campo, 2006).
Delacour reconocía seis especies de Polyplectron, Johnsgard siete y Madge y McGowan ocho; el libro del autor, en su lista del volumen I, recoge siete especies, con el faisán pavo gris dividido en cinco subespecies, una de ellas la de Hainan (katsumatae), que lleva una nota al pie (Delacour, 1977; Hernández García, 2013; Johnsgard, 1986; Madge y McGowan, 2002). En todas esas listas, P. germaini figura como especie monotípica, salvo en la de Beebe (1922), que la reducía a subespecie del gris (Beebe, 1922; del Hoyo et al., 1994).
Origen del nombre
La ficha original lo explica así: Elliot puso este nombre en honor a Louis Rodolphe Germain, quien descubrió la especie en la Cochinchina y envió los primeros ejemplares a Europa (según las fuentes, entre 1866 y 1875). Beebe la clasificó como una subespecie del faisán pavo gris (Polyplectron bicalcaratum germaini), pero los datos moleculares no respaldan una relación estrecha con el faisán pavo gris. (Hernández García, 2014)
El epíteto germaini es el genitivo de Germain. Jobling identifica al homenajeado como Louis Rodolphe Germain (nacido en 1827), veterinario del ejército francés en Indochina de 1862 a 1867 y en Nueva Caledonia de 1875 a 1878; Wikipedia y Avibase lo describen como veterinario del ejército colonial francés (Avibase; Jobling, 2010; Wikipedia). Beebe dice solo que «M. Germain» envió el primer ejemplar desde la Cochinchina, y Elliot, en 1872, que el Museo de París le debía a sus gestiones en aquel país lejano muchas de sus adquisiciones más valiosas (Beebe, 1922; Elliot, 1872).
El nombre del género, Polyplectron, procede del griego polus, «muchos», y plektron, «espolón de gallo», según Jobling (Jobling, 2010); es el origen de «espolonero», el nombre español de estas aves: el criadero Chintaguay explica que se les llama así porque tienen dos, e incluso tres, pares de espolones (del Campo, 2006). Johnsgard dice que los machos del género llevan de uno a tres espolones cortos y que las hembras no tienen (Johnsgard, 1986). El nombre «faisán pavo» (en inglés, peacock-pheasant) alude, según el criadero Chintaguay, al despliegue de cortejo, en el que abren la cola en abanico de modo parecido al de un pavo real (del Campo, 2006).
Nombres vernáculos
| Idioma | Nombre | Comentario |
|---|---|---|
| Español | faisán pavo de Germain; espolonero de Germain; faisán pavo (espolonero) de Germain; pavo-faisán de Germain | el primero, de la ficha original; el segundo, de Avibase y del HBW; el tercero, del libro del autor; el último, del criadero Chintaguay (Avibase; del Campo, 2006; del Hoyo et al., 1994; Hernández García, 2014) |
| Inglés | Germain’s Peacock-pheasant; Germain’s pheasant | el primero es el de Avibase, HBW, BirdLife y BOW; el segundo, el de Johnsgard como nombre alternativo (Avibase; BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Johnsgard, 1986) |
| Francés | éperonnier de Germain | Beebe lo da junto con chinquis, nombre que hoy se reserva al faisán pavo gris (Avibase; Beebe, 1922; del Hoyo et al., 1994) |
| Alemán | Annampfaufasan; Brauner Pfaufasan; Germain-Pfaufasan; Ost-Spiegelpfau | el primero y el segundo, de Avibase; el segundo, también del HBW; el tercero, del libro del autor y de Avibase; el último, de Johnsgard (Avibase; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986) |
| Italiano | speroniere di Germain | (Avibase; Hernández García, 2014) |
| Portugués | faisão-pavão-marrom; (Portugal) faisão-ocelado-castanho | (Avibase) |
| Neerlandés | Germains Pauwfazant | (Avibase) |
| Vietnamita | gà tiền mặt đỏ; gà sao | (Avibase) |
| Malayo | burung kuang candan | (Avibase) |
| Japonés | カッショクコクジャク (kasshokukokujaku) | (Avibase) |
| Chino | 眼斑孔雀雉 | (Avibase) |
Avibase registra más de 40 nombres en otros idiomas; BOW cuenta 26 nombres (Avibase; BOW, 2020).
Historia nomenclatural
La especie se nombró a partir de una única piel de museo y se conoció durante años por esa piel y por los relatos del propio Germain; después se discutió su rango. La cronología resume lo que dicen las fuentes (Beebe, 1922; del Hoyo et al., 1994; Delacour, 1977; Elliot, 1872; Johnsgard, 1986).
- Elliot describe Polyplectron germaini en The Ibis, serie 2, vol. 2, p. 56, con localidad tipo en la Cochinchina; el tipo, un macho, está en el Museo de París (Avibase; Beebe, 1922).
- Vekemans cita la especie en Der Zoologische Garten (p. 265), según la sinonimia de Beebe (Beebe, 1922).
- Elliot trata la especie en su Monograph of the Phasianidae, y recuerda que su descripción de 1866 se hizo sobre el único ejemplar entonces conocido, el del Museo de París (Elliot, 1872).
- Hume nombra Polyplectron intermedius (Lushai Country), que Beebe incluye en la sinonimia de germaini (Beebe, 1922).
- Cría en cautividad (Noenty, 1884), boletines de aclimatación (Godry, 1888; Delaurier, 1890) y catálogos (Grant, 1893 y 1897; Sharpe, 1899; Hartert, 1902; Mitchell, 1911; Ghigi, 1912) recogen la especie, según la sinonimia de Beebe (Beebe, 1922).
- Beebe la reduce a subespecie del faisán pavo gris, Polyplectron bicalcaratum germaini, por los ejemplares intermedios que él tenía de los alrededores de Bangkok (Beebe, 1922).
- Lowe critica a Beebe: sus ejemplares no eran típicos y su lámina de «germaini» representaba en realidad una forma gris sin describir, que bautizó bailyi (Delacour, 1977; Johnsgard, 1986).
- Delacour mantiene la especie plena, con argumentos de plumaje y de proporciones, y precisa su área de distribución (Delacour, 1977).
- Johnsgard la considera especie plena, parte de la superespecie del faisán pavo gris, por diferencias en la voz y la exhibición, aunque admite que su rango alopátrico hace subjetiva la conclusión (Johnsgard, 1986).
- El HBW y Madge y McGowan la tratan como especie monotípica (del Hoyo et al., 1994; Madge y McGowan, 2002).
- La UICN la eleva de casi amenazada a vulnerable (BirdLife DataZone, 2023).
Sinonimia principal
| Nombre | Autor y fecha | Observaciones |
|---|---|---|
| Polyplectron germaini | Elliot, 1866 | nombre válido; The Ibis (2) 2: 56; Cochinchina (Avibase; del Hoyo et al., 1994) |
| Polyplectron bicalcaratum germaini | Beebe, 1922 (combinación) | Beebe la trata como subespecie del faisán pavo gris; Delacour cita ese uso (Beebe, 1922; Delacour, 1977) |
| Polyplectron intermedius y Polyplectrum intermedium | Hume, 1873 y 1877; Oates, 1898 | Beebe los cita en la sinonimia; localidad: Lushai Country (Beebe, 1922) |
| «Hen Peacock Pheasant from China» y «L’éperonnier» | Edwards (1737 según Beebe); d’Aubenton (lám. 493) | nombres anteriores a Linneo que Beebe incluye en la sinonimia, la segunda para una hembra (Beebe, 1922) |
Los nombres de Hume, Oates, Edwards y d’Aubenton los asocia a esta especie solo Beebe; Delacour atribuye las dos primeras aves vivas que pintó Edwards, en 1745, al faisán pavo gris (Beebe, 1922; Delacour, 1977). Avibase, en su tabla de sinonimia ampliada (que incluye emendaciones y recombinaciones), solo registra el nombre válido, Polyplectron germaini Elliot, 1866, como «en uso»; da como título de la descripción original On a New Species of the genus Polyplectron (Avibase).
Posición dentro del género
Kimball y colaboradores (2001), con secuencias de ADN mitocondrial y nuclear, resumidas por Wikipedia y por BOW, agrupan a la especie con el faisán pavo gris, el de Rothschild y el de Sumatra; BOW añade al faisán pavo de Hainan (P. katsumatae) en ese grupo, con exclusión del resto del género. Wikipedia sostiene que podría ser la forma más antigua del clado, separada en la Cochinchina, a finales del Plioceno, hace entre 4 y 3 millones de años, aunque añade que el método de calibración del reloj molecular de aquel estudio se sabe hoy inadecuado, y da fechas demasiado bajas en las aves galliformes (BOW, 2020; Wikipedia). Wikipedia, en su artículo del faisán pavo gris, subraya además que los datos moleculares tienen un valor limitado para el gris, pues no se conoce el origen de los ejemplares analizados (Wikipedia (Grey peacock-pheasant)).
Delacour señala que, aunque pariente próximo del gris, germaini se parece también a inopinatum (el de Rothschild) en el color de la cabeza y el cuello, en la falta de cresta y en el tono pardo rico del plumaje, y considera primitivos la diferencia pequeña de tamaño entre sexos y la ausencia de cresta y gorguera (Delacour, 1977). Johnsgard cree que esta especie y el gris son una forma de transición entre los faisanes pavo más generalizados (el de Sumatra y el de Rothschild) y las formas más especializadas del resto del género; los parientes más próximos del grupo serían, tras ellos, los faisanes pavo malayo y de Borneo (Johnsgard, 1986). Delacour descartó el nombre genérico Chalcurus porque una de las dos especies a las que se aplicó, inopinatum, es intermedia entre chalcurum y germaini (Delacour, 1977).
Cómo se distingue de otros faisanes pavo
| Rasgo | Faisán pavo de Germain | Faisán pavo gris (P. bicalcaratum) | Faisán pavo malayo (P. malacense) |
|---|---|---|---|
| Cresta y gorguera | sin cresta ni gorguera (Delacour, 1977; Madge y McGowan, 2002) | cresta de plumas pilosas que se inclina sobre el pico y gorguera en la nuca (Delacour, 1977; Madge y McGowan, 2002) | cresta larga de plumas desflecadas, de azul verdoso metálico (Johnsgard, 1986) |
| Garganta | blanca solo en la barbilla y la parte alta de la garganta (Delacour, 1977; Madge y McGowan, 2002) | toda la garganta blanca; zona clara que se extiende a las mejillas (Delacour, 1977; Madge y McGowan, 2002) | gris pálido (Johnsgard, 1986) |
| Piel desnuda de la cara | roja, de rojo apagado (Delacour, 1977; Madge y McGowan, 2002) | de amarillo pálido a rosado (Delacour, 1977; Madge y McGowan, 2002) | anaranjada (Johnsgard, 1986) |
| Iris | pardo (Delacour, 1977; Madge y McGowan, 2002) | blanquecino o gris pálido (Delacour, 1977; Madge y McGowan, 2002) | azul blanquecino (Johnsgard, 1986) |
| Ocelos | azul violáceo con reflejos verdes, rodeados de un anillo negro y de un borde pardo dorado pálido (Delacour, 1977; Madge y McGowan, 2002) | más azules y de reflejos rojo purpúreos, con borde blanco; los de la cola, más grandes y de verde más claro (Delacour, 1977) | azules, con borde ante (Johnsgard, 1986) |
| Plumas de la cola | 20 (♀ 18) (Delacour, 1977; Madge y McGowan, 2002) | 20–24 (22–24 en la subespecie nominal) (Delacour, 1977; Madge y McGowan, 2002) | unas 22 (Johnsgard, 1986) |
| Tamaño | macho de 56–60 cm; poca diferencia de tamaño entre sexos (Delacour, 1977; Madge y McGowan, 2002) | macho notablemente mayor que la hembra; hasta 76 cm según Wikipedia (Delacour, 1977; Madge y McGowan, 2002; Wikipedia (Grey peacock-pheasant)) | 16–21 pulgadas (unos 41–53 cm) de longitud total, para la especie (Johnsgard, 1986) |
| Área | sur de Vietnam y este de Camboya (BirdLife DataZone, 2023; Madge y McGowan, 2002) | gran parte del Sudeste asiático, salvo casi toda Indochina; no se solapa con el de Germain (Madge y McGowan, 2002; Wikipedia (Grey peacock-pheasant)) | península malaya y sur de Tailandia (Fuller y Garson, 2000; Johnsgard, 1986) |
Solo se anotan rasgos que dan las fuentes; Madge y McGowan advierten de que los rangos de Germain, Hainan y Malayo no se solapan con el del gris (Madge y McGowan, 2002).
Historia
De una piel enviada al Museo de París a las pajareras de Europa y de los Estados Unidos, y de ahí a los primeros estudios de campo en Vietnam.
La historia de la especie empieza con una piel de museo, sigue con unas aves vivas que llegaron a los zoológicos del continente europeo a finales del siglo XIX y continúa con un siglo de colecciones que fueron sobre todo norteamericanas; lo que se sabe de ella en libertad es muy reciente. (Beebe, 1922; Delacour, 1977; Elliot, 1872; Fuller y Garson, 2000)
La piel del Museo de París (1866)
Beebe cuenta que en 1866 M. Germain envió al Museo de París la piel de un macho de faisán pavo procedente de la Cochinchina, que M. Verreaux cedió a Elliot, y que este lo bautizó en honor de su descubridor (Beebe, 1922). Elliot confirma, en su monografía de 1872, que su descripción de 1866 se hizo sobre el único ejemplar entonces conocido, el del Museo de París (Elliot, 1872). Green-Armytage escribe que Germain fue el primero que dio a conocer la especie en Occidente, al enviar una piel al Museo de París en 1866 (Green-Armytage, 2002). Beebe y Avibase dan como lugar de la descripción The Ibis de 1866, p. 56, y como localidad tipo, la Cochinchina; Beebe precisa que el tipo se conserva en el Museo de París (Avibase; Beebe, 1922).
Las notas de Germain
Elliot reproduce en su monografía una nota que Germain le había enviado sobre los hábitos de la especie, y Beebe la recoge de nuevo (Beebe, 1922; Elliot, 1872). Germain decía que el ave vive sobre todo en las montañas de las regiones boscosas y que es más abundante en las cercanas al paso («Porte») de Ka-ou-Ty-Vai, en la provincia de Bien-hoa; que no se encuentra cerca de Saigón, aunque los annamitas llevan algunos de vez en cuando, capturados con lazos en los lugares donde vive el faisán de fuego siamés (Beebe, 1922; Elliot, 1872). Tuvo dos ejemplares durante mucho tiempo en el jardín zoológico de Saigón: siempre le parecieron bastante salvajes, aunque nunca vio que se lanzaran contra la malla de la jaula; cuando alguien los molestaba, corrían de un lado a otro, abrían la cola, erizaban las plumas de la cabeza y emitían un sonido gutural, «grae-grae», que comparaba con la voz de los hoccos (Elliot, 1872). Añadía que el Museo de París tenía un ejemplar vivo, que había sobrevivido al invierno, y que la especie le había parecido, cuando la observó, menos huraña que el faisán de fuego siamés (Elliot, 1872).
Elliot contesta esa última observación con la suya: el faisán de fuego siamés le parecía manso y confiado, y nunca había visto un faisán pavo de Germain que no evitara, si podía, al espectador (Elliot, 1872). Describe un ave viva, graciosa y muy rápida en sus movimientos, tímida, que busca siempre el abrigo de cualquier ramaje y que, inquieta, no tarda en volver a la vista como si buscara otra salida de su jaula; añade que habían llegado numerosos ejemplares a varios zoológicos del continente, donde vivían y parecían soportar muy bien el cautiverio (Elliot, 1872).
Las primeras aves vivas
Delacour cuenta que los faisanes pavo de Germain llegaron vivos a París en 1875, que resultaron de inmediato más dóciles en cautividad que los grises y que empezaron a criar ese mismo año; después llegaron a Francia y a los Estados Unidos algunos ejemplares, por intervalos, y en su época la especie estaba bien establecida en los Estados Unidos y se había vuelto rara en Europa (Delacour, 1977). Gerrits da el mismo año, 1875, para su introducción en Europa y para las primeras crías, y dice que en su época era escasa en Europa (Gerrits, 1974). Roles escribe que se importó y se crió por primera vez en 1875, y que tiene fama de ser la que mejor se da en cautividad (Roles, 1976). Beebe, que no la conoció en libertad, dice que no es rara en cautividad y que se había criado varias veces (Beebe, 1922); su propia sinonimia recoge trabajos de cría en cautividad de 1884, 1888 y 1890 (Beebe, 1922).
La especie en las colecciones del siglo XX
Delacour la describe como un ave de pajarera satisfactoria, no tan vistosa como la gris, pero muy hermosa, y en una obra posterior anota que ya se criaba con frecuencia en América y en Europa (Delacour, 1977; Delacour, 1978). Howman escribía en 1979 que casi todas las aves cautivas estaban en América, y en 1993 las describía como una situación «razonable, pero dispersa fuera de América» (Howman, 1979; Howman, 1993; Howman, 1996). Gerrits la veía como una especie que se mantenía sobre todo en colecciones grandes, no en pequeñas (Gerrits, 1974). Fuller y Garson cifran la población cautiva en 100–300 aves hacia el año 2000; el libro del autor, en unos 800 ejemplares, y BirdLife da 32 machos, 33 hembras y 3 pollos sin sexar en 2021 entre los miembros europeos de la WPA (BirdLife DataZone, 2023; Fuller y Garson, 2000; Hernández García, 2014). Los detalles están en el capítulo de cría en cautividad y en el de conservación.
Los primeros datos de campo
Beebe, que no pudo observar la especie en libertad y trabajaba con ejemplares de museo, escribía que casi nada se había anotado del ave silvestre aparte de las notas de Germain (Beebe, 1922). Delacour precisó su área: este de la Cochinchina y sur de Annam, de las provincias de Bienhoa y Honquan al norte hasta Quinhon (14° N), y negó que viviera en la Cochinchina occidental, en Camboya o en Siam, como se había afirmado antes (Delacour, 1977). Johnsgard, en 1986, escribía que no había información real sobre su estado actual, y suponía que la capacidad de la especie de aprovechar el bosque secundario denso después de la defoliación, la deforestación o la tala podía haberle permitido sobrevivir bastante bien a los grandes cambios ecológicos provocados por la guerra en la región (Johnsgard, 1986). Los datos de campo recientes proceden de los años noventa: a Madge y McGowan les preocupa que haya pocas localidades recientes, dado que a mediados de los años sesenta se la consideraba extendida por todo el sur de Vietnam (Madge y McGowan, 2002). Se oyó a diario en el Parque Nacional de Nam Bai Cat Tien en una prospección de comienzos de 1990, y en 1998 se la vio y oyó con frecuencia en seis lugares de la provincia de Dak Lak (del Hoyo et al., 1994; Fuller y Garson, 2000). En el mismo año comenzó en Cat Loc y Cat Tien un proyecto de cinco años de investigación y conservación (Fuller y Garson, 2000). Nguyen y colaboradores (2018) calcularon en Cat Tien la única densidad específica de la especie (BirdLife DataZone, 2023).
Cronología
- Germain envía al Museo de París la piel de un macho (Beebe); Elliot describe la especie en The Ibis (Avibase; Beebe, 1922).
- Elliot habla de numerosos ejemplares vivos en los zoológicos del continente (Elliot, 1872).
- Llegan vivas a París y empiezan a criar ese mismo año, según Delacour, Gerrits y Roles (Delacour, 1977; Gerrits, 1974; Roles, 1976).
- Primeras publicaciones sobre su cría en cautividad (Noenty, 1884; Godry, 1888; Delaurier, 1890), según la sinonimia de Beebe (Beebe, 1922).
- Beebe la trata como subespecie del faisán pavo gris (Beebe, 1922).
- Lowe discute el rango y señala que la lámina de «germaini» de Beebe era otra forma (Delacour, 1977; Johnsgard, 1986).
- Se la considera extendida por todo el sur de Vietnam (Wildash, 1968, según Madge y McGowan) (Madge y McGowan, 2002).
- Se oye a diario en Nam Bai Cat Tien (del Hoyo et al., 1994).
- Se la ve y oye con frecuencia en seis lugares de la provincia de Dak Lak; empieza el proyecto de cinco años de Cat Loc y Cat Tien (Fuller y Garson, 2000).
- Fuller y Garson publican el plan de acción para los faisanes, con un proyecto específico para la especie (n.º 20) (Fuller y Garson, 2000).
- Nguyen y colaboradores estiman la densidad de machos que cantan en Cat Tien (BirdLife DataZone, 2023).
- La UICN la clasifica como vulnerable, con tendencia decreciente (BirdLife DataZone, 2023).
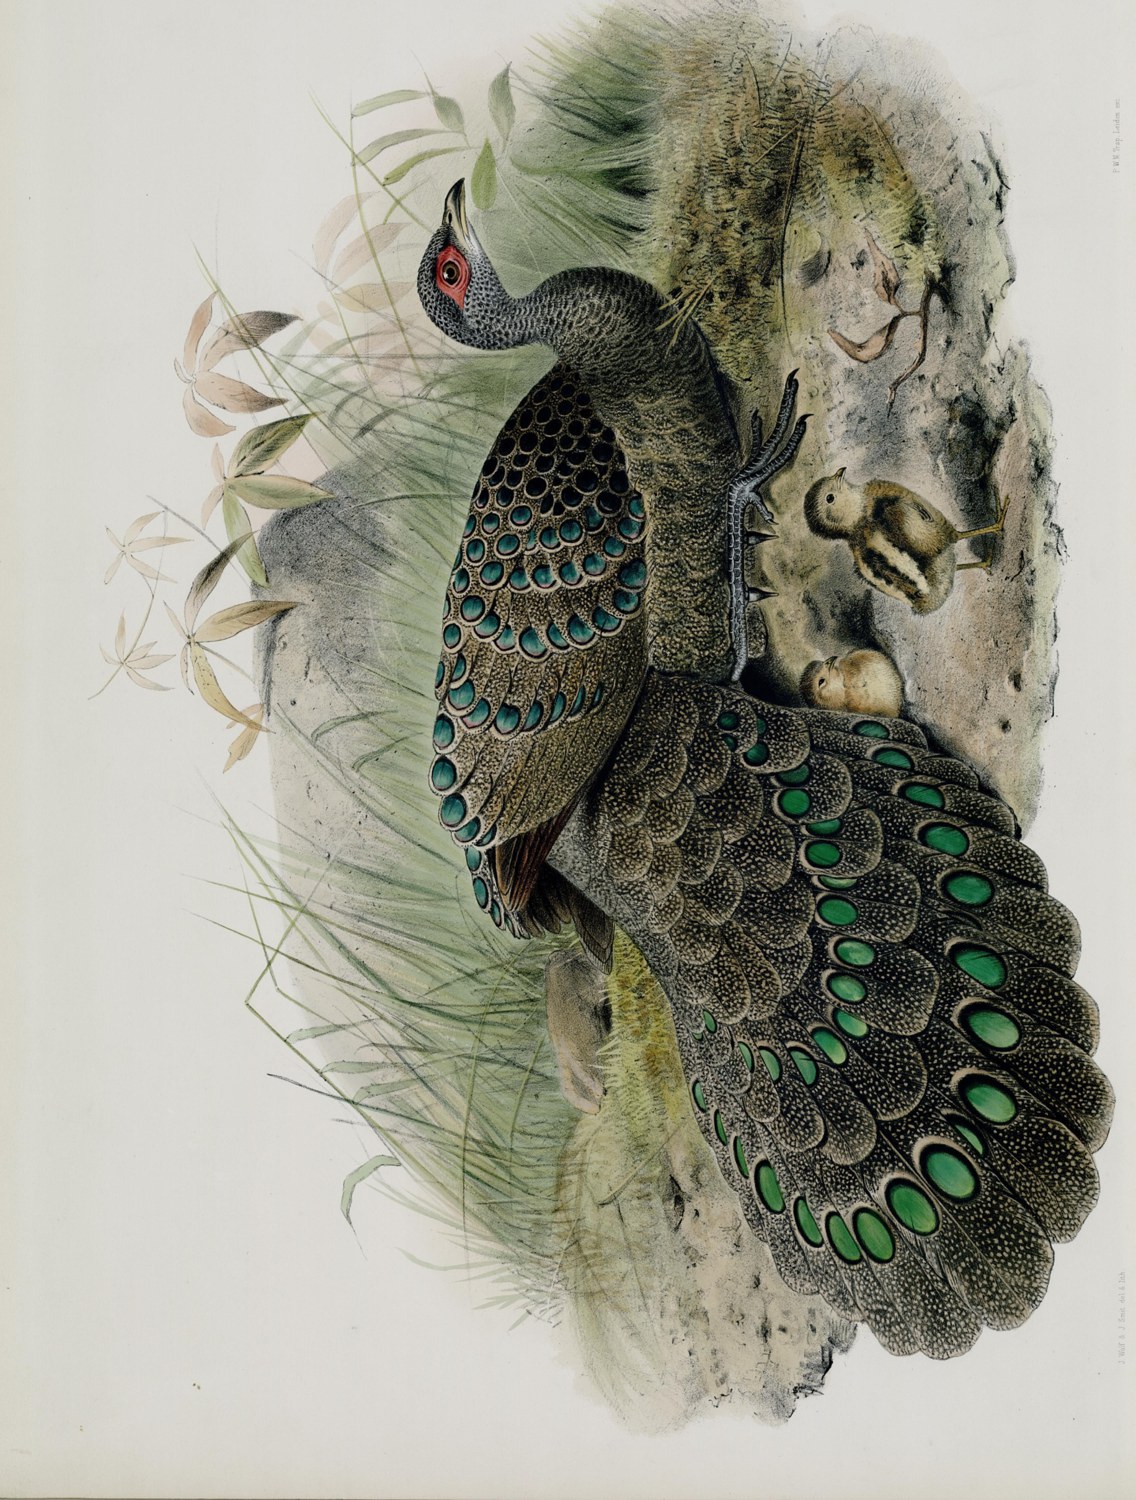
La lámina de la Monograph of the Phasianidae (1872) lleva el rótulo «Polyplectron germaini» y el título «Germain's Polyplectron»; es de la especie que el propio Elliot había descrito en 1866 y representa un ave posada sobre una roca, con pollitos (Elliot, 1872). Se reproduce aquí tal como aparece en el ejemplar digitalizado. Véase Daniel Giraud Elliot.
Morfología y plumajes
Un faisán pardo oscuro, sin cresta, de cara roja y con ocelos azul violáceo y verde; la hembra, parecida, con ocelos triangulares.
El macho
El macho no tiene copete en la cabeza. La garganta es blanquecina y la piel desnuda de la cara, de color rojo. El cuerpo es principalmente marrón oscuro, punteado de crema claro, y en las alas luce unos preciosos ocelos iridiscentes (verde, azul y violeta). El iris es marrón y las patas son grisáceas. (Hernández García, 2014)


Delacour describe al macho sin cresta ni gorguera, con la cabeza, la parte baja de la garganta y el cuello negros, finamente moteados de blanco grisáceo, y la parte alta de la garganta, blanca; las partes superiores, pardo oscuro con motas ante; las plumas del manto y de las alas llevan un ocelo terminal grande y redondo, azul violeta con reflejos verdes, rodeado por un anillo negro y por un borde pardo dorado pálido; no hay ocelos en el dorso ni en la rabadilla; las primarias son negras y lisas; los pares centrales de cubiertas de la cola no tienen ocelos, y los laterales llevan uno en cada barba; las partes inferiores, negras, barradas irregularmente de ante, y el abdomen, negro (Delacour, 1977). Gerrits la describe igual: partes superiores pardo oscuro vermiculadas de amarillo; cabeza, garganta y cuello negros con estrechas rayas gris blancuzcas; ocelos redondos azul violeta, rodeados de un anillo negro y a menudo con reflejos verdes en las puntas de las plumas del manto y de las alas, y primarias de un negro mate (Gerrits, 1974).
Madge y McGowan precisan que las cubiertas de la cola son largas, algunas muy alargadas y capaces de ocultar hasta la mitad de la cola, con pares subterminales de ocelos; que el par central no tiene ocelos y los demás llevan uno en cada barba; que la cola, de 20 plumas muy alargadas y graduadas, de punta ancha y roma, lleva pares subterminales de ocelos metálicos de verde; y que el pico y las patas son pardo negruzcos, la piel desnuda alrededor del ojo, rojo apagado, y el iris, pardo (Madge y McGowan, 2002). Gerrits añade que cada una de las veinte plumas de la cola lleva un ocelo verde negruzco brillante cerca de la punta, y que la cola es plana y redondeada (Gerrits, 1974). El macho tiene dos espolones, y la hembra, ninguno (BOW, 2020; Madge y McGowan, 2002).
Birds of the World, según el recuadro de la ficha original, distingue al macho de los demás faisanes pavo de grandes ocelos en la parte superior por carecer de cresta y de collar; los ocelos del manto y de las alas van rodeados por un anillo marrón dorado pálido. Frente al faisán pavo gris es más pequeño y oscuro, con marcas pálidas más finas y densas, ocelos más oscuros y azul verdoso, cabeza y cuello mucho más oscuros y con barras claras bien definidas, y con el blanco limitado a la parte alta de la garganta (BOW, 2020). Un rasgo útil para separar los sexos, además del tamaño y la forma de los ocelos, es el número de plumas de la cola: los machos tienen 20 timoneras, frente a las 18 de las hembras (Wikipedia) (Wikipedia).
Beebe, que tuvo en las manos pieles y no aves vivas, describe en su ejemplar una cabeza, nuca y cuello superior de plumas sueltas, negras, con marcas blancas poco nítidas en forma de raya de eje o de mancha, y una banda terminal o subterminal; en la parte baja del cuello dorsal aparecen finas bandas concéntricas de blanco; los ocelos, de un verde oscuro lustroso que cambia a un púrpura rico, cubren todo el manto, los escapularios, las cubiertas de las alas y las terciarias; el ocelo está rodeado de un anillo estrecho negro y luego de otro del fondo pardo oscuro, mientras que las motas ante se funden en una banda sólida alrededor del tercio distal del ocelo (Beebe, 1922). Los ocelos están bien desarrollados hasta la séptima secundaria contando desde la exterior, en la sexta y la quinta hay vestigios abortivos, y el resto de las secundarias no tiene ornamento salvo algo de moteado en la barba externa; las primarias son lisas y de color pardo oscuro (Beebe, 1922). Las cubiertas largas y todas las timoneras llevan ocelos gemelos, rodeados primero de un anillo oscuro y luego de otro más ancho pardo ceniciento (Beebe, 1922). Beebe añade que la garganta, los lados de la cara y el cuello suelen tener el mismo dibujo que la coronilla, con plumas negras con una mancha o marca en V y una banda subterminal blanca, y que las marcas ante de las partes inferiores forman bandas bastante regulares en el pecho superior y se deshacen en un moteado irregular hacia atrás (Beebe, 1922).
Elliot, en 1872, la describía con el color general pardo negruzco, irregularmente moteado de pardo claro; la cabeza y la parte posterior del cuello, negras, con cada pluma barrada de blanco; el dorso, las alas y la cola cubiertos de manchas metálicas, de un verde oscuro lustroso con ciertas luces y de un púrpura rico con otras; las primarias, pardo oscuro; el pico, negro, con la mandíbula inferior color cuerno, y las patas, negras (Elliot, 1872).


Cabeza y partes blandas
| Parte | Delacour y Gerrits | Madge y McGowan, BOW | Beebe y Elliot | Roles | Ficha original |
|---|---|---|---|---|---|
| Iris | pardo (Delacour, 1977; Gerrits, 1974) | pardo (BOW, 2020; Madge y McGowan, 2002) | — | — | marrón (Hernández García, 2014) |
| Piel desnuda de la cara | roja (Delacour, 1977; Gerrits, 1974) | rojo apagado alrededor del ojo (BOW, 2020; Madge y McGowan, 2002) | roja; a veces, casi escarlata (Beebe) (Beebe, 1922) | roja | roja (Hernández García, 2014) |
| Pico | pardo negruzco (Delacour, 1977; Gerrits, 1974) | pardo negruzco (BOW, 2020; Madge y McGowan, 2002) | mandíbula superior negruzca, inferior color cuerno (Elliot) (Elliot, 1872) | negruzco (Roles, 1976) | no lo describe |
| Patas | pardo negruzcas (Delacour, 1977; Gerrits, 1974) | pardo negruzcas (BOW, 2020; Madge y McGowan, 2002) | negras (Elliot) (Elliot, 1872) | negruzcas (Roles, 1976) | grisáceas (Hernández García, 2014) |
Madge y McGowan dan también 20 plumas en la cola del macho; Beebe encuentra casi siempre 20 y, en cinco ocasiones, un número intermedio (Beebe, 1922; Madge y McGowan, 2002).


Una imagen retocada
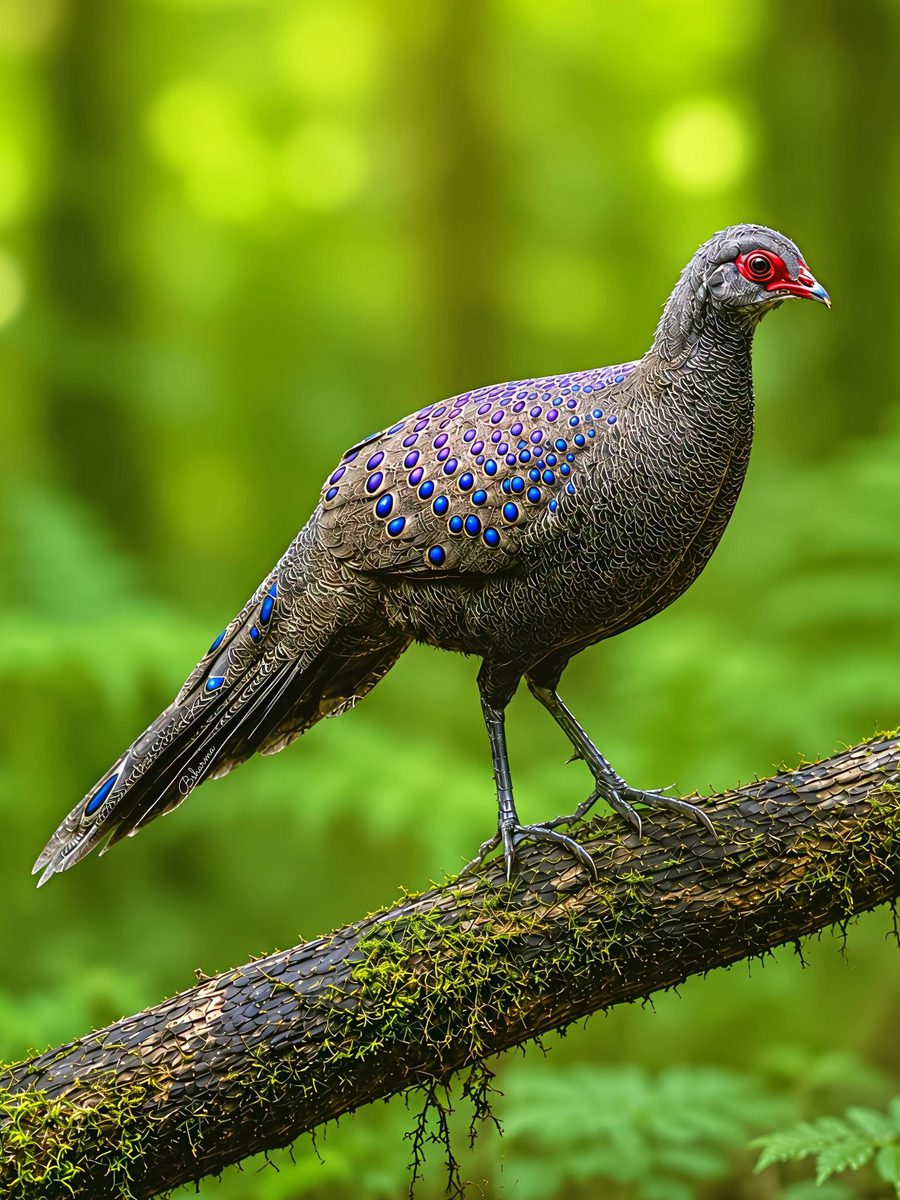
La fotografía siguiente es de B. Sharma y ha sido retocada con inteligencia artificial: los colores y el plumaje que muestra pueden no ser exactos, y no se ha utilizado para describir al ave.
La hembra
La hembra es muy similar al macho, pero más pequeña y de coloración general más apagada. Sus ocelos no son redondos, sino ligeramente triangulares. El iris y las patas son como los del macho. (Hernández García, 2014)


Delacour describe a la hembra algo más pequeña y apagada que el macho; la cabeza y el cuello, parecidos, pero el resto del plumaje, pardo oscuro estriado y moteado de gris pardusco pálido, no punteado como en el macho; los ocelos del manto y de las alas, triangulares, azul metálico con la base negra y un borde superior ante pálido; las timoneras, negruzcas, barradas fina e irregularmente de ante, con ocelos verdes grandes pero mal definidos, sin el borde pálido, que en las plumas externas se funden en una gran mancha, como en el faisán pavo de Rothschild; las partes blandas, como en el macho (Delacour, 1977). Madge y McGowan añaden que la cola es proporcionalmente más corta y menos graduada que la del macho, de 18 plumas, y que, en el plumaje, se parece mucho al macho, pero con un estriado y un moteado ante finos por encima en lugar del punteado del macho; el ocelo del manto y de las alas es triangular y de azul metálico con la base negra; la cola, finamente barrada, con ocelos verdes prominentes sin borde definido, sobre todo en las plumas externas, donde las marcas tienden a fundirse (Madge y McGowan, 2002). BOW, en su recuadro, dice que la hembra, algo más apagada, tiene el plumaje estriado y moteado de color ante; que sus ocelos azules del manto y de las alas son algo triangulares y los verdes de la cola carecen del borde pálido; que el pico y las patas son marrón negruzco, la piel desnuda en torno al ojo, de un rojo apagado, y el iris, marrón (BOW, 2020).
Johnsgard señala que las hembras del faisán pavo de Germain y del gris son muy parecidas, pero que las de Germain tienen la piel de la cara de un color más intenso, son más melánicas en conjunto, tienen la garganta menos blanquecina, los ocelos de la cola mejor desarrollados y más nítidos y los del dorso y de las cubiertas, triangulares (Johnsgard, 1986). Beebe describe una hembra en la que los ocelos, más escasos en el manto inferior y en las alas que en el macho, son «poco más que manchas de pigmento negro» en la parte delantera y alcanzan su desarrollo más pleno en los escapularios y las cubiertas más largas, donde tienen una corta punta distal que los hace anchamente en forma de flecha; las timoneras son por lo general veinte, y en dos ocasiones halló dieciocho (Beebe, 1922). Roles dice que los ocelos de la cola de la hembra no están tan desarrollados como los del macho y se funden en una mancha grande en las plumas externas (Roles, 1976).
Juvenil y macho de primer año
Delacour dice que el macho de primer año es como el adulto, pero con ocelos negruzcos, espolones apenas indicados y cola más corta; el inmaduro, como la hembra, con ocelos negro mate (Delacour, 1977). Madge y McGowan dan al macho de primer año más pequeño y apagado que el adulto, con ocelos negruzcos, cola más corta y espolones débiles, y al juvenil, muy parecido a la hembra pero con ocelos negruzcos (BOW, 2020; Madge y McGowan, 2002). Beebe describe a una hembra inmadura en muda del plumaje juvenil: cabeza y cuello, incluida la garganta, con más blanco; ocelos con apenas un brillo verde, casi negro mate, con una ancha banda terminal ante moteada; todavía algunas cubiertas mayores juveniles, bordeadas de castaño rojizo; moteado de las timoneras en forma de barras regulares, y partes inferiores, sobre todo, con menos vermiculado, de modo que el pecho bajo y el vientre son pardo negruzco limpio (Beebe, 1922).
En cuanto a la edad a la que se alcanza el plumaje de adulto, Howman y Johnsgard la dan en el primer año (en sus ediciones de 1979, 1993 y 1996), mientras que para el género Delacour dice que el plumaje de adulto se alcanza en el segundo año (Delacour, 1977; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986).
Polluelo
El HBW y BOW (recuadro de la ficha original) dicen que los pollos tienen el plumón pardo castaño oscuro por encima y más beige por debajo (BOW, 2020; del Hoyo et al., 1994); Delacour escribe solo que el polluelo es «del patrón habitual y oscuro» (Delacour, 1977). Para el género, Delacour describe polluelos de corona y partes superiores castaño rico y con dos anchas bandas ante a los lados del dorso, frente y cara de pardo más claro, y partes inferiores ante, más ricas en el pecho (Delacour, 1977). No hay fotografías de los pollos de esta especie en la carpeta de la ficha.
Muda
No se ha localizado en las fuentes consultadas ningún dato sobre la muda de esta especie. Johnsgard describe, para el género Polyplectron, que la cola se muda empezando por la tercera pluma contando desde el par central y avanzando hacia fuera y hacia dentro, y que el segundo y el primer par se mudan entre el cuarto y el quinto, y entre el quinto y el sexto, respectivamente (Johnsgard, 1986).
Aspecto general
Gerrits escribe que es imposible dar una impresión adecuada de la especie solo con palabras (Gerrits, 1974). Delacour la considera un ave de pajarera satisfactoria, «no tan vistosa como la gris, pero muy hermosa» (Delacour, 1977); Howman la describe como más apagada que la gris y sin cresta ni gorguera (Howman, 1979; Howman, 1993); Madge y McGowan, como un faisán pavo pequeño, oscuro y distintivo, sin la cresta de otras especies parecidas (Madge y McGowan, 2002). El tamaño de los dos sexos es más parecido que en el gris: Delacour dice que la hembra es apenas menor que el macho; Madge y McGowan, que el macho es mayor, pero con menos diferencia que en el gris (Delacour, 1977; Madge y McGowan, 2002).
Medidas y peso
Los datos de la guía original, contrastados con la literatura.
El macho del faisán pavo de Germain mide entre 56 y 60 cm de longitud y la hembra, 48 cm. Las alas miden de 18 a 20 cm en el macho y 16 cm en la hembra; la cola, de 25 a 32 cm y de 22 a 25 cm, respectivamente, y el tarso, 6,5 cm y 5,5 cm. El macho pesa 500 g y la hembra, 400 g. (Hernández García, 2014)
Birds of the World da para el macho una longitud aproximada de 56 a 60 cm, con la cola de 25 a 32 cm, y un peso de unos 510 g en un ejemplar. Para la hembra, la longitud es de unos 48 cm, con la cola de 22 a 25 cm, y el peso de unos 397 g en un ejemplar. Estos valores son compatibles con los de la tabla de esta página, salvo en la longitud de la cola del macho (26 a 35 cm según el autor). (BOW, 2020)
Medidas según distintas fuentes
| Fuente | Longitud ♂ | Longitud ♀ | Ala ♂ | Ala ♀ | Cola ♂ | Cola ♀ | Tarso ♂ / ♀ | Peso ♂ / ♀ |
|---|---|---|---|---|---|---|---|---|
| Libro del autor (2014) | 56–60 cm | 48 cm | 16–19 cm | 16 cm | 26–35 cm | 22–25 cm | 6,5 / 5,5 cm | 500 / 400 g |
| Tabla de esta guía (corregida) | 56–60 cm | 48 cm | 18–20 cm | 16 cm | 25–32 cm | 22–25 cm | 6,5 / 5,5 cm | 500 / 400 g |
| Delacour (1977) | 550 mm | 480 mm | 180–200 mm | 160–185 mm | 250–320 mm | 220–250 mm | 65 / 55 mm | — |
| Gerrits (1974) | 550 mm (22 pulgadas) | 480 mm (19 pulgadas) | 180–200 mm | 160–185 mm | 250–320 mm | 220–250 mm | 65 / 55 mm | — |
| Roles (1976) | 22 pulgadas (unos 56 cm), para la especie | — | — | — | — | — | — | — |
| Johnsgard (1986) | 19–22 pulgadas (48–56 cm), para la especie | — | 180–200 mm | 160–185 mm | 250–320 mm | 220–250 mm | — | c. 510 / c. 397 g (un ejemplar de cada sexo) |
| HBW (1994) | c. 56 cm | c. 48 cm | — | — | 25–32 cm | 22–25 cm | — | 510 / 397 g (un ejemplar de cada sexo) |
| Madge y McGowan (2002) | 56–60 cm | c. 48 cm | 180–200 mm | 160–185 mm | 250–320 mm | 220–250 mm | 65 / 55 mm | 510 / 397 g (un ejemplar cautivo de cada sexo) |
| BOW (recuadro) | 56–60 cm | c. 48 cm | — | — | 25–32 cm | 22–25 cm | — | c. 510 / c. 397 g |
| Beebe (1922) | dice que las dimensiones generales son las del faisán pavo gris | — | — | — | — | — | — | — |
Johnsgard da las medidas de Delacour y los pesos de Stephen Wylie (comunicación personal); el libro del autor da la longitud, la cola y los pesos como cifras redondas, parecidas a las de BOW; Delacour da el culmen: 20 mm en el macho y 16 mm en la hembra (Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Gerrits, 1974; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976).
El faisán pavo de Germain entre los espoloneros
| Especie | Longitud ♂ | Longitud ♀ | Ala ♂ | Cola ♂ | Peso |
|---|---|---|---|---|---|
| Faisán pavo de Sumatra (chalcurum) | — | — | 162–190 mm | 260–380 mm | 425 y 590 g (dos machos); 238–269 g (cuatro hembras) |
| Faisán pavo de Rothschild (inopinatum) | 650 mm | 460 mm | 230–255 mm | 320–400 mm | — |
| Faisán pavo de Germain | 550 mm | 480 mm | 180–200 mm | 250–320 mm | 510 g (un macho); 397 g (una hembra) |
| Faisán pavo gris (bicalcaratum, forma del Himalaya) | 650–750 mm | 550 mm | 210–240 mm | 350–400 mm | — |
| Faisán pavo de Hainan (katsumatae) | 530 mm | 400 mm | 195–198 mm | 285–300 mm | — |
| Faisán pavo malayo (malacense) | — | — | 200–215 mm | 240–250 mm | 680 g (un macho) |
Medidas de Delacour (1977), recogidas por él y por Johnsgard; los pesos, de Johnsgard (Delacour, 1977; Johnsgard, 1986).
Huevos
Delacour da para el huevo un color blanco crema, de 45 × 35 mm; Johnsgard da la misma medida media y una masa fresca estimada de 30,4 g; el HBW, Madge y McGowan y BOW los describen como crema o blanco cremoso, y la ficha original, como crema claro (BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). No hay fotografías de los huevos de esta especie en la carpeta de la ficha.
Distribución y hábitat
El sur de Indochina: bosques de tierras bajas y de piedemonte del sur de Vietnam y del extremo este de Camboya.

El faisán pavo de Germain vive en el este de la Cochinchina* y el sur de Annam. Se encuentra en una amplia gama de tipos de bosque de tierras bajas y de montaña, entre ellos bosques dominados por dipterocarpáceas, tanto perennes como semisiempreverdes, y se ha registrado también en bosques secundarios y entre el bambú. Se ha observado desde el nivel del mar hasta, por lo menos, los 1.400 metros sobre el nivel del mar. (BirdLife DataZone, 2023; Fuller y Garson, 2000; Hernández García, 2014)
Área de distribución
BirdLife describe a la especie como endémica del sur de Indochina, conocida solo del sur de Annam y de la Cochinchina, en Vietnam, y del sur y este de la provincia de Mondulkiri y de la de Ratanakiri, en Camboya; las mayores poblaciones conocidas están en las manchas de bosque conservadas dentro de áreas protegidas (BirdLife DataZone, 2023). BirdLife calcula una extensión de presencia (residente/reproductora) de 48.700 km², con un descenso continuado de esa extensión; la superficie de ocupación es desconocida, pero también desciende de forma continuada; la especie se conoce en entre 11 y 100 localidades, con descenso continuado de su número, y BirdLife no la considera gravemente fragmentada (BirdLife DataZone, 2023). Camboya y Vietnam son los dos países con presencia actual, ambos de origen nativo y residente (BirdLife DataZone, 2023). Wikipedia la sitúa en los bosques tropicales estacionales del centro-sur de Vietnam y del extremo este de Camboya, y dice que puede verse con facilidad en el Parque Nacional de Cat Tien (Wikipedia). Avibase, siguiendo la lista de Clements, la da en el bosque húmedo del sur de Vietnam (Avibase).
Delacour da el este de la Cochinchina y el sur de Annam, de las provincias de Bienhoa y Honquan al norte hasta Quinhon, y precisa que la especie no vive en la Cochinchina occidental, en Camboya ni en Siam, como se había afirmado antes (Delacour, 1977). El HBW la da en el sur de Vietnam, hasta los 14° N, en el centro-sur de Annam, y anota que las citas de Camboya y Tailandia son discutidas (del Hoyo et al., 1994). Madge y McGowan dan el sur de Vietnam, donde históricamente era conocida desde unos 14° N hacia el sur por el sur de Annam y la Cochinchina; los registros recientes proceden de las provincias de Lam Dong, Dong Nai, Song Be, Gia Lai y Dak Lak, y se ha descubierto hace poco en el extremo este de Camboya, en la provincia de Mondulkiri; las citas de Laos parecen casi con seguridad erróneas (Madge y McGowan, 2002). BOW, según el recuadro de la ficha original, la da en el sur de Vietnam, en el centro-sur de Annam (hasta aproximadamente los 14° N) y en el este de Camboya, en las provincias de Ratanakiri y Mondulkiri; las citas de Laos y Tailandia se consideran extremadamente improbables (BOW, 2020). Fuller y colaboradores la dan solo del sur de Annam y la Cochinchina, en Vietnam, y posiblemente del este de Camboya, de donde procede un ejemplar del museo del zoo de Phnom Penh, aparentemente de la provincia de Mondulkiri, y donde se oyó hace poco un macho en Dak Dam (Fuller y Garson, 2000).
| Localidad | Dato | Fuente |
|---|---|---|
| Bien-hoa (Cochinchina) | localidad de la descripción de Germain; más abundante cerca del paso de Ka-ou-Ty-Vai; localidad tipo: Cochinchina | Elliot (1872); Beebe; Avibase |
| Bienhoa, Honquan y Quinhon | límites del área según Delacour: Bienhoa y Honquan, al sur; Quinhon, al norte (14° N) | Delacour |
| Parque Nacional de Nam Bai Cat Tien (Cat Tien) | se oía a diario en 1990; presente en bosque talado y en bambú espinoso; 350 km²; accesible para la observación | HBW; Madge y McGowan; Fuller; Wikipedia |
| Reserva Natural de Cat Loc | bastante común; 35.000 ha; integrada administrativamente con Cat Tien | Fuller; BOW (recuadro) |
| Mesetas de Da Lat y de Di Linh | laderas bajas | Fuller |
| Provincia de Dak Lak (seis lugares) | se vio y se oyó con frecuencia en las prospecciones de 1998 | Fuller |
| Chu Yang Sin | reserva natural; también IBA/KBA | BOW (recuadro); Fuller; BirdLife |
| Yok Don | parque nacional con la especie | Fuller |
| Mondulkiri y Ratanakiri (Camboya) | sur y este de Mondulkiri; Ratanakiri; Dak Dam; museo de Phnom Penh | BirdLife; Fuller; BOW (recuadro) |
| Santuario de Fauna de Snoul; Bosque Protegido de Seima (Camboya) | se considera aún común | BOW (recuadro) |
(Avibase; Beebe, 1922; BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Elliot, 1872; Fuller y Garson, 2000; Madge y McGowan, 2002; Wikipedia)
Zonas importantes y espacios protegidos
| Zona importante (IBA/KBA) | País | % protegido | Última evaluación |
|---|---|---|---|
| Virachey | Camboya | 98,45 % | 2018 |
| Snoul / Keo Sema / O Reang | Camboya | 68,08 % | 2012 |
| Chu Prong | Vietnam | 95,46 % | 2012 |
| Chu Yang Sin | Vietnam | 95,87 % | 2026 |
| Ea So | Vietnam | 73,88 % | 2012 |
| Tuyen Lam | Vietnam | 7,39 % | 2012 |
| Cat Loc | Vietnam | 100 % | 2012 |
| Nam Cat Tien | Vietnam | 100 % | 2012 |
| Lo Go – Xa Mat | Vietnam | 71,9 % | 2012 |
BirdLife identifica nueve sitios importantes (IBA/KBA), con 9.354 km² en total y una cobertura media de áreas protegidas del 79 % (BirdLife DataZone, 2023).
Fuller y colaboradores recogen que la especie sobrevive en al menos cuatro áreas protegidas (los parques nacionales de Cat Tien y Yok Don y las reservas naturales de Cat Loc y Chu Yang Sin), y Madge y McGowan, en al menos cinco, entre ellas Nam Cat Tien y Cat Loc (Fuller y Garson, 2000; Madge y McGowan, 2002). Las áreas protegidas de Camboya que citan BOW y Madge y McGowan son el Santuario de Fauna de Snoul y el Bosque Protegido de Seima (BOW, 2020; Madge y McGowan, 2002); BirdLife cita, a propósito de la caza con lazos, el Santuario de Fauna de Seima, de donde los guardas retiraron una media de 942 lazos al año entre 2010 y 2018 (BirdLife DataZone, 2023).
Altitud: cada fuente da un rango
| Fuente | Altitud | Observaciones |
|---|---|---|
| Ficha original y libro del autor | del nivel del mar a, por lo menos, 1.400 m | sin fuente citada; coincide con Fuller, Madge y McGowan, BOW y la valoración antigua de BirdLife (Hernández García, 2014) |
| Delacour (1977) | del nivel del mar a 4.000 pies (unos 1.200 m) | bosque, normalmente cerca de lugares húmedos (Delacour, 1977) |
| Gerrits (1974) | tierras bajas y hasta 4.000 pies | prefiere lugares húmedos (Gerrits, 1974) |
| Roles (1976) | del nivel del mar a 4.000 pies | junglas húmedas (Roles, 1976) |
| Howman (1979, 1993, 1996) | del nivel del mar a unos 4.000 pies (1.200 m) | (Howman, 1979; Howman, 1993; Howman, 1996) |
| Johnsgard (1986) | del nivel del mar a 4.000 pies | sigue a Delacour y a Beebe (Johnsgard, 1986) |
| HBW (1994) | sin cifra | bosques de tierras bajas y submontanos (del Hoyo et al., 1994) |
| Fuller y Garson (2000) | del nivel del mar a al menos 1.400 m | (Fuller y Garson, 2000) |
| Madge y McGowan (2002) | hasta al menos 1.400 m (quizá 1.800 m); lámina: 1.400 m | (Madge y McGowan, 2002) |
| BOW (recuadro) | al menos 1.400 m, quizá 1.800 m | (BOW, 2020) |
| BirdLife (2023) | 0–1.500 m (texto: hasta al menos 1.500 m) | sin límites ocasionales (BirdLife DataZone, 2023) |
(BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Gerrits, 1974; Hernández García, 2014; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976)
Hábitat
Delacour y Gerrits la describen en bosques, normalmente cerca de lugares húmedos, y Roles, como un ave tímida y reservada de las selvas y bosques húmedos (Delacour, 1977; Gerrits, 1974; Roles, 1976). El HBW la da en bosques perennifolios y semiperennifolios de tierras bajas y submontanos, y en cañaverales espinosos de bambú; parece tolerar cierto grado de alteración del hábitat, pues se ha registrado en bosque talado y en bosque secundario (del Hoyo et al., 1994). Madge y McGowan añaden el bosque pantanoso (Madge y McGowan, 2002). BOW (recuadro) la da en bosques de tierras bajas y de piedemonte, perennifolios y semiperennifolios, dominados por dipterocarpáceas, y entre matorrales espinosos de bambú; la considera tolerante hasta cierto punto de la alteración (BOW, 2020). BirdLife la da en una amplia gama de bosques montanos, dominados por dipterocarpáceas, perennifolios y semiperennifolios, incluido el bosque secundario talado y los cañaverales espinosos de bambú, y la encuentra tanto en zonas húmedas como secas, del nivel del mar a al menos 1.500 m (BirdLife DataZone, 2023). Fuller y colaboradores la dan residente en bosque dominado por dipterocarpáceas, perennifolio y semiperennifolio, hasta al menos 1.400 m, incluido el secundario, el talado y el de bambú espinoso (Fuller y Garson, 2000).
| Hábitat (BirdLife) | Subtipo | Estación | Importancia |
|---|---|---|---|
| Bosque subtropical y tropical húmedo montano | — | residente | adecuado |
| Bosque subtropical y tropical húmedo de tierras bajas | — | residente | adecuado |
| Bosque subtropical y tropical seco | — | residente | principal |
BirdLife da una dependencia del bosque alta y una longitud de generación de 6,3 años (BirdLife DataZone, 2023).
Densidad
La única densidad específica la calcularon Nguyen y colaboradores (2018) en el Parque Nacional de Cat Tien, en Vietnam: de 0,66 a 8,75 machos que cantan por km², según el tipo de bosque (valor ponderado: 4,33) (BirdLife DataZone, 2023). BirdLife supone que las densidades de Cat Tien son de las más altas del rango, por la protección frente a la caza (no total) que da el parque, y de ellas deriva la estima de población: en el máximo, la mitad de la densidad media de Cat Tien y una ocupación del 50 % del hábitat, y en el mínimo, un cuarto de esa densidad y un 20 % de ocupación (BirdLife DataZone, 2023). Johnsgard, en 1986, escribía que no había estimas de densidad (Johnsgard, 1986). Madge y McGowan la dan por común y a menudo encontrada en las zonas adecuadas, como en partes del Parque Nacional de Nam Bai Cat Tien (Madge y McGowan, 2002).
Movimientos
Johnsgard no ve motivo para suponer desplazamientos importantes en una especie subtropical (Johnsgard, 1986). BOW la presume sedentaria: suele huir del peligro a pie, aunque, si se la acosa, vuela bajo y rápido; BirdLife la da como no migratoria (BirdLife DataZone, 2023; BOW, 2020). El HBW anota que no hay información sobre movimientos (del Hoyo et al., 1994).
Compañeros de hábitat y depredadores
Madge y McGowan la presentan como el único faisán pavo del sur de Vietnam (Madge y McGowan, 2002). Johnsgard anota que ninguna otra especie de Polyplectron vive en su área, pero que puede competir en cierta medida con el gallo bankiva y con los faisanes de fuego del género Lophura, que probablemente ocupan hábitats forestales parecidos; no se ha escrito nada sobre sus depredadores (Johnsgard, 1986). Germain recogía que los annamitas capturaban a la especie con lazos en los lugares donde vive el faisán de fuego siamés (Elliot, 1872). Madge y McGowan precisan que su rango no se solapa con el del faisán pavo gris (Madge y McGowan, 2002).
Comportamiento y voz
Un ave recelosa y esquiva, más conocida por su voz que por su presencia, y de la que se sabe sobre todo por las aves cautivas.
Costumbres
Delacour dice que las aves de esta especie no son muy tímidas, pero que se mantienen fuera de la vista, llaman continuamente cuando se las molesta, vuelan poco y suelen correr con las alas abiertas; se capturan con facilidad con lazos y son comunes en los lugares adecuados (Delacour, 1977). Madge y McGowan la describen como recelosa y difícil de observar, pero común y a menudo encontrada en las zonas adecuadas, como en partes del Parque Nacional de Nam Bai Cat Tien, donde vive en bosque talado y en matas de bambú espinoso; las llamadas fuertes delatan su presencia, y suele escapar a pie, aunque, si se la presiona, vuela bajo y rápido (Madge y McGowan, 2002). Johnsgard la describe como relativamente poco gregaria, que vive en parejas o en pequeños grupos familiares, de forma sedentaria y muy discreta (Johnsgard, 1986). Roles la califica de ave tímida y reservada, y recoge que el doctor Vallen, de los Países Bajos, la encontró más tímida que el faisán pavo malayo (Roles, 1976).
En cautividad, Howman dice que parece más salvaje que la mayoría de los demás faisanes pavo, con la costumbre de alzar el vuelo y lanzar un fuerte y áspero grito de alarma si se la sobresalta de repente (Howman, 1979; Howman, 1993; Howman, 1996). Elliot, que la observó en los zoológicos del continente, la describía vivaz, graciosa, muy rápida, tímida y siempre en busca de ramaje donde esconderse (Elliot, 1872); Germain contaba que sus aves, aunque salvajes, no se lanzaban contra la malla (Elliot, 1872).

Organización social
Johnsgard considera que la mayoría de los autores, apoyándose en observaciones de aves cautivas, la dan por normalmente monógama (Roles, 1981; Rutgers y Norris, 1970), aunque hay referencias de machos cautivos emparejados con éxito con dos hembras a la vez; no se sabe nada de su territorialidad en libertad (Johnsgard, 1986). Roles añade que hay informes de machos solteros apareados con éxito con dos hembras al mismo tiempo, aunque las relaciones monógamas son la regla (Roles, 1976). Delacour dice, para los faisanes pavo en general, que los machos son monógamos y que cada pareja debe aislarse, aunque en muy contadas ocasiones se han mantenido tríos con éxito (Delacour, 1977). BOW y el HBW no tienen datos fiables sobre el sistema de apareamiento en libertad (BOW, 2020; del Hoyo et al., 1994). La ficha original dice que el macho puede tener varias hembras, aunque estas no se toleran entre sí (véase el capítulo de cortejo) (Hernández García, 2014).
La voz
| Fuente | Llamada del macho | Otros sonidos |
|---|---|---|
| Elliot (1872), según Germain | en las aves cautivas molestadas, un sonido gutural, «grae-grae», parecido al de los hoccos | — |
| Delacour (1977) | nota de amor aguda, hwo-hwoit, repetida rápidamente de cuatro a seis veces | nota de alarma, un cacareo fuerte y rápido; llama continuamente cuando se la molesta |
| Howman (1979, 1993, 1996) | — | grito de alarma fuerte y áspero al alzar el vuelo si se la sobresalta |
| Johnsgard (1986) | reclamo fuerte, áspero y como de risita, más duro que el del gris, sin el tono de silbido de este; en Inglaterra el macho llama hasta principios de junio (Howman) | Wayre (1969): silbido musical agudo de tres sílabas, repetido de cuatro a seis veces |
| HBW (1994) | sin datos | — |
| Madge y McGowan (2002) | en la época de cría, risita parecida a la del gris, pero más fuerte y áspera; varía de intensidad: un cacareo fuerte y rápido o un traqueteo bajo de ronroneo, repetido de cuatro a siete veces, que se acelera con la agitación al responder a un rival (más grave y rápido que en el gris) | los cantos fuertes delatan su presencia y se dan con frecuencia en respuesta a machos vecinos |
| BOW (recuadro) | serie de sonidos graves, a modo de cascabeleo ronroneante, de 2 a 4 segundos cada uno, repetidos a intervalos de 3 a 11 segundos, que se acortan cuando el ave se alarma o responde a un rival; se distingue con facilidad de la del gris | — |
(BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Elliot, 1872; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002)
Sonidos y llamadas de la especie
Alimentación
Sin datos de la naturaleza: se presume una dieta de semillas, frutos, termitas e invertebrados, como la del faisán pavo gris.
No hay datos sobre la alimentación de esta especie en la naturaleza. No obstante, en cautividad recibe el mismo tipo de alimentación que el resto de los faisanes pavo del género Polyplectron: se alimenta de pequeñas semillas, larvas e insectos, y le gustan mucho los gusanos de la harina. La base de su dieta debe ser, en todo caso, un buen pienso rico en proteínas. Como complemento, algunos criadores suministran pienso de perro troceado para aumentar las proteínas que aporta el pienso de faisanes equilibrado. (Hernández García, 2014)
En libertad
Todas las fuentes que tratan el asunto coinciden en que no hay información: el HBW dice «no hay información disponible», Johnsgard, que probablemente es virtualmente idéntica a la del faisán pavo gris, y Madge y McGowan, que probablemente es similar a la del gris, pero que no hay datos de aves silvestres (del Hoyo et al., 1994; Johnsgard, 1986; Madge y McGowan, 2002). Beebe, que no vio la especie en libertad, no recoge nada sobre su alimento (Beebe, 1922).
La ficha original ofrece, como «Información ampliada», una extrapolación a partir del faisán pavo gris: no existen estudios específicos sobre la dieta del faisán pavo de Germain en libertad, y, al tratarse de una especie muy próxima al faisán pavo gris (Polyplectron bicalcaratum), del mismo género y con hábitos similares, es razonable inferir una alimentación parecida: semillas, frutos, termitas y otros invertebrados. Se trata de una extrapolación a partir de la especie emparentada, no de observaciones directas sobre P. germaini. El recuadro la atribuye a Wikipedia (Grey peacock-pheasant) (Wikipedia; Wikipedia (Grey peacock-pheasant)). El artículo de Wikipedia sobre el faisán pavo gris dice que su dieta se compone sobre todo de semillas, termitas, frutos e invertebrados (Wikipedia (Grey peacock-pheasant)). La ficha original añadía que los obtiene «escarbando en la hojarasca del sotobosque»; por decisión editorial se ha quitado esa precisión, que ninguna fuente da para esta especie.
Para el gris, Beebe encontró arroz y pequeños insectos en los buches de las aves que cazó cerca de poblados Kachin, y vio que les gustaba un fruto pequeño parecido a un tomate en miniatura; según Ali y Ripley, citados por Johnsgard, comen grano, bayas, semillas, higos silvestres, insectos, larvas, caracoles y otros animales pequeños, con las termitas muy apreciadas y semillas de bambú cuando las hay; Baker lo consideraba omnívoro, a veces con brotes de cultivos verdes (Beebe, 1922; Johnsgard, 1986). Son datos del gris, no de la especie, y se citan como orientación.
| Fuente | Alimentos citados para la especie en libertad |
|---|---|
| Beebe (1922) | sin datos |
| Delacour (1977) | sin datos específicos; para los faisanes pavo en general, omnívoros, con insectos y frutos como alimento habitual |
| Johnsgard (1986) | sin información; probablemente como el gris |
| HBW (1994) | sin información disponible |
| Madge y McGowan (2002) | sin datos; probablemente como el gris |
| BOW (recuadro) y Wikipedia | sin datos específicos; semillas, frutos, termitas e invertebrados por inferencia del gris |
(Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002; Wikipedia (Grey peacock-pheasant))
En cautividad
Semillas pequeñas, larvas e insectos, con gusanos de la harina y un buen pienso proteico, son la pauta del libro del autor, que menciona además el pienso de perro troceado como complemento que usan algunos criadores (Hernández García, 2014). Howman remite, en 1979 y en 1996, a la alimentación del faisán pavo de Sumatra, y en 1993, a la de los demás faisanes pavo, es decir, la dieta normal de faisán más cacahuetes, fruta troceada, semillas y gusanos de la harina (Howman, 1979; Howman, 1993; Howman, 1996). Delacour describe para los faisanes pavo en general una alimentación a base de grano, fruta, bayas y mezcla rica o pienso, y subraya que no les gusta la verdura (hierba o lechuga) y que les conviene algo de carne cruda troceada (Delacour, 1977); en otra obra dice que comen sobre todo larvas, bayas y fruta caída, y que en cautividad hay que darles carne picada, insectos y fruta (Delacour, 1978).
Los pollos son casi exclusivamente insectívoros: si la madre o la madre adoptiva no los alimenta directamente del pico, hay que darles de comer con pinzas u otro utensilio hasta que aprenden a picar solos, lo que suelen conseguir en pocos días (Johnsgard, 1986). Delacour recomienda insectos vivos, sobre todo gusanos de la harina, durante los primeros días o semanas (Delacour, 1977). Recomendación editorial: ofrecer siempre alimento vivo (gusanos de la harina) además del pienso, tanto a los adultos como, sobre todo, a los pollos.
Cortejo y exhibición
Una exhibición frontal con la cola abierta, menos intensa y menos vertical que la del faisán pavo gris, y sin cresta que adelantar.
El macho puede tener varias hembras, aunque estas no se toleran entre sí. La parada nupcial es muy similar a la del faisán pavo gris (chinquis). (Hernández García, 2014)
La exhibición del género
Delacour describe para los faisanes pavo que, en todas las especies, el macho hace una exhibición lateral normal: camina con delicadeza alrededor de la hembra ofreciéndole bocados y cloqueando suavemente; en las especies de cola ancha añade una exhibición frontal notable, en la que baja el cuerpo sobre los tarsos doblados mientras el manto, las alas y la cola se extienden en un círculo plano perfecto, salpicado de manchas iridiscentes (Delacour, 1977). Beebe escribe que la parada del género es frontal (Beebe, 1922). Johnsgard describe la del faisán pavo gris, con una exhibición lateral en la que el ala más cercana apenas se baja y la lejana se alza y se extiende hacia delante, y otra frontal, precedida de un silbido musical de reclamo que atrae a la hembra, en la que el macho levanta y abre cola y alas e inclina el cuerpo hasta la vertical, bajando la cabeza y el pecho hacia el suelo (Johnsgard, 1986).
La exhibición del faisán pavo de Germain
Delacour dice que la exhibición del macho es frontal completa (Delacour, 1977). Howman, citado por Johnsgard, cuenta que el macho de Germain se exhibe con menos intensidad que el gris: recoge un bocado en la exhibición del bocado y tiende a retroceder cuando la hembra se acerca, con una parada intermedia entre la lateral y la frontal, con la cola menos inclinada hacia arriba que en el gris (Johnsgard, 1986). Wayre (1969), según Johnsgard, dice que tiene una exhibición frontal y otra lateral (Johnsgard, 1986). Roles describe un paseo preliminar y un acecho alrededor de la hembra, a la que atrae con un bocado ofrecido en el pico, y, cuando ella se acerca, la exhibición frontal; lo califica de típico del género (Roles, 1976). Johnsgard, que vio fotografías de Lincoln Allen, cree que la postura frontal es bastante parecida a la del gris, pero más dirigida hacia el lado y con menos apertura de alas y de cola; falta además la cresta de plumas que el gris adelanta sobre el pico; la cópula no se ha descrito (Johnsgard, 1986). Madge y McGowan dicen igualmente que, en la exhibición, la cola se levanta menos y no se abre tanto como en el gris (Madge y McGowan, 2002). La ficha original dice que la parada nupcial es muy similar a la del gris (Hernández García, 2014).


| Fuente | Tipo de exhibición | Detalles |
|---|---|---|
| Delacour (1977) | frontal completa | llamada de amor hwo-hwoit, de cuatro a seis veces |
| Roles (1976) | frontal, tras ofrecer un bocado | paseo y acecho previos alrededor de la hembra |
| Johnsgard (1986), según Howman | intermedia entre lateral y frontal | cola menos inclinada hacia arriba que en el gris; exhibición menos intensa; retrocede cuando la hembra se acerca |
| Johnsgard (1986), según Wayre | frontal y lateral | reclamo musical agudo de tres sílabas |
| Johnsgard (1986), fotografías de Lincoln Allen | frontal, más dirigida hacia un lado | menos apertura de alas y cola que en el gris; sin cresta que adelantar |
| Madge y McGowan (2002) | cola menos levantada y menos abierta que en el gris | — |
| Libro del autor (2014) | muy similar a la del gris | — |
(Delacour, 1977; Hernández García, 2014; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976)
Pareja y llamada
La llamada del macho se emplea en la primavera: en Inglaterra, según Howman, se extiende hasta principios de junio (Johnsgard, 1986). Las parejas parecen monógamas en las observaciones de aves cautivas, con referencias de machos emparejados con dos hembras (Johnsgard, 1986; Roles, 1976).
Reproducción en la naturaleza
Un único nido silvestre conocido, con un solo huevo, y una puesta de uno o dos huevos que, en cautividad, se incuba en 21–22 días.
En libertad hay muy pocos datos fiables sobre la reproducción: BOW y Madge y McGowan citan una pareja con un volantón en abril y un único nido, y desconocen el sistema de apareamiento; el HBW dice que no hay información fiable de cría en libertad (BOW, 2020; del Hoyo et al., 1994; Madge y McGowan, 2002).
Calendario
En libertad solo se conoce la cría de febrero a abril por Madge y McGowan; el resto de las filas son datos de cautividad en climas distintos (BOW, 2020; del Campo, 2006; Delacour, 1977; Gerrits, 1974; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976).
El nido
El único nido descrito en libertad era una depresión poco profunda forrada de plumón, con un solo huevo, según BOW y Madge y McGowan (BOW, 2020; Madge y McGowan, 2002). Johnsgard escribe que los sitios de nidificación silvestres no se han descrito, pero que serían esencialmente iguales a los del faisán pavo gris, que anida en una cavidad, a menudo al pie de una mata de bambú o entre arbustos espesos del sotobosque, siempre en jungla muy densa y, por lo general, a no más de unos centenares de metros de un arroyo o una charca (Johnsgard, 1986). En cautividad, Howman dice que es probable que prefiera una cesta de nidificación colocada a varios pies del suelo antes que una caja en el suelo, como todos los faisanes pavo (Howman, 1979; Howman, 1993; Howman, 1996). La ficha original dice que la hembra no es buena incubadora, por lo que recomienda recurrir a otra hembra de faisán, una gallina pequeña o la incubadora (véase el capítulo de cría en cautividad) (Hernández García, 2014).
Puesta e incubación
Las puestas son de uno o dos huevos de color crema claro, que miden 45 × 35 mm, y en cautividad suelen producirse entre cuatro y cinco al año. Una vez que salen del huevo hay que enseñar a los polluelos a comer; su cría no presenta dificultades cuando han empezado a picotear, siempre que se les cuide debidamente. (Beebe, 1922; Delacour, 1977; Hernández García, 2014; Johnsgard, 1986)
| Fuente | Huevos por puesta | Incubación (días) | Observaciones |
|---|---|---|---|
| Beebe (1922) | — | 21 | como en el gris; como máximo, ocho huevos en cuatro puestas de una hembra en una temporada; el número de huevos y los hábitos, idénticos a los del gris |
| Delacour (1977) | — | 22 | huevo blanco crema, 45 × 35 mm; cría casi todo el año |
| Gerrits (1974) | 2 (lo normal) | 22 | empieza a poner por lo general en marzo; cría casi continua |
| Roles (1976) | 2 | 22 | la cría suele empezar en abril |
| Howman (1979, 1996) | 2 | 22 | jaula mínima de 9,3–14 m² |
| Howman (1993) | 2 | 21–22 | situación en cautividad: razonable, pero dispersa fuera de América |
| Johnsgard (1986) | 1–2 | 21 | de tres a seis puestas por temporada en Florida, con 21 días entre ellas; huevo de 45 × 35 mm y 30,4 g |
| HBW (1994) | 1–2 | 21 | en cautividad |
| Madge y McGowan (2002) | 1–2 | 21 | cría todo el año en cautividad; un nido con un huevo en libertad |
| BOW (recuadro) | 1–2 | 21 | huevos blanco cremoso |
| Libro del autor (2014) | 1–2 | 21 | de cuatro a cinco puestas al año en cautividad; 45 × 35 mm |
| Criadero Chintaguay | 2 | 22 | madurez de 1–2 años; puesta a principios de marzo (N) o de septiembre (S) |
(Beebe, 1922; BOW, 2020; del Campo, 2006; del Hoyo et al., 1994; Delacour, 1977; Gerrits, 1974; Hernández García, 2014; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976)
Número de puestas
La ficha original y Delacour (para el género) dan cuatro o cinco puestas al año (Delacour, 1977; Hernández García, 2014). Beebe da como máximo ocho huevos en cuatro puestas de una hembra en una temporada (Beebe, 1922). En Florida, según Johnsgard, de tres a seis puestas de uno o dos huevos, con un intervalo medio de 21 días entre puestas sucesivas (Johnsgard, 1986). Delacour (1978) dice que los grises y los de Germain ponen solo dos huevos por puesta, pero que, si se retiran, pueden poner hasta cinco veces entre marzo y junio (Delacour, 1978). Delacour (1977) añade que los huevos de faisán pavo no se conservan mucho tiempo y deben ponerse a incubar a los pocos días de la puesta (Delacour, 1977).
Los polluelos
Los pollos nacen con plumón pardo castaño oscuro por encima y más beige por debajo (BOW, 2020; del Hoyo et al., 1994). Delacour los describe «del patrón habitual y oscuros» (Delacour, 1977). Según Johnsgard, son extremadamente delicados y casi exclusivamente insectívoros, y el desarrollo de los jóvenes parece seguir un patrón muy parecido al del gris, con técnicas avícolas de cría esencialmente iguales (Flieg, 1973) (Johnsgard, 1986). En el gris, según Johnsgard, los jóvenes siguen a la madre bajo la cobertura de su cola, que lleva baja y algo abierta; cuando la hembra encuentra un bocado, llama y los pollos salen corriendo a cogerlo y vuelven enseguida al abrigo de su cola; en los primeros días se alimentan directamente del pico de la madre (Johnsgard, 1986). No hay datos específicos de esta especie en libertad (BOW, 2020; del Hoyo et al., 1994).
Cría en cautividad
Una especie que se cría desde 1875, rústica pero sensible al frío, nerviosa, con puestas de uno o dos huevos y pollos delicados los primeros días.
Los criadores la conocen desde 1875: se adapta bien a la pajarera, cría casi todo el año y se mantiene sobre todo en colecciones grandes, pero es sensible al frío, nerviosa y de puestas pequeñas. (Beebe, 1922; Delacour, 1977; Gerrits, 1974; Hernández García, 2014; Johnsgard, 1986)
Instalaciones y carácter
Esta especie no es muy resistente al frío, por lo que, para obtener buenos resultados, es preciso que disponga de un lugar donde refugiarse de las condiciones adversas de nuestro clima. Precisa, además, una pajarera de entre 9 y 14 m², con vegetación y complementos que enriquezcan la instalación, con el fin de proteger a la hembra si llega el caso. (Hernández García, 2014)
Howman recomienda una pajarera mínima de 100 a 150 pies cuadrados (9,3 a 14 m²) para una pareja, con un buen refugio y, quizá, algo de calor en invierno (Howman, 1979; Howman, 1993; Howman, 1996). Delacour dice que es resistente en los países templados, casi tanto como la gris, aunque conviene darle un refugio cerrado con frío intenso; Gerrits recomienda un refugio cerrado en invierno; Delacour (1978) indica que los grises y los de Germain necesitan un refugio con calefacción solo si la temperatura baja de 20 °F (unos −7 °C) (Delacour, 1977; Delacour, 1978; Gerrits, 1974). Beebe, en cambio, dice que es más sensible al frío y menos resistente que la gris, y Johnsgard, que, como los demás faisanes pavo, suele vivir muchos años, pero es relativamente sensible al frío (Beebe, 1922; Johnsgard, 1986). Roles la considera algo menos resistente que la gris (Roles, 1976). Delacour recomienda, para el género, aislar cada pareja, aunque en muy contadas ocasiones se han mantenido tríos con éxito, y asocia a veces a los faisanes pavo con tragopanes y gallos de la jungla en grandes pajareras plantadas, pero casi siempre el argus los perseguía por parecerse demasiado a ellos (Delacour, 1977). Howman dice que parece más salvaje que la mayoría de los faisanes pavo, con la costumbre de alzar el vuelo y lanzar un fuerte y áspero grito de alarma si se la sobresalta (Howman, 1979; Howman, 1993; Howman, 1996); un recinto con cobertura vegetal densa puede ayudar a que el ave se sienta segura. Recomendación editorial: ofrecer refugio seco, vegetación densa y cestas de nidificación elevadas.
Su reproducción resulta difícil, debido a que las puestas son poco numerosas y a que es una especie muy nerviosa. (Hernández García, 2014)
Edad de cría
| Fuente | Plumaje adulto o madurez | Observación |
|---|---|---|
| Howman (1979, 1993, 1996) | plumaje adulto completo el primer año | (Howman, 1979; Howman, 1993; Howman, 1996) |
| Johnsgard (1986) | plumaje adulto y, al parecer, madurez sexual en el primer año | probablemente la fertilidad mejora en el segundo año (Johnsgard, 1986) |
| Delacour (1977) | macho de primer año como el adulto, pero con ocelos negruzcos, espolones apenas indicados y cola más corta | para el género, el plumaje adulto se alcanza en el segundo año (Delacour, 1977) |
| Madge y McGowan (2002) | macho de primer año más pequeño y apagado, con espolones débiles | (Madge y McGowan, 2002) |
| Criadero Chintaguay | madurez sexual de 1–2 años | (del Campo, 2006) |
(del Campo, 2006; Delacour, 1977; Howman, 1979; Howman, 1993; Howman, 1996; Johnsgard, 1986; Madge y McGowan, 2002)
Cortejo y puesta
Las puestas se describen en el capítulo de reproducción; el comportamiento nupcial, en el de cortejo. En cautividad, Delacour (1978) dice que hay que incubar los huevos lo antes posible, porque no se conservan tan bien como los de otros faisanes, y, si se retiran, la hembra pone hasta cinco veces entre marzo y junio; una hembra ligera que llame bien a los pollos es mejor que una pesada (Delacour, 1978).
Incubación
El periodo de incubación dura 21 días y la puesta suele comenzar a principios de marzo. Es recomendable recurrir a una hembra de otro faisán, a una gallina pequeña o a la propia incubadora, ya que la hembra no es buena incubadora. (Hernández García, 2014)
La pauta general de incubación artificial de del Campo, medida siempre «a la altura media del huevo», es la siguiente (del Campo, 2006):
| Fase | Valor recomendado |
|---|---|
| Conservación de los huevos antes de incubar | 13–15 °C y 75 % de humedad relativa, con la punta fina hacia abajo |
| Cuándo empezar a incubar | Al día siguiente de la puesta y antes de los 10 días (lo ideal: no más de 7); la fertilidad cae deprisa con la edad del huevo |
| Precalentamiento | 6–8 horas a unos 23 °C antes de entrar en la incubadora, para evitar el choque térmico y la condensación |
| Temperatura | 37,5 °C durante toda la incubación, hasta que el pollo se seca |
| Humedad relativa | 55–60 % hasta tres días antes de la eclosión y 65–70 % durante los tres últimos días; por encima del 70 % hay riesgo de ahogo |
| Volteo | 3 o 4 veces al día, hasta tres días antes de la eclosión |
| Últimos tres días | Sin volteo; la temperatura baja un grado y la humedad sube como máximo un 10 %. Conviene pasar los huevos a una nacedora |
| Duración (faisán pavo de Germain) | 22 días según la tabla de postura; 21 según el libro del autor, Johnsgard, Madge y McGowan, el HBW y BOW; 21–22 según Howman (1993) |
| Después de nacer | 24–48 horas en la nacedora, sin comida ni agua: se secan y viven de la reserva del saco vitelino (que les basta de 3 a 4 días) |
Pauta general de del Campo para faisanes; solo la duración es específica de la especie (BOW, 2020; del Campo, 2006; del Hoyo et al., 1994; Hernández García, 2014; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002).
Crianza de los pollos
Una vez que salen del huevo hay que enseñar a los polluelos a comer; su cría no presenta dificultades cuando han empezado a picotear, siempre que se les cuide debidamente (véase el capítulo de reproducción) (Hernández García, 2014). Delacour dice, para los faisanes pavo, que los pollos son delicados los primeros días, se refugian bajo la cola de la madre y comen solo de su pico, sin querer picar el alimento del suelo; que, criados bajo una gallina enana, esta debe ser mansa y ligera; que, si no, hay que darles de comer a mano insectos con la punta de una aguja o pinzas; y que asociar uno o dos polluelos de faisán dorado con ellos les enseña a comer y permite criarlos en criadoras eléctricas, aunque no hay que mezclarlos con demasiados otros, con seis como máximo; comen poco y viven del insecto vivo, sobre todo de gusanos de la harina, los primeros días o semanas (Delacour, 1977). Gerrits recoge el mismo consejo de Delacour (Gerrits, 1974). Howman, para el gris, aconseja criar los pollos bajo una gallina enana y, si se usa incubadora y lámpara, dar de comer a mano gusanos de la harina o larvas limpias de mosca los primeros días (Howman, 1979; Howman, 1993; Howman, 1996).
| Semana | Días | Temperatura | Dónde |
|---|---|---|---|
| 1 | 1–2 | 36 °C | Nacedora |
| 1 | 2–7 | 32 °C | Criadora |
| 2 | 8–14 | 30 °C | Criadora |
| 3 | 15–21 | 28 °C | Criadora |
| 4 | 22–28 | 26 °C | Criadora |
| 5 | 29–35 | 24 °C | Jaula de recría (calor solo de noche durante la primera semana) |
| 6–8 | 36–56 | sin aporte | Jaula de recría |
Pauta general de calor suplementario del criadero Chintaguay para faisanes; lo decisivo es observar a las aves (del Campo, 2006).
La anilla
Corder, que reproduce la tabla de anillas de Aviornis, da para el faisán pavo de Germain («Germain’s PP») un diámetro de 10 mm, el mismo que para los faisanes pavo de Sumatra, de Rothschild, gris, malayo, de Palawan y de Borneo (Corder).
Híbridos en la pajarera
Delacour dice que los híbridos entre el faisán pavo gris y el de Germain se han producido con frecuencia, y que en cambio los faisanes pavo no parecen cruzarse con facilidad con otros galliformes (Delacour, 1977). Johnsgard recoge la misma frase: las dos formas se han hibridado a menudo en cautividad (Johnsgard, 1986). La tabla de hibridación del criadero Chintaguay, adaptada de Johnsgard (1999), marca para el cruce de espolonero gris con espolonero de Germain «hibridación reportada en cautividad» y no marca ningún otro cruce para el de Germain (del Campo, 2006; Johnsgard, 1999). Avibase registra el híbrido Polyplectron bicalcaratum × germaini (Avibase). Ninguna de las fuentes consultadas dice si los híbridos son fértiles. Recomendación editorial: no mezclar la especie con el faisán pavo gris en un programa de conservación; las aves obtenidas así pierden su valor para la cría de línea pura.
Longevidad y datos de cautividad
Beebe cuenta que de seis aves que pasaron por el Jardín Zoológico de Londres, la que más tiempo vivió alcanzó cuatro años menos un mes, y que la vida media fue de un año y diez meses (Beebe, 1922). Johnsgard anota, para los faisanes pavo en general, que suelen vivir muchos años (Johnsgard, 1986). Las dos afirmaciones no son comparables (aves de zoológico de hace un siglo y una observación general), y no hay datos de longevidad máxima más recientes en las fuentes consultadas.
Cría para la conservación
En el reparto de programas de conservación ex situ de la EAZA del año 2000, el libro del autor sitúa al faisán pavo de Germain en la categoría de «seguimiento de población», es decir, de especie ligeramente amenazada cuyas poblaciones cautivas conviene controlar por si en el futuro necesitan un plan más completo; el faisán pavo de Rothschild y el malayo figuraban como ESB europeo, y el de Palawan, como EEP (Hernández García, 2014). Fuller y colaboradores incluyen al faisán pavo de Germain entre los candidatos a un manejo ex situ de alto nivel, con otros faisanes, y calculan su población cautiva en 100–300 aves (Fuller y Garson, 2000). BirdLife dice que la especie está sujeta a conservación ex situ, pero que no se conoce un programa coordinado de cría en cautividad con fines de conservación; en Europa se declararon en 2021 32 machos, 33 hembras y 3 pollos sin sexar entre los miembros de la WPA de siete países (BirdLife DataZone, 2023). El libro del autor da unos 800 ejemplares en cautividad «según los datos más recientes» (Hernández García, 2014). Los datos de censos de la WPA y de ZIMS por especie se añaden después en bloques propios; las cifras de esta ficha son las que dan las fuentes bibliográficas.
Estado de conservación
De casi amenazada a vulnerable: una población de pocos miles de aves, que desciende por la pérdida de bosque de tierras bajas y por los lazos.
Se enfrenta a un riesgo alto de extinción en estado silvestre; población en descenso (tendencia inferida). Región: Sudeste asiático.
- LC
- NT
- VU
- EN
- CR
- EW
- EX
- Preocupación menor
- Casi amenazado
- Vulnerable
- En peligro
- En peligro crítico
- Extinto en la naturaleza
- Extinto
Escala de la Lista Roja de la UICN, de menor a mayor riesgo de extinción. La categoría de esta especie aparece destacada.
La justificación de la categoría
La UICN la clasifica hoy como vulnerable (VU) por los criterios A2cd+4cd y C2a(i) (BirdLife DataZone, 2023; Wikipedia). BirdLife justifica la categoría así: la especie, endémica del sur de Indochina, está amenazada por la rápida conversión de su hábitat adecuado (el bosque de tierras bajas) a la agricultura, y por el efecto añadido de la caza, sobre todo con lazos; se sospecha que los descensos han superado el 30 % en los últimos 19 años (tres generaciones) y que la población puede contar ya con menos de 10.000 individuos maduros (BirdLife DataZone, 2023). Los datos del criterio A son un descenso pasado de entre el 30 y el 49 %, uno futuro del 20 al 29 % y, para el periodo 2005–2024, de entre el 30 y el 49 %; la tendencia actual es decreciente, con derivación inferida, y se estima que hay entre 5 y 50 subpoblaciones (23 como mejor estima), sin que todos los individuos estén en una sola (BirdLife DataZone, 2023). Wikipedia atribuye la categoría a la continua pérdida de hábitat y al rango limitado (Wikipedia). La ficha original lo resume así: la reevaluación de 2023 de la Lista Roja de la UICN elevó el grado de amenaza del faisán pavo de Germain de casi amenazado (NT) a vulnerable (VU), debido a la continua pérdida de bosque y a su área de distribución reducida, limitada al sur de Vietnam y al extremo este de Camboya (UICN/BirdLife, 2023) (BirdLife DataZone, 2023; Hernández García, 2014).
Cómo ha ido cambiando la valoración
| Año | Fuente | Valoración |
|---|---|---|
| 1988 | BirdLife (historial) | amenazada («Threatened») |
| 1994 | HBW; BirdLife (historial) | «raro»; Mace-Lande: vulnerable; vulnerable en el historial de BirdLife (BirdLife DataZone, 2023; del Hoyo et al., 1994) |
| 1996 | BirdLife (historial); Howman | vulnerable (BirdLife DataZone, 2023; Howman, 1996) |
| 2000 | Fuller y Garson; BirdLife (historial) | vulnerable, criterios C1; C2a (BirdLife: C1+2a(i)) (BirdLife DataZone, 2023; Fuller y Garson, 2000) |
| 2002 | Madge y McGowan | vulnerable (Madge y McGowan, 2002) |
| 2004 | BirdLife (historial) | vulnerable, criterio C2a(i) (BirdLife DataZone, 2023) |
| 2005, 2008, 2012 y 2016 | BirdLife (historial) | casi amenazada (NT), criterio C2a(i) (BirdLife DataZone, 2023) |
| 2023 | BirdLife, Wikipedia, BOW | vulnerable, criterios A2cd+4cd; C2a(i) (BirdLife DataZone, 2023; BOW, 2020; Wikipedia) |
BirdLife advierte de que un cambio de categoría no indica necesariamente un cambio real de la situación de la especie, sino que puede reflejar un mejor conocimiento (BirdLife DataZone, 2023).
El historial en la Lista Roja, según BirdLife
| Año | Categoría de la Lista Roja | Criterios |
|---|---|---|
| 2023 | Vulnerable (VU) | A2cd+4cd; C2a(i) |
| 2016 | Casi amenazada (NT) | C2a(i) |
| 2012 | Casi amenazada (NT) | C2a(i) |
| 2008 | Casi amenazada (NT) | C2a(i) |
| 2005 | Casi amenazada (NT) | C2a(i) |
| 2004 | Vulnerable (VU) | C2a(i) |
| 2000 | Vulnerable (VU) | C1+2a(i) |
| 1996 | Vulnerable (VU) | — |
| 1994 | Vulnerable (VU) | — |
| 1988 | Amenazada (T) | — |
Evolución de su estado de conservación 2023 – Vulnerable (VU) 2016 – Near Threatened (NT) 2012 – Near Threatened (NT) 2008 – Near Threatened (NT) 2005 – Near Threatened (NT) 2004 – Vulnerable (VU) 2000 – Vulnerable (VU) 1996 – Vulnerable (VU) 1994 – Vulnerable (VU) 1988 – Threatened (T) (BirdLife DataZone, 2023; Hernández García, 2014)
- 48.700km²de extensión de presencia, según BirdLife (2023)
- 5.400–27.000individuos madurosestima de BirdLife; mejor estima, 7.500–15.000
- VU2023criterios A2cd+4cd; C2a(i); tendencia decreciente
Población silvestre: todas las estimas
| Año | Fuente | Estima | Base |
|---|---|---|---|
| 1994 | HBW | menos de 10.000 individuos; probablemente en descenso | datos anecdóticos y estimación del hábitat que queda (del Hoyo et al., 1994) |
| 2000 | Fuller y Garson | sin cifra; población pequeña, en descenso y muy fragmentada | clasificación vulnerable por los criterios C1 y C2a (Fuller y Garson, 2000) |
| 2002 | Madge y McGowan | menos de 10.000 individuos | datos anecdóticos y hábitat que queda; en descenso por la pérdida de hábitat (Madge y McGowan, 2002) |
| 2015 (texto de BOW) | BOW (recuadro) | 6.000–15.000 individuos, probablemente en descenso; la subpoblación del sur de Mondulkiri (Camboya) podría superar el millar | información en buena parte anecdótica; área global de 38.700 km² (BOW, 2020) |
| 2022 | BirdLife (2023) | 5.400–27.000 individuos maduros; mejor estima, 7.500–15.000 | calidad de los datos media; derivación estimada; entre 5 y 50 subpoblaciones (23); tendencia decreciente (inferida) (BirdLife DataZone, 2023) |
(BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002)
La estima de BirdLife se apoya en la densidad de Cat Tien (4,33 machos que cantan por km²) y en el área de bosque: Savini y colaboradores (2021) calcularon que las manchas de bosque de más de 40 km² sumaban 13.300 km² en 2018 en el rango de la especie, aunque hay pocos registros en el límite septentrional de su rango; hasta 2021 se sospecha una nueva reducción, a unos 12.600 km² (Global Forest Watch, 2022) (BirdLife DataZone, 2023). Con la mitad de la densidad media de Cat Tien y una ocupación del 50 %, la población máxima sería de 13.500 machos que cantan (unas 27.000 aves maduras); con un cuarto de la densidad y un 20 % de ocupación, la mínima, de 2.700 machos (unas 5.400 aves maduras); y como mucho del hábitat se encuentra en una matriz de zonas agrícolas, la población podría ser aún menor (BirdLife DataZone, 2023).
Tendencia
BirdLife califica la tendencia de decreciente, con derivación inferida, y da un descenso continuado de individuos maduros, de la extensión de presencia, de la superficie de ocupación, del número de localidades y del de subpoblaciones (BirdLife DataZone, 2023). El HBW y Madge y McGowan, en los años noventa, ya la daban en descenso por la pérdida de hábitat (del Hoyo et al., 1994; Madge y McGowan, 2002). Delacour la daba por común en los lugares adecuados; Madge y McGowan señalan que en los años sesenta se la consideraba extendida por todo el sur de Vietnam y que ahora hay pocas localidades recientes; Johnsgard, en 1986, decía que no había información real sobre su estado, y suponía que su capacidad de usar bosque secundario denso podía haberla ayudado a sobrevivir (Delacour, 1977; Johnsgard, 1986; Madge y McGowan, 2002).
Medidas de conservación
Fuller y colaboradores le dedican el proyecto 20 de su plan de acción: prospectar los lugares adecuados que quedan en Vietnam y en el este de Camboya, investigar el uso de hábitats secundarios y degradados, y promover una gestión mejor de las áreas protegidas con la especie; justifican el proyecto en que su rango se ha reducido y fragmentado por la tala comercial y los programas de reasentamiento humano, que han aumentado la caza y la perturbación del hábitat, y proponen prospectar los bloques de bosque que queden, con atención especial a la Reserva Natural de Bui Gia Map, y designar nuevas áreas protegidas (Fuller y Garson, 2000). Entre los objetivos del plan figuran buscar la especie en el este de Camboya, para comprobar su distribución y su estado allí, y establecer un área protegida en el suroeste de la provincia de Lam Dong, donde la especie se da en buen número; además, promover un control más eficaz de la invasión humana y de la caza en las áreas protegidas con poblaciones (Fuller y Garson, 2000). BirdLife anota que existe el plan de acción (Fuller y Garson, 2000), que no hay un esquema de seguimiento sistemático, que se han identificado los sitios de conservación en todo el rango, que no hay control de especies invasoras ni plan de gestión de la caza, que está sujeta a conservación ex situ, que ha habido programas de educación y sensibilización (desarrollo comunitario y educación para la conservación) y que está incluida en la legislación internacional y sujeta a controles de comercio (BirdLife DataZone, 2023). Entre las acciones necesarias, BirdLife propone proteger todo el hábitat adecuado, hacer más estricto el control de la caza y de los lazos, y cuantificar con mayor exactitud la población y su presencia en los fragmentos pequeños de bosque (BirdLife DataZone, 2023). El HBW y Madge y McGowan piden mejor información sobre la seguridad que ofrecen las áreas protegidas y más áreas protegidas (del Hoyo et al., 1994; Madge y McGowan, 2002).
Poblaciones introducidas y asilvestradas
Ninguna de las fuentes consultadas menciona poblaciones introducidas, asilvestradas o reintroducidas de esta especie. BirdLife da como únicos países de presencia Camboya y Vietnam, ambos de origen nativo, y contesta «no» a la pregunta de si se ha introducido o reintroducido con éxito (BirdLife DataZone, 2023); Beebe, Delacour, Johnsgard, Madge y McGowan, el HBW, Fuller y Garson, Howman, Roles, BOW y Wikipedia tampoco registran sueltas de la especie (Beebe, 1922; BOW, 2020; del Hoyo et al., 1994; Delacour, 1977; Fuller y Garson, 2000; Howman, 1993; Johnsgard, 1986; Madge y McGowan, 2002; Roles, 1976; Wikipedia). Madge y McGowan sí recogen poblaciones introducidas en el Reino Unido de otros faisanes, pero no de este (Madge y McGowan, 2002). Por tanto, no hay datos de poblaciones introducidas que dar.
Población en cautividad
| Fecha | Fuente | Población en cautividad |
|---|---|---|
| 1974 | Gerrits | escasa en Europa (Gerrits, 1974) |
| 1976 | Roles | sin cifra; la cita entre las especies criadas en cautividad desde 1875 (Roles, 1976) |
| 1977 | Delacour | bien establecida en los Estados Unidos y rara en Europa (Delacour, 1977) |
| 1979, 1996 | Howman | casi todas las aves cautivas, en América (Howman, 1979; Howman, 1996) |
| 1993 | Howman | situación razonable, pero dispersa fuera de América (Howman, 1993) |
| 2000 | Fuller y Garson | 100–300 aves (Fuller y Garson, 2000) |
| 2000 | Libro del autor (reparto de la EAZA) | «seguimiento de población» (Hernández García, 2014) |
| 2014 | Libro del autor | unos 800 ejemplares, «según los datos más recientes» (Hernández García, 2014) |
| 2021 | BirdLife, a partir de J. Corder | en Europa, 32 machos, 33 hembras y 3 pollos sin sexar entre miembros de la WPA, en siete países; sin programa coordinado de cría (BirdLife DataZone, 2023) |
Los detalles de cría están en el capítulo de cría en cautividad (BirdLife DataZone, 2023; Delacour, 1977; Fuller y Garson, 2000; Gerrits, 1974; Hernández García, 2014; Howman, 1979; Howman, 1993; Howman, 1996; Roles, 1976).
Áreas protegidas
Sobrevive en varias poblaciones de las áreas protegidas de Vietnam. Sin embargo, la escasez de personal y de recursos en algunas de ellas hace que persistan la caza, las perturbaciones y la tala a pequeña escala. Es imprescindible que se establezcan controles más eficaces de la invasión humana y de la caza en las áreas protegidas. En cautividad no es un faisán abundante: según los datos más recientes, se calcula que hay unos 800 ejemplares. (Fuller y Garson, 2000; Hernández García, 2014)
Las áreas con la especie, con su superficie y su porcentaje de protección, se recogen en el capítulo de distribución (nueve sitios IBA/KBA, con una cobertura media de áreas protegidas del 79 %) (BirdLife DataZone, 2023).
CITES
La especie figura en el Apéndice II de la CITES según BirdLife, Wikipedia, BOW (recuadro) y el HBW; el libro de Howman (1993) la rotula con «CITES II», y BirdLife la anota entre los instrumentos de política de 183 partes (BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Howman, 1993; Wikipedia). El plan de acción de Fuller y colaboradores recoge la categoría de la CITES con una lectura dudosa en el texto digital (aparece como «Apéndice I]»), que parece una errata de OCR; se da por buena la coincidencia de las demás fuentes en el Apéndice II (Fuller y Garson, 2000). La lista de la CITES que reproduce el criadero Chintaguay incluye Polyplectron germaini, aunque en el texto extraído no se puede leer en qué columna (apéndice) figura (del Campo, 2006).
Amenazas y protección
La pérdida de bosque de tierras bajas, la caza con lazos —también dentro de las áreas protegidas— y el comercio de aves.
Las amenazas que citan las fuentes son la destrucción y fragmentación del bosque de tierras bajas —por la tala comercial, el reasentamiento humano y la agricultura de subsistencia y comercial— y la caza con armas y lazos, que continúa incluso dentro de las áreas protegidas. (BirdLife DataZone, 2023; BOW, 2020; del Hoyo et al., 1994; Fuller y Garson, 2000; Madge y McGowan, 2002)
Pérdida y fragmentación del hábitat
Amenazas: históricamente, el faisán pavo de Germain ha sufrido un importante descenso debido a la tala de bosques para la subsistencia y para el comercio local, en particular el cultivo de café y de nueces de anacardo, así como a la tala comercial. Gran parte de los bosques de tierras bajas del hábitat de la especie han sido destruidos o gravemente fragmentados. La caza con armas y trampas, incluso dentro de las áreas protegidas, es también una importante amenaza para esta especie. (Fuller y Garson, 2000; Hernández García, 2014)
Fuller y colaboradores atribuyen los grandes descensos a la pérdida y la fragmentación del bosque por la tala comercial y los programas de reasentamiento, que han agravado el desbroce de tierras para el cultivo de subsistencia y, en algunos lugares, para el cultivo comercial de café y de anacardos (Fuller y Garson, 2000). Madge y McGowan citan las mismas causas: tala comercial, reasentamiento, agricultura de subsistencia y cultivos comerciales (Madge y McGowan, 2002). El HBW habla de sobreexplotación para la alimentación y de destrucción del hábitat por la agricultura (del Hoyo et al., 1994). BirdLife precisa que Savini y colaboradores (2021) estimaron una contracción de alrededor del 27,5 % del hábitat adecuado entre 2000 y 2018, y que Global Forest Watch indica pérdidas forestales parecidas, del 24 al 27 %, a lo largo de tres generaciones (18,75 años) entre 2002 y 2021; aunque la especie se aventura a veces en el bosque secundario, la mayor parte de la pérdida de bosque en la región ha sido una tala total (BirdLife DataZone, 2023). Wikipedia atribuye la categoría de amenaza a la continua pérdida de hábitat y al rango limitado (Wikipedia). Johnsgard, en 1986, recordaba que la región había sufrido grandes cambios ecológicos por la guerra, aunque suponía que la capacidad de la especie de usar el bosque secundario denso tras la defoliación, la deforestación o la tala quizá le había permitido sobrevivir bastante bien (Johnsgard, 1986).
| Amenaza (BirdLife) | Plazo y alcance | Impacto |
|---|---|---|
| Agricultura industrial (cultivos no madereros) | en curso; minoría de la población (<50 %); descenso rápido | bajo |
| Tala y aprovechamiento de madera: efectos no intencionados de la tala de subsistencia o a pequeña escala | en curso; minoría; descenso lento y significativo | bajo |
| Tala y aprovechamiento de madera: efectos no intencionados de la tala a gran escala | en curso; minoría; descenso rápido | bajo |
| Caza y captura de animales terrestres (la especie es el objetivo) | en curso; mayoría de la población (50–90 %); descenso lento y significativo | bajo |
BirdLife lo clasifica además como degradación y conversión del ecosistema o mortalidad de la especie, según el caso (BirdLife DataZone, 2023).
Caza y trampeo
La importancia de la caza se ha valorado de forma distinta con el tiempo: Fuller y colaboradores (2000), citando a Nguyen Cu, la consideraban una amenaza menor que la pérdida de hábitat, aunque presente incluso dentro de las áreas protegidas, y atribuían su persistencia a la falta de personal y de recursos (Fuller y Garson, 2000). BirdLife (2023) dice que la presión de caza en el rango de la especie es alta y que es una amenaza sustancial; que el uso de lazos es especialmente generalizado, incluso dentro de las áreas protegidas, que el impacto no se ha cuantificado, pero que, por la escala del trampeo en Indochina, se supone que provoca descensos, y que en el Santuario de Fauna de Seima, en Camboya, los guardas retiraron una media de 942 lazos al año entre 2010 y 2018 (BirdLife DataZone, 2023). La ficha original califica la caza con armas y trampas de «importante amenaza» (Hernández García, 2014). Delacour escribe que la especie se captura con facilidad con lazos, y Germain contaba que los annamitas llevaban aves capturadas con lazos (Delacour, 1977; Elliot, 1872).
Uso y comercio
BirdLife señala usos de la especie como alimento humano, de subsistencia y a escala nacional, y como animal de exhibición o mascota, a escala internacional; hay algunos indicios de comercio ilegal de aves capturadas en libertad, nacional e internacional, y el mercado principal de consumidores es Indonesia (según S. Bruslund, 2023); el comercio ilegal, doméstico e internacional, se considera una amenaza (BirdLife DataZone, 2023). Delacour cuenta que, hasta hacía poco, seguían llegando aves capturadas en libertad desde la India y desde Indochina (la frase se refiere al faisán pavo gris y al de Germain) (Delacour, 1977).
Protección legal
La especie figura en el Apéndice II de la CITES (véase el capítulo de conservación) (BirdLife DataZone, 2023; del Hoyo et al., 1994; Wikipedia). BirdLife dice que está incluida en la legislación internacional, que existen controles de comercio internacional y que subsisten poblaciones en varias áreas protegidas de Vietnam y Camboya (BirdLife DataZone, 2023). Las fuentes consultadas no detallan la legislación nacional de Vietnam ni de Camboya sobre la especie (BirdLife DataZone, 2023; Fuller y Garson, 2000).
Medidas propuestas
Las medidas propuestas por Fuller y por BirdLife se resumen en el capítulo de conservación: prospecciones en los bloques de bosque que quedan en Vietnam y en el este de Camboya, estudios sobre la tolerancia a la degradación del bosque, nuevas áreas protegidas (en el suroeste de la provincia de Lam Dong), mejor control de la invasión humana y de la caza en las áreas protegidas, y cuantificación de la población (BirdLife DataZone, 2023; Fuller y Garson, 2000).
Subespecies y variación
Una especie monotípica, sin variedades de color conocidas y con un único cruce frecuente en cautividad: el faisán pavo gris.
No se reconocen subespecies del faisán pavo de Germain, considerado en su día una subespecie del faisán pavo gris (Polyplectron bicalcaratum germaini). (Hernández García, 2014)
Todas las fuentes recientes coinciden: Johnsgard dice que no se reconoce ninguna subespecie; el HBW, Madge y McGowan y BOW la consideran monotípica; el libro del autor repite «ninguna», y Avibase la trata como especie plena (Avibase; BOW, 2020; del Hoyo et al., 1994; Hernández García, 2014; Johnsgard, 1986; Madge y McGowan, 2002). Solo Beebe (1922) la trataba como subespecie del gris, y el libro del autor sigue esa referencia para la forma «germaini» (Beebe, 1922; Hernández García, 2014).
Variación individual
Beebe, a partir de sus ejemplares, señala que el número de timoneras es casi siempre veinte, que nunca encontró veinticuatro y que en unos cinco ejemplares halló un número intermedio, y que en algunos hay una clara reducción en el tamaño, la perfección y el brillo del ocelo de la barba interna de las timoneras externas, que recuerda a la condición del faisán pavo malayo; añade que, en los machos de plumaje particularmente completo, aparecen restos de ocelos en el dorso bajo y hasta en la rabadilla alta, y que la piel de la cara es a veces casi escarlata (Beebe, 1922). Johnsgard (1986) y Delacour (1977) recogen la crítica de Lowe (1925), según la cual los ejemplares de Beebe no eran germaini típicos (Delacour, 1977; Johnsgard, 1986). Los hechos de variación geográfica no están descritos en las demás fuentes, que la dan sin subespecies.
- A. Rectrices centrales con ocelos bien desarrollados; zona facial desnuda grande en los adultos
- B. Manto y cubiertas con ocelos metálicos, tarsos con espolones; cabeza con cresta (machos)
- C. Plumaje ventral pardo; costados del pecho no iridiscentes; cola sin bandas o motas subterminales oscuras
- D. Rectrices externas sin ocelos en la barba interna; cola de menos de 350 mm: faisán pavo malayoPolyplectron malacense
- DD. Rectrices externas con ocelos en la barba interna; cola de más de 350 mm
- E. Color general gris negruzco oscuro; garganta no blanca; piel facial rojizaPolyplectron germaini
- EE. Color general gris claro; garganta blanca; piel facial amarillenta: faisán pavo grisPolyplectron bicalcaratum
- C. Plumaje ventral pardo; costados del pecho no iridiscentes; cola sin bandas o motas subterminales oscuras
- BB. Sin espolones ni cresta; iridiscencia del manto reducida o ausente (hembras)
- C. Rectrices externas con ocelos bien definidos en las dos barbas; ocelos del manto a menudo algo iridiscentes
- D. Márgenes posteriores de los ocelos dorsales redondeados, con un flequillo blanco suelto; cuerpo en general más gris: faisán pavo grisPolyplectron bicalcaratum
- DD. Márgenes posteriores de los ocelos dorsales con chevrones o bordes en flecha; cuerpo en general más pardoPolyplectron germaini
- C. Rectrices externas con ocelos bien definidos en las dos barbas; ocelos del manto a menudo algo iridiscentes
- B. Manto y cubiertas con ocelos metálicos, tarsos con espolones; cabeza con cresta (machos)
Híbridos
| Cruce | Resultado | Fuente |
|---|---|---|
| Faisán pavo de Germain × faisán pavo gris | híbridos producidos con frecuencia en cautividad; no se dice si son fértiles | Delacour; Johnsgard; criadero Chintaguay (tabla de hibridación); Avibase (híbrido bicalcaratum × germaini) |
| Faisán pavo de Germain × otros galliformes | los faisanes pavo no parecen cruzarse con facilidad con otros galliformes | Delacour |
| Otros cruces con el de Germain | no marcados en la tabla de hibridación | criadero Chintaguay (adaptada de Johnsgard, 1999) |
(Avibase; del Campo, 2006; Delacour, 1977; Johnsgard, 1986; Johnsgard, 1999)
Mutaciones de color
Ninguna de las fuentes consultadas menciona mutaciones de color ni variedades criadas de la especie.
Estudios genéticos
Los estudios moleculares la sitúan en un mismo clado junto al faisán pavo gris (P. bicalcaratum), al faisán pavo de cola de bronce (P. chalcurum) y al faisán pavo de montaña (P. inopinatum), como la forma probablemente más antigua de las cuatro; la ficha original lo atribuye a Wikipedia (Germain’s peacock-pheasant). BOW, por su parte, considera monotípica a la especie; a veces se la ha tenido por cercana al faisán pavo gris, pero los datos moleculares no respaldan esa relación estrecha; hay indicios, según un análisis molecular de 2001 (Kimball y colaboradores), de que forma un grupo con P. katsumatae, P. bicalcaratum, P. inopinatum y P. chalcurum, con exclusión del resto de especies del género (BOW, 2020; Wikipedia). Wikipedia advierte de que el método de calibración del reloj molecular de Kimball y colaboradores se sabe hoy inadecuado, y de que las fechas resultantes son demasiado bajas en los galliformes (Wikipedia). Los nombres «faisán pavo de montaña» y «faisán pavo de cola de bronce» de la ficha original son los de Wikipedia para el faisán pavo de Rothschild y el de Sumatra (Wikipedia).
Cultura y curiosidades
Un faisán dedicado a un veterinario del ejército francés, un animal de los sellos de Vietnam y un habitante del parque de Cat Tien.
Las fuentes consultadas no recogen mitos ni usos culturales tradicionales de esta especie; lo que sí recogen son un homenaje a su descubridor, sus apariciones en sellos de Vietnam y su presencia en el parque nacional de Cat Tien (BirdLife DataZone, 2023; Jobling, 2010; Wikipedia).
Sellos del mundo
Algunos sellos postales del mundo dedicados a esta especie.


Los tres sellos de la ficha original son de Vietnam. El de valor facial 50 lleva el rótulo «Polyplectron germaini» y muestra dos aves, una posada en una rama y otra en el suelo; el de 8.000 đồng, un ave de perfil sobre la hierba, con el manto moteado de ocelos violetas; el de 5.000 đồng, dos aves entre follaje, con una inscripción que se lee con dificultad y que incluye «Polyplectron germaini». No se lee con claridad el año de emisión de ninguno de los tres, y las fuentes consultadas no hablan de ellos.
Un faisán dedicado a un veterinario
El nombre honra a Louis Rodolphe Germain, nacido en 1827, veterinario del ejército francés en Indochina de 1862 a 1867 y en Nueva Caledonia de 1875 a 1878, que envió al Museo de París la piel con la que Elliot describió la especie (Beebe, 1922; Jobling, 2010). Elliot, en 1872, escribió que el Museo de París le debía a Germain muchas de sus adquisiciones más valiosas de aquel país lejano (Elliot, 1872).
En el bosque de Cat Tien
Wikipedia señala que el Parque Nacional de Cat Tien es un lugar donde la especie puede verse con facilidad; el HBW y Madge y McGowan hablan, respectivamente, de aves que se oían a diario en 1990 y de una especie común y a menudo encontrada en partes del parque (del Hoyo et al., 1994; Madge y McGowan, 2002; Wikipedia). Según Birds of the World, en noviembre de 2026 había 1.642 observaciones, 708 fotografías, 41 grabaciones y 17 vídeos de la especie en eBird y en la Macaulay Library (BOW, 2020).
Láminas, fotografías y libros
La especie figura en la lámina 26 (hembra) y la lámina 27 (macho) de la obra de Delacour, en la lámina 44 de la guía de Madge y McGowan y en la figura 45 de la de Gerrits; en las fotografías de Kenneth W. Fink de Howman (1993), en una de las fotografías de Delacour (1978) y en las láminas de aves cautivas de Roles (1976) (Delacour, 1977; Delacour, 1978; Gerrits, 1974; Howman, 1993; Madge y McGowan, 2002; Roles, 1976). Johnsgard reproduce las posturas del macho a partir de fotografías de Lincoln Allen (Johnsgard, 1986). La lámina «germaini» de Beebe (lámina LXXVII de la monografía de 1922) representaba, según Lowe (1925), una forma gris sin describir, bailyi (Beebe, 1922; Delacour, 1977; Johnsgard, 1986). Green-Armytage la recoge en Extraordinary Pheasants, donde cuenta que Germain fue el primero en dar a conocer la especie en Occidente al enviar una piel en 1866 (Green-Armytage, 2002).
El libro
Referencias bibliográficas recomendadas
En la sección de bibliografía encontrará materiales y referencias recomendadas para profundizar en el estudio de estas aves.
Bibliografía
Las obras en que se apoya esta ficha, por orden alfabético. Las citas del texto enlazan aquí.
- Avibase: la base de datos de aves del mundo (Lepage, D., Bird Studies Canada). Polyplectron germaini Elliot, DG 1866, identificador 9BB6A6B4D6A606F3. avibase.bsc-eoc.org. Consultada el 14 de noviembre de 2026.
- Beebe, W. (1922). A Monograph of the Pheasants, vol. IV. Londres: H. F. Witherby (para la New York Zoological Society).
- BirdLife International (2023). Polyplectron germaini. The IUCN Red List of Threatened Species 2023: e.T22679372A218732296. doi:10.2305/IUCN.UK.2023-1.RLTS.T22679372A218732296.en. Datos de la Lista Roja de la UICN (iucnredlist.org, versión 2026-1), consultados el 12 de noviembre de 2026.
- BirdLife International (2023). Species factsheet: Germain’s Peacock-Pheasant Polyplectron germaini. BirdLife DataZone (Lista Roja de la UICN, evaluación de 2023). datazone.birdlife.org. Descargada el 14 de noviembre de 2026. La ficha remite a Nguyen et al. (2018), Savini et al. (2021), Global Forest Watch (2022), Gray et al. (2021), Bird et al. (2020) y otras obras que no se han consultado directamente.
- Censo de la WPA (World Pheasant Association): base de datos pública de censos por especie, sección y año, 1999–2025. wpa.serena-mueller.ch/index1.php (consultada el 11 de noviembre de 2026). Los operadores del sitio no constan en la página.
- Corder, J. (s. f.). Breeding and Managing Pheasants. Módulo de los talleres de cría para la conservación de la World Pheasant Association.
- del Campo Palacios, P. P. (2005–2006). Crianza práctica de faisanes; Tabla de postura de faisanes; Variedades de faisanes; Temperaturas y humedades; TTT: Cómo comenzar, Alimentación de faisanes, Ovofagia y Traslado y recepción de faisanes. Criadero Chintaguay, Concepción (Chile). faisanes.cl. Material de distribución gratuita, no comercializable.
- del Hoyo, J., Elliott, A. y Sargatal, J. (eds.) (1994). Handbook of the Birds of the World, vol. 2: New World Vultures to Guineafowl. Barcelona: Lynx Edicions (familia Phasianidae: P. J. K. McGowan; ficha 146, Germain’s Peacock-pheasant, p. 547).
- Delacour, J. (1977). The Pheasants of the World (2.ª ed.). Hindhead: Spur Publications / World Pheasant Association (1.ª ed., 1951). Los datos de esta ficha se han contrastado con el ejemplar disponible de la 3.ª impresión (1964) de la 1.ª edición.
- Delacour, J. (1978). Pheasant Breeding and Care (5.ª ed. revisada y ampliada). Neptune City (NJ): T.F.H. Publications (© 1973 y 1978).
- eBird. Cornell Lab of Ornithology. Mapas de distribución y abundancia de las especies. ebird.org
- Elliot, D. G. (1872). A Monograph of the Phasianidae, or Family of the Pheasants, vol. 1. Nueva York: edición del autor (ejemplares digitalizados por la Biblioteca Estatal y Universitaria de Gotinga; el texto disponible procede de un OCR con erratas). Solo se cita el texto; no se usa la lámina.
- Fuller, R. A. y Garson, P. J. (eds.) (2000). Pheasants: Status Survey and Conservation Action Plan 2000–2004. Gland (Suiza) y Cambridge: UICN / World Pheasant Association.
- Gerrits, H. A. (1974). Pheasants including their Care in the Aviary. Londres: Blandford Press.
- Green-Armytage, S. (2002). Extraordinary Pheasants. Nueva York: Harry N. Abrams.
- Hernández García, I. (2013). Faisanes del mundo. Guía práctica. Volumen I. Edición del autor.
- Hernández García, I. (2014). Faisanes del mundo. Guía práctica. Volumen II. Edición del autor.
- Howman, K. (1979). Pheasants of the World: Their Breeding and Management. Edlington (Lincolnshire): K & R Books.
- Howman, K. (1993). Pheasants of the World: Their Breeding and Management (edición revisada y actualizada). Surrey (Columbia Británica): Hancock House / Hancock Wildlife Research Center.
- Howman, K. C. R. (1996). Introduction to Ornamental Pheasants. Surrey (Columbia Británica): Hancock House / World Pheasant Association.
- Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names: From Aalge to Zusii. Londres: Christopher Helm.
- Johnsgard, P. A. (1986). The Pheasants of the World. Oxford: Oxford University Press / Zoological Society of London.
- Johnsgard, P. A. (1999). The Pheasants of the World: Biology and Natural History (2.ª ed.). Washington: Smithsonian Institution Press. Tabla de hibridación traducida y adaptada por P. P. del Campo (v. 2.0, 2005).
- Madge, S. y McGowan, P. (2002). Pheasants, Partridges and Grouse: A Guide to the Pheasants, Quails, Grouse, Guineafowl, Buttonquails and Sandgrouse of the World. Londres: Christopher Helm.
- McGowan, P. J. K. y Kirwan, G. M. (2020). Germain’s Peacock-Pheasant (Polyplectron germaini), versión 1.0. En Birds of the World (J. del Hoyo, A. Elliott, J. Sargatal, D. A. Christie y E. de Juana, eds.). Cornell Lab of Ornithology, Ithaca (NY). birdsoftheworld.org/bow/species/gepphe1 · doi:10.2173/bow.gepphe1.01. El texto completo es de pago; en la consulta del 14 de noviembre de 2026 solo fue accesible la introducción (especie monotípica, 26 nombres, publicada el 4 de marzo de 2020, texto actualizado por última vez el 16 de octubre de 2015); los datos de esta ficha que se atribuyen a BOW proceden de los recuadros de la ficha original de esta web.
- Roles, D. G. (1976). Rare Pheasants of the World: A Study of Birds in Captivity. Liss (Hampshire): Spur Publications.
- Species360 (2026). ZIMS: informes «especies que tienen reporte para» de los géneros Afropavo, Argusianus, Catreus, Chrysolophus, Crossoptilon, Gallus, Lophophorus, Lophura, Pavo, Phasianus, Polyplectron, Pucrasia, Rheinardia, Syrmaticus y Tragopan; consulta del 11 de noviembre de 2026 aportada por el autor del sitio; copyright Species360.
- Wikipedia (en inglés). Germain’s peacock-pheasant. en.wikipedia.org/wiki/Germain%27s_peacock-pheasant (consultada el 14 de noviembre de 2026). Los datos atribuidos a Wikipedia proceden de los recuadros de la ficha original de esta web y del artículo vigente.
- Wikipedia (en inglés). Grey peacock-pheasant. en.wikipedia.org/wiki/Grey_peacock-pheasant (consultada el 14 de noviembre de 2026). Se cita solo por lo que dice de la dieta y de la filogenia de la especie próxima, que es lo que resume un recuadro de la ficha original de esta web.
Cómo citar esta ficha: Hernández García, I. (2007–2026). Faisán pavo de Germain — Polyplectron germaini. En Faisanes del Mundo. Fundación Zoo Koki, faisanesdelmundo.com/germain.php.


